本研究旨在探讨在C3H/HeJ小鼠斑秃模型以及过氧化氢(H2O2)诱导的人原代表皮黑素细胞损伤模型中,苦杏仁苷抗氧化和抗炎作用的潜在分子机制。
研究文章
苦杏仁苷通过调控FOXO3a信号通路抑制氧化应激并改善小鼠斑秃
* These authors contributed equally
本文内容
摘要
摘要
本文旨在探讨苦杏仁苷(AMG)对斑秃(AA)治疗作用的机制。 苏木精-伊红染色用于探究AMG对C3H/HeJ小鼠AA模型的肝肾毒性。在建立C3H/HeJ小鼠AA模型后及H2O2-损伤的人原代表皮黑素细胞(HPEMs),在AMG干预后,检测活性氧(ROS)含量以及叉头框O3A(FOXO3a)蛋白和基因的水平。采用生化试剂盒或 酶联免疫吸附测定 用于检测超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶4(GPX-4)、丙二醛(MDA)、白细胞介素-15(IL-15)、干扰素-γ(IFN-γ)的含量γ,以及白细胞介素-6 (IL-6)。通过Western blot检测MHC I、IL-15、FOXO3a、SOD、CAT、GPX-4和IFN-的水平。γIL-6 和 IL-15。通过 ChIP-PCR 检测 AMG 在 FOXO3a 调控下 SOD、CAT 和 GPX-4 启动子区的富集情况。同时,检测了 FOXO3a 低表达的 HPEMs 中 ROS 水平、细胞凋亡以及 FOXO3a、SOD、CAT 和 GPX-4 的蛋白和基因表达水平。 AMG 无潜在肝肾毒性,可降低皮肤中 MHC I 和 IL-15 蛋白以及血清 IL-15 的表达水平。AMG 可增强皮肤中 FOXO3a 蛋白及其基因的表达,并提高 SOD、CAT 和 GPX-4 水平,同时降低 ROS 和 MDA 水平。AMG 可抑制 MHC I 和 IFN-γIL-6、IL-15、MDA、细胞凋亡和HPEMs中ROS的产生,并提高SOD、CAT和GPX-4含量。重要的是,AMG可上调FOXO3a、SOD、CAT和GPX-4基因及蛋白的表达,并促进FOXO3a在SOD、CAT和GPX-4启动子区域的富集。 这些数据表明,AMG 可促进 FOXO3a 的表达,并抑制氧化应激和炎症反应,从而改善 C3H/HeJ 小鼠的 AA。
引言
斑秃(alopecia areata, AA)是一种以突发性、非瘢痕性脱发为特征的自身免疫性疾病,全球患病率约为2–3%,中国患者人数超过3000万1。流行病学数据显示,该病可发生于所有年龄阶段人群,但在青年人群中患病率较高,约60%的患者在20岁前首次发病,男女比例相近1,2。全球范围内,斑秃的年发病率约为0.2–0.3%,其中单灶性斑秃占40%,多灶性斑秃占35%,全秃占5%,普秃占2%3,4,5。在并发症方面,约30%的患者存在甲凹陷、纵嵴等甲损害,且合并甲状腺疾病、白癜风等自身免疫性疾病的共病率高于普通人群6,7。从危害角度看,斑秃不仅影响外观,还易引发抑郁、焦虑等心理问题,约70%的新发患者在发病前3个月内经历过重大应激事件8,9。若长期未接受治疗,患者可能进展为全秃或普秃,严重影响其社会功能和生活质量10。
目前,西医主要采用局部用药、口服药物、物理治疗和毛发移植相结合的方法治疗斑秃11,12。局部治疗主要包括米诺地尔溶液和皮质类固醇(如丙酸氟替卡松乳膏),通过刺激毛囊和抑制局部免疫反应来促进毛发生长,但长期使用可能导致皮肤萎缩等不良反应13,14。对于病情进展的患者,口服免疫抑制剂(如泼尼松和环孢素)可有效调节全身免疫反应,但需定期监测肝肾功能12,15。在物理治疗方面,窄谱中波紫外线照射和低能量激光治疗可通过改善微循环辅助毛发生长,但需多次治疗,且疗效因人而异16,17。对于顽固性病例,毛发移植手术可将健康的毛囊移植至脱发区域,但存在移植失败的风险,且术后需药物维持18。西医治疗的优势在于起效快、标准化程度高,尤其适用于早期局限性斑秃患者19。然而,其缺点也较为明显:激素类药物易出现反跳现象,免疫抑制剂副作用显著,且对全秃或普秃患者的疗效有限20,21。此外,治疗周期较长(通常为3–6个月),费用较高(如JAK抑制剂、生物制剂的年治疗费用超过10万元),也限制了其广泛应用19,22。基于上述诸多原因,作者亟需探索新的靶向药物。
氧化应激在斑秃(AA)的致病机制中起着重要作用。在黑素细胞色素合成过程中,会产生大量过氧化氢(H2O2)23,24。正常情况下,这些物质可被抗氧化酶(如超氧化物歧化酶(SOD)和过氧化氢酶(CAT))清除25。然而,在斑秃患者中,抗氧化酶的活性通常较低,导致氧化产物积累,进而引起DNA损伤和细胞凋亡26,27。这种氧化应激状态会进一步激活炎症反应,释放促炎介质(如TNF-α和IFN-γ),形成氧化应激与炎症之间的恶性循环28。炎症反应通过T淋巴细胞攻击毛囊,导致毛囊进入休止期并脱落29。临床研究发现,斑秃患者常伴有其他自身免疫性疾病(如甲状腺疾病)30,提示系统性免疫失调是重要的诱发因素。此外,氧化应激和炎症共同促进毛囊细胞凋亡,而凋亡信号的紊乱将进一步损害毛囊的再生能力,阻碍毛发再生31。因此,斑秃的治疗需要综合考虑抗氧化、抗炎以及调控凋亡通路,以打破这一恶性循环。
苦杏仁苷(AMG)是一种天然存在的氰苷类化合物,主要存在于蔷薇科(Rosaceae)植物的种子中(如杏仁、扁桃仁、桃仁和枇杷仁)32,33,34。既往研究表明,AMG可通过增强皮肤屏障功能改善银屑病35。同时,AMG的抗凋亡和抗氧化应激作用使其在治疗雄激素性脱发(AA)方面具有应用潜力36,37。已有证据还证实,AMG可抑制炎症反应,从而缓解C3H/HeJ小鼠的AA症状38。然而,AMG通过何种分子机制抑制炎症并缓解氧化应激以减轻AA尚鲜有报道。本研究主要阐明了AMG干预在C3H/HeJ小鼠AA模型及过氧化氢(H2O2)诱导的人原代表皮黑素细胞(HPEMs)损伤模型中,通过叉头框O3A(FOXO3a)信号通路介导的氧化应激事件。
方案
伦理批准与参与同意
涉及动物的实验方案经赛恩特生物科技有限公司伦理委员会授权(伦理批准号:SYST-2024-014),遵循ARRIVE 2.0指南和美国国立卫生研究院《实验动物护理与使用指南》。该方案同时获得四川省人民医院伦理委员会批准。’医院批准了将人类临床样本用于伦理研究。 体外 本研究已获得伦理委员会批准(伦理批准号:2024103)。所有组织捐赠者均已签署知情同意书。本研究所用试剂与设备的全部商业信息详见下文。 材料列表.
C3H/HeJ 小鼠 AA 模型构建与 AMG 给药
根据既往文献,我们诱导了C3H/HeJ小鼠的佐剂性关节炎模型,并使用AMG进行了治疗。38,39简而言之,将30只雌性C3H/HeJ小鼠(6周龄)随机分为三组:对照组、模型组和治疗组。–8周龄小鼠在随机分为五组(对照组、AA组、AMG-L组、AMG-M组和AMG-H组)前,先进行为期一周的适应期。除对照组外,其余四组通过在小鼠背部皮肤涂抹0.05 g咪喹莫特乳膏建立AA模型。涂抹每周进行三次,累计总剂量为九次。涂抹的皮肤区域面积为1.5 cm。 × 1.5 厘米。对照组和 AA 组小鼠每日灌胃给予 0.02 毫升/克生理盐水。而 AMG 组小鼠每日分别灌胃注射 60、90 和 120 毫克/公斤。给药周期为 21 天。为进行 AA 模型的一般观察和评估,一个边界清晰的圆形脱发斑块 ≥ 所需皮损直径应为1厘米,无瘢痕或严重炎症,且毛发干断裂。若小鼠出现弥漫性全身脱毛、严重皮肤溃疡或毛发自发快速再生,则予以排除。
高压脉冲电场
依照先前方法40选取在医院接受包皮环切术患者的健康皮肤组织,将其浸入75%乙醇中5分钟。随后,使用含有氨苄青霉素(100 U/mL)和硫酸链霉素(100mg/mL)的PBS反复冲洗皮肤组织,并在4℃下置于dispase II溶液中孵育。°置于4°C环境中过夜进行消化。将分离并剥离的表皮层切碎,通过无菌膜过滤以获得细胞悬液。离心后,收集沉降的下层细胞,随后重悬于不含血清的黑素细胞254培养基中,并以约5的密度重新接种。 × 105 在培养瓶中,并在 CO2 培养箱。经过三次传代后,使用纯化的黑素细胞进行后续实验。
建立 H2O2诱导的人黑素细胞氧化应激损伤模型及AMG干预
融合度为60%至80%的人黑色素细胞被分为对照组和不同浓度H处理组。2O2 (200、400、600、800 和 1000) µM)。经过24小时孵育后,细胞活力为 评估 采用 CCK-8 法。随后,确定 H 的最佳浓度2好的,我将严格遵循您的所有要求,将源文本翻译为符合出版级质量的中文简体学术译文。
源文本:
O2 采用 H2O2 建立黑素细胞氧化应激模型,并添加不同浓度的 AMG(0.1、0.25、0.5、1、2.5、5 和 10 mg/mL)进行 24 小时培养。随后通过细胞活力检测来评估并筛选 AMG 的浓度。
HE 检查
将小鼠肝脏与肾脏组织置于4%多聚甲醛中固定24小时,随后进行石蜡包埋。脱水过程按以下步骤进行:70%乙醇中浸泡4小时,80%乙醇中浸泡2小时,90%乙醇中浸泡2小时,95%乙醇中浸泡2小时,无水乙醇中浸泡两次、每次1小时;二甲苯中浸泡两次、每次30分钟。38,39,41然后,4-µ石蜡切片进行了H&E 染色后,组织切片经脱水、透明处理,并用中性树胶封片。使用 3D HISTECH 扫描仪对组织切片进行数字化处理,并获取 20× 和 40× 放大倍率已记录。
酶联免疫吸附测定 (ELISA) 与生化检测
皮肤组织在缓冲液中以1:9(重量/体积)的比例进行匀浆,随后在1006×g条件下离心。–1789 × g 10 分钟。使用 BCA 法对血清、皮肤组织提取物和细胞上清液进行蛋白质定量后,测定丙二醛、白细胞介素-6、白细胞介素-15 和干扰素-γ 的水平。γ 使用相应的ELISA试剂盒进行评估。SOD、CAT和GPX-4的酶活性则根据各自生化试剂盒的说明书进行检测。
流式细胞术检测活性氧(ROS)
使用无血清培养基稀释10µM DCFH-DA 按 1:1000 的比例稀释。随后,将小鼠皮肤组织或人黑素细胞制备成浓度为 1–20×106 细胞/毫升,使用10µM DCFH-DA。细胞在37°C下孵育。°在 20 分钟期间,每 3 分钟对细胞进行一次振荡混匀。–5分钟后,用无血清培养基洗涤三次,随后通过流式细胞术对细胞内活性氧水平进行定量,激发波长和发射波长分别设定为488nm和525nm。42,43.
免疫荧光测量
FOXO3a (1:1000) 一抗与 4-µ将皮肤组织切片或固定化 HPEM 在 4°C 下孵育过夜°C. 随后,用 Alexa Fluor 荧光团标记的二抗处理标本,并用 DAPI 溶液进行复染。最后,通过荧光显微镜观察并拍摄切片。对于活性氧的荧光成像,使用 4-µ冷冻皮肤组织切片或HPEMs载玻片在室温下复温并干燥。使用组织化学笔在组织周围画圈。载玻片经自发荧光淬灭剂处理5分钟,随后在流水下冲洗10分钟。滴加ROS染色液,于37℃避光孵育。°在 30°C 下处理 30 分钟。使用脱色摇床,将切片在 PBS 中洗涤三次,每次 5 分钟。随后,滴加 DAPI 染色液并进行孵育。 在室温避光条件下处理10分钟。使用抗荧光淬灭封片剂封片。随后通过荧光显微镜观察样本并采集图像。激发/发射波长为330–380/420 nm 用于 DAPI,510 nm–560/590 nm 对应 Cy3。
蛋白质印迹法
对于小鼠皮肤组织或人类黑素细胞,取 50 mg 皮肤组织或 2 × 10⁵ 细胞与1 mL RIPA裂解液(添加蛋白酶抑制剂)被分装至1.5 mL微量离心管中。冰浴30分钟后,以12,000 g离心5分钟,收集上清液。采用BCA法测定蛋白浓度后,将蛋白溶液与5× SDS 上样缓冲液按体积比 4:1 混合,随后置于 95°C 金属浴中煮沸。 °在 5 分钟内完成。样品在 80 V 或 120 V 电压下进行 10% SDS-PAGE 电泳后,将蛋白质电转移至 0.22 μm 聚偏二氟乙烯膜上。µ在 200 mA 恒定电流下,于 PVDF 膜上电泳 1 小时。44,45将膜置于室温下,在离心摇床上用5%脱脂牛奶(以TBST缓冲液配制)封闭1小时。随后,将膜与针对特定靶标的 主要组织相容性复合体 I 类 (MHC I) (1:1000), IFN-γ (1:1000)、IL-6 (1:1000)、IL-15 (1:1000)、 β-肌动蛋白 (1:1000)、超氧化物歧化酶 (1:1000)、过氧化氢酶 (1:1000)、谷胱甘肽过氧化物酶 4 (GPX-4) (1:1000) 和 FOXO3a (1:1000),于 4 °C 过夜。随后,在室温下用二抗(1:10000)孵育膜 1 小时。使用 ECL 化学发光试剂显影,并通过 ChemiScope 6100 系统捕获图像。
定量逆转录聚合酶链反应 (qRT-PCR)
首先,根据制造商的操作说明,从小鼠皮肤组织或人类黑素细胞中获取样本RNA。’按照总RNA提取试剂盒说明书进行操作。根据逆转录试剂盒操作说明,将PCR仪参数设置为25°C,持续 10 分钟,42°在 85°C 下处理 15 分钟。°在 95°C 下预变性 5 分钟以获得 cDNA 样本。同样,为获得足够的 DNA 拷贝数,设置聚合酶链式反应仪的参数如下:预变性:95°C°C 5 分钟,1 个循环;变性:95°C,持续 10 秒,共 40 个循环;退火与延伸:60°30 秒,40 个循环。 目的基因的归一化表达量采用以下公式计算:2‑ΔΔCq (ΔΔCq = Cq靶标‑Cqβ‑肌动蛋白)46,47qRT-PCR 所用基因引物序列信息如下: 表 1.
染色质免疫沉淀-聚合酶链反应分析
ChIP-PCR分析按照先前的方案进行48首先,用1%甲醛对细胞进行10分钟的交联,并加入甘氨酸溶液终止交联反应。用含PMSF的预冷PBS洗涤后,使用含PMSF的SDS裂解缓冲液裂解细胞。随后,使用超声细胞破碎仪将染色质DNA剪切为片段,其主要大小范围在200至1,000 bp之间,并通过琼脂糖凝胶电泳验证片段大小。将剪切后的染色质样品重悬于含PMSF的ChIP稀释缓冲液中,并取20µ取 L 样品作为输入对照组。剩余样品使用 Protein A+G Agarose/Salmon Sperm DNA 进行预处理。随后,取 0.5µ加入 g 一抗,随后在 4°C 下孵育过夜。°在缓慢摇动条件下于4°C孵育过夜。阴性对照组使用等量的兔IgG进行处理。次日,加入Protein A+G琼脂糖珠以捕获抗原-抗体复合物,并依次使用低盐免疫复合物洗涤缓冲液、高盐免疫复合物洗涤缓冲液、LiCl免疫复合物洗涤缓冲液和TE缓冲液对复合物进行洗涤。使用洗脱缓冲液对免疫沉淀复合物进行洗脱,洗脱产物与输入对照组的样品均经过65°C热处理。°在 4°C 下孵育 4 小时以解交联。随后进行蛋白酶 K 介导的蛋白质消化,通过苯酚-氯仿抽提,继以乙醇沉淀来分离 DNA。纯化的 DNA 溶解于 TE 缓冲液中,并用于后续的 qRT-PCR 分析。ChIP-PCR 的基因序列信息显示于 表 2.
用于ChIP-PCR的候选基因组位点通过使用JASPAR数据库(https://jaspar.elixir.no/)进行计算机预测来选定。具体而言,研究人员检索了目标基因转录起始位点(TSS)上游2000 bp范围内的启动子序列。 CAT, SOD以及 GPX4 基因。研究人员使用相应的位置权重矩阵对这些序列进行了FOXO3a结合基序扫描。为了平衡敏感性与特异性,作者将相对谱图得分阈值设定为 >80%。在所有符合此标准的预测基序中,作者选取了每个基因中得分最高的两个推定位点,作为 ChIP-PCR 验证的候选区域。例如,在 CAT 基因,所选位点位于相对于转录起始位点-733 bp和-1259 bp处。本研究中使用的抗FOXO3a抗体是一种市售的ChIP级抗体。为确保特异性,作者为每次ChIP-PCR实验设置了两个独立的阴性对照:同型IgG和一个阴性基因组位点。同型IgG对照是使用来自同一物种的非免疫IgG进行平行免疫沉淀。对于阴性基因组位点,作者设计了一对特异性引物,靶向一个缺乏任何预测的FOXO3a共有基序的非结合区域。该对照区域使作者能够排除由随机染色质剪切或非特异性PCR扩增引起的富集。富集倍数通过三步归一化策略计算。
步骤一:输入归一化数据 ΔCt, ΔCt [归一化 IP] = Ct[IP] - (Ct[输入] - log₂(DF) (1)
ΔCt [归一化 IgG] = Ct[IgG] - (Ct[Input] - log₂(DF) (2)
DF = 输入稀释因子;在本实验中,DF = 10,因为他们使用了10%的输入。
步骤 2: ΔΔIP 与 IgG 之间的 Ct 值
ΔΔCt [IP/IgG] =ΔCt [归一化IP]-ΔCt [归一化IgG] (3)
步骤 3:富集倍数 = 2(-ΔΔCt [IP/IgG]. (4)
统计分析
数据以平均值表示 ± 基于至少三次独立实验的标准差。统计分析使用 GraphPad Prism 软件(版本 6.0)进行。对于符合正态分布且方差齐性的多组数据比较,采用单因素方差分析(ANOVA),随后进行 Tukey’s 后测。统计显著性设定为 p < 0.05.
结果
AMG 在正常 C3H/HeJ 小鼠中无肝肾毒性
为了从实验角度明确 AMG 可能存在的肝肾毒性,研究人员通过灌胃向正常 C3H/HeJ 小鼠给予此前研究过的三个剂量(60、90 和 120 mg/kg)38。如图所示 图1经口灌胃给予AMG三个剂量连续21天后,肝小叶结构清晰,肝细胞排列整齐有序。肾脏皮质与髓质组织正常,肾小球及肾小管未见损伤或病变。在AMG给药期间,小鼠均未出现异常行为表现。然而,本文未检测生化毒性及体重数据,这可能影响关于AMG无肝肾毒性的结论的合理性。但基于肝脏和肾脏的组织病理学检查结果,这些数据部分提示作者设定剂量下AMG治疗AA具有合理性。
AMG 抑制 AA 的发生和发展以及 ROS 的生成
首先,他们检测了MHC I和IL-15指标,这些指标 与发病和进展内在相关 的AA。如图所示 图2A–C,在AA模拟的病理条件下,C3H/HeJ小鼠皮肤组织中MHC I和IL-15蛋白的含量显著增加(p < 0.001)。而AMG-M和AMG-H处理则显著下调了这两种蛋白的表达水平(p < 0.01 或 p < 0.001). 同样,AMG 治疗的三个剂量显著抑制了血清中 IL-15 的水平(p < 0.001, 图2D)。此外,免疫荧光结果显示,AA组小鼠皮肤中存在大量活性氧(ROS),而AMG干预组与AA组相比,ROS的表达显著降低p < 0.001, 图2E 以及 F)。一致地,流式细胞术结果显示,AA 组小鼠皮肤组织中的 ROS 水平较对照组显著升高 对照组。然而,与AA组相比,AMG干预逆转了ROS的升高(p < 0.001, 图 2G 和 H).
AMG 促进了 FOXO3a 的蛋白和基因表达
为研究 AMG 对 FOXO3a 的影响,作者在蛋白和基因水平检测了其表达水平。免疫荧光结果显示,AA 组小鼠皮肤组织中 FOXO3a 蛋白表达显著降低,而 AMG 能够促进 C3H/HeJ 小鼠皮肤组织中 FOXO3a 蛋白水平的升高。p < 0.001, 图3A 和 B)。进一步的qRT-PCR数据显示,AMG显著增加了FOXO3a基因的表达(p < 0.001; 图3C)。同样,Western blot 实验表明 AMG 显著升级 FOXO3a 的蛋白表达(p < 0.05 或 p < 0.001, 图3D 和 E).
AMG 抑制了 AA 小鼠皮肤组织中的氧化应激事件
氧化应激所诱导的AA病理进展可导致其恶化。生化检测结果表明 图4 表明与对照组相比,AA组小鼠皮肤组织中的抗氧化指标SOD、CAT和GPX-4显著受到抑制(p < 0.001, 图4A 和 B),而促氧化指标 MDA 显著升高(p < 0.001, 图4C)。研究人员发现,经AMG处理后,抗氧化指标显著升高,而促氧化指标显著降低(p < 0.001; 图 4A–C)。类似地,Western blot 结果也表明,AMG 干预显著提高了抗氧化指标 SOD、CAT 和 GPX-4 的蛋白表达水平(p < 0.001; 图4D 和 4E).
AMG 降低了 H2O2 诱导的 HPEM 细胞凋亡和炎症反应
图 5A 所示结果表明,随着 H2O2 浓度的增加(200–1000 µM),HPEM 细胞的活力逐渐降低(p < 0.001)。其中,600 µM H2O2 是降低 HPEM 细胞活力的最适浓度(p < 0.001)。此外,作者发现,在 600 µM H2O2 刺激 HPEM 细胞的条件下,0.1–10 mg/mL 的 AMG 能显著提高细胞活力(p < 0.05 或 p < 0.001,图 5B)。与动物实验结果一致,作者还发现 AMG 显著抑制了 H2O2 诱导的 HPEM 细胞凋亡,流式细胞术检测结果如 图 5C 和 D 所示(p < 0.001)。对于 MHC I 指标,Western blot 分析进一步表明,AMG 显著抑制了 H2O2 诱导损伤后 HPEM 细胞中该蛋白的表达(p < 0.05 或 p < 0.01;图 5E 和 5F)。在炎症因子检测方面,ELISA 结果显示,AMG 显著降低了 H2O2 诱导的 HPEM 细胞中促炎性细胞因子 IFN-γ、IL-6 和 IL-15 的含量(p < 0.001;图 5G)。此外,通过 Western blot 分析进一步验证了 AMG 对这三种促炎蛋白的抑制作用,结果如 图 5H 和 I 所示(p < 0.01 或 p < 0.001)。
AMG 降低了 H2O2 诱导的 HPEM 细胞中的活性氧水平
与未经 H2O2 和 AMG 处理的 HPEM 细胞相比,600 µM H2O2 刺激显著促进了活性氧(ROS)的生成,免疫荧光结果(p < 0.001,图 6A 和 B)和流式细胞术实验结果(p < 0.001,图 6C 和 D)均证实了这一点。有趣的是,AMG 显著减少了 ROS 的生成量(p < 0.001,图 6)。
AMG 限制了H诱导的HPEMs氧化应激事件2O2
类似地,作者评估了AMG对H诱导的HPEM中氧化应激的影响2O2与对照组相比,H2O2 刺激导致 SOD、CAT 和 GPX-4 的功能下降(p < 0.001, 图7A 和 B),同时显著升高 MDA 水平 (p < 0.001, 图7C)。令人意外的是,AMG 干预显著增强了 SOD、CAT 和 GPX-4 的活性(p < 0.001, 图7A 和 B),同时降低 MDA 水平(p < 0.001, 图7C)。进一步的 Western blot 结果也证实,AMG 干预显著增加了 SOD、CAT 和 GPX-4 的蛋白表达水平(p < 0.05 或 p < 0.01, 图7D 和 E).
AMG 促进 H 诱导的 HPEMs 中 FOXO3a 水平及其调控的 SOD、CAT 和 GPX-4 表达2O2
与对照组相比,H2O2 刺激导致 FOXO3a 基因表达显著降低(p < 0.001, 图8A),而AMG干预则显著减弱了这一效应(p < 0.05, 图8A)。进一步进行蛋白质印迹(Western blot)p < 0.05, 图8B 和 C)和免疫荧光(p < 0.05, 图8D 和 E) 分析还证实,AMG 的应用显著增加了 FOXO3a 蛋白的表达水平。ChIP-PCR 实验确认 AMG 能够增强 SOD 的表达水平p < 0.001),CAT(p < 0.01)和 GPX-4(p < 0.01),如图所示 图8F–I,以及FOXO3a在SOD基因启动子区域的富集水平p < 0.001),CAT(p < 0.001)和 GPX-4(p < 0.001) (图8J–L).
AMG 抑制 H 诱导的 HPEMs 中 FOXO3a 调控的氧化应激与凋亡现象2O2
最初,研究人员建立了一条FOXO3a低表达的HPEM细胞系,其特征是蛋白表达水平显著下降(p < 0.001, 图9A 和 B)以及基因(p < 0.001, 图9C) FOXO3a 表达水平。流式细胞术结果进一步表明,与 H 相比2O2 组别中,AMG 显著降低了低 FOXO3a 表达 HPEMs 细胞中的 ROS 水平和细胞凋亡p < 0.001, 图 9D–G)。同时,AMG 显著增加了 FOXO3a 蛋白及基因表达(p < 0.01, 图9H–J) 以及 FOXO3a 调控的 SOD、CAT 和 GPX-4 蛋白的表达水平(p < 0.05, p < 0.01,或 p < 0.001, 图9H,K–O) 以及 FOXO3a 表达水平较低的 HPEM 中的基因。
数据可用性:
所有原始数据均可在以下网址的公共数据存储库中获取:https://doi.org/10.5281/zenodo.22090466。
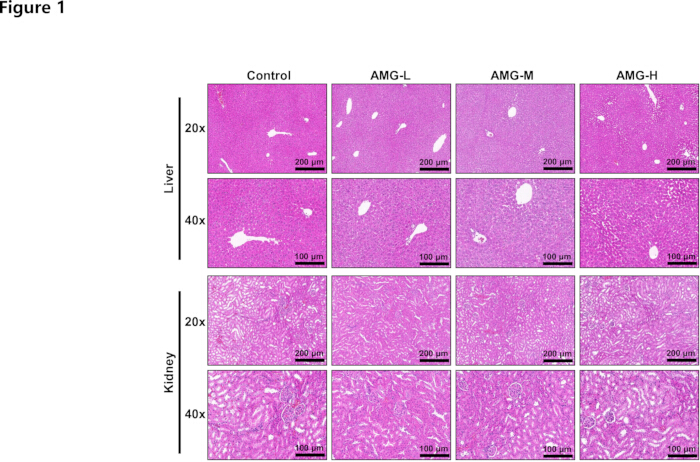
图1:HE染色。 采用HE染色法评估AMG(60、90和120 mg/kg)对正常C3H/HeJ小鼠肝肾的剂量依赖性毒性。在20×(200 µm)和40×(100 µm)放大倍数下均未观察到肝和肾的特异性病理损伤。n = 6。 请点击此处查看该图的放大版本。
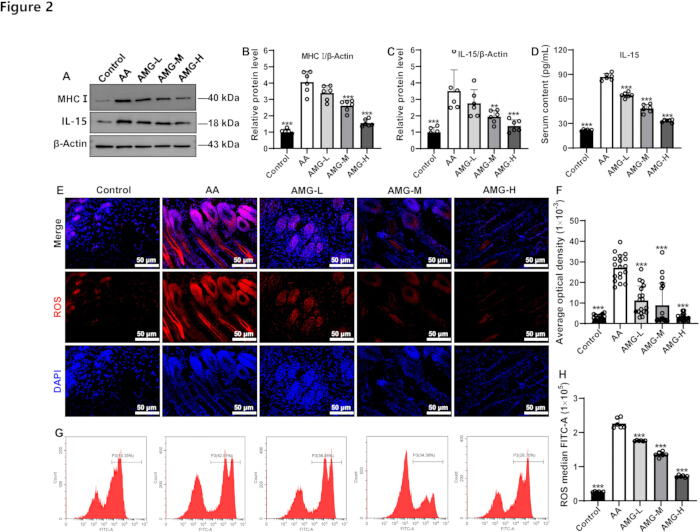
图2AMG 对 AA 小鼠皮肤样本中 MHC I、IL-15 和 ROS 的影响 (A–C),AMG 降低了 MHC I 和 IL-15 的蛋白表达水平,通过 Western blot 检测评估。D),AMG 降低了 小鼠血清中的IL-15水平。E 和 F),AMG 通过免疫荧光检测法(IF 检测)发现可降低小鼠皮肤样本中的 ROS 水平。G 和 H),AMG降低了小鼠皮肤样本中的活性氧水平,通过流式细胞术测定。实验结果以均值形式呈现 ± SD。 **p < 0.01 和 ***p < 0.001 对比 AA 组;n = 6。 请点击此处以查看此图的放大版本。
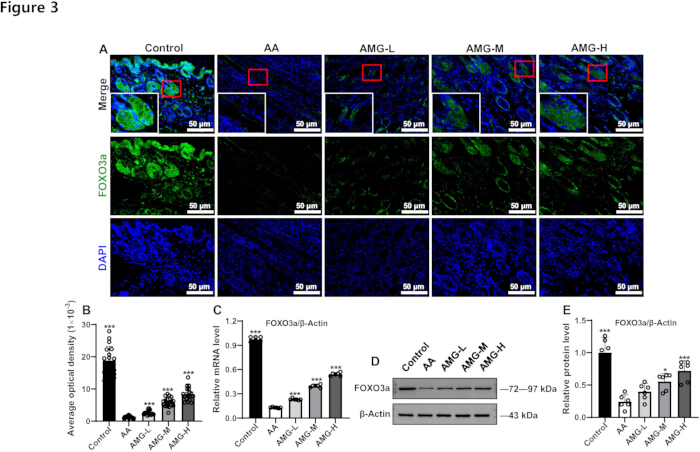
图3:AMG对AA小鼠皮肤样本中FOXO3a蛋白和基因水平的影响。(A)通过免疫荧光检测,AMG可提高FOXO3a蛋白水平。(B)免疫荧光的定量结果。(C)AMG可提高FOXO3a基因表达。(D)通过Western blot检测,AMG可提高FOXO3a蛋白表达。(E)Western blot的定量结果。实验结果以均值±标准差表示。*p < 0.05,与AA组相比;***p < 0.001,与AA组相比;n = 6。请点击此处查看该图的放大版本。
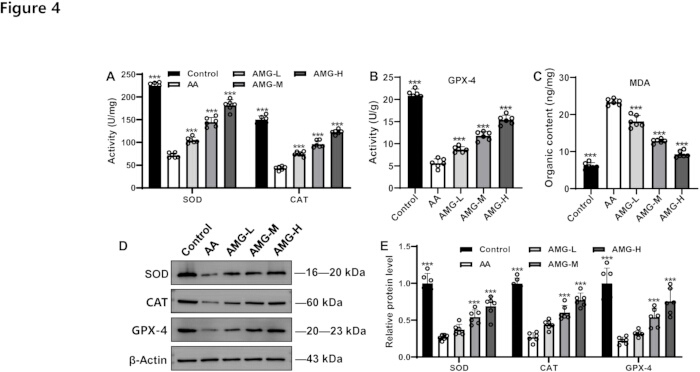
图4:AMG对AA小鼠皮肤样本中氧化应激指标的影响。(A)通过生化检测试剂盒评估,AMG促进了SOD和CAT水平的升高。在(B)和(C)中,AMG提高了GPX-4水平并抑制了MDA水平。(D)SOD、CAT和GPX-4的代表性蛋白条带。(E)SOD、CAT和GPX-4蛋白表达的定量结果。实验结果以均值±标准差表示。***p < 0.001,与AA组相比;n = 6。请点击此处查看该图的放大版本。
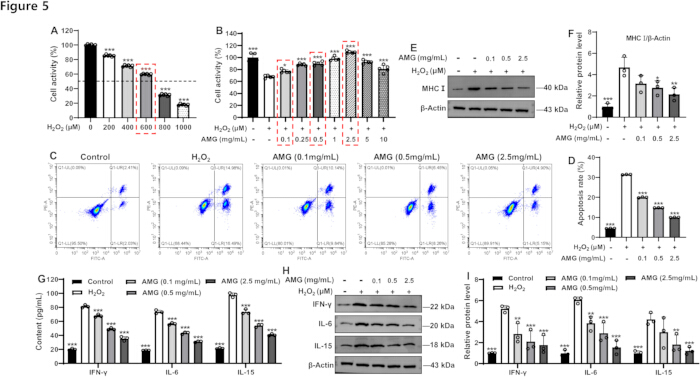
图5:AMG对H2O2诱导的HPEMs细胞凋亡及炎症指标的影响。(A)不同浓度H2O2对HPEMs细胞活力的影响(n = 6)。(B)不同浓度AMG对H2O2刺激诱导的HPEMs细胞存活率的影响(n = 6)。(C)采用流式细胞术分析AMG对H2O2刺激诱导的HPEMs细胞凋亡的干预作用。(D)细胞凋亡的统计结果。(E)MHC I的Western blot条带。(F)MHC I蛋白相对表达量的定量结果。(G)AMG对H2O2刺激诱导的HPEMs中IFN-γ、IL-6和IL-15的影响。(H)IFN-γ、IL-6和IL-15的Western blot条带。(I)IFN-γ、IL-6和IL-15蛋白相对水平的定量结果。实验结果以均值±标准差表示。*p < 0.05,**p < 0.01,***p < 0.001,与H2O2组比较;n = 3。请点击此处查看该图的放大版本。
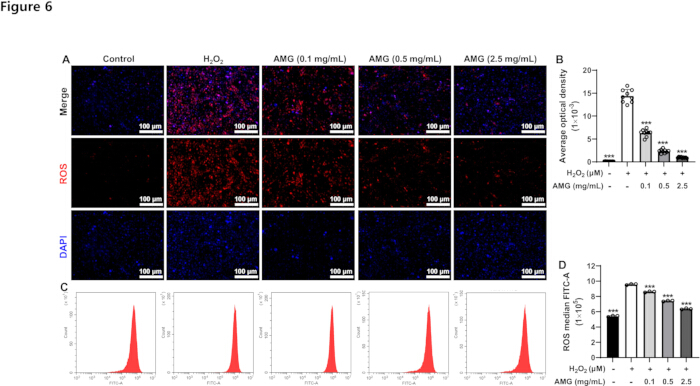
图6:AMG对H2O2诱导的HPEM中ROS的影响。(A)ROS的荧光图像。(B)ROS的荧光定量统计结果。(C)ROS的流式细胞术图像。(D)ROS的流式细胞定量统计结果。实验结果以均值±标准差表示。***p < 0.001,与H2O2组相比;n = 3。请点击此处查看该图的放大版本。
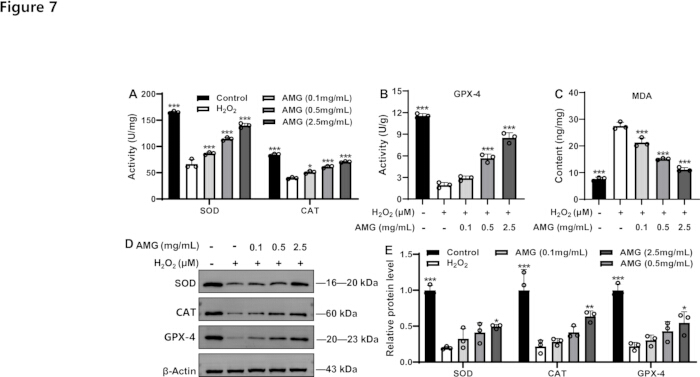
图7:AMG对H2O2诱导的HPEM中氧化应激指标的影响。 使用生化试剂盒或ELISA试剂盒检测HPEM中SOD、(A) CAT、(B) GPX-4和(C) MDA的水平。SOD、CAT和GPX-4的Western印迹条带(D)及其定量结果(E)。实验结果以均值±标准差表示。*p < 0.05,**p < 0.01,***p < 0.001,与H2O2组相比;n = 3。请点击此处查看该图的放大版本。
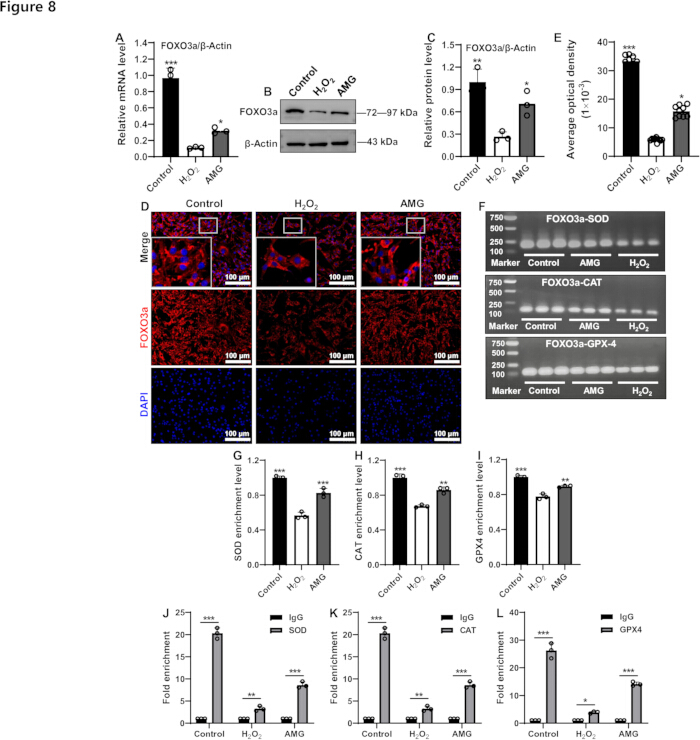
图8AMG 对 H 诱导的 HPEMs 中 FOXO3a 的影响2O2. (A)FOXO3a基因的表达水平。FOXO3a的Western印迹条带(B)及其定量结果(C). FOXO3a 的荧光图像(D)及其荧光定量统计结果(E). (F) FOXO3a-SOD、FOXO3a-CAT 和 FOXO3a-GPX-4 的代表性 ChIP-PCR 电泳图谱。SOD(G)、CAT(H),以及 GPX-4(I)。FOXO3a 在 SOD 基因启动子区域的富集水平(J),CAT(K),以及 GPX-4(L通过 ChIP-PCR 检测了目标物。实验结果以均值形式呈现 ± SD *p < 0.05, **p < 0.01 和 ***p < 0.001 与 H 的比较2O2 组间或与指定组相比;n = 3。 请点击此处以查看此图的放大版本。
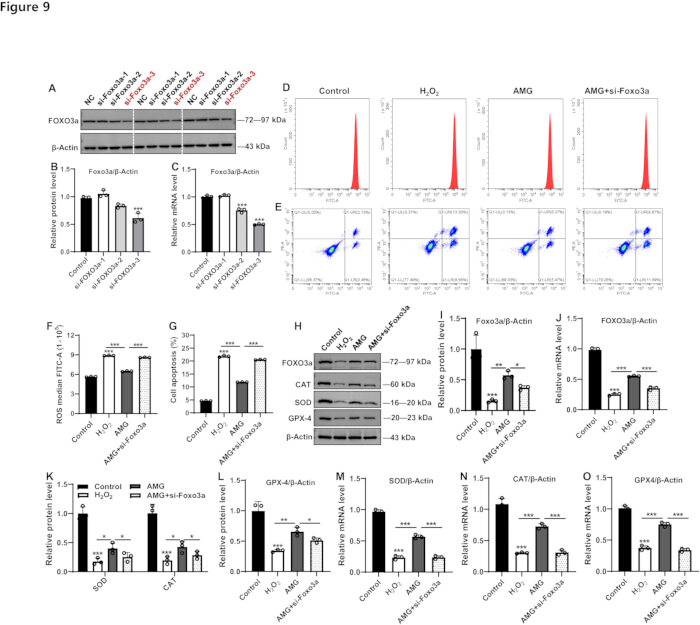
图9:AMG对FOXO3a低表达并经H2O2刺激的HPEMs细胞中氧化应激和细胞凋亡的影响。(A)FOXO3a的Western blot条带及其定量结果(B)。(C)FOXO3a mRNA表达的定量结果。(D)ROS和细胞凋亡的流式细胞术图谱(E),以及相应的统计结果(F和G)。(H)FOXO3a、SOD、CAT和GPX-4的Western blot条带。(I)FOXO3a蛋白表达的定量结果。(J)FOXO3a mRNA表达的定量结果。(K和L)SOD、CAT和GPX-4蛋白表达的定量结果。SOD(M)、CAT(N)和GPX-4(O)基因表达的定量结果。实验结果以均值±标准差表示。*p < 0.05,**p < 0.01,***p < 0.001,与对照组或指定组比较;n = 3。请点击此处查看该图的放大版本。
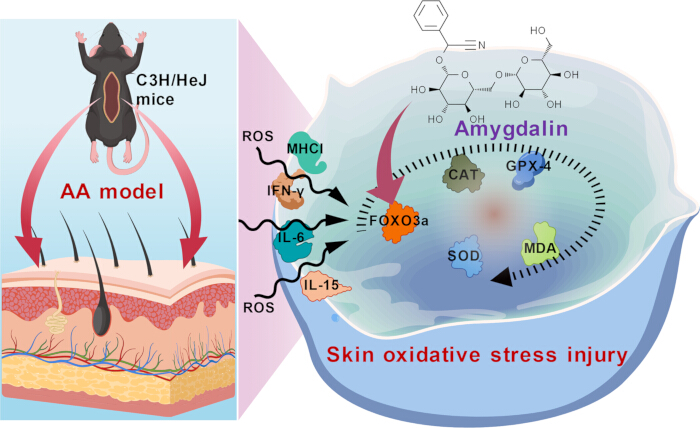
图10: 示意图。 该图说明了AMG刺激FOXO3a表达的机制,从而抑制氧化应激和炎症,并改善AA。 本图由作者使用 BioGDP.com绘制,不涉及版权问题。 请点击此处查看此图的放大版本。
| 基因 | 物种 | 序列 (5' - 3') | 长度 (bp) |
| FOXO3a | 小鼠 | 正向引物: GCAAGCCGTGTACTGTGGA | 116 |
| 反向引物: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | 人 | 正向引物: CGGACAAACGGCTCACTCT | 150 |
| 反向引物: GGACCCGCATGAATCGACTAT | |||
| SOD | 人 | 正向引物: AAAGATGGTGTGGCCGATGT | 167 |
| 反向引物: CAAGCCAAACGACTTCCAGC | |||
| CAT | 人 | 正向引物: CTATCCTGACACTCACCGCC | 129 |
| 反向引物: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | 人 | 正向引物: GCAAGGGCATCCTGGGAAAT | 84 |
| 反向引物: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | 人 | 正向引物: AATCTGGCACCACACCTTCTACAA | 172 |
| 反向引物: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | 小鼠 | 正向引物: GTGCTATGTTGCTCTAGACTTCG | 174 |
| 反向引物: ATGCCACAGGATTCCATACC |
表1:qRT-PCR用基因序列信息。 用于qRT-PCR的引物。
| 基因 | 物种 | 序列 (5' - 3') | 长度 (bp) |
| SOD | 人 | 正向:TGCCAGAAGAGGGACAGAACAGG | 173 |
| 反向:ATCCGCCCACAGACACGAGAG | |||
| CAT | 人 | 正向:GGGAAGCAGATTTCTCCAGTG | 141 |
| 反向:GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | 人 | 正向:TGGCACATTTTGGGGTTGGAAC | 103 |
| 反向:TGAACGCTCCTCCTCCTTAAACG |
表2:ChIP-PCR 基因序列信息。 用于 ChIP-PCR 的引物。
讨论
AMG 本身无直接毒性,但可被肠道微生物酶或胃酸水解,生成并释放出剧毒的氢氰酸49。氢氰酸随后经消化道迅速吸收进入血液,并扩散至全身组织,导致神经系统、心血管系统和呼吸系统组织出现缺氧50。其作用机制在于,氢氰酸与细胞色素氧化酶中的铁离子结合,阻断细胞呼吸链,从而引起组织缺氧和细胞代谢紊乱,引发急性中毒51。中毒症状包括头痛、恶心、呕吐和呼吸困难49,52。严重时可导致呼吸衰竭甚至死亡49,52。因此,确保 AMG 的安全剂量范围是研究其药理作用的前提。本研究中,作者首先通过病理学检查证实,所使用的剂量(60、90 和 120 mg/kg)在正常 C3H/HeJ 小鼠中未引起肝肾毒性,为后续开展 AMG 治疗斑秃的研究奠定了基础。
IFN-γ 在斑秃(AA)发生过程中是炎症反应的关键驱动因子,主要由活化的 CD4+/CD8+ T 细胞分泌53,54,55。它会破坏毛囊的免疫豁免状态(例如通过抑制 MHC I 的低表达),促使自身反应性 T 细胞攻击毛囊黑素细胞,导致毛母细胞空泡变性和毛球异常角化56,57。动物实验表明,缺乏 IFN-γ 基因的小鼠对斑秃具有抗性58。IL-6 和 IL-15 可通过激活 JAK/STAT 信号转导级联反应并促进 IFN-γ 的释放,增强 Th1 型免疫应答59。此外,IL-15 还可刺激 NK 细胞和 T 细胞增殖,加剧毛囊结构周围的炎性浸润60。正常毛球通过低表达 MHC I 逃避免疫监视,而在斑秃患者中,MHC I 异常上调,使毛囊黑素细胞成为 T 细胞攻击的靶标61。本研究中,作者注意到 AMG 治疗显著下调了 C3H/HeJ 小鼠皮肤中 MHC I 和 IL-15 蛋白的表达水平。既往动物实验也证实,AMG 可抑制斑秃小鼠体内 IFN-γ 和 IL-6 的水平38。在 H2O2 诱导的 HPEMs 损伤模型中,经 AMG 处理后,MHC I 以及包括 IFN-γ、IL-6 和 IL-15 在内的促炎性细胞因子均受到显著抑制。这些数据提示,AMG 在治疗斑秃方面的潜力可能与其维持免疫与炎症之间平衡的作用有关。
抗氧化酶系统(SOD、CAT 和 GPX-4)与脂质过氧化标志物 MDA 和 ROS 之间的失衡在 AA 发病机制中起着关键作用62。SOD 通过催化 O2·⁻ 转化为 H2O2 来减轻氧化应激,而 CAT 和 GPX-4 进一步将 H2O2 分解为 H2O,防止 ROS 的积累。有证据表明,过量的 ROS 可触发脂质过氧化,导致 MDA 水平升高,并直接损伤毛囊细胞63。在 AA 患者中,毛囊清除 ROS 的能力下降,MDA 的积累加剧了毛乳头细胞的凋亡性死亡,导致毛囊过早进入休止期63。此外,氧化应激可能促进促炎因子 IFN-γ 的释放,进一步加重免疫攻击和毛囊退化64。本研究中,研究人员阐明 AMG 干预可降低 AA 小鼠皮肤中过表达的 ROS 以及 H2O2 诱导的 HPEM 细胞损伤。同时,体内和离体实验均表明,AMG 治疗显著增强了抗氧化指标(SOD、CAT 和 GPX-4),同时降低了促氧化指标 MDA。这些证据表明,维持氧化应激的平衡是 AMG 对 AA 产生作用的机制之一。考虑到 GPX-4 活性受损会导致 MDA 生成失控,这可能触发铁死亡过程。这些分子过程也可能参与 AA 的加重,并可能成为 AMG 治疗的潜在机制。所有这些均需在未来进一步通过实验验证。
作为一种关键的转录因子,FOXO3a可能通过氧化应激和免疫调节通路参与再生障碍性贫血的发病机制65在氧化应激条件下,FOXO3a可转位至细胞核,上调SOD和CAT等关键抗氧化酶的表达,清除过量活性氧(ROS),减轻头皮组织的氧化损伤。通过降低局部氧化负荷,FOXO3a能够维持毛囊免疫豁免的稳定性,抑制引发非瘢痕性脱发的自身免疫攻击。在氧化应激调控方面,FOXO3a的活化可上调SOD和CAT等抗氧化酶的表达,并抑制ROS的累积。65然而,FOXO3a功能受损可导致丙二醛(MDA)生成增加,MDA是脂质过氧化反应的关键产物,从而加剧细胞凋亡66。在免疫调节层面,FOXO3a通过调控MHC I类限制性抗原引发自身免疫攻击67本研究报道,AMG 显著提高了 C3H/HeJ 小鼠皮肤组织及过氧化氢诱导的 HPEM 细胞中 FOXO3a 蛋白和基因水平。此外,在 FOXO3a 表达水平较低的 HPEM 细胞中,AMG 降低了活性氧(ROS)水平和细胞凋亡,同时上调了 FOXO3a 的表达及其调控的超氧化物歧化酶(SOD)、过氧化氢酶(CAT)和谷胱甘肽过氧化物酶-4(GPX-4)的水平。 综上所述,这些研究结果表明,AMG 对 AA 的治疗作用与 FOXO3a 介导的氧化应激和细胞凋亡之间的调控平衡密切相关。鉴于 AMG 通过 FOXO3a 改善 AA 的因果关系,未来的研究有必要在 AMG 干预条件下开展 FOXO3a 的过表达或药理学抑制实验。此外,AMG 介导的 FOXO3a 是否能够减轻氧化应激并调节炎症反应,从而保护毛囊干细胞免受 ROS 诱导的损伤和免疫介导的破坏,仍有待进一步探究。另一个值得注意的问题是,AMG 是否通过直接拮抗 H 的毒性来发挥其抗氧化作用,尚需验证。₂O₂ 或者通过调节细胞内信号转导,这在该研究中仍是一个未解决的问题。
综上所述,本研究首次证实,在所测试的剂量下,AMG 对肝脏和肾脏无潜在毒性。此外,在分子水平上证明,AMG 可能促进 FOXO3a 的表达,从而转录激活 SOD、CAT 和 GPX-4 的表达,并抑制炎症反应和细胞凋亡事件,以治疗 AA(图 10)。然而,本研究仍存在一些局限性,需在后续研究中进一步探索和阐明。首先,明确 AMG 在 AA 动物模型中的长期毒性和药代动力学特性,是深入研究其药理作用及分子机制的基础和前提。其次,AMG 在治疗 AA 中的药理作用仍需通过多种动物模型的大规模研究以及临床试验加以验证。在分子机制方面,仍需开展挽救实验,以进一步确认是否由 FOXO3a 介导了 AMG 的药理效应。此外,AMG 是通过其直接的抗氧化活性,还是通过 AMG 介导的 FOXO3a 所发挥的抗氧化效应,仍有待进一步探究。
披露
作者声明无利益冲突。
作者贡献:
Xun He:调研,方法学,撰写初稿。Jingsong Liu、Jiawei Wang 与 Zhe Dai:数据整理。Yugang Gong、Wei Lu 与 Xiaowei Sha:软件,可视化,验证。Xun He:概念化,撰写审阅。 &;编辑、经费获取与监督。
致谢
本工作得到四川省干部保健委员会(2024-221)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 5×一体化预混液(含AccuRT基因组DNA去除试剂盒) | Applied Biological Materials Inc., Jiangsu, China | G492 | |
| β-肌动蛋白抗体 | Affinity Biosciences Co., Ltd., Wuhan, China | AF7018 | |
| 苦杏仁苷 | 成都华铂生物科技有限公司,成都,中国 | K-001-181216 | |
| 过氧化氢酶抗体 | Proteintech, Wuhan, China | 66765-1-Ig | |
| 过氧化氢酶检测试剂盒 | Elabscience, Wuhan, China | E-BC-K031-M | |
| C3H/HeJ小鼠 | 成都耀康生物科技有限公司,成都,中国 | N000190 | |
| 染色质免疫沉淀(ChIP)检测试剂盒 | 碧云天生物技术研究所,上海,中国 | P2078 | |
| 254培养基 | Gibco, Thermo Fisher Scientific, America | M-254-500 | |
| DAPI染色试剂 | Servicebio, Wuhan, China | G1012 | |
| Dispase II | 上海源叶生物科技有限公司,上海,中国 | S25046 | |
| EvaGreen Express 2×qPCR预混液-无染料 | Applied Biological Materials Inc., Jiangsu, China | MasterMix-ES | |
| 快黑HB | 生工生物工程(上海)股份有限公司,上海,中国 | A602008-0025 | |
| 胎牛血清 | Every Green | 13011-8611 | |
| 荧光显微镜 | SOPTOP | CX40 | |
| FOXO3a抗体 | Proteintech, Wuhan, China | 10849-1-AP | |
| 冷冻切片机 | Thermo | Cryotome E | |
| 谷胱甘肽过氧化物酶4抗体 | Proteintech, Wuhan, China | 67763-1-Ig | |
| 谷胱甘肽过氧化物酶4检测试剂盒 | Elabscience, Wuhan, China | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| 咪喹莫特乳膏 | 四川明欣药业有限责任公司,成都,中国 | H20030129 | |
| 干扰素γ抗体 | Proteintech, Wuhan, China | 15365-1-AP | |
| 干扰素γ检测试剂盒 | Elabscience, Wuhan, China | E-EL-H0108 和 E-EL-M0048 | |
| 白细胞介素6抗体 | Proteintech, Wuhan, China | 21865-1-AP | |
| 白细胞介素6检测试剂盒 | Elabscience, Wuhan, China | E-EL-H6156 和 E-EL-M0044 | |
| 白细胞介素15抗体 | Affinity Biosciences Ltd., Wuhan, China | DF2521 | |
| 白细胞介素15检测试剂盒 | Elabscience, Wuhan, China | E-EL-H0222 和 E-EL-M0728 | |
| 丙二醛检测试剂盒 | Elabscience, Wuhan, China | E-EL-0060 | |
| MHC抗体 | Affinity Biosciences Ltd., Wuhan, China | DF8558 | |
| 光学显微镜 | ZEISS | Primo Star | |
| 石蜡切片机 | Thermo scientific | HM325 | |
| 病理扫描软件 | 3DHISTECH (匈牙利) | Slide Viewer2.5.0 | |
| 青霉素-链霉素溶液 | Biosharp, 北京,中国 | BL505A | |
| 兔IgG | 碧云天生物技术研究所,上海,中国 | A7016 | |
| 活性氧(ROS)检测试剂盒 | 碧云天生物技术研究所,上海,中国 | S0033M | |
| 超氧化物歧化酶1抗体 | Proteintech, Wuhan, China | 10269-1-AP | |
| 组织包埋机 | 武汉俊杰电子有限公司,武汉,中国 | JB-P5 | |
| 组织脱水机 | Thermo scientific | STP420 ES | |
| 总RNA提取试剂盒 | 福际生物技术有限公司,成都,中国 | RE-03014 | |
| 总超氧化物歧化酶检测试剂盒 | Elabscience, Wuhan, China | E-BC-K020-M | |
| 白色凡士林 | 上海阿拉丁生化科技股份有限公司,上海,中国 | P434227 |
参考文献
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.