我们提供了一套详细且可重复的实验方案,用于解剖、免疫染色以及制备发育中及成年 Drosophila 视觉系统,以实现高分辨率成像。这些方法可用于观察神经母细胞的模式形成、神经元特化、感光细胞轴突投向以及成年神经毡的组织结构,为研究视觉系统的发育提供了通用的实验框架。
本文内容
摘要
摘要
的 果蝇 视觉系统是研究神经元多样性如何产生并整合到功能性神经回路中的有力模型,这是发育神经科学中的一个核心问题。该系统包括视网膜以及四个不同的神经节:髓状体、中脑、叶状体和叶状板,它们共同构成一个高度有序的结构,负责处理来自视网膜的视觉输入,并将其传递至大脑的高级中枢。在发育过程中,视觉系统经历显著的重塑。在幼虫发育阶段,神经上皮逐步产生神经母细胞,这些细胞通过不对称分裂,整合空间和时间模式化程序,生成多种神经元亚型。随后,这些神经元分化并形成精确的突触连接,构建出成体视觉系统的功能回路。这些动态过程可通过在幼虫、蛹和成虫各阶段进行免疫染色得以可靠研究。 关键词:视觉系统,神经元多样性,神经回路,发育神经科学,视网膜,髓状体,中脑,叶状体,叶状板,神经母细胞,不对称分裂,免疫染色 本文提供了一种详细且可重复的方案,用于分离及免疫染色发育中和成年阶段的组织 果蝇 视觉系统。我们主要关注幼虫神经母细胞的代表性成像,以突出展示其时空模式形成与神经元特化过程,并可视化成体神经纤维网的形态结构。这为观察发育中的 果蝇 视觉系统
引言
Drosophila melanogaster 的视觉系统是研究神经系统发育过程中细胞与分子机制的重要发育模型。其高度保守的结构、丰富的遗传工具以及在进化上保守的发育过程,极大地促进了人们对神经干细胞发育、神经元特化、神经回路组装以及脑结构组织的理解。果蝇的视觉系统包括复眼视网膜以及四个视神经节——即视叶(lamina)、髓状体(medulla)、叶状体(lobula)和叶状体板(lobula plate),它们构成一个复杂的层级神经回路1。视网膜中的感光受体细胞可感知光线并将其转化为神经信号2,3,4。这些信号通过局部中间神经元和投射神经元传递,这些神经元相互连接四个视神经节,在不同阶段连续提取视觉特征,如对比度、运动和颜色信息4,5。经过处理的视觉信息随后由视觉投射神经元传递至更高级的脑中枢,进行进一步整合4,5,6。
发育中的视叶经历一系列精确调控的发育事件,将增殖性的神经上皮(NE)转变为复杂的神经环路网络7,8。神经上皮起源于胚胎发生过程中的视泡7,8。在幼虫阶段,神经上皮细胞最初通过对称分裂进行增殖,以扩增前体细胞池;随后逐渐转化为神经母细胞,通过不对称分裂产生成体视觉系统的神经元和胶质细胞9,10,11,12,13。时空模式化机制促使神经元身份多样化,新生神经元在发育中的髓板内形成同心层状结构,并在蛹期发育过程中进一步分化为功能性神经环路14,15,16,17,18,19。时空信号的整合激活了特定细胞类型的神经元转录因子,其持续表达决定了神经元的细胞类型14,15,20,21,22。在视柄和视叶外侧区(lobula)中也存在类似的机制,用于确定神经元的身份14,23,24,25,26。
对发育中视觉系统的免疫荧光成像已成为可视化其发育过程中细胞与分子事件的首选方法。成功的可视化不仅依赖于高质量组织样本的制备和可靠的免疫染色试剂,还依赖于制片过程中精细的解剖操作和准确的样本定位27,28。不同的发育结构和细胞过程需要以特定方式定位样本,以揭示大脑的解剖特征。已有若干文章和实验方案详细描述了Drosophila 大脑的解剖与免疫染色步骤28,29,30,31,32。然而,仅有少数研究针对视觉系统中广泛研究的发育过程对此进行了阐述27。
本文介绍了一种针对幼虫和成虫视觉系统的解剖、免疫染色及封片的全面实验方案。该方案采用一种简单且成本低廉的幼虫脑解剖方法,利用广泛可得的注射器针头,使该操作在缺乏专业解剖工具的实验室和教学环境中亦易于实施。我们通过代表性示例展示了该方案的应用,包括幼虫神经上皮细胞向神经母细胞(NE 转化为 NB)的转变过程、发育中髓质区域神经元的同心圆状排列结构,以及成虫视叶神经 Neuropil 结构的可视化。此外,我们还提供了发育期和成虫视觉系统中空间与时间模式形成以及光感受器投射分析的实例。上述方法结合明确的封片定位方向,为研究果蝇(Drosophila)视觉系统在神经发育过程中的结构变化,提供了可重复、高质量成像的实用技术框架。
方案
1. 试剂与仪器的准备
成功解剖与免疫染色 果蝇 视觉系统实验要求在开始实验前准备好所有试剂和设备。提前配制所有溶液可最大限度减少组织操作时间,有助于在整个实验过程中保持组织形态的完整性。以下试剂应预先配制并随时备用:
- 磷酸盐缓冲液(1x PBS):使用10x储存液配制1x PBS,用于组织解剖、洗涤及试剂制备。PBS可提供等渗环境,维持操作过程中组织的完整性。将1x PBS储存于 4 °C.
- 解剖介质:解剖时使用冰冻的 Schneider 昆虫培养基。Schneider 培养基的配方旨在支持 果蝇 通过高度模拟昆虫血淋巴的离子组成,适用于长时间解剖操作。
- 固定液(含Triton X-100的1×磷酸盐缓冲盐水中的4%甲醛溶液,PBST):使用16%甲醛储备液在1× PBST中新鲜配制4%甲醛溶液,以确保最佳的固定效果和组织保存。
警告:甲醛具有高反应性和毒性,若吸入、食入或经皮肤吸收均可造成危害。操作时应在化学通风橱中进行,并穿戴适当的个人防护装备(PPE),废弃物须置于专用的甲醛危险废物容器中处理。 - 洗涤缓冲液(1× PBST):配制含0.3% Triton X-100的1× PBS作为洗涤和通透缓冲液使用。
- 封闭液:使用 5% 牛血清白蛋白(由 30% BSA 配制于 1×PBST 中)或 5% 正常山羊血清(5% NGS 配制于 1×PBST 中)作为封闭液。此步骤有助于减少非特异性抗体结合。储存于 4 °C 用于长期使用。
- Sylgard 包被培养皿的制备:Sylgard 包被的解剖皿可提供柔软表面,用于固定组织并保护精细镊子的尖端。将 Sylgard 184 基液与固化剂按 10:1 的比例混合,直至充分混匀。倒入培养皿中,形成均匀涂层,然后在 37 °C 2–4 天直至干燥。室温(22–25 °C约为2小时,因此请在此时间内使用该混合液。
- 预先将所有解剖用培养基和缓冲液置于冰上预冷,并在样品制备、解剖和免疫染色过程中始终保持冰上操作,以维持组织形态并减少降解。在开始实验前,确保所有解剖器械、显微镜载玻片、盖玻片、封片介质以及镊子或解剖针均已准备妥当并便于取用。收集处于适当发育阶段的果蝇或幼虫,并准备好用于解剖。
无需伦理审批或指导即可开展以下工作 黑腹果蝇.
2. 幼虫脑的解剖、免疫染色与封片
- 解剖:
- 收集8–10只游走期三龄幼虫 果蝇 用湿润的画笔从离心管内取出幼虫,并在玻璃培养皿中用冰冻的1×PBS清洗,以去除残留的食物残渣。
- 使用镊子或小毛刷,将单个幼虫从玻璃点样板转移至直径150 mm培养皿中央的冰冻1×PBS或Schneider's培养基液滴中(不含Sylgard)。
- 用非惯用手持1 mL注射器针头夹住幼虫体中部区域。用惯用手在同一位置用注射器针头进行横向切割,将幼虫切成两半图1A–B).
警告:注射器针头锋利,可能造成伤害。使用过的锐器须丢弃在指定的锐器容器中。 - 用非优势手持住幼虫的前半部分(可通过黑色口钩识别),使其切口边缘朝上。用优势手持注射器针头,轻轻将口钩经体腔向内推入,如同将袜子翻面。此操作可使幼虫表皮外翻,形成内翻式标本。内翻式解剖法速度更快,且有助于保护脑和眼原基免受损伤图1C–D).
- 一旦表皮外翻,即可看到大脑附着在成虫盘和口钩上。使用注射器针头去除不需要的组织,包括肠道、唾液腺和脂肪体(图1E).
- 将解剖好的脑组织转移至含有试剂的玻璃点滴板中 300 µL 预冷的 1X PBS,置于冰上保存(图1F).
- 重复步骤 2.1.2–2.1.6,直至解剖获得足够数量的脑组织,或直至经过 20 分钟。
注意:解剖时间不应超过 20 min,以保持组织的高质量。 - 使用一个 200 μL 用移液器吸出脑组织中的大部分缓冲液,仅保留足够浸没脑组织的液体。
- 固定:添加 200 μL 向解剖皿中的脑组织加入冷固定液(4% 甲醛),并用显微镜玻片覆盖,然后将解剖皿置于摇床上,以 28 的摇动速度在室温下固定 8° 振荡角度 20 分钟。
注意:避免使用过高的摇动速度,以防组织解体。
警告:甲醛具有危害性。操作含甲醛的溶液时,须穿戴适当的个人防护装备,包括手套、实验服、口罩和护目镜。 - 吸去固定液,然后加入 200 μL 洗涤缓冲液(含0.3% Triton X-100的1×PBS)。先用PBST快速漂洗两次,随后进行两次每次20分钟的洗涤。
注意:Triton X-100 是一种去垢剂,对组织样本的通透化处理及促进抗体渗透至关重要。 - 封闭:吸去PBST,向脑组织中加入封闭液(含5%正常山羊血清或5% BSA的1×PBST)。室温孵育40分钟。
注意:在封闭液中孵育可饱和组织中的非特异性结合位点,从而降低背景染色并提高抗体特异性。建议进行此步骤,但如果抗体染色特异性高且背景信号极低,也可省略。
- 免疫染色
- 按推荐稀释比例在适量缓冲液中配制一抗混合液 50 μL 洗涤 PBST。
注意:准备过程中需将抗体分装样品置于冰上,以保持抗体的稳定性和活性。 - 将脑组织从玻璃小皿转移至1.5 mL微量离心管中。去除多余的封闭液,保留足够液体以保持脑组织完全浸没。
- 制备抗体混合液,并将其加入含有脑组织的离心管中。用移液器轻轻吹打混匀 20 µL 移液枪头以确保抗体均匀分布。
注意:将脑组织置于 50 µL 一抗溶液可减少抗体消耗,同时不降低染色质量。 - 将含有脑组织的试管置于支架上孵育 4 °C 16 小时
注意:一抗孵育可在4℃下进行48–72 h 4 °C 在某些情况下可增强染色效果。一抗至少可重复使用 3 次,且不影响染色质量。 - 添加 200 μL 用PBST进行洗涤。先快速洗涤2次,随后进行2次长时间洗涤,每次20分钟。
- 按照推荐的稀释比例,在适量的缓冲液中配制二抗混合液 250 μL PBST洗涤液
注意:加入二抗后的所有孵育步骤均需在避光条件下进行,以避免光照导致荧光淬灭。 - 去除多余的 PBST,然后向脑组织中加入二抗混合液。室温(22–25 °C)或 16 小时于 4°C 在摇床上,用纸板箱覆盖以保持黑暗环境。
- 重复上述洗涤步骤(先用 PBST 快速冲洗 2 次,再用 PBST 每次 20 分钟的长洗 2 次)。
暂停点:脑组织可在PBST中保存 4 °C 最长可保存1周。然而,建议封片后尽快对样品进行成像,以尽量减少因组织降解或荧光染料衰减导致的信号损失。
- 按推荐稀释比例在适量缓冲液中配制一抗混合液 50 μL 洗涤 PBST。
- 幼虫视叶的制片
- 用70%乙醇清洁显微镜载玻片,然后静置干燥5分钟(图 2E).
- 在显微镜载玻片中央贴上两条平行的双面胶带,两条胶带之间留出5–10 mm的间隙。
- 使用一个 200 µL 用剪去尖端的移液器将脑组织转移至另一干净的载玻片,并去除可能阻碍成像区域的无关组织,如腿部成虫盘。
注意:在成像过程中不影响目标区域的小组织,在封片时可保留不动。 - 将脑组织转移至含有双面胶带的显微镜载玻片上。
注意:确保脑组织不干燥,始终浸没在1x PBST缓冲液中。 - 在体视显微镜下,利用幼虫大脑特有的隆起形态以及腹神经索(VNC)的位置作为解剖学标志,确定每个幼虫大脑的前后方向。图2A–D).
- 前部固定:将脑组织凸面朝上,远离载玻片,腹神经索朝向载玻片图 2A, 图 3A).
- 背侧朝上安装:将脑组织凸面朝向载玻片,腹神经索(VNC)背离载玻片放置(图2B, 图3F).
- 侧向安装:使用1 mL注射器针头或细钨针沿中线切开前部固定的脑和腹神经索,得到两个半切的脑半部分(图 2C)。将每个半球旋转 90° 并将样本放置,使外侧的叶状体插头面朝向盖玻片,内侧的切割面背离成像平面(图 2D, 图 3K).
注意:根据需要在体视显微镜下调整脑组织的位置以获得所需的方向。调整位置时保持脑组织浸没在液体中。 - 吸除大部分缓冲液,保留足够液体以保持脑组织浸没。
- 加入 20–40 μL 适量封片剂(SlowFade Gold Antifade)至含有脑组织的区域,并用 20 μL 移液器
- 小心地放置盖玻片,使其两端分别置于两条胶带之上,并用指甲油密封边缘。
注意:若盖玻片放置后出现较大气泡,应向盖玻片与载玻片之间的缝隙中补加封片介质,直至气泡消失。
3. 成年果蝇大脑的解剖、免疫染色与封片
- 解剖:成年动物脑组织的解剖技术要求更高,需谨慎操作。强烈建议使用锋利的不锈钢镊子进行成年动物脑组织的解剖。
- 将所需年龄的足够数量成年果蝇在 CO2 麻醉垫上麻醉,然后转移至冰桶上放置的湿润纸巾中,以在解剖过程中维持麻醉状态。
注意:麻醉后,在解剖过程中可将果蝇置于冰上的湿纸巾中保湿,从而无需持续使用CO2 垫上后使操作更方便。 - 用精细镊子轻轻夹住成年果蝇的腿部,将其放入涂有Sylgard的培养皿中。
- 用一枚大头针从上方穿过果蝇胸部中部(避开脑区),将果蝇固定在涂有Sylgard的培养皿上。将果抓住一滴冰冻的1×PBS缓冲液/ Schneider's培养基中,并通过将果蝇向自身方向旋转或移动培养皿,调整果蝇头部位置以进行解剖。
警告:解剖针尖锐,可能造成伤害。应将其丢弃在指定的锐器容器中。 - 用优势手持镊子,小心移除吻部及两眼之间的额部表皮,以部分暴露脑组织。此举可在视网膜表皮下方形成开口,便于后续使用镊子进行脑组织解剖。
- 用精细镊子轻轻夹住视网膜最外侧边缘,从两侧缓缓将其分离。剥离视网膜时注意避免刺伤视叶。
- 仔细清除附着在脑组织上的残留组织,例如气管或前肠。
- 将洁净的大脑转移至含有 200 µL 含 1× PBS,置于冰上。
- 重复解剖步骤 3.1.2 至 3.1.7,直至收集到足够的脑组织或已过去 30 分钟。
- 使用一个 200 µL 用移液器吸去脑组织中的 PBS,仅保留足够浸没组织的液体。
- 固定:添加 200 μL 向装有解剖后成年脑组织的玻璃点样板中加入冷固定液(4% 多聚甲醛溶于 1× PBS),然后将载有盖玻片的玻璃点样板置于摇床上,以 28 次/分钟的振荡速度室温固定 30 分钟。
警告:甲醛具有危害性。操作含甲醛的溶液时,应佩戴适当的手套、实验服和护目装备。 - 吸除固定液,保留足够液体以浸没脑组织,然后加入 200 µL PBST。重复进行3次快速洗涤和2次长时间洗涤,每次均为20分钟。
- 封闭:移除 PBST,将脑组织置于封闭液(5% NGS 或 5% BSA)中孵育 45 分钟。
- 将脑组织转移至1.5 mL离心管中,除去大部分封闭液,仅保留足以浸没脑组织的液体。
- 将所需年龄的足够数量成年果蝇在 CO2 麻醉垫上麻醉,然后转移至冰桶上放置的湿润纸巾中,以在解剖过程中维持麻醉状态。
- 免疫染色
- 在适当的稀释比例下配制一抗混合液 50 µL PBST 溶液
- 将一抗混合液加入含有脑组织的离心管中,于4 °C孵育12–16小时 4 °C.
- 吸去抗体溶液,然后加入PBST进行2次快速漂洗,再进行2次每次20分钟的长时间洗涤。
- 按照推荐的稀释比例配制二抗混合液 250 µL PBST溶液
- 移除 PBST,然后加入二抗混合液。在室温(22–25 °C)2 小时,或于 12–16 小时 4 °C 在暗处。
- 重复洗涤步骤(3次快速洗涤,每次20分钟;2次长时间洗涤,每次20分钟)。
暂停点:在此步骤暂停,并将脑组织置于 PBST 中保存 4 °C 一周。
- 成年果蝇视叶的制备
- 用70%乙醇清洁载玻片以制备显微镜载片。
- 通过将两张 18 x 18 mm 的盖玻片放置在少量通用粘合胶液滴上,制备盖玻片桥,使盖玻片之间留出小于 1 mm 的间隙,用于容纳脑组织图 2F).
- 使用一个 200 µL 剪去尖端,将清理好的脑组织转移到载玻片上,并移除气管或头部角质层等可能在成像过程中遮挡视野的组织。
- 将清洗后的脑组织转移至第3.3.2步准备好的固定侧。
注意:在整个封片过程中,需始终保持脑组织浸没在1×PBST中,避免其干燥。 - 在体视显微镜下,根据成年脑的整体形态确定其前后方向。凸面为前侧,凹面为后侧。
- 前部朝上安装:将脑组织置于载玻片上,使其前表面及触角叶朝向盖玻片(图 4A).
- 背侧朝上安装:将脑组织背侧朝向盖玻片,触角叶朝向远离盖玻片的方向(图 4D).
- 侧向安装:将脑组织放置,使视神经纤维丛与成像平面平行。将脑置于前位并旋转 90°,并将其支撑在隔片盖玻片的边缘上(图 4G).
- 吸出大部分 1x PBST 缓冲液,保留足够液体以保持脑组织浸没。
- 添加 40 μL 抗荧光淬灭封片剂(推荐使用 VECTASHIELD Antifade Mounting Media)于脑组织所在区域,然后用 20 μL 移液器。如需要,可添加更多封片剂。
注意:VECTASHIELD 抗荧光淬灭封片剂适用于盖玻片桥式载片,因其较高的黏度有助于其保留在盖玻片之间的空间中。 - 小心放置一片 22 x 22 mm 盖玻片,使其架在两片盖玻片上。通过从缝隙处添加更多封片剂以去除任何气泡。
- 用指甲油密封边缘(图 2F).
4. 图像采集与图像处理
- 使用 Leica STELLARIS 8 共聚焦显微镜,配备 40 倍(NA = 1.3)和 63 倍油镜(NA = 1.4)物镜,以 1024 × 1024 像素的分辨率采集图像。
- 以 1 µm 的 z 轴步长和 200 Hz 的扫描速度采集 Z 轴层扫图像。
- 根据样本情况,采用双向扫描模式,放大倍数范围设为 0.75–1.0x 进行成像。
- 针对每种荧光染料,使用相应的探测器,并将增益设为 100 进行信号检测。
注意:激发波长分别使用 405、488、555 和 647 nm,激光功率需根据所用抗体和荧光染料进行相应调整。 - 使用 Leica 采集软件获取图像,并采用 Fiji/ImageJ2 版本 2.16.0/1.54p 进行图像处理。
结果
成功的解剖、免疫染色及正确的封片方向对于保持发育中视叶的整体结构,并准确呈现其解剖特征、发育转变及细胞类型至关重要。不同的封片方向可提供幼虫及成体视叶的互补视角 果蝇 视觉系统,并可使不同的解剖区域和神经元特征得以可视化。
幼虫装片方向:
本节展示了有助于成像发育中幼虫视叶的代表性安装方向(图3)。幼虫脑的示意图突出了主要的视叶结构,包括外增殖中心(OPC)、髓质和小叶(图3A). 前部朝上安装的脑组织展示了视叶前区(OPC)、神经上皮细胞向神经母细胞(NE-to-NB)的转变、髓质神经母细胞带以及正在发育的髓板。通过 Deadpan (Dpn)、E-钙黏蛋白(E-Cadherin, ECad)和 Dachshund (Dac) 染色的前部朝上安装的脑组织可清晰显示这些结构(图3B)。这种方向性排列还揭示了髓质神经母细胞中时间性转录因子级联反应,表现为 Hth、Opa、Erm 和 Ey 的依次表达(图3C)。用抗 Chp 抗体标记的光感受器轴突与视叶神经元交错分布,也可在腹侧方向上观察到图3D,E). 后部固定可暴露内增殖中心(IPC)及外增殖中心(OPC)的顶端,从而提供发育中视叶的互补观察视角图3FG-H)。在后部方向上,亦可观察到与视网膜神经元交错分布的光感受器轴突(Chp阳性)图3I,J结合前部固定方式,该方向可为发育中幼虫视觉系统的不同区域提供互补的访问路径。 侧向安装揭示了少突胶质前体细胞(OPC)的空间分布模式以及神经元的同心圆状排列结构(图3K)。侧向安装同时提供了观察髓质神经元同心圆状排列结构的视角。图 3L)。代表性神经元群体包括对空间区域不特异的Bsh阳性髓质内在神经元(Mi1)和TfAP-2阳性跨髓质神经元(Tm1、Tm2、Tm4和Tm6),以及具有区域特异性的神经元亚型,如Dm8、DRA-Dm8和Dm11(图3L)。Vsx 和 Optix(Optix-GAL4)>GFP 在神经上皮(NE)中存在,但在神经母细胞(NB)中不存在,而 Rx 在神经上皮和神经母细胞中均有表达19此外,Vsx 和 Rx 在特定的终末分裂后神经元中表达,这些神经元与其空间分布区域相对应。19 (图3M)。在侧向视图中可观察到投射至视叶和外髓质的感光细胞轴突图3N, O这些安装方向能够用于分析髓质神经母细胞在空间和时间上的模式如何产生不同的神经元身份14,22.
成年个体交配姿势方向: 本部分展示了成年样本成像时载片方向的示意图及代表性示例 果蝇 视叶。前端安装可提供视叶的正面视图,显示外髓板、内髓板以及叶状体和叶状板前部的结构。图 4A)。抗Bruchpilot(Brp)标记视神经节,而Bsh标记髓质皮层中的Mi1神经元(图 4B)。在同一取向中,抗Chaoptin(Chp)标记投射至视叶和髓状体的感光细胞轴突(图4C)。后向安装方向可暴露视叶更深层的区域,从而实现对髓状神经纤维网的深层观察(图 4D,E)。在此取向下,Chp染色可分辨出髓质内的光感受器终末图4F). 侧向固定可提供视叶的侧面视角,从而能够同时观察到髓状体、内髓状体、外髓状体和lobula plate图 4G,H)。Bsh 标记了层神经元(L4 和 L5)以及髓质内在神经元(Mi1),而 Brp 用于界定神经 Neuropil 边界。光感受器投射靶向于视网膜下层和髓质内。图 4I),概述成年视觉系统的组织结构.
前部、后部和侧部的安装方向共同提供了发育中和成熟视觉系统的互补视图,使研究人员能够根据实验目标观察不同的解剖区域、发育特征以及神经元群体。
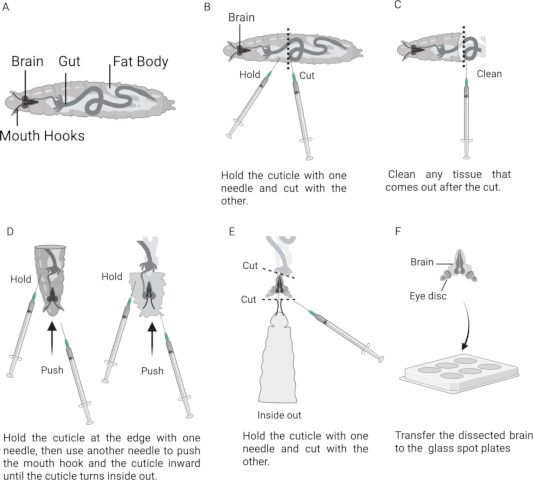
图1解剖 果蝇 使用注射器针头法处理幼虫脑组织。(A) 三龄晚期幼虫示意图,显示脑部及相关解剖结构的位置。 (B) 显示幼虫位于两支注射器针头之间,虚线表示横向分离的大致位置。 (C) 去除周围组织后的幼虫前半部分。 (D) 使用注射器针头展示幼虫表皮翻转的连续步骤 (E) 翻转的标本,显示脑、成虫盘和口钩。 (F) 玻璃斑点板中的分离幼虫脑。 请点击此处以查看此图的放大版本。
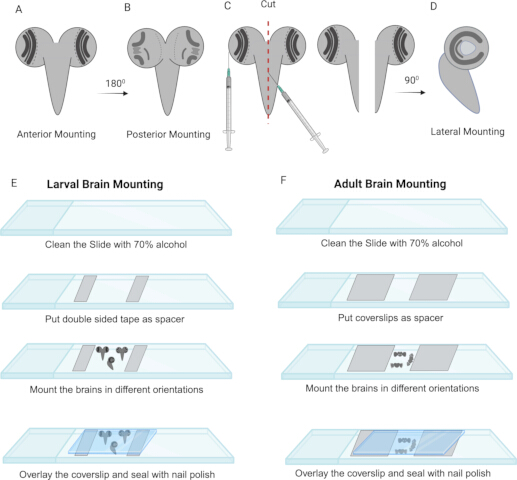
图2:Drosophila 幼虫和成虫视叶的制片步骤。(A) 幼虫脑的腹侧朝上制片方向。(B) 幼虫脑的背侧朝上制片方向。(C) 使用注射器针头对腹侧朝上放置的脑组织进行双侧切开。(D) 半脑组织侧向制片方向。(E) 幼虫脑制片的代表性步骤。(F) 成虫脑制片的代表性步骤。请点击此处查看该图的放大版本。
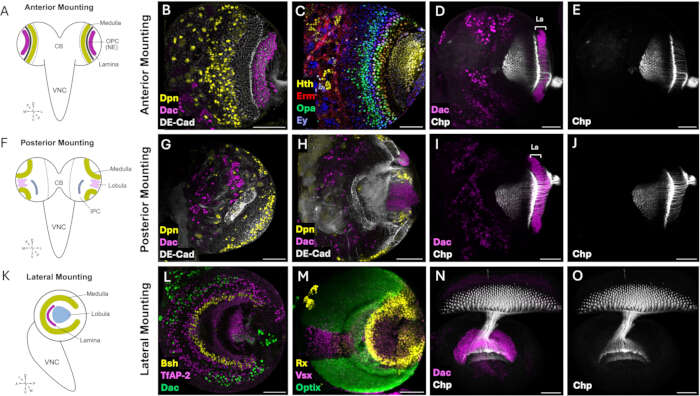
图3:用于成像的安装方向 果蝇 幼虫视觉系统 (A) 示意图显示三龄幼虫脑的前部朝上安装方向,前表面朝向盖玻片。 (B) 代表性共聚焦图像显示腹侧朝上的幼虫脑,其中外部增殖中心(OPC)以抗-DE-钙黏蛋白抗体(DE-CAD,灰色)标记,髓质神经母细胞以抗-Deadpan抗体(Dpn,黄色)标记,发育中的髓质皮层以抗-Dachshund抗体(Dac,品红色)标记。 (C) 在神经母细胞发育过程中,延髓神经母细胞依次表达时序性转录因子同源异型蛋白(Homothorax, Hth)、奇配对蛋白(Odd-paired, Opa)、耳套蛋白(Earmuff, Erm)和无眼蛋白(Eyeless, Ey)的图像。 (D-E) 来自眼成虫盘的光感受器轴突投射至发育中的外髓质和内髓质的代表性图像。 (F) 示意图显示幼虫脑的后部朝上安装方向,后表面朝向盖玻片。 (G) 光学叶浅层后表面的共聚焦图像,显示位于 OPC 顶端(tOPC)的内增殖中心(IPC)和髓质神经母细胞。 (H) 在后视叶更深层获取的光学切片,突出显示了内侧神经分泌细胞(IPC)和正在发育的叶状体。 (I-J) 投射至发育中视叶的感光细胞轴突的后视图。 (K) 示意图显示幼虫大脑半切后的侧向安装方向,切开的内侧表面朝向盖玻片,以观察发育中的髓质同心圆状结构,以及小叶和叶枕的排列。 (L) 代表性共聚焦图像,显示了髓质神经元群体的同心环状排列,包括由脑特异性同源盒(Brain-specific homeobox, Bsh)标记的Mi1神经元,由TfAP-2标记的Tm1、Tm2、Tm4和Tm6神经元,腹侧髓质中Dachshund(Dac)阳性的Dm8神经元,以及位于背侧边缘区的DRA-Dm8和Dm11神经元,展示了髓质神经元亚型的空间组织结构。 (M) 最大强度投影显示外侧增殖中心的空间表达模式区域,由转录因子Vsx、Optix定义Optix-GAL4>GFP),以及在发育中的视叶中的 Rx。 (N-O) 侧向安装方向下光感受器轴突的代表性图像,显示其在发育中的视叶和髓质中的投射与靶向分布。比例尺 = 50 µm缩写:La = 纤维层。 请点击此处以查看此图的放大版本。
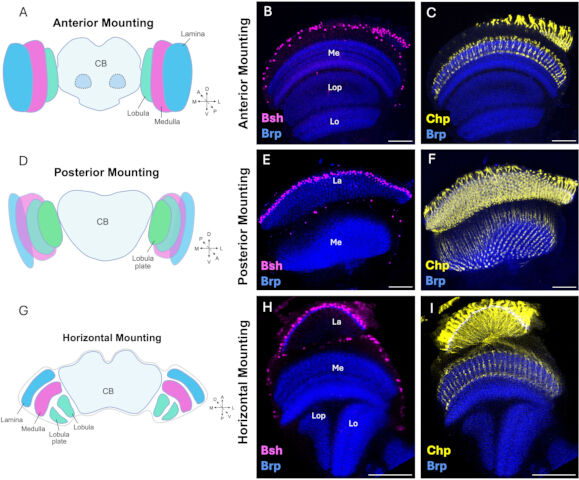
图 4:成年 Drosophila 视觉系统成像的安装方向。(A) 示意图为成年脑的前向安装方向,前表面朝向盖玻片。(B) 前向安装的成年脑代表性共聚焦图像,显示视网膜特异性同源盒(Bsh)阳性 Mi1 神经元(品红色)位于髓质皮层,神经毡用抗 Bruchpilot 抗体(Brp,蓝色)标记。该方向可从前侧观察外周的视网膜、髓质、叶状体和叶状板。(C) 用抗 Chaoptin 抗体(Chp,黄色)标记的光感受器轴突的代表性图像,其投射至视网膜和髓质神经毡。(D) 示意图为成年脑的后向安装方向,后表面朝向盖玻片。(E) 后向安装的成年视觉系统代表性共聚焦图像,突出显示用抗 Brp 标记的髓质神经毡深层结构。(F) 用抗 Chaoptin 抗体(Chp,黄色)标记的光感受器轴突的后向视图,显示其在髓质神经毡内的投射靶向。(G) 示意图为成年脑的侧向安装方向,一侧视叶平行于盖玻片,以观察视觉系统的整体结构。(H) 成年视叶的代表性侧向视图,显示 Bsh 阳性的视网膜神经元(L4 和 L5)和髓质 Mi1 神经元(品红色),以及用抗 Brp 标记的神经毡(蓝色),揭示了视网膜、髓质、叶状体和叶状板的空间组织结构。(I) 用抗 Chaoptin 抗体(Chp,黄色)标记的光感受器轴突图像,其投射至用抗 Brp 标记的视网膜和髓质神经毡(蓝色)。比例尺 = 50 µm。缩写:Me = 髓质;La = 视网膜;Lo = 叶状体;Lop = 叶状板。请点击此处查看此图的放大版本。
讨论
本方案提供了一种可靠的方法,用于解剖、免疫染色并封片幼虫及成虫 Drosophila 视觉系统,以进行高分辨率共聚焦成像。该操作流程在保持发育中及成熟视叶结构完整性和形态的同时,提供了适宜的封片方向,从而实现对关键发育过程、神经元群体以及神经毡结构的最佳观察。文中描述的代表性示例包括神经上皮细胞向神经母细胞(NE-to-NB)的转变、髓质内的时空图式形成、视叶中感光神经元轴突的靶向投射,以及成虫视觉系统神经毡的组织结构9,10,13,14,23。因此,本方案提供了一个灵活的框架,可便捷地调整用于观察任意发育阶段的其他过程或细胞类型。
与先前发表的方法相比,本方案结合了针对幼虫和成虫的优化操作流程 果蝇 视觉系统,并提供多种安装方向,以适应不同的实验需求。尽管已有若干已发表的方案描述了 果蝇 脑解剖与免疫染色28,29,30,31,32,但专门针对发育过程中视觉系统的研究相对较少27该方案描述了一种替代性的幼虫解剖方法,使用 readily available 的 1 mL 注射器代替专用的精细镊子。尽管该方法的学习曲线较陡,但它提供了一种干净、经济、快速的替代方案,可能对教学实验室以及缺乏专业解剖设备的研究团队尤为有价值。据我们所知,与使用镊子解剖时牵拉脑组织并常导致损伤的方法相比,该解剖方法对脑组织的机械损伤更小。此外,我们的免疫染色方案合理地采用抗体混合液,并在减少用量的同时不牺牲染色质量,从而节省了通常价格较高的商业抗体。综上,这些特点在可及性、解剖操作和封片等方面提供了实用优势,同时使该方案能够便捷地适应不同的实验需求。
成功实施该方案取决于对若干关键步骤的仔细关注。常见的挑战通常可通过调整解剖、固定、染色或封片步骤来解决。解剖、振荡或移液过程中施加过大的机械应力可能导致组织损伤或破碎。因此,应在冰冻的磷酸盐缓冲液(PBS)中快速进行解剖,并在去除周围组织以及后续的振荡和移液操作中采用轻柔的动作。固定效果不佳(表现为组织变形、形态结构丢失或染色不一致)可能是由于固定时间不足或固定液配制不当所致。使用新鲜配制的甲醛溶液并在固定过程中确保组织完全浸没,有助于维持组织形态和染色的一致性。染色信号弱或不均匀可能源于通透不充分、抗体渗透不足或抗体孵育条件欠佳。适当延长通透时间或抗体孵育时间,必要时在4 °C下延长一抗孵育时间,可改善抗体渗透和染色效果。背景染色过高可能是由于封闭或洗涤不充分,或抗体浓度过高所致。充分的封闭和洗涤,结合对抗体浓度的适当调整,有助于降低非特异性染色。封片时方向错误可能遮蔽目标区域,或使目标区域距离盖玻片过远。根据方案中描述的解剖学标志重新调整脑组织的方向,并将目标区域尽可能靠近盖玻片放置,有助于对正确的解剖结构进行成像。
尽管该方案具有通用性,但可能需要根据特定组织、发育阶段、抗体和成像需求进行调整。例如,某些组织可能更适合在冰上进行较短时间的固定,而某些抗体则可能需要在 4 °C 下延长孵育至一周,或者相反,在 22–25 °C 下进行较短时间的孵育。固定效果可通过整体脑部和视叶形态的保存情况、清晰的组织边界以及最小程度的变形、断裂或脱落来评估。同样,透化是否充分可通过组织内抗体染色是否相对均匀来判断,这表明抗体已充分渗透。这些因素使得研究人员可根据具体的实验需求灵活调整固定、透化、染色和封片条件,同时保持果蝇(Drosophila)视觉系统的完整性。
披露
作者声明不存在利益冲突。作者审阅并批准了所有最终修改。
使用语言编辑工具(Grammarly)来纠正拼写并重组句子。
致谢
Brp、Dac、DE-Cad 和 Chp 单克隆抗体购自美国国立卫生研究院(NIH)下属的国立儿童健康与人类发育研究所(NICHD)创建、并由爱荷华大学生物系(位于爱荷华市,IA 52242)维护的发育研究杂交瘤库。A.B.、A.R. 和 C.S. 的研究工作由塔克恩(Tamkeen)通过纽约大学阿布扎比分校研究学会授予的纽约大学阿布扎比分校基因组学与系统生物学中心(ADHPG-CGSB)项目资助,并由 NIH RO1 EY017916 项目资助 C.D.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Austerlitz 昆虫固定针,0.15 mm | Fine Science Tools | 26002-15 | |
| 抗体:小鼠抗 Brp | 发育研究杂交瘤库 | nc82 | 稀释比例 1:50 |
| 抗体:小鼠抗 Chp | 发育研究杂交瘤库 | 24B10 | 稀释比例 1:50 |
| 抗体:大鼠抗 DE-CAD | 发育研究杂交瘤库 | DCAD2 | 稀释比例 1:20 |
| 抗体:小鼠抗 Dac | 发育研究杂交瘤库 | mAbdac1-1 | 稀释 1:100 |
| 抗体:羊抗GFP | BioRad | 4745-1051 | 稀释比例 1:200 |
| 抗体:Rabiit 抗 Bsh | 德斯普兰实验室 | - | 稀释比例 1:1000 |
| 抗体:豚鼠抗Hth | 德斯普兰实验室 | - | 稀释比例 1:100 |
| 抗体:豚鼠抗TfAP-2 | 德斯普兰实验室 | - | 稀释比例 1:500 |
| 抗体:兔抗 Ey | 德斯普兰实验室 | - | 稀释比例 1:200 |
| 抗体:大鼠抗 Erm | 德斯普兰实验室 | - | 稀释比例 1:100 |
| 抗体:豚鼠抗-Rx | 德斯普兰实验室 | - | 稀释比例 1:300 |
| 抗体:兔抗 Vsx | Desplan 实验室 | - | 稀释比例 1:100 |
| 抗体:与Alexa Fluor 405偶联的驴抗小鼠IgG | Abcam | ab175658 | 稀释比例 1:250 |
| 抗体:与Alexa Fluor 488偶联的驴抗小鼠IgG | Jackson ImmunoResearch | 715-547-003 | 稀释比例 1:400 |
| 抗体:与Alexa Fluor 555偶联的驴抗小鼠IgG | ThermoFisher Scientific | A31570 | 稀释比例 1:500 |
| 抗体:与Alexa Fluor 647偶联的驴抗小鼠IgG | Jackson ImmunoResearch | 715-605-151 | 稀释比例 1:250 |
| 抗体:与Alexa Fluor 405偶联的驴抗豚鼠IgG | Jackson ImmunoResearch | 706-475-148 | 稀释比例 1:250 |
| 抗体:与Alexa Fluor 555偶联的驴抗豚鼠IgG | Sigma-Aldrich | SAB4600297-5OUL | 稀释比例 1:500 |
| 抗体:与Alexa Fluor 647偶联的驴抗豚鼠IgG | Jackson ImmunoResearch | 706-605-148 | 稀释比例 1:250 |
| 抗体:与Alexa Fluor 405偶联的驴抗兔IgG | Abcam | ab175651 | 稀释比例 1:250 |
| 抗体:与Alexa Fluor 555偶联的驴抗兔IgG | Invitrogen | A31572 | 稀释比例 1:500 |
| 抗体:与Alexa Fluor 555偶联的驴抗大鼠IgG | Abcam | Ab150154 | 稀释比例 1:500 |
| 抗体:与 Alexa Fluor 488 偶联的驴抗羊 IgG | Jackson ImmunoResearch | 713-545-147 | 稀释比例 1:400 |
| BD 1毫升注射器,配25G × 16毫米针头,120支装 | BD | 303175 | |
| 牛 血清白蛋白(BSA),30% | Sigma-Aldrich | A7284-50ML | |
| 盖玻片 18 x 18 mm | VWR | 631-0120 | |
| 盖玻片 24 x 24 mm | VWR | 631-0126 | |
| 双面胶带 19 mm × 33 m | 苏格兰威士忌 | AMS12354 | |
| 果蝇:Canton S | BDSC | 64349 | |
| 果蝇:Optix-GAL4 | 京都 | 104266 | |
| 果蝇:nls-GFP/CyO-YFP | BDSC/ Desplan 实验室 | 4775 | |
| Flystuff 果蝇终极培养垫 | Genesee Scientific Corporation | 59-172B | |
| 带盖圆形冰桶,4L,蓝色 | Corning | 432123 | |
| 图像(FIJI) | (美国马里兰州贝塞斯达国立卫生研究院) | Fiji/ImageJ2 版本 2.16.0/1.54p | |
| Kimtech Science 精密擦拭纸 | Kimberly-Clark Professional | 05511 | |
| 实验室封口膜 | Parafilm M | PM-996 | |
| 显微镜载玻片 | VWR | 8037/1 | |
| 迷你离心机 | VWR | 521-2848 | |
| 指甲油 | Mumuso | 2023/11/05 | |
| 正常山羊血清 | Sigma-Aldrich | G9023 | |
| 画笔 | Camlin | S-66 | |
| 多聚甲醛(PFA) | Sigma | P6148 | |
| 100 mm × 15 mm 培养皿 | Falcon | 351029 | |
| 磷酸盐缓冲液(PBS) | Sigma | P5493 | |
| PYREX® 9 孔凹玻片 | Corning | 7220-85 | |
| 摇床(台式) | Fisherbrand | 8861025 | |
| 1.5 mL Safelock 管 | Eppendorf | O219706H | |
| Schneider昆虫培养基 | Sigma | S0146 | |
| 抗荧光淬灭封片剂 Slowfade Gold | Invitrogen | S36936 | |
| Sylgard 184 硅胶弹性体 | 道 | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| 钨针 0.25 mm | Fine Science Tools | 10130-10 | |
| 0.5 mm 钨针 | Fine Science Tools | 10130-20 | |
| UHU 万能胶水 | UHU | 40815 | |
| 超细镊子 | WPI | 500235 | |
| Vectashield 抗荧光淬灭封片剂 | 载体 | H-1000 | |
| 涡旋混合器 | VWR | VM-3000 |
参考文献
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
重印与许可
本文已发表
视频即将推出