一种详细的方法被描述用于评估目的基因的突变表型,并确定其在成肌细胞融合中的作用 果蝇 胚胎。该方法能够系统地表征基因在胚胎肌肉发育过程中的功能。
本文内容
摘要
摘要
单核成肌细胞融合形成多核合胞体是骨骼肌发育过程中的基本事件。 黑腹果蝇 是 一种功能强大且遗传上易于操作的模型,可用于快速高效地评估参与该过程的候选基因功能。本文中,我们描述了一套全面的实验方案,提供逐步操作指南,用于分析成肌细胞融合表型 果蝇 胚胎。该方法包括针对候选基因的突变品系筛选、胚胎收集与固定、整体免疫染色、发育分期、共聚焦成像以及表型分析。肌球蛋白重链(MHC)染色用于显示整体肌肉形态,并识别未融合的单核成肌细胞。同时,Even-skipped(Eve)染色可标记特定肌纤维内的细胞核,通过计数整合至该肌纤维中的细胞核数量,实现对融合程度的定量分析。综上所述,本实验方案可帮助读者评估任何目的基因的突变表型,并分析其在成肌细胞融合过程中的功能作用。该方法为发现和鉴定成肌细胞融合新调控因子提供了可靠的技术框架。
引言
骨骼肌是人体中最丰富的组织,占体重的30%以上。在胚胎发育过程中,骨骼肌纤维由单核肌细胞(称为成肌细胞)融合形成多核合胞体肌纤维而生成1,2这一过程对于肌肉的正常形成、生长和功能至关重要,其异常与多种肌肉疾病相关。3,4与脊椎动物骨骼肌类似,构成胚胎和幼虫体壁肌肉组织的多核肌纤维在 黑腹果蝇 也通过单核成肌细胞的融合而形成5,6,7,8在 果蝇,肌肉祖细胞与融合能力肌母细胞(FCMs)在不对称的促融合突触处发生融合9,10,11,12,13重要的是,调控成肌细胞融合的细胞事件和分子机制在物种间高度保守 果蝇 和脊椎动物14,15,16,使得 果蝇 研究成肌细胞融合遗传与细胞基础的有力模式生物。
的 果蝇 该模型还具有多项实验优势。首先,其生命周期较短 果蝇 (约10天 25 °C)能够实现快速的遗传杂交并高效地产生突变品系。其次, 果蝇 胚胎体积小,固定后抗体易于渗透,无需组织切片即可进行整体免疫染色并实现肌肉发育的高分辨率成像。第三, 果蝇 胚胎肌肉发育遵循高度保守的模式,在大多数腹部半节段中存在30条肌纤维。每条肌纤维由一个成肌细胞(founder cell)确定,并与特定数量的融合能力肌细胞(FCM,3至30个)融合而成。17,从而实现对成肌细胞融合的可重复且定量的分析。最后,公共数据库中可获取的基因突变体及携带染色体缺失的缺陷型品系,使得几乎所有的基因都能快速进行功能缺失分析,而无需耗时的 从头合成 突变体的构建
本文介绍了评估果蝇(Drosophila)胚胎中成肌细胞融合表型的详细实验方案(图1)。该方案包括选择合适突变等位基因、胚胎收集与固定、整体免疫染色、胚胎成像以及融合表型的定量分析等步骤。这些方法共同构成了一套快速高效的流程,可用于对参与成肌细胞融合的候选基因进行遗传学分析。
方案
1. 选择用于成肌细胞融合遗传学分析的突变体品系
- 在 FlyBase 中搜索目的基因的突变品系。打开相应的基因报告页面,查看“等位基因、插入、构建体和畸变”部分列出的突变等位基因。
- 通过分析各等位基因所报道的分子缺陷,选择无效突变或强功能缺失型等位基因。优先选择含有无义突变、移码突变、缺失或插入等可破坏基因功能的突变类型。
- 将选定的突变等位基因置于携带荧光标记的平衡染色体上,以便区分纯合突变胚胎与携带平衡染色体的同胞胚胎。根据携带突变等位基因的染色体选择合适的荧光平衡染色体(表 1)。
2. 收集与固定 果蝇 胚胎
- 使用25 G针头在100 mL塑料烧杯的侧面和底部打多个通气孔,制备胚胎收集杯(图1)。
- 将15 g琼脂与400 mL蒸馏水(dH₂O)混合,121 °C高压灭菌21分钟,制备葡萄汁琼脂。将熔化的琼脂冷却至手感温热。
- 将100 mL 100%葡萄汁加热至手感温热,与熔化的琼脂充分混合。每60 mm培养皿中分装约10 mL,室温下静置凝固后,于4 °C保存。
- 将10 g干酵母与15 mL dH₂O混合,搅拌至均匀且可涂抹的状态,制备新鲜酵母糊。将酵母糊涂于葡萄汁琼脂平板中心,并将平板预热至25 °C(图1)。
注意:制备好的酵母糊可在4 °C保存最多2周。 - 将携带突变等位基因及其相应荧光平衡染色体的3−7日龄成虫转移至收集杯中。
注意:使用野生型果蝇(如 w1118)作为对照。每个收集杯使用约50−80只雌蝇和40−50只雄蝇即可。 - 将预热的葡萄汁琼脂平板盖在收集杯上,用橡皮筋固定(图1)。将收集杯于25 °C培养12小时。
- 轻轻敲击收集杯使果蝇脱落,更换为新的预热平板。每12小时更换一次平板,持续2天,以使果蝇适应环境。
注意:每次使用前需将平板预热至25 °C,因为低温平板会减少产卵量。 - 经过2天适应期后,更换为新的预热平板,让果蝇过夜产卵14−15小时。
- 在1.5 mL微量离心管中加入含0.1%(v/v)Triton X-100的蒸馏水。使用预先浸泡在0.1% Triton X-100中的毛笔收集平板上的胚胎,并转移至管中。
- 剧烈振荡管子以重悬胚胎,去除残留的酵母糊。待胚胎沉降后,用0.1% Triton X-100至少洗涤3次,直至溶液变澄清(图1)。
- 加入1.5 mL约50%的家用漂白剂,使次氯酸钠终浓度为2.85%。轻轻振荡3分钟,以去除胚胎的卵壳。
注意:避免长时间接触漂白剂,过度脱壳会损伤胚胎,影响后续免疫染色。 - 待胚胎沉降后,吸除漂白剂,并用0.1% Triton X-100洗涤3次。
- 吸除残留洗涤液,加入700 µL含3.7%甲醛的磷酸盐缓冲液(PBS)和700 µL正庚烷。
警告:甲醛和正庚烷应在通风橱中操作,并按照适当的化学品安全规程进行处理和废弃。 - 盖紧管盖,剧烈振荡30秒。将胚胎在摇床上轻轻振荡固定30分钟。
- 让胚胎聚集在上层正庚烷相与下层水相之间的界面处(图1)。小心吸除水相,避免扰动胚胎。
- 加入约700 µL甲醇,剧烈振荡30秒,以去除卵黄膜。
注意:成功去卵黄膜的胚胎会沉入管底,而脱落的卵黄膜则停留在界面处(图1)。
警告:甲醇应在通风橱中操作,并按照适当的化学品安全规程进行处理和废弃。 - 吸除正庚烷和甲醇,保留少量甲醇覆盖胚胎。用甲醇洗涤胚胎两次。
- 在摇床上用PBST(含0.1% Triton X-100的PBS)洗涤胚胎三次,每次5分钟,以重新水化胚胎。此步骤及后续所有步骤均需避光操作。
注意:去卵黄膜后应始终保持胚胎被溶液覆盖,以防脱水并维持胚胎形态。尽量减少环境光暴露,以保护荧光蛋白和荧光素标记的抗体。
3. 进行整体免疫染色
- 移除 PBST,并在 1.5 mL PBSBT(含 0.5% BSA (w/v) 和 5 mM NaN3 的 PBST)中于室温下在旋转摇床上孵育胚胎至少 1 小时。
- 剪去移液器吸头末端以形成更宽的开口,从而在转移胚胎时尽量减少机械损伤。
- 将封闭后的胚胎转移至 0.5 mL 微量离心管中,弃去封闭液。加入 200−300 µL 新鲜 PBSBT,其中含抗 MHC 抗体(1:500)18 和/或抗 Eve 抗体(0.5 µg/mL)。
- 在 4 °C 下于旋转摇床上用一抗溶液孵育胚胎过夜。
注意:在鉴定出成肌细胞融合表型后,进行抗 Eve 共染色以用于定量分析。可使用兔源或大鼠源抗 MHC 抗体来显示 Drosophila 胚胎肌组织。 - 弃去一抗溶液,并在旋转摇床上用 PBST 洗涤胚胎三次,每次 10 分钟。
注意:适当情况下可将一抗溶液于 4 °C 保存以重复使用,通常可在 1 个月内重复使用最多三次。 - 在 300 µL PBSBT 中加入适当荧光二抗(1:500 稀释),于室温下在旋转摇床上孵育胚胎 2 小时。
- 弃去二抗溶液,并在旋转摇床上用 PBST 洗涤胚胎三次,每次 10 分钟。
- 移除最后一次 PBST 洗涤液,加入约 80 µL 封片剂。将胚胎转移至显微镜载玻片上,轻轻盖上盖玻片并密封边缘(图 1)。
注意:制备好的载玻片应于 4 °C 避光保存,并尽快成像以获得最佳荧光信号。
4. 胚胎的分期与成像
- 通过中肠特有的心形形态鉴定晚期15期胚胎19 在明场照明下。
注意:在14期或更早期的胚胎中,MHC蛋白表达无法检测到。在16期胚胎中,呈心形的中肠发生收缩,并被划分为四个腔室19. - 通过荧光标记的缺失来鉴定纯合突变胚胎。
注意:纯合突变胚胎不携带荧光标记的平衡染色体,因此不表达荧光蛋白。对于野生型对照胚胎,省略此步骤。 - 选择侧向取向的胚胎,以观察用抗肌球蛋白重链(anti-MHC)抗体标记的完整体壁肌组织。
注意:背侧或腹侧定向的胚胎主要显示相应部分的肌肉组织。应使用侧向定向的胚胎全面评估成肌细胞融合缺陷。 - 调节激光功率和检测器增益,以获得清晰且未发生信号饱和的MHC荧光,并在同一次实验的所有样品中保持这些设置不变。设定z轴扫描的上限和下限,以涵盖体壁肌的完整深度。
- 将图像分辨率设置为1024 × 1024 像素,针孔设为 1 阿贝单位,线/帧平均设为 1,缩放倍数设为 1,并在每次实验的所有样品中保持这些设置。采集共聚焦 z 轴层扫图像于 1.0 µm 间隔使用 40× 油浸物镜
- 每种基因型拍摄约6−10个胚胎,以评估表型的可重复性。
注意:当需要确认纯合突变基因型时,应同时获取荧光平衡子标记通道与MHC通道。
5. 对DA1肌进行成像以进行融合定量分析
- 在发现侧向取向胚胎中存在成肌细胞融合缺陷后,进行MHC和Eve共染色。
- 选择背向取向的15期突变体和对照胚胎进行成像。
注意:Even-skipped(Eve)特异性表达于背侧急性肌1(DA1)细胞核20。通过确定整合到DA1肌肉中的Eve阳性细胞核数量来量化成肌细胞融合。 - 调整成像参数,以获得清晰且无信号饱和的MHC和Eve荧光信号。根据Eve信号定义一个涵盖整个DA1肌肉深度的z轴层扫范围。
- 使用上述成像参数采集共聚焦z轴层扫图像。每种基因型成像约6−10个胚胎用于融合量化。
6. 定量细胞核并进行统计分析
- 根据典型的、重复的肌肉模式识别腹部半体节 A1−A7。
- 在 MHC 标记的 DA1 肌肉中识别 Eve 阳性核。检查完整的 z 轴层叠图像,并计数位于每个 DA1 肌肉不同焦平面内的所有 Eve 阳性核。
注意:每个腹部半体节包含一个 DA1 肌肉。因此,给定半体节内的所有 Eve 阳性核均应计入其对应的 DA1 肌肉中。 - 对每只胚胎的相同腹部半体节组(例如 A2−A5)进行 DA1 核的定量。
注意:尽管 A1−A7 腹部半体节的 DA1 肌肉均适用于定量分析,但无需分析全部七个半体节。可选择每只胚胎中的若干半体节(如 A2−A5)进行定量,并在所有胚胎中分析相同的半体节组以保持一致性。 - 计算每只胚胎中每个 DA1 肌肉的平均核数量,并将该平均值作为单个独立数据点。将各胚胎的数据点输入统计分析软件进行分析和作图。
- 使用双尾 Student’s t 检验比较两种条件;使用单因素方差分析(ANOVA)后接 Dunnett 检验比较三种或更多条件,并将 p < 0.05 视为具有统计学显著性。
结果
以 spook(spo)的 FlyBase 基因报告页面为例,说明如何选择合适的突变等位基因。spo 是“Halloween”基因之一,编码参与类固醇激素生物合成的酶21,22,并已被证明可促进成肌细胞融合23。spo 的 FlyBase 基因报告页面中的“等位基因”部分列出了文献中报道的 12 个 spo 突变等位基因,其中 4 个已存入 BDSC(图 2A),可方便获取。如果目标等位基因无法通过 BDSC 获得,可直接向最初报道该突变品系的研究团队申请获取。
在BDSC提供的四种突变等位基因中,spo1 携带一个错义突变(G481E),而spoMI06810在编码序列内含有一个MiMIC插入,导致Y341氨基酸处发生移码突变(图2B,C)。由于Spo蛋白由543个氨基酸组成,spoMI06810(Y341fs)预计会表达一种截短蛋白,缺失其全长的约40%,因此很可能代表一种强效的功能丧失型等位基因。因此,在进行成肌细胞融合的表型分析时,优先选用spoMI06810而非spo1 。
成肌细胞融合始于胚胎发育12期(产卵后7.3−9.3小时),并在15期末(产卵后11.3−13.3小时)基本完成24。因此,通常在15期晚期胚胎中评估融合表型,此时体壁肌模式已经形成,且大多数融合事件已完成。
15期胚胎可通过两个显著的形态学特征进行鉴定:背闭合已完成,以及中肠呈现出特有的心形形态(图3A–C)19。14期胚胎可通过正在进行的头部内陷加以区分(图3A),而15期胚胎则表现出典型的心形中肠(图3B)。16期胚胎的特征是中肠出现收缩,并形成四个腔室(胃盲囊;图3C)19。此外,MHC蛋白在较早阶段(包括14期)无法检测到,但从15期开始表达显著增强,并在后续阶段持续表达(图3A–C)。
在野生型(w1118)胚胎的晚期胚胎发育阶段15,体壁肌肉已完全形成定型的模式,在侧向观察时,大多数腹部半节段均呈现出相同且典型的肌肉排列模式(图3B)。该典型的肌肉模式可通过兔源或大鼠源抗MHC抗体进行可视化检测(图3B、D)。相比之下,当胚胎以背侧或腹侧方向成像时,可见的肌纤维数量较少(图3E、F)。因此,以侧向方向对胚胎进行成像可实现对整个体壁肌肉系统的可视化观察,并有助于评估成肌细胞融合缺陷。
为了检测成肌细胞融合缺陷,需对纯合突变体胚胎的体壁肌肉在侧向进行成像观察。纯合突变体可通过荧光平衡染色体标记物(如 GFP 或 YFP)的缺失来识别。例如,来源于 spoMI06810/TM3, twi>UAS-GFP 亲本的纯合 spo 突变体胚胎不表达 GFP,而携带平衡染色体的同胞胚胎则在中胚层表达 GFP(图 4B、C)。与野生型及 GFP 阳性的同胞胚胎相比,spo 突变体胚胎表现出成肌细胞融合缺陷,其特征是存在大量未融合的融合能力型成肌细胞(FCMs;图 4A–C)。
值得注意的是,在 spo 突变体胚胎的深层光学切片(Z3 和 Z4)中观察到的未融合融合细胞(FCM)数量多于表面切片(Z1)(图4B)。这种分布反映了胚胎成肌细胞融合过程中成肌细胞前体细胞与融合细胞(FCM)的空间组织特征。成肌细胞前体细胞及正在生长的肌管主要位于中胚层的表层,而融合细胞(FCM)在向生长中的肌管迁移并与其融合之前,主要存在于更深层的区域25。因此,在深层共聚焦切片中未融合的成肌细胞更为丰富,尤其是在具有部分融合缺陷的胚胎中。因此,必须获取贯穿体壁肌肉全层深度的Z轴层扫图像(z-stacks),以避免低估融合表型的严重程度。
尽管从侧面观察整体体壁肌的形态可用于评估成肌细胞融合缺陷的表型,但通过背侧方向观察DA1肌可进行定量分析。在野生型胚胎中,DA1肌完全形成,含有13.03 ± 0.60个Eve阳性细胞核(图5A、C)。在spo突变体胚胎中,DA1肌内的Eve阳性细胞核数量减少至8.16 ± 0.54(图5B、C),表明融合存在缺陷,即较少的融合能力细胞(FCM)与DA1创始细胞发生融合。为了获得一致且可重复的定量结果,对同一腹部半节段(A2−A5)中DA1肌的Eve阳性细胞核进行计数并取每枚胚胎的平均值,将每枚胚胎的平均值作为统计分析中的一个独立数据点(图5C)。
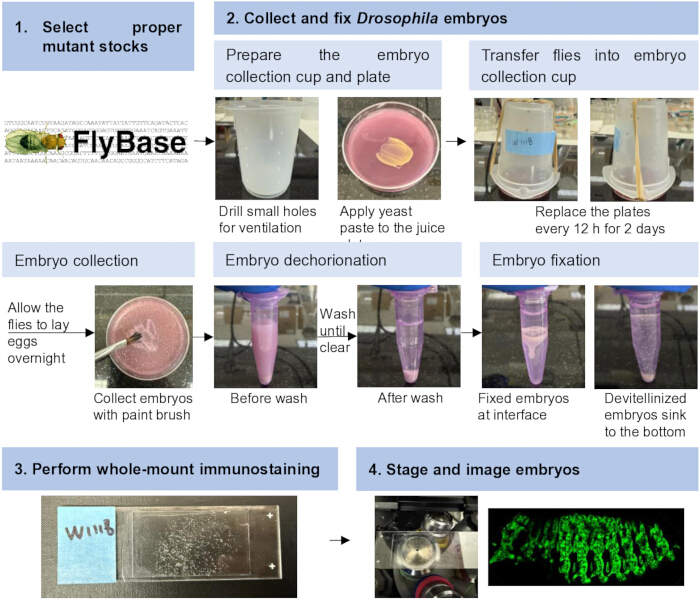
图 1:Drosophila 胚胎中成肌细胞融合的遗传学、表型及定量分析工作流程。 该工作流程包括选择合适的突变体品系、胚胎收集与固定、整体免疫染色与封片、以及胚胎分期和成像。请点击此处查看该图的放大版本。
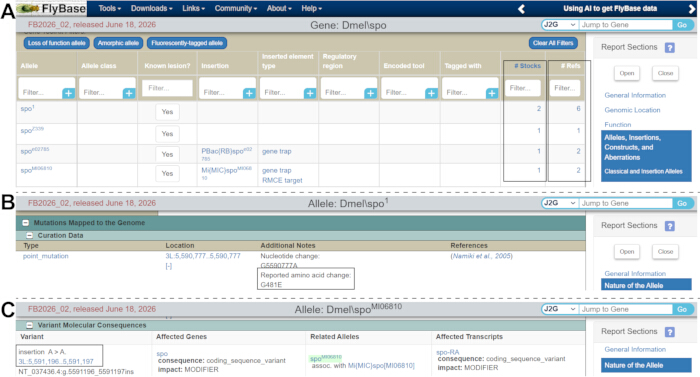
图2:利用FlyBase筛选突变等位基因。(A)spo基因在FlyBase基因报告页面的截图。突变等位基因列在“等位基因(Alleles)”部分。“Stocks”列(加框)表示可用品系的数量,“Refs”列(加框)表示相关参考文献的数量。(B、C)两个代表性spo突变等位基因的分子缺陷:spo1(B)和spoMI06810(C)。请点击此处查看该图的放大版本。
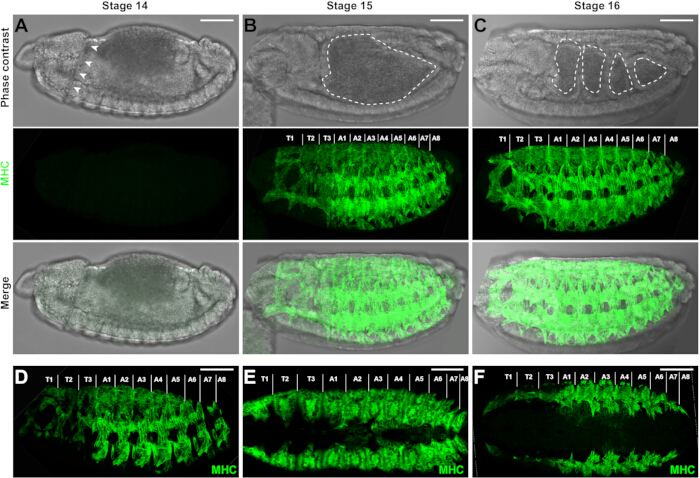
图3:Drosophila 胚胎肌肉系统。(A–C)野生型(WT)胚胎在14、15和16阶段的相差图像、MHC染色的z轴投影共聚焦图像及合并图像。在14阶段胚胎中可见头部内陷(箭头,A)。在15阶段胚胎中观察到特征性的心形中肠(虚线,B),而在16阶段胚胎中,中肠被划分为四个不同的腔室(虚线,C)。MHC蛋白在14阶段无法检测到(A),但在15(B)和16(C)阶段表达显著增强。胚胎呈侧视图,前端在左,后端在右,背侧向上,腹侧向下。图中标注了胸节(T1–T3)和腹节(A1–A8)的半节段。(D)使用大鼠抗MHC抗体标记的15阶段野生型胚胎肌肉系统的侧视共聚焦图像。其余图中使用的是兔抗MHC抗体。(E、F)15阶段野生型胚胎肌肉系统的背侧(E)和腹侧(F)z轴投影共聚焦图像。与侧视图相比,背侧和腹侧方向可见的肌纤维较少。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
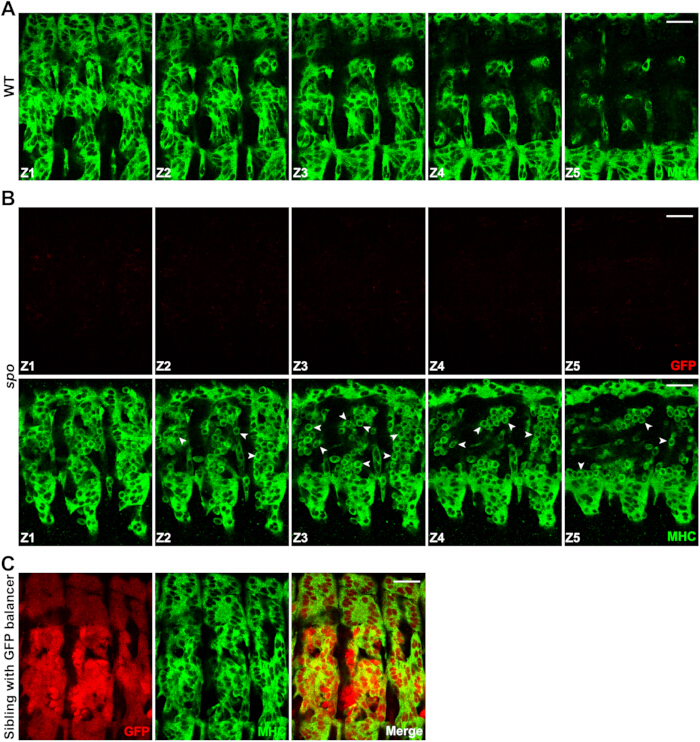
图4:野生型与spo突变体胚胎肌肉组织的比较。(A)晚期15阶段野生型胚胎侧视图中体壁肌肉组织的代表性共聚焦z轴层扫图像。成肌细胞融合已完成,未观察到未融合的成肌细胞。MHC以绿色显示。(B)来自spoMI06810/TM3, twi>UAS-GFP亲本的GFP阴性spo突变体胚胎侧视图中体壁肌肉组织的代表性共聚焦z轴层扫图像。GFP荧光(红色)的缺失表明该胚胎为spoMI06810的纯合子。箭头指示典型的未融合成肌细胞。在较深的光学切片(Z3和Z4)中观察到的未融合成肌细胞数量多于靠近胚胎表面的区域(Z1)。MHC以绿色显示。(C)来自相同spoMI06810/TM3, twi>UAS-GFP亲本的GFP阳性同胞胚胎侧视图的共聚焦图像。TM3平衡染色体上的twi>UAS-GFP转基因驱动的中胚层GFP表达(红色)可将GFP阳性的同胞胚胎与GFP阴性的纯合spo突变体胚胎区分开来。MHC以绿色显示。比例尺 = 20 µm。请点击此处查看该图的放大版本。
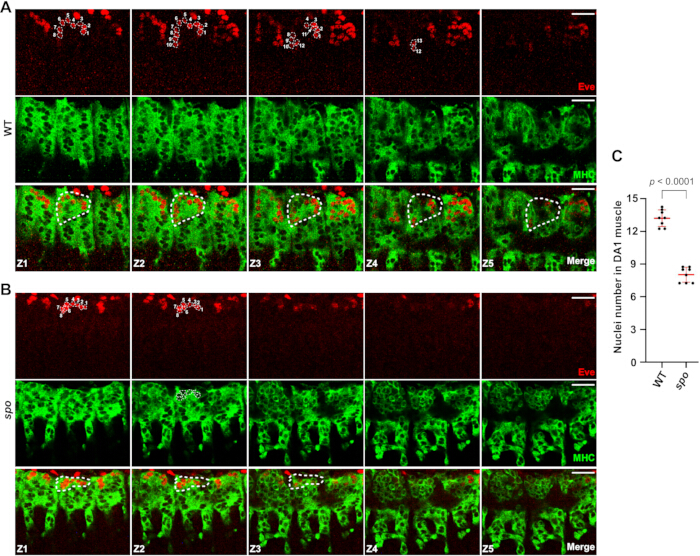
图5:DA1肌纤维的代表性共聚焦z轴层析图像及定量分析。(A、B)晚期15阶段野生型(A)和spo突变体(B)胚胎背侧视图的共聚焦z轴层析图像,使用抗MHC抗体(绿色)和抗Eve抗体(红色)标记。共聚焦z轴层析图像采集贯穿Eve阳性DA1肌纤维的整个深度,以捕获肌肉内所有细胞核。Eve阳性细胞核表现为MHC信号中的无染色区域。代表性DA1肌纤维用虚线标出,DA1肌纤维内的Eve阳性细胞核已编号。(C)野生型和spo突变体胚胎DA1肌纤维中Eve阳性细胞核的定量分析。每种基因型分析了8个胚胎。每个数据点代表一个胚胎A2–A5体节半段中DA1肌纤维的平均细胞核数量。数据以均值±标准差(红色条形)表示。采用双尾Student t检验确定统计学显著性;p < 0.0001。比例尺 = 20 µm。请点击此处查看该图的放大版本。
| BDSC 菌株编号 | 基因型 | 用途 |
| 6873 | N1/FM7c, twi>UAS-GFP | 中胚层 GFP 表达可用于鉴定不表达 GFP 的纯合突变胚胎。 |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | DrMio/TM3, twi>UAS-GFP | |
| 23229 | baz4/FM7c, Dfd-YFP | 头部特异性 YFP 表达可用于鉴定不表达 YFP 的纯合突变胚胎。 |
| 23230 | snaSco/ CyO, Dfd-YFP | |
| 23232 | Dr1/TM6B, Dfd-YFP |
表1: 果蝇 携带荧光标记基因的平衡染色体品系。
讨论
本文所述方案为成肌细胞融合的遗传学、表型及定量分析提供了一个全面的工作流程 果蝇 胚胎。重要的是,观察到突变品系中存在融合缺陷时,需要进行额外的遗传学分析,以验证目标基因确实是导致所观察表型的原因。在品系保种过程中可能积累自发的背景突变,这些突变可能对突变表型产生影响。26一种方法是通过将突变等位基因与缺失目的基因的染色体缺陷品系杂交,获得反式杂合胚胎并进行观察。若在这些胚胎中同样观察到融合缺陷,则支持该表型是由候选基因的破坏所致,而非由无关的背景突变引起。遗传学拯救实验,例如利用GAL4/UAS系统进行的实验27,可通过检测目的基因的表达是否能在突变胚胎中恢复正常的成肌细胞融合,从而提供进一步的验证。
尽管 果蝇 基因破坏项目已生成一个公开可用的突变品系集合,覆盖了约75%的 果蝇 基因28,对于每个目的基因,可能并非都有合适的突变等位基因,尤其是强效的功能缺失型等位基因。在这种情况下,染色体缺失系可作为评估候选基因是否参与成肌细胞融合的替代资源。目前可用的缺失系文库已覆盖超过98%的常染色质区域 果蝇 基因组29,从而实现对几乎所有基因的功能缺失分析。染色体缺失可在FlyBase基因报告的“Aberrations”部分查询。然而,由于每条缺失品系会移除多个基因,因此在纯合缺失胚胎中观察到的成肌细胞融合缺陷,若无进一步验证,无法归因于缺失染色体区域内的特定基因。因此,当利用缺失品系鉴定出融合缺陷时,应构建并分析单基因敲除突变体,以确定候选基因在成肌细胞融合中的具体作用。
尽管本实验方案主要关注目标基因突变体的表型分析,但该工作流程也可应用于利用现有的缺失突变品系库进行大规模缺失筛选,以发现新的成肌细胞融合调控因子29。此外,将MHC抗体替换为针对特定成肌细胞融合调控因子的抗体后,可将本方案中的通用流程(包括胚胎收集、固定和免疫染色)用于分析蛋白在融合活性突触中的定位。最后,本文所述方法还可进一步拓展,用于除成肌细胞融合外的其他胚胎发育过程的表型分析,从而扩大本实验方案在更广泛发育生物学研究中的应用价值。
披露
作者声明不存在任何竞争利益。ChatGPT 5(OpenAI)仅用于语法和语言编辑,未用于生成科学内容、数据、分析或图表。
致谢
感谢布卢明顿果蝇品系中心提供果蝇品系。本研究由美国国立卫生研究院(NIH)资助,资助项目编号为R01AR085116和R35GM136316,授予E.H.C.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂 | Fisher | BP1423-500 | 琼脂粉;用于制备固体培养基。 |
| 牛血清白蛋白(BSA) | Sigma | A7906 | 牛血清白蛋白;用于免疫染色过程中封闭液的配制。 |
| 共聚焦显微镜 | Leica | SP8 | 激光扫描共聚焦显微镜,用于染色样本的荧光成像。 |
| 共聚焦显微镜 | Nikon | A1R | 激光扫描共聚焦显微镜,用于染色样本的荧光成像。 |
| 盖玻片 | Fisher | 12-545-CP | 玻璃盖玻片,40 mm × 22 mm;用于显微镜样本的封片。 |
| 培养皿 | Corning | 430166 | 60 mm 培养皿;用于生物样本的操作、培养或处理。 |
| 干酵母 | Sigma | YSC2 | 作为生物培养营养来源的干酵母。 |
| 甲醛,37% | Fisher | BP531-500 | 用于固定液配制的浓甲醛溶液。注意:有毒且易挥发;操作时应佩戴适当的个人防护装备,并在化学通风橱中进行。 |
| 山羊抗小鼠 IgG 647 | ThermoFisher | A-21236 | 荧光标记的山羊抗小鼠 IgG 二抗,用于检测小鼠来源的一抗。 |
| 山羊抗兔 IgG 568 | ThermoFisher | A-11036 | 荧光标记的山羊抗兔 IgG 二抗,用于检测兔来源的一抗。 |
| 正庚烷 | Fisher | H350 | 用于样本固定和通透过程中的有机溶剂。注意:易燃且有害;应在化学通风橱中佩戴适当的个人防护装备进行操作。 |
| 培养箱 | Percival | I36LL | 温控培养箱,用于在特定环境条件下维持培养物或实验生物的生长。 |
| 甲醇 | Pharmco | 339000ACSBK01 | 用于样本固定、脱水或通透过程中的甲醇。注意:易燃且有毒;应在化学通风橱中佩戴适当的个人防护装备进行操作。 |
| 载玻片 | Fisher | 12-550-15 | 玻璃载玻片,用于样本成像时的封片。 |
| 封片剂 | ThermoFisher | P36980 | 抗荧光淬灭封片剂,用于保护荧光信号并封固染色样本以进行显微观察。 |
| 小鼠抗 Even skipped (Eve) | DSHB | 2B8 | 识别 Even skipped 蛋白的小鼠单克隆一抗;用于免疫荧光染色。 |
| 旋转混合仪 | Corning | 6720 | 台式旋转混合仪,用于洗涤、封闭或抗体孵育步骤中对样本进行温和而持续的搅动。 |
| 塑料烧杯 | Sigma | Z245380 | 100 mL 塑料烧杯,用于制作果蝇收集杯。 |
| 兔抗肌球蛋白重链(MHC) | — | — | 识别黑腹果蝇肌球蛋白重链的兔一抗;抗体来源见 Kiehart 和 Feghali(1986),《细胞生物学杂志》103, 1517–1525。 |
| 大鼠抗肌球蛋白重链(MHC) | DSHB | BB7/21.14 | 识别肌球蛋白重链的大鼠单克隆一抗;用于免疫荧光染色。 |
| 叠氮化钠(NaN3) | Sigma | S8032 | 用作抗体或缓冲液中防腐剂的叠氮化钠。注意:剧毒;避免摄入、吸入、皮肤接触以及与金属接触。 |
| 吐温 X-100 | Fisher | AAA16046AP | 非离子型去污剂,用于膜通透以及洗涤液或封闭缓冲液的配制。 |
| 10× 磷酸盐缓冲液(PBS) | Fisher | BP3994 | 浓缩型磷酸盐缓冲液,用于配制 1× PBS,以进行洗涤、稀释和缓冲液制备。 |
参考文献
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
重印与许可
本文已发表
视频即将推出