电针通过恢复孤束核内的神经元活动,减轻慢性心力衰竭及病理性心脏重构。这种治疗性中枢神经调节与候选生物学靶点转录因子YY1的上调相关。
研究文章
电针治疗慢性心力衰竭的中枢机制:基于孤束核定量蛋白质组学的研究 insights
* These authors contributed equally
本文内容
摘要
摘要
慢性心力衰竭(CHF)是全球心血管死亡的主要原因之一,其发生与自主神经功能失调及交感神经过度激活密切相关。尽管电针(EA)可通过中枢神经调节发挥心脏保护作用,但其在孤束核(NTS)——一个关键的自主神经整合中枢——中的具体分子靶点仍不明确。为探讨这一问题,本研究通过结扎左前降支冠状动脉建立CHF大鼠模型。大鼠接受双侧HT7穴位电针干预,连续治疗7天。采用超声心动图、酶联免疫吸附测定及组织学染色评估心脏功能与心肌损伤情况。通过c-Fos免疫荧光染色和在体电生理记录评估NTS神经元活动。利用定量蛋白质组学与生物信息学分析探索其分子机制,并通过定量PCR和Western blotting验证核心靶点。结果显示,电针可改善左心室射血分数,减轻心肌纤维化,并降低血清心力衰竭标志物水平。同时,电针恢复了NTS区神经元的自发放电频率、局部场电位能量及c-Fos表达水平。蛋白质组学分析鉴定出85个受电针调控的核心差异表达蛋白。对其中58个下调和27个上调蛋白进行功能分类,发现它们分别参与细胞外基质组织和ATP依赖性染色质重塑过程。通过整合拓扑网络映射、通路富集分析和组织表达谱的逐步筛选策略,鉴定出转录因子YY1为一个高度响应的候选靶点。在体验证实,电针可上调YY1的表达水平。综上所述,电针可缓解病理性心脏重构并恢复NTS神经元活动,YY1被识别为与该中枢神经调节作用相关的关键候选分子靶点,为揭示电针在CHF中作用机制提供了分子层面的理论依据。
引言
慢性心力衰竭(CHF)被广泛认为是多种心血管疾病发展的终末阶段,至今仍是全球心血管疾病死亡的主要原因,给全球医疗系统带来巨大负担1。CHF 的病理生理进展主要由自主神经系统功能失调驱动,其特征为交感神经持续过度激活和副交感神经活性减弱2。因此,恢复自主神经稳态被认为是减轻病理性心脏重构、改善整体心脏功能的关键治疗策略3。
电针(EA)是传统针灸的一种现代发展,因其在治疗心血管疾病方面的临床疗效而获得了广泛认可4。包括我们先前研究在内的大量研究表明,该疗法主要通过调节中枢自主神经系统发挥显著的心脏保护作用。具体而言,我们已证实,在神门(HT7)穴进行电针刺激可有效抑制过度的交感神经输出,并通过特定的中枢神经机制恢复交感-迷走平衡,从而改善充血性心力衰竭(CHF)的病理进展5,6,7,8。
位于延髓的孤束核(nucleus tractus solitarius, NTS)是维持中枢自主神经平衡的重要整合中枢。它作为心血管反射和外周感觉传入的主要中继站,调节交感神经与迷走神经张力之间的动态平衡9。尽管NTS在解剖学和功能上具有重要意义,但在慢性心力衰竭(CHF)治疗过程中,该关键脑干区域内的特异性分子改变仍 largely 不明确。结合生物信息学分析的高通量蛋白质组学技术为无偏倚地描绘参与这一中枢神经生物学过程的复杂蛋白质网络和信号通路提供了强有力的工具10。
因此,本研究旨在探讨电针刺激内关穴(HT7)对充血性心力衰竭(CHF)心脏功能及孤束核(NTS)神经元活性的影响,并表征与电针治疗相关的NTS内分子改变。通过整合体内电生理学、定量蛋白质组学、生物信息学分析及分子验证,本研究试图鉴定与电针介导的中枢神经调节作用相关的候选分子靶点。
方案
所有涉及脊椎动物的实验方法均遵循安徽中医药大学动物护理与使用委员会的规定,并获得批准编号AHUCM-rats-2024145。所用试剂和设备列于材料表中。
动物准备与分组
选用8周龄、体重200至250 g的清洁级雄性Sprague-Dawley大鼠进行所有实验。动物饲养于温度24 ± 2 °C、相对湿度50%–60%的受控环境中,光照周期为标准的12小时明暗循环。所有大鼠均可自由进食和饮水,并在进行任何实验操作前经历为期1周的适应期。
实验一评估了功能及中枢神经活动,将24只大鼠随机分为四组,每组6只:假手术组(Sham)、慢性心力衰竭组(CHF)、电针组(EA)和假手术电针组(Sham EA)(图1A)。实验二评估了分子靶点和高通量蛋白质组学,将36只大鼠随机分为三组,每组12只:假手术组(Sham)、慢性心力衰竭组(CHF)和电针组(EA)。样本量根据资源方程法确定,以遵循动物福利伦理和减量原则,同时确保统计学有效性(实验一的E值 = 20;实验二的E值 = 33)11。该样本量策略与既往关于电针治疗心血管疾病研究中采用的方案一致8,12。事后功效分析表明,统计功效超过0.90,支持该分组方案的充分性。由于初步功能评估显示假手术电针组无治疗效果,因此该组未纳入实验二。
慢性心力衰竭模型的建立
大鼠在手术前禁食12小时,可自由饮水。使用3%异氟烷诱导麻醉,并在手术过程中以1.5%–2%异氟烷维持麻醉。由于异氟烷是一种挥发性麻醉剂,因此使用了适当的废气清除系统,并在通风良好的环境中进行操作,以防止职业暴露。
持续记录标准肢体心电图(ECG)。通过左前外侧开胸术暴露心脏,并在左心耳下方2至3 mm处使用7-0不可吸收缝线永久结扎左前降支冠状动脉(LAD)13。通过心电图上至少出现0.2 mV的ST段抬高来确认缺血成功(图1B)。术后连续三天每日给予腹腔注射青霉素(200,000 U/mL)和皮下注射卡洛芬(5 mg/kg),以预防感染并缓解疼痛。
对于假手术对照组,进行相同的开胸手术,随后在相应解剖位置进行浅表针刺,但不结扎冠状动脉前降支(LAD)。术后提供与实验组相同的护理和监测。术后4周进行超声心动图评估。当左心室射血分数(LVEF)≤45%8(图1C)时,认为模型成功建立。未能达到上述标准、术前存在基线心电图异常或发生早期死亡的动物被系统性剔除。额外的实验大鼠接受相同的手术操作,以立即替换被剔除的动物,确保样本量保持一致。
电针干预
根据既定的比较解剖学操作规程14,手少阴心经上的双侧 HT7 穴位位于腕横纹掌侧面靠近尺侧边缘处,正处尺侧腕屈肌腱桡侧凹陷内。局部常规消毒后,使用两根无菌一次性针灸针(0.25 × 25 mm),垂直刺入每侧 HT7 穴位区域,进针深度为 2 至 3 mm,两针间距约 1 mm,以确保严格位于同一穴位区域内。为便于视频记录,进针前在针体 3 mm 处预先做标记,以直观确认进针深度。
将一根针连接至电针仪的阴极端,相邻的另一根针连接至阳极端,以建立局部电回路(图1D)。在异氟烷麻醉下,每日持续给予频率恒定为2 Hz、强度为1 mA的连续电波形刺激,强度校准至可产生可见但轻微的相应肢体肌肉抽动,每次持续30分钟,连续进行七天。
为排除非特异性躯体感觉反应的影响,假干预组采用最小化的针刺方案15,16。在相同的HT7穴位位置,将无菌针头浅刺入皮肤0.5–1 mm深度,不连接电极导线,也不施加电流,持续时间与麻醉时间一致,均为30分钟。基础假干预组和CHF对照组则仅接受相同每日异氟烷暴露(连续7天,每天1.5%–2%异氟烷,持续30分钟),不进行针刺或电刺激。该操作使所有实验组在麻醉基础上保持一致,并控制了重复性挥发性麻醉可能引起的神经抑制或心肌保护效应等干扰因素。
超声心动图评估与动物安乐死
干预处理后,用3%异氟烷诱导麻醉,1%异氟烷维持麻醉,将大鼠仰卧位固定在动物平台上。使用脱毛剂小心去除胸部毛发,并在暴露的皮肤上均匀涂抹声学耦合剂。采用配备18 MHz超声探头的数字超声系统评估心脏功能。通过M型超声心动图记录左心室射血分数(LVEF)和左心室短轴缩短率(LVFS),并计算3次技术重复的平均值用于最终分析。
在动物仍处于麻醉状态时,从腹主动脉采血,以防止后续失血和凝血,并确保样本适用于酶联免疫吸附测定(ELISA)。通过持续吸入5%异氟烷使大鼠麻醉至心跳和呼吸停止,立即实施安乐死。
根据实验设计,随后对组织样本进行分配。实验一中,每组取3只大鼠,采集心脏用于苏木精-伊红(HE)染色和Masson染色,采集脑组织用于c-Fos免疫荧光检测;其余3只大鼠用于在体电生理记录。实验二中,每组取6只大鼠,提取双侧孤束核(NTS)组织用于蛋白质组学分析;其余6只大鼠的组织用于分子学验证:其中3只用于Western blot和qPCR检测,另外3只仅用于qPCR检测。
酶联免疫吸附测定
采集的血液样本在 4 °C 下静置 10–20 分钟,使其自然凝固。在 4 °C 条件下以 1,000 x g 离心 15 分钟,分离血清,并收集上清液。若不能立即进行检测,则将血清样本储存于 −80 °C,直至使用。根据标准操作说明,采用特异性 ELISA 试剂盒对 N 末端脑钠肽前体(NT-proBNP)和心肌肌钙蛋白 T(cTnT)的血清浓度进行定量。测定吸光度值,并根据标准曲线计算生物标志物水平。
组织学与免疫荧光染色
收获的心脏组织用预冷的0.9%氯化钠溶液冲洗,在心尖上方5 mm处切取并包埋于石蜡中。组织切片经脱蜡和水化处理。苏木精-伊红(HE)染色采用苏木精染色10 min,随后伊红复染2.5 min。Masson染色采用苏木精染色60 s,Masson三色染色30–60 s,切片在6%–8%磷酸溶液中分化,再用亮绿复染5 min。通过定量胶原容积分数(CVF)评估心肌纤维化程度。
采集的脑组织用4%多聚甲醛固定,经梯度蔗糖溶液脱水后,切成30 µm厚的切片。由于多聚甲醛具有毒性且可能为致癌物,操作时需在化学通风橱内进行,并佩戴适当个人防护装备。切片用含0.5% Triton X-100和3%牛血清白蛋白的缓冲液封闭,随后在4 °C下与c-Fos一抗孵育过夜。然后用磷酸盐缓冲液洗涤切片,并在避光条件下室温孵育相应的二抗2小时。切片用含4',6-二脒基-2-苯基吲哚(DAPI)的荧光淬灭液封片,随后对c-Fos阳性神经元进行成像。
体内电生理学
使用3%异氟烷进行诱导麻醉,1%异氟烷维持麻醉,将大鼠固定于脑立体定位仪中。剃除头皮毛发并进行消毒处理。沿中线做切口以暴露前囟,去除硬脑膜。根据相对于前囟的以下立体定位坐标:前后(AP)±12.6 mm,内外侧(ML)±0.9–2.1 mm,背腹(DV)±7.6–8.1 mm,在孤束核(NTS)区域上方精确钻孔。
电生理记录完成后,通过施加1 mA的直流电流持续10秒至记录电极,产生微小的电解损伤,以验证电极尖端精确的立体定位。实验结束后,对脑干进行切片,并通过组织学方法确认损伤轨迹解剖位置位于孤束核(NTS)内。
使用电动显微操作器以5 µm/s的速度将一个八通道(2 x 4)微电极阵列植入并缓慢推进至目标脑区。待神经活动稳定后,持续记录400秒。采用多通道采集系统记录神经元锋电位放电(滤波范围150–8,000 Hz,采样率40 kHz)和局部场电位(LFP;滤波范围0.7–400 Hz,采样率1 kHz)。
采用簇分离软件通过波形互相关方法消除典型的高幅度干扰信号和伪迹。随后使用神经分析软件进行神经元信号分析。只有当神经元表现出自发平均放电频率>2 Hz,并且信噪比稳定维持在>3:1时,才被归类为活跃神经元。选择2 Hz作为阈值是基于已确立的自主神经相关孤束核(NTS)神经元的生理特性;该阈值可有效排除 predominantly 静息的细胞以及低频呼吸节律性爆发,从而确保分析集中于介导基础心血管调节的紧张性活跃神经元17,18,19,20。根据这些标准生成了平均神经元放电频率和动作电位发放序列图。通过构建2D局部场电位(LFP)能量谱图和3D功率谱密度(PSD)拓扑图,以评估神经振荡能量特征。
记录完成后,缝合切口,并监测大鼠直至其从麻醉中完全恢复。通过腹腔注射给予青霉素,并每天皮下注射卡洛芬(5 mg/kg),连续给药三天。
数据非依赖性采集定量蛋白质组学分析
采用裂解缓冲液提取总蛋白,并通过二辛可宁酸法进行定量。蛋白经变性后,进行还原烷基化处理,并在37 °C条件下用胰蛋白酶消化2 h。所得肽段使用C18柱脱盐,在45 °C下浓缩,然后重悬用于后续质谱分析。
将肽段加载至捕获柱(5 µm C18,300 µm × 5 mm),该柱使用含0.1%甲酸的水溶液(缓冲液A)平衡。随后,采用经过严格优化的缓冲液A与缓冲液B(含0.1%甲酸的80%乙腈溶液)梯度洗脱,在高通量超高效液相色谱分析柱上实现肽段的分离。
采用正离子数据非依赖性采集(DIA)模式进行质谱分析,电喷雾电压为1.9 kV。全扫描质谱在质量范围380至980 m/z内进行,分辨率为240,000,自动增益控制(AGC)目标值为500%,最大注入时间为3 ms。MS/MS谱图的分辨率设置为80,000(AGC目标值:500%;最大注入时间:3 ms;射频透镜振幅:40%)。前体离子通过高能碰撞解离(HCD)进行碎裂,隔离窗口为2 Th,归一化碰撞能量为25%,循环时间设定为0.6 s。
原始质谱数据使用 DIA-NN 软件进行处理。利用内部深度学习算法生成谱图库,并应用跨样本匹配功能对以下内容进行定量分析 Rattus norvegicus 参考蛋白质组数据库,采用胰蛋白酶消化,允许最多2个未切割位点。最终的定量蛋白质矩阵在前体离子和蛋白质水平均采用严格的1%错误发现率阈值进行筛选。
生物信息学分析与枢纽基因挖掘
生物信息学分析和数据可视化主要使用 R 编程环境以及专业的网络可视化软件进行。为确保方法的透明性和可重复性,所有在这些分析过程中使用的自定义 R 脚本均提供在补充文件 1中。使用 ropls 软件包进行初始数据质量控制和整体分布评估;汇总了蛋白质鉴定/定量的概览统计信息;在三个组之间进行了偏最小二乘判别分析(PLS-DA);针对成对比较进行了正交偏最小二乘判别分析(OPLS-DA);并使用 pheatmap 软件包生成样本相关性热图。
采用以下阈值筛选核心差异表达蛋白:p 值 <0.05、倍数变化 >1.2,以及投影中变量重要性评分 >1.0。使用 ggplot2 软件包生成双火山图,利用 ggVennDiagram 软件包确定交集,并通过 pheatmap 软件包绘制层次聚类热图以可视化交集蛋白。基于 Enrichr 数据库,使用 enrichR 软件包分别对上调和下调蛋白进行基因本体(Gene Ontology, GO)和京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes, KEGG)富集分析。
将所有差异表达蛋白映射到 STRING 数据库,置信度阈值设为 0.4,以构建蛋白-蛋白相互作用网络。将相互作用数据导入网络可视化软件。应用 cytoHubba 插件计算拓扑评分,并根据节点颜色深度提取得分最高的前 18 个基因。对这 18 个枢纽候选基因进行通路富集分析,并选取其中最显著的前 10 个蛋白,利用基因型-组织表达(GTEx)数据库评估其在人体不同组织中的表达水平。根据蛋白在人脑中的表达水平及网络拓扑评分,确定最关键的枢纽基因。使用 Cistrome 数据浏览器预测与该特定枢纽基因相关的下游转录因子及组蛋白修饰。
蛋白质印迹与定量聚合酶链式反应
使用含有苯甲基磺酰氟裂解缓冲液、PMSF和磷酸酶抑制剂的裂解混合物从NTS组织中提取总蛋白。样品利用超声波细胞破碎仪进行匀浆,并在4 °C条件下以13,800 × g 离心20分钟,收集上清液。采用二辛可宁酸蛋白检测试剂盒测定蛋白浓度。每个样品取20 µg总蛋白,通过10%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳分离,随后转移至聚偏二氟乙烯膜上。
使用含5%脱脂奶粉的TBST缓冲液在室温下封闭膜1小时,随后在4 °C下与针对YY1(Yin Yang 1)和作为内参蛋白的β-actin的特异性一抗孵育过夜。用TBST缓冲液洗涤膜5分钟,重复3次,然后在室温下与辣根过氧化物酶标记的二抗孵育1.5小时。通过增强型化学发光试剂盒显色,使用成像系统捕获信号,并以β-actin为参照进行目标条带的定量分析。
使用RNA提取试剂从NTS组织中提取总RNA。采用分光光度计测定RNA浓度和纯度,并利用逆转录试剂盒合成第一链cDNA。在实时PCR系统上,使用SYBR Green PCR试剂盒进行定量实时聚合酶链式反应(PCR)。用于扩增的特异性引物序列及其相应的NCBI参考序列登录号如下:YY1(NM_001002271.1),上游引物5'-AGCGTTCGTTGAGAGCTCAA-3',下游引物5'-AGCCTTCGAATGTGCACTGA-3';DPF2(NM_001014264.1),上游引物5'-TGTGATGACTGTGACCGTGG-3',下游引物5'-TCCAAACACAGGTGGCAACT-3';DMAP1(NM_001007705.1),上游引物5'-GGTGTGACATTACGGAGCCA-3',下游引物5'-TCCAGCAGCATCTGTTCCAG-3';以及甘油醛-3-磷酸脱氢酶(GAPDH)(NM_017008.4),上游引物5'-GGCACAGTCAAGGCTGAGAATG-3',下游引物5'-ATGGTGGTGAAGACGCCAGTA-3'。相对mRNA表达水平采用2-ΔΔCt法计算,并以内参基因GAPDH进行标准化。
统计学分析
所有实验数据均使用统计学软件进行分析,并以均值 ± 标准差(SD)表示。采用Shapiro-Wilk检验评估正态性,采用Brown-Forsythe检验评估方差齐性。
对于两个独立组之间的比较,若数据符合正态性条件,则采用学生t检验或配对t检验。对于不符合正态性假设的数据,则采用Mann-Whitney U检验或Wilcoxon符号秩检验。对于多个组之间的比较,当满足正态性和方差齐性假设时,采用单因素方差分析,随后进行Holm-Sidak事后检验;当这些假设不满足时,则采用Kruskal-Wallis H检验,并随后进行Dunn事后检验。
采用 R 中的 Hmisc 软件包计算 Pearson 相关系数以评估相关性。使用 stats 软件包中的 Benjamini-Hochberg 错误发现率方法对相应的 p 值进行校正,以控制因多重检验导致的 I 类错误率升高。总体统计学显著性设定为 p <0.05。
结果
电针改善慢性心力衰竭大鼠的心脏功能并减轻心肌损伤
为评估电针(EA)对充血性心力衰竭(CHF)的影响,通过结扎左前降支冠状动脉建立大鼠模型,随后进行特定的电针或假电针干预。系统性评估包括超声心动图、生物化学检测和组织学染色(图2A)。功能上,CHF组表现出心室扩张和收缩功能受损。电针治疗改善了CHF大鼠左心室射血分数(LVEF)和左心室短轴缩短率(LVFS)的降低,而假电针组的心功能水平与CHF组相似(图2B 和 图2C)。
此外,电针治疗降低了血清NT-proBNP和cTnT水平,表明心脏负荷减轻且心肌损伤得到缓解。相比之下,假电针组的生化指标与慢性心力衰竭组相似(图2E,F)。组织学分析显示,CHF组出现心肌结构损伤和纤维化。EA治疗改善了心肌组织结构并降低了CVF,而假EA组则保留了与CHF组相似的病理改变和CVF水平(图 2D总体而言,电针刺激对充血性心力衰竭具有心脏保护作用,而假电针刺激干预未产生类似的治疗效果。
电针激活慢性心力衰竭大鼠孤束核中的神经元
为了确定孤束核(NTS)是否介导电针(EA)治疗的中枢反应,通过检测神经兴奋标志物c-Fos的表达来评估神经元的激活情况。免疫荧光成像(图3A)和定量细胞计数(图3B)结果显示,与假手术组相比,慢性心力衰竭(CHF)组NTS中c-Fos阳性神经元数量减少。然而,电针治疗使c-Fos的表达水平恢复至接近假手术组的基础水平。与外周功能结果一致,假电针组的c-Fos表达水平与CHF组相似。
为了评估这些孤束核(NTS)神经元的功能状态,记录了体内的电生理信号。动作电位发放轨迹(图3C)和定量的平均放电频率(图3D)与组织学结果一致。在慢性心力衰竭(CHF)条件下,NTS神经元的自发放电频率降低。相比之下,电针(EA)干预提高了神经元的放电频率,而假电针(Sham EA)处理则未引起此类电生理变化。
这种神经激活模式得到了局部场电位分析的支持。如二维LFP色阶谱图和三维功率谱密度图所示(图3E在心力衰竭状态下,NTS 内的神经振荡能量减弱。电针治疗后,神经频率谱内的功率强度增加,表明神经网络被激活,而假电针组未出现此现象。
为了探讨这种中枢激活的生理学意义,进行了皮尔逊相关性分析,将外周心脏指标与中枢孤束核(NTS)神经元活动进行整合(图3F)。分析结果显示,NTS内的平均放电频率和c-Fos表达水平与左心室射血分数(LVEF)呈正相关。相反,这些中枢神经活动指标与血清心力衰竭标志物NT-proBNP呈负相关。这些相关性表明,电针调节的NTS神经元激活与其外周心脏保护效应密切相关。
电针调节孤束核的全局蛋白质组学谱
由于在前期功能评估中观察到假电针组缺乏治疗效果,蛋白质组学阶段仅包括假手术组、心力衰竭组和电针组。在组织采集前,每组12只大鼠接受了超声心动图评估,以评价电针的治疗效果,结果见补充图1A。在此评估之后,每组选取6个生物学重复样本进行基于质谱的定量蛋白质组学分析。
为评估蛋白质组学数据的可靠性和整体分布情况,进行了质量控制和多变量分析。假手术组鉴定出的蛋白质总数为5,914种,CHF组为5,980种,EA组为5,836种,表明三个实验组之间的蛋白质检出水平具有可比性(图4A 和补充表1)。偏最小二乘判别分析显示,假手术组、CHF组和EA组之间存在明显分离,表明不同疾病状态及电针干预具有独特的全局蛋白质组学特征(图4B)。
成对正交偏最小二乘判别分析进一步显示了假手术组与CHF组之间的分离(图4C) 以及 CHF 组与 EA 组之间(图4D)。相应的置换检验支持了各模型的可靠性。此外,Pearson相关性热图显示蛋白质组样本在组内具有高相关性,组间则呈现出明显不同的模式,表明生物学重复具有良好的可重复性(图4E综上所述,这些质量控制和多变量分析结果表明,蛋白质组学数据集具有足够的稳健性,可用于后续差异表达蛋白的鉴定及生物信息学分析。
电针调节孤束核中核心差异表达蛋白及其信号通路
为探索电针(EA)的分子靶点,对蛋白质的变化进行了分析。火山图展示了假手术组(Sham)与慢性心力衰竭组(CHF)以及CHF组与EA组之间上调和下调蛋白质的分布情况(图5A、补充表2 和 补充表3)。为鉴定治疗靶点,进行了交集分析。如维恩图所示,共鉴定出58个在CHF组中上调但在EA治疗后下调的蛋白质,以及27个在CHF组中下调但在EA干预后上调的蛋白质(图5B 和 补充表4)。该筛选共获得85个核心差异表达蛋白。层次聚类热图显示,EA干预调节了这85个蛋白的异常表达模式,使其表达谱趋向于假手术组的基线水平(图5C)。
为了确定这些核心靶点的生物学功能,分别对两个不同的蛋白质子集进行了GO和KEGG富集分析。对于EA下调的58种蛋白质子集,GO气泡图显示其在生物学过程方面显著富集,包括细胞外基质组织和细胞外结构组织,细胞组分方面如外部包裹结构和胶原三聚体,以及分子功能方面如胶原结合和谷氨酸受体结合(图5D 和 补充表5)。后续通过弦图和桑基图可视化展示的KEGG通路分析表明,这58种蛋白质参与了多个级联反应,包括蛋白质的消化与吸收、肌细胞中的细胞骨架以及TGF-β信号通路(图5E 和 补充表6)。这些拓扑可视化图突出显示了若干关键蛋白,如COL3A1、COL14A1、MYH11、DCN和DPF2,作为连接多个病理通路的重要节点。
相反,针对EA干预上调的27种蛋白质亚群进行了功能注释。GO富集分析表明,这些蛋白质参与了细胞生长调控以及DNA模板化转录延伸的正向调控等生物学过程,同时涉及钙离子依赖性蛋白质结合和四吡咯结合等分子功能(图5F 和 补充表7)。相应的KEGG弦图和桑基图将这些蛋白质映射到ATP依赖性染色质重塑和多梳抑制复合物等关键信号通路(图5G 和 补充表8)。值得注意的是,该网络映射鉴定了YY1、E2F2和ENTPD5等关键蛋白质,连接了这些核心信号网络。这一全面的功能分层分析为后续核心靶点的验证奠定了结构基础。
网络拓扑与表达谱分析鉴定出YY1是与电针干预效应相关的候选靶点
为了确定85种差异表达蛋白中的枢纽基因,构建了蛋白质-蛋白质相互作用网络。拓扑学分析鉴定了18个具有高连接性评分的节点(图6A 和 补充表9)。随后,针对这18种枢纽蛋白进行了KEGG通路分析。相应的弦图和桑基图描绘了这些枢纽蛋白与富集信号通路之间的复杂关系,包括ATP依赖性染色质重塑、多梳抑制复合物以及TGF-β信号通路(图6A 和 补充表10)。基于该功能谱型分析,筛选出前10种显著富集的蛋白进行进一步筛选。由于电针(EA)的治疗靶点位于中枢神经系统,因此利用GTEx人类组织表达数据库对这10个候选蛋白进行了评估(图6B 和 补充图1B–J)。结果表明,仅有YY1(图6B)、DMAP1(补充图1C)和DPF2(补充图1D)在脑组织中表达。
为了分离EA的高响应性候选靶点,利用NTS组织进行了体内分子实验。采用定量实时PCR评估3个脑富集候选基因的转录响应性。在CHF条件下,YY1的mRNA表达降低,而EA治疗后其表达升高;相比之下,DPF2和DMAP1的mRNA表达水平在各实验组之间未表现出统计学显著变化(图6C)。该转录筛选排除了DPF2和DMAP1作为进一步验证的候选分子,支持YY1为主要的响应性候选基因。随后的Western blot分析表明,与假手术基线组相比,CHF组中YY1蛋白水平降低,而EA干预逆转了这一趋势,提高了YY1蛋白的表达(图6D和图6E)。这些实验结果表明,EA可上调NTS中YY1的表达。
为了研究调控 YY1 表达的上游机制,分析了与 YY1 相关的组蛋白修饰及其转录因子。需要强调的是,这些结果完全基于来自 Cistrome 数据浏览器的计算生物信息学预测,尚未通过实验性的 ChIP-seq 验证。表观遗传学预测显示,组蛋白修饰如 H3K27ac、H3K27me3 和 H3K4me3 在 YY1 基因位点具有较高的调控潜力评分(图 6F)。同时,调控潜力评分还鉴定出 CDK9、PRDM1 和 ELL2 等转录因子为 YY1 的上游调控因子(图 6G)。这些生物信息学预测揭示了在 NTS 中可能参与调控 YY1 表达的表观遗传与转录调控网络。
综上所述,本研究结果表明,电针干预可有效改善慢性心力衰竭大鼠的全身心脏功能,并减轻心肌损伤。这些外周心脏保护作用伴随着孤束核(NTS)内神经元放电活动及神经振荡能量的恢复。此外,定量蛋白质组学筛选鉴定了85种核心差异表达蛋白,并发现转录因子YY1是一个高度响应的候选靶点。综合来看,这些发现提示电针对抗慢性心力衰竭的治疗效果与孤束核神经功能的恢复密切相关,而YY1的上调可能参与了这一中枢神经生物学过程。
数据可用性
支持本研究结论的所有生成和分析数据均包含在论文及其补充文件1中。为符合公共数据可访问性的要求,本研究所有可用的原始数据均已存入Zenodo公共存储库,并可通过以下链接免费获取:https://doi.org/10.5281/zenodo.22030720。其他支持性数据可根据合理请求向通讯作者索取。
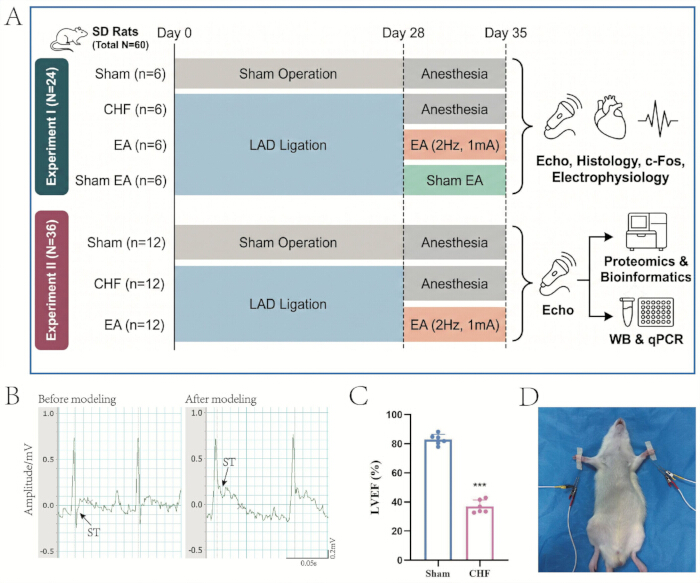
图1:实验设计、慢性心力衰竭大鼠模型的建立及电针干预。(A) 整体实验流程图,包含两个独立实验系列的时间线和分组情况。(B) 左冠状动脉前降支(LAD)结扎前后代表性心电图记录,箭头指示ST段抬高,证实心肌缺血的发生。(C) 术后4周左心室射血分数(LVEF)的定量分析,以确认建模成功(生物学重复数 n = 6,均值 ± 标准差)。***p < 0.001,与假手术组比较。(D) 在双侧HT7穴位进行电针干预。请点击此处查看该图的放大版本。
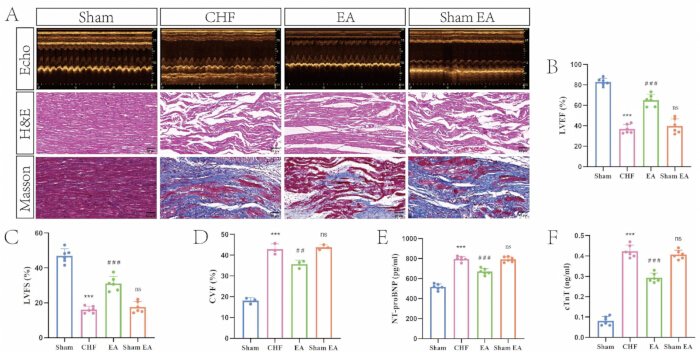
图2:电针治疗改善慢性心力衰竭大鼠的心功能并减轻心肌损伤。(A) 四个实验组中心肌组织的代表性M型超声心动图及苏木精-伊红染色和Masson三色染色图像(比例尺 = 50 µm)。(B) 各组间左心室射血分数(LVEF)的定量分析(生物学重复数 n = 6,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较;ns,与CHF组比较无显著性差异。(C) 各组间左心室缩短分数(LVFS)的定量分析(生物学重复数 n = 6,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较;ns,与CHF组比较无显著性差异。(D) 各组间心肌胶原容积分数(CVF)的定量分析(生物学重复数 n = 3,均值 ± 标准差)。***p < 0.001,与假手术组比较;##p < 0.01,与CHF组比较;ns,与CHF组比较无显著性差异。(E) 各组间血清NT-proBNP水平的定量分析(生物学重复数 n = 6,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较;ns,与CHF组比较无显著性差异。(F) 各组间血清cTnT水平的定量分析(生物学重复数 n = 6,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较;ns,与CHF组比较无显著性差异。 请点击此处查看此图的放大版本。
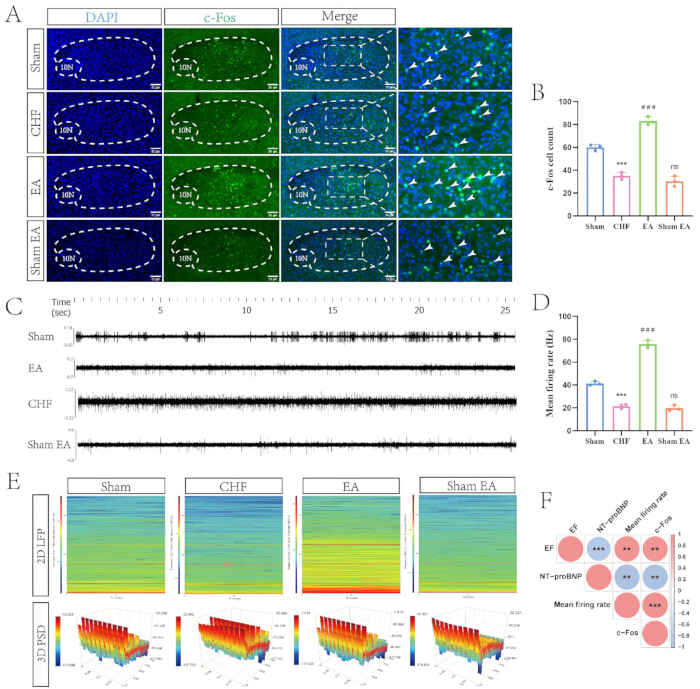
图3:电针刺激可恢复慢性心力衰竭大鼠孤束核中的神经元活动。(A) 各组大鼠孤束核(NTS)中c-Fos表达的代表性免疫荧光图像。细胞核用DAPI复染,c-Fos阳性细胞呈绿色。虚线标示解剖区域,白色箭头指示典型的c-Fos阳性神经元(比例尺 = 30 µm)。(B) 各组c-Fos阳性细胞计数的定量分析(生物学重复数 n = 3,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较;ns,与CHF组比较无显著性差异。(C) 各组孤束核(NTS)体内电生理尖峰放电的代表性记录轨迹。(D) 各组平均神经元放电频率的定量分析(生物学重复数 n = 3,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较;ns,与CHF组比较无显著性差异。(E) 代表性二维局部场电位频谱图和三维功率谱密度地形图,展示孤束核(NTS)内的神经振荡能量。(F) 评估外周心血管表型与中枢神经活动参数之间关系的相关性矩阵。红色和蓝色圆圈分别表示正相关和负相关。**p < 0.01;***p < 0.001。请点击此处查看该图的放大版本。
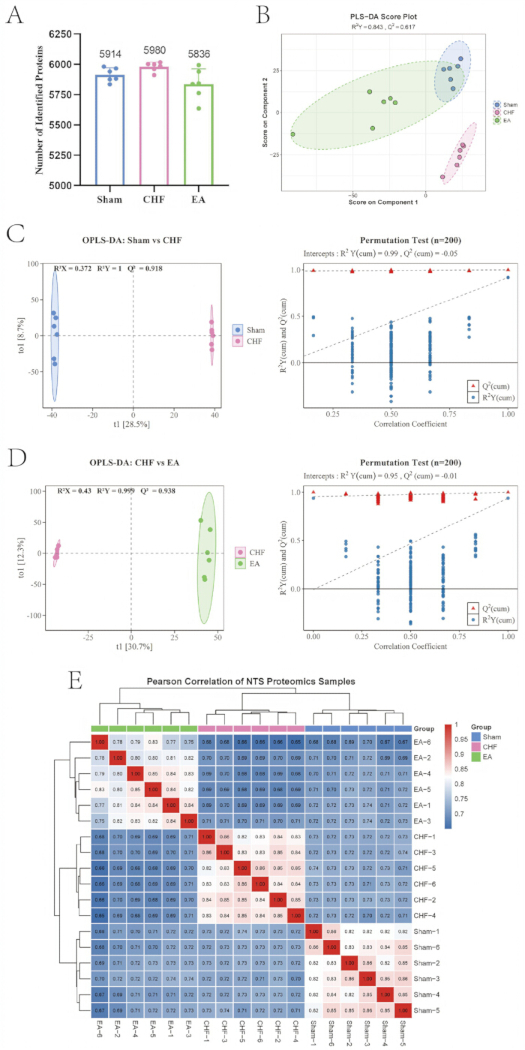
图4:孤束核蛋白质组谱的质量控制与多变量统计分析。(A) 三个实验组中鉴定出的蛋白质的定量概览(生物学重复 n = 6)。(B) 偏最小二乘判别分析得分图,展示各组之间的整体空间分布与分离情况。(C) 正交偏最小二乘判别分析得分图及相应的置换检验,用于验证假手术组与慢性心力衰竭组(CHF)比较模型的可靠性(200次置换)。(D) 正交偏最小二乘判别分析得分图及相应的置换检验,用于验证慢性心力衰竭组(CHF)与电针刺激组(EA)比较模型的可靠性(200次置换)。(E) 基于皮尔逊相关系数的层次聚类热图,用于评估所有蛋白质组样本组内重复性及组间差异。请点击此处查看该图的放大版本。
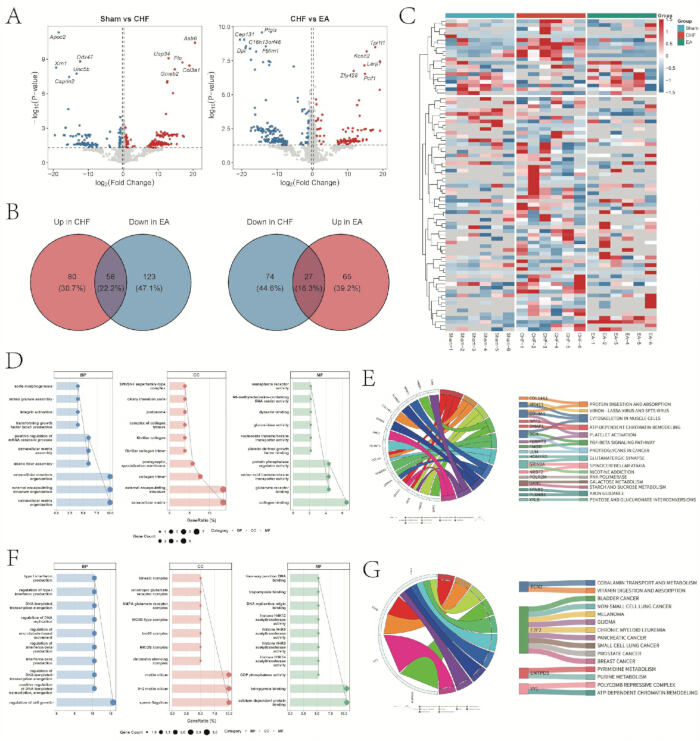
图5:电针对孤束核核心差异表达蛋白的鉴定及其功能富集分析。(A)火山图显示假手术组与慢性心力衰竭组(Sham versus CHF)以及慢性心力衰竭组与电针组(CHF versus EA)中上调和下调蛋白的分布情况。(B)维恩图用于交集分析,以确定电针干预后下调和上调的核心蛋白。(C)核心差异表达蛋白表达谱的层次聚类热图。(D)GO气泡图详细展示下调蛋白亚群富集的生物过程、细胞组分和分子功能。(E)KEGG弦图和桑基图展示下调蛋白富集的信号通路。(F)GO气泡图详细展示上调蛋白亚群富集的生物过程、细胞组分和分子功能。(G)KEGG弦图和桑基图展示上调蛋白富集的信号通路。请点击此处查看该图的高清版本。
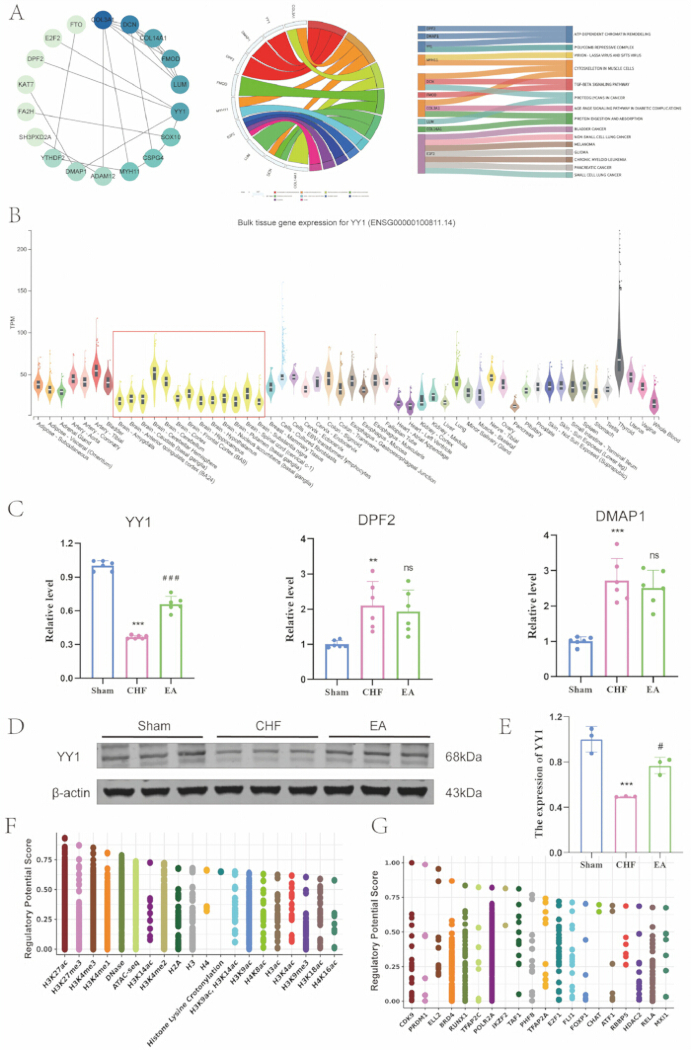
图6:网络拓扑结构、组织表达谱分析及分子验证鉴定出YY1为与电针相关的候选靶点。(A) 已鉴定出的核心蛋白的蛋白-蛋白相互作用网络、弦图和桑基图。(B) 来自GTEx数据库的YY1人类组织表达谱,红色框突出显示脑组织。(C) 各组间NTS中YY1、DPF2和DMAP1 mRNA表达的定量分析(生物学重复n = 6,均值±标准差)。**p < 0.01,***p < 0.001,与假刺激组相比;###p < 0.001,与慢性心力衰竭(CHF)组相比;ns,与CHF组相比无显著差异。(D) 各组间NTS中YY1和β-actin的代表性Western blot条带。(E) 各组间YY1蛋白表达的定量分析(生物学重复n = 3,均值±标准差)。***p < 0.001,与假刺激组相比;#p < 0.05,与CHF组相比。(F) 基于调控潜力评分的生物信息学预测调控YY1位点的表观遗传组蛋白修饰。(G) 基于调控潜力评分的生物信息学预测调控YY1位点的上游转录因子。请点击此处查看该图的放大版本。
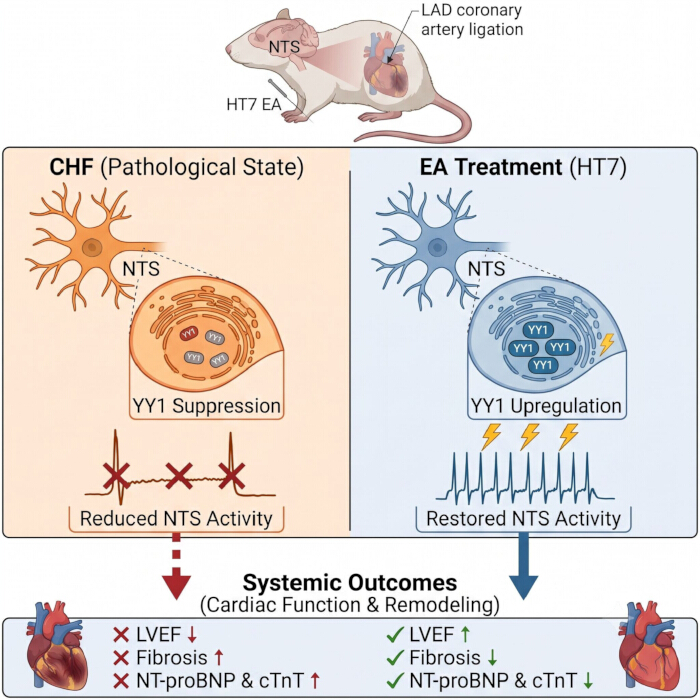
图7:HT7穴位电针刺激、YY1表达上调、孤束核神经元活动恢复与改善慢性心力衰竭之间关系的假说模型。(左)病理状态:在冠状动脉左前降支(LAD)结扎诱导的慢性心力衰竭(CHF)模型中,孤束核(NTS)内的神经元活动减弱,并伴随转录因子YY1的表达受到抑制。这种中枢神经抑制与病理性心脏重构相关,表现为左心室射血分数(LVEF)降低、心肌纤维化增加以及血清心力衰竭标志物升高。(右)电针治疗:在HT7穴位进行电针干预可上调NTS中YY1的表达,并恢复神经元放电活动。这种中枢神经调节作用产生心肌保护效应,减轻病理性重构,改善整体心脏功能。请点击此处查看该图的放大版本。
补充图1:蛋白质组学队列的心功能评估及候选枢纽基因的人体组织表达谱。(A) 各组间LVEF和LVFS的定量分析(生物学重复次数 n = 12,均值 ± 标准差)。***p < 0.001,与假手术组比较;###p < 0.001,与CHF组比较。(B-J) 来自GTEx数据库的候选枢纽基因在人体组织中的表达谱,包括COL3A1(B)、DMAP1(C)、DPF2(D)、FMOD(E)、MYH11(F)、E2F2(G)、LUM(H)、DCN(I)和COL14A1(J)。请点击此处下载该文件。
补充表 1:孤束核中全局蛋白质组的全面鉴定与定量矩阵。 本表格展示了所有实验队列中的完整定量蛋白质组学数据集。重要列包括蛋白质 ID(UniProt 登录号)、基因(基因符号)、First.Protein.Description(功能注释),以及假手术组(Sham)、慢性心力衰竭组(CHF)和电针组(EA)各生物学重复样本的归一化蛋白质强度值(每组 n = 6)。请点击此处下载该文件。
补充表 2:假手术组与慢性心力衰竭组比较中蛋白质的 OPLS-DA 投影变量重要性得分。 本表格列出了根据 OPLS-DA 模型区分假手术组和慢性心力衰竭(CHF)组的特征。关键列包括“feature”(代表特定蛋白质/基因的标识符)和“VIP_value”(投影变量重要性),后者表示每个特征对组间分离的贡献程度(VIP 阈值 > 1.0)。请点击此处下载该文件。
补充表3:CHF与EA比较中蛋白质OPLS-DA模型投影变量重要性得分。 本表列出了基于OPLS-DA模型区分CHF组与EA组的特征。与表S2类似,本表包含特征列及其对应的VIP值,突出显示对EA干预最敏感的特征。请点击此处下载该文件。
补充表 4:电针调节的 85 个核心差异表达蛋白的详细列表。 本表格提供了在慢性心力衰竭(CHF)中发生显著变化、并在电针(EA)干预后逆转的蛋白交集。重要列表包括 Protein_ID、Gene、log2FC(表示表达变化的 log2 倍数变化)、用于统计显著性的 P_value(阈值 p < 0.05)以及评估模型贡献的 VIP_value。请点击此处下载该文件。
补充表5:下调核心蛋白子集的基因本体富集分析。 该表格展示了EA下调的58种蛋白的基因本体(GO)功能注释。重要列包括本体类别(ONTOLOGY,分为生物过程 [BP]、细胞组分 [CC] 和分子功能 [MF])、功能描述(functional Description)、p.adjust(多重检验校正后的p值)以及geneID,后者对应于每个条目中富集的具体基因。请点击此处下载该文件。
补充表6:下调核心蛋白子集的京都基因与基因组百科全书通路富集分析。 本表格展示了58种下调蛋白所富集的信号级联通路。关键列包括通路名称(Term)、表示富集统计显著性的校正后p值,以及各通路中具体涉及的交集基因。请点击此处下载该文件。
补充表7:上调核心蛋白子集的基因本体富集分析。 该表格展示了由EA上调的27个蛋白的基因本体(GO)功能注释。其格式与列表头定义(本体类别 [BP、CC、MF]、描述、p.adjust、基因ID)与表S5中详述的内容相同。请点击此处下载该文件。
补充表 8:上调核心蛋白子集的京都基因与基因组百科全书通路富集分析。 本表格展示了 27 个上调蛋白的富集信号通路。表格格式及各列定义(Term、校正后 p 值、Genes)与表 S6 中详述的相同。请点击此处下载该文件。
补充表9:来自蛋白质-蛋白质相互作用网络的18个枢纽蛋白的拓扑连接性评分。 该表格总结了用于鉴定核心枢纽基因的网络拓扑参数。关键列包括基因名称以及度(Degree)、介数中心性(Betweenness Centrality)和接近度中心性(Closeness Centrality)等核心网络指标,这些指标用于量化每个节点在生物网络中的相对重要性和连接性。请点击此处下载该文件。
补充表10:18个网络枢纽蛋白的京都基因与基因组百科全书通路富集分析。 本表格列出了仅由所鉴定的18个枢纽蛋白特异性富集的信号通路。关键列包括通路名称(Term)、显著性校正后的p值,以及驱动功能富集的相关基因。请点击此处下载该文件。
补充文件1:用于数据分析和可视化的R脚本以及未裁剪的Western印迹图像。 该补充文件包含用于皮尔逊相关性分析、双火山图生成及EA逆转蛋白鉴定、基因本体(GO)富集分析、层次聚类热图生成、京都基因与基因组百科全书(KEGG)富集可视化、正交偏最小二乘判别分析(OPLS-DA)及置换检验、偏最小二乘判别分析(PLS-DA)、蛋白质组样本相关性热图生成以及维恩图分析的R脚本。请点击此处下载该文件。
讨论
本研究探讨了电针(EA)刺激大鼠HT7穴位治疗慢性心力衰竭(CHF)的中枢机制。生理学和组织学数据显示,电针可改善左心室射血分数(LVEF)并减轻心肌纤维化。与这些外周变化相平行,体内电生理记录和神经图谱分析支持电针能够恢复孤束核(NTS)内的神经元放电频率。通过基于质谱的蛋白质组学技术,本研究绘制了NTS的分子图谱,并鉴定出85种差异表达蛋白,其异常表达模式在干预后得到调节。随后的拓扑分析和组织表达谱分析将转录因子YY1分离为候选生物学靶点。分子验证表明,电针可上调YY1的表达。这些发现构建了电针作用的中枢分子网络,并提示YY1是连接中枢自主神经调节与CHF改善的潜在神经生物学靶点。综合中枢机制总结于 图 7.
NTS 是中枢心血管反射与自主神经调节的整合中心。21,22在心血管疾病背景下,充血性心力衰竭涉及持续的自主神经失衡,其特征为交感神经过度激活与迷走神经张力减退。23在该疾病的病理生理进展过程中,外周压力感受器的敏感性降低,从而减少了对孤束核的兴奋性传入输入。24因此,这种神经钝化导致尾端延髓腹外侧区的激活减弱,并随后引起头端延髓腹外侧区的去抑制,最终导致中枢交感神经传出过度增强。25与这些机制并行,电生理学和组织学数据表明,在充血性心力衰竭状态下,NTS神经元的自发放电频率和c-Fos表达均有所降低。作为一种靶向神经调控方法,电针产生的躯体感觉传入信号理论上被认为通过外周神经传递至脊髓背角,并上行至包括NTS在内的脑干结构。26结果表明,在神门穴(HT7)进行电针干预可增加该脑区的神经振荡能量,并恢复神经元放电频率。从生理学角度看,恢复的孤束核神经元活动促进了延髓抑制性中间神经元的激活,从而抑制过度活跃的交感神经前运动神经元,同时增强副交感神经传出信号。27通过将这些中枢神经机制与外周心血管表型相关联,相关性分析支持了该中枢神经激活与左心室射血分数(LVEF)呈正相关,而与心衰外周标志物N末端B型利钠肽原(NT-proBNP)呈负相关。这些发现表明,电针(EA)可能通过减轻孤束核(NTS)神经元的病理性抑制并促进中枢自主神经稳态,从而发挥其外周心脏保护作用。
为阐明这种中枢神经调节背后的分子通路,我们分析了孤束核的蛋白质组学图谱。基于质谱的蛋白质组学鉴定出85种蛋白质的表达模式受到干预调节。功能分层分析显示,电针下调的58种蛋白质亚群主要参与细胞外基质组织和转化生长因子 β-信号通路。中枢神经系统中的细胞外基质形成一种有组织的网状结构,包括神经元周围网络,这些网络在物理上包裹着突触末梢并调节局部离子稳态。28在慢性病理应激(如心力衰竭)状态下,异常的细胞外基质沉积会在脑干内形成限制性微环境。29这种结构重塑在物理上阻碍了突触结构可塑性,并使神经回路维持在交感神经过度活跃的状态。30通过调节结构蛋白(如COL3A1、COL14A1以及DCN)的表达,EA重塑了这一病理性细胞外屏障。与此同时,相关信号级联反应的富集—归类于 "肌细胞中的细胞骨架" KEGG通路,其指示的是普遍的结构变化和整合素介导的改变,而非暗示NTS内实际存在肌细胞。—这表明细胞外变化被传递至细胞内区室。31这种机械转导信号通路恢复了树突棘的动态周转,并调节了自主反射弧中的突触传递与效能。32.
除细胞外结构重组外,对干预上调的27种蛋白质进行功能注释表明,ATP依赖性染色质重塑参与其中。持续的心血管自主神经失衡由表观遗传限制维持,其中凝聚的染色质限制了调控神经抑制基因启动子区域的可及性。33ATP 依赖性染色质重塑复合物利用 ATP 水解产生的能量来滑动或驱逐核小体,从而为活跃转录打开基因组位点。34该通路的富集,以及DNA模板化转录延伸的正向调控,表明EA在表观遗传水平发挥作用,以重塑疾病相关的转录记忆。35细胞外微环境的结构松弛转化为细胞核表观遗传修饰,促进了由YY1和E2F2等关键蛋白桥接的神经保护基因网络的协调转录。36,37为系统性地分离介导电针疗法疗效的生物学靶点,本研究采用了一种逐步筛选策略。通过对85个差异表达蛋白进行拓扑网络映射和通路富集分析,筛选出10个重要的枢纽候选蛋白。随后的组织表达谱分析证实,仅YY1和DPF2以及DMAP1在人脑组织中表达。体内分子验证进一步排除了因缺乏转录响应性的DPF2和DMAP1,从而确认YY1为高度响应的候选靶点。YY1是一种锌指转录因子,对中枢神经系统发育和神经元可塑性具有调控作用。38在成熟的神经回路中,YY1通过维持线粒体稳态和减轻氧化应激,发挥神经保护调节因子的作用。39在充血性心力衰竭的病理进展过程中,持续的血流动力学应激与外周炎症会诱发脑干神经元的代谢功能障碍与结构损伤。40实验数据表明,在慢性心力衰竭(CHF)条件下,NTS 中 YY1 的表达受到抑制,而电针(EA)干预则抵消了这种病理性抑制。严格基于计算生物信息学预测而非实验验证,YY1 被假设通过与活性组蛋白修饰(如 H3K27ac 和 H3K4me3)相互作用,来协调下游神经保护基因网络的转录。 41YY1活性的恢复可能有助于修复神经元代谢通路并促进突触连接的结构完整性。因此,经调节的NTS神经元提高了其处理外周压力反射输入的能力,并增强了对下行交感前运动通路的抑制性控制,从而改善了与CHF相关的心血管功能恶化。42.
尽管取得了这些发现,但若干方法学上的局限性值得严格考量。首先,当前的实验设计依赖于相关性组学与表达谱分析,缺乏直接的功能性证据。未来的研究必须整合靶向遗传操作,例如在 NTS 内进行病毒载体介导的敲低或过表达,并结合经验性的 ChIP-seq 或 CUT&RUN 实验。&为明确确立YY1的因果作用并验证其下游表观遗传网络,需进行标签实验。其次,在蛋白质组学阶段排除假电针队列,限制了我们明确排除非特异性体感刺激诱导的分子特征的能力。然而,在当前设计中,相对于假手术基线比较心力衰竭组和电针组,被认为足以分离出电针特异性的分子变化。这是因为所有非干预队列,特别是假手术组和心力衰竭组,均接受了严格的每日异氟烷麻醉暴露基线标准化,这有效地最大程度减少了最显著的非特异性神经应激混杂因素。此外,我们的初步功能数据显示,相对于心力衰竭组,假电针并未引发显著的心血管或神经激活,这表明无电流的浅表体感刺激未达到驱动实质性中枢分子重编程所需的阈值。第三,本研究缺乏标准的非穴位对照组,这阻碍了对HT7穴位特异性的明确确认。此外,所提出的HT7至孤束核传入神经通路,在缺乏直接神经追踪或神经阻滞验证的情况下,仍属推测。最后,体内电生理学在单一时间点评估了孤束核的整体活动,既未区分特定的兴奋性与抑制性神经元亚群,也未评估长期的神经可塑性。后续研究必须解决这些关键空白,以完善中枢神经生物学机制。
最终,通过整合这些发现并承认其相关性本质,本研究提供了一个有价值的分子框架,表明电针通过恢复孤束核神经元功能来减轻病理性心脏重构。这些数据突显了YY1作为中枢心血管神经调控中一个高度响应的候选靶点,为针灸疗法在心力衰竭管理中的临床应用提供了新的神经生物学见解。
披露
所有作者均声明不存在利益冲突。作者还声明,在手稿撰写过程的任何环节均未使用人工智能工具。
致谢
我们衷心感谢所有为本研究做出贡献的研究人员,并对实验动物的牺牲表示深切敬意。本研究得到中国国家重点研发计划(项目编号:2022YFC3500500 和 2022YFC3500502)以及徐能贵校级人才支持计划(项目编号:DT2400000222)的资助。资助方在研究设计、数据收集与分析、发表决定以及论文撰写过程中均未参与。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 成年雄性Sprague-Dawley大鼠 | 辽宁长生生物技术有限公司 | 编号 SCXK (LIAO) 2025-0001 | RGD_70508 |
| 针灸针 | 苏州天协针灸器械有限公司 | — | — |
| 含DAPI的抗荧光淬灭封片剂 | 艾博欣生物技术有限公司 | abs9235-25ml | — |
| 抗YY1一抗 | Proteintech集团有限公司 | 66281-1-Ig | AB_2881664 |
| 抗Beta Actin一抗 | 66009-1-Ig | AB_2687938 | |
| 牛血清白蛋白(BSA) | Sigma奥德利贸易有限公司 | V900933 | — |
| BCA蛋白检测试剂盒 | 上海碧云天生物技术有限公司 | P0012S | — |
| c-Fos (9F6) 兔单克隆抗体 | 赛新通生物试剂有限公司 | 2250S | AB_2247211 |
| Cytoscape软件 | Cytoscape联盟 | 版本 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR预混液 | 诺唯赞生物科技有限公司 | Q711-02 | — |
| 电针仪 | 南京济生医疗科技有限公司 | HANS-200A | — |
| 八通道(2 × 4)微电极阵列 | 科瓦苏州医疗科技有限公司 | - | — |
| ELISA试剂盒(NT-proBNP) | 武汉酶免生物技术有限公司 | MM-0329R1 | — |
| ELISA试剂盒(cTnT) | MM-0795R2 | — | |
| 增强型化学发光试剂盒 | Proteintech集团有限公司 | PK10001 | — |
| 山羊抗兔IgG | 艾美科技有限公司 | 111-545-003 | AB_2338046 |
| HRP标记的山羊抗小鼠IgG二抗 | 北京酷来博生物科技有限公司 | CW0102 | N/A |
| HiScript III RT超级混合液 | 诺唯赞生物科技有限公司 | R323-01 | — |
| ImageJ软件 | 美国国立卫生研究院 | 版本 4.0 | SCR_003070 |
| 成像系统 | Bio-Rad公司 | ChemiDoc MP | |
| 多通道小动物麻醉机 | 瑞沃德生命科技有限公司 | R510-22-10 | — |
| 显微镜 | 奥林巴斯光学有限公司 | DP72 | — |
| NeuroExplorer软件 | 北京普莱克森技术有限公司 | 版本 5.0 | SCR_001818 |
| Offline Sorter软件 | 北京普莱克森技术有限公司 | 版本 4.7.2 | SCR_000012 |
| Orbitrap Astral | 赛默飞世尔科技公司 | — | — |
| Powerlab标准肢体II导联 系统 | AD Instruments国际商贸有限公司 | ML118 | — |
| PepMap Neo Trap柱 | 赛默飞世尔科技公司 | — | — |
| 磷酸酶抑制剂 | 上海碧云天生物技术有限公司 | P1081 | — |
| R软件 | — | 版本 4.5.2 | SCR_001905 |
| RIPA裂解缓冲液 | 翊圣生物科技有限公司 | 20115ES60 | — |
| RNAiso Plus | 宝生物工程(大连)有限公司 | 9108 | — |
| 小动物数字超声系统 | 飞依诺科技有限公司 | VINNO6 Lab | — |
| 统计分析软件 | GraphPad软件公司 | 版本 8.0 | SCR_002798 |
| The OmniPlex多通道采集 系统 | 北京普莱克森技术有限公司 | 版本 1.20.0 | — |
| 吐温X-100 | 北京索莱宝科技有限公司 | 22298142 | — |
| Vanquish Neo UHPLC系统 | 赛默飞世尔科技公司 | — | — |
| µPAC Neo高通量色谱柱 | 赛默飞世尔科技公司 | — | — |
参考文献
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.