整合的批量和单细胞转录组分析确定了六个与血红素代谢相关的瘢痕疙瘩诊断生物标志物。实验验证支持猫白血病病毒C亚群受体1(FLVCR1)在瘢痕疙瘩成纤维细胞中的异常调控,而分子对接分析鉴定出(+)-没食子儿茶素是一种潜在的与FLVCR1相互作用的化合物,值得进一步开展功能研究。
本文内容
摘要
摘要
瘢痕疙瘩是一种具有高复发率且发病机制尚不明确的纤维增生性病变,目前缺乏有效的治疗靶点。近期研究表明,代谢重编程,特别是血红素代谢的改变,可能驱动纤维化过程。本研究探讨了血红素代谢,尤其是猫白血病病毒C亚群受体1(FLVCR1)在瘢痕疙瘩发病机制中的作用,并评估其诊断与治疗潜力。我们分析了批量RNA测序(bulk RNA-seq)数据集和单细胞RNA测序(scRNA-seq)数据。通过差异表达分析、最小绝对收缩与选择算子(LASSO)模型以及随机森林(RF)模型,筛选出与血红素代谢相关的诊断生物标志物。同时开展了免疫浸润分析、单细胞图谱绘制、微小RNA(miRNA)网络构建以及中药化合物的分子对接研究。共鉴定出六个与血红素代谢相关的生物标志物,构建了具有高准确度的诊断列线图。FLVCR1在内皮细胞和黑色素细胞中富集,且与滤泡辅助性T细胞呈负相关,提示存在免疫-代谢交互作用。miRNA调控网络分析揭示了五个可共同靶向全部六个生物标志物的miRNA。分子对接结果显示,(+)-表没食子儿茶素是FLVCR1的高亲和力配体。这些发现提示,FLVCR1相关的血红素代谢与瘢痕疙瘩发病过程中的免疫改变密切相关。该生物标志物组合显示出初步的诊断应用潜力,而(+)-表没食子儿茶素被鉴定为潜在的FLVCR1相互作用化合物,有待进一步验证。本研究将瘢痕疙瘩重新置于代谢-纤维化谱系中,并提出代谢-免疫干预作为新的治疗策略。
引言
瘢痕疙瘩是一种纤维增生性病变,其特征是细胞外基质过度沉积,并超出原始皮肤损伤的边界,在全球人群中影响约4%至16%的个体,尤其在非洲、亚洲和西班牙裔人群中患病率显著更高1,2。尽管组织学上为良性,瘢痕疙瘩仍因持续性瘙痒、疼痛、功能性挛缩及外观畸形而带来显著的身体和心理社会负担。目前的治疗手段,包括病灶内注射皮质类固醇、手术切除、放射治疗和激光治疗,疗效仍不理想,单一疗法后的复发率超过50%3,4,5。这一治疗困境凸显了我们对瘢痕疙瘩发病机制理解的根本性不足,尤其是对启动并维持纤维化级联反应的上游驱动因素,尚缺乏深入认识,超出了经典的促纤维化信号通路范畴。
目前的研究主要集中在 TGF-β/Smad 信号通路和成纤维细胞的异常活化等经典通路6,7,8。尽管已有研究记录了瘢痕疙瘩组织中存在免疫细胞浸润——特别是 M2 极化巨噬细胞、调节性 T 细胞以及功能失调的树突状细胞9,10,但这些研究大多将免疫改变视为成纤维细胞功能障碍的下游结果,而非上游调控因素。关键的是,在瘢痕疙瘩的发病机制中,可能主动塑造这种免疫-纤维化交互作用的代谢程序至今尚未被探索11,12,13。这一知识空白尤为显著,因为在其他纤维化疾病中,新兴的研究范式已表明代谢重编程是组织重塑的主要调控因子。
近年来,代谢重编程已被认为是多种器官系统中纤维化发生的核心环节。在肺纤维化和肝纤维化中,血红素稳态失调——通过转运蛋白、清除蛋白或生物合成酶表达的改变——引发氧化应激、铁死亡和无菌性炎症,直接促进胶原沉积14。血红素积聚可激活NLRP3炎症小体,驱动成纤维细胞活化;而猫白血病病毒亚群C受体1(FLVCR1)的缺乏则因未能清除血红素毒性而加剧组织纤维化。这些发现表明,血红素代谢不仅是一种基础的维持性过程,更是一个能够启动纤维化级联反应的动态信号枢纽——这一范式在皮肤纤维增生性疾病中的作用仍有待验证。
血红素介导的免疫调节作用的合理性进一步得到了癌症和慢性炎症模型中机制性证据的支持。血红素作为一种信号分子,可直接调控免疫细胞的命运:通过TLR4/NF-κB信号通路促进M1型向M2型巨噬细胞极化15,通过Bach2介导的转录抑制影响T细胞分化16,并通过FLVCR1依赖的血红素外排关键调控树突状细胞的成熟17,18。值得注意的是,FLVCR1是一种位于细胞膜上的血红素外排蛋白,对细胞内血红素稳态至关重要,近期研究发现其还参与免疫细胞发育及内皮功能障碍19。这些汇聚的证据表明,FLVCR1可能是连接血红素代谢紊乱与病理性免疫重塑的一个潜在分子枢纽,鉴于瘢痕疙瘩具有富含免疫细胞的微环境特征,这一假说对其发病机制具有深远意义。
尽管在其他疾病背景下对血红素-免疫串扰的理解已取得显著进展,但异常的血红素代谢是否作为上游驱动因素启动或放大瘢痕疙瘩中的病理性免疫微环境,目前仍完全未被探索。这一关键的知识空白亟需深入研究,原因有多个相互关联的方面:瘢痕疙瘩与代谢驱动的纤维化疾病(如肺纤维化和肝纤维化)具有共同的标志性病理特征,包括持续性炎症和氧化应激,提示其潜在调控机制可能存在共性。以FLVCR1为核心的血红素外排机制已在非皮肤组织中被机制性验证,可直接调控巨噬细胞极化和树突状细胞成熟等关键免疫功能,为将其推演至瘢痕疙瘩免疫病理过程提供了坚实的理论基础20。更为重要的是,靶向这一代谢-免疫轴提供了一种范式转变的机遇,有望突破当前仅抑制下游纤维化效应的对症治疗模式,实现对疾病进展代谢起源的上游干预21。
基于这一理论依据,我们提出假设:以FLVCR1为核心的血红素代谢失调会主动重塑免疫微环境,从而驱动瘢痕疙瘩的发生发展。为系统验证该假设,我们采用多层次策略整合了批量和单细胞转录组分析:首先,利用机器学习算法并结合独立队列验证,在瘢痕疙瘩组织中识别并验证与血红素代谢相关的诊断生物标志物;随后,通过单细胞分辨率图谱解析这些生物标志物在不同细胞区室(包括内皮细胞、成纤维细胞、黑素细胞及免疫细胞亚群)中的空间表达模式;接着,明确这些标志物与特定免疫细胞群体之间的定量相关性,以建立功能性的免疫-代谢关联;最后,构建以FLVCR1为核心的微小RNA(miRNA)调控网络,并对中药化合物进行分子对接分析,以识别具有药物干预潜力的关键靶点。本项综合研究不仅揭示了瘢痕疙瘩发病机制中一条此前未被认知的血红素代谢-免疫轴,还提供了一个具有转化应用价值的生物标志物组合,对该难治性纤维增生性疾病的诊断与治疗均具有双重潜力。
方案
本研究无需伦理审批和知情同意,因为所有数据均来自公开可用的数据库(包括基因表达综合数据库,Gene Expression Omnibus,GEO),且未直接涉及任何可识别的人类参与者或动物实验对象。
数据采集与预处理
与血红素代谢相关的基因来自分子特征数据库(MSigDB;参见 材料表nd 补充表 S1),包括来自 REACTOME_Heme_Biosynthesis、REACTOME_Heme_Degradation、Wikipathway_Heme_Biosynthesis、REACTOME_Scavenging_Heme_from_Plasma 和 HALLMARK_Heme_Metabolism 的基因集。本研究中分析的所有数据集均来自公开可用的资源。两个批量基因表达微阵列数据集从基因表达综合数据库(Gene Expression Omnibus, GEO)获取:GSE44270,包含18个瘢痕疙瘩样本和14个正常皮肤样本;GSE7890,包含10个瘢痕疙瘩样本和9个正常皮肤样本。GSE44270 和 GSE7890 分别基于 GPL6244 和 GPL570 平台生成。系列矩阵文件及相应的样本信息被下载并导入 R 环境。由于系列矩阵文件中的表达值已由原始数据提交者完成预处理和标准化,因此未进行额外的 log2 转换或样本间标准化。由于两个数据集基于不同的微阵列平台生成,故分别独立处理,未进行合并。数据集的预处理步骤如下所述(见 材料表)。基因探针被映射到其对应的基因符号,缺乏基因注释或匹配多个基因的探针被排除。对于具有多个探针集的基因,表达值根据检测到的最高表达水平确定。此外,从GSE163973下载了包含三个瘢痕疙瘩样本的单细胞RNA测序数据(scRNA-seq),并按照原始研究中定义的质量控制标准进行处理。
瘢痕疙瘩中血红素代谢相关诊断标志物的筛选与验证
为了鉴定瘢痕疙瘩中差异表达的血红素代谢相关基因,使用 R 函数 wilcox.test 对 GSE44270 数据集应用 Wilcoxon 秩和检验,显著性阈值设为 P < 0.05。为了鉴定瘢痕疙瘩的潜在诊断标志物,采用了两种机器学习模型:随机森林(RF)和最小绝对收缩与选择算子(LASSO)逻辑回归。随机森林分析设置随机种子为 1 以确保可重复性(见材料表)。模型构建时使用了 500 棵树(ntree = 500),基因重要性基于节点纯度的平均降低值(IncNodePurity)进行评估。重要性值大于 0.3 的基因被选为随机森林筛选的候选生物标志物。LASSO 逻辑回归分析中设 α = 1,并在模型训练过程中评估了 50 个 lambda 值(见材料表)。最优惩罚参数通过 cv.glmnet 函数进行 5 折交叉验证确定,响应类型为二项分布。保留回归系数非零的基因作为 LASSO 筛选的候选基因。最终,将随机森林与 LASSO 回归分析共同鉴定出的基因交集视为最终的诊断基因特征。该最终诊断基因特征通过基于列线图(nomogram)的模型进行评估。所有特征筛选和模型参数估计均仅在发现队列(GSE44270)中完成,所建立的六基因特征进一步在独立验证队列(GSE7890)中进行评估。通过计算受试者工作特征曲线下面积(AUC)来评价列线图的诊断性能。为检验模型稳定性,分析中包含 5 折交叉验证和 1,000 次自助重采样(bootstrap resampling),并由此推导出经乐观校正的 AUC 值。随后采用决策曲线分析(DCA)评估列线图的潜在净收益;然而,由于样本量较小,对该结果的解释需谨慎。
免疫细胞浸润与相关性分析
通过单样本基因集富集分析(ssGSEA)评估免疫细胞富集情况(参见材料表)。免疫细胞特征矩阵来自Charoentong等人先前发表的研究22,包含782个标志基因,代表28种适应性和固有免疫细胞群体。分析使用高斯核对连续的、标准化的微阵列表达值进行。在将标志基因与表达矩阵匹配后,要求基因集最小大小为10,所得ssGSEA评分经过标准化处理。所有其他参数均保持默认设置。随后计算皮尔逊相关系数,以评估免疫细胞富集评分与诊断基因表达之间的关系。将所得相关系数矩阵以相关性图形式可视化,并将部分选定的相关性以棒棒糖图形式进一步展示(参见材料表)。
单细胞RNA测序数据处理与分析
单细胞RNA测序数据来自GSE163973,本分析仅纳入其中三个瘢痕疙瘩样本KF1、KF2和KF3。表达数据的导入与处理方法如下所述(见材料表)。排除总唯一分子标识符(UMI)计数少于200或多于6,000的细胞,并去除预测的双细胞(doublets)。对每个细胞的基因表达计数进行标准化处理,即除以该细胞的总表达量,再乘以10,000的缩放因子,随后进行对数转换。在数据缩放过程中,将批次相关变异作为协变量进行回归去除,下游分析使用校正后的缩放残差。根据基因的平均表达水平和离散度,筛选出前2,000个高变基因,并基于这些基因进行主成分分析。使用前15个主成分,基于欧氏距离构建k近邻图,随后将其转换为共享最近邻图。采用Louvain算法在分辨率为0.8的条件下对细胞进行聚类,并使用相同的15个主成分进行均匀流形近似与投影(UMAP)降维。细胞类型的注释依据原始研究中报告的细胞类型定义进行,所得注释结果记录于元数据字段中。在均匀流形近似与投影坐标上可视化细胞类型注释与聚类分配结果,并展示各注释细胞群体中诊断性基因的表达情况。
miRNA–mRNA 调控网络的构建
miRNA–mRNA 调控网络的构建方法如下所述(参见材料表)。选择Homo sapiens作为研究物种,基因标识符采用官方基因符号。将候选基因提交至基因–miRNA 相互作用模块,并选择 TarBase v9.0 作为相互作用数据库。TarBase 收录了经过实验验证的 miRNA–基因调控相互作用。网络构建仅保留涉及输入候选基因的、有实验支持的 miRNA–mRNA 相互作用,而排除了缺乏实验证据的预测相互作用。未设置额外的置信度评分阈值。
基于结构的虚拟筛选与分子对接分析
采用基于结构的虚拟筛选(SBVS)工作流程,对化合物库中的候选配体针对人源FLVCR1(猫白血病病毒C亚群受体相关蛋白1;参见材料表)进行优先排序。人源FLVCR1的三维结构从蛋白质数据库中获取(PDB ID: 8UBZ)。该结构代表了结合胆碱的人源FLVCR1,通过单颗粒冷冻电子显微镜技术解析,整体分辨率为3.02 Å(EMDB编号:EMD-42110)。选择该实验测定的结构是因为其包含FLVCR1的底物结合构象,从而提供了定义生理相关配体结合腔的结构信息。在受体准备过程中,保留共解析的胆碱(CHT)和胆固醇半琥珀酸酯(Y01)分子,以维持底物进入和配体结合区域周围的结构环境。对接搜索空间定义在FLVCR1底物/配体结合腔周围,涵盖共解析的胆碱结合区域。网格盒中心坐标设定为x = 160.587 Å,y = 160.613 Å,z = 160.484 Å。对接盒的尺寸设置为[X × Y × Z Å],以确保充分覆盖底物结合腔及其周围的残基。随后将候选化合物对接至该预定义的结合区域。对接构象根据其预测结合亲和力进行排序,对接分数越负,表示预测的配体–FLVCR1相互作用越有利。选择排名靠前的化合物进行后续的结合模式及蛋白–配体相互作用分析。
分子动力学模拟与MM/GBSA结合自由能计算
采用分子动力学(MD)模拟进一步分析预测的蛋白质-配体复合物(参见材料表)。配体拓扑结构通过分配通用 Amber 力场(GAFF)参数并引入受限静电势(RESP)电荷进行构建。复合物体系采用 Amber99SB-ILDN 力场描述,并置于含三个水分子的可转移分子间势(TIP3P)水模型中,同时使用三个 Na⁺ 离子进行体系中和。在完成最陡下降法能量最小化后,系统在粒子数、体积和温度恒定系综(NVT)下平衡 100 ps,随后在粒子数、压力和温度恒定系综(NPT)下再平衡 100 ps,每个阶段均进行 100,000 步。之后,在 300 K 和 1 bar 条件下,以 2 fs 的时间步长进行 100 ns 的生产模拟。对所得轨迹分析了均方根偏差(RMSD)、均方根涨落(RMSF)、回转半径(Rg)、溶剂可及表面积(SASA)、氢键持续性以及分子力学/广义玻恩表面积(MM/GBSA)结合自由能。
细胞培养
NHDF 正常人真皮成纤维细胞系和 PKF 原代瘢痕疙瘩成纤维细胞系均在成纤维细胞生长培养基中培养,培养基中添加 2% 胎牛血清、重组人碱性成纤维细胞生长因子(1 ng/mL)和胰岛素(5 µg/mL)。两种细胞系均在 37 °C、5% CO₂ 的湿化培养箱中维持培养,并在细胞融合度达到 80–90% 时进行传代。
Western印迹分析
使用含有放射免疫沉淀法裂解缓冲液、苯甲基磺酰氟、蛋白酶抑制剂混合物和磷酸酶抑制剂的裂解缓冲液从NHDF和PKF细胞中提取总蛋白。采用二辛可宁酸法测定蛋白浓度,随后将等量蛋白通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳分离,并转移至聚偏二氟乙烯膜。用含5%脱脂奶粉的吐温/三羟甲基氨基甲烷缓冲盐水溶液在室温下封闭膜90分钟,然后在4 °C下与一抗孵育过夜,一抗包括针对FLVCR1(兔多克隆抗体,1:1,000)和GAPDH(鼠单克隆抗体,1:20,000)的抗体。次日,在室温下与二抗孵育90分钟。使用ImageJ软件测量条带强度,并以GAPDH作为内参对照对相对蛋白水平进行归一化处理。每项蛋白质印迹实验均至少采用三个独立的生物学重复。
实时荧光定量反转录 PCR(qRT-PCR)分析
使用参考试剂盒从 NHDF 和 PKF 细胞中提取总 RNA。随后使用参考的含 dsDNase 的 cDNA 合成试剂进行 cDNA 合成,用于 qPCR。qRT-PCR 在实时 PCR 系统上进行,FLVCR1 的表达水平使用参考的 SYBR Green Fast Mix 进行检测。GAPDH mRNA 作为内参用于标准化。每个 qRT-PCR 反应均设置技术重复三次,相对 mRNA 水平通过 2−ΔΔCt 法计算。每个实验至少独立重复三次,引物序列见补充表 S2。
统计学分析
组间差异采用Wilcoxon秩和检验进行分析,数据以均值 ± 标准差(SD)表示。连续变量之间的关联性通过Pearson相关系数进行检验。当P < 0.05时,认为差异具有统计学显著性。显著性水平表示为:ns,P > 0.05;*,P < 0.05;**,P < 0.01;***,P < 0.001;****,P < 0.0001。
结果
使用机器学习算法筛选瘢痕疙瘩候选诊断生物标志物
本研究共纳入 283 个与血红素代谢相关的基因。对 GSE44270 数据集进行差异表达分析,比较瘢痕疙瘩与正常皮肤组织,共鉴定出 25 个显著差异表达的基因(图1A 和 补充表 S3)为了进一步筛选与疾病相关的生物标志物,LASSO回归鉴定了9个候选基因(图1B,C 和 补充表 S3),而随机森林(RF)算法筛选出11个具有高预测重要性的基因(图1D 和 补充表 S3)。LASSO 与 RF 结果之间的重叠部分通过维恩图进行可视化,得到六个核心生物标志物,即 FLVCR1, TMCC2, EIF2AK1, XK, HPX,以及 KEL (图1E 和 补充表 S3)。在GSE44270队列中进行的受试者工作特征(ROC)分析显示,这六种生物标志物均具有良好的诊断效能,其AUC值为0.8016 FLVCR1,0.7063 对于 TMCC2,0.7817 对于 EIF2AK1,0.7460 对于 XK,0.7500 对于 HPX,以及 0.7857 用于 KEL (图1F). 基于这六种生物标志物,随后使用 R 中的 rms 包构建了瘢痕疙瘩的诊断列线图图1G).
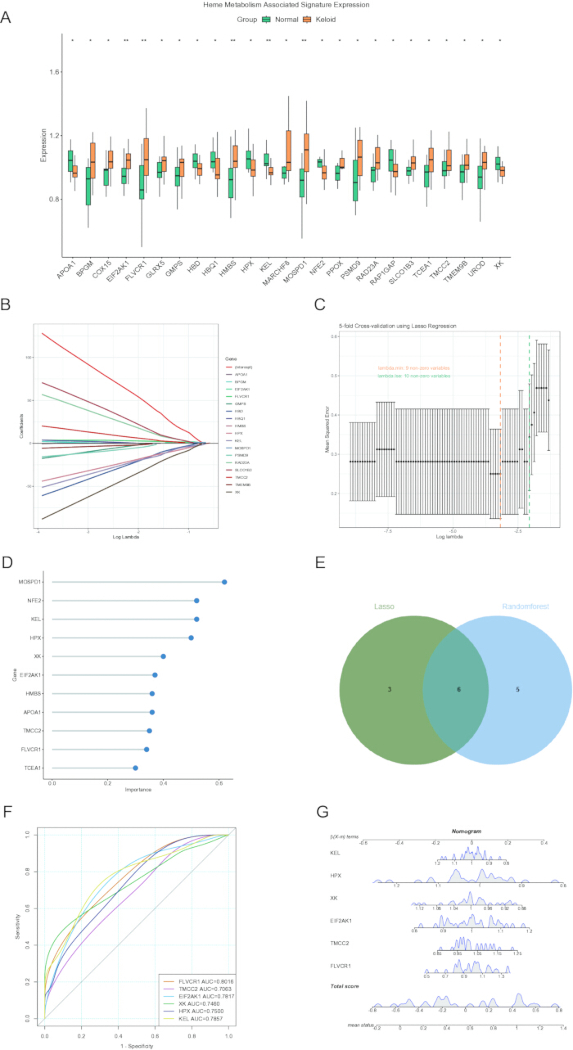
图1: 利用机器学习算法鉴定与瘢痕疙瘩相关的血红素代谢候选基因。(A)箱线图显示瘢痕疙瘩组织与正常组织之间血红素代谢相关基因的差异表达。(B,C)采用LASSO逻辑回归分析筛选候选诊断标志物。(D)随机森林(RF)算法筛选出的候选生物标志物。(E)两种机器学习算法鉴定出的重叠基因的维恩图。(F)受试者工作特征(ROC)曲线分析评估候选生物标志物的诊断效能。(G)基于六基因特征构建的瘢痕疙瘩预测列线图。缩写:LASSO,最小绝对收缩与选择算子;RF,随机森林;ROC,受试者工作特征。统计学显著性:ns,P > 0.05;*,P < 0.05;**,P < 0.01;***,P < 0.001;****,P < 0.0001。请点击此处查看该图的放大版本。
诊断列线图的预测性能在训练队列(GSE44270)和验证队列(GSE7890)中均进行了评估。该模型表现出优异的诊断准确性,在两个队列中分别达到0.984(95% CI:0.950–1.000)和0.922(95% CI:0.806–1.000)的AUC值(图2A,D)。为进一步评估六基因诊断特征的稳健性及潜在过拟合问题,在发现队列(GSE44270)中进行了额外的内部验证分析。五折交叉验证显示,各子集间的区分能力保持一致,平均AUC为0.925,表明尽管训练样本有所变化,该模型仍保持稳定的分类性能。此外,通过1000次重采样迭代的自助法验证得到平均AUC为0.930(95% CI:0.794–1.000)。在调整由样本量有限可能导致的乐观偏倚后,校正偏倚后的AUC仍为0.930,提示六基因特征在内部验证后诊断性能相对稳定。此外,决策曲线分析(DCA)表明,在一系列阈值概率范围内,该列线图相较于其他诊断策略具有更高的潜在净获益,但鉴于样本量有限,这些结果应谨慎解读(图2B,E)。另外,在训练队列和验证队列中,瘢痕疙瘩样本的风险评分均显著高于健康对照组(图2C,F),进一步证明了该诊断模型的稳定性和可靠性。
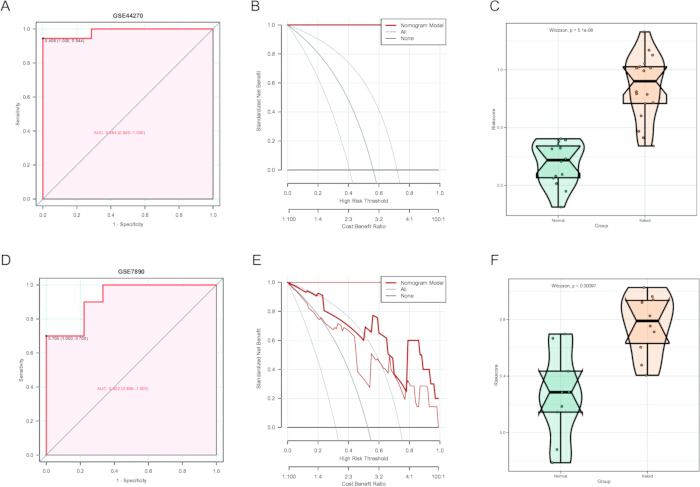
图 2:瘢痕疙瘩预测列线图的验证。(A)在 GSE44270 数据集中评估列线图预测效能的 ROC 曲线。(B)在 GSE44270 中评估列线图临床效用的决策曲线分析(DCA)。(C)在 GSE44270 中比较瘢痕疙瘩样本与健康样本的风险评分分布。(D)在独立数据集 GSE7890 中评估列线图预测效能的 ROC 曲线。(E)在 GSE7890 中评估列线图临床效用的决策曲线分析(DCA)。(F)在 GSE7890 中比较瘢痕疙瘩样本与健康样本的风险评分分布。缩写:ROC = 受试者工作特征曲线;DCA = 决策曲线分析。请点击此处查看该图的高清版本。
诊断性生物标志物与瘢痕疙瘩的免疫特征相关
为了探讨六种诊断生物标志物与免疫微环境之间的关系,进行了相关性分析,以评估生物标志物表达水平与免疫细胞浸润之间的关联。结果显示,这六种生物标志物均与多种浸润性免疫细胞群体存在显著相关性(图3A)。具体而言, FLVCR1 表达水平与滤泡辅助性T细胞(T follicular helper cells,图3B). TMCC2 与自然杀伤细胞和活化的树突状细胞呈正相关,而与未成熟树突状细胞和未成熟B细胞呈负相关(图3C–F。此外, EIF2AK1 表达水平与CD56呈负相关暗淡 自然杀伤细胞(图3G),而XK与嗜酸性粒细胞呈负相关(图3H).
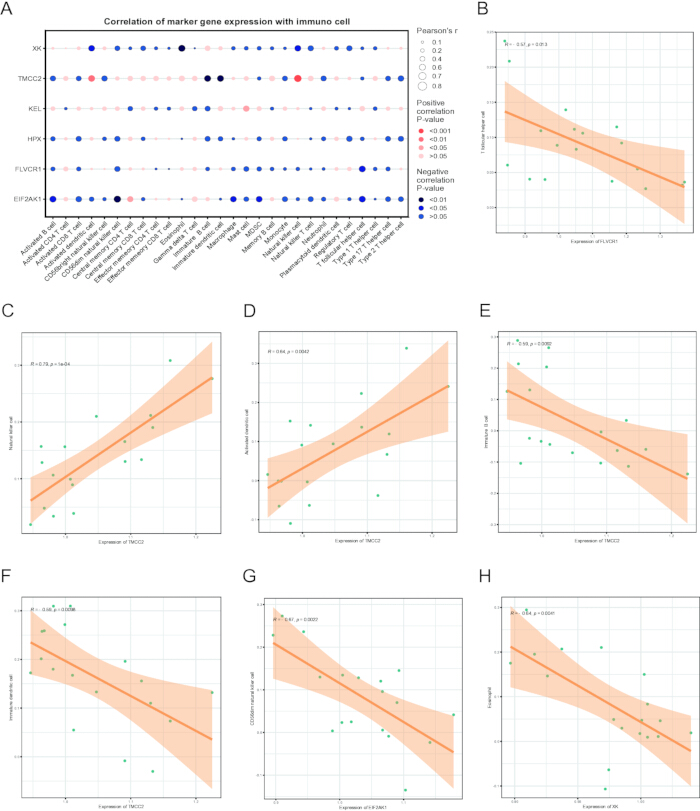
图3血红素代谢相关候选基因与免疫细胞浸润的相关性 (A) 热图显示候选基因与免疫细胞群体之间的相关性。红色表示正相关,蓝色表示负相关。 (B)相关性 FLVCR1 表达和滤泡辅助性T细胞。C-F) 相关性分析 TMCC2 表达以及自然杀伤细胞、活化的树突状细胞、未成熟树突状细胞和未成熟B细胞,分别。G) 相关性分析 EIF2AK1 表达和 CD56dim 自然杀伤细胞。H). 相关性分析 XK 表达和嗜酸性粒细胞。缩写:FLVCR1 = 猫白血病病毒C亚群受体1;TMCC2 = 跨膜和卷曲螺旋结构域2;EIF2AK1 = 真核翻译起始因子2α激酶1;CD56暗淡 分化簇56弱表达 请点击此处以查看此图的放大版本。
单细胞转录组数据分析
为了表征鉴定出的诊断生物标志物在瘢痕疙瘩微环境中的表达模式,我们分析了单细胞RNA测序数据集GSE163973。经过质量控制和数据整合后,共保留了21,488个高质量细胞用于后续分析。排除总唯一分子标识符(UMI)计数少于200或超过6,000的细胞,并使用DoubletDetection软件包识别并去除潜在的双细胞。筛选出表达变异性最大的2,000个基因,随后通过均匀流形近似与投影(UMAP)进行降维和可视化。共鉴定出10个主要细胞群体,包括内皮细胞、成纤维细胞、肌纤维细胞、角质形成细胞、免疫细胞、淋巴管内皮细胞、腺细胞、神经细胞、黑色素细胞以及一个未分类的细胞群体(图4A,B)。表达谱分析揭示了诊断生物标志物在不同细胞类型中具有特异性的分布模式。FLVCR1主要在内皮细胞和黑色素细胞中表达,而EIF2AK1在神经细胞、腺细胞和成纤维细胞中表现出相对较高的表达。HPX主要富集于黑色素细胞中,而KEL则在腺细胞中呈现主要表达(图4C,D)。
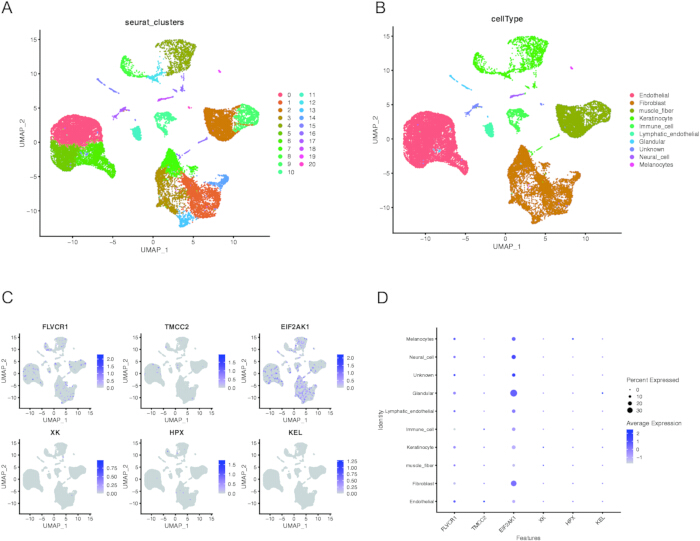
图4:瘢痕疙瘩单细胞转录组中血红素代谢相关诊断生物标志物的分布情况。(A)UMAP图显示来自瘢痕疙瘩样本的21,488个细胞组成的21个细胞簇。(B)基于原始研究中报道的注释结果进行的细胞类型注释。(C)特征图显示血红素代谢相关诊断生物标志物在不同细胞类型中的表达情况。(D)气泡图显示不同细胞类型中血红素代谢相关诊断生物标志物的平均表达水平及表达细胞所占百分比。缩写:UMAP = 均匀流形近似与投影。请点击此处查看该图的高清版本。
候选诊断生物标志物的鉴定及相互作用网络分析
为了探究候选诊断生物标志物背后的调控机制,构建了一个miRNA–mRNA调控网络。为了提高预测相互作用的可靠性,鉴定了靶向这些候选生物标志物的重叠miRNA。共获得282个与六个诊断生物标志物相互作用的miRNA,所得到的调控网络如图5所示。值得注意的是,hsa-miR-34a-5p、hsa-let-7a-5p、hsa-let-7d-5p、hsa-let-7e-5p和hsa-miR-26b-5p被预测可同时调控全部六个候选生物标志物。
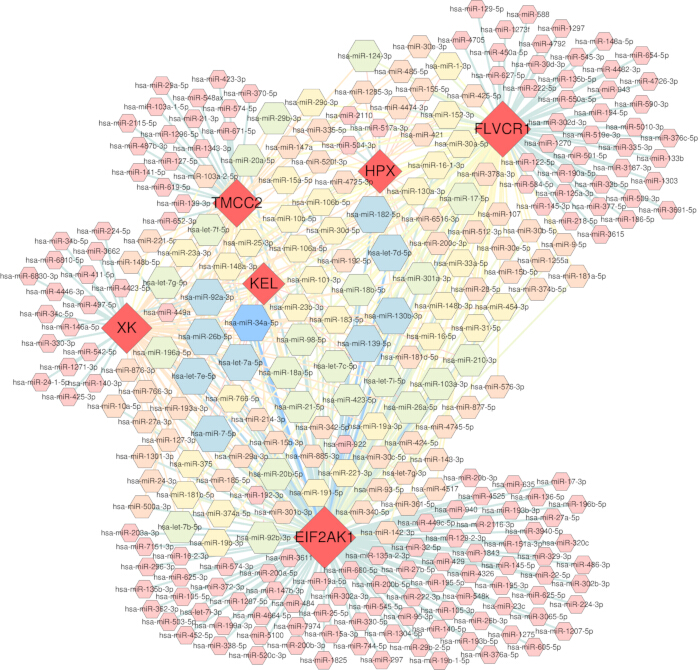
图5:血红素代谢相关诊断生物标志物的miRNA调控网络。该网络展示了六个诊断生物标志物基因(FLVCR1、HPX、TMCC2、KEL、XK 和 EIF2AK1)及其相关miRNA之间的调控关系。基因节点代表诊断生物标志物,周围节点代表miRNA。边线表示经实验验证的miRNA–mRNA相互作用。缩写:FLVCR1 = 猫白血病病毒C亚群受体1;HPX = 血红素结合蛋白;TMCC2 = 跨膜和卷曲螺旋结构域2;KEL = Kell金属内肽酶;XK = X连锁Kx血型;EIF2AK1 = 真核翻译起始因子2α激酶1;miRNA = 微小RNA;mRNA = 信使RNA。 请点击此处查看该图的放大版本。
FLVCR1 表达的实验验证及潜在治疗化合物的分子对接分析
为了验证生物信息学分析结果并确认所鉴定出的核心基因的功能相关性,我们通过实验评估了PKF和NHDF中FLVCR1的表达水平。qRT-PCR和蛋白质印迹分析结果一致显示,与正常对照相比,瘢痕疙瘩成纤维细胞中FLVCR1的表达显著上调(图6A–C、补充图S1和补充表S4)。这种细胞表达水平的升高支持FLVCR1相关的血红素代谢失调在瘢痕疙瘩发病机制中可能发挥重要作用。
鉴于FLVCR1可能参与血红素代谢相关的免疫变化,我们接下来旨在鉴定能够直接靶向FLVCR1以阻断这一致病轴的潜在治疗化合物。利用传统中药(TCM)化合物库和预先准备的蛋白质结构,进行了高通量虚拟筛选。根据对接评分,选取了20种评分最优的化合物进行进一步评估(补充表S5)。通常情况下,结合能越低,表明结合亲和力越强,而对接能量低于−5 kcal/mol通常提示配体-蛋白质之间存在稳定的相互作用。在筛选出的化合物中,(+)-没食子儿茶素、(−)-表儿茶素、(−)-没食子儿茶素和矢车菊素(氯化物)对FLVCR1表现出良好的结合亲和力。值得注意的是,(+)-没食子儿茶素通过与GLU214、ASN245、GLN246和GLN471形成四个氢键,与FLVCR1产生最强的相互作用,提示其具有稳定的配体-蛋白质结合模式(图6D–G)。这些结果表明,(+)-没食子儿茶素是一种以机制为基础、靶向FLVCR1的潜在治疗干预候选化合物。
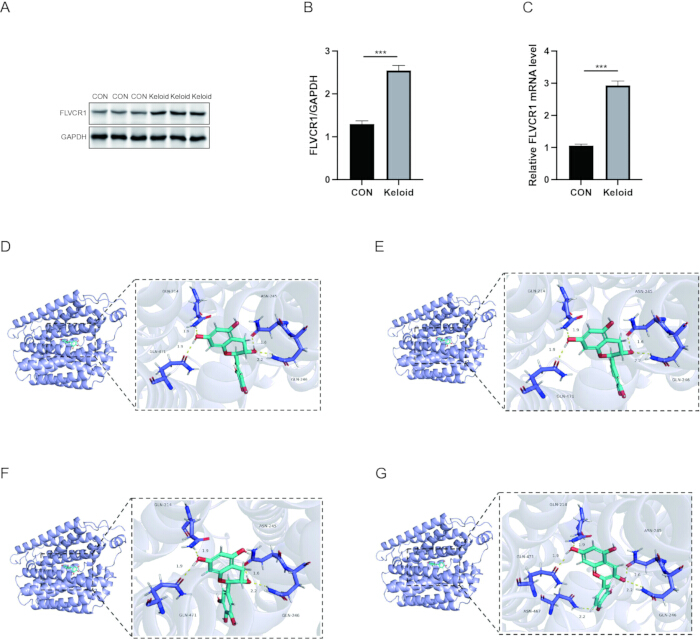
图6:FLVCR1 表达的实验验证及靶向 FLVCR1 的潜在化合物的分子对接。(A)代表性 Western 印迹图像,显示对照(CON)和瘢痕疙瘩组织中 FLVCR1 蛋白的表达水平。GAPDH 作为上样对照。(B)FLVCR1 蛋白水平相对于 GAPDH 的定量分析。(C)通过 qRT-PCR 检测 CON 和瘢痕疙瘩成纤维细胞中 FLVCR1 的相对 mRNA 表达水平。GAPDH 作为内参。(D–G)预测的 FLVCR1 与选定小分子化合物之间结合模式的三维示意图:(D)(+)-没食子儿茶素;(E)(-)-表儿茶素;(F)(-)-没食子儿茶素;(G)矢车菊素(氯化物)。缩写:FLVCR1 = 猫白血病病毒C亚群受体1;CON,对照;GAPDH,甘油醛-3-磷酸脱氢酶;qRT-PCR,定量反转录聚合酶链式反应;SD,标准差。数据以均值 ± SD 表示。统计学显著性:ns,P > 0.05;*,P < 0.05;**,P < 0.01;***,P < 0.001;****,P < 0.0001。请点击此处查看该图的放大版本。
通过分子动力学模拟验证FLVCR1–(+)-表没食子儿茶素复合物的稳定性
为了评估预测的配体–蛋白质结合模式的可靠性,对 FLVCR1–(+)-表没食子儿茶素复合物进行了分子动力学(MD)模拟。分析重点在于该复合物在时间进程中是否保持结构稳定性,以及配体结合是否通过 RMSD、RMSF、回转半径(Rg)、溶剂可及表面积(SASA)、氢键分析和 MM/GBSA 计算改变了蛋白质的构象行为。RMSD 分析(图 7A)显示,游离蛋白和配体结合复合物在前 20 ns 内均出现初始波动,随后逐渐趋于稳定,表明系统在模拟过程中已达到平衡状态。平衡后,FLVCR1–(+)-表没食子儿茶素复合物的 RMSD 值保持在 0.2 nm 以下,表明配体结合有助于维持 FLVCR1 的结构稳定性。RMSF 分析(图 7B)表明,大多数残基在整个模拟过程中波动较小,说明蛋白质整体结构完整性得以保持,而若干柔性区域可能代表参与配体容纳的环状结构区域。此外,稳定的 Rg 和 SASA 曲线(图 7C、D)表明该复合物保持了紧凑的构象,未出现明显的结构扩张或溶剂暴露面积变化。氢键分析(图 7E)显示,FLVCR1–(+)-表没食子儿茶素复合物维持了持续的分子间相互作用,在模拟过程中形成了约 3–4 个氢键,支持了配体–蛋白质结合的稳定性。MM/GBSA 分析进一步表明,FLVCR1–(+)-表没食子儿茶素复合物表现出有利的结合自由能(ΔGtotal = −34.87 ± 4.13 kcal/mol)(补充表 S6)。能量分解分析表明,范德华相互作用(ΔVDWAALS = −46.34 ± 2.16 kcal/mol)和静电相互作用(ΔEelec = −14.09 ± 3.45 kcal/mol)是促进结合的主要有利因素,尽管极性溶剂化能的贡献不利(ΔGsolvation = 25.55 ± 0.74 kcal/mol)(补充表 S6)。综上所述,这些分子动力学模拟结果表明,(+)-表没食子儿茶素能与 FLVCR1 形成稳定的复合物,并进一步支持了分子对接预测结合模式的可靠性。
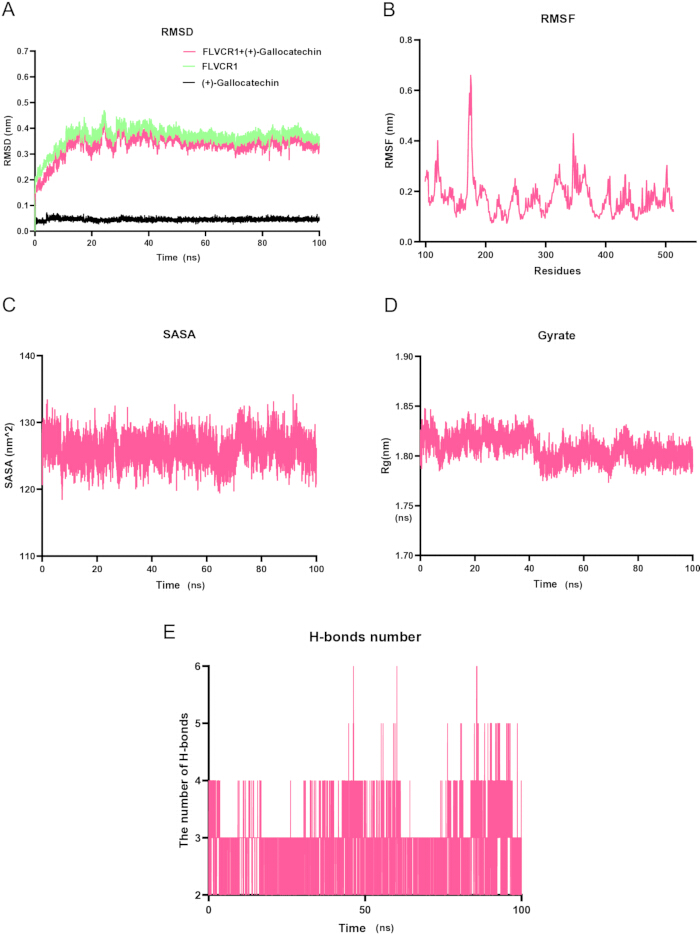
图7:FLVCR1–(+)-表没食子儿茶素复合物的分子动力学模拟分析。(A)在100 ns分子动力学模拟过程中,游离态FLVCR1及FLVCR1–(+)-表没食子儿茶素复合物的RMSD变化曲线。(B)RMSF曲线,显示模拟过程中FLVCR1各残基水平的波动情况。(C)SASA曲线,显示FLVCR1–(+)-表没食子儿茶素复合物溶剂可及表面积的变化。(D)Rg曲线,用于评估模拟过程中FLVCR1–(+)-表没食子儿茶素复合物的紧密程度。(E)氢键分析,显示在整个模拟过程中FLVCR1与(+)-表没食子儿茶素之间的动态分子间相互作用。缩写:FLVCR1 = 猫白血病病毒C亚群受体1;RMSD = 均方根偏差;RMSF = 均方根涨落;SASA = 溶剂可及表面积;Rg = 回转半径。请点击此处查看该图的放大版本。
数据可用性:
本研究中分析的公开转录组数据集可通过基因表达综合数据库(Gene Expression Omnibus, GEO)获取,登录号分别为 GSE44270、GSE7890 和 GSE163973。本研究生成的源数据及实验验证所依据的数据,包括 qRT-PCR 测量结果、原始 Western 印迹图像以及 Western 印迹定量数据,已作为补充图 S1、补充表 S1、补充表 S2、补充表 S3 和 补充表 S4 提供。分子对接结果及 MM/GBSA 结合自由能数据也包含在补充表 S5 和 补充表 S6 中。
补充图 S1:Western 印迹原始数据。请点击此处下载该文件。
补充表 S1:血红素代谢相关基因。请点击此处下载该文件。
补充表 S2:所选基因的引物序列。请点击此处下载该文件。
补充表 S3:用于识别瘢痕疙瘩潜在诊断生物标志物的机器学习方法。请点击此处下载该文件。
补充表 S4:支持 FLVCR1 表达实验验证的原始数据。请点击此处下载该文件。
补充表 S5:通过与 FLVCR1 的分子对接鉴定出的前 20 种候选化合物。请点击此处下载该文件。
补充表 S6:FLVCR1–(+)-表没食子儿茶素复合物的 MM/GBSA 结合自由能分析。请点击此处下载该文件。
讨论
本研究揭示了血红素代谢失调、FLVCR1 表达与瘢痕疙瘩形成过程中免疫微环境变化之间潜在的关联。通过整合 bulk 和单细胞转录组学分析,我们确立了 FLVCR1 作为连接血红素外排缺陷与病理性免疫重编程的分子枢纽,从而将瘢痕疙瘩归入新兴的“代谢-纤维化”疾病谱系23,24,25。FLVCR1 的潜在重要性得到了多层级分析证据的支持。bulk 转录组学分析显示,FLVCR1 在瘢痕疙瘩组织中显著上调,并具有良好的诊断效能;而单细胞分辨率的图谱则进一步定位其表达主要集中于内皮细胞和黑色素细胞——这两种细胞类型分别通过异常血管生成和色素沉着过度在瘢痕疙瘩发病机制中发挥关键作用26,27。尤为引人注目的是,FLVCR1 表达水平与滤泡辅助性 T 细胞(Tfh)呈显著负相关,而 Tfh 是一种日益被认可的淋巴细胞亚群,可促进纤维化微环境中偏向 Th2 的免疫反应及胶原沉积28。既往研究表明,FLVCR1 介导的血红素外排参与树突状细胞成熟与抗原呈递过程29,提示 FLVCR1 相关的血红素稳态可能与免疫调控存在关联。因此,观察到的 FLVCR1 上调及其与 Tfh 细胞浸润的负相关性,可能反映了免疫稳态的改变,或涉及 IL-4 和 IL-13 等 Tfh 相关的促纤维化细胞因子29,30,31。
此外,由FLVCR1功能障碍导致的细胞内血红素蓄积可能激活NLRP3炎症小体——这一机制在肝纤维化中已有充分记载,其中血红素作为损伤相关分子模式(DAMP)触发无菌性炎症32,33,34。这种炎症小体的激活将促进IL-1β/IL-18的释放,通过TLR4/NF-κB信号通路诱导M2型巨噬细胞极化,从而形成氧化应激与成纤维细胞活化的自我维持环路35,36。综上所述,这些数据支持FLVCR1作为瘢痕疙瘩中血红素代谢-免疫相互作用的候选生物标志物及潜在参与者;然而,所提出的机制级联仍需直接的功能验证。细胞内血红素滞留首先引起氧化损伤并激活炎症小体,继而导致树突状细胞功能障碍,促进滤泡辅助性T细胞及Th2型免疫反应的偏移;这种免疫偏移进一步驱动巨噬细胞向M2表型极化,最终导致成纤维细胞活化及纤维化进展。
除了FLVCR1单独作用外,这六个生物标志物的协同失调揭示了血红素稳态在多个调控节点上发生协调性崩溃。TMCC2与活化的树突状细胞呈正相关,但与未成熟亚群呈负相关,可能代表了一种在血红素应激条件下试图恢复免疫功能的代偿机制37,38。EIF2AK1在瘢痕疙瘩成纤维细胞和腺体细胞中高表达,是感知血红素过量的直接分子传感器,可通过磷酸化eIF2α全局性抑制蛋白质合成,同时选择性上调应激反应基因39,40,41。这使得EIF2AK1成为将血红素积累转化为成纤维细胞表型转换的关键桥梁——可能解释了为何瘢痕疙瘩成纤维细胞表现出更强的抗凋亡能力以及过度的胶原蛋白生成42,43,44。HPX作为血浆中主要的血红素清除蛋白,在黑素细胞中呈现局限性表达,提示其可能在富含色素的细胞区室中自主缓冲血红素毒性45,46,47。XK与KEL的同步失调进一步表明红系来源的血红素处理机制参与了瘢痕疙瘩的发病过程——这一发现为理解为何瘢痕疙瘩常发生在伴有微出血的创伤部位提供了重要线索。我们不应将这六个基因视为独立的标志物,而应将其整体失调视为血红素区室化系统性失能的证据,即导出功能受损(FLVCR1)、感知异常(EIF2AK1)、清除能力下降(HPX)以及膜转运障碍(XK、KEL)共同促成了促纤维化且富含血红素的微环境。
这种代谢-免疫模型进一步得到了令人信服的表观遗传学层面的支持:我们鉴定出一个竞争性内源RNA(ceRNA)网络,其中特定miRNA(例如let-7家族和miR-34a-5p)的下调可能同时解除对血红素代谢相关通路和纤维化通路的抑制,尽管这一调控模型仍需进一步验证23。单细胞分析所提供的空间分辨率揭示了该过程背后的细胞协同机制,阐明了结构细胞中的代谢功能障碍如何通过旁分泌的血红素信号主动塑造富含免疫细胞的微环境,从而将我们对该过程的理解从“整体组织”视角转变为动态的细胞生态系统模型48,49,50。内皮细胞中血红素的积累可能通过诱导血红素加氧酶-1以及上调黏附分子,促进血管渗漏和白细胞外渗,进而促成瘢痕疙瘩中所观察到的富含免疫细胞的微环境51,52,53。同时,黑色素细胞中FLVCR1的表达与瘢痕疙瘩色素沉着过度的临床观察结果一致,并提示色素生成通路与纤维化通路之间可能存在共同的代谢脆弱性——这种关联可能由氧化应激反应介导54,55。这种空间图谱的构建使我们对疾病机制的理解从“整体组织”视角跃迁至细胞生态系统模型,即结构细胞(内皮细胞、黑色素细胞)中的代谢功能障碍通过旁分泌血红素信号主动调控免疫细胞行为。
从转化医学的角度来看,我们整合全部六种生物标志物的列线图实现了近乎完美的诊断准确性,显著优于任何单一标志物,并通过决策曲线分析显示出明确的临床净获益。更引人注目的是,分子对接发现(+)-表没食子儿茶素——一种在绿茶和传统中药草中含量丰富的生物活性多酚——可作为FLVCR1的高亲和力配体,与GLU-214、ASN-245、GLN-246和GLN-471形成稳定的氢键。这一发现尤其具有说服力,因为已有证据表明儿茶素可抑制胶原合成、减少转化生长因子-β1的分泌,并减轻瘢痕疙瘩成纤维细胞中的氧化应激56,57,58。我们推测,(+)-表没食子儿茶素可能通过稳定FLVCR1的构象以增强血红素的外排能力,从而在源头阻断纤维化的代谢触发机制——这一策略与当前仅抑制下游胶原生成的疗法有着根本性区别。此类代谢干预是否能够影响瘢痕疙瘩的复发,尚需进一步的实验和临床验证。
当然,本研究也存在一定的局限性。首先,我们的分析在很大程度上仍为计算性质,所观察到的 FLVCR1 表达与滤泡辅助性 T 细胞(Tfh 细胞)浸润之间的关联并不能确立直接的因果关系。后续仍需通过流式细胞术对 Tfh 细胞进行验证,并开展功能研究 FLVCR1 在瘢痕疙瘩成纤维细胞中进行敲低或过表达实验,结合成纤维细胞–免疫细胞相互作用或条件培养基检测,有助于阐明FLVCR1在免疫调控中的潜在作用。其次,相对较小的样本量可能导致对六基因特征性能的估计存在不确定性和偏倚。尽管已进行内部验证,但对其诊断效能和校准能力的可靠评估仍有限。因此,该六基因组合应被视为一种探索性分子标志物,需在更大规模、独立的队列中进一步验证。第三,单细胞数据集需要扩展,以更全面地捕捉患者间的异质性及稀有细胞亚群。第四,通过免疫组织化学对生物标志物表达进行蛋白水平验证及其空间定位分析,将增强研究结果的临床相关性。最后,尽管分子对接提示(+)-表没食子儿茶素与FLVCR1之间可能存在结合, 体外 结合实验,以及 在体 在临床转化之前,仍需开展疗效研究。尽管存在这些局限性,我们的研究结果为FLVCR1相关的血红素代谢与瘢痕疙瘩中的免疫改变之间的关联提供了多维度的框架,并确定了若干潜在的分子生物标志物和治疗候选靶点,有待进一步研究。
披露
作者声明无利益冲突。
作者贡献
Qiuyan Yang 参与了研究设计。Jianping Zhang 参与了数据收集。Qiuyan Yang 和 Xiaofang Sun 参与了统计分析。Qiuyan Yang 和 Jing Wang 参与了图表制作及论文定稿。所有作者均阅读并批准了论文的最终版本。
致谢
我们衷心感谢通过基因表达综合数据库(Gene Expression Omnibus,GEO)生成并公开共享 GSE44270、GSE7890 和 GSE163973 数据集的研究人员。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| AmberTools | 琥珀计划 | https://ambermd.org/AmberTools.php | 版本 22;使用 GAFF 力场生成配体参数 |
| 抗FLVCR1 | Proteintech | 26841-1-AP | |
| 抗GAPDH | Proteintech | 60004-1-Ig | |
| AutoDock Vina | 斯克里普斯研究所 | https://vina.scripps.edu/ | 版本 1.2.3;分子对接与配体结合亲和力预测 |
| AutoDockTools | 斯克里普斯研究所 | https://ccsb.scripps.edu/autodocksuite/adt/ | 版本 1.5.6;分子对接中配体与受体的准备 |
| BCA蛋白检测试剂盒 | Servicebio | G2026 | |
| 用于含dsDNase的qPCR的cDNA合成混合液 | UnionScript | qRT-PCR 的反转录 | |
| ChemBio3D | PerkinElmer | https://revvitysignals.com/products/research/chemdraw | 版本 14.0;配体的三维构象优化与能量最小化 |
| 化学发光成像系统 | Western印迹条带的可视化 | ||
| DoubletDetection 软件包 | GitHub / JonathanShor | https://github.com/JonathanShor/DoubletDetection | 单细胞RNA测序分析中预测双细胞的检测与去除 |
| ECL 化学发光底物 | Western blot 信号检测 | ||
| 胎牛血清 | 2% 终浓度;成纤维细胞培养基添加剂 | ||
| 成纤维细胞生长培养基2 | PromoCell | C-23020 | |
| FLVCR1 和 GAPDH 引物 | 补充表 S2 | 靶基因与参考基因的qRT-PCR扩增 | |
| 高斯 | Gaussian, Inc. | https://gaussian.com/ | Gaussian 16W;配体参数化中 RESP 原子电荷的计算 |
| 凝胶电泳装置 | SDS-PAGE蛋白质分离 | ||
| GEOquery 软件包 | Bioconductor | https://bioconductor.org/packages/GEOquery/ | 版本 2.68.0;从 GEO 数据库检索基因表达数据与元数据 |
| ggplot2 软件包 | CRAN | https://cran.r-project.org/package=ggplot2 | 版本 4.0.2;数据可视化 |
| glmnet 包 | CRAN | https://cran.r-project.org/package=glmnet | 版本 4.1.10;LASSO 特征选择 |
| GROMACS | GROMACS 开发团队 | https://www.gromacs.org/ | 版本 2022.3;分子动力学模拟与轨迹分析 |
| GS AntiQ qPCR SYBR Green Fast Mix(通用型) | Genesand | SQ410 | |
| GSE163973 | GEO数据库 | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE163973 | 3个瘢痕疙瘩样本;单细胞表达分析 |
| GSE44270 | GEO数据库 | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE44270 | 18个瘢痕疙瘩样本和14个正常样本;差异表达与生物标志物筛选 |
| GSE7890 | GEO数据库 | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE7890 | 10个瘢痕疙瘩样本和9个正常样本;诊断生物标志物的独立验证 |
| GSVA 包 | Bioconductor | https://bioconductor.org/packages/GSVA/ | 版本 1.48.3;基于 ssGSEA 的免疫细胞浸润分析 |
| HRP标记的山羊抗小鼠IgG | Abcam | ab97040 | |
| HRP标记的山羊抗兔IgG | Abcam | ab97051 | |
| 加湿的 CO2 培养箱 | 37 °C,5% CO2NHDF 和 PKF 细胞的培养与维持 | ||
| ImageJ | 美国国立卫生研究院 | https://imagej.nih.gov/ij/ | Western blot 条带强度的定量分析 |
| 胰岛素 | 5 μg/mL 终浓度;成纤维细胞培养基添加剂 | ||
| 分子特征数据库 (MSigDB) | 布罗德研究所 | https://www.gsea-msigdb.org/gsea/msigdb | 版本 2024.1.Hs;血红素代谢相关基因集来源 |
| NetworkAnalyst | NetworkAnalyst | https://www.networkanalyst.ca/ | 版本 3.0;miRNA-mRNA 相互作用网络的构建 |
| NHDF | Procell | CP-H106 | |
| 脱脂奶粉 | 5% 溶液;用于 Western 印迹分析的膜封闭 | ||
| 光学密封膜或封帽 | 密封qRT-PCR反应 | ||
| PBS | Procell | PB180327 | |
| PDB ID: 8UBZ | RCSB PDB | https://www.rcsb.org/structure/8UBZ | 人源FLVCR1结构;基于结构的虚拟筛选所用FLVCR1蛋白结构的来源 |
| 磷酸酶抑制剂 | 蛋白裂解缓冲液补充剂 | ||
| PKF | Procell | GCP-H235 | |
| PMSF | Servicebio | G2008-1ML | |
| pROC 包 | CRAN | https://cran.r-project.org/package=pROC | 版本 1.19.0.1;ROC 曲线与 AUC 分析 |
| 蛋白酶抑制剂混合物 | 罗氏 | 4693124001 | |
| 蛋白质转运装置 | 蛋白质转移至PVDF膜 | ||
| PVDF膜 | Millipore | IPVH08100 | |
| PyMOL | Schrödinger, LLC | https://pymol.org/ | 版本 2.6.1;蛋白质-配体对接构象与分子相互作用的可视化与分析 |
| qRT-PCR 板或管 | qRT-PCR 反应体系建立 | ||
| R | R 统计计算基金会 | https://www.r-project.org/ | 版本 4.3.1;统计学与生物信息学分析 |
| randomForest 包 | CRAN | https://cran.r-project.org/package=randomForest | 版本 4.7.1.2;随机森林特征选择 |
| REACTOME 血红素生物合成;REACTOME 血红素降解;WIKIPATHWAYS 血红素生物合成;REACTOME 从血浆中清除血红素;HALLMARK 血红素代谢 | 分子特征数据库(MSigDB) | https://www.gsea-msigdb.org/gsea/msigdb | 版本 2024.1.Hs;合并后 283 个独特基因;血红素代谢相关基因的定义 |
| 实时荧光定量PCR系统 | qRT-PCR扩增与检测 | ||
| 重组人碱性成纤维细胞生长因子 | 1 ng/mL 终浓度;成纤维细胞培养基添加剂 | ||
| RIPA缓冲液 | Servicebio | G2002 | |
| rms 包 | CRAN | https://cran.r-project.org/package=rms | 版本 6.7.1;列线图构建 |
| SDS-PAGE 试剂或预制胶 | 蛋白质通过SDS-PAGE分离 | ||
| Seurat 软件包 | CRAN | https://satijalab.org/seurat/ | 版本 5.4.0;单细胞RNA测序预处理、聚类与可视化 |
| TarBase | DIANA 工具 | https://carolina.imis.athena-innovation.gr/diana_tools/ | 版本 9.0;实验支持的 miRNA-mRNA 相互作用来源 |
| Total RNA Kit II | Omega | R6934-01 | |
| 传统中药活性化合物库 | 虚拟筛选候选化合物的来源 | ||
| Tween/Tris-缓冲盐水 | 封闭缓冲液的制备与膜的洗涤 | ||
| UnionScript qPCR第一链cDNA合成预混液(含dsDNase) | Genesand | SR511 |
参考文献
- Dirand Z, et al. Macrophage phenotype is determinant for fibrosis development in keloid disease. Matrix Biol. 2024;128:79-92.
- Fang X, et al. Hypertrophic scarring and keloids: epidemiology, molecular pathogenesis, and therapeutic interventions. MedComm (2020). 2025;6(10):e70381.
- Adler R, et al. Pentoxifylline and long-term risk of keloid formation: a real-world 10-year outcomes study using TriNetX. J Am Acad Dermatol. 2026;94(5):1561-3.
- Banerjee P, et al. Anti-fibrotic properties of a decellularized extracellular matrix scaffold from porcine small intestinal submucosa in normal human and keloid fibroblasts. Int J Mol Sci. 2025;26(24):11764.
- Chang YH, McGrath JA, Hsu CK. Regression of extensive keloids during imatinib therapy for gastrointestinal stromal tumor. JAMA Dermatol. 2025;161(12):1293-4.
- Wang QR, et al. CCL17 drives fibroblast activation in the progression of pulmonary fibrosis by enhancing the TGF-β/Smad signaling. Biochem Pharmacol. 2023;210:115475.
- Higuchi Y, et al. Cavin-2 promotes fibroblast-to-myofibroblast trans-differentiation and aggravates cardiac fibrosis. ESC Heart Fail. 2024;11(1):167-78.
- Zhang H, et al. Plasma apolipoprotein E protein attenuates pulmonary fibrosis through LRP1 and PLAU dual receptor-mediated TGF-β/Smad inhibition. J Adv Res. 2025. doi:10.1016/j.jare.2025.12.045.
- Chen Q, et al. Immune imbalance drives keloid pathogenesis: emerging targets for precision immunotherapy. Adv Wound Care (New Rochelle). 2026:21621918261417702.
- Deng CC, et al. Single-cell RNA-seq reveals immune cell heterogeneity and increased Th17 cells in human fibrotic skin diseases. Front Immunol. 2024;15:1522076.
- Wang Q, et al. Weighted gene co-expression network analysis and machine learning identified the lipid metabolism-related gene LGMN as a novel biomarker for keloid. Exp Dermatol. 2024;33(1):e14974.
- Zhang W, et al. New insights into keloid pathogenesis: biomarker potential for CDK7 and DDB2. Front Cell Dev Biol. 2025;13:1718189.
- Li W, et al. Altered arginine metabolism affects proliferation and radiosensitivity of keloids. Exp Dermatol. 2025;34(3):e70077.
- Jiang J, et al. Ambient fine particulate matter induces cardiac fibrosis through triggering ferroptosis by heme degradation induced-iron overload. Ecotoxicol Environ Saf. 2025;297:118227.
- Lin W, et al. Heme oxygenase-1 overexpression activates the IRF1/DRP1 signaling pathway to promote M2-type polarization of spinal cord microglia. Drug Dev Res. 2024;85(8):e70033.
- Knez J, Kovačič B, Goropevšek A. The role of regulatory T-cells in the development of endometriosis. Hum Reprod. 2024;39(7):1367-80.
- Voltarelli VA, et al. Heme: the lord of the iron ring. Antioxidants (Basel). 2023;12(5):1074.
- Wilks A, Egoshi R. Heme trafficking and the importance of handling nature's most versatile cofactor. Chem Rev. 2025;125(23):11358-78.
- Bertino F, et al. Dysregulation of FLVCR1a-dependent mitochondrial calcium handling in neural progenitors causes congenital hydrocephalus. Cell Rep Med. 2024;5(7):101647.
- Kumar A, et al. Iron regulates the quiescence of naive CD4 T cells by controlling mitochondria and cellular metabolism. Proc Natl Acad Sci U S A. 2024;121(17):e2318420121.
- Jiang H, et al. Gut microbiota dysbiosis in diabetic nephropathy: mechanisms and therapeutic targeting via the gut-kidney axis. Front Endocrinol (Lausanne). 2025;16:1661037.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-62.
- Chen Y, et al. 5-ALA photodynamic metabolite-powered zero-waste ferroptosis amplifier for enhanced hypertrophic scar therapy. Nat Commun. 2025;16(1):8321.
- Li X, et al. Hypericin-mediated photodynamic therapy promotes apoptosis and inhibits fibrosis by inducing HMOX1-mediated ferroptosis in hypertrophic scar fibroblasts. J Photochem Photobiol B. 2025;273:113303.
- Chen Y, et al. Functional transdermal nanoethosomes enhance photodynamic therapy of hypertrophic scars via self-generating oxygen. ACS Appl Mater Interfaces. 2021;13(7):7955-65.
- Oh S, et al. Revealing the pathogenesis of keloids based on the status: active vs inactive. Exp Dermatol. 2024;33(5):e15088.
- Zhao S, et al. New anti-fibrotic strategies for keloids: insights from single-cell multi-omics. Cell Prolif. 2025;58(6):e13818.
- Yasujima T, et al. The role of FLVCR1 and FLVCR2 in choline transport in the Caco-2 intestinal epithelial cell model and rat small intestine. Biochim Biophys Acta Mol Basis Dis. 2025;1871(6):167883.
- Zhang M, Chen H, Qian H, Wang C. Characterization of the skin keloid microenvironment. Cell Commun Signal. 2023;21(1):207.
- Wang Y, et al. FoxC1 activates Notch3 signaling to promote the inflammatory phenotype of keloid fibroblasts and aggravates keloid. Exp Cell Res. 2025;444(2):114402.
- Zhang J, et al. ERG transcriptionally activates SFRP1 to promote apoptosis of keloid fibroblasts and inhibit epithelial-mesenchymal transition and fibrosis through the Wnt3a/β-catenin pathway. Arch Dermatol Res. 2025;317(1):467.
- Ramos-Tovar E, Muriel P. NLRP3 inflammasome in hepatic diseases: a pharmacological target. Biochem Pharmacol. 2023;217:115861.
- Brahadeeswaran S, et al. NLRP3: a new therapeutic target in alcoholic liver disease. Front Immunol. 2023;14:1215333.
- Xiao Y, et al. STING mediates hepatocyte pyroptosis in liver fibrosis by epigenetically activating the NLRP3 inflammasome. Redox Biol. 2023;62:102691.
- Paolucci T, et al. Quantum molecular resonance inhibits NLRP3 inflammasome/nitrosative stress and promotes M1 to M2 macrophage polarization: potential therapeutic effect in osteoarthritis model in vitro. Antioxidants (Basel). 2023;12(7):1358.
- Wei J, et al. FERM domain containing kindlin 1 knockdown attenuates inflammation induced by intracerebral hemorrhage in rats via NLR family pyrin domain containing 3/nuclear factor kappa B pathway. Exp Anim. 2023;72(3):324-35.
- Tao L, Zhou Y, Wu L, Liu J. Comprehensive analysis of sialylation-related genes and construct the prognostic model in sepsis. Sci Rep. 2024;14(1):18110.
- Sun Q, et al. Identification of hub genes and key pathways associated with sepsis progression using weighted gene co-expression network analysis and machine learning. Int J Mol Sci. 2025;26(9):4433.
- Chen JJ. HRI protein kinase in cytoplasmic heme sensing and mitochondrial stress response: relevance to hematological and mitochondrial diseases. J Biol Chem. 2025;301(5):108494.
- Chakrabarty Y, Yang Z, Chen H, Chan DC. The HRI branch of the integrated stress response selectively triggers mitophagy. Mol Cell. 2024;84(6):1090-100.e6.
- Bora P, et al. Drug repurposing screen identifies an HRI activating compound that promotes adaptive mitochondrial remodeling in MFN2-deficient cells. Proc Natl Acad Sci U S A. 2025;122(48):e2517552122.
- Zhang C, et al. CaMKII suppresses proteotoxicity by phosphorylating BAG3 in response to proteasomal dysfunction. EMBO Rep. 2024;25(10):4488-514.
- Chaabani H, et al. Trifloxystrobin induces oxidative stress-dependent activation of the OMA1-DELE1-HRI integrated stress response leading to apoptosis in human neuroblastoma cells. Environ Pollut. 2026;390:127562.
- Das R, et al. CMT2A-linked MFN2 mutation, T206I promotes mitochondrial hyperfusion and predisposes cells towards mitophagy. Mitochondrion. 2024;74:101825.
- De Simone G, et al. Heme scavenging and delivery: the role of human serum albumin. Biomolecules. 2023;13(3):575.
- Turilli-Ghisolfi ES, Lualdi M, Fasano M. Ligand-based regulation of dynamics and reactivity of hemoproteins. Biomolecules. 2023;13(4):683.
- Zhang P, et al. Risk factors and prediction models for cardiotoxicity induced by anthracyclines in malignant chemotherapy. Cancer Chemother Pharmacol. 2025;95(1):73.
- Petrillo S, et al. Endothelial cells require functional FLVCR1a during developmental and adult angiogenesis. Angiogenesis. 2023;26(3):365-84.
- Fiorito V, Tolosano E. Unearthing FLVCR1a: tracing the path to a vital cellular transporter. Cell Mol Life Sci. 2024;81(1):166.
- Manco M, et al. FLVCR1a controls cellular cholesterol levels through the regulation of heme biosynthesis and tricarboxylic acid cycle flux in endothelial cells. Biomolecules. 2024;14(2):149.
- Shi X, et al. Increased melanin induces aberrant keratinocyte-melanocyte-basal-fibroblast cell communication and fibrogenesis by inducing iron overload and ferroptosis resistance in keloids. Cell Commun Signal. 2025;23(1):141.
- Khunger N, Dash A. Impact of air pollution on skin pigmentation: mechanisms and protective strategies. Int J Dermatol. 2025;64(10):1788-801.
- Ahuja K, Raju S, Dahiya S, Motiani RK. ROS and calcium signaling are critical determinant of skin pigmentation. Cell Calcium. 2025;125:102987.
- Dutta A, Chakraborty S, Roy A, Mittal A, et al. Tissue fibrosis in cardiorenal syndrome: crosstalk between heart and kidneys. Nephrol Dial Transplant. 2025;40(7):1273-83.
- Noah AA, et al. Reversal of fibrosis and portal hypertension by empagliflozin treatment of CCl4-induced liver fibrosis: emphasis on gal-1/NRP-1/TGF-β and gal-1/NRP-1/VEGFR2 pathways. Eur J Pharmacol. 2023;959:176066.
- Murakami T, Shigeki S. Pharmacotherapy for keloids and hypertrophic scars. Int J Mol Sci. 2024;25(9):4674.
- Jin J, Zheng Z. Gut microbiota-derived metabolites in keloid and hypertrophic scarring. Front Microbiol. 2025;16:1644758.
- Aubert A, et al. Potential implications of granzyme B in keloids and hypertrophic scars through extracellular matrix remodeling and latent TGF-β activation. Front Immunol. 2024;15:1484462.