在糖尿病小鼠中,为期八周的跑台运动与心脏、肠道屏障及Nlrp3相关的转录变化相关,并伴有肠道微生物群的改变,尤其是Akkermansia muciniphila的增加。
本文内容
摘要
摘要
本研究探讨了运动、肠道屏障相关基因表达与心脏之间的关联 Nlrp3 糖尿病小鼠模型中炎症小体相关基因的表达。通过高脂饮食联合低剂量链脲佐菌素诱导雄性C57BL/6J小鼠产生代谢紊乱,随后进行为期8周的跑台运动干预。5° 坡度,12 m/min,每天20–50分钟,每周5天)。与久坐的糖尿病小鼠相比,运动小鼠表现出更低的空腹血糖、胰岛素抵抗和血清脂质水平,以及更高的结肠 Occludin mRNA表达(相对表达:0.38) ± 0.04(糖尿病小鼠)与0.79 ± 0.05,在运动小鼠中, P < 0.001),较低的心脏 Nlrp3, IL-1β,TNF-α,Col1a1, 和 Tgfb1 mRNA 表达,以及较低的 Bax/Bcl-2 mRNA 比值(3.06) ± 0.19 对比 1.48 ± 0.10, P < 0.001)。对六个选定分类群的粪便qPCR分析显示,运动与相对丰度的增加相关 Akkermansia muciniphila (0.31 ± 0.04 至 0.84 ± 0.07)和 Lactobacillus (0.48 ± 0.05 到 1.01 ± 0.07)并降低 大肠杆菌 (3.84 ± 0.33 至 1.68 ± 0.13, P < 0.01)。在运动的小鼠中, A. muciniphila 丰度与心脏呈负相关 Nlrp3 mRNA表达(R = −0.81, P = 0.0046)。这些相关性结果表明,在糖尿病小鼠中,运动与心脏及肠道转录水平的变化以及部分肠道微生物类群之间存在关联,但并未确立其因果关系。所有分子层面的发现仅限于mRNA水平的变化,未能验证肠道屏障功能、炎性小体激活、心肌纤维化、细胞凋亡或其他功能层面或蛋白质水平的影响。
引言
糖尿病是一种日益严重的全球性健康威胁,糖尿病相关的心脏并发症仍然是具有有限特异性治疗手段的严重疾病1,2,3,4。运动训练可改善糖尿病动物模型的心脏功能5,6,但其潜在机制,特别是涉及肠道微生物群和肠道屏障的机制,尚未完全阐明。
肠道微生物群调节宿主的代谢和免疫功能7。在糖尿病中,肠道菌群失调和屏障完整性受损可增加脂多糖(LPS)的易位,促进TLR4介导的炎症反应,并加重心肌损伤8,9。这种源于肠道的炎症负担可能促进糖尿病并发症的进展,包括心脏功能障碍。有益菌属如Akkermansia和Faecalibacterium可能减少,而大肠杆菌(E. coli)等细菌可能增多10,11。此类微生物改变可能引发局部肠道炎症和全身性内毒素血症,进而影响远端器官,包括心脏。NLRP3炎性小体是糖尿病心脏病变中调控心脏炎症的重要介质,其活化可能受到肠道微生物代谢产物的调节12,13。某些微生物产物,特别是短链脂肪酸和LPS,对NLRP3的启动和组装具有相反的作用,提示肠道微生物环境与心肌炎症状态之间可能存在关联。
运动可以改变肠道微生物群并改善肠道屏障功能14,15,但在糖尿病模型中,运动、肠道屏障相关基因表达以及心脏NLRP3炎症小体相关基因表达之间的关联仍不完全清楚。肠上皮是管腔微生物与全身循环之间的界面,因此可能介导了肠道微生物群变化与心脏炎症反应之间的关联。然而,在糖尿病模型中,关于运动诱导的肠道屏障变化、NLRP3炎症小体活化与心脏保护之间因果关系的直接实验证据仍然缺乏。
因此,假设认为跑步机运动将与糖尿病小鼠的心脏转录变化、特定肠道微生物类群的改变、肠道屏障相关基因表达的维持以及心脏NLRP3炎性小体相关基因表达的降低相关。采用高脂饮食联合低剂量链脲佐菌素建立糖尿病小鼠模型,随后进行为期8周的跑步机运动干预。评估指标包括代谢参数、结肠Occludin mRNA表达、心脏NLRP3炎性小体相关基因表达,以及炎症、纤维化和凋亡相关基因表达标志物。同时定量分析特定肠道微生物类群,以评估运动对肠道菌群的影响。采用相关性分析考察特定肠道微生物类群、肠道屏障相关基因表达与心脏转录标志物之间的关联。这些分析旨在识别变量间的关联性,而非确立肠道屏障-NLRP3之间的因果机制。
方案
所有动物实验均在获得国际实验动物护理认证组织认证的动物实验机构内进行。实验方案已通过该机构的机构动物护理和使用委员会(IACUC;批准编号:VS212500103)的审查和批准。由于本单位缺乏针对该特定模型的许可动物实验设施,实验在经批准的外部机构开展。
糖尿病小鼠模型的建立
雄性 C57BL/6J 小鼠(8 周龄,SPF 级,体重 20–22 g)在受控环境条件下(22 ± 2 °C,相对湿度 50 ± 10%,12 小时明暗循环)适应 1 周,可自由摄取标准饲料和水。
适应环境后,使用随机数字表将小鼠随机分配至正常对照组(Control,n = 10)或糖尿病诱导组。实验操作和结果测量均由对分组情况不知情的研究人员完成。动物以每笼4只的标准饲养于带有丰富垫料的聚碳酸酯标准笼中,饲养环境为无特定病原体条件。仅使用雄性小鼠,以避免动情周期可能带来的变异,并且由于高脂饮食/链脲佐菌素(STZ)模型在雄性小鼠中可产生更稳定的代谢表型。
诱导糖尿病的小鼠先饲喂高脂饮食(60% 千卡来自脂肪)4 周,随后连续 5 天每日腹腔注射链脲佐菌素(STZ;30 mg/kg 体重)。STZ 新鲜溶解于 0.1 mol/L 柠檬酸缓冲液(pH 4.5)中,避光保存,并在配制后 15 分钟内给予。对照组小鼠给予等体积的柠檬酸缓冲液。末次注射一周后,在禁食 6 小时后从小鼠尾尖采血测定空腹血糖(FBG)。空腹血糖 ≥ 11.1 mmol/L 的小鼠被视为糖尿病模型小鼠。这些小鼠继续维持在高脂饮食下 4 周,以促进糖尿病相关基因表达变化的发展。
共有35只小鼠接受了模型诱导,其中28只符合糖尿病标准。每周监测体重和食物摄入量,但不作为排除标准。在建模和干预阶段均无动物死亡或被剔除。成功建模的小鼠被随机分为糖尿病组(DM,n = 10)和运动干预组(DM+Ex,n = 10)。所有分析中每组最终样本量为n = 10,以每只小鼠为实验单位。
跑步机运动干预
DM+Ex组小鼠以5°坡度、12 m/min的速度进行跑台运动,每周5天,持续8周。所有运动训练均在上午9:00至11:00之间进行。干预前,小鼠先适应跑台跑步3天,每天5分钟,速度为6 m/min,坡度为0°。每次运动包括5分钟的热身阶段和5分钟的冷身阶段,速度均为6 m/min。通过轻微触碰刺激小鼠跑步,未使用电刺激。
第1周每日跑步时长为20分钟,第2周为25分钟,第3周为30分钟,第4周为35分钟,第5周为40分钟,第6周为45分钟,第7–8周为50分钟。对照组和DM小鼠被放置在静止的跑台上,持续相同时间,以控制操作和环境暴露的影响。预设的排除标准为未能完成超过80%规定运动训练次数。无动物符合该排除标准;所有动物均完成了规定的运动训练,且未观察到任何不良事件。
样品采集
末次运动训练后12小时,小鼠禁食6小时,并通过吸入异氟烷(3%诱导,1.5–2%维持,100% O₂,流速1 L/min)进行麻醉。从小鼠眶后静脉丛采集约500 µL血液,室温静置凝固30分钟,随后在4 °C条件下以3,000 × g离心15分钟。所得血清于−80 °C保存。
小鼠在深度麻醉下通过颈椎脱位实施安乐死。迅速取出心脏,并用预冷的磷酸盐缓冲液(PBS)冲洗。分离左心室组织,其中一部分立即在液氮中速冻后于 −80 °C 保存,用于RNA提取;其余组织置于4%多聚甲醛中固定。采集约1 cm长的远端结肠组织,用PBS冲洗后速冻,并于 −80 °C 保存。上午9:00至10:00之间直接从直肠收集新鲜粪便样本,以尽量减少笼具污染,迅速转移至无菌管中,并在采集后15分钟内于 −80 °C 保存。
血清生化指标测定
空腹血糖(FBG)采用血糖检测系统进行测定。血清胰岛素通过酶联免疫吸附测定法测定,总胆固醇和甘油三酯使用全自动生化分析仪测定。胰岛素抵抗指数通过稳态模型评估法计算:HOMA-IR = FBG(mmol/L)× 胰岛素(mIU/L)/22.5。
心肌组织中RNA的提取与实时定量PCR
取约30 mg左心室组织,用基于苯酚-胍的RNA提取试剂进行匀浆,按照试剂说明书提取总RNA。采用分光光度法测定RNA浓度和纯度,A260/A280比值在1.8–2.0范围内视为合格。取1 µg总RNA逆转录为互补DNA(cDNA)。
定量PCR(qPCR)在20 µL反应体系中进行,反应体系包含荧光DNA结合型qPCR预混液、0.4 µmol/L的正向和反向引物各一种,以及2 µL cDNA模板。扩增条件为95 °C预变性30 s,随后进行40个循环,每个循环为95 °C变性5 s,60 °C退火延伸34 s。通过65–95 °C熔解曲线分析验证扩增特异性。所有反应均设置重复孔,并包含无模板对照(no-template control)和无逆转录酶对照(no-reverse-transcription control)。所有引物对的扩增效率均在90–105%之间。Tnfa、Il1b、Tgfb1、Col1a1、Nlrp3和Gapdh的引物序列见表1。相对基因表达量采用2−ΔΔCt法计算,并以对照组(Control group)为基准表示为倍数变化(fold change)。
粪便微生物群DNA提取及qPCR定量
采用粪便DNA提取方案从粪便样本中提取总微生物DNA。使用表1中列出的分类特异性引物,通过qPCR检测六种选定细菌类群的相对丰度——Faecalibacterium prausnitzii、Akkermansia muciniphila、Lactobacillus属、Bifidobacterium属、Escherichia coli以及Desulfovibrio属。以通用细菌16S rRNA引物作为总细菌丰度的参考。
使用2−ΔΔCt法计算相对丰度,以总细菌16S rRNA为参考,并归一化至对照组。通过已知浓度的质粒DNA系列稀释液为每个目标基因生成标准曲线,以验证扩增效率。所有反应均设置重复,并进行熔解曲线分析。由于不同细菌分类群的16S rRNA基因拷贝数存在差异,结果以2−ΔΔCt相对丰度表示,而非绝对拷贝数。
结肠闭合蛋白表达的评估
将约30 mg结肠组织按上述方法进行总RNA提取和cDNA合成。Occludin mRNA的表达水平通过qPCR检测,所用引物序列如下:上游引物,5′-GTCGAATGTCTTTGCTGGTGGT-3′;下游引物,5′-GCAGCAGCCATGTACTCTTCAC-3′。以Gapdh作为内参基因,采用2−ΔΔCt法计算相对表达量。
统计学分析
数据以均值 ± 标准差(SD)表示。采用 Shapiro-Wilk 检验评估正态性,采用 Levene 检验评估方差齐性。满足参数检验假设的组间数据采用单因素方差分析(ANOVA),随后进行 Tukey 真实显著性差异(HSD)检验进行事后两两比较。两组之间的比较采用非配对双尾 Student t-检验。
采用斯皮尔曼等级相关分析变量间的关联性。对于相关性热图,计算了控制实验组后的偏斯皮尔曼相关系数。 P 采用 Benjamini-Hochberg 错误发现率(FDR)法对多次比较进行校正,且经 FDR 校正后的 P < 0.05 被认为具有统计学显著性。效应量(Cohen's f 用于 ANOVA 和 r 报告了相关性分析结果以及关键均值差异的95%置信区间(如适用)。所有统计分析均使用统计计算软件(版本4.2.0)完成。
结果
跑步机运动与糖尿病小鼠代谢异常的改善相关
与对照组相比,糖尿病小鼠的空腹血糖(18.23 ± 0.61 对比 6.03 ± 0.21 mmol/L,P < 0.001)、血清胰岛素(16.30 ± 1.04 对比 8.23 ± 0.38 mIU/L,P < 0.001)、HOMA-IR(13.19 ± 1.18 对比 2.21 ± 0.17,P < 0.001)、总胆固醇(4.62 ± 0.23 对比 2.01 ± 0.09 mmol/L,P < 0.001)和甘油三酯(2.12 ± 0.15 对比 0.80 ± 0.08 mmol/L,P < 0.001)均显著升高。经过8周跑台运动干预后,上述指标分别下降至12.03 ± 0.63 mmol/L、10.61 ± 0.71 mIU/L、5.69 ± 0.67、3.09 ± 0.24 mmol/L和1.20 ± 0.14 mmol/L,与糖尿病小鼠相比差异显著(P < 0.01 或 P < 0.001);然而,大多数数值仍高于对照组(图1A–E)。单因素方差分析显示,所有参数的组间差异均有统计学意义(均 F(2,27) > 25.0,P < 0.001)。
运动训练与较高的结肠Occludin mRNA表达以及较低的心脏炎症小体相关基因表达相关
在糖尿病小鼠中,结肠Occludin mRNA 表达水平比对照组低约 62%(0.38 ± 0.04 vs. 1.00 ± 0.06,P < 0.001)。同时,心脏中Nlrp3、Il1b 和 Tnfa 的 mRNA 表达水平分别升高至对照组的 5.6 倍、6.5 倍和 5.1 倍(均 P < 0.001)。经过运动干预后,Occludin mRNA 表达水平回升至 0.79 ± 0.05(P < 0.001,与糖尿病小鼠相比);而Nlrp3、Il1b 和 Tnfa 的 mRNA 表达水平则分别下降至 2.30 ± 0.21、2.66 ± 0.25 和 2.14 ± 0.17(均 P < 0.001,与糖尿病小鼠相比;图 2A–D)。
运动与较低的心肌纤维化和细胞凋亡相关基因表达有关
与对照组相比,糖尿病组小鼠心脏中纤维化相关基因Col1a1(4.46 ± 0.29倍,P < 0.001)和Tgfb1(4.17 ± 0.24倍,P < 0.001)的表达显著升高,同时Bax/Bcl2 mRNA比值也显著升高(3.06 ± 0.19,P < 0.001)。经过运动训练后,Col1a1和Tgfb1的mRNA表达分别下降至2.02 ± 0.16和1.92 ± 0.16(均P < 0.001,与糖尿病小鼠相比),Bax/Bcl2 mRNA比值下降至1.48 ± 0.10(P < 0.001,与糖尿病小鼠相比;图3A–C)。
运动与糖尿病小鼠肠道特定微生物类群的变化相关
与对照组相比,糖尿病小鼠的四种选定细菌类群的相对丰度显著降低:F. prausnitzii(0.25 ± 0.03 vs. 1.01 ± 0.07)、A. muciniphila(0.31 ± 0.04 vs. 1.00 ± 0.06)、Lactobacillus(0.48 ± 0.05 vs. 0.99 ± 0.04)和Bifidobacterium(0.56 ± 0.06 vs. 1.00 ± 0.06;所有P < 0.001)。相反,E. coli(3.84 ± 0.33 vs. 0.99 ± 0.08)和Desulfovibrio(3.07 ± 0.26 vs. 0.99 ± 0.07)的相对丰度显著升高(均P < 0.001)。运动干预与F. prausnitzii、A. muciniphila、Lactobacillus和Bifidobacterium的相对丰度显著升高相关(P < 0.01 或 P < 0.001),其中A. muciniphila达到0.84 ± 0.07。同时,E. coli和Desulfovibrio的相对丰度分别下降至1.68 ± 0.13和1.52 ± 0.08(与糖尿病小鼠相比,均P < 0.001;图4A–F)。
选定的微生物改变与心脏和结肠基因表达相关
采用斯皮尔曼相关性分析评估选定微生物类群的相对丰度与心脏及结肠组织中基因表达标志物之间的关联(图5A)。A. muciniphila 的相对丰度与心脏组织中 Nlrp3 mRNA 呈负相关(R = −0.81,P = 0.0046),与 Tnfa mRNA 也呈负相关(R = −0.80,P = 0.0054)。E. coli 的相对丰度与结肠组织中 Occludin mRNA 表达呈正相关(R = 0.66,P = 0.036;图5B–D)。这些结果揭示了选定肠道微生物类群与心脏及结肠转录标志物之间的关联,但并未确立因果关系。
数据可用性:
本研究期间生成和/或分析的数据集可向通讯作者在合理要求下获取。
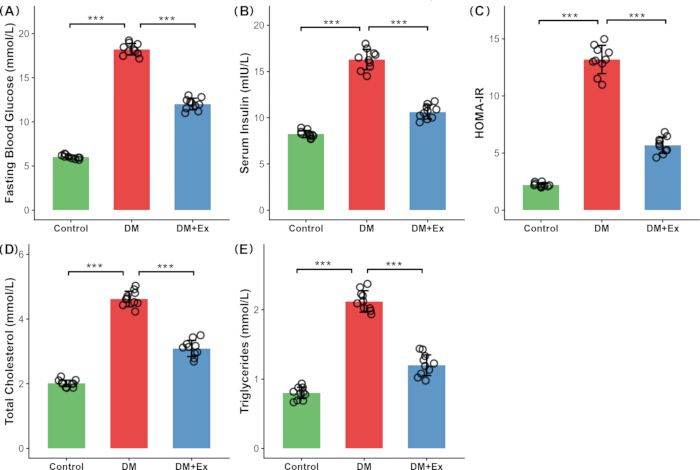
图1:跑步机运动对糖尿病小鼠代谢参数的影响。(A)空腹血糖。(B)血清胰岛素。(C)胰岛素抵抗稳态模型评估(HOMA-IR)。(D)总胆固醇。(E)对照组、DM组和DM+Ex组的甘油三酯。数据以均值±标准差(SD)表示(n = 每组10),每个柱状图上叠加显示个体数据点。组间比较采用单因素方差分析,随后进行Tukey事后检验。*P < 0.05,**P < 0.01,***P < 0.001;ns = 无显著性差异。缩写:DM = 糖尿病模型;Ex = 运动;HOMA-IR = 胰岛素抵抗稳态模型评估;SD = 标准差。 请点击此处查看该图的放大版本。
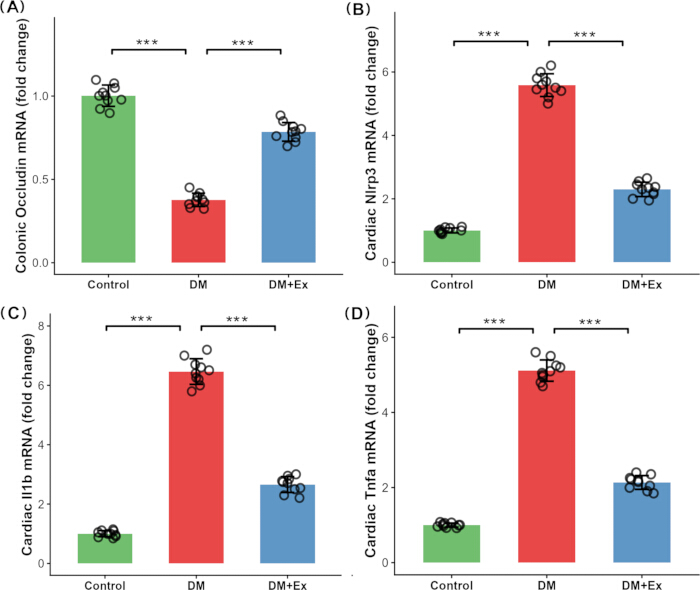
图2:跑步机运动对糖尿病小鼠肠道屏障相关基因及心脏炎性小体相关基因表达的影响。(A)结肠 Occludin mRNA 的相对表达水平。(B)心脏 Nlrp3 mRNA 的相对表达水平。(C)心脏 Il1b mRNA 的相对表达水平。(D)心脏 Tnfa mRNA 的相对表达水平。基因表达以 Gapdh 为内参进行标准化,并以对照组为基准计算倍数变化。数据以均值 ± 标准差表示(n = 每组10只)。*P < 0.05,**P < 0.01,***P < 0.001。缩写:IL-1β = 白细胞介素-1β;TNF-α = 肿瘤坏死因子-α;SD = 标准差。请点击此处查看该图的放大版本。
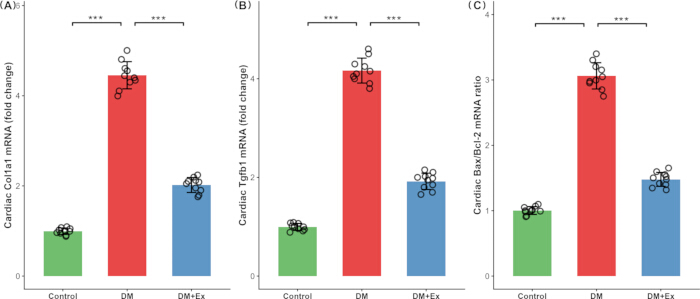
图3跑步机运动对糖尿病小鼠心肌纤维化相关及凋亡相关基因表达的影响 (A) 相对心脏 Col1a1 mRNA 表达。B相对心脏 Tgfb1 mRNA 表达。C) Bax/Bcl2 mRNA 比值。基因表达水平经标准化处理至 Gapdh 并以相对于对照组的倍数变化表示。该 Bax/Bcl2 比率由相对mRNA表达值计算得出。数据以均值表示 ± SD(n = 每组10个),每个条形图上叠加显示单个数据点。*P < 0.05, **P < 0.01, ***P < 0.001. 缩写:Col1a1 = 胶原蛋白I型α1;Tgfb1 = 转化生长因子-β1β1;Bax = BCL2相关X蛋白;Bcl2 = B细胞淋巴瘤2;SD = 标准差 请点击此处以查看此图的放大版本。
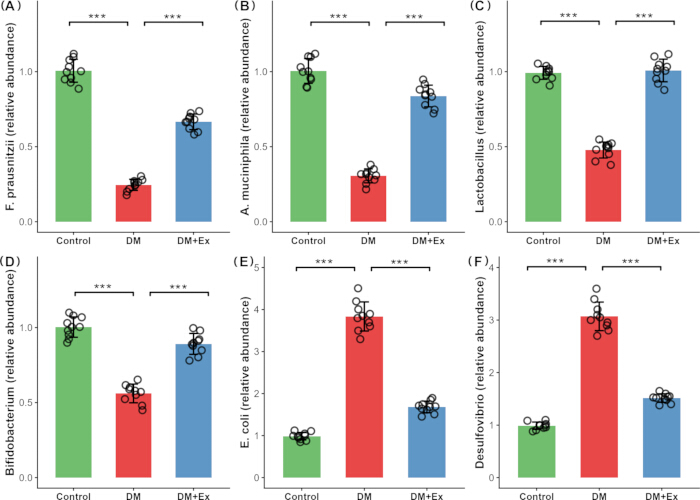
图4:跑步机运动对糖尿病小鼠肠道特定微生物类群相对丰度的影响。 (A)Faecalibacterium prausnitzii。(B)Akkermansia muciniphila。(C)Lactobacillus。(D)Bifidobacterium。(E)Escherichia coli。(F)Desulfovibrio。通过使用针对特定分类群的16S rRNA靶标,相对于总细菌16S rRNA进行qPCR检测,并以对照组为基准进行归一化,确定相对丰度。数据以均值±标准差表示(n = 每组10只)。*P < 0.05,**P < 0.01,***P < 0.001。缩写:SD = standard deviation。 请点击此处查看该图的放大版本。
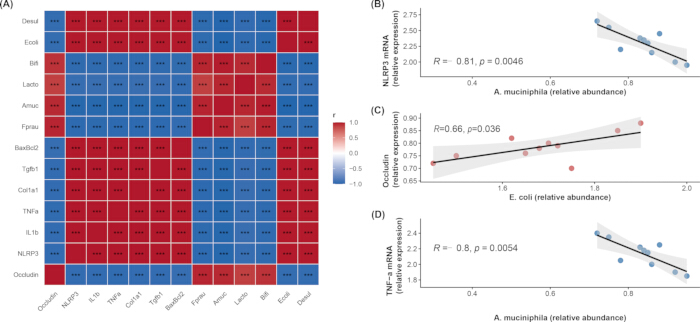
图5:选定肠道微生物分类群与心脏和结肠基因表达参数之间的相关性分析。 (A热图显示选定细菌类群与结肠之间的Spearman相关系数 Occludin mRNA,心脏 Nlrp3, Il1b,以及 Tnfa mRNAs, Col1a1 和 Tgfb1 mRNAs,以及 Bax/Bcl2 mRNA 比值。相关性分析使用了来自全部三个组的数据(n = 30)的偏斯皮尔曼相关性,控制实验组变量。颜色标尺范围从表示负相关的蓝色到表示正相关的红色。热图中的星号表示经过FDR校正后的显著性(*P < 0.05, **P < 0.01, ***P < 0.001). (B相关性 A. muciniphila 相对丰度与心脏 Nlrp3 DM+Ex 组中的 mRNA 表达水平。 (C) 相关性分析 E. coli 相对丰度和结肠 Occludin DM+Ex组中的mRNA表达。 (D) 相关性分析 A. muciniphila 相对丰度与心脏 Tnfa DM+Ex 组内的 mRNA 表达水平。每个点代表一只小鼠。为便于可视化,显示了线性回归线及其 95% 置信区间。缩写:DM = 糖尿病模型;Ex = 运动;FDR = 错误发现率 请点击此处以查看此图的放大版本。
| 基因/微生物 | 上游引物 | 下游引物 |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| 总细菌 (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
表1:用于实时定量PCR的引物序列。
讨论
本研究采用高脂饮食联合低剂量链脲佐菌素(STZ)诱导的糖尿病小鼠模型,评估运动相关的代谢、肠道、心脏及微生物变化。为期八周的跑台运动与改善的代谢参数、结肠Occludin mRNA表达升高、心脏Nlrp3炎性小体相关基因表达降低以及心肌炎症、纤维化和凋亡相关基因表达下降相关。运动还与选定肠道微生物分类群相对丰度的变化相关。总体而言,这些发现提示,运动相关的心脏转录变化可能与肠道屏障相关基因表达及选定肠道微生物分类群的改变有关,但尚未确立因果关系。
正如糖尿病模型所预期的那样,小鼠出现了明显的代谢紊乱,包括高血糖、高胰岛素血症、胰岛素抵抗和血脂异常,这与已确立的病理学范式一致16,17。为期8周的运动干预使空腹血糖水平降低了约34%,HOMA-IR降低了57%,表明胰岛素抵抗有所部分改善。在心肌水平上,运动与促炎因子(Tnfa、Il1b)、促纤维化因子(Tgfb1、Col1a1)以及凋亡相关因子(Bax/Bcl2)mRNA标志物的表达量下降40%–60%相关,这与先前研究中报道的有氧运动可激活AMPK并抑制NF-κB的结果一致18,19。然而,这些参数均未恢复至对照组水平,表明8周的干预不足以使已建立的糖尿病相关转录表型恢复正常,这可能与持续存在的糖代谢记忆效应有关20。
糖尿病小鼠结肠 Occludin mRNA 表达量降低了约 62%,提示肠道屏障相关基因表达减少。同时,心脏组织中 Nlrp3、Il1b 和 Tnfa 的 mRNA 表达量分别增加了 5.6 倍、6.5 倍和 5.1 倍。NLRP3 炎性小体是先天免疫系统的重要感受器,已被证实参与糖尿病性心脏病变。高血糖可通过活性氧(ROS)和硫氧还蛋白相互作用蛋白(TXNIP)通路增加心肌 Nlrp3 基因的表达,进而影响 IL-1β 和 IL-18 相关的炎症信号传导21,22。由于肠道屏障受损导致脂多糖(LPS)系统性易位增加,也被描述为 NLRP3 活化启动的上游刺激因素23。LPS 可通过 TLR4/MyD88/NF-κB 信号轴上调 Nlrp3 和前体 Il1b 的表达,提供炎性小体启动所需的第一个信号24。在本研究的糖尿病模型中,观察到大肠杆菌(E. coli)相对丰度升高,同时伴有结肠 Occludin mRNA 表达降低以及心脏炎性小体相关基因表达升高。这些并行变化与可能存在的肠道相关炎症通路相吻合,但尚不能证明 LPS 易位增加或存在因果关系的肠-心机制。
运动干预与结肠Occludin mRNA 表达水平升高相关,达到对照组值的约79%;而心脏组织中Nlrp3、Il1b和Tnfa的mRNA表达水平则分别下降至对照组值的约2.3、2.7和2.1倍。这些结果表明,运动后肠道屏障相关基因的较高表达与心脏炎症相关基因的较低表达之间存在关联。既往研究提出,运动可能通过增强黏液分泌、调控紧密连接蛋白以及改善肠道灌注来支持肠道屏障功能25,26,27,28。然而,本研究的数据仅限于mRNA水平的检测,因此未能证实这些功能机制。
靶向肠道微生物群分析显示,运动与糖尿病相关菌群相对丰度变化的部分逆转有关,特别是A. muciniphila的增加和E. coli的减少。这些相反的变化与先前报道的这些菌属在屏障维持及内毒素相关过程中的作用一致29,30,31。然而,由于仅对选定的菌群进行了定量,这些结果应被理解为运动相关特定细菌相对丰度的变化,而非肠道微生物群的全面重塑。
相关性分析进一步揭示了选定微生物分类群与转录标志物之间的关联。在运动干预组中,A. muciniphila 的丰度与心脏组织中 Nlrp3(R = −0.81,P = 0.0046)和 Tnfa(R = −0.80,P = 0.0054)的 mRNA 表达呈负相关。相反,E. coli 的丰度与结肠中 Occludin mRNA 的表达呈正相关(R = 0.66,P = 0.036;图 5C)。E. coli 与 Occludin mRNA 之间的正相关关系与最初的假设相反,表明选定的肠道微生物分类群与肠道屏障相关基因表达之间的关系无法用简单的线性模型解释。这些相关性与运动、特定微生物分类群及宿主转录标志物之间的关联一致,但并未确立因果关系。先前的研究表明,A. muciniphila 的减少可增加肠道通透性和代谢性内毒素血症32,同时有证据表明 NLRP3 参与糖尿病性心脏病变33,这些为上述关联提供了生物学背景。然而,本研究并未直接证明 A. muciniphila 的增加可增强黏液屏障功能、减少 LPS 转位或减轻 TLR4/NLRP3 介导的心脏炎症。
本研究存在若干局限性。首先,采用靶向16S rRNA qPCR检测六种代表性细菌类群,而非16S扩增子测序或宏基因组测序。因此,未能对肠道微生物群落结构及功能潜力进行全面评估,也无法评价更广泛的群落变化或功能通路。研究结果因而被描述为所选分类单元相对丰度的变化,而非肠道微生物组的重塑。其次,循环脂多糖(LPS)水平、血浆短链脂肪酸(SCFA)浓度以及肠道通透性未被直接测定,从而限制了对潜在机制的解释。第三,研究主要依赖mRNA表达数据,未在蛋白水平或功能层面验证肠道屏障完整性、炎症小体激活、纤维化及细胞凋亡。因此,结论仅限于转录水平的变化,未能确立其功能或蛋白水平的影响。第四,仅考察了一种运动强度和持续时间方案,限制了关于糖尿病相关心脏转录变化的最佳运动处方的推论。第五,仅使用雄性小鼠进行研究,研究结果可能不适用于雌性个体。第六,缺乏健康运动对照组,限制了区分糖尿病特异性反应与运动生理效应的能力。第七,未进行超声心动图检查和心脏组织病理学分析;因此,该模型被描述为糖尿病小鼠模型,而非确诊的糖尿病心肌病模型,所有心脏相关发现均局限于转录水平的变化。最后,尽管采用了控制分组的偏相关分析以减轻此问题,某些观察到的相关性可能反映的是组间差异,而非组内生物学关联。
综上所述,为期8周的跑步机运动与糖尿病小鼠的代谢改善以及心脏和结肠的转录变化相关。这些变化伴随着选定肠道微生物分类群相对丰度的改变,特别是A. muciniphila的增加和E. coli的减少。所观察到的关联性支持进一步研究运动、选定肠道微生物分类群、肠道屏障相关基因表达以及心脏炎性小体相关转录之间的关系。未来的研究需要结合更广泛的微生物组分析、短链脂肪酸(SCFA)定量、肠道通透性检测以及蛋白质水平或组织学验证,以检验所提出的机制并确立因果关系。此外,还需开展干预性研究,例如采用粪便微生物移植、补充A. muciniphila或抑制NLRP3,以确定所观察到的关联是否反映了因果通路。
披露
作者声明不存在可能影响本文报道工作的竞争性财务利益或个人关系。在本稿件及图表的准备过程中,未使用任何人工智能工具。
作者贡献:
H.H. 和 G.Z. 构思并设计了本研究。H.H.、G.Z. 和 Y.X. 进行了动物实验和样品采集。H.H. 和 G.Z. 开展了分子生物学实验并获取了数据。H.H. 和 Y.X. 进行了统计分析。H.H. 起草了手稿。H.W. 对手稿的重要知识内容进行了关键性审阅和修改。所有作者均阅读并批准了最终手稿
致谢
本研究未从公共、商业或非营利机构的资助方获得任何专项资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Accu-Chek 血糖仪及试纸 | Roche | Accu-Chek Active | 用于空腹血糖测定 |
| 全自动生化分析仪 | Hitachi | 7180 | 用于血清生化指标检测 |
| C57BL/6J 小鼠(雄性,8 周龄) | 北京维通利华实验动物技术有限公司 | SCXK (北京) 2021-0006 | 用于建立糖尿病小鼠模型的实验动物 |
| 柠檬酸盐缓冲液(0.1 mol/L,pH 4.5) | Sigma-Aldrich | C8532 | 用于配制链脲佐菌素溶液 |
| 小鼠胰岛素酶联免疫吸附测定(ELISA)试剂盒 | 武汉华美生物科技股份有限公司 | CSB-E05070m | 用于血清胰岛素水平测定 |
| 高脂饮食(60% 千卡来自脂肪) | Research Diets | D12492 | 用于糖尿病模型的诱导与维持 |
| 异氟烷 | RWD 生命科学 | R510-22-10 | 用于吸入麻醉 |
| 微量离心机 | Eppendorf | 5424 R | 用于样本离心 |
| NanoDrop 2000 分光光度计 | Thermo Fisher Scientific | ND-2000 | 用于评估 RNA 浓度与纯度 |
| 多聚甲醛(4%,溶于 PBS) | Servicebio | G1101 | 用于组织样本固定 |
| 磷酸盐缓冲液(PBS) | Servicebio | G0002 | 用于组织样本的洗涤与灌注 |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | 用于实时定量 PCR |
| PrimeScript RT 试剂盒(用于 qPCR) | TaKaRa(Takara Bio) | RR037A | 用于 RNA 的逆转录生成 cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | 用于从粪便样本中提取微生物 DNA |
| R 软件 | R 基金会 | 4.2.0 | 用于统计分析 |
| 实时 PCR 系统(StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | 用于实时定量 PCR 的扩增与检测 |
| 链脲佐菌素(STZ) | Sigma-Aldrich | S0130 | 与高脂饮食联合使用以诱导糖尿病小鼠模型 |
| 总胆固醇(TC)检测试剂盒 | 南京建成生物工程研究所 | A111-1 | 用于血清总胆固醇水平测定 |
| 跑台(电动,带倾角控制) | 中实迪创(北京) | ZS-PT-1 | 用于跑台运动干预 |
| 甘油三酯(TG)检测试剂盒 | 南京建成生物工程研究所 | A110-1 | 用于血清甘油三酯水平测定 |
| TRIzol 试剂 | Invitrogen (Thermo Fisher) | 15596018 | 用于从组织样本中提取总 RNA |
参考文献
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.