本研究描述了一种定量测定生物胺的方法 果蝇 利用高效液相色谱-电化学检测法(HPLC-ECD)分析脑组织,并依托物种的遗传可操作性 果蝇 结合高效液相色谱-电化学检测法(HPLC-ECD),该方法可帮助研究人员阐明脑部疾病中生物源性胺类变化的分子与遗传机制。
方法文章
使用高效液相色谱法研究生物胺的变化 果蝇 脑部疾病模型
* These authors contributed equally
本文内容
摘要
摘要
许多神经精神疾病和神经退行性疾病均以脑内神经递质紊乱为特征,包括生物源性胺类(BAs)多巴胺(DA)和5-羟色胺(5-羟基色胺;5-HT)水平的改变,以及其释放或再摄取过程的异常。这些神经化学变化与特定的关键行为表型相关,例如运动功能障碍、睡眠片段化以及应激反应改变等。由于主要的生物胺系统之间存在相互作用,疾病模型通常表现出多种胺类物质的协同变化,而非单一神经递质的孤立改变。因此,对多种生物源性胺类进行准确且同步的定量分析,对于解读行为学和遗传学研究结果至关重要。 黑腹果蝇 为建模此类疾病及神经递质变化提供了一个遗传上易于操作的系统,但生物胺在果蝇脑组织中的浓度极低,仅为纳摩尔至飞摩尔水平,且果蝇脑组织体积微小 果蝇 中枢神经系统使得其检测在技术上具有挑战性。本研究描述了一种利用高效液相色谱-电化学检测法(HPLC-ECD)检测和定量果蝇脑内多巴胺(DA)、5-羟色胺(5-HT)和章胺的方法。该方法已应用于基于人源α-突触核蛋白在多巴胺能神经元中过表达的帕金森病果蝇模型,以检测脑内DA和5-HT的变化。在α-突触核蛋白帕金森病模型中应用该方案结果显示,与对照组相比,多巴胺水平显著升高,而血清素水平无变化,这与早期多巴胺能代偿机制一致。该方法为从有限样本中进行多种生物胺的定量分析提供了一种灵敏、低成本且易于实施的技术手段 果蝇 组织。它还能够系统性地筛选与人类脑部疾病相关的单胺能通路的遗传修饰因子及候选治疗药物。
引言
单胺类神经递质,也称为生物源性胺(BAs),已知在动物分类群中调控多种关键的神经和行为特征,包括但不限于动机状态、睡眠、学习、记忆以及情绪调节1,2,3,4。多巴胺(DA)和5-羟色胺(5-羟基色胺;5-HT)等生物源性胺的失调,是帕金森病等神经退行性疾病以及精神分裂症等精神障碍的关键特征3,5。然而,疾病进展与大脑不同区域及神经元亚型中特定神经化学变化之间的关系尚未被全面阐明。回答此类问题需要一个不仅遗传上易于操作,而且能够重现与疾病相关的生理和行为表型的模型系统。Drosophila melanogaster 已成为实现这一目标的有力模型系统6,7。果蝇具有明确且已被充分表征的多巴胺能和5-羟色胺能神经元群体7,8,其调控这些系统的生物合成通路、转运蛋白和受体家族在功能上与其哺乳动物对应物具有保守性9。这种保守性为将果蝇中的神经化学发现转化为人类疾病的更广泛背景提供了机制基础。
果蝇在模拟神经及精神疾病方面的价值远不止于基因同源性。作为一种遗传学上易于操作的模式系统,果蝇中的工具可实现细胞特异性的基因与通路筛选,揭示能够加重或逆转疾病相关症状的因素,从而促进新型治疗靶点的发现。10此外,双元表达系统不仅可以靶向特定的单胺能神经元亚型,还能靶向特定的发育时间窗口。11,从而提供卓越的空间和时间精确性。果蝇模型系统还具有一系列可量化的行为,可用于评估疾病相关症状的再现情况,以及检验干预策略对这些症状的挽救效果7例如,果蝇中已建立的帕金森病遗传模型包括携带 Pink1 和 parkin 功能缺失性突变,以及过表达人源野生型或点突变型版本的果蝇 α-突触核蛋白(α-合成), SNCA12,13,14所有这些果蝇模型均表现出该疾病的一些最重要特征,包括运动功能障碍、多巴胺能神经元退化以及线粒体功能障碍。 α携带人类序列的果蝇中α-突触核蛋白的聚集15,16,17,18,19另一方面,神经发育障碍和多巴胺信号传导异常也被认为是精神分裂症等疾病潜在的病因之一20与此一致的是, 果蝇 已被用于模拟成年果蝇的类精神分裂症症状,包括活动过度、感觉反应异常以及觉醒程度降低21,22,23,24,25这些模型共同表明 果蝇 能够同时捕捉神经退行性疾病的进展过程以及精神疾病的发展起源。
将遗传模型中的行为变化与神经化学变化相关联,需要对生物胺(BAs)进行准确且可重复的定量测量。此外,在多种疾病中,单胺类神经递质的失调并不局限于单一的神经递质系统。在Pink1B9突变果蝇中,5-羟色胺含量降低,且在运动功能障碍出现之前,其5-羟色胺转运体活性已受损26。早期通过药物干预恢复5-羟色胺信号通路,可防止Pink1B9突变果蝇中多巴胺能神经元的继发性丢失。因此,5-羟色胺系统的改变可能先于多巴胺能病理变化,并在其发生发展中起因果性作用,而这种关系无法通过行为学检测或单一分析物测量被发现。同样,在精神分裂症模型中也观察到5-羟色胺系统的改变22,27,28。此外,Drosophila中的主要生物源性胺类以部分冗余和部分拮抗的方式相互作用,导致一个系统的状态无法可靠地反映其他系统的状况29。因此,在这些模型中对单个生物胺进行定量分析至关重要。
生物源性胺是一类具有电化学活性的单胺类物质(如儿茶酚胺、吲哚胺),在生物组织中的浓度为低纳摩尔至飞摩尔水平,因此其实现同步检测在技术上具有较高难度30,31因此,要解答关于疾病中BA变化的遗传与分子基础的问题,就需要一种能够分辨多种结构相似胺类的分析方法。该方法还必须能够在可获取的微量组织样本中检测到具有生物学意义的浓度。 果蝇 中枢神经系统样本制备。高效液相色谱法(HPLC)联用电化学检测器(ECD)能够满足这些要求。HPLC 是一种分析技术,可根据样品中不同分子的理化特性实现其分离。将色谱系统与电化学检测器联用,可实现对电化学活性分析物(如生物胺)的快速、高灵敏度分析。电化学检测器的工作原理是在分析物从色谱柱流出时诱导其发生氧化反应,将电极表面的相互作用转化为可量化的电信号。其他技术(如质谱法)可能提供相当的选择性和灵敏度32,33然而,HPLC-ECD 每个样品的检测成本低且结果可靠,使其成为生物学研究实验室中常规、便捷地检测生物胺的理想方法。将该技术与以下方法的强大功能相结合: 果蝇 遗传学能够快速、直接地分析胺能系统遗传与分子基础的变化。
本研究采用基于遗传性帕金森病的模型 α过表达-syn以提供一种用于测定BA含量差异的方案 果蝇 脑组织样本。本文还描述了如何利用该方法研究脑部疾病的分子基础。
方案
本工作中提供的原始数据可访问 https://doi.org/10.6084/m9.figshare.33868519 获取。
所用试剂和设备见材料表。
1. 果蝇的同步化与收集
- 在采集前3天,将目标果蝇置于恒定的12小时光照与12小时黑暗循环条件下,于25 °C恒温环境中进行同步化培养。为确保每种基因型/条件有足够的果蝇数量,每5只果蝇为一个生物学重复,共准备3–9个生物学重复。
- 采集当天,将1.5 mL离心管置于干冰上。每种果蝇基因型/条件使用一个独立的离心管。通过漏斗将果蝇直接倒入离心管中,实现快速冷冻。
注意:直接在干冰上采集果蝇可避免麻醉可能带来的不良影响,并允许在一天中的不同时间点进行采集。此时,样品可长期保存于-80 °C,或立即进行后续处理。为避免昼夜节律变化带来的混杂效应,实验组与对照组应同时采集。在本研究的代表性结果中,果蝇在开灯后3小时进行采集。
2. 大脑解剖与样品制备
- 为组织解剖做准备,使用低矮容器(如移液器吸头盒的盖子),并在其中放入冰块。将一个直径30 mm的培养皿置于其上,作为解剖平台。在冰上进行组织解剖,尤其是在使用带有加热光源的体视显微镜时,可防止组织降解。
- 在培养皿中加入200 µL预冷的1×磷酸盐缓冲液(PBS),并在体视显微镜下使用精细、锋利的镊子对每只果蝇进行解剖。
- 解剖脑组织时,用一对镊子夹住果蝇腹部,将其浸入PBS液滴中。在不松开果蝇的情况下,夹住头部与身体连接处,将头部取下。
- 身体和头部均会漂浮在PBS上。将身体从液滴中移除并丢弃。用镊子夹住头部的喙部,将其重新推入PBS液滴中。
- 使用另一对镊子夹住眼部边缘以固定头部,并移除喙部。
- 用镊子夹住因移除喙部而形成的开口周围的组织并向外拉,脑组织应随之暴露出来。
- 轻轻清理脑组织,去除任何头部残留物,因为残留组织可能影响定量结果。同时,每次仅从干冰上的离心管中取出一只果蝇进行操作,以防止样品降解。
- 使用移液器吸头将含有解剖所得脑组织的少量液体直接转移至装有预冷1×PBS的离心管中。重复此步骤,直至每个生物学重复样本中包含总共五只脑组织。为防止脑组织粘附在吸头上,可先用解剖板中的溶液对吸头进行预处理,即反复吹打数次。
- 解剖完成后,在2,000 × g 条件下短暂离心10秒,使脑组织沉降至管底。
- 小心地将1×PBS替换为50 µL预冷的0.2 N 高氯酸(PCA)。
警告:PCA具有强腐蚀性。应在通风橱中预先配制分装液,并在操作时穿戴适当的个人防护装备,包括耐化学腐蚀护目镜、重型氯丁橡胶手套和橡胶围裙。
注意:也可直接将脑组织收集于50 µL的0.2 N PCA中。若采用此方法,应使用针头转移脑组织,以避免PBS的非预期转移。 - 使用超声匀浆器对组织进行匀浆。控制超声振幅以避免产热。此处采用10 kHz频率,以短脉冲(3秒)间歇工作,每次脉冲后置于冰上冷却3秒。
- 在15,000 × g 和4 °C条件下离心15分钟。将40 µL上清液收集至预先置于冰上的新离心管中。保持样品处于PCA环境中可防止生物胺(BA)氧化。此步骤中应避免收集到组织碎片,因其可能堵塞系统。若仍有组织碎片混入,可使用注射器滤器过滤,但可能导致样品回收率下降。
- 在上机检测前立即加入8 µL的1 M醋酸钠溶液。此举可使样品pH接近流动相pH值(3.5),从而在样品通过检测器时保持峰形良好。样品现已准备好进样。
3. 流动相的制备
- 在玻璃瓶中加入 870 mL 超纯水,配制 1 L 柠檬酸-醋酸盐流动相。
- 向玻璃器皿中加入 5.61 g 三水合醋酸钠和 8.79 g 无水柠檬酸,搅拌至完全溶解。确保 pH 值为 3.5;若不符合,需相应调整。
- 在通风橱中加入 130 mL HPLC 级甲醇。
- 加入 130 mg 水合辛烷-1-磺酸钠,充分混匀。
- 在搅拌条件下,用 0.2 µm 滤膜对溶液进行真空过滤,持续搅拌 1 小时。搅拌有助于溶液中截留的气体逸出,而真空则有助于气体释放和过滤过程。
- 将溶液置于超声浴(42 kHz)中超声处理 30 分钟,以去除气泡。
- 用铝箔包裹容器,并正确标记。
注意: 试剂纯度对保留时间影响显著。使用 HPLC 级试剂有助于保持多次运行之间的一致性。重新配制流动相时使用同一批次的试剂,也有助于维持结果的一致性。
4. 标准品的制备
- 配制标准品时,分别称取10 mg的OA、DA和5-HT于称量纸上。
- 将称好的物质分别转移至独立的125 mL玻璃瓶中,用于配制单个储备液。重新称量空纸以计算实际转移至瓶中的OA、DA或5-HT的准确质量。
- 计算所需溶剂体积,使分析物浓度达到100 ng/µL。若完全转移了10 mg,则使用100 mL溶剂。对于OA和DA,使用0.1 M盐酸作为溶剂;对于5-HT,则使用0.1 M乙酸。
- 向标准品溶液中添加2Na-EDTA,使其终浓度为1 mg/mL。充分混匀至完全溶解。用铝箔包裹瓶子以避光,并在4 °C下保存。
注意:在上述条件下,标准品可保存长达3个月。
5. 校准溶液的制备
注意:为制作标准曲线,需配制三种不同浓度的混合生物碱(BAs)标准品。本示例中,使用浓度分别为 0.03 ng/µL、0.01 ng/µL 和 0.001 ng/µL 的工作液。每种溶液进样 10 µL,对应的标准品上样量分别为 0.3 ng、0.1 ng 和 0.01 ng。
- 通过将1 µL的每种100 ng/µL BA标准品加入97 µL的0.02 M乙酸-1 mg/mL 2Na-EDTA中,配制1 ng/µL的储备混合液。充分混匀。
- 取2 µL的1 ng/µL储备液,加入64.6 µL的0.02 M乙酸-1 mg/mL 2Na-EDTA中。充分混匀。此即为0.03 ng/µL的工作溶液。
- 取2 µL的1 ng/µL储备液,加入18 µL的0.02 M乙酸-1 mg/mL 2Na-EDTA中。充分混匀。此即为0.1 ng/µL的工作溶液。 本方案中不直接注射该溶液,仅用于系列稀释。
- 取4 µL的0.1 ng/µL储备液,加入36 µL的0.02 M乙酸-1 mg/mL 2Na-EDTA中。充分混匀。此即为0.01 ng/µL的工作溶液。
- 最后,取4 µL的0.01 ng/µL储备液,加入36 µL的0.02 M乙酸-1 mg/mL 2Na-EDTA中。充分混匀。此即为0.001 ng/µL的工作溶液。
注意: 将这些标准品置于避光容器中保存。所有工作液标准品均需新鲜配制。
6. 注射装置的设置与运行
注意:所有高效液相色谱系统均基于相同原理运行。然而,硬件差异可能对保留时间和运行时长产生显著影响。此外,电化学检测器(ECD)的灵敏度将导致不同的检测限。这些参数需通过实验经验确定。本研究采用配备反相C18色谱柱的高效液相色谱(HPLC)系统。
- 开启高效液相色谱(HPLC)设备,包括泵和电化学检测器。将流速设为 100 µL/min,并使电化学检测器达到稳定的基线,此过程应持续 10 至 30 分钟。
- 当样品准备就绪可进行进样时,将流速调整为 500 µL/min,让系统稳定 5 分钟。在此期间,用超纯水冲洗 20 µL Hamilton 注射器三次。
- 将 10–20 µL 样品吸入注射器中。具体体积取决于样品环的容量,请参考样品环的使用手册以获取更多信息。
- 进样时确保注射器内无气泡存在。任何滞留的气体都会干扰流动相的正常泵送或电化学检测(ECD)的测量结果。若发现气泡,应将样品退回并重新装填注射器。
- 将针头完全插入进样口。将进样阀手柄置于“load”位置,推动注射器推杆直至所有液体完全排出。然后将进样阀手柄切换至“inject”位置,运行开始,在此条件下运行应在 30–35 分钟内完成。
- 若还有更多样品待运行,每次进样前应让系统在 500 µL/min 流速下继续运行 10–15 分钟。
注意: 若电化学检测信号出现持续波动,请检查系统压力是否发生变化。系统中滞留的气体会导致流速不均和高于正常水平的背景信号。可通过高速冲洗新鲜溶液并绕过电化学检测器的方式对系统进行排气,以解决此问题。
7. 数据检索与分析
注意:目前有多种可用的模数转换器及软件可用于采集和分析此类数据。它们在数据处理方式上可能有所不同,但均遵循基本相同的原则。本研究分别使用了数据转换软件以及色谱数据采集与分析软件。
- 由电化学检测器(ECD)捕获的因BA氧化引起电流/电压变化,将通过模数转换器进行转换。BA浓度与电流/电压的变化成正比。
- 利用BA标准样品运行所得电流-时间曲线下的面积,绘制校准曲线。数据将以电流/电压(nA或mV)对含量(ng)的线性回归图表示。
- 根据线性方程,计算样品中BA的浓度。
结果
不同生物化合物在不同电压下发生氧化反应。在脑组织等复杂基质中,选择合适的电化学检测(ECD)电位可实现更纯净、更准确的定量分析。本文选用两种不同的电压,以展示该因素对辛胺(OA)、多巴胺(DA)和5-羟色胺(5-HT)鉴定与定量的影响 果蝇 脑组织样本。使用950 mV,我们能够轻松检测这3种胺类物质的混合物(图1A),而在650 mV时仅观察到多巴胺和5-羟色胺(图1B)。这与这些化合物的氧化电位一致:OA 为 900–1000 mV,DA 和 5-HT 为 600–700 mV。OA、DA 和 5-HT 的保留时间分别为 6 分钟、11 分钟和 29 分钟。在 950 mV 或 650 mV 条件下,对 0.01 ng、0.1 ng 和 0.3 ng 三种不同含量进行定量,可得到相似的校准曲线图1C,D,分别)。这些曲线展示了在每个检测电位下,该分析方法在测试浓度范围内对每种分析物的线性关系和灵敏度。
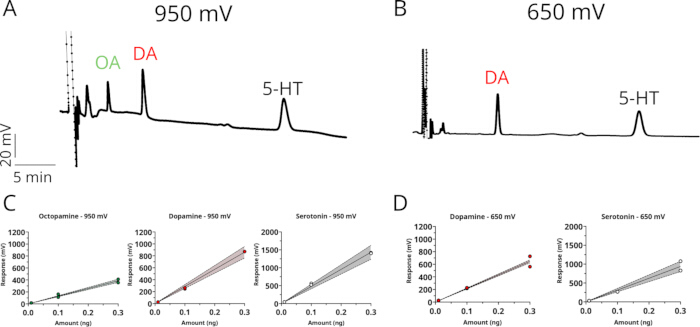
图 1:在两个氧化电位下通过高效液相色谱-电化学检测法(HPLC-ECD)检测和定量生物胺。(A,B)代表性色谱图,显示在施加电位为(A)950 mV 或(B)650 mV 时检测到的章胺(OA)、多巴胺(DA)和5-羟色胺(5-HT)标准品的分离情况。纵轴:响应值(mV);横轴:保留时间(每格5分钟,由比例尺指示)。(C,D)各分析物在(C)950 mV 和(D)650 mV 下的校准曲线,绘制峰响应值(mV)与标准品含量(ng;0.01–0.3 ng)的关系。实线表示线性回归拟合,阴影带表示95%置信区间,实心/空心圆圈表示每个浓度两次独立的标准品进样结果。请点击此处查看该图的放大版本。
脑组织提取物等复杂样品通常会产生显著的生物学背景干扰。根据此处描述的实验方案,我们旨在确定电极电压对脑组织样品中生物胺(BAs)检测与定量的影响。在完成两天完整的节律同步后,于开灯时收集成年雄性果蝇,将其脑组织在冰冻的磷酸盐缓冲液(PBS)中解剖并立即置于含0.2 N高氯酸(PCA)的冰上。组织经裂解和离心后,取上清液用1 M醋酸钠溶液平衡,随后进样10 µL。当电极电位设定为950 mV时,可观察到章胺、多巴胺和5-羟色胺在相应保留时间处的色谱峰(图2A,黑色色谱线)。通过向样品中添加已知含量(每种0.01 ng)的各生物胺进行加标分析,进一步确认了这些峰的身份(图2A,红色色谱线)。然而,在目标分析物附近还出现了多个额外峰,可能干扰定量分析。将电极电位调整为650 mV可解决该问题,但会牺牲章胺的检测能力(图2B)。与图1结果一致,在650 mV时章胺(OA)未被有效分离,这与其较高的氧化电位相符。
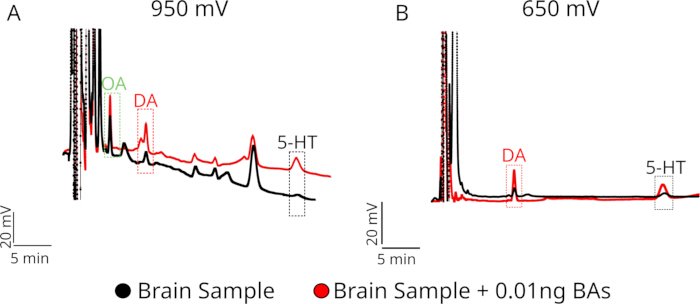
图2:通过在两个氧化电位下进行峰增强(加标)鉴定脑样本中的内源性生物胺。(A,B)脑组织提取物在施加电位为(A)950 mV 或(B)650 mV 时,采用高效液相色谱-电化学检测法(HPLC-ECD)分析的代表性色谱图,显示加标前(黑色曲线,“脑样本”)和加标后(红色曲线,“脑样本 + 0.01 ng BAs”)的结果;加标物为已知量(0.01 ng)的章胺(OA)、多巴胺(DA)和5-羟色胺(5-HT)标准品。虚线框表示各分析物的保留时间窗口。纵轴:响应值(20 mV,由标尺指示);横轴:保留时间(5 min,由标尺指示)。请点击此处查看该图的放大版本。
采用相同方案,我们使用高效液相色谱-电化学检测法(HPLC-ECD)检测表达特定基因的果蝇脑组织中生物胺含量的差异 α-突触核蛋白在多巴胺能神经元中(TH-T2A-GAL4) > UAS-SNCA.J34),一种帕金森病的果蝇模型。先前的研究使用基于基因突变的帕金森病模型 Pink1 已发现0-3日龄果蝇的多巴胺水平存在差异35此处使用3至6日龄的果蝇来比较多巴胺和5-羟色胺水平。与对照组果蝇相比,帕金森病果蝇的多巴胺水平显著升高(图3A),而血清素水平保持不变(图3B)。在此模型中,早期多巴胺水平升高可能反映了帕金森病症状出现之前的代偿机制(详见 Blesa J 等36).
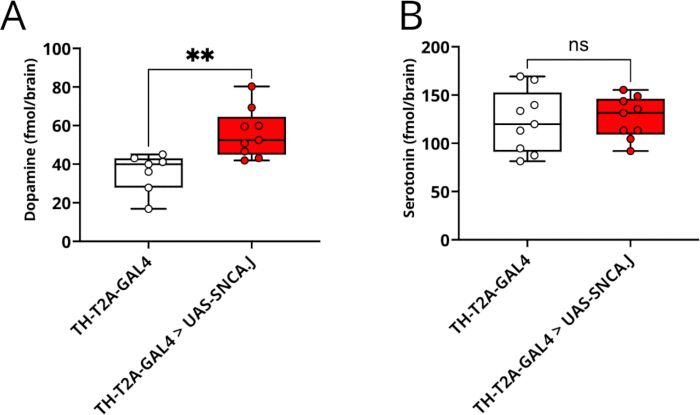
图3:多巴胺和5-羟色胺水平的定量分析 果蝇 采用高效液相色谱-电化学检测法建立帕金森病模型全脑组织中的多巴胺水平(A)和血清素(B),以 fmol/脑 表示,在对照组(TH-T2A-GAL4,n = 7)中 A n = 9 B) 和帕金森病模型(TH-T2A-GAL4 > UAS-SNCA.J,n = 9)果蝇。在此模型中,密码子优化的人源 αα-突触核蛋白序列(SNCA.J)在TH-T2A-GAL4驱动子调控下于多巴胺能神经元中特异性过表达。数据以箱线图(中位数、四分位距及最小值–最大值范围)表示,并叠加单个数据点,每个数据点代表一个生物学重复(n),由5个 pooled 脑组织组成。统计学显著性采用非配对t检验确定 t检验 (**p < 0.01,ns,无显著性差异。 请点击此处以查看此图的放大版本。
讨论
高效液相色谱(HPLC)是一种高度可定制的分离技术。因此,本实验方案的许多步骤均可进行调整。可靠的结果取决于对这些调整的仔细关注和一致性。固定相与流动相的相对极性决定了分离模式:正相色谱使用极性固定相与非极性流动相,而反相色谱则使用非极性固定相与极性流动相。生物组织中生物胺的分析通常采用反相条件。本研究使用柠檬酸-醋酸盐流动相,并以甲醇作为主要溶剂;然而,已有研究成功采用磷酸盐缓冲液并以乙腈作为溶剂进行类似测定22,26,35。因此,缓冲液的组成可根据所需的峰分辨率和峰形进行调整。改变流动相的组成可能会改变洗脱时间37,从而导致峰重叠,使定量分析变得困难甚至无法进行。为解决此类问题,调节pH值是最有效的手段,因为分析物与色谱柱的相互作用在很大程度上取决于其pKa值38。
胺类物质可能发生氧化降解,因此组织的采集和处理是本实验方案中的关键步骤。将样品采集于干冰上,并在处理前保存于 -80 °C 条件下,是至关重要的环节。一旦完成解剖,样品必须在酸性条件下迅速进行匀浆,以防止生物胺(BAs)的分解30,39,40。在此背景下,若无法获得高氯酸(PCA),可考虑使用其他酸作为替代。甲酸(一种非易爆的PCA氧化剂替代物)与甲醇的组合也可用于提取;然而,我们尚未在黑腹果蝇(Drosophila)脑组织样品中测试该方法41。
检测器的选择决定了可检测的物质及其灵敏度;常见的选项包括紫外/可见光检测器、荧光检测器和质谱检测器,每种均适用于不同性质的分析物及灵敏度需求。电化学检测特别适用于儿茶酚胺类和吲哚胺类物质,如多巴胺(DA)和5-羟色胺(5-HT),这些物质可在工作电极上直接氧化,产生与浓度成正比的电流。相较于荧光检测和紫外检测等其他检测方法,电化学检测被广泛认为操作更简便、结果更准确;而后者通常需要在样品分析前进行更多预处理步骤,因而更为复杂或耗时42,43高效液相色谱-电化学检测法(HPLC-ECD)具有极高的灵敏度,可检测生物样品中飞摩尔浓度水平的分析物44. 鉴于单个 果蝇 脑组织仅能提供极少量的样本,因此这种灵敏度至关重要。关键的是,高效液相色谱-电化学检测法(HPLC-ECD)还能够从单一样本中同时定量多种生物源性胺类物质,这意味着可获得完整的单胺类物质谱型 果蝇 中枢神经系统样本可在单次分析运行中完成检测。
该方法确实存在一些固有的局限性,从而限定了其适用范围。尽管该方法具有很高的灵敏度,但从 Drosophila 样本中定量检测生物胺(BAs)仍需合并多个脑组织样本。因此,目前尚未见单个果蝇脑组织的检测报道,其他方法同样存在这一限制45。另一个缺点是电极污染。随着氧化副产物在电极表面形成一层薄薄的绝缘层,电极污染会随时间推移而发生,导致灵敏度下降并引起信号漂移46。在使用较高氧化电压时,这一问题在我们的结果中尤为明显(图2)。为校正此类变化,可在数次进样后重复进样标准品以监控系统状态。每次流动相或检测电位发生改变时,也需重新进样标准品,以校正观察到的峰位移。定期清洁电极有助于缓解这一问题。此外,高效液相色谱-电化学检测法(HPLC-ECD)所提供的是一种对送检组织中胺类物质含量的总体性、静态测量结果,无法提供这些胺类在脑内具体分布位置的信息,也无法揭示特定神经元群体的相对贡献。在标准电化学检测条件下,非电活性化合物(如GABA和谷氨酸)无法被检测,需采用其他独立的检测方法。更重要的是,HPLC-ECD是一种靶向性方法,完全依赖于与已知且特征明确的标准品保留时间的比对,因此无法用于鉴定可能与行为表型相关的未知分子。若要进行非靶向性的神经化学物质与行为相关性的发现研究,液相色谱-串联质谱(LC-MS/MS)等技术更为合适,但成本更高。
在这些范围内,HPLC-ECD 可解决一系列定义明确且具有生物学意义的科学问题 果蝇 疾病模型。该方法能够确定基因型或治疗干预是否改变了稳态胺类水平,以及此类变化是特异性影响某一神经递质系统,还是对整体单胺谱产生影响。它还可追踪发育阶段或疾病进展过程中的神经化学变化,为行为表型出现前的无症状期提供生化状态证据。47它也适用于评估药理学或遗传学干预是否能够使特定模型中的胺类递质缺陷恢复正常、过度纠正或未能挽救该缺陷。26解决诸如每种胺在哪个阶段发生转变、固定一个系统是否会干扰另一个系统、以及发育过程中的干扰是否会留下持久的神经化学痕迹等问题,正是这种高通量、高灵敏度、多胺类检测方法的设计目的。该方法可与现有的行为学检测和遗传学工具结合使用 果蝇高效液相色谱-电化学检测法(HPLC-ECD)提供了一种定量的生化分析层面,显著拓展了这些疾病模型的解释范围。
披露
作者声明无利益冲突。
致谢
本工作由美国国立卫生研究院资助项目 R00NS133470(S.H.)支持。本内容完全由作者负责,不一定代表美国国立卫生研究院的官方观点。R.V.Z. 受智利国家研究与开发署(ANID)学术安置资助(SIA)N°85250142 支持,J.M.C. 受智利国家科学技术研究基金(FONDECYT)1231556 项目支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| (±) 辛胺盐酸盐 | Sigma Aldrich | 770-05-8 | |
| 500 mL 滤器单元 | Thermo Scientific | FB12566504 | 0.2 µm aPES 膜,75 mm 直径 |
| 冰醋酸 | Fisher Scientific | 64-19-7 | |
| 无水柠檬酸 | USB | 77-92-9 | |
| Clarity 色谱分析软件 | Data Apex | Version 10.1 | |
| Colibrick 数据转换器 | Data Apex | A/D 转换器 | |
| 多巴胺盐酸盐 | Sigma Aldrich | 62-31-7 | |
| Dumont #5 镊子(Dumoxel Biology) | Fine Science Tools | 11252-30 | 解剖镊 |
| EDTA 二钠盐二水合物晶体(2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | 反相分离柱 |
| EMD Milipore Synergy UV-R 超纯水(一级水) | Milipore | ||
| Hamilton 25 µL 进样器(22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | HPLC 仪器 | |
| 盐酸 | Sigma Aldrich | 7647-01-0 | |
| 轻型组织擦拭纸 | VWR | 82003-820 | |
| 色谱级甲醇 | Fisher Scientific | 67-56-1 | 0.2 微米过滤 |
| 高氯酸,70% 水溶液 | Fisher Scientific | AC424032500 | 用于配制 0.2 N 高氯酸溶液 |
| 5-羟色胺盐酸盐 98% | Fisher Scientific | 153-98-0 | |
| 辛烷-1-磺酸钠水合物,色谱级,99+% | Thermo Scientific | 5324-84-5 | |
| 三水合乙酸钠晶体 | J.T Baker | 6131-90-4 | |
| Bransonic 超声波清洗机 1510 | Branson | Model #: 1510R-MT | 超声仪 |
| Fisherbrand 超声波处理器 | Fisherbrand | Model FB50 | 配备 CL18 探头 |
参考文献
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
重印与许可
本文已发表
视频即将推出