本方案提供了利用荧光微管标记物对微管动态进行活细胞共聚焦成像的指南 果蝇 幼虫感觉神经元
本文内容
摘要
摘要
Drosophila 幼虫的 IV 类感觉神经元位于表皮下方,其特征是具有高度分支的树突树状结构,这些结构在幼虫发育过程中以二维等向方式扩展。这些树突树状结构的生长由树突末端尖端的随机生长、收缩和暂停过程驱动。为了验证树突尖端动态由微管动态驱动的假设,已开发出在树突内对荧光标记的微管进行成像的实验方案。该方法能够利用共聚焦显微镜观察 IV 类感觉神经元细小末端树突中的微管动态。该方案的设计旨在成像过程中保持树突树状结构的形态,同时允许微管与膜标记物共同可视化。本文描述了用于准备 Drosophila 幼虫以进行活体成像以及在树突中观察荧光标记微管的操作步骤。因此,该方案提供了一种在保持与膜共标记兼容的同时,研究细小末端树突中微管行为的方法。
引言
神经元是高度极化的细胞,其细胞骨架决定了细胞的结构。微管是神经元细胞骨架的组成部分之一,不仅提供结构支持,还作为长距离运输货物的轨道1,2微管细胞骨架对树突发育至关重要3. 树突通过分支、延伸和收缩的随机过程生长4. 果蝇 幼虫树突分支(da)神经元是一种强大的 体内 用于研究树突形态发生的模型系统。这些感觉神经元根据树突复杂性的递增分为四类(I–IV)3,5IV类da神经元具有复杂且高度分支的树突,可作为多模态伤害感受器发挥作用6,7,8这些神经元的树突沿着腹部节段形成具有典型特征的感受野,并位于透明角质层的正下方。9,10。这种解剖结构,加上其遗传操作的便利性 果蝇使得IV类da神经元成为可视化树突发育的合适系统 体内 具有高空间和时间分辨率。在发育过程中,随着树突的生长,其顶端在生长、收缩和暂停状态之间随机转换11尖端的生长与缩短在动力学上与微管的生长与缩短具有许多相似之处12因此,在这些细胞中观察微管动态具有重要意义。
一种常见的可视化活细胞中微管动态的方法,包括其中的 果蝇 幼虫中,对EB1和EB3等荧光标记的末端结合蛋白进行成像13,14,15,16,17,18然而,EB-GFP信号的解读可能存在歧义。例如,一个远离细胞体向远端移动的EB-GFP斑点,可能代表向外延伸的微管正端,也可能代表向内生长但沿远端方向滑动的微管的正端。尽管EB-GFP主要标记生长中微管的正端,但它也可以标记正在生长的负端。19,导致额外的不确定性。对微管进行直接可视化观察可减少这些不确定性。
与EB-GFP方法相对的另一种方案 是使用GFP-微管蛋白直接标记微管20,21。然而,荧光标记的微管蛋白虽能有效标记近端树突22,却难以标记远端树突23。荧光微管蛋白的另一个难点在于,可溶性微管蛋白的高浓度使得在终末树突等狭窄结构中难以分辨单个微管。因此,在正常生理条件下对完整神经元中的微管动态进行成像仍然具有挑战性。
Drosophila 微管相关蛋白(MAP)Jupiter 是哺乳动物 Tau、MAP2 和 MAP4 的结构同源物,已被 用于标记 Drosophila 组织(包括卵巢和胚胎)中的微管24。在 IV 类树突中,mCherry-Jupiter 和 sfGFP-Jupiter 已被用于定量近端分支中的微管22,25,26。本方案描述了一种活体成像方法,利用表达荧光标记 Jupiter 微管结合结构域的果蝇品系,实现对 Drosophila IV 类神经元远端树突中神经微管行为的高分辨率、时间序列观察。
方案
本研究使用了黑腹果蝇(Drosophila melanogaster),这是一种无需机构动物伦理审批的无脊椎动物模型。本实验方案所用工具见材料表。
1. 实验果蝇品系的构建
- 建立杂交以获得目标亲本品系。利用GAL4/UAS双元系统,在表达GAL4的IV类树突状分支(da)神经元中驱动mNeonGreen(mNG)-Jupiter ppk 启动子
- 将纯合UAS-mNG-Jupiter品系的处女雌蝇与纯合 ppk-GAL4; CD4tdTomato 品系。获取同时携带两者的 F1 后代 ppk-GAL4;CD4tdTomato 和 UAS-mNG-Jupiter
注意: 同时携带的F1代后代 ppk-GAL4; CD4tdTomato 和 UAS-mNG-Jupiter 在 IV 类 da 神经元中强烈表达 mNG 和 CD4tdTomato。使用至少三次独立的遗传杂交所得的幼虫进行成像,每次杂交至少成像六只幼虫。 - 将杂交样本置于维持培养瓶中用于交配,在瓶壁上涂抹少量酵母糊。于 25 °C 2–3 天。
注意: 喂食酵母可促进产卵和排卵。 - 将一勺酵母放入小烧杯中,加入几滴水,制备酵母糊。用刮刀充分搅拌,必要时逐滴加水,直至形成半固体状的糊状物。
- 每天将果蝇转移至含有新鲜酵母糊的新培养瓶中。
注意: 确保酵母糊既不要太软也不要太稀。如果过于柔软,果蝇可能会被粘住。更多方法学细节,请参见 Hales 等27 和 Roote 与 Prokop28.
2. 在葡萄琼脂平板上产卵、卵的收集及幼虫分期
- 在1 L耐微波烧杯中加入376 mL蒸馏水、126 mL葡萄汁、15 g琼脂和6 g蔗糖,配制约0.5 L葡萄琼脂培养基。
- 微波加热3–5分钟,每隔1分钟摇动一次,直至琼脂完全溶解。待混合物稍冷却后,加入10 mL乙醇和5 mL乙酸。
- 充分混匀后将培养基倒入60 mm培养皿中,制备葡萄琼脂平板。提前制备平板,倒置叠放于培养皿套中,4 °C保存,并在2周内使用。使用前将平板预热至室温。
- 从维持培养的瓶子中转移约150只果蝇(包括50只雄蝇和100只雌蝇)至产卵笼中。
- 用一个含有少量酵母糊的60 mm葡萄琼脂平板覆盖产卵笼。
- 在25 °C条件下让果蝇在含酵母糊的葡萄琼脂平板上产卵2小时。更换为新的含酵母糊葡萄琼脂平板,继续产卵2小时。
- 提供第三个含酵母糊的60 mm葡萄琼脂平板,继续让果蝇产卵2小时。
- 将第三个平板作为实验平板,弃去前两个平板,以减少胚胎年龄的异质性。
注意: 初次收集的卵通常包含不同发育阶段的胚胎,因为雌性Drosophila可在生殖道中保留受精卵数小时后才产出。弃去初始平板有助于获得更同步化的卵。 - 若需在产卵后(AEL)进行分期成像,将实验平板上的胚胎在25 °C继续培养至目标发育阶段:1期为24小时;2期为48小时;3期为72小时;4期为96–120小时。
3. 清洗幼虫
- 用 5 mL 的 5% 蔗糖溶液清洗幼虫,随后用 5 mL 去离子水(dH₂O)冲洗,以去除体表的酵母残留物并防止脱水。
- 使用 3/0 号画笔将通常三至四只幼虫转移至 35 mm 细胞培养皿的皿盖中。用实验室纸巾干燥幼虫,以除去多余水分。
4. 麻醉
- 在麻醉前清洁并干燥幼虫。
- 提前准备好麻醉装置(图1)。将细胞培养皿置于纸板箱围成的屏蔽结构内,以减少培养皿上方的空气流动,从而降低异氟烷麻醉的干扰。
注意:异氟烷为挥发性麻醉剂。操作和使用时应确保实验室具备适当的通风条件,并遵循机构规定的化学品安全规程。将定量的异氟烷加入固定在35 mm细胞培养皿内的麻醉棒中,该培养皿作为挥发储液槽,用于使幼虫固定。 - 将装有清洁、干燥幼虫的细胞培养皿盖置于细胞培养皿上方。
- 对幼虫进行2–3分钟的麻醉。
注意:异氟烷的用量及麻醉持续时间取决于幼虫的发育阶段和数量,需通过实验经验确定。例如,使用10–20 µL异氟烷处理2分钟,可使三只72小时龄的幼虫麻醉约30分钟。无论幼虫处于哪个发育阶段,初始固定剂量建议为每只幼虫每分钟5 µL异氟烷。
5. 封片
- 在干净的玻璃显微镜载玻片上用凡士林制作一个矩形或圆形的围栏,并在其中一个角落留出一个小缝隙(图1C)。使用海娜染料注射器在载玻片上绘制该围栏。
- 用画笔将麻醉后的幼虫转移至围栏内。将幼虫背面向上置于一滴卤碳油700中进行封片。
- 将一块1.5号盖玻片覆盖在幼虫上方。轻轻按压,直到凡士林密封盖玻片与载玻片之间的缝隙,并使幼虫略微压平贴附于显微镜载玻片上。
- 从步骤5.2所述的转移操作开始,立即对样品进行成像,持续时间可达30–45分钟。如果在膜通道中观察到起泡或神经元损伤(包括树突断裂),则应停止成像;此时应使用更低剂量的麻醉剂。
注意:放置盖玻片后,应确保卤碳油中无气泡存在。为获得高质量的动态视频并尽量减少漂移,必须避免气泡。为尽量减少气泡形成,可在凡士林围栏的一个角落留出小缝隙,以便在放置盖玻片时空气逸出。 如有需要,可用细画笔 将该缝隙密封。
6. 显微镜观察与图像采集
- 使用配备50 µm针孔和完美对焦系统的转盘共聚焦显微镜,对幼虫样本进行活体成像。
- 将488 nm和561 nm激光线设置为最大功率的30%(假设激光器功率为100 mW),以观察微管标记物(如mNG-Jupiter)和膜标记物CD4tdTomato。
- 设置曝光时间为200 ms,使用配备6.5 µm传感器的sCMOS相机及配套图像采集软件进行图像采集。
- 所有图像均使用40×水浸物镜(数值孔径为1.25,像素大小为0.1614 µm)采集。
- 手动对焦样本,定位背侧第二、第三和第四腹节半节段,该区域因表皮透明而易于观察Ⅳ类神经元。
- 每次记录时,采集一组z轴层扫图像,每步1 µm,总深度可达10 µm;以10秒间隔连续采集10或15分钟。
注意:除非另有说明,成像所用幼虫均为孵化后72小时(72 h AEL)。
7. 图像处理与分析
- 使用 Bio-Formats 导入插件将采集到的 .ND2 格式延时电影导入 FIJI(Fiji Is Just ImageJ),并将其转换为 TIFF 格式以进行后续分析。
- 在 FIJI 中使用图像稳定插件并设置仿射变换,对电影进行稳定化处理以校正样本漂移。
- 若运动过度,则将该电影从分析中剔除。运动速度超过 1 µm/min 视为过度,应予以排除。若在膜标记通道(CD4tdTomato)中观察到出泡现象,也应将该电影剔除。
- 在 FIJI 中沿 z 轴生成最大强度投影,将 z 层堆栈合并为二维时间序列。
- 在 FIJI 中沿目标特征绘制线性感兴趣区域(ROIs),以量化尖端和微管的动态特性。使用 FIJI 中的 Multi Kymograph 插件生成明场图(kymographs)。沿 ROI 使用 3 像素宽的线扫描生成明场图,并通过 FIJI 中的 Multi Kymograph 插件进行处理。
- 使用“轮廓分布图”工具(Plot Profile tool)提取强度分布,线宽设为 3 像素。生成一个多列 CSV 文件,其中交替的列分别记录每条线扫描路径上的位置和强度。
- 从视野中无信号区域的匹配 ROI 估算背景强度,并从每一帧中减去该背景强度。
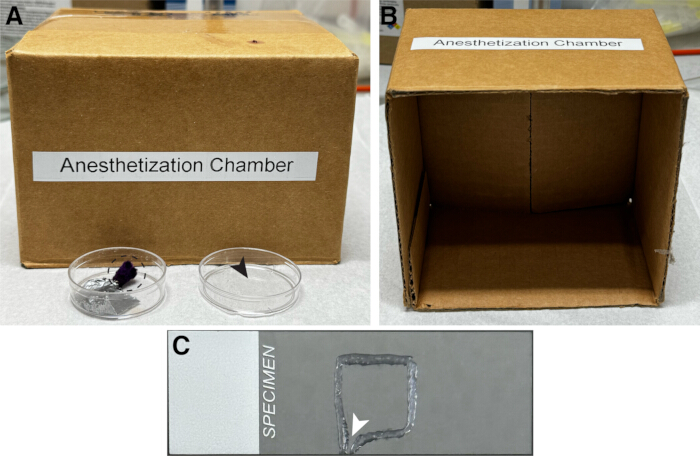
图 1:麻醉装置的组成部分。(A)一个小型纸板盒覆盖在一个35 mm细胞培养皿上,其中固定了一根蒸发麻醉棒,使用胶带固定(黑色虚线圆圈)。细胞培养皿的盖子用于在麻醉前和麻醉期间放置清洁、干燥的幼虫(黑色箭头)。(B) 盒子内部视图。(C) 一块显微镜载玻片,上面用指甲花分配器涂抹凡士林形成方形围栏,用于在成像过程中容纳幼虫样本。在盖玻片放置过程中,一个小间隙(白色箭头)有助于排出空气。请点击此处查看该图的放大版本。
结果
按照上述方案,利用 mNG-Jupiter 与膜标记物 CD4tdTomato 相结合,成功地在 IV 类树突分支(da)神经元中可视化了微管(图 2A–C)。膜标记物清晰地勾勒出树突分支的整体形态,而 mNG-Jupiter 则标记了树突内含微管的区域。在末梢树突的远端末端,mNG-Jupiter 的荧光信号在树突尖端附近较弱或缺失,而相应末端的 CD4tdTomato 荧光信号仍保持较强(图 2D–F)。
与早期研究中仅使用膜标记物成像的幼虫相比,树突树突的形态未表现出明显的差异11。为了定量评估mNG-Jupiter表达是否引起形态学异常,我们在72小时AEL时对表达mNG-Jupiter的树突树和对照组树突树的树突末端数量进行了计数。在来自八只mNG-Jupiter幼虫的八个细胞中,树突树四分之一区域内的末端数量为153 ± 25(均值 ± 标准差),而对照组幼虫中为144 ± 27(均值 ± 标准差)(图2G)。使用Welch's t-检验未检测到显著差异(见图2图注)。因此,mNG-Jupiter的表达未显著改变树突分支的数量。
延时成像展示了mNG-Jupiter信号在末端树突中的动态行为。在图3A所示的代表性序列中,明亮的mNG-Jupiter标记的微管末端位置随时间发生变化。将mNG-Jupiter信号连续进行线扫描并按时间排列,以可视化微管位置和长度的变化。由此生成的图3B中的线扫描图显示了荧光信号交替出现的延伸与回缩阶段,与在末端树突中观察到的标记微管的生长和缩短现象一致(视频1和视频2)。在靠近胞体的较粗树突中,由于微管数量较多,无法清晰观察单个微管的动态行为。
代表性图像和延时录像共同表明,该方案能够实现对完整 Drosophila 幼虫感觉神经元中树突形态以及微管相关荧光动态变化的可视化。膜标记物为树突结构提供了参考,而 mNG-Jupiter 则可用来随时间追踪树突内微管的行为(图 2 和图 3)。
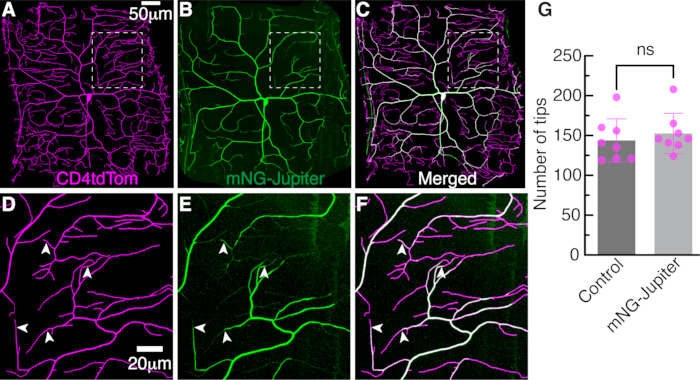
图 2:IV 类神经元中的树突。通过转盘共聚焦显微镜在卵孵化后 72 小时(AEL)成像的 IV 类树突状分支(da)神经元的树突结构。微管利用 GAL4/UAS 双元表达系统进行可视化。使用 IV 类细胞特异性驱动子 ppk-GAL4(pickpocket)促进与 mNG 标签融合的 Jupiter 蛋白表达(UAS-mNG-Jupiter)。树突膜通过 ppk 启动子直接介导的 tdTomato 与 CD4 膜标记物融合蛋白表达进行标记(ppk-CD4tdTomato)。(A) 膜标记物 CD4tdTomato。(B) 微管标记物 mNG-Jupiter。(C) 合并图像。(D–F) 分别为 A–C 中白色虚线框区域的放大视图,展示了微管标记物和膜标记物的分布情况。白色箭头指示 mNG-Jupiter 在末端树突中的分布。(G) 在 72 小时 AEL 时,对照组与表达 mNG-Jupiter 的神经元中树突末端数量的定量分析。每个数据点代表来自不同幼虫单个神经元四分之一区域中计数的末端数量。每组共分析了来自八只独立幼虫的八个神经元。误差线表示均值 ± 标准差(SD)。组间比较采用双侧非配对 Welch’s t-检验;ns,无显著性差异(P > 0.05)。请点击此处查看该图的放大版本。
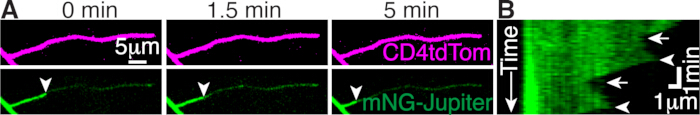
图3:终末树突中的微管动态。(A) 表达 CD4tdTomato(上)和 mNG-Jupiter(下)的终末树突在指定时间点的三幅图像。箭头指示微管末端。在明亮的 微管信号之外可见微弱的 mNG 信号。(B) 显示微管生长与缩短的线扫图(kymograph)。箭头指示生长阶段,箭头指示缩短阶段。对 mNG 信号连续进行的3像素宽的线扫描自上而下排列,时间方向向下递增。请点击此处查看该图的高清版本。
视频 1:mNG-Jupiter 在 IV 类树突分支神经元中的延时成像。延时序列显示了黑腹果蝇(Drosophila)幼虫 IV 类树突中 mNG-Jupiter 的荧光信号。该序列展示了树突分支内微管相关荧光随时间的变化。图像采用本实验方案中描述的活体成像条件获取。比例尺为 20 µm。请点击此处下载该文件。
视频 2:IV 类树突状分支神经元中 CD4tdTomato 膜标记物的延时成像。 延时序列显示了相应黑腹果蝇(Drosophila)幼虫 IV 类树突状分支中的 CD4tdTomato 荧光信号。该膜标记物在成像期间为树突形态提供了参考依据。图像采用方案中所述的活体成像条件获取。比例尺,20 µm。请点击此处下载该文件。
讨论
本方案展示了利用转基因 Jupiter 果蝇品系,通过共聚焦显微镜对 Drosophila 感觉神经元中的微管动态进行活体成像的方法。该方法可在保持树突形态完整的同时,实现对完整幼虫体内微管相关荧光的可视化观察,树突形态的完整性通过膜标记物进行评估11,29。类似的方法也已被用于在 IV 类神经元中利用 GFP-肌动蛋白和 LifeAct-GFP 对肌动蛋白动态进行成像22,30,31,32。原则上,该通用方法也可应用于 IV 类细胞及其他类型树突分支神经元(I、II 和 III 类)中其他微管结合蛋白的成像。特别是,将荧光标记的微管与 EB 标记相结合,可减少对微管生长解释的不确定性。例如,EB 星状信号的缺失可能意味着微管的缺失,也可能表示存在但未活跃生长的微管;直接观察微管有助于区分这两种情况。因此,将 mNG-Jupiter 与荧光标记的 EB1 共同标记,可实现对微管生长动态的解读,同时结合微管的局部组织结构、丰度及推断的方向性进行综合分析。
获得合适的活体成像数据需要注意多个关键步骤。本方案采用挥发性麻醉剂异氟烷,对样品进行明确且短暂的固定处理。在固定过程中必须严格控制异氟烷的剂量,因为麻醉不足会导致幼虫活动,而麻醉过度则可能引起神经元退化。在样品制备过程中还应避免产生气泡,因为气泡会影响成像质量并导致样品漂移。此外,应避免盖玻片施加过大的压力,否则可能引起树突发泡,进而造成神经元损伤。这些步骤对于在整个成像过程中维持样品的稳定性及树突形态至关重要。
本方案的一个重要局限性在于,固定和观察方法(包括麻醉暴露以及盖玻片造成的物理约束)可能影响微管动力学。为了确定在这些条件下微管是否受到干扰,可单独或结合本方案使用其他替代性固定方法。此类方法包括对胚胎进行成像,以及利用温度敏感型突变体(如 Shibirets 33),随后比较生长速率和转换频率等动力学参数。
由于这一限制,本方案允许幼虫在制片后约30分钟内进行成像,期间不会出现树突出芽、形态退化,或微管及尖端动态的可检测信号丢失。该方法能够从完整的幼虫中获取高分辨率的时间序列数据,并实现对末端树突中微管动态行为的可视化观察。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢霍华德实验室的所有成员,特别是前实验室成员廖迈佳博士,为微管标记项目奠定了基础;感谢Sonal Shree博士在霍华德实验室中开发了在Drosophila中可视化树突发育动态的实验方案。 本研究工作得到了美国国立卫生研究院(NIH)资助,资助编号为R35 GM161634(国家普通医学科学研究所)和R01 NS118884(国家神经疾病与中风研究所),授予J.H.。本研究内容完全由作者负责,不代表美国国立卫生研究院的官方观点。本研究还获得了美国国家科学基金会(NSF)资助PHY-2210464以及PEW慈善信托基金奖38044对J.H.的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙酸(冰醋酸,ACS级试剂,≥99.7%) | Sigma-Aldrich | 695092 | 用于制备葡萄汁琼脂培养基;每约0.5 L培养基使用5 mL |
| 琼脂(细菌琼脂) | Becton Dickinson | 214010 | 用于制备葡萄汁琼脂培养基;每约0.5 L培养基使用15 g |
| 麻醉棒 | Carolina Biological Supply Co. | 173010 | 用于在幼虫麻醉过程中盛装异氟烷并置于蒸发储液池中 |
| 烧杯,1 L,可微波加热 | Corning Inc. | 1000-1L | 用于制备约0.5 L葡萄汁琼脂培养基 |
| 烧杯,100 mL | Corning Inc. | 1000-100 | 用于制备酵母糊 |
| Bio-Formats导入插件 | Open Microscopy Environment Project | 不适用 | FIJI插件,用于导入.ND2延时成像文件 |
| 相机(sCMOS,Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm传感器;用于图像采集 |
| 纸板箱(5 × 5 × 3 英寸) | Uline | S-4579 | 用于覆盖麻醉装置,减少细胞培养皿上方的空气流动 |
| 细胞培养皿 | Corning Incorporated | 430165 | 35 × 10 mm;用于幼虫操作及作为异氟烷蒸发储液池 |
| 盖玻片 | Globe Scientific Inc. | 1404-15 | 22 × 22 mm,No. 1.5;置于固定好的幼虫上方 |
| Darwin培养箱 | Darwin Chambers | IN030-AA-LT-DA-MP | 用于在25 °C条件下维持果蝇杂交、产卵及幼虫发育阶段 |
| 蒸馏水,实验室试剂级 | Research Products International (RPI) | 不适用 | 用于葡萄汁琼脂制备、酵母糊制备及幼虫清洗 |
| 胶带( duct tape) | Uline | S-6519 | 用于将麻醉棒固定在细胞培养皿内 |
| 产卵笼/胚胎收集笼 | Genesee Scientific | 59-100 | 小型;适配60 × 15 mm培养皿;用于受控的卵收集 |
| 乙醇(无水,200 proof) | Decon Labs Inc. | V1001G | 用于制备葡萄汁琼脂培养基;每约0.5 L培养基使用10 mL |
| FIJI(Fiji Is Just ImageJ) | NIH | 版本 2.16.0/1.54p | 用于图像导入、稳定化、最大强度投影、ROI分析、动态图生成及强度轮廓提取 |
| 果蝇品系:(1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington果蝇品系中心(1);Howard实验室(2) | BDSC# 32078, BDSC# 35845 | 用于在IV类树突状神经元中表达CD4tdTomato和mNG-Jupiter |
| 葡萄汁,100%康科德葡萄汁 | Welch's | 不适用 | 用于制备葡萄汁琼脂培养基;每约0.5 L培养基使用126 mL |
| 卤碳油700 | Sigma-Aldrich | H8898 | 用于活体成像时固定幼虫 |
| 海娜染料注射器 | ZEYER | ZEYER-1005 | 用于在显微镜载玻片上形成凡士林围栏 |
| 图像稳定插件(Image Stabilizer) | Kang Li开发 | 不适用 | FIJI插件,结合仿射变换设置以校正样品漂移 |
| 异氟烷 | Santa Cruz Biotechnology, Inc. | sc-470926 | 用于在固定和成像前使幼虫 immobilize(固定) |
| 实验室擦拭纸(Kimwipes) | Kimberly-Clark Professional | 34120 | 用于在麻醉前去除清洗后幼虫表面多余的水分 |
| 保种瓶 | Lab Express Inc. | 7001-PBT | 方形底部聚丙烯瓶,6 oz;含Fly Food B(Bloomington配方),用于维持果蝇品系和杂交 |
| 微波炉 | Panasonic | NN-SN686S | 用于在制备葡萄汁琼脂培养基时溶解琼脂 |
| 倒置显微镜 | Nikon Instruments Inc. | 736228 | Ti Eclipse倒置显微镜,配备完美聚焦系统,用于活体成像 |
| 显微镜载玻片 | Fisherbrand | 12550143 | Superfrost载玻片;用于固定幼虫进行成像 |
| Multi Kymograph插件 | Jens Rietdorf、Arne Seitz和Johannes Schindelin开发 | 不适用 | FIJI插件,用于生成微管动力学的动态图(kymograph) |
| Nikon Elements软件 | Nikon Instruments Inc. | 版本 5.21.03 | 用于采集延时显微图像并生成.ND2文件 |
| 物镜,水浸式 | Nikon Instruments Inc. | MRD77400 | 40×,1.25 NA;用于活体成像 |
| 画笔 | Dynasty | 2157r | 0号和3/0号;用于转移幼虫及密封凡士林围栏 |
| 培养皿 | Falcon | 351007 | 60 × 15 mm;用于葡萄汁琼脂平板 |
| 刮刀 | VWR | 82027-532 | 22.9 cm(9英寸);用于酵母糊制备过程中混合酵母和水 |
| 转盘共聚焦单元 | Yokogawa CSU-W1 | SBW001 | 50 µm针孔;用于活体共聚焦成像 |
| 蔗糖 | Sigma-Aldrich | 57-50-1 | 用于葡萄汁琼脂培养基,以及配制5%溶液用于清洗幼虫 |
| 凡士林 | Unilever | 不适用 | 用于在显微镜载玻片与盖玻片之间形成密封围栏 |
| 酵母(Red Star活性干酵母) | Lesaffre Corporation | 不适用 | 用于制备酵母糊并促进产卵 |
参考文献
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
重印与许可
本文已发表
视频即将推出