本方案可实现从寿命较短的年度鳉鱼Nothobranchius furzeri中可靠地分离出具有活性的心室心肌细胞,适用于不同年龄组,所获得的细胞可用于与年龄相关的心脏重塑的全细胞膜片钳研究。
本文内容
摘要
摘要
分离的工作心肌细胞仍是研究心脏电生理学的标准方法。单细胞制备可直接观察并精确测量离子电流和动作电位,避免了完整心脏组织结构复杂性带来的干扰。Nothobranchius furzeri(非洲 turquoise 鳉鱼)因其极短的寿命以及在衰老机制方面与哺乳动物(包括人类)的高度相似性,已迅速成为衰老研究中的重要模式生物。该物种兼具多种实用优势,如体型小、饲养成本低、生命周期短,同时具有良好的转化研究价值。N. furzeri 表现出随年龄增长而出现的运动能力下降、认知功能减退和器官功能衰退,同时伴有衰老相关分子标志物的累积,以及对可调节寿命和健康寿命的药物干预具有敏感性。然而,要研究衰老心脏功能的退化,需要一种可靠的方法来获取高质量且具有活性的细胞,以满足高要求的单细胞技术需求。本研究优化了先前报道的Danio rerio心肌细胞分离方案,以确保从年轻和衰老的N. furzeri个体中稳定获得健康的可工作心肌细胞。该方案专门针对全细胞膜片钳技术,详细描述了从N. furzeri中分离心室心肌细胞的步骤。文章展示了如何高效地切除心脏、通过逆行灌流进行心肌酶解离解,以及分离后心肌细胞的保存方法。我们讨论了在不破坏离子通道结构的前提下,消化细胞外基质和细胞间连接所需的酶的选择。新分离的心肌细胞适用于高分辨率的电生理检测,包括跨年龄组的动作电位记录以及主要内向和外向离子电流的测量。本文还阐述了鱼类心肌细胞分离过程中与标准哺乳动物分离程序之间的差异特征。
引言
心脏功能随年龄增长而衰退,其驱动因素包括结构、分子和电生理重塑,这些变化共同损害了心脏储备功能,并增加了心律失常的发生风险1。为了在细胞水平上理解心脏衰老的机制,全细胞膜片钳技术是一种不可或缺的实验工具。该技术能够直接、定量地评估单个跨膜离子电流及其动力学特性,以及动作电位(AP),从而揭示与年龄相关的心肌功能障碍背后的特异性离子电流改变。研究这些机制需要可靠的脊椎动物心脏衰老模型。近年来,非洲 turquoise 鳉鱼(Nothobranchius furzeri)因其天然的短寿命而成为研究心脏衰老的有前景模型2,3。初步的分子和组织学研究表明,Nothobranchius 与哺乳动物在衰老过程方面具有相似性。其他研究团队已证实,N. furzeri 具备哺乳动物心脏衰老的关键特征,包括端粒缩短、线粒体DNA含量减少、抗氧化酶表达下降、心肌结构和电生理改变,以及衰老标志物(如脂褐素沉积和β-半乳糖苷酶活性升高)的累积4,5,6。
然而,尽管N. furzeri在心血管研究中的重要性日益增加,但在单细胞水平上进行详细的电生理表征仍受到持续存在的技术挑战的限制。获得高质量的膜片钳记录严格依赖于分离出具有完整结构、功能正常的离子通道以及非过度收缩形态的工作型心肌细胞。虽然哺乳动物心肌细胞的酶解离方案已较为成熟,但由于非哺乳动物组织结构的特殊性、细胞得率相对较低以及心脏体积较小,从鱼类心脏中分离出有活力的心肌细胞仍然十分困难7,8。该方法的主要局限在于正确插管心脏的技术难度较高,以及制备过程对酶处理条件的微小变化极为敏感。任何灌注流的中断都会显著降低细胞质量和得率。此外,酶浓度或消化时间的轻微偏差都可能显著影响细胞活力以及后续电生理记录的质量。动物的年龄也需加以考虑。尽管由于胶原纤维和成纤维细胞含量增加,老年鱼的心脏需要略高的酶浓度和更长的消化时间2,但分离的基本原则保持不变,酶浓度和作用时间在±10%范围内调整即可获得最佳结果。
因此,建立一种详细且高度可重复的酶解分离方案,是推进以鱼类模型开展心脏衰老电生理学研究的前提条件。尽管在直线维度上具有一定的形态学相似性,但从N. furzeri中分离心肌细胞相较于Danio rerio的分离方案需要进行多项重要修改。经典的斑马鱼心脏细胞分离方法是将完整心脏浸入酶解溶液中进行相对较长时间的消化7,8,9。尽管该方法能够获得有活力的细胞,但对Nothobranchius心脏而言可能过于剧烈,容易导致酶消化过度。本方法通过将溶液直接、稳定地灌流至心脏腔室内,从而更有效地清除心脏内的血液,并实现更精确且温和的酶解处理。本文介绍了一种优化的从N. furzeri中分离具有活性、适用于膜片钳实验的心肌细胞的方法,重点阐述了为获得高质量电生理记录所需的关键技术改进。
方案
实验使用 N. furzeri GRZ 品系的鱼进行。选取1.5–2月龄、性成熟的年轻雌雄鱼(N = 19,体重 = 0.71 g ± 0.36 g)用于记录分离的心室心肌细胞中的动作电位和离子电流。鱼类由俄罗斯科学院A.N. Severtsov生态与进化研究所培育并提供。动物饲养于60–100 L的水箱中,水温维持在24 °C ± 1 °C,光照周期为12小时光照/12小时黑暗。根据此前已发表的建议10,每箱饲养密度为每箱10–20条鱼。
心肌细胞分离的原理 N. furzeri 基于先前描述的经典鱼类分离方法,并针对小型鱼类进行了改良11,12所有实验均按照《实验动物护理和使用指南》(美国国立卫生研究院)和欧盟指令2010/63/EU的规定进行。实验方案已获得莫斯科国立大学罗蒙诺索夫生物伦理委员会批准(申请) №202-a,于生物伦理委员会会议期间获得批准 №169-d,于2025年2月27日举行)。所使用的试剂和设备列于下文 材料表.
1. 溶液的制备
- 制备 Ca2+无钙分离液成分(单位:mmol L-1):100 NaCl,10 KCl,1.2 KH2PO4,4 MgSO₄4,50 牛磺酸,20 葡萄糖和 10 HEPES。用 NaOH 在室温下将 pH 调至 6.9(24 °C)。使用室温生理盐水溶液进行分离。分离过程中无需对溶液进行氧合。
注意:分离液可在 4 °C 在玻璃瓶中放置3–4天。 - 根据 Ca 制备 3 mL 酶解溶液2+-不含溶液,含有 0.8 mg mL-1 1型胶原酶A,0.5 mg/mL-1 胰蛋白酶,以及 0.8 mg mL-1 牛血清白蛋白(BSA)。为保持酶活性,应在分离操作前立即加入酶。
注意:由于不同批次的酶活性可能存在差异,可能需要调整酶的浓度。 - 将50–100 mL自来水在冰箱中预冷至+4 °C冷却是鱼类镇痛所必需的。
2. 分离系统的准备
- 将两个 10 mL 注射器筒固定在支架上,高度约为 35 cm。
- 将硅胶管(内径 = 8 mm)连接至注射器筒,并使用三通输液阀将它们的自由端连接在一起。
- 用无 Ca2+ 分离液填充其中一根管路,用酶解液填充另一根管路。确保管路中无气泡残留,因为气泡会阻碍液体流动并降低分离质量。关闭液体流动。
- 使用 1 mL 胰岛素注射器将无 Ca2+ 溶液吸入 32 G 分液针头中,以避免针尖处产生气泡。
- 将装有溶液的针头连接至三通阀的自由端。
- 使用固定胶泥将针头固定在 100 mm 培养皿中,使其与皿底平面平行。
- 将连接灌流系统的培养皿置于体视显微镜下,并用载物台夹具和固定胶泥固定(图 1A)。
3. 解剖与心脏分离
- 准备手术器械:两把显微眼科剪刀、两把显微眼科镊子,以及一个带有四枚医用针头的解剖托盘。
- 从冰箱中取出预冷的自来水,迅速将鱼浸没其中。等待鱼的鳃盖停止活动。
注意:在继续操作前,须确认鳃盖运动已停止,以确保镇痛充分。 - 将鱼从水中取出,腹面朝下放置于解剖托盘上,用眼科剪剪断脊髓。
- 将鱼翻转至背部并用针将其固定在托盘上。固定头部、尾部和鳃盖,并将鳃盖向后完全展开并固定,以提供更大的操作空间。
- 在腹膜上做一个横向切口。沿身体主轴方向将切口纵向延伸,用镊子轻轻将皮肤从内脏器官上抬起。继续切至下颌边缘,并将皮肤边缘分别固定于左侧和右侧图1B).
- 定位心室和动脉球。用镊子夹住远离心室的动脉球,并轻轻将其从体内提起。在不松开镊子的情况下,于心室尾侧进行剪切,以保持心室完整。
- 将分离的心脏转移至体视显微镜下的培养皿中。先将套管尖端插入动脉球,再小心穿过主动脉瓣,进入心室,注意避免损伤周围组织。成功插管可在 > 90%的心脏。
- 用结扎线将动脉球固定在插管上(图1C).
注意:一根人类头发(d = 50–70 µm)可很好地作为结扎线,因为标准缝合线对于小心脏而言过粗。
4. 心肌细胞分离
- 打开三通旋塞,使钙液储筒中的液体流出2+无钙溶液。操作正确时,心室将充满溶液并扩张。流速设定为 43 µL 分钟-1.
- 用显微外科剪刀修剪心房和静脉窦的残余组织,注意不要损伤心室壁。
- 以立体显微镜观察血流情况,灌注心脏10–12分钟,确保灌注均匀。轻柔挤压硅胶管,使溶液产生短暂脉冲,扩张心室小梁并清除残留血液。灌洗成功的标志是在立体显微镜下观察到心脏停搏及红细胞流动停止。
- 切换旋塞,使酶溶液流向心室。灌注4–6分钟。通过观察心室壁完整性破坏及小块心肌碎片脱落,直观确认酶解处理效果。
注意:避免将灌流液取样或转移至倒置显微镜进行观察,因为这可能导致细胞材料的丢失或机械损伤,并中断对灌流质量的连续监测。建议依赖上述在双目显微镜下可清晰观察到的成功分离的指标进行判断。 - 加入少量等分试样(300–400 µL钙(Ca)的2+将无钙溶液加入35 mm组织培养皿中。从动脉球上分离心室,并将其转移至培养皿中。
- 用精细剪刀将心室剪碎,然后用移液器反复吹打组织,轻轻进行匀浆 100 µL 装有截短吸头的微量移液器。
- 将细胞悬液转移至一个 1500 µL 管中。取少量样品在倒置显微镜下以低倍镜(10)检查×)。在视野中目测杆状、有横纹的心肌细胞的密度。如果视野过于密集,存在大量重叠的杆状细胞(>50 每 10× 场),加入 Ca2⁺无血清溶液以降低细胞密度,避免记录室中细胞过度拥挤。让细胞自然沉降 4 °C 记录前孵育40–50分钟。
注意:细胞可在此步骤暂停 4 °C 在静置期间;分离后8小时内用于记录。
5. 全细胞膜片钳记录
- 根据表1中列出的不同离子电流和动作电位记录,配制细胞外和细胞内溶液。
- 使用垂直拉制仪将无内丝的薄壁硼硅酸盐玻璃毛细管拉制成膜片钳电极,并用细胞内溶液填充。所有记录配置下,填充后的电极电阻应为2.0–3.0 MΩ。
- 将细胞外灌流浴液加入灌流储液罐中,并在将细胞放入记录浴槽前对管路进行预充,以排除所有气泡。
- 向玻璃底记录浴槽中加入少量(30–40 µL)分离的心肌细胞悬液,静置5–10分钟使细胞沉降贴壁。
- 将电极连接至放大器的头部支架。在显微镜引导下,使用显微操作器将电极缓慢下移至目标心肌细胞,直至电极尖端接触细胞膜,此时可见膜表面轻微凹陷及电极电阻升高。
- 施加轻柔的负压吸引,以形成高阻封接(GΩ级封接),通常在数秒内即可形成。
- 将钳制电位设定为-80 mV。通过一系列短暂的吸力脉冲破裂细胞膜。建立全细胞记录模式后,使用放大器的补偿电路最小化电容瞬变,并对细胞电容和串联(接入)电阻进行补偿。
- 使用放大器上的细胞电容和串联电阻调节功能补偿这些电容性电流。调节细胞电容控制旋钮以最小化主要电容瞬变,然后调节串联电阻控制旋钮以降低残余过冲,直至其基本消除,基线电流趋于平稳。
- 仅选用补偿后估计接入电阻≤10–12 MΩ的细胞进行动作电位和离子电流记录。随后开始记录动作电位或离子电流;如需,应在记录前加入表2中列出的特异性阻断剂。
- 使用支持自定义刺激方案设置的膜片钳数据采集软件进行记录。本研究中所用的电压钳制方案见图2。
结果
本方案可获得来自N. furzeri的单个杆状心室心肌细胞,适用于高分辨率全细胞膜片钳记录。成功的细胞分离首先通过细胞形态和封接质量进行判断,随后通过能否记录到稳定的动作电位以及各主要离子电流(具有预期的电压依赖性和幅值)进行功能验证。下方代表性记录数据来自年轻个体N. furzeri,定义了表明细胞健康且钳制良好的参考值。偏离这些标准的情况通常提示分离效果不理想,每项标准旁均对此类偏差进行了描述。
细胞形态与封接形成
存活的 N. furzeri 心室心肌细胞呈细长杆状,横纹肌膜光滑且形态完整(图3)。在某些细胞中,光学显微镜下可观察到微弱的横向横纹,但并非所有细胞均能清晰分辨;因此,选择用于记录的细胞主要依据其光滑完整的膜结构以及细长杆状的形态。此类细胞易于形成高阻封接(>1 GΩ),并能耐受膜破裂。相比之下,呈圆形、收缩状、颗粒状或肿胀的细胞提示消化过度或机械损伤:这些细胞封接困难,记录质量迅速下降,应予以弃用。健康的细胞可维持稳定的静息膜电位,在-80 mV钳制电位下漏电流极小。
膜片钳记录特性
使用膜片钳放大器在22–24 °C条件下进行全细胞膜片钳记录。信号采样频率为10 kHz,并在1–2 kHz进行低通滤波。输出增益(α)设置为×0.5,以优化模数转换器上的信号分辨率。串联电阻补偿率为70%–80%;延迟时间为10 µs。若估计的接入电阻超过10–12 MΩ,或在记录过程中变化超过约10%,则舍弃该记录。在动作电位和离子电流记录中,未进行线性漏电流减除。
如果细胞符合以下任一标准,则被排除在分析之外:在电流钳模式下静息膜电位去极化程度大于 −70 mV;无法形成稳定的千兆欧封接(>1 GΩ);补偿后接入电阻 >10–12 MΩ;记录过程中离子电流迅速衰减;形态学损伤(表现为变圆、颗粒状或过度收缩)。
动作电位(细胞活性的阳性对照)
在电流钳模式下记录的动作电位可最直接地评估分离心肌细胞的电生理活性。使用持续1毫秒的去极化电流脉冲(0.4–1纳安,约高于阈值30%)诱发动作电位。刺激频率设定为0.3赫兹。待波形在约5分钟后达到稳定稳态后,再记录动作电位。在来自年轻N. furzeri的分离状态良好的心肌细胞中,静息膜电位(RMP)稳定,接近-85毫伏(图4B)。动作电位可上冲至约+30毫伏,产生清晰的“全或无”式上升支(图4A)。典型动作电位特征包括动作电位90%复极时程(APD90)约为530毫秒,50%复极时程(APD50)约为460毫秒,最大上升速率(dV/dtmax)约为50伏特每秒(V s-1)。若静息膜电位去极化(负值小于约-70毫伏)、上冲幅度减小或缺失、上升支速率减慢,或在多数情况下无法维持振幅和时程稳定的重复放电,则提示细胞受损或钳制不良,此类细胞不可用于动作电位特性的评估。
快速钠电流(INa)
快速钠电流是动作电位上升支的基础,也是膜完整性和电压钳制质量的敏感指标。使用表1中基于Cs+的溶液时,INa表现为幅值较大、激活和失活迅速的内向电流(图5A)。在健康年轻的心肌细胞中,INa在约-60 mV时开始出现,峰值密度在约-30 mV时达到约-13 pA/pF−1,并在接近+20 mV时发生反转(图5B)。失活时间常数从-50 mV时的约8 ms减小至-10 mV时的约2 ms,半失活电压位于约-70 mV13(图5C、D)。若观察到峰值电流幅度显著降低、反转电位偏移或不明确,或激活/失活动力学变慢且变形,则提示电压控制不良(串联电阻误差)或膜完整性受损,而非分离操作本身所致。
钙电流(ICaL 和 ICaT)
使用钙电流溶液(表1)记录时,N. furzeri 心肌细胞表现出具有两个组分的净内向钙电流。该电流在约 -60 mV 开始激活,表明除主导的L型电流(ICaT)外,还存在T型组分(ICaT),并在 -10 mV 至 0 mV 之间达到约 -7 pA/pF−1 的峰值密度(图6B)。通过药理学方法可确认各组分身份:10 µM 硝苯地平部分阻断该电流,而 100 µM 则几乎完全抑制(图6A)。需要注意的是,仅在特定对照实验中使用 100 µM 硝苯地平浓度,以验证10 µM硝苯地平处理后残留的电流对更高浓度完全敏感,从而可被鉴定为ICaT。在标准常规记录中,50 µM 即足以完全阻断净ICa电流。ICaL组分定义为从 -50 mV 持续电位诱发的电流,而ICaT则通过在 -90 mV 记录的电流与分离出的ICaL之间的差值得到(图6C、D)。一种清晰分辨、对硝苯地平敏感的内向电流,其激活电压与峰值电流电压符合上述描述,表明钙通道保存良好。
延迟整流钾电流(IKr 和 IKs)
外向性钾电流的存在证实了分离后复极化机制仍保持功能完整。在药理学条件下(表2),所有健康细胞在去极化至-40 mV及以上时均会引发外向电流。使用选择性阻断剂可区分出两个组分:对293B染酮(20 µM)敏感的缓慢延迟整流钾电流(IKs),以及对E4031(1 µM)敏感的快速延迟整流钾电流(IKr)(图7A,B)。在来自年轻鱼类的心肌细胞中,IKs和IKr在强去极化电位下电流密度均达到约1 pA pF−1(图7C,D)。这两种延迟整流电流组分在人类心室复极化中起重要作用,但在常规啮齿类模型中贡献较小14,它们的存在是所记录细胞为具有完整复极化电流的N. furzeri心室心肌细胞的关键验证依据。
背景内向整流电流(IK1)
背景内向整流电流决定了静息膜电位,可通过从 +60 到 -120 mV 的电压斜坡程序方便地进行评估(图 7E)。在健康细胞中,IK1 的反转电位接近 -80 mV,与电流钳模式下测得的静息膜电位一致。在反转电位正侧的膜电位下,IK1 表现出特征性的外向隆起,峰值可达数个 pA pF−1(图 7F)。若反转电位明显偏离 -80 mV 或存在较大的持续漏电流,则提示封接不良或细胞膜受损。
综上所述,当制备得到的细胞呈细长杆状、细胞膜光滑完整,并能形成吉欧姆级封接,同时表现出上述参考动作电位波形和电流特征时,可认为制备成功。从单个心脏获得多个此类细胞,表明酶解离过程已成功保持了细胞膜的完整性以及下游电生理研究所需的心脏离子通道的完整组成。
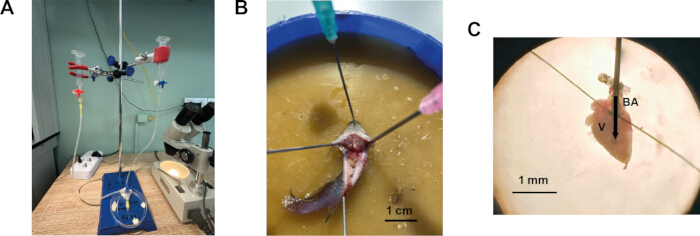
图1:N. furzeri 心脏心室心肌细胞的分离流程。(A)适用于小型鱼类的心肌细胞分离系统。(B)将鱼固定于解剖盘中,腹面朝上,横向和纵向切开腹膜。(C)N. furzeri 心脏插管并固定以进行灌流。BA — 动脉球,V — 心室。箭头指示灌注液流入心室的方向。请点击此处查看该图的放大版本
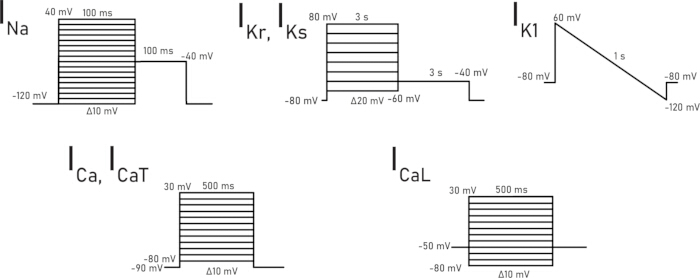
图2:用于记录每种特异性离子电流的电压钳制实验方案。 请点击此处查看该图的放大版本
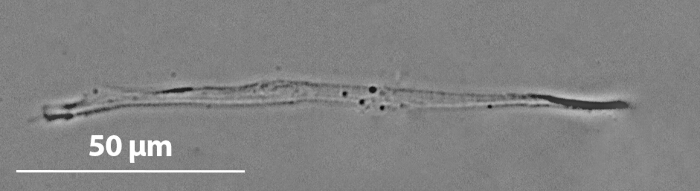
图3:来自年轻N. furzeri的心室心肌细胞的代表性显微照片。 请点击此处查看该图的放大版本。
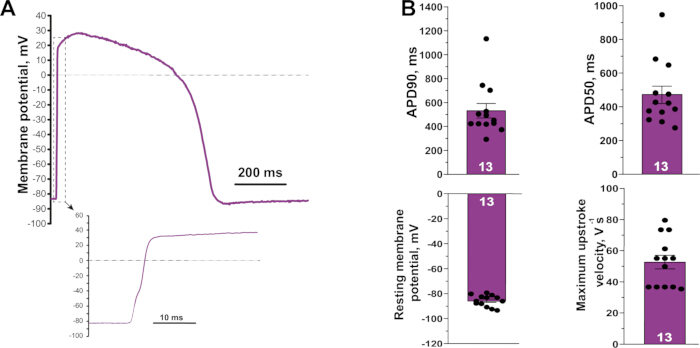
图4:从年轻 N. furzeri 心室心肌细胞记录的代表性动作电位。(A)动作电位波形。插图显示了在扩展时间尺度下的快速上升支。(B)从分离的年轻心肌细胞测得的动作电位特征(静息膜电位、APD50、APD90 和最大上升速度)。(N = 7,n = 13)。数据以均值 ± 标准误表示。请点击此处查看此图的放大版本。
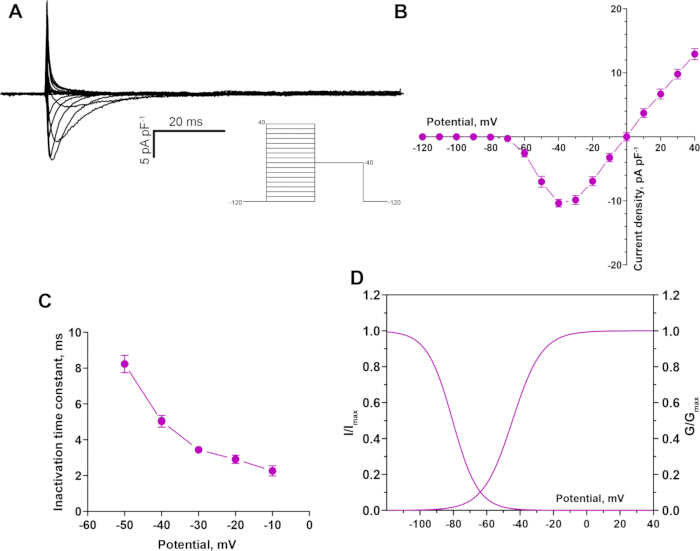
图5:从年轻的N. furzeri心室心肌细胞记录的快速钠电流(INa)。(A)INa的代表性记录。(B)INa的电流-电压关系,在约-60 mV开始激活,峰值接近-30 mV。(C)失活时间常数的电压依赖性。(D)稳态激活与失活曲线。(N = 5,n = 11)。数据以均值±标准误表示。请点击此处查看该图的放大版本。
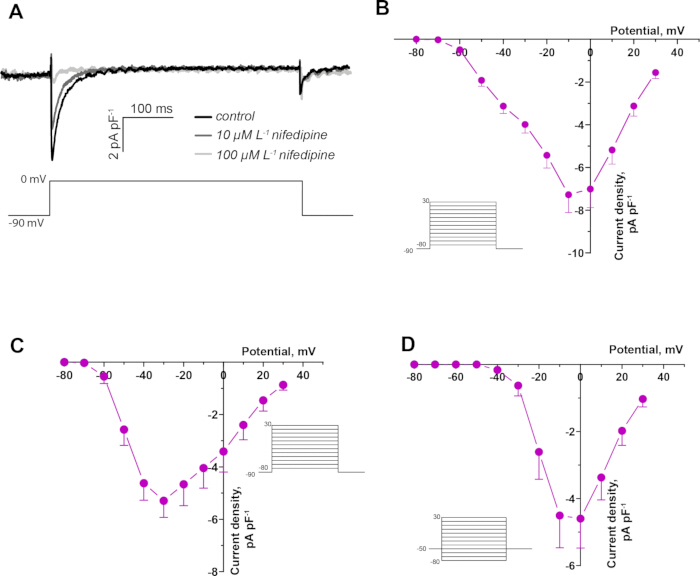
图6:年轻N. furzeri心室心肌细胞中的钙电流。(A)在对照条件下以及存在10 µM和100 µM尼非地平的情况下,年轻N. furzeri心室心肌细胞中净钙电流的代表性记录。(B)净钙电流的电流-电压关系,在接近-60 mV时激活,峰值出现在约-10 mV(N = 5,n = 11)。(C)T型组分(ICaT)的电流-电压关系(N = 3,n = 6)。(D)L型组分(ICaL)的电流-电压关系(N = 5,n = 7)。数据以均值±标准误表示。请点击此处查看该图的放大版本。
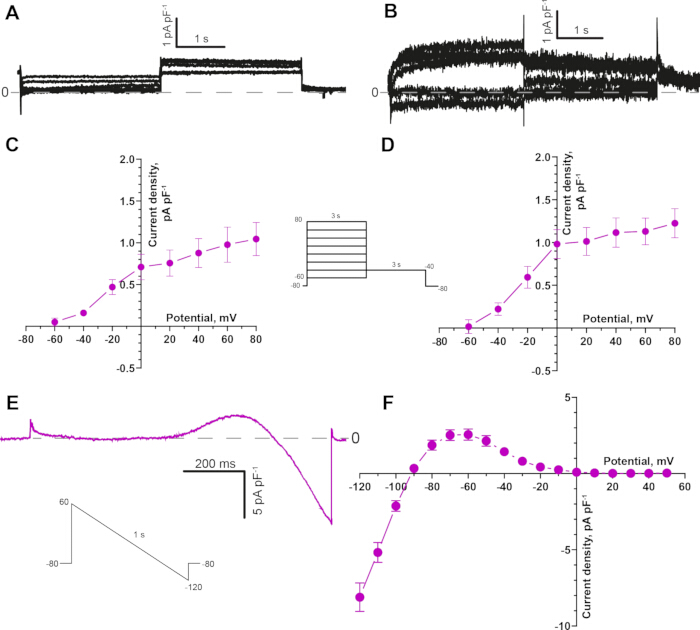
图7:年轻个体中的钾电流 N. furzeri 心室心肌细胞. (A) 缓慢延迟整流电流(IKs),在存在 E4031 的情况下分离1 µM) 以阻断 IKr。B) 存在 chromanol 293B 时分离得到的快速延迟整流钾电流(IKr)的代表性记录20 µM) 以阻断 IKs。CI 的电流-电压关系Ks 电流(N = 5,n = 9)。(DI 的电流-电压关系Kr 电流(N = 5,n = 10)。(E代表性 IK1 采用从 +60 mV 到 -120 mV 的下降电压阶跃方案记录。(F)I 的电流-电压关系K1,反转电位约为-80 mV(N = 5,n = 18)。数据以均值表示 ± 扫描电子显微镜 请点击此处以查看此图的放大版本。
| 溶液名称 | 试剂及浓度(mM) |
| 动作电位和钾电流 外液 | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl2, 10 葡萄糖, 10 HEPES;用 NaOH 调节 pH 至 7.4 |
| 动作电位和钾电流 内液 | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP 和 10 HEPES;用 KOH 调节 pH 至 7.2 |
| 钠电流 外液 | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl2, 10 葡萄糖 和 10 HEPES;用 CsOH 调节 pH 至 7.2 |
| 钠电流 内液 | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP 和 15 TEA;用 CsOH 调节 pH 至 7.2 |
| 钙电流 外液 | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl2, 10 葡萄糖 和 10 HEPES;用 NaOH 调节 pH 至 7.2 |
| 钙电流 内液 | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP 和 15 TEA;用 CsOH 调节 pH 至 7.2。 |
表1:用于记录动作电位和离子电流的膜片钳实验中外液和内液的成分。
| 记录电流 | 阻断剂浓度 (μM) | |
| 1. | 动作电位 | 无需阻断剂 |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipine |
| 6. | ICaT | 1 Tetrodotoxin |
| 7. | ICaL | 1 Tetrodotoxin |
表2:为选择性记录特定离子电流而在细胞外溶液中添加的药理学阻断剂。
讨论
成功分离出具有活性的N. furzeri心室心肌细胞是一项方法学上的进展,使得在细胞水平上直接进行与年龄相关的心脏重构的电生理学表征成为可能。这种分辨率对于识别与年龄相关的心脏功能障碍背后的特异性离子机制至关重要,而仅依靠器官或完整心脏制备则无法区分这些机制。研究天然心肌细胞可直接揭示衰老如何改变基本的电生理特性,包括离子电流和动作电位特征。
本方案中有多个步骤对于从N. furzeri获得高质量、适用于膜片钳实验的心肌细胞至关重要。首先,不同批次的酶活性存在差异,因此每次制备时均需调整胶原酶和胰蛋白酶的浓度。消化过度会导致细胞膜损伤并丧失离子通道功能,而消化不足则获得的细胞数量少,且难以实现移液管与细胞膜之间的稳定接触。分离得到的细胞应保持细长的杆状形态,具有光滑且完整的肌膜,表明在分离过程中细胞完整性得以保留;部分细胞在光学显微镜下还可观察到微弱的肌节横纹。这种完整性对于获得可靠的电生理数据至关重要,因为受损细胞常表现出离子通道功能异常和膜特性受损。其次,N. furzeri心脏体积较小,这一技术难点要求对酶解分离过程进行精细优化,并实施精确的手动解剖操作,且每颗心脏获得的细胞数量低于哺乳动物样本。此外,灌流不一致或插管心脏发生泄漏也是实验过程中常见的问题之一。建议先在多颗心脏上练习插管操作,以掌握稳定一致的进针角度和深度。确保针尖无气泡,动脉球结扎牢固且不损伤组织。在开始记录前,应确认细胞呈杆状,细胞膜光滑完整(部分细胞可能可见微弱横纹),圆形或颗粒状细胞应予以弃用。检查所有溶液是否新鲜配制并准确调节pH值。确保移液管电阻处于推荐范围(2.0–3.0 MΩ)。记录过程中需核查上述放大器参数:补偿后的串联电阻不超过10–12 MΩ;电流钳模式下静息膜电位应不低于−70 mV,且细胞能形成稳定的吉欧封接(gigaseal)。
尽管如此,该方案能够稳定地获得高质量细胞,适用于膜片钳记录及其他潜在应用,从而确立了N. furzeri作为细胞水平心脏衰老研究的实用模型。由于N. furzeri在心脏衰老研究中相较于传统哺乳动物模型具有明显优势。作为可在人工饲养条件下繁殖的寿命最短的脊椎动物,与需要18–24个月才能达到相似生物学年龄的小鼠模型相比,它使得在可实现的时间范围内开展心脏衰老的纵向研究成为可能15。尽管其寿命较短,但仍表现出脊椎动物心脏衰老的关键特征,包括电生理重构、动作电位时程保持不变但上升速度降低,以及重要离子电流的下调6。
与现有心肌细胞分离方法的比较。
从多种物种中分离出具有活性的心室心肌细胞是进行单细胞电生理学研究的成熟前提。在哺乳动物中,标准方法依赖于对完整心脏进行逆向主动脉灌流,首先使用无钙缓冲液,随后使用含酶溶液(通常为胶原酶和蛋白酶),并在受控的压力和温度条件下进行。该策略可通过冠状血管系统均匀输送酶,有效清除血液,并相对温和地解离心肌组织,从而获得大量杆状心肌细胞,适用于高分辨率膜片钳记录16,17。
然而,在硬骨鱼类中,心脏的解剖结构以及缺乏与哺乳动物相当的冠状动脉系统, necessitate 重要的修改。在斑马鱼这一心血管研究中最常用的 小型鱼类 模型之一中,心室心肌细胞的成功分离依赖于将完整心脏在酶溶液中进行相对较长时间的消化8,9. 在这些方案中,离体心脏被直接转移至一滴或少量酶溶液中,在室温或适合物种的温度下孵育,随后通过机械吹打释放单个细胞。该方法已被证明可获得具有活性且带横纹的心肌细胞,可用于记录主要的离子电流11.
尽管批量消化法具有实用性,但在应用于非常小或特别脆弱的心脏时存在若干局限性。首先,酶消化过程的控制性较差:心室的外层所接触到的有效酶浓度更高,且作用时间更长,而内层则相对较低,这可能导致消化不均,产生消化不足与过度消化细胞的混合物。其次,长时间浸泡在酶溶液中会增加过度消化的风险,尤其是在不同批次酶的活性存在差异,或心脏特别小的情况下。第三,血液的冲洗主要依赖被动扩散和轻柔的手动冲洗,这种方法可能不足以彻底清除微小的硬骨鱼类心室中狭窄的管腔空间。
我们保留了无钙处理、酶消化和轻柔吹打的一般原则。然而,本研究通过插管进入动脉球并直接灌注心室腔来改进溶液的递送方式。该方法使研究人员能够在消化前将血液从心室腔隙中冲洗干净,在不转移心脏的情况下切换不同溶液,并在心室壁开始松动时及时终止酶消化处理。这些改进对于体型小且结构 delicate 的 N. furzeri 心脏尤为重要,因为长时间浸泡在酶溶液中可能导致过度消化并降低细胞质量。
未来应用
目前的分离方法为未来的研究开辟了多个方向。首先,该方法能够系统地表征N. furzeri心肌细胞中动作电位形态以及离子电流密度、动力学和电压依赖性随年龄变化的特征,从而补充该物种心脏衰老的近期分子与组织学描述2,3,4,5。其次,该实验方案可与药理学工具结合,用于检测调控寿命或健康寿命的干预措施如何在单细胞水平上影响心脏电生理功能。第三,分离得到的N. furzeri心肌细胞可用于膜片钳记录以外的多种应用,包括对离子通道表达及翻译后修饰的年龄相关变化进行分子分析(如qPCR、RNA-seq、蛋白质组学)、免疫细胞化学染色以及肌节结构的高分辨率成像。最后,本文所述的方法框架可适用于其他具有相似心脏大小和解剖结构的小型硬骨鱼类模型,从而拓展N. furzeri在心脏衰老研究中的转化应用价值。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作由俄罗斯科学基金会(资助编号:22-14-00075)支持。作者感谢Andrei Nikiforov在本研究所用Nothobranchius furzeri种群的繁育与维护过程中提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 mL 胰岛素注射器 | Med Aim | 939863 | |
| 10 mL 注射器 | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| 100 mm 培养皿 | SARSTEDT | 83.3902 | |
| 100 μL 微量移液器 | Thermo Scientific | 4640040 | |
| 35 mm 组织培养皿 | SPL LIFE SCIENCES | 11035 | |
| 三通输液阀 | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL 离心管 | Eppendorf | EP0030124537-500EA | |
| 5–200 μL 吸头 | Deltalab | 200009 | |
| 放大器 | Molecular devices | Axopatch 200B | |
| 蓝丁胶 | BOSTIK | 202401906 | |
| 硼硅酸盐玻璃毛细管 | Sutter Instrument | B150-110-10 | |
| 牛血清白蛋白 | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| I 型胶原酶 A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| 分液针(32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| 葡萄糖 | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| 倒置显微镜 | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| 显微操作仪 | RWD | MM-500 | |
| 显微外科眼科镊 | CILITA | F-111T | |
| 显微外科眼科剪 | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| 硝苯地平 | Sigma-Aldrich | N7634 | |
| 灌流系统 | Biotechnologies | Bio_4_p | |
| 拉针仪 | Narishige Group | PC-10 | |
| 硅胶管(d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| 支架 | NV-lab | 00000034085 | |
| 体视显微镜 | Labkompleks LCC | 10557 | |
| 牛磺酸 | Acros Organics | 166545000 | |
| 四乙基氯化铵(TEA) | Merck | 822148 | |
| 河豚毒素 | Tocris Bioscience | 1078 | |
| 胰蛋白酶 | Sigma-Aldrich | T0303 | |
| WinWCP 软件 | University of Strathclyde | - | V5.7.5 |
参考文献
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
重印与许可
本文已发表
视频即将推出