Der Riesenciliaten Stentor coeruleus ist ein klassisches System zur Untersuchung der Regeneration und Wundheilung in Einzelzellen. Durch die gleichzeitige Abbildung von Stentorzellen bei niedriger und hoher Vergrößerung ist es möglich, zytoplasmatische Flüsse vor, während und nach der Verwundung zu messen.
Methodenartikel
Visualisierung des zytoplasmatischen Flusses während der Einzelzell-Wundheilung bei Stentor coeruleus
In diesem Artikel
Zusammenfassung
Zusammenfassung
Obwohl die Wundheilung oft auf der Ebene ganzer Gewebe behandelt wird, sind in vielen Fällen einzelne Zellen in der Lage, Wunden in sich selbst zu heilen und die zerbrochene Zellmembran zu reparieren, bevor der Zellinhalt austritt. Der riesige Einzeller Stentor coeruleus, bei dem Zellen mehr als einen Millimeter groß sein können, war bisher ein klassischer Modellorganismus für die Erforschung der Wundheilung in einzelnen Zellen. Stentorzellen können ohne Verlust der Lebensfähigkeit in zwei Hälften geschnitten und sogar zusammen geschnitten und transplantiert werden. Doch diese hohe Schnitttoleranz wirft die Frage auf, warum das Zytoplasma nicht einfach aus der Größe des Schnitts herausfließt. In dieser Arbeit stellen wir eine Methode vor, mit der Stentorzellen geschnitten werden können und gleichzeitig die Bewegung des Zytoplasmas in der Nähe des Schnitts mit hoher räumlicher und zeitlicher Auflösung abgebildet werden kann. Der Schlüssel zu unserer Methode liegt in der Verwendung einer "Doppeldecker"-Mikroskopkonfiguration, bei der die Operation unter einem Präpariermikroskop durchgeführt wird, das auf eine Kammer fokussiert ist, die gleichzeitig von unten mit hoher Auflösung mit einem inversen Mikroskop mit einer hohen NA-Linse betrachtet wird. Dieser Aufbau ermöglicht ein hohes Maß an Kontrolle über den chirurgischen Eingriff und ermöglicht gleichzeitig eine hochauflösende Verfolgung des Zytoplasmas.
Einleitung
Regeneration und Wundheilung sind wichtige biologische Prozesse, deren Mechanismen nach wie vor aktiv erforscht werden. Tatsächlich ist die Fähigkeit, Wunden zu heilen und beschädigte Teile zu regenerieren, eines der Merkmale, die Lebewesen von unbelebten Objekten unterscheiden. Normalerweise geht man davon aus, dass die Regeneration durch die Differenzierung von Stammzellen in verschiedene Zelltypen vermittelt wird, die für den Wiederaufbau eines beschädigten oder abgetrennten tierischen Teils benötigt werden, während die Wundheilung als neue Zellen betrachtet wird, die in eine Wunde eindringen, um ein intaktes Epithel wieder aufzubauen. Beide Prozesse scheinen also durch Kollektive einzelner Zellen vermittelt zu werden, und scheinen daher durch und durch multizelluläre Prozesse zu sein. Es ist daher möglicherweise überraschend, dass einzelne Zellen in einigen Fällen in der Lage sind, Wunden zu reparieren und verlorene Bestandteile zu regenerieren1. Die Wundheilung innerhalb einzelner Zellen kann mehrere Wege umfassen, einschließlich der Kontraktion des Aktin-Myosin-Geldbeutels um die Wunde und des Membranflickens durch schnelle Fusion der exozytotischen Vesikel1-3. Obwohl viele Zelltypen zu einem gewissen Grad der Wundheilung fähig sind4-6, ist das vielleicht dramatischste Beispiel der Riesenciliaten Stentor coeruelus7, der in Abbildung 1 dargestellt ist. Einzelne Stentorzellen sind 1 mm lang und mit Reihen von Flimmerhärchen bedeckt. Stentorzellen sind kegelförmig mit einem Mundapparat, der an einem Ende aus Tausenden von Zilien und am anderen Ende aus einer schmalen Haltestruktur besteht. Stentor war ein klassischer Modellorganismus für die Erforschung der Regeneration, denn wenn ein Teil der Zelle abgeschnitten wurde, konnte sie sich regenerieren7. Zum Beispiel zeigte Thomas Hunt Morgan8 in einer klassischen Versuchsreihe, dass eine Stentorzelle in zwei Hälften geschnitten werden kann und jede Hälfte eine normal proportionierte Zelle innerhalb weniger Stunden regeneriert8. Die molekularen Signalwege, die für die Regeneration bei Stentor verantwortlich sind, sind noch völlig unbekannt.
Die Fähigkeit von Stentorzellen, als Regenerationsmodellsystem zu dienen, beruht auf der erstaunlichen Fähigkeit dieser Zellen, sich selbst zu heilen, nachdem sie geschnitten wurden. Warum tritt das Zytoplasma einer Stentorzelle nicht aus, wenn die Zelle geschnitten wird? Die Wundheilung ist nicht auf eine unmittelbare Kontraktion der Zellrinde zurückzuführen, da es möglich ist, zwei Stentorzellen zu nehmen, sie zu schneiden und dann die beiden geschnittenen Zellen in verschiedenen Konfigurationen miteinander zu verbinden7. Bei solchen Transplantationsexperimenten muss das Zytoplasma der beiden Zellen freigelegt bleiben, da es beim Zusammenschieben der Zellen verschmilzt. Irgendwie ist das Zytoplasma dem umgebenden Medium ausreichend ausgesetzt, um eine Transplantation zu ermöglichen, aber es fließt dennoch nicht aus der Zelle. Ist das Zytoplasma von Stentor so elastisch, dass es einfach nicht herausfließen kann, selbst wenn ein großes Loch in die Plasmamembran gemacht wird? Erhöhen Zellen die Viskosität des Zytoplasmas lokal um eine Wunde, um zu verhindern, dass das Zytoplasma herausfließt? Zytoplasma ist ein hochkomplexes aktives Material9-11, und die Stentor-Wundheilungsreaktion stellt eine einzigartige Gelegenheit dar, die zytoplasmatischen Strömungen und die Mechanik während der Einzelzell-Wundheilung zu untersuchen. Der Einsatz chirurgischer Methoden zur Induktion einer Verwundung im Stentor stellt jedoch eine technische Herausforderung dar. Um eine 1 mm lange Zelle mit Glasnadeln zu schneiden, dem konventionellen chirurgischen Paradigma, ist es notwendig, mit geringer Vergrößerung und großem Arbeitsabstand zu arbeiten. Unter diesen bildgebenden Bedingungen ist es nicht möglich, den Fluss des Zytoplasmas zu verfolgen, und man kann nur feststellen, ob das Zytoplasma in der Zelle verbleibt oder nicht. Die eigentliche Frage, die wir stellen möchten, ist, wie sich die Bewegung und Viskosität des Zytoplasmas während des Schneidens und der Heilung ändern kann. Dies erfordert eine hochauflösende Bildgebung. Hier präsentieren wir eine Adaption des Tartar-Protokolls für das Schneiden von Stentor7, die es ermöglicht, das Schneiden unter einer Optik mit geringerer Vergrößerung durchzuführen, um die gesamte Zelle zu sehen und gleichzeitig den Zytoplasmafluss mit hoher Auflösung zu beobachten, so dass dieses System als Plattform für die Erforschung der Mechanismen der Einzelzell-Wundheilung verwendet werden kann.
Protokoll
1. Zellkultur und -sammlung
- Beziehen Sie Stentor coeruleus-Zellen entweder aus natürlichen Teichen, wie in Tartar7 beschrieben, oder von einem kommerziellen Anbieter (siehe Reagenzien).
- Pflegen Sie Kulturen, indem Sie im Dunkeln bei 20 ºC in modifiziertem Stentor Medium (MSM) züchten, das an die von Tartar7 und De Terra12 beschriebenen Rezepte angepasst ist und 0,75 mM Na2CO3, 0,15 mM KHCO3, 0,15 mM NaNO3, 0,15 mM KH2PO4, 0,15 mM MgSO4, 0,5 mM CaCl2 enthält, und 1,47 mM NaCl.
- Ergänzen Sie das MSM-Medium mit einer Kohlenstoffquelle, indem Sie dem Medium lebende Beute hinzufügen. Züchten Sie Kulturen mit Chlamydomonas reinhardtii TAP-Medium unter Verwendung von Standardkulturmethoden13. Waschen Sie Chlamydomonas-Zellen vor der Fütterung in MSM. Füttern Sie 300 ml Stentorkulturen ~3 x 10⁷ Chlamydomonas Zellen 2-3x pro Woche.
- Sammeln Sie Stentorzellen für die Operation mit einer Pipette. Stentor neigen dazu, sich am Boden und an den Seiten der Kulturschale zu verankern, und um Zellen zu sammeln, bewegen Sie die Kultur, indem Sie Luft durch eine Pipettenspitze blasen, bis sich die Zellen zu lösen beginnen und frei zu schwimmen.
- Fangen Sie schwimmende Zellen mit einer Pipette auf, die mit einer Spitze mit breiter Öffnung ausgestattet ist, um ein Scheren der Zellen zu vermeiden.
- Waschen Sie die gesammelten Zellen in frischem MSM.
2. Vorbereitung von Werkzeugen für die Mikrochirurgie
- Halten Sie zwei Glasrührstäbe über einen Bunsenbrenner oder eine andere Flamme, bis die Enden zu schmelzen beginnen.
- Berühren Sie die Enden der beiden Stäbe miteinander, so dass das geschmolzene Glas verschmilzt.
- Nachdem Sie ein kleines Tröpfchen geschmolzenes Glas zwischen den beiden Stäben gebildet haben, nehmen Sie sie von der Flamme, lassen Sie sie 1-2 Sekunden abkühlen und ziehen Sie sie dann auseinander, um einen sauberen Bruch zu machen. Im Idealfall zieht sich das Glas in dünne Fäden heraus und bricht glatt, wenn das Glas abkühlt, was zu einer etwa 1-2 cm langen Nadel mit einer feinen Spitze am Ende führt (Abbildung 2).
- Wenn die resultierende Nadel suboptimal ist, können die Spitzen zu Glasabfällen gebrochen und die Stäbe wiederverwendet werden.
3. Einbetten von Zellen für die Mikrochirurgie und Beobachtung (normale Chirurgie)
- Bereiten Sie eine quadratische Vaseline-Wandkammer vor, indem Sie einen quadratischen Gummistempel verwenden, der mit Vaseline beschichtet und auf ein Glasdeckglas gedrückt wird.
- Füge MSM mit 2% Methylcellulose zum Vaseline-Quadrat hinzu.
- Legen Sie das Deckglas in einen Kunststoffadapter, mit dem das Deckglas mit einem Standard-Objektträgerhalter auf ein Mikroskop aufgesetzt werden kann (Abbildung 3).
- Fügen Sie dem MSM gewaschene Zellen aus Schritt 1.6 plus Methylcellulose hinzu, um die Beweglichkeit der Stentorzellen zu behindern, damit sie während der Operation an Ort und Stelle bleiben.
- Ordnen Sie die Zellen in der Methylcellulose so an, dass sie gleichmäßig verteilt sind und nahe genug an die Oberfläche des Deckglases geschoben werden, um während der Bildgebung scharf zu sein.
4. Hochauflösende Bildgebung der Wundheilung in lebenden Stentoren
Um eine Stentorzelle gleichzeitig mit hoher Auflösung abzubilden, während sie chirurgisch unter geringer Vergrößerung geschnitten wird, konstruieren Sie ein "Doppeldecker"-Mikroskop mit einem Präparierfernrohr, das am Okularkopf des inversen Zielfernrohrs befestigt ist, so dass es auf die Oberseite des Objektträgers fokussiert wird, während das inverse Zielfernrohr von unten auf den Objektträger fokussiert wird.
- Setzen Sie einen Objektträger auf das umgekehrte Zielfernrohr (verwenden Sie entweder eine Zeiss Axiovert 200M oder eine Olympus IX80).
- Nehmen Sie den Präpariermikroskopkörper von seinem Stativ und bestimmen Sie die ungefähre Position über dem inversen Mikroskopokular, um das Präparierfernrohr zu platzieren, damit der Objektträger bei geringer Vergrößerung sichtbar gemacht werden kann.
- Modifizieren Sie einen Karton so, dass er die gleiche Dicke wie der gewünschte Abstand zwischen dem Okularkopf des invertierten Oszilloskops und dem Präparierfernrohr hat, und kleben Sie dann mit Laborklebeband in das invertierte Zielfernrohr ein, das nach Abschluss des Experiments leicht entfernt werden kann. Passen Sie die Dicke des Kastens an die genaue Konfiguration des Okularkopfes des inversen Mikroskops und an die Größe des Präpariermikroskops an, so dass sich die Probe im Sichtfeld befindet, ohne dass das Präparierfernrohr nach dem Anbringen bewegt werden muss.
- Halten Sie das Präparierzielfernrohr gegen die Box, bewegen Sie es, bis der Objektträger scharf ist, und kleben Sie es dann wieder mit Laborklebeband auf die Box. Die endgültige Konfiguration ist in Abbildung 4 dargestellt.
- Bildzellen durch invertiertes Oszilloskop mit DIC-Optik und einer 20-fachen Luftobjektivlinse. Verwenden Sie einen DIC-Kondensor mit großem Arbeitsabstand, um genügend Platz für die Durchführung der Mikrochirurgie von oben zu schaffen.
- Erfassen Sie Bilder mit einer Bildrate von 2 Bildern/s mit einer CCD-Kamera mit 512 x 512 Pixeln.
- Beginnen Sie mit der Akquise, bevor Sie mit dem Schneiden der Zellen beginnen, um das anfängliche zytoplasmatische Flussmuster zu erfassen und alle Stadien der Wunde und des Wundheilungsprozesses zu beobachten.
- Beenden Sie die Erfassung, wenn die Zelle wieder normal aussieht und/oder aktiv beweglich ist, um zytoplasmatische Bewegungen während des gesamten Regenerationsprozesses zu visualisieren und zu messen.
5. Analyse des zytoplasmatischen Flusses während der Wundheilung
Messen Sie den zytoplasmatischen Fluss mit Hilfe der Particle Image Velocimetry (PIV). Diese Technik ist bei der Untersuchung der Fluiddynamik Routine und kann Strömungsfelder erzeugen, wenn keine individuell verfolgbaren Partikel in der Flüssigkeit vorhanden sind. PIV wurde verwendet, um Zytoplasmaflüsse auf der Grundlage der Bildgebung subzellulärer Vesikel und anderer im Zytoplasma sichtbarer Merkmale durch Durchlichtmikroskopiezu messen 14.
- Laden Sie PIVLab, ein MATLAB-Paket für PIV, von der Website http://pivlab.blogspot.com/ herunter.
- Laden Sie den TIFF-Bildstapel für jede Videosequenz in das PIV-Programm in MATLAB.
- Generieren Sie manuell eine Maske für jeden Bildstapel, um Bereiche der Rohdaten außerhalb des Körpers von Stentor zu maskieren.
- Legen Sie PIVLab so fest, dass die Einstellung für die schnelle Fourier-Transformation und eine Bin-Größe von 64 x 64 Pixeln verwendet werden, wodurch die Pixel in jedem Frame in größere quadratische Pixel unterteilt werden.
- Führen Sie PIVLab aus, um Kreuzkorrelationen zwischen den Pixeln in jedem Frame mit benachbarten Pixeln im nächsten Frame zu berechnen, um einen zeitabhängigen Flussvektor zu erhalten, der auf jedem binnierten Pixel zentriert ist und die gleiche Zeitauflösung wie unsere Rohdaten hat.
- Berechnen Sie Zeitdurchschnitte der resultierenden Vektorfeldausgabe, um Stromlinien für den Vergleich zwischen Daten zu erzeugen, die mit dem Stentor vor dem Schneiden und während der Wundheilung aufgenommen wurden, und berechnen Sie Histogramme der Strömungsgeschwindigkeiten (zur Untersuchung der Strömungsstärke) und der Geschwindigkeitsänderung an einem bestimmten Pixel im Laufe der Zeit (zur Untersuchung von Strömungsschwankungen).
- Für Bildsequenzen, bei denen Stentor in zwei Hälften gespalten ist und Zytoplasma sichtbar in den umgebenden Puffer austritt, berechnen Sie den Gesamtfluss des Zytoplasmas zurück in den eigentlichen Zellkörper, indem Sie die durchschnittliche Strömungsgeschwindigkeit mit der Querschnittsfläche der Basis der extrazellulären Zytoplasmablase multiplizieren.
Ergebnisse
Mithilfe der oben beschriebenen Protokolle wurde festgestellt, dass das Cytoplasma von Stentor sowohl vor als auch nach dem Durchtrennen bemerkenswert dynamisch ist. Video 1 zeigt den umfangreichen Cytoplasmafluss in nicht durchtrennten Zellen. Entgegen unserer ursprünglichen Erwartung, dass die Fähigkeit von Stentor, einem Durchtrennen zu überleben, mit einer Versteifung oder Gelierung des Cytoplasmas einhergehen würde, bleibt das Cytoplasma, wenn Stentor-Zellen so heftig durchtrennt werden, dass das Cytoplasma aus der Zelle herausgezogen wird, äußerst dynamisch und strömt auf stark gerichtete Weise wieder in die Zelle zurück (Video 2).
Neben dem Nachweis eines zuvor unerwarteten Ausmaßes an zytoplasmatischer Bewegung während der Wundheilung kann mit der hohen Auflösung der Bildgebung im Assay die Strömungsgeschwindigkeit mittels Particle-Image-Velocimetry quantifiziert werden. Die Möglichkeit, derartige Messungen durchzuführen, ermöglicht es, die Wirkung chemischer Inhibitoren streng zu überprüfen.
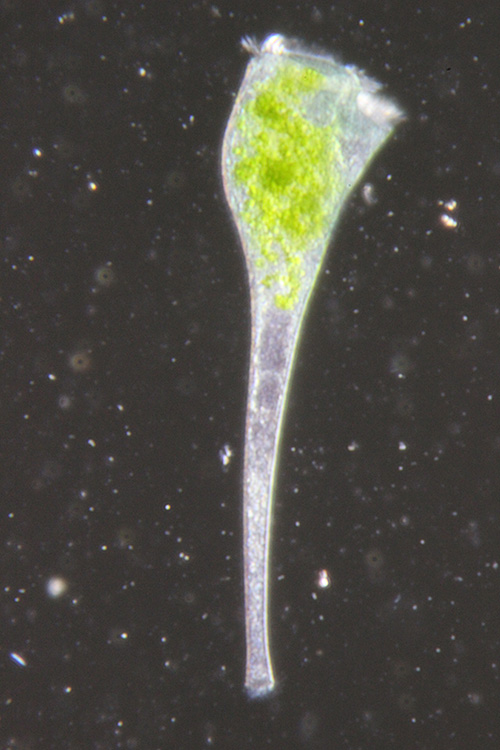
Abbildung 1. Morphologie einer lebenden Stentor-Zelle. Dunkelfeldaufnahme einer lebenden Stentor-Zelle, die gemäß Verfahren 1.3 mit Chlamydomonas gefüttert wurde, sichtbar als grünes Material in den Nahrungsvakuolen. Der Mundapparat, über den die Zelle frisst, ist als Ring aus Cilien an der oberen Bildkante erkennbar.
Klicken Sie hier, um die Abbildung in größerer Auflösung anzusehen.

Abbildung 2. Herstellung einer Glasnadel für chirurgische Eingriffe. (A) Die Nadel wird aus dem Ende eines massiven Glasstabes gezogen. (B) Hochvergrößerter Blick auf die Nadelspitze, der die für chirurgische Eingriffe erforderliche Länge und Schärfe zeigt.
Klicken Sie hier, um das Bild in größerer Auflösung anzusehen.
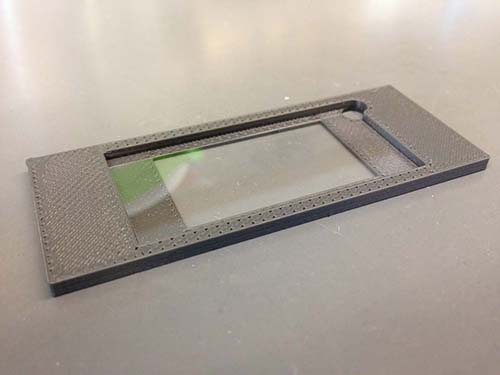
Abbildung 3. Individuell angefertigte Deckglas-Halterung für Mikrochirurgie. Um während einer Operation freien Zugang zu ermöglichen und gleichzeitig optimale Bildgebungsbedingungen zu gewährleisten, werden Zellen auf einem Deckglas und nicht auf einem dicken Objektträger montiert. Damit das Deckglas auf die Mikroskopbühne passt, kann ein Halter aus Kunststoff mit einem 3D-Drucker hergestellt werden. Der Halter hat die gleichen Abmessungen wie ein Standard-Objektträger, während die Aussparung in der Mitte exakt den Maßen des Deckglases entspricht. Eine Öffnung in einer Ecke ermöglicht es, das Deckglas aus dem Halter herauszudrücken.
Klicken Sie hier, um die Abbildung in größerer Auflösung anzusehen.
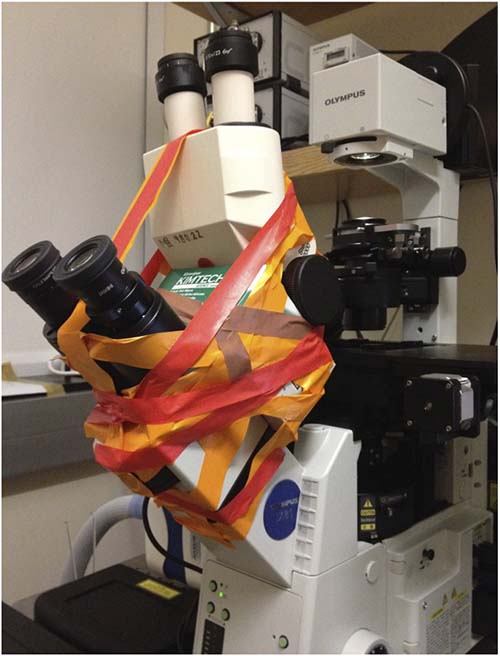
Abbildung 4. Doppelstock-Mikroskop-Konfiguration. Ein Stereomikroskopkopf ist auf dem Okularkopf eines invertierten Mikroskops montiert. Laborband ermöglicht es, die Apparatur schnell zusammen- und auseinanderzubauen, sobald das Experiment abgeschlossen ist.
Hier klicken, um die Abbildung vergrößert anzuzeigen.
Video 1. Beispiel für im lebenden Stentor-Zellplasma beobachtete Strömung. Zelle mit 10X-Objektiv und Dunkelfeldoptik mit einer Rate von 2 Bildern/Sekunde abgebildet.
Video 2. Bildgebung einer Stentor-Zelle, während sie mit einer Glasnadel durchtrennt und beschädigt wird. Nach dem Durchtrennen wurde eine beträchtliche Menge Zytoplasma aus dem Hauptzellkörper herausgezogen, fließt jedoch rasch wieder in die Zelle zurück.
Diskussion
Die wichtigste Anwendung dieser Methode wird darin bestehen, sie zur Bestimmung der molekularen Signalwege zu verwenden, die den zytoplasmatischen Fluss während der Wundheilung im Stentor regulieren. Es steht eine breite Palette chemischer Inhibitoren zur Verfügung, die sowohl auf Motorproteine als auch auf Komponenten des Zytoskeletts abzielen. Inhibitoren der Kalzium-Signalübertragung wären ebenfalls wahrscheinliche Kandidaten. Es wäre auch von Interesse, die Pigmentkörner (Extrusomen), die das blaue Pigment Stentorin enthalten, dessen Freisetzung aus der Zelle unter Stress ausgelöst wird, zu entfernen oder zu reduzieren und zu fragen, wie die exozytotische Freisetzung von Stentorin den Fluss des benachbarten Zytoplasmas beeinflussen kann. Das Pigment kann mit einer einfachen Bleichbehandlung15 aufgebraucht werden, die unmittelbar vor dem Schneiden durchgeführt werden kann. Es scheint keine einfache Möglichkeit zu geben, den Wundheilungstest parallel durchzuführen, da die Zellen einzeln geschnitten und abgebildet werden müssen. Mit einem einzigen Mikroskop wäre es also möglich, Zellen mit einer Rate von etwa 1 pro 0,5 Stunden zu operieren und zu messen, so dass es an einem einzigen Arbeitstag möglich sein sollte, genügend Datenpunkte für eine einzige Verbindung zu erhalten, um festzustellen, ob sie einen statistisch signifikanten Einfluss auf den Prozess hat. Obwohl die Methode somit in keiner Weise einen hohen Durchsatz bietet, wird es durchaus machbar sein, eine ausgewählte Gruppe von Kandidatenverbindungen zu screenen, die für einige sorgfältig ausgewählte Zielwege spezifisch sind.
Eine wesentliche Einschränkung des derzeitigen Ansatzes ist die relativ grobe Methode zum Zusammenbau des Doppeldeckermikroskops. Unter der Annahme, dass das für die Bildgebung verwendete inverse Mikroskop ein allgemeines Instrument ist, das andere Arbeiter für andere Zwecke verwenden müssen, ist eine wichtige Überlegung die Leichtigkeit, mit der die Vorrichtung zerlegt und wieder zusammengebaut werden kann. Während die derzeitige Methode mit Laborklebeband in der Tat schnell und einfach zu demontieren ist, erfordert sie jedes Mal eine sorgfältige Ausrichtung durch den Benutzer während der Montage. Eine wichtige Modifikation wäre daher die Konstruktion einer kundenspezifischen abnehmbaren Halterung mit Schlitzen für den Okularkopf des umgekehrten Zielfernrohrs und den Körper des Präparierfernrohrs. Diese soll mit moderner 3D-Druckertechnik einfach herzustellen sein.
Eine zweite Einschränkung des Ansatzes ist die Abhängigkeit von DIC-Bildgebung von intrazellulären Organellen als Marker für die Strömung. Da die Identität dieser am Mikroskop beobachteten Organellen derzeit nicht bekannt ist, ist es nicht möglich, ihre Größe oder mögliche Wechselwirkungen mit anderen zellulären Komponenten zu kennen. Es kann daher von Vorteil sein, extrinsische Tracer wie fluoreszierende Kügelchen zu injizieren und diese zur Verfolgung der Strömung zu verwenden. Dies würde jedoch einen zusätzlichen Schritt - die Mikroinjektion - erfordern, bevor das Experiment durchgeführt werden könnte, was den Assay weiter verlangsamen würde.
Die letzte wichtige Einschränkung ist die Abhängigkeit von einer einzigen Bildebene für die Datenerfassung. Die Hauptbedeutung dieses Assays besteht darin, dass er über die einfache Frage, ob eine Wunde heilt oder nicht, hinausgeht und eine detaillierte Analyse des Flussmusters ermöglicht. In diesem Zusammenhang wird es äußerst wichtig sein, die Bildgebung auf die dreidimensionale Bildgebung auszuweiten. Die aktuelle Methode bildet eine einzelne Fokusebene ab, und wenn die PIV-Analyse durchgeführt wird, ist das Ergebnis ein Schnitt durch das gesamte dreidimensionale Strömungsfeld. Das ist informativ, aber unvollständig. Durch die Aufnahme von 3D-Bildern in jedem Zeitschritt sollte es möglich sein, ein vollständig dreidimensionales Strömungsfeld zu erhalten. Dies ist besonders wichtig, um genau zu beobachten, wie sich das Zytoplasma in unmittelbarer Nähe der Wundstelle bewegt.
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden finanziellen Interessen haben.
Danksagungen
Diese Arbeit wurde durch das NIH-Stipendium R01 GM090305 (WFM) unterstützt. Das hier beschriebene Verfahren wurde im Sommer 2012 im Physiologie-Kurs des Marine Biological Laboratory entwickelt, und wir danken den Studenten, Dozenten und Kursleitern für viele hilfreiche und anregende Gespräche.
Materialien
AUSRÜSTUNG:
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Stentor coeruleus Lebendkultur | Carolina Biological 131598 | ||
| Methylcellulose, 1.500 cP | Sigma | M0387< | |
| Materialname | Firma | Katalognummer | |
| 5 Zoll lang | Fisher Scientific | 11-380A | |
| Kulturschale 4,5 in 250 ml Glas | Carolina Biological 741004 | ||
| IX81 inverses | Mikroskop Olympus | ||
| Axiovert 200M inverses Mikroskop | Zeiss | ||
| Stemi 2000 Stereomikroskop | Zeiss | ||
| Evolve 512 x 512 EMCCD Kamera | Photometrics | ||
| Plan Apo 20X Objektiv | Olympus | UPLSAPO |
Referenzen
- Sonnemann, K. J., Bement, W. M. Wound repair: toward understanding and integration of single-cell and multicellular wound responses. Annu. Rev. Cell Dev. Biol. 27, 237-264 (2011).
- Idone, V., Tam, C., Andrews, N. W. Two-way traffic on the road to plasma membrane repair. Trends Cell Biol. 18 (11), 552-559 (2008).
- Reddy, A., Caler, E. V., Andrews, N. W. Plasma membrane repair is mediated by Ca2+-regulated exocytosis of lysosomes. Cell. 106 (2), 157-169 (2001).
- Foissner, I., Wastenays, G. O. The characean internodal cell as a model system for studying wound healing. J. Microsc. 247 (1), 10-12 (2012).
- Bement, W. M., Mandato, C. A., Kirsch, M. N. Wound-induced assembly and closure of an actomyosin purse string in Xenopus oocytes. Curr. Biol. 9 (11), 579-587 (1999).
- Kim, H. G., Klotchkova, T. A., Kang, Y. M. Life without a cell membrane: regeneration of protoplasts from disintegrated cells of the marine green alga Bryopsis plumosa. J. Cell Sci. 114 (11), 2009-2014 (2001).
- Tartar, V. The Biology of Stentor. , Pergamon Press. 434 (1961).
- Morgan, T. H. Regeneration of proportionate structures in Stentor. Biol. Bull. 2 (6), 311-328 (1901).
- Heidemann, S. R., Wirtz, D. Towards a regional approach to cell mechanics. Trends Cell Biol. 14 (4), 160-166 (2004).
- Kasza, K. E., Rowat, A. C., Liu, J., Angelini, T. E., Brangwynne, C. P., Koenderinck, G. H., Weitz, D. A. The cell as a material. Curr. Opin. Cell Biol. 19 (1), 101-107 (2007).
- Mitchison, T. J., Charras, G. T., Mahadevan, L. Implications of a poroelastic cytoplasm for the dynamics of animal cell shape. Sem. Cell Dev. Biol. 19 (3), 215-223 (2008).
- De Terra, N. Culture of Stentor coeruleus on Colpidium campylum. J. Eukar. Microbiol. 13 (3), 491-492 (1966).
- Harris, E. H. The Chlamydomonas Sourcebok. 1, (2009).
- Vallotton, P., Ponti, A., Waterman-Storer, C. M., Salmon, E. D., Danuser, G. Recovery, visualization, and analysis of actin and tubulin polymer flow in live cells: a fluorescent speckle microscopy study. Biophys. J. 85 (2), 1289-1306 (2003).
- Miyake, A., Harumoto, T., Iio, H. Defence function of pigment granules in Stentor coeruleus. Eur. J. Protistol. 37 (1), 7-88 (2001).
Nachdrucke und Genehmigungen
