Die Frage, wie Chromatin Regulierungsbehörden und Chromatin-Staaten betreffen das Genom in vivo ist der Schlüssel zum Verständnis, wie frühe Zellschicksal Entscheidungen werden in den sich entwickelnden Embryo gemacht. ChIP-Seq-die beliebteste Ansatz zur Chromatin Funktionen auf globaler Ebene, wird hier für Xenopus Embryonen beschrieben untersuchen.
Methodenartikel
Genomweite Snapshot von Chromatin Regulierungsbehörden und Staaten in
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Rekrutierung von Chromatinregulatoren und die Zuordnung von Chromatinzuständen zu spezifischen genomischen Loci sind entscheidend für Entscheidungen über das Zellschicksal und die Gewebe- und Organbildung während der Entwicklung. Die Bestimmung der Positionen und Konzentrationen solcher Chromatinmerkmale in vivo wird wertvolle Informationen über die räumlich-zeitliche Regulation genomischer Elemente liefern und die Bestrebungen unterstützen, die Entwicklung des embryonalen Gewebes in vitro nachzuahmen. Die am häufigsten verwendete Methode für genomweite und hochauflösende Profilerstellung ist die Chromatin-Immunpräzipitation, gefolgt von der Next-Generation-Sequenzierung (ChIP-Seq). Dieses Protokoll beschreibt, wie dotterreiche Embryonen wie die des Frosches Xenopus für ChIP-Seq-Experimente verarbeitet werden können, und bietet einfache Befehlszeilen für die Analyse nach der Sequenzierung. Aufgrund der hohen Effizienz, mit der das Protokoll Zellkerne aus formaldehydfixiertem Gewebe extrahiert, ermöglicht die Methode ein einfaches Upscaling, um genügend ChIP-Material für ein genomweites Profiling zu erhalten. Unser Protokoll wurde erfolgreich eingesetzt, um verschiedene DNA-bindende Proteine wie Transkriptionsfaktoren, Signalmediatoren, Komponenten der Transkriptionsmaschinerie, Chromatinmodifikatoren und posttranslationale Histonmodifikationen zu kartieren, und zwar in verschiedenen Stadien der Embryogenese. Schließlich sollte dieses Protokoll auf breite Anwendung auf andere Modell- und Nicht-Modellorganismen anwendbar sein, da immer mehr Genomassemblierungen verfügbar werden.
Einleitung
Die ersten Versuche, Protein-DNA-Wechselwirkungen in vivo zu charakterisieren, wurden vor etwa 30 Jahren berichtet, um die RNA-Polymerase-vermittelte Gentranskription in Bakterien und in der Fruchtfliege zu verstehen1,2. Seitdem hat sich die Verwendung von Immunpräzipitation zur Anreicherung unterschiedlicher Chromatinmerkmale (ChIP) weit verbreitet, um Bindungsereignisse und Chromatinzustände mit hoher Effizienz zu erfassen3. Mit dem Aufkommen leistungsfähiger Microarray-Technologien führte diese Methode zur Charakterisierung genomweiter Chromatinlandschaften4. In jüngster Zeit ist das Chromatin-Profiling noch umfassender und hochauflösender geworden, da nun Millionen von co-immunpräzipitierten DNA-Templates parallel sequenziert und auf das Genom abgebildet werden können (ChIP-Seq)5. Da immer mehr Genomassemblierungen zur Verfügung stehen, ist ChIP-Seq ein attraktiver Ansatz, um mehr über die Genomregulation zu erfahren, die biologischen Prozessen zugrunde liegt.
Hier stellen wir ein Protokoll zur Verfügung, um ChIP-Seq an dotterreichen Embryonen wie denen des Frosches Xenopus durchzuführen. Entwürfe der Genome der beiden weit verbreiteten Xenopus-Arten – X. tropicalis und X. laevis – wurden jetzt vom International Xenopus Genome Consortiumveröffentlicht 6. Die Embryonen von Xenopus-Spezies weisen viele wünschenswerte Merkmale auf, die die Interpretation genomweiter Chromatinstudien erleichtern und ermöglichen, einschließlich der Produktion einer großen Anzahl hochwertiger Embryonen, der Größe der Embryonen selbst und ihrer äußeren Entwicklung. Darüber hinaus sind die Embryonen für klassische und neuartige Manipulationen wie die Rückverfolgung der Zelllinie, die In-situ-Hybridisierung des gesamten Mounts, die RNA-Überexpression und die TALEN/CRISPR-vermittelte Knockout-Technologie zugänglich.
Das folgende Protokoll baut auf der Arbeit von Lee et al., Blythe et al. und Gentsch et al. auf. 7-9. Kurz gesagt, Xenopus-Embryonen werden in der interessierenden Entwicklungsphase formaldehydfixiert, um Proteine kovalent an ihre assoziierte genomische DNA zu binden (zu vernetzen). Nach der Kernextraktion wird das vernetzte Chromatin fragmentiert, um die nachfolgende Sequenzierung auf spezifische genomische Bindungs- oder Modifikationsstellen zu konzentrieren und die Beiträge flankierender DNA-Sequenzen zu minimieren. Anschließend werden die Chromatinfragmente mit einem Antikörper in ChIP-Qualität immunpräzipitiert, um diejenigen anzureichern, die das interessierende Protein enthalten. Die co-immunpräzipitierte DNA wird vom Protein abgestreift und gereinigt, bevor eine indizierte (gepaarte) Bibliothek für das Next-Generation-Sequencing (NGS) erstellt wird. Am Ende werden einfache Kommandozeilen für die Post-Sequencing-Analyse von ChIP-Seq-Daten angeboten.
Protokoll
HINWEIS: Alle Xenopus Arbeit vollumfänglich den britischen Animals (Scientific Procedures) Act von 1986, wie durch die MRC National Institute for Medical Research durchgeführt.
1. Vorbereitungen
- Schätzen Sie die Anzahl von Embryonen für den Chip-Experiment (siehe Diskussion) erforderlich.
- Folgende Lösungen, die bei Raumtemperatur gelagert werden, hergestellt: 500 ml 10x Marc modifiziertem Ringers (MMR) ohne EDTA, pH auf 7,5 eingestellt und durch Autoklavieren sterilisiert (1 M NaCl, 20 mM KCl, 20 mM CaCl 2, 10 mM MgSO 4, 50 mM HEPES pH 7,5), 10, 1 ml des SDS-Elutionspuffer (50 mM Tris-HCl pH 8,0, 1 mM EDTA, 1% SDS) und 1 ml des DNA 5x Ladepuffer (0,2% Orange G, 30% Glycerin, 60 mM EDTA, pH 8,0).
- Bereiten Sie die folgenden Lösungen, die bei 4 ° C gelagert werden: 50 ml HEG-Puffer (50 mM HEPES-KOH, pH 7,5, 1 mM EDTA pH 8,0, 20% Glycerin) 500 ml Extraktionspuffer E1 (50 mM HEPES-KOH pH 7,5, 150 mM NaCl, 1 mM EDTA. 10% Glycerin, 0,5% Igepal CA-630, 0,25% Triton X-100), E2 (10 mM Tris-HCl pH 8,0, 150 mM NaCl, 1 mM EDTA, 0,5 mM EGTA) und E3 (10 mM Tris-HCl pH 8,0, 150 mM NaCl, 1 mM EDTA, 1% Igepal CA-630, 0,25% Na-Desoxycholat, 0,1% SDS), 500 ml RIPA-Puffer (50 mM HEPES-KOH, pH 7,5, 500 mM LiCl, 1 mM EDTA , 1% Igepal CA-630, 0,7% Na-Desoxycholat) und 50 ml TEN-Puffer (10 mM Tris-HCl pH 8,0, 1 mM EDTA, 150 mM NaCl).
- Partitur und Clip ein 15 ml konischen Polystyrolröhrchen an der 7-ml-Markierung. Dieses Röhrchen zu Kernextrakten unterziehen Beschallung enthalten.
- Für Post-Sequenzanalyse, mit einem Multicore-Unix-Betriebs Computer mit mindestens 8 GB RAM und 500 GB Festplattenspeicher. Installieren Sie die folgende Software lokal von denen die meisten in der Befehlszeile verwendet: FastQC, Illumina casava-1.8 Qualitätsfilter, Bowtie 11, samtools 12, HOMER 13, MACS2 14, IGV 15,16, Cluster3 17, Java TreeView, BLAST + 18, und b2g4pipe 19. Überprüfen Sie die Installationsanweisungen und Anforderungen für Compiler und Software von Drittanbietern.
- Erstellen Sie eine Bowtie-Index zum Ausrichten kurz NGS liest zu der Xenopus-Genoms. Ein Beispiel ist hier für den X gezeigt tropicalis-Genom v7.1 (November 2011), die als eine FASTA-Datei (genome.fa) vom Xenbase FTP-Server (/ pub / Genomics / JGI) heruntergeladen werden kann. Bewegen Sie den FASTA-Datei in das Unterverzeichnis Index Bowtie.
- Verwenden Sie die folgende Befehlszeile (hier nach dem Prompt-Zeichen>), um xenTro7 Index-Dateien zu generieren:
> Bowtie-build /path/to/bowtie/index/genome.fa xenTro7
> Export BOWTIE_INDEXES = / path / to / Fliege / index /
- Verwenden Sie die folgende Befehlszeile (hier nach dem Prompt-Zeichen>), um xenTro7 Index-Dateien zu generieren:
- Laden Sie die Gen-Annotation-Datei (GTF) von der UCSC Genome Browser oder der Spiegel-Site auf dem Server für NIMR neuesten Genom-Versionen (genomes.nimr.mrc.ac.uk) über Tools / Table Browser. Verwenden Sie das Genom FASTA-Datei und das GTF-Datei auf H anpassenOMER für Xenopus (zB X. tropicalis-Genom v7.1, - nennen xenTro7).
- Alternativ können Sie auch vorgefertigte HOMER Pakete für einige ältere Versionen des Xenopus-Genoms.
> LoadGenome.pl -name xenTro7 -org null -fasta /path/to/genome.fa -gtf path / to / genes.gtf
- Alternativ können Sie auch vorgefertigte HOMER Pakete für einige ältere Versionen des Xenopus-Genoms.
- Erstellen Sie ein Genom Spur (.genome Datei) für die Genom-Browser IGV durch Hochladen einer indizierten FASTA-Datei (genome.fa mit genome.fa.fai Datei im selben Ordner) und der Anmerkungsdatei (genes.gtf). Erstellen Sie ein Genom Gerüst Index (genome.fa.fai) für die Xenopus-Genom wie folgt:
> Samtools faidx /path/to/genome.fa - Verwenden BLAST + um Gene Ontology (GO) Bezug aus mehreren Modellarten (Mensch, Maus, Zebrafisch, Fruchtfliege und Hefe) auf Xenopus Gene weiterzugeben, wie folgt:
- Laden Sie alle kodierenden Sequenzen (CDS) als Einzel FASTA-Datei (cds.fa) von der UCSC Genome Browser über Extras/ Table Browser und aktualisieren BLAST + mit dem vorformatiert BLAST Datenbank von nicht-redundanten Proteine (nr):
> Update_blastdb.pl nr - Suche für den menschlichen (txid9606), Maus (txid10090), Zebrafisch (txid7955), Fruchtfliege (txid7227) und Hefe (txid4932) Proteine aus der NCBI-Website über seine erweiterte Suchfunktion (http: //www.ncbi.nlm.nih. gov / Protein / Fortgeschrittene) und senden Sie die Liste resultierende GI (Sequenzkennzahl) (sequence.gi.txt) mit dem Computer.
- Vergeben Xenopus Gene in die am ähnlichsten Proteine aus dem GI-Liste durch die Ausführung BLASTx mit einer gewissen erwarten (E) Wert Cutoff (hier 10 -20). Stellen Sie sicher, das Ausgabeformat ist XML (-outfmt 5 -out blastx_results.xml). Nutzen zeitsparFäden (-num_threads), die mit der Anzahl der verfügbaren Rechnerkerne korrelieren.
> Blastx -db / path / to / nr -gilist /path/to/sequence.gi.txt -query / path / to / cds.fa -evalue 1e-20
-outfmt 5 -out /path/to/blastx_results.xml -num_threads [# Themen] - Öffnen Sie die Datei des b2gPipe.properties b2g4pipe Ordner mit einem Texteditor und aktualisieren Sie die Datenbankeigenschaften zu Dbacces.dbname = b2go_sep13 und Dbacces.dbhost = publicdb.blast2go.com. Führen b2g4pipe aus dem Installationsordner.
> Java -cp Xmx1000m *: ext / *: es.blast2go.prog.B2GAnnotPipe -in /path/to/blastx_results.xml
-out Ergebnisse / xenTro7 -prop b2gPipe.properties -v -annot
HINWEIS: Dieses Programm extrahiert GO Bedingungen für jeden BLAST getroffen und ordnet sie den entsprechenden Xenopus Gene (xenTro7.annot). Unter Tools können die aktuellste Datenbankeinstellungen gefunden werden / Allgemeine Einstellungen / Dataaccess-Einstellungen des Blast2GO Java Web Start-Anwendung (siehe 9.11.1).
- Laden Sie alle kodierenden Sequenzen (CDS) als Einzel FASTA-Datei (cds.fa) von der UCSC Genome Browser über Extras/ Table Browser und aktualisieren BLAST + mit dem vorformatiert BLAST Datenbank von nicht-redundanten Proteine (nr):
2. Chromatin Vernetzung
- Düngung Xenopus Eier, de-Gelee und Kultur embryonen gemß Standardprotokollen 20.
- Übertragen Sie die dejellied Embryos (maximal 2.500 X. laevis oder 10.000 X. tropicalis) in der Entwicklungsphase von Interesse für eine 8 ml Glasprobengefäß mit Deckel und waschen Sie einmal kurz mit 0,01x MMR.
- Fixieren die Embryonen mit 1% Formaldehyd in 0,01x MMR (zB Hinzufügen 225 ul 36,5-38% Formaldehyd zu 8 ml 0,01x MMR) für 15 bis 40 min bei RT (siehe Diskussion der Fixierungszeit und die Anzahl der Embryos erforderlichen pro Chip-Experiment).
HINWEIS: Formaldehyd ist ätzend und sehr giftig. Es ist im Falle der Augen und der Haut, Verdauungsstörungen, und das Einatmen gefährlicher. Verwenden Sie den Abzug beim Hinzufügen von Formaldehyd in das Fläschchen. - Stoppen Sie die Fixierung durch kurzes Waschen der Embryonen dreimal mit kaltem 0,01x MMR. Lassen Sie sich nicht embry os Kontakt mit der Oberfläche der Flüssigkeit, da die Oberflächenspannung bewirkt, dass sie bersten.
- Aliquot der Embryonen in 2 ml-Mikrozentrifugenröhrchen auf Eismit einem Maximum von 250 Embryonen pro Röhre, die ein Volumen von etwa 250 ul (X. tropicalis) oder 600 ul (X. laevis) vor dem Schlüpfen zu besetzen.
- Pipette entfernt so viel 0,01x MMR wie möglich. Überspringen Sie den nächsten Schritt, wenn Sie sofort mit Kapitel 3 fort.
- Äquilibrieren Embryonen in 250 ul kaltem HEG Puffer. Sobald die Embryonen auf den Boden des Rohres abgewickelt zu entfernen, so viel Flüssigkeit wie möglich und Schnapp Einfrieren in flüssigem Stickstoff. Bei -80 ° C.
3. Chromatin Extraction
HINWEIS: Die nach der Extraktion aus vernetztem Chromatin von Xenopus-Embryonen arbeitet am wirksamsten mit den Fixierungszeiten in Schritt 2.3 und 50 bis 80 X. deutet tropicalis oder 25 bis 40 X. laevis Embryonen pro ml Extraktionspuffer E1, E2 und E3. Jeder Extraktionsstufe wird wiederholt, so dass das Doppelte der berechneten Volumen an Puffer benötigt. Für Upscaling, verwenden Sie mehrere 2 ml microcentrifuge Rohre oder 50 ml Zentrifugenröhrchen. Halten Sie Proben und Puffer auf Eis während der Chromatin-Extraktion.
- Ergänzen ausreichende Mengen von Puffern E1, E2 und E3 mit 1 mM DTT und Protease-Inhibitor Tabletten. Vor der Durchführung der Chip mit einer Phosphor-spezifischen Antikörpers weiter zu ergänzen Puffer mit 5 mM NaF, 2 mM Na 3 VO 4.
- Homogenisieren fixierte Embryonen mit E1 durch Auf- und Abpipettieren. Zentrifuge Homogenate in einer Kühlzentrifuge (4ºC) bei 1000 g für 2 min (oder 5 min bei Verwendung von 50-ml-Röhrchen). Saugt den Überstand und keine Lipide an der Wand befestigt.
- Resuspendieren Pellets in E1. Halten Sie Proben auf Eis für 10 min. Zentrifuge und Verwerfen Überständen, wie in Schritt 3.2.
- Resuspendieren Pellets in E2. Zentrifuge und Verwerfen Überständen, wie in Schritt 3.2.
- Wiederholen Sie Schritt 3.4, aber halten Sie Proben auf Eis für 10 Minuten vor dem Zentrifugieren.
- Resuspendieren Pellets in E3. Halten Proben auf Eis für mindestens 10 min. Zentrifuge und entsorgen supernatants wie in Schritt 3.2.
HINWEIS: In dieser Phase sollten die Resuspensionen ziemlich transparent. Die anionischen Detergenzien E3 extrahieren vernetzte Kerne durch Rendern meisten übrigen Eigelb Blutplättchen löslich. - Resuspendieren und Pool Pellets aus vernetzten Kernen (in der Regel braun gefärbt von den unlöslich Pigmentkörnchen) in einem Gesamtvolumen von 1 ml E3. Verdünnte Probe mit E3 zu 2 bis 3 ml, wenn es scheint, sehr viskos und schwierig zu pipettieren. Halten Sie sich auf Eis oder bei 4 ° C bis bei Schritt 4 von gleichen oder am nächsten Tag fort. Snap-freeze in flüssigem Stickstoff und bei -80 ° C für die spätere Verwendung.
4. Chromatin Fragmentierung
HINWEIS: Die Ultraschallbehandlung wird sowohl zur Solubilisierung und vernetzte Chromatin zu scheren. Hier sind Parameter, um die Misonix Sonicator 3000 mit einem 1/16 Zoll Kegelmikrospitze und Schallschutzkabine ausgestattet laufen. Bei Verwendung anderer Beschaller folgen Empfehlungen der Hersteller zu scherenvernetzten Chromatin oder verwenden 6 bis 12 W für 4 bis 8 min insgesamt.
- Übertragen Sie die Kernprobe aus Schritt 3.7 in eine kundenspezifische Rohr für Beschallung (Schritt 1.4). Halten Sie die Probe während der Beschallung gekühlt, indem das Rohr mit einem 800 ml Kunststoffbecher mit Eiswasser über eine kurze Thermometer Klemm gefüllt befestigt.
- Becherglas auf einem Labor-Buchse. Passen die Buchse, so daß der Beschallungsgerät Mikrospitze in der Probe auf etwa zwei Drittel des Volumens Tiefe eingetaucht und ohne Berührung der Rohrwand zentriert ist.
- Beschallen die Probe für 7 Minuten insgesamt, unterbrach alle 30 Sekunden mit 1 Minute Pause. Stellen Sie den Netz bis 1,0. Starten Sie die Ultraschallbehandlung und sofort erhöhen die Leistungseinstellung (in der Regel 2 bis 4), um einen Messwert von 9 bis 12 W. Pause sofort, wenn die Probe beginnt zu schäumen zu erreichen. Positionieren Rohr und neu starten, wenn der Schaum vollständig verschwunden ist.
- Übertragen Sie die geschert Chromatin in vorgekühlte 1,5 ml Mikrozentrifugenröhrchen und Spin bei voller Geschwindigkeit (> 15,000 × g) für 5 min bei 4 ° C.
- Den Überstand vor, eine gekühlte 1,5-ml-Mikrozentrifugenröhrchen. Sammeln Sie 50 ul des Überstands (die Chromatinstruktur von etwa 400.000 oder mehr Kerne, die im Idealfall), den Grad der Fragmentierung Chromatin (Abschnitt 5) zu visualisieren. Verwenden Sie den Rest des Überstandes für Chip (Abschnitt 6).
- Proben bei 4 ° C bis zu einem Tag. Schnappgefrierproben Aliquots (eine pro Chip-Experiment) in flüssigem Stickstoff zur Langzeitlagerung bei -80 ° C.
5. Imaging Chromatin Fragmentierung
- Zugeben von 50 ul SDS-Elutionspuffer, 4 ul 5 M NaCl und 1 ul Proteinase K (20 ug / ul) zu 50 ul des Überstands aus Schritt 4.6.
- Inkubationszeit von 6 bis 15 h (O / N) in einem Hybridisierungsofen auf 65 ° C eingestellt.
- Reinige DNA mit einem handelsüblichen PCR-Reinigungs-Kit. Verwenden Sie gegebenenfalls 3 M Natriumacetat (pH 5,2) zur pH-Einstellung, wie vom Hersteller empfohlen. Elution desDNA zweimal mit 11 & mgr; l Elutionspuffer (10 mM Tris-HCl pH 8,5).
- In 0,4 ul RNase A (20 ug / ul) und 5 ul 5x DNA-Ladepuffer, bevor Sie das gesamte Probe neben einer 100 bp und ein 1 kb DNA-Leiter auf einem 1,4% Agarose-Gel durch Elektrophorese. Für optimale Ergebnisse Flecken-Gel mit einem sicheren Nukleinsäure-Farblösung nach der Elektrophorese.
6. Chromatin Immunopräzipitation
HINWEIS: In diesem Abschnitt verwenden, Low-Retention-1,5-ml-Mikrozentrifugenröhrchen und mindestens 1 ml pro Röhrchen angegebenen Puffer an magnetische Kügelchen für 5 min waschen bei 4 ° C. Vor dem Entfernen des Puffers von den Kügelchen, lassen die Rohre in dem Magnetträger für 20 bis 30 sec jedes Mal oder bis die Lösung klar ist.
- Transfer von 10 bis 30 & mgr; l des Überstands (geschert Chromatin) aus Schritt 4.6 in ein neues Röhrchen, die später als Eingangs Probe, die auf etwa 1% des Gesamt Chromatin für die Chip verwendet wird, entspricht eingesetzt werden. Lagerung bei 4° C bis zur Chip-Proben sind bereit für die Umkehr-Vernetzungen.
- Die restliche Chromatin in ein neues Röhrchen. Für ChIP-qPCR-Experimente eine Antikörperkontrolle erfordern, zu verbreiten gleichen Volumina von Chromatin auf zwei Röhren.
- Fügen Sie den ChIP Grade Antikörper (oder das entsprechende Antikörperkontrolle) an Chromatin. Als grobe Richtlinie, verwenden Sie etwa 1 ug Antikörper pro eine Million Zellen das Epitop von Interesse exprimieren.
- Um genauer zu schätzen die Menge an Antikörper pro Chip Experiment erforderlich, führen Sie den gleichen Chip mit verschiedenen Mengen an Antikörper (zB 0,25 ug, 1 & mgr; g und 2,5 & mgr; g) und vergleichen Sie die Rendite auf negative und positive Kontrolle loci von ChIP-qPCR (siehe Abschnitt 10). Als Antikörper-Kontrolle, verwenden normale Serum der gleichen Isotyps und Wirtstierspezies wie der Antikörper.
- Inkubieren auf einem Rotor (10 min) O / N bei 4 ° C.
- Wäsche eine ausreichende Menge an Antikörper-kompatible magnetische Kügelchen einmal mit E3 für 5 min eint 4 ° C. Kreuze An der Herstellerangabe für die Antikörper-Bindungskapazität der Beads (üblicherweise 5 bis 20 & mgr; l Kügelchen binden 1 ug IgG-Antikörper).
- Fügen gewaschenen Perlen an den Antikörper vorinkubiert Chromatin. Weitere Inkubation auf einem Rotator (10 rpm) für 4 Stunden.
- Wasch Perlen viermal (ChIP-qPCR) bzw. zehnmal (ChIP-Seq) mit vorgekühltem RIPA-Puffer, und dann einmal mit vorgekühltem TEN-Puffer.
- Führen Sie nur diesen Schritt, wenn der Durchführung einer ChIP-Seq-Experiment.
- Resuspendieren gewaschenen Perlen in 50 ul TEN-Puffer pro Röhrchen. Pool Alle Perlen aus einem einzigen Chip Experiment durch Übertragung auf einen neuen Schlauch. Verwenden der magnetischen Zahn gekühlt (4 ° C) Zentrifugation bei 1000 × g zu Kügelchen am Boden des Röhrchens zu sammeln. Verwerfen so viel Flüssigkeit wie möglich, ohne dass der Pellet der Perlen.
- Streifenspanmaterial aus den Kügelchen durch Resuspendieren der Kügelchen in 50 bis 100 & mgr; l SDS-Elutionspuffer und vortkontinuierlich Exing sie mit einem Thermomixer (1.000 rpm) für 15 min bei 65 ° C. Nach dieser Zentrifuge bei voller Geschwindigkeit (> 15.000 xg) für 30 Sekunden. Den Überstand (Eluat ChIP) in ein neues Röhrchen.
- Wiederholen Sie den letzten Schritt und verbinden den Chip Eluate.
7. Chromatin umge Vernetzung und DNA Purification
- Add genug SDS-Elutionspuffer mit dem Eingang Probe (Schritt 6.1), um das Volumen des Chips-Probe, die 100 bis 200 & mgr; l (Schritt 6.10) ist zu erreichen. Ergänzen Sie beide Chip und Eingangsabtastwerten mit 1/20 Volumen 5 M NaCl. Inkubieren der Proben für 6 bis 15 h (O / N) bei 65 ° C in einem Hybridisierungsofen.
- 1 Volumen TE-Puffer und RNase A bei 200 ug / ml. Inkubieren für 1 h bei 37 ° C.
- Hinzufügen Proteinase K bei 200 & mgr; g / ml. Inkubieren für 2 bis 4 Stunden bei 55 ° C.
- Reinige DNA durch Phenol: Chloroform: Isoamylalkohol-Extraktion gefolgt von Ethanol-Präzipitation wie vorstehend umrissen 9. Für ChIP-Seq, fügen Sie 32ul Elutionspuffer (10 mM Tris-HCl, pH 8,5), um das DNA-Pellet zu lösen. Verlassen Proben auf Eis für 30 Minuten, um sicherzustellen, dass die DNA vollständig gelöst ist.
HINWEIS: Kommerzielle PCR-Reinigungs-Kits haben niedrigere DNA-Gewinnung sind aber bequemer, und kann für die Chip-qPCR Proben verwendet werden. - Für ChIP-Seq, bestimmen die Konzentration von 1 ul-Chip und Input-DNA mit Fluorometrie basierende Verfahren. Folgen Sie den Anweisungen des Herstellers und stellen Sie sicher, dass DNA-Konzentration im zuverlässige Erfassungsbereich des Fluorometers fällt.
8. ChIP-Seq Library Construction and Validation
HINWEIS: Aktuelle Methoden zur DNA-Bibliothek Vorbereitung ermöglichen Bau von Hoch Komplexität Bibliotheken für NGS 1-2 ng. Auf Kosten von einiger Komplexität können Bibliotheken von weniger als 50 pg der DNA (siehe Tabelle der spezifischen Materialien / Ausrüstung) durchgeführt werden. Verwenden Sie die gleiche DNA-Menge sowohl für Chip und Eingabe Bibliothek. Kurz gesagt, um make indiziert (Paired-End) ChIP-Seq Bibliotheken ChIP und Input-DNA müssen end-repariert werden, um spezielle Adapter ligiert (siehe Tabelle der spezifischen Materialien / Ausrüstung), größenselektierten und PCR amplifiziert.
- Folgen Sie den Richtlinien des Herstellers zu ChIP-Seq-Bibliotheken machen. Siehe Diskussion für weitere Empfehlungen.
- Eluieren jede Bibliothek in 12 ul Elutionspuffer und bestimmt die Konzentration von 1 & mgr; l eines jeden Chips und Eingabebibliothek unter Verwendung eines Fluorometers. Erwarten Konzentrationen von 5 bis 25 ng / & mgr; l. Betrachten wir die Verringerung der Anzahl der PCR-Zyklen (weniger als 18 Zyklen), wenn die Konzentrationen höher als 25 ng / & mgr; l.
HINWEIS: Eine genaue Quantifizierung ist der Schlüssel zur optimalen NGS Ergebnisse zu erzielen. Bibliotheken mit Konzentrationen nach 18 PCR-Zyklen so günstig wie 1 ng / ul können sequenziert werden, aber häufig von geringerer Komplexität. - Verwenden Sie 1 ul-Bibliothek, um die Bruchgrößenverteilung zu bestimmen und für jede Adapter-Dimer Verschmutzung (Band um 120 bp) von c zu überprüfenHip-basierten Kapillar-Elektrophorese. Wiederholen Sie den Festphasen reversible Immobilisierung Reinigung mit einem Perlen-zu-Probe im Verhältnis 1: 1 (anstelle von 1,6: 1), wenn die Bibliothek enthält Adapter Dimere.
- Führen Sie auf qPCR validiert positiven und negativen Kontroll loci (siehe Punkt 10), um zu prüfen, ob ähnliche DNA-Anreicherung Trends werden vor und nach der Bibliothek Vorbereitung beobachtet. Senden Qualitätskontrolle genehmigt Bibliotheken für die Sequenzierung.
9. Post-Sequenzierungsanalyse und Datenvisualisierung
HINWEIS: Heute NGS wird häufig von im eigenen Haus oder kommerzielle Einrichtungen Sequenzierung (siehe Diskussion für einige NGS-Richtlinie) durchgeführt. Die Standardausgabe sind einzelne oder mehrere gzip komprimiert FASTQ-Dateien (* .fastq.gz) Speichern Millionen Sequenzierung liest. Normalerweise liest Multiplex bereits getrennt nach ihrem Index und jeder Lese enthält eine Sequenz-Kennung und ein Qualitätskontroll Score (Phred + 33 für Illumina 1.8+) pro base Anruf. Diese Vorgehensweise ist hier nur eine von vielen Möglichkeiten, wie NGS Daten analysieren. Der Leser wird aufgefordert, zu prüfen, ob eine der folgenden Befehlszeilen erfordern Änderungen dieses Feld schnell voran und Updates werden regelmäßig auftritt.
- Verketten gzip komprimiert FASTQ Dateien und überprüfen Sie die Qualität der Sequenzdaten mit Hilfe der FastQC Skript. Führen Sie diese und die meisten der folgenden Befehle für beide Chip und Eingabesequenzdaten (Beispiele für die Chip gezeigt) von dem Endgerät:
> Cat /path/to/*.fastq.gz> ChIP.fastq.gz
> Fastqc ChIP.fastq.gz
HINWEIS: Rohdaten aus der erfolgreichen Sequenzierung eines hochkomplexen ChIP-Seq Bibliothek sollte die meisten Tests bestehen. Ausfälle stammen hauptsächlich aus armen Sequenzierläufe und experimentelle Artefakte wie voreingenommen PCR-Amplifikation oder Adapter Kontamination. Ein gewisses Maß an Überschneidungen (Redundanz) wird erwartet, dass als redundante liest, kann in gutem Glauben DNA Bereicherung darstellen 21. Doch eines später einschränken Lesekennungen - das 5'-Ende oder liest - auf einen pro Basenpaar zur Beseitigung jeder redundante liest, ohne die Detektionsempfindlichkeit des Peaks (Schritt 9.4) 21. - Pre-Prozess Sequenzierungsdaten zu Adapter Verunreinigungen zu entfernen (homerTools trimmen -3 ) ermöglicht eine Nichtübereinstimmung (-mis 1). Mit den ersten 20 Basen der (indexiert) Adapter (5 'nach 3') proximal zu dem DNA-Fragment von Interesse auf der Ligation (für Adapter in der Tabelle der spezifischen Materialien / Ausrüstung aufgeführt gezeigt).
> Gzip -cd ChIP.fastq.gz | fastq_illumina_filter -vn> ChIP.fastq
> HomerTools trimmen -3 GATCGGAAGAGCACACGTCT -mis 1 -min 36 ChIP.fastq
HINWEIS: Das Entfernen der gefilterten liest (N) wird standardmäßig nur in FASTQ Dateien von Illumina 1.8 erzeugt erforderlich. Lassen Sie den Befehl fastq_illumina_filter (dh. "| Fastq_illumina_filter -vn ')wenn eine ältere Version als 1.8 erzeugt die Sequenzkennung. - Richten vorverarbeitet lautet auf die Referenzgenom (xenTro7) mit Bowtie. Immer nur eindeutig zugeordnet liest (-m 1) im Standardmodus, dh maximal zwei Fehlpaarungen in den ersten 28 Basen und insgesamt Phred + 33 Qualitätsfaktor aller Fehlanpassungen pro Lese von maximal 70 Bericht Ausrichtung in SAM-Format (-S) . Erhöhen Sie die Anzahl der Megabyte pro Thema (--chunkmbs), wenn das Stück Speicher erschöpft ist:
> Bowtie -m 1 -S -p [# Themen] --chunkmbs [zB 200] xenTro7 ChIP.fastq.trimmed> ChIP.sam
HINWEIS: Bowtie erwartet Phred + 33 Qualitätswerte standardmäßig. Fügen Sie die Option - phred64-quals wenn die FASTQ Datei mit Phred + 64 Qualitätsbewertungen von Illumina älter als 1.8 erzeugt. - Verwenden Sie zwei HOMER Befehle, um die Ausrichtung (SAM-Datei) in ein hohes Tier-Datei (.bw) umzuwandeln:
> MakeTagDirectory ChIP / -single -tbp 1 ChIP.sam
> MakeUCSCfile ChIP /-bigWig / path / to / genome.fa.fai -fsize 1E20 -Norm 1E7 -o ChIP.bw
HINWEIS: Die Umwandlung erfordert die Gerüstindex (genome.fa.fai) des Bezugsgenoms (Schritt 1.8). Hier wird das Profil an einem Tag pro Basenpaar (-tbp 1) und normalisiert auf 10 Millionen begrenzt liest (-Norm 1E7). BIGWIG ist eine der bevorzugten Format an Chromatin-Profile mit einem Genom Browser wie IGV (Schritt 9.12) dynamisch zu visualisieren. - Bestimmen Sie die Verteilung der Tags (-d ChIP /) auf genomischer Sehenswürdigkeiten (zB +/- 10 kb mit 25 bp Tonnen, -si ze 20000 -hist 25) wie der Transkriptionsstart (tss, beispielsweise hier abgebildet) und Kündigung ( tts) Websites. Führen Sie das Perl-Skript HOMER annotatePeaks.pl mit Xenopus Anmerkungen xenTro7 (Schritt 1.7):
> AnnotatePeaks.pl tss xenTro7 -size 20000 -hist 25 -d ChIP /> ChIP_tagDensity.tss - Suche signifikanten Spitzen von DNA Bereicherung zwischen Chip(-t ChIP.sam) und Eingang (-c Input.sam) in der X. tropicalis-Genom mit MACS2 mit einer 1% FDR Cutoff (-q 0,01) und DNA-Fragmente (nach Ultraschall) von 200 bp (--bw = 200) für den Modellbau. Fügen Sie die Flagge --broad dieser Befehlszeile erwarte eine breite Verteilung des Chromatins Merkmal von Interesse wie Histon-Markierungen oder RNA-Polymerase.
> Macs2 callpeak -t ChIP.sam -c Input.sam -f SAM -n ChIP -g 1.4376e9 -q 0,01 --bw = 200
HINWEIS: Die effektive Größe der X. tropicalis-Genom Montage v7.1 ist etwa 1,4376 Mrd. bp (-g 1.4376e9). MACS2 erzeugt eine BED Datei (ChIP_peaks.bed) Anwerbung Tausender mit ihren genomischen Standorten. - Vergleichen Sie mehrere Chromatin-Profile in Form einer gruppierten Heatmap:
- Erstellen Sie ein Tag Verteilungsmatrix von Tag Dichte Verzeichnisse von Interesse (-d ChIP / other_ChIP /) am MACS2 Spitzen (zB +/- 1 kb mit 25 bp Tonnen, -size 2000 -hist 25 -ghist):
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -size 2000 -hist 25 -ghist -d ChIP / other_ChIP /> ChIP.matrix - Verwenden Sie die grafische Benutzeroberfläche des Cluster3 zu ChIP.matrix-Datei hochladen und hierarchisch gruppieren diese Tag-Dichten auf der Grundlage der minimale euklidische Distanz zum nächsten Schwerpunkts. Öffnen Sie die erzeugten CTD-Datei in Java TreeView, um die Clusterbildung zu visualisieren.
- Erstellen Sie ein Tag Verteilungsmatrix von Tag Dichte Verzeichnisse von Interesse (-d ChIP / other_ChIP /) am MACS2 Spitzen (zB +/- 1 kb mit 25 bp Tonnen, -size 2000 -hist 25 -ghist):
- Finden Sie neue und bisher bekannten Bindungsmotive, die zu Spitzengipfel angereichert sind +/- 100 bp (-size 200). Verwenden annotatePeaks.pl zu Motiv Ereignisse abzubilden und Motiv Dichten des Grundstückes:
> FindMotifsGenome.pl ChIP_peaks.bed xenTro7 ChIP_motifs / -Größe 200 -p [# Themen]
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -m motif1.motif> ChIP_peaks.motif1
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -m motif1.motif -size 800 -hist 25> motif1.density
HINWEIS: Die findMotifsGenome.pl Skript infers die Anreicherung aus dem Vergleich, um zufällig ausgewählte Gen-centric Hintergrund Sequenzen. Die angereicherte neuartige Motiv unter motif1.motif im Format eines Positionsgewichtungsmatrix gespeichert. Der Leser wird aufgefordert, diese Ergebnisse mit anderen De-novo-Motiverkennungsmethoden wie cisFinder 22 und MEME 23 zu untermauern. - Kommentieren von Spitzen, die durch die Berechnung ihrer Entfernung zur nächsten Gen und durch Bestimmung ihrer normalisierten Lesezählung innerhalb von 400 bp Fenster (-size 400):
> AnnotatePeaks.pl ChIP_peaks.bed xenTro7 -size 400 -d ChIP / Input /> ChIP_peaks.genes - Fassen Sie die Ausgabe mit dem folgenden Befehl awk, um die Anzahl (N), die Lage und normalisierte Lesezählung der einzelnen (R) und alle (LR) Peaks pro nächsten (Ziel) Gen aufzulisten.
> Awk 'BEGIN {FS =' t '} $ 7> = -5000 && $ 7 <= 1000
{N [$ 8] + = 1; R [$ 8] + = $ 9; LR [$ 8] = LR [$ 8] ", &# 39; 7 $ '(' $ 9 ')'} END {for (i in N)
{Print i ' t' N [i] ' t' R [i] ' t' substr (LR [i], 2)}} 'ChIP_peaks.genes> ChIP_peaks.summary
HINWEIS: Die Zahl nach $ bezieht sich auf die Spaltennummer, die der Änderung bedürfen möglicherweise die ChIP_peaks.genes Datei in der vorherigen Schritt erstellt passen. Dieses Skript Exemplar filtert Peaks über 5 kb stromaufwärts und 1 kb stromabwärts des TSS. $ 7, $ 8 und $ 9 beziehen sich auf die Entfernung zu dem TSS, das Gen-Kennung und der normalisierten Lesezählung pro Peak auf. - Führen Sie die Analyse angereichert GO Begriffe unter Zielgene, wie folgt:
- Starten Sie die grafische Benutzeroberfläche des Blast2GO von der Kommandozeile über Java Web Start (javaws) 19.
> Javaws http://blast2go.com/webstart/blast2go1000.jnlp - Folgen Sie der Entwickler Anweisungen, um die Annotation hochladenDatei für Xenopus Gene (xenTro7.annot) wie in 1.9.4 erzeugt und eine flache Datei der identifizierten Zielgene. Stellen Sie sicher, dass die gleichen Gen-IDs werden in beiden Dateien.
- Starten Sie die grafische Benutzeroberfläche des Blast2GO von der Kommandozeile über Java Web Start (javaws) 19.
- Visualisieren Chromatin Profile, indem Bigwig (ChIP.bw, Input.bw) und BED-Dateien (ChIP_peaks.bed) in IGV als Spuren. Complement Daten mit RNA-Seq-Tracks, wenn für den gleichen Entwicklungsstufe zur Verfügung. Ergebnisse speichern als Session.
- Verwenden Sie die Programmierung Plattformen R (www.r-project.org) oder MATLAB weiter zu manipulieren und zu visualisieren, Daten wie oben erzeugt. Alternativ plotten kleine Datensätze mit Excel.
10. ChIP-qPCR zum Testen Chip und bestätigen ChIP-Seq
- Nutzen Sie die Online-Plattform Primer3 um Primer Umgebung etwa 100 bp DNA bei 60 ° C (T m) für positive (Spitze-spezifisch) und Negativkontrolle Loci zu entwerfen. Bestätigen Primer-Spezifität mit Hilfe der In-silico- PCR-Suche in die UCSC Genome Browser implementiert.
- Erstellen eines 8-Punkt-Standardkurve von Dreifachverdünnungen ausgehend von etwa 1% Eingang oder mit dem 2 - ΔΔC (T) 8,24 Verfahren zur Quantifizierung von DNA-Anreicherung.
- Führen Sie Echtzeit-PCR in technischen dreifach für alle Proben, dh ChIP, Kontrolle und, wenn es sein muss, Standardkurvenproben.
- Plot DNA Anreicherung als Prozentsatz der Ausgangs-DNA oder als Verhältnis von Chip gegenüber der Kontrollprobe auf sowohl positive als auch negative Kontroll loci.
Ergebnisse
Gleichwertige Ergebnisse liefern wie die hier vorgestellt werden erwartet, wenn das Protokoll wird gut ausgeführt und der Antikörper verwendet wird von ChIP-Grade-Qualität (siehe Diskussion). Dieses Protokoll ermöglicht die Gewinnung von Zellkernen aus Formaldehyd fixierten Xenopus-Embryonen und die effiziente Scher Chromatin durch Beschallung (1A-C). Geschert Chromatin zeigt eine asymmetrische Verteilung von DNA-Fragmenten vor allem im Bereich von 100 bis 1.000 bp und Peaking zwischen 300 und 500 bp (Abbildung 1C). Eine minimale 50 pg von immunpräzipitierten DNA wird benötigt, um erfolgreich zu machen eine indizierte Paired-End ChIP-Seq-Bibliothek mit ähnlich großen DNA-Inserts (Abbildung 2A). Die Bibliothek sollte weitgehend frei von Dimeren Adapter, die auf dem Elektropherogramm bei etwa 120 bp gesehen werden kann.
Nach Sequenzierung-durch-Synthese, vorverarbeitet Lesewerte werden in das Genom (Abbildung 2B, C) abgebildet. In einem erfolgreichen Versuch mit X. tropicalis Embryonen liest von 40 bp in der Regel 50 bis 70% der Einendmaschine eindeutig zum Genom Zusammenbau v7.1 mit maximal zwei Fehlpaarungen zugeordnet werden. Während einliest auszurichten ziemlich gleichmßig über das Genom, die Ausrichtung des Chips liest ergibt strangspezifische Anreicherung, die die Chromatinstruktur Merkmal von Interesse flankieren. Dies ist, da alle Fragmente werden von dem 5'-Ende (2C) 25 sequenziert. Die Ausweitung der Ausrichtung in Leserichtung zu einer durchschnittlichen Fragmentgröße ermöglicht exakte Profile für einzelne Chromatin Funktionen wie Transkriptionsfaktor-Bindungsereignisse. Diese DNA-Belegungen erscheinen als Peaks, wenn in IGV oder einem anderen kompatiblen Genom-Browser visualisiert. Peak Anrufern wie MACs verwendet, um den Ort dieser Peaks (3A) zu bestimmen. Auf diese Weise Zehntausende von Bindungsstellen wurden in der X. bestimmt tropicalis-Genoms für die T-Box-Transkriptionsfaktoren wie VEGT 26. ChIP-qPCR Erfahgen sollte die lokale Anreicherung von ChIP-Seq (3B) gefunden zu bestätigen.
ChIP-Seq-Experimente erlauben die Erkundung genomweiten Eigenschaften von Chromatin-Funktionen. Beispielsweise kann die Berechnung der Lese- Verteilung über genomischen Elemente wie Transkriptionsstart und Terminationsstellen keine räumliche Bindungspräferenzen rund Gene (3C) zu markieren. Ebenso ist eine Heatmap der Lese Distributionen zu Stoßstellen wird verwendet, um verschiedene Chromatin Features auf einen genomweiten Skala (3D) zu vergleichen. Bestimmte Transkriptionsfaktoren binden DNA sequenzspezifisch. De novo-Motiv-Analyse der genomischen DNA zugrunde liegenden Peaks können diese Art von Informationen, einschließlich Co-angereicherten Motive potentieller Kofaktoren (3E) abzurufen. Die große Mehrheit der Zielgene zeigen DNA-Belegung zu einem niedrigeren und nicht höhere Ebene (3F). Diese Skala freie Funktion scheint recht häufig bei transcription Faktoren und schlägt vor, daß nur ein kleiner Bruchteil der Zielgene sind direkt mit biologischer Relevanz 27,28 geregelt. Die Analyse der angereicherten GO Begriffe oder andere Eigenschaften wie beispielsweise die differentielle Expression von Zielgenen können ferner offenbaren Einblicke in die biologische Funktion des Chromatins Funktion im Xenopus Embryo (Figur 3G).
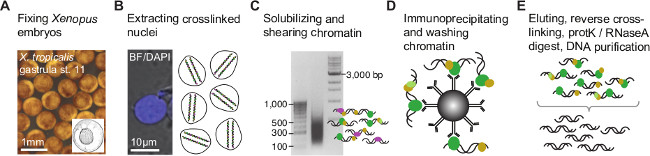
Abbildung 1. Chromatin Immunopräzipitation Verfahren für Xenopus-Embryonen. (A) Die Embryonen sind Formaldehyd fixierten in der Entwicklungsphase von Interesse kovalent binden (vernetzen) alle Proteine mit genomischer DNA assoziiert. Bei der Kerngewinnung (B), wird vernetzt Chromatin fragmentiert, um gezieltere genomischen DNA-Bindung oder Chromatinmodifizierung Websites durch Minimierung der flankierenden DNEine Sequenz (C). Anschließend werden die Chromatin-Fragmente mit einem Chip-Grade-Antikörper immunpräzipitiert zu denen, die das Epitop von Interesse (D) anzureichern. Die co-immunpräzipitiert DNA wird das Protein ausgezogen und vor dem Erstellen der ChIP Fragmentbibliothek für NGS (Abbildung 2) gereinigt (E). Bitte klicken Sie hier, um eine größere Version dieses Bild anzuzeigen.
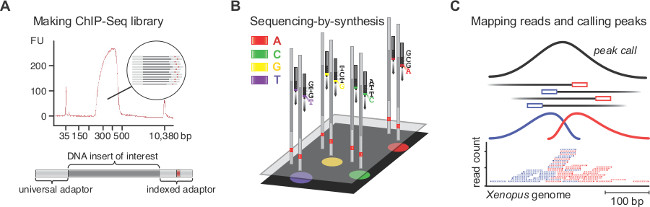
Abbildung 2. ChIP-Seq Bibliothek Vorbereitung, Sequenzierung-durch-Synthese, die Kartierung und Spitzen Berufung. (A) Das Elektropherogramm zeigt eine gute ChIP-Seq-Bibliothek mit DNA-Matrizen von 250 bis 450 bp. Diese Vorlagen beinhalten die DNA-Insert von Interesse durch die universelle (58 bp) flankiert und die indexierte (63 bp) Adapter. (B) Millionen von Clustern, wobei jeder Cluster mit identischen Vorlagen sind sequenziert Base für Base in Gegenwart von allen vier Nukleotiden besitzen, reversible, deutliche Fluorophor und identische Kündigungs Eigenschaften. Fluoreszenzbilder werden in Echtzeit verarbeitet werden, um entsprechenden Basen, die letztlich zusammengebaut in liest nennen. (C) nur liest, dass Karte eindeutig dem Xenopus Genom aufbewahrt. Da alle Fragmente werden von dem 5'-Ende sequenziert, zur Kartierung der ChIP liest ergibt strangspezifischen Peaks, die die Chromatinstruktur Merkmal von Interesse flankieren. Dabei Spitzen Anrufer erkennen die Bereicherung durch die Immunpräzipitation stammt und erweitern das heißt zu einer durchschnittlichen Fragmentlänge genau zu lokalisieren Chromatin Funktionen. Bitte klicken Sie hier, um eine größere Version dieses Bild anzuzeigen.

Figur 3 Ein Beispiel einer Post Sequenzierung Analyse und Visualisierung von Daten mittels des zygotischen T-Box-Transkriptionsfaktor VEGT (zVegT). Alle Lesezählungen hier dargestellt sind normalisiert auf 10 Millionen eindeutig abgebildet und nichtredundanten liest. (A) Auszug der genomweiten Profil zVegT verbindlich in X. tropicalis Gastrula Embryos (Stadium 11 bis 12,5 nach Nieuwkoop und Faber 29). Jeder Peak, eine Anhäufung von erweiterten liest, stellt eine Bindungsstelle. Diese Spitzen sind durch MACS2 mit einem falschen Discovery Rate (FDR) von weniger als 1% genannt. Jeder MESP-Gens zeigt sehr proximalen und stromauf zVegT Bindung, sondern nur mespa und mespb durch diese Stufe (RNA-Seq-Daten 30) ausgedrückt. (B) DNA Belegungsniveaus zVegT durch ChIP-qPCR an verschiedenen Loci bestimmt (einschließlich eines nicht -gebundenen Region 0,5 kb stromaufwärts von β-Aktin) Konfirm die spezifische Anreicherung von ChIP-Seq gefunden. Ergebnisse für mespa mit Peak genannt (roter Balken) in (A) vergleichen. Die DNA Belegungspegel als Prozentsatz der Eingang für beide, den Chip mit der VEGT Antikörper (polyklonaler Kaninchen-IgG-Isotyp) und dem Chip mit dem Antikörper-Kontrolle (normales Kaninchen IgG) visualisiert. Fehlerbalken geben die Standardabweichung von zwei biologischen Replikaten. (C) METAGENE Analyse zeigt Präferenz zVegT Bindung (Tags über 25 bp klassierten) mit dem Promotor in Bezug auf jede andere Genombereich um und in Gen Körpern. (D) Bewegungsradius zeigt k-Mittelwert Cluster (k = 5) DNA Auslastung der zVegT und Smad2 / Smad3 (ChIP-Seq Daten 31) bezogen auf alle zVegT gebundenen Regionen Gastrulastadium (Tags über 25 bp klassierte). Die Heatmap ist log 2 basiert und bei 5 Tags pro bp zentriert. (E) De-novo-Motiv-Analyse entdeckt die kanonische T-Box-Transkriptionsfaktor-Bindungsmotiv in 38% der zVegT-Regionen gebunden, wenn die zugrunde liegende Motiv Wertung ist auf einer Entdeckungsrate von 5% im Hintergrund Sequenzen. Die Dichte Karte zeigt höchsten Anreicherung für den T-Box-Motiv in der Mitte zVegT Bindungsstellen, wobei die kanonische Smad2 / Smad3 Bindungsmotiv kaum angereichert. (F) Histogramm zeigt DNA Belegungsniveaus zVegT, die für jedes Ziel-Gen berechnet werden von allen Gipfeln (+/- 200 bp) zwischen 5 kb stromaufwärts [-]. und 1 kb stromabwärts [+] der entsprechenden Transkriptionsstartstellen (G) Top 300 Gene, die mit höchsten DNA-Auslastung innerhalb -5 kb und 1 kb sind für biologische Prozesse der frühen Embryonalentwicklung bereichert. Diese GO Begriffe sind im Einklang mit der vermeintlichen Funktion zVegT. Der FDR auf einem zweiseitigen Fisher-Test basiert und für multiples Testen korrigiert. Bitte klicken Sie hier, um eine größere Version dieses Bild anzuzeigen.
Diskussion
Unser Protokoll beschreibt, wie zu machen und zu analysieren, genomweite Chromatin Profile Xenopus-Embryonen. Es umfasst alle Schritte von vernetzenden Proteinen an endogenen Loci in vivo auf die Verarbeitung Millionen liest, die angereicherten genomische Websites in silico. Da immer mehr Genom Entwürfe zur Verfügung stehen, sollte dieses Protokoll auf andere Modell und nicht-Modellorganismen sein. Die wichtigsten experimentellen Teil, der dieses Protokoll von bisherigen Arbeit 8,31,33,34 stellt, ist die nach der Fixierung vor, um vernetzte Kerne zu extrahieren. Es ermöglicht die effiziente Chromatin Solubilisierung und Scher und einfach Upscaling. Zusammen mit verbesserten Wirkungsgraden von Bibliothek Vorbereitung dieses Protokoll erlaubt den Aufbau hochkomplexe ChIP-Seq-Bibliotheken von eineinhalb bis zwei Millionen Zellen der Chromatin-assoziierte Epitop von Interesse exprimieren. Für ChIP-qPCR-Experimente, einige zehntausend dieser Zellen sind in der Regel genug,für DNA Bereicherung auf vielleicht sechs verschiedenen genomischen Loci zu überprüfen. Diese Zahlen sind vorsichtige Schätzungen, kann aber je nach Expressionsniveau Protein, Antikörper Qualität abhängig, Vernetzungseffizienz und Epitop Zugänglichkeit. Als Richtwert ca. 4000 Zellen in der Mitte Blastulastadium (8,5 nach Nieuwkoop und Faber 29) enthält eine einzige Xenopus Embryo, 40.000 Zellen in der späten Gastrula-Stadium (12) und 100.000 Zellen in einem frühen Schwanzknospe Bühne (20).
Die exakte Fixierung Zeit für eine effiziente Immunfällung muss empirisch durch ChIP-qPCR (§ 10) ermittelt werden. Im allgemeinen werden mehr Fixierungszeiten benötigt, wenn das Experiment beinhaltet X. laevis Embryonen frühen Entwicklungsstadien, und schwach (oder indirekte) DNA-Bindungseigenschaften. Es wird jedoch nicht empfohlen Befestigungs Xenopus Embryonen länger als 40 Minuten, oder Verarbeitung mehr Embryonen als angegeben (Abschnitt 3), Chromatin Scher wird weniger effizient. Es ist wichtig,jede Glycin nach der Fixierung als dieser gemeinsamen Schritt zum Abschrecken Formaldehyd Kernentnahme aus dotterreichen Embryonen sehr schwierig machen zu verwenden. Derzeit ist der Grund hierfür nicht bekannt. Es ist denkbar, dass die Formaldehyd-Glycin-Addukt ferner mit N-terminalen Amino-Gruppen oder Argininresten 35 reagiert.
Der Antikörper ist der Schlüssel für ein Chip-Experiment und ausreichende Kontrollen müssen durchgeführt, um ihre Spezifität für das Epitop von Interesse zeigen werden (siehe Richtlinien Landt et al. 36). Wenn kein ChIP Grade Antikörper verfügbar ist, kann die Einführung von entsprechenden Epitop markierte Fusionsproteine eine legitime Alternative sein, da diese Proteine Bindungsstellen besetzen 37 endogen. In diesem Fall sind nicht injizierten Embryonen am besten, als negative Kontrolle eher als ein Chip mit unspezifischen Serum zu verwenden. Diese Strategie kann auch angewendet werden, wenn das Protein von Interesse auf einem niedrigen Niveau, was zu der schlechten Rückgewinnung des enri ausdrückenched DNA.
Als zur Herstellung ChIP-Seq Bibliotheken, wegen der geringen Menge an DNA, im Gebrauch, ist es empfehlenswert, für Verfahren, die die Anzahl der Reinigungsschritte zu verringern und um eine Reaktion zu kombinieren, um den Verlust von DNA auf ein Minimum zu entscheiden. Die Adapter und Grundierungen müssen mit Multiplex-Sequenzierung und der NGS-Plattform kompatibel sind (siehe Tabelle der spezifischen Materialien / Geräte). Bei der Verwendung von Y-Adaptern (mit langen Einzelstrang-Arme), ist es wichtig vor, verstärken die Bibliothek drei bis fünf PCR-Runden vor size-Auswahl DNA-Insertionen (z. B. 100 bis 300 bp) durch Gelelektrophorese. Einzelsträngigen Enden verursachen DNA Fragmente heterogen migrieren. Testläufe mit verschiedenen Mengen an Ausgangs-DNA (zB 0,1, 0,5, 1, 2, 5, 10 und 20 ng) werden empfohlen, um die Gesamtzahl der PCR-Zyklen zu bestimmen (weniger als oder gleich 18 Zyklen) erforderlich, um eine Größe zu machen -Ausgewählte Bibliothek von 100 bis 200 ng. Verringerung der Anzahl der PCR-Zyklen macht die Sequenzierung redundant liest weniger wahrscheinlich. Die Festphasen-reversible Immobilisierung Perlen sind gute Reinigung Reagenzien zur effizienten Wiederherstellung der DNA von Interesse und zuverlässig entfernen Sie alle freien Adaptern und Dimere von Ligation und PCR-Reaktionen.
In Bezug auf die Anzahl, Art und Länge der liest, um 20 bis 30 Millionen Single-End liest von 36 bp ist genug für die meisten ChIP-Seq-Experimente, die ganze Xenopus Genom mit ausreichender Tiefe zu decken. Die häufigsten NGS Maschinen sind routinemäßig in der Lage, die diese Kriterien erfüllen. Es kann jedoch von Vorteil sein, um die Anzahl zu erhöhen der liest, wenn eine breite Verteilung der liest wird erwartet, da mit Histon-Modifikationen zu beobachten, anstatt scharfe Spitzen. Für viele ChIP-Seq Experimenten 4 bis 5 unterschiedlich indizierten Bibliotheken gepoolt und in einer Durchflusszelle Fahrspur unter Verwendung einer Hochleistungsmaschine NGS sequenziert werden. Manchmal ist auch ratsam, die Lese Länge und Sequenz an beiden Enden der DNA-Vorlage (Paired-End), um Abbildbarkeit w erhöhen verlängernHenne Analyse Chromatin innerhalb repetitiven genomischen Regionen.
Dieses Protokoll wurde erfolgreich in einer Vielzahl von Chromatin Funktionen wie Transkriptionsfaktoren, Signalmediatoren und posttranslationale Histonmodifizierungen aufgebracht. Allerdings Embryonen gewinnen einen zunehmenden Grad an zellulärer Heterogenität, wie sie sich entwickeln und Chromatin-Profile schwerer zu interpretieren. Erste Schritte auf in Arabidopsis und Drosophila gewebsspezifisch Profil Chromatin Landschaften durch Extrahieren zelltypspezifische Kerne 38,39 erzielt. Unser Protokoll umfasst eine Kernextraktionsschritt, der den Weg für die gewebespezifische ChIP-Seq anderer Embryonen bahnen könnte.
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden finanziellen Interessen haben.
Danksagungen
Wir danken Chris Benner für die Implementierung des X. tropicalis-Genoms (xenTro2, xenTro2r) in HOMER und dem Gilchrist-Labor für Diskussionen über die Post-Sequencing-Analyse. I.P. hat die GO-Term-Analyse unterstützt. G.E.G und J.C.S. wurden vom Wellcome Trust unterstützt und werden nun vom Medical Research Council (Programmnummer U117597140) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 1/16 Zoll konisches Microtip | Qsonica | 4417 | Dieses Microtip ist kompatibel mit dem Sonicator 3000 von Misonix und Q500/700 von Qsonica. |
| 8 ml Probenfläschchen aus Glas mit Kappe | Wheaton | 224884 | 8 ml Probenfläschchen aus Klarglas für wässrige Proben mit Schraubkappen der Größe 15-425, die mit Phenolkautschuk ausgekleidet sind. |
| Adapter | z.B. IDT oder Sigma | NA | TruSeq Universaladapter,
AATGATACGGCGACCGAG ATCTACACTCTTTCCCTACAC GACGCTCTTCCGATC*T. TruSeq-indizierter Adapter, P-GATCGGAAGAGCACACGTC TGAACTCCAGTCAC ‐ NNNNNN‐ ATCTCGTATGCCGTCT TCTGCTT*G. *, Phosphorthioat-Bondphosphatgruppe bei 5' Ende. NNNNNNN, Index (siehe TruSeq ChIP Sample Preparation Guide für die DNA-Sequenz). Adapter HPLC gereinigt bestellen. Adapter können durch Kombination von äquimolaren Mengen (je 100 µ M) des Universaladapters und des indexierten Adapters und kühlt sie langsam von 95 ° ab; C auf Raumtemperatur. Verwenden Sie 1,5 pmol pro ng Eingangs-DNA. Bei -20 °C lagern. |
| b2g4pipe (Software) | Blast2GO | nicht-kommerziell | http://www.blast2go.com/data/blast2go/b2g4pipe_v2.5.zip |
| BLAST+ (Software) | Camacho et al. | nicht-kommerzielle | http://blast.ncbi.nlm.nih.gov/Blast.cgi?PAGE_TYPE=BlastDocs& DOC_TYPE=Download |
| Bowtie (Software) | Langmead et al. | nicht-kommerzielle | http://bowtie-bio.sourceforge.net/index.shtml |
| cisFinder (Software) | Sharov et al. | nicht-kommerzieller | http://lgsun.grc.nia.nih.gov/CisFinder/ |
| Chip für Kapillarelektrophorese | Agilent Technologies | 5067-1504 | Laden Sie diesen Chip mit 1 µ l DNA für die Qualitätskontrolle von Bibliotheken. Bei 4 °C lagern. |
| Chipbasiertes Kapillarelektrophorese-System | Agilent Technologies | G2940CA | Der Agilent 2100 BioAnalyzer wird zur Überprüfung der Qualität von ChIP-Seq-Bibliotheken eingesetzt. Halten Sie die Reagenzien bei 4 °C. |
| ChIP-Seq-Bibliotheksvorbereitungskit (KAPA Hyper Prep Kit) | Das Kapa Biosystems | KK8504 | Kit enthält KAPA End Repair und A-Tailing Enzyme Mix, End Repair und A-Tailing Puffer, DNA-Ligase, Ligationspuffer, KAPA HiFi HotStart ReadyMix (2X) und KAPA Library Amplification Primer Mix (10X) (siehe auch PCR-Primer). Adapter sind nicht im Lieferumfang enthalten. Bei -20 °C lagern. |
| ChIP-Seq-Bibliotheksvorbereitungskit (Alternative, ThruPLEX-FD Prep Kit) | Das Rubicon Genomics | R40048 | Kit verwendet eigene Stem-Loop-Adapter und Primer. Dieses Kit eliminiert Zwischenreinigungsschritte und ist genauso empfindlich wie das KAPA Hyper Prep Kit. Bei -20 °C lagern. |
| Cluster3 (software) | de Hoon et al. | nicht-kommerzielles | http://bonsai.hgc.jp/~mdehoon/software/cluster |
| FastQC (Software) | Simon Andrews | nicht-kommerzielles | http://www.bioinformatics.babraham.ac.uk/projects/fastqc |
| Fluorometer | life technologies | Q32866 | Qubit 2.0 Fluorometer |
| Fluorometer | Reagenzien life | technologies Q32851 | Das Kit enthält ein konzentriertes Assay-Reagenz, einen Verdünnungspuffer und vorverdünnte DNA-Standards für das Qubit Fluorometer. Lagern Sie DNA-Standards bei 4 Grad; C, puffern und bei Raumtemperatur färben. |
| Formaldehyd | Sigma | F8775-4X25ML | Formaldehydlösung, für die Molekularbiologie, 36,5-38% in H2O, stabilisiert mit 10-15% Methanol. Bei Raumtemperatur lagern. ACHTUNG: Formaldehyd ist ätzend und hochgiftig. |
| Gel (E-Gel EX Agarose, 2%) | life technologies | G4010 | Vorgegossenes Gel mit 11 Vertiefungen, aufklappbares Format. Lassen Sie eine Spur zwischen Leiter und Bibliothek leer, um Kreuzkontaminationen zu vermeiden. Lagern Sie Gele bei Raumtemperatur. |
| für die Lebensdauer | des Gelelektrophoresesystems | G6465 | E-Gel iBase und E-Gel Safe Imager Kombi-Kit zur Größenauswahl von ChIP-Seq-Bibliotheken. |
| Gel-Extraktionskit | Qiagen | 28706 | Lagern Sie alle Reagenzien bei Raumtemperatur. Verwenden Sie 500 & micro; l QG-Puffer pro 100 mg 2% Agarose-Gelscheibe zur Extraktion von DNA. Verwenden Sie MinElute-Säulen (aus dem MinElute PCR-Aufreinigungskit), um DNA zweimal zu eluieren. |
| HOMER (Software) | Chris Benner | nicht-kommerzieller | http://homer.salk.edu/homer/index.html |
| Hybridisierungsofen | Techne | FHB1D | Hybridizer HB-1D |
| IGV (Software) | Robinson et al. | nicht-kommerzieller | http://www.broadinstitute.org/igv/home |
| Illumina CASAVA-1.8 Qualitätsfilter (Software) | Assaf Gordon | nicht-kommerzieller | http://cancan.cshl.edu/labmembers/gordon/fastq_illumina_filter |
| Java TreeView (Software) | Alok Saldanha | nicht-kommerzieller | http://jtreeview.sourceforge.net |
| Laborbuchse | Edu-Lab | CH0642 | Diese Buchse wird verwendet, um die Probe im Schallgehäuse für die Beschallung anzuheben. |
| Leiter, 100 bp | New England BioLabs | N3231 | 1x Lösung bei Raumtemperatur aufbewahren. Lagerbestand bei -20 °C lagern. |
| Leiter, 1 kb | New England BioLabs | N3232 | 1x Lösung bei Raumtemperatur aufbewahren. Lagerbestand bei -20 °C lagern. |
| 1,5-ml-Mikrozentrifugenröhrchen mit geringer Retention | life technologies | AM12450 | antihaftbeschichtete, RNase-freie Mikrofuge-Röhrchen, 1,5 ml |
| MACS2 (Software) | Tao Liu | nicht-kommerzielles | https://github.com/taoliu/MACS |
| Magnetische Beads | life technologies | 11201D | Diese Dynabeads sind superparamagnetische Kügelchen mit affinitätsgereinigtem, polyklonalem Schaf-Anti-Maus-IgG, das kovalent an die Bead-Oberfläche gebunden ist. Bei 4 °C lagern. |
| Magnetische Kügelchen | life technologies | 11203D | Diese Dynabeads sind superparamagnetische Kügelchen mit affinitätsgereinigtem, polyklonalem Schaf-Anti-Kaninchen-IgG, das kovalent an die Perlenoberfläche gebunden ist. Bei 4 °C lagern. |
| Magnetic Beads | life | technologies 10001D | Diese Dynabeads sind superparamagnetische Kügelchen mit rekombinantem Protein A, das kovalent an die Bead-Oberfläche gebunden ist. Bei 4 °C lagern. |
| Magnetic Beads | life | technologies 10003D | Diese Dynabeads sind superparamagnetische Kügelchen mit rekombinantem Protein G, das kovalent an die Bead-Oberfläche gebunden ist. Bei 4 °C lagern. |
| Magnetische | Rack-Lebensdauer-Technologien | 12321D | DynaMag-2-Magnet |
| MEME | Bailey et al. | nicht-kommerzielles | http://meme.nbcr.net/meme/ |
| Na3VO4 | New England BioLabs | P0758 | Natriumorthovanadat (100 mM) ist ein häufig verwendeter allgemeiner Inhibitor für Proteinphosphotyrosylphosphatasen. Bei -20 °C lagern. |
| NaF | New England BioLabs | P0759 | Natriumfluorid (500 mM) wird häufig als allgemeiner Inhibitor von Phosphoseryl- und Phosphothreonylphosphatasen verwendet. Bei -20 °C lagern. |
| NGS-Gerät | Illumina | SY-301-1301 | Genome Analyzer IIx |
| NGS-Gerät (hohe Leistung) | Illumina | SY-401-2501 | HiSeq |
| Normales Serum (Antikörperkontrolle) | Santa Cruz Biotechnology | sc-2028 | Verwendung als Kontrolle für polyklonale IgG-Antikörper von Ziegen in ChIP-qPCR-Experimenten. Bei 4 °C lagern. |
| Normales Serum (Antikörperkontrolle) | Santa Cruz Biotechnology | sc-2025 | Verwendung als Kontrolle für polyklonale IgG-Antikörper der Maus in ChIP-qPCR-Experimenten. Bei 4 °C lagern. |
| Normales Serum (Antikörperkontrolle) | Santa Cruz Biotechnology | sc-2027 | Verwendung als Kontrolle für polyklonale IgG-Antikörper in Kaninchen in ChIP-qPCR-Experimenten. Bei 4 °C lagern. |
| Nukleinsäure-Färbelösung | iNtRON | 21141 | Verwenden Sie die Nukleinsäure-Färbelösung RedSafe im Verhältnis 1:50.000. Bei Raumtemperatur lagern. |
| Orange G | Sigma | O3756-25G | 1-Phenylazo-2-naphthol-6,8-disulfonsäure Dinatriumsalz. Bei 4 °C lagern. |
| PCR-Primer, | z. B. IDT- oder Sigma-Primer | zur Anreicherung von Adapter-ligierten DNA-Fragmenten durch PCR: AATGATACGGCGACCGA*G und CAAGCAGAAGACGGCATACGA*G, Phosphorthioat-Bindung. Grundierungen entworfen von Ethan Ford. Kombinieren Sie Grundierungen bei 5 & Mikro; M jeweils. Verwenden Sie 5 & Mikro; L in einem 50 &Micro; l PCR-Reaktion. Bei -20 °C lagern. | |
| MinElute PCR-Aufreinigungskit | Qiagen | 28006 | für die Aufreinigung von ChIP-qPCR- und Schertestproben. Lagern Sie MinElute-Spin-Säulen bei 4 & Grad; C, alle anderen Puffer und Sammelröhrchen bei Raumtemperatur. |
| Phenol:Chloroform:Isoamylalkohol (25:24:1, pH 7,9) | life technologies | AM9730 | Phenol:Chloroform:IAA (25:24:1) ist vorgemischt und wird bei einem pH-Wert von 6,6 geliefert. Verwenden Sie den mitgelieferten alkalischen Tris-Puffer, um den pH-Wert auf 7,9 zu erhöhen. Bei 4 °C lagern. ACHTUNG: Phenol:Chloroform:Isoamylalkohol ist ätzend, hochgiftig und brennbar. |
| Primer3 (Software) | Steve Rozen & Helen Skaletsky | nicht-kommerzielle | http://biotools.umassmed.edu/bioapps/primer3_www.cgi |
| Proteasehemmer Tabletten | Roche | 11836170001 | cOmplete, Mini, EDTA-frei. Verwenden Sie 1 Tablette pro 10 ml. Bei 4 °C lagern. |
| Proteasehemmer Tabletten | Roche | 11873580001 | cOmplete, EDTA-frei. Verwenden Sie 1 Tablette pro 50 ml. Bei 4 °C lagern. |
| Proteinase K | life technologies | AM2548 | Proteinase K Lösung (20 & Mikro; g/µ l). Bei -20 °C lagern. |
| RNase A | life technologies | 12091-039 | RNase A (20 & Mikro; g/µ l). Bei Raumtemperatur lagern. |
| Rotator | Stuart | SB3 | Rotator SB3 |
| SAMtools (Software) | Li et al. | nicht-kommerzielles | http://samtools.sourceforge.neta |
| Reversible Festphasen-Immobilisierungsperlen | Beckman Coulter | A63882 | Die Agencourt AMPure XP-Kügelchen werden verwendet, um die Kontamination von Adapter-Dimeren in ChIP-Seq-Bibliotheken zu minimieren. Bei 4 °C lagern. |
| Sonicator 3000 | Misonix/Qsonica | Neuere Modelle sind jetzt erhältlich. Q125, Q500 oder Q700 eignen sich alle zum Scheren von vernetztem Chromatin. | |
| Schallschutzhaube | Misonix/Qsonica | optional: Befolgen Sie die Empfehlung des Herstellers, um die richtige Schallschutzhaube zu erhalten. | |
| Thermomixer | eppendorf | 22670000 | Thermomixer für 24 x 1,5 mL Röhrchen. Präzise Temperaturregelung von 4 & Grad; C über Raumtemperatur auf 99 °C. |
Referenzen
- Gilmour, D. S., Lis, J. T. Detecting protein-DNA interactions in vivo: distribution of RNA polymerase on specific bacterial genes. Proc Natl Acad Sci U S A. 81 (14), 4275-4279 (1984).
- Gilmour, D. S., Lis, J. T. In vivo interactions of RNA polymerase II with genes of Drosophila melanogaster. Mol Cell Biol. 5 (8), 2009-2018 (1985).
- Solomon, M. J., Larsen, P. L., Varshavsky, A. Mapping protein-DNA interactions in vivo with formaldehyde: evidence that histone H4 is retained on a highly transcribed gene. Cell. 53 (6), 937-947 (1988).
- Ren, B., et al. Genome-wide location and function of DNA binding proteins. Science. 290 (5500), 2306-2309 (2000).
- Johnson, D., Mortazavi, A., Myers, R., Wold, B. Genome-wide mapping of in vivo protein-DNA interactions. Science. 316 (5830), 1497-1502 (2007).
- Hellsten, U., et al. The genome of the Western clawed frog Xenopus tropicalis. Science. 328 (5978), 633-636 (2010).
- Lee, T. I., Johnstone, S. E., Young, R. A. Chromatin immunoprecipitation and microarray-based analysis of protein location. Nature Protocols. 1 (2), 729-748 (2006).
- Blythe, S. A., Reid, C. D., Kessler, D. S., Klein, P. S. Chromatin immunoprecipitation in early Xenopus laevis embryos. Dev Dyn. 238 (6), 1422-1432 (2009).
- Gentsch, G. E., Smith, J. C. Investigating physical chromatin associations across the Xenopus genome by chromatin immunoprecipitation. Cold Spring Harb Protoc. 2014 (5), (2014).
- Ubbels, G. A., Hara, K., Koster, C. H., Kirschner, M. W. Evidence for a functional role of the cytoskeleton in determination of the dorsoventral axis in Xenopus laevis eggs. J Embryol Exp Morphol. 77, 15-37 (1983).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biol. 10 (3), R25(2009).
- Li, H., et al. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Heinz, S., et al. Simple combinations of lineage-determining transcription factors prime cis-regulatory elements required for macrophage and B cell identities. Mol Cell. 38 (4), 576-589 (2010).
- Zhang, Y., et al. Model-based analysis of ChIP-Seq (MACS). Genome Biol. 9 (9), R137(2008).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Thorvaldsdottir, H., Robinson, J. T., Mesirov, J. P. Integrative Genomics Viewer (IGV): high-performance genomics data visualization and exploration. Brief Bioinform. 14 (2), 178-192 (2013).
- Imoto, S., Nolan, J., Bioinformatics Miyano, S. 20 (9), 1453-1454 (2004).
- Camacho, C., et al. BLAST+: architecture and applications. BMC Bioinformatics. 10, 421(2009).
- Conesa, A., et al. Blast2GO: a universal tool for annotation, visualization and analysis in functional genomics research. Bioinformatics. 21 (18), 3674-3676 (2005).
- Sive, H., Grainger, R., Harland, R. Early development of Xenopus laevis: A laboratory manual. , Cold Spring Harbor Laboratory Press. Cold Spring Harbor, New York. (2000).
- Chen, Y., et al. Systematic evaluation of factors influencing ChIP-seq fidelity. Nat Methods. 9 (6), 609-614 (2012).
- Sharov, A. A., Ko, M. S. H. Exhaustive search for over-represented DNA sequence motifs with CisFinder. DNA Res. 16 (5), 261-273 (2009).
- Bailey, T. L., et al. MEME SUITE: tools for motif discovery and searching. Nucl Acids Res. 37 (2), W202-W208 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Park, P. J. ChIP-seq: advantages and challenges of a maturing technology. Nat Rev Genet. 10 (10), 669-680 (2009).
- Gentsch, G. E., et al. In vivo T-box transcription factor profiling reveals joint regulation of embryonic neuromesodermal bipotency. Cell Rep. 4 (6), 1185-1196 (2013).
- Barabasi, A. L., Oltvai, Z. N. Network biology: understanding the cell's functional organization. Nat Rev Genet. 5 (2), 101-113 (2004).
- Biggin, M. D. Animal transcription networks as highly connected, quantitative continua. Dev Cell. 21 (4), 611-626 (2011).
- Nieuwkoop, P. D., Faber, J. Normal table of Xenopus laevis (Daudin): a systematical and chronological survey of the development from the fertilized egg till the end of metamorphosis. , Garland. New York & London. (1994).
- Akkers, R. C., et al. A hierarchy of H3K4me3 and H3K27me3 acquisition in spatial gene regulation in Xenopus embryos. Dev Cell. 17 (3), 425-434 (2009).
- Yoon, S. J., Wills, A. E., Chuong, E., Gupta, R., Baker, J. C. HEB and E2A function as SMAD/FOXH1 cofactors. Genes Dev. 25 (15), 1654-1661 (2011).
- Jallow, Z., Jacobi, U. G., Weeks, D. L., Dawid, I. B., Veenstra, G. J. Specialized and redundant roles of TBP and a vertebrate-specific TBP paralog in embryonic gene regulation in Xenopus. Proc Natl Acad Sci U S A. 101 (37), 13525(2004).
- Buchholz, D. R., Paul, B. D., Shi, Y. -B. Gene-specific changes in promoter occupancy by thyroid hormone receptor during frog metamorphosis. Implications for developmental gene regulation. J Biol Chem. 280 (50), 41222-41228 (2005).
- Wills, A. E., Guptaa, R., Chuonga, E., Baker, J. C. Chromatin immunoprecipitation and deep sequencing in Xenopus tropicalis and Xenopus laevis. Methods. 66 (3), 410-421 (2014).
- Metz, B., et al. Identification of formaldehyde-induced modifications in proteins: reactions with model peptides. J Biol Chem. 279 (8), 6235-6243 (2004).
- Landt, S. G., et al. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Res. 22 (9), 1813-1831 (2012).
- Mazzoni, E. O., et al. Embryonic stem cell-based mapping of developmental transcriptional programs. Nat Methods. 8 (12), 1056-1058 (2011).
- Deal, R. B., Henikoff, S. A simple method for gene expression and chromatin profiling of individual cell types within a tissue. Dev Cell. 18 (6), 1030-1040 (2010).
- Bonn, S., et al. Tissue-specific analysis of chromatin state identifies temporal signatures of enhancer activity during embryonic development. Nat Genet. 44 (2), 148-156 (2012).
Nachdrucke und Genehmigungen
