Das Ziel dieser Studie ist Belohnung bezogenen verteilten Gehirnnetzwerken zu identifizieren, indem eine zuverlässige immunhistologische Technik zelluläre c-fos-Aktivierung begrenze gleichzeitige Änderungen in Dopaminbahnen und Anschlußstellen nach neuartigen Aufnahme von Fett und Zucker in Ratten zu messen.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
Gleichzeitige Detektion von c-Fos Aktivierung von mesolimbischen und mesocorticalen Dopamine Belohnung Seiten Nach Naive Zucker und Fett Verschlucken in Ratten
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
In dieser Studie wird zelluläre c-fos-Aktivierung Effekte neuartiger Einnahme von Fett und Zucker auf Gehirn Dopamin (DA) Wege bei Ratten zu bewerten. Die Aufnahme von Zucker und Fette sind durch ihre angeborene Attraktionen sowie gelernt Vorlieben vermittelt. Gehirn Dopamin, insbesondere Meso-limbischen und Meso-kortikalen Projektionen aus dem ventralen Tegmentum (VTA), wurde in beiden dieser ungelernten und gelernt Antworten gebracht. Das Konzept der verteilten Netzwerken im Gehirn, wobei mehrere Standorte und Sender / Peptid-Systemen interagieren, wurde schmackhafter Nahrungsaufnahme vermitteln vorgeschlagen, aber es gibt Hinweise empirisch demonstriert solche Aktionen. So entlockt Zuckeraufnahme DA Freisetzung und erhöht c-fos-like Immunreaktivität (FLI) aus einzelnen VTA DA Projektionszonen einschließlich der Nucleus accumbens (NAC), der Amygdala (AMY) und medialen präfrontalen Kortex (mPFC) sowie die dorsale Striatum. Ferner sind diese Website zentrale Verwaltung von selektiven DA-Rezeptor-Antagonisten ins differentiell Erwerb und die Expression von konditionierten Geschmacksvorlieben von Zucker oder Fette hervorgerufen reduzieren. Ein Ansatz, mit dem zu bestimmen, ob diese Seiten als ein verteiltes Netzwerk Gehirn als Reaktion auf Zucker oder Fettaufnahme in Wechselwirkung wäre gleichzeitige beurteilen, ob die VTA und seine wichtigsten mesotelencephalic DA Projektionszonen (prälimbischen und infralimbischen mPFC, Kern und Schale der NAK, basolateralen und zentral-cortico-medialen AMY) würde sowie die dorsale Striatum koordinierte Display und gleichzeitiger FLI Aktivierung nach oraler, unkonditionierten Aufnahme von Maisöl (3,5%), Glukose (8%), Fructose (8%) und Saccharin (0,2 %) Lösungen. Dieser Ansatz ist ein erfolgreicher erster Schritt bei der Ermittlung der Machbarkeit der zellulären c-fos-Aktivierung gleichzeitig in allen relevanten Gehirn Sites mit Belohnung bezogenes Lernen in der Einnahme von schmackhafte Nahrung bei Nagetieren zu studieren.
Einleitung
Gehirn Dopamin (DA) hat in zentralen Antworten auf die Aufnahme von Zucker schmackhaft durch vorgeschlagen hedonischen 1,2, Aufwand im Zusammenhang mit 3 und Gewohnheit-basierte 4,5 Wirkungsmechanismen in Verbindung gebracht. Der primäre DA Weg in diese Effekte verwickelt ihren Ursprung im ventralen Tegmentum (VTA) und Projekte auf den Nucleus accumbens (NAC) Kern und Schale, die basolaterale und zentral-cortico-medialen Amygdala (AMY) und der prälimbischen und infralimbischen medial präfrontalen Kortex (mPFC) (siehe Bewertungen 6,7). Die VTA wurde in Saccharose Aufnahme 8,9 und DA Freisetzung beobachtet folgende Aufnahme von Zucker in der NAC 10-15, AMY 16,17 und mPFC 18-20 gebracht. Fettaufnahme stimuliert auch DA NAC 21 freigeben, und eine andere DA-reiche Projektionszone der dorsalen Striatum (Nucleus caudatus-Putamen) wurde auch im Zusammenhang mit DA-vermittelten 22,23 Fütterung. Kelley 24-27 vorgeschlagen , dass diese mehrere ProjektIonenzonen dieser DA-vermittelten System gebildet , um eine integrierte und interaktive verteilte Netzwerk Gehirn durch umfangreiche und intime Verbindungen 28-34.
Zusätzlich zu der Fähigkeit der DA D1 und D2 - Rezeptor - Antagonisten Aufnahme von Zucker zu reduzieren 35-37 und Fette 38-40 hat DA Signalisierung auch in der Vermittlung der Fähigkeit von Zuckern und Fetten herzustellen konditionierten Geschmackspräferenzen (CFP) in Verbindung gebracht 41- 46. Mikroinjektionen eines DA D1 - Rezeptor - Antagonist in das NAC, AMY oder mPFC 47-49 Erwerb von GFP durch intragastric Glukose ausgelöst beseitigen. Während Mikroinjektionen von entweder DA D1 oder D2 - Rezeptor - Antagonisten in die mPFC Erwerb von Fructose-GFP 50 eliminiert werden der Erwerb und die Expression von Fructose-CFP differentiell von DA - Antagonisten in der NAC und AMY 51,52 blockiert.
Die c-fos - Technik 53,54 wurde verwendet neuronale activatio zu untersuchenn durch schmackhaft Aufnahme und neuronale Aktivierung induziert. Der Begriff "c-fos-Aktivierung" wird im gesamten Manuskript verwendet werden und wird operativ durch eine erhöhte Transkription von c-Fos während der neuronalen Depolarisation definiert. Sucrose Aufnahme erhöht fos-like Immunreaktivität (FLI) in der zentralen AMY Kern, der VTA sowie die Schale, aber nicht Kern, der NAC 55-57. Während Saccharose Aufnahme in der Sham-Fütterung Ratten signifikant erhöht FLI im AMY und der NAC, aber nicht die VTA 58, intragastric Saccharose oder Glukose - Infusionen FLI deutlich in der NAC erhöht und Mittel- und basolateralen Kernen des AMY 59,60. Wiederholte Zugabe von Saccharose zu geplanten Chow Zugang erhöht FLI im mPFC sowie der NAC Schale und Kern 61. Eine Saccharosekonzentration Herunterschalten Paradigma ergab , dass die größten FLI Erhöhungen der basolateralen AMY und NAC aufgetreten ist , aber nicht die VTA 62. Nach Anlage, Aussterben von zuckerbedingten Natur reward Verhalten erhöht FLI in der basolateralen AMY und der NAC 63. Darüber hinaus führte die Paarung Zucker Verfügbarkeit zu einem Ton in Ton anschließend 64 FLI Ebenen in der basolateralen AMY erhöht. Hochfettaufnahme erhöht auch FLI in NAC und mPFC Websites 65-67.
Die meisten der zuvor zitierten Studien untersuchten Zucker und Fett Auswirkungen auf c-fos - Aktivierung in einzelne Websites , die 24-27 Informationen über Identifikation von verteilten Gehirnnetzwerken Belohnungsbezogene nicht bieten. Des Weiteren auch viele der Studien beschreiben nicht die relativen Beiträge von Teilbereichen des NAC (Kern und Schale), AMY (basolateralen und Zentral-cortico-medial) und mPFC (prälimbischen und infralimbischen), die möglicherweise durch die geprüft werden könnten Vorteil der ausgezeichneten räumlichen, 68 Einzelzellen - Auflösung in c-Fos - Mapping. Unser Labor 69 kürzlich verwendete c-fos - Aktivierung und gleichzeitig gemessenen Veränderungen in der VTA DA - Weg und seine ProSpritz- Zonen (NAC, AMY und mPFC) nach neuen Einnahme von Fetten und Zucker in Ratten. Die vorliegende Studie, die Verfahrens und methodischen Schritte beschreibt, ob eine akute Exposition bei sechs verschiedenen Lösungen (Maisöl, Glucose, Fructose, Saccharin, Wasser und eine Fettemulsion Steuerung), differentiell FLI aktivieren in Teilbereichen des NAC, AMY würde gleichzeitig zu analysieren mPFC sowie die dorsale Striatum. Diese gleichzeitige Detektion von Unterschieden Bestätigung signifikante Auswirkungen auf FLI in jeder Site und Bestimmung, ob Änderungen in einem bestimmten Standort korrelierte mit Veränderungen in verwandten Seiten erlaubt, wodurch Unterstützung für ein verteiltes Netzwerk Gehirn 24-27. Diese geprüften Verfahren, ob der VTA, die prälimbischen und infralimbischen mPFC, Kern und Schale des NAC und der basolateralen und zentral-cortico-medialen AMY) sowie der dorsalen Striatum würde Display koordiniert und gleichzeitige FLI Aktivierung nach oraler, unbedingten Aufnahme von Glucose (8%), Fructose (8%), Maisöl (3,5%) und Saccharin (0,2%) Lösungen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
Diese experimentellen Protokolle wurden von der Institutional Animal Care und Use Committee Zertifizierung bestätigt, dass alle Themen und Verfahren sind in Übereinstimmung mit den National Institutes of Health Guide für Pflege und Verwendung von Labortieren.
1. Themen
- Kauf und / oder Rasse männlichen Sprague-Dawley-Ratten (260-300 g).
- Haus Ratten einzeln in Drahtgitterkäfigen. Pflegen Sie sie auf einem 0.12 Stunden Licht / Dunkel - Zyklus mit Rattenfutter und Wasser ad libitum zur Verfügung.
- Weisen Sie geeignete Probengrößen (zB n ≈ 6 - 8) zufällig in Gruppen.
2. Testvorrichtung und Intake Procedures
- Verwenden kalibrierten Zentrifugenröhrchen mit Gummistopfen und einem 45 ° -Winkel Metallzuführungsschlauch genaue Messung zu liefern (± 0,1 ml) der vorgestellten Lösungen. Sichern Sie sie in die Käfige durch eine gespannte Metallfeder Sichtbarkeit der Kalibrierungen zu ermöglichen.
- Beschränken Lebensmittelrationen (~15 / g / Tag) der Ratten, Gewicht zu 85% ihres ursprünglichen Körpergewichts zu reduzieren Motivation zu erhöhen, die Lösungen zu verbrauchen. Hinweis: Die Gewichtsreduktion sollte zwischen 3 nehmen - 5 Tage.
- Geben Sie Pre-Training-Lösungen (10 ml) von 0,2% Saccharin vier Tage lang über eine 1 Stunde Sitzung, um die Wahrscheinlichkeit zu maximieren, die Ratten die nachfolgenden Testlösungen mit kurzen (weniger als 1 min) Latenz Probe.
- Bestätigen Fluss durch die Zentrifugenröhre durch ein paar Tropfen zu verschütten.
- Wiegen Rohre vor und nach jeder Sitzung Aufnahme Messung zu erhalten.
- Führen eines Einlass Test am fünften Tag auf Untergruppen eine von sechs Lösungen Empfangen (10 ml, 1 h): a) Wasser, b) neuartige Geschmack (0,05% Kirscharoma) 0,2% Saccharin, c) 8% Fructose, d) 8 % Glucose, e) 3,5% Maisöl 0,3% Xanthangummi suspendiert und f) 0,3% Xanthangummi.
- Stellen Sie sicher, dass die Nährlösungen sind isokalorische; Somit ist die 3,5% Maisölkonzentration isokalorische auf die 8% Zuckerlösungen.
- Stellen Sie sicher, thbei Ratten Probenlösungen mit kurzen Latenzzeit (weniger als 1 min). Wenn diese Bedingung nicht erfüllt wird, muss das dann das Thema aus der Studie.
3. Gewebepräparation
- Anästhesieren jedes Tier durch eine intraperitoneale Injektion von Pentobarbital 90 min nach der ersten Exposition zu jeder Testlösung. Bestätigen Sie, dass die Tiere ordnungsgemäß durch den Nachweis narkotisiert werden, dass das Tier nicht mehr auf solche Reflexe als Rückzug zu Fuß Prise reagiert, blinkt folgende direkte Hornhaut- Druck oder den Kopf zu tief Ohrmuschel Stimulation schütteln.
- Perfuse jedes Tier transcardial wie zuvor 69 beschrieben.
- Anesthetize Ratten mit einer Überdosis von Natriumpentobarbital (65 mg / kg), entfernen Sie den Brustkorb und setzen die Brust für den freien Zugang zum Herzen 69.
- Legen Sie die Nadel in der Spitze des linken Herzklappe, und schneiden Sie die Hohlvene. Administrieren Phosphatpufferlösung (PBS, ~ 180 ml), gefolgt von einer phosphatgepufferten Fixiermittel containing 4% Paraformaldehyd (~ 180 ml).
- Stellen Sie sicher, dass das Tier richtig tatsächlich durchblutet wird durch die Prüfung, ob Flüssigkeit andere Hohlräume hinterlässt, wie die Nase, Mund und Genitalbereich. Hinweis: Die richtige Fixierung mit Paraformaldehyd wird durch große Muskelbewegungen begleitet werden. Wenn dies nicht erfolgt, neu zu justieren, die Nadel, bis diese Reaktion auftritt.
- Entfernen Sie das Gehirn aus dem Schädel schnell durch Fell schneiden und die Haut vom Schädel. Verwenden Sie rongeurs zu knacken und die Knochen aus dem Gehirn zu entfernen von hinten nach vorne zu bewegen. Arbeiten zunächst in den Bereich unterhalb und hinter dem Cerebellum, sicherzustellen, dass die chirurgische Zange zwischen dem Knochen und meningealen Pia mater ist. Sobald die Oberseite und die Seiten des Schädels entfernt, mit einem kleinen Spatel das Gehirn von der Basis zu heben, und schnippeln Hirnnerven mit einer kleinen Schere. Achten Sie darauf, nicht das Gehirn zu beschädigen beim Versuch, den Knochen zu entfernen.
- Befestigen Sie die Gehirne in einer 4% igen Paraformaldehydlösung über Nacht bei 4 ° C.Legen Sie die Gehirne in einer 30% Saccharose / 70% PBS-Lösung bei Raumtemperatur, bis sie am Boden des Behälters absetzen.
- Blockieren Sie das Gehirn
- Entfernen Sie den rostralen Teil des Gehirns, Querschneiden kaudal der Riechkolben.
- Entfernen Sie den Schwanz Teil des Gehirns, die quer auf der Ebene des Kleinhirns und Schneiden der Brücke.
- Montieren Sie das Gehirn koronalen mit dem Schwanzteil auf die Bühne eines Schlittenmikrotom fixiert und geschnitten Koronalschnitte (40 & mgr; m) durch die mPFC (2,86-2,20 mm rostral Bregma), NAC Kern und Schale und dorsalen Striatum (+ 1,76 bis 1,60 mm rostral zu Bregma), der AMY (-2,12 - -2,92 mm caudal bis bregma) und der VTA (-5,20 - -5,60 mm kaudal Bregma). Verwenden Sie ein Rattengehirn Atlas 70 zur Führung.
- Sammeln frei schwebenden Abschnitte in einzelne Vertiefungen einer Platte mit 24 Vertiefungen mit PBS für eventuelle immunhistochemische Analyse gefüllt 71. Verwenden Sie die Parafilm 24 wir zu versiegelnll Platte, um sicherzustellen, das PBS nicht verdampft in dem Behälter und trocknen Sie das Gehirn auf. Lagern Sie das Hirngewebe in 4 ° C.
4. c-fos Procedures (Angepasst von 71)
- Behandeln jeden Abschnitt mit 5 ml von 5% normalem Ziegenserum und 0,2% Triton X-100 in PBS für 1 Stunde.
- Inkubieren der behandelten Abschnitte mit primärem Antikörper (Kaninchen-Anti-c-fos, 1: 5000) bei 4 ° C für 36 h in Vertiefungen, die 1 ml PBS.
- Rinse Abschnitte 3x mit PBS (5 ml) für 10 min jeweils.
- Inkubieren mit sekundärem Antikörper (biotinyliertes Ziegen-anti-Kaninchen, 1: 200) bei RT für 2 h in Vertiefungen, die 1 ml PBS.
- Spülen jeden Abschnitt 3x in PBS (5 ml) für 10 min jeweils.
- Inkubieren der gespülten Abschnitte für 2 h in einem handelsüblichen Avidin-Meerrettich-Peroxidase-Mischung, die in einem Kit von Avadin DH (100 ul) und biotinylierter Meerrettichperoxidase H (100 ul) in 5 ml PBS zusammengesetzt kommt.
- Re-rinse die Abschnitte 3x in PBS (5 ml) für 10 min jeweils.
- Reagieren , um die Abschnitte mit 0,05% Diaminobenzidin (DAB) in Gegenwart von 0,0015% H 2 O 2 für 5 - 10 min, je nach der Reaktionsfähigkeit des Gewebes in Vertiefungen , die 5 ml der DAB - Lösung.
- Doppel-label die VTA Abschnitte. Inkubieren sie mit einem Tyrosin-Hydroxylase (TH) Antikörper (Kaninchen-anti-Ratten-TH, 1: 2000) in PBS (5 ml) über Nacht bei 4 ° C.
- Spülen Abschnitte 3x in PBS (5 ml) für 10 min jeweils.
- Inkubieren mit sekundärem Antikörper (biotinyliertes Ziegen-anti-Kaninchen, 1: 200) in PBS (5 ml) bei Raumtemperatur für 2 Std.
- Spülen Abschnitte 3x in PBS (5 ml) für 10 min jeweils.
- Visualisieren der Antikörper durch einen sekundären Antikörper-Peroxidase-Komplex verwendet wird. Reagieren mit einer Kombination von 0,05% DAB und einer 0,3% igen Nickelsulfatlösung, für 5 - 10 min, abhängig von der Reaktion des Gewebes in Vertiefungen, die 5 ml des DAB / NiCl Lösung.
- Stellen Sie sicher, dass die DAB-Lösung in Farbe milchig hellgrün aus ists Reaktion mit dem 0,3% Nickelsulfat. Wenn die Lösung zu grün ist, dann wird die Reaktion zu dunkel sein.
- Montieren Sie alle Teile auf mit Gelatine beschichteten Folien. Lassen Sie sie über Nacht trocknen und dann die Abdeckung feste mit einigen Tropfen einer Toluol-basierte Lösung (TBS).
- Code gleitet, so daß die experimentellen Bedingungen für die Beobachter unbekannt ist.
5. Bestimmung von c-fos Immunreaktive Counts
- Vergeben Paare unparteiische Beobachter Fos-positiven Neuronen in diesen Regionen von Interesse (ROI) zu zählen: prälimbischen mPFC, infralimbischen mPFC, NAC Kern, NAC Schale, basolateralen AMY Kerne, Zentral-cortico-medial AMY, dorsalen Striatum und VTA. Delineate ob c-Fos - Immunreaktivität in TH + vorlag und TH- Zellen in der VTA. 1 , die eine Bildschirm-Capture bietet Bild des NAC vom Mikroskop.
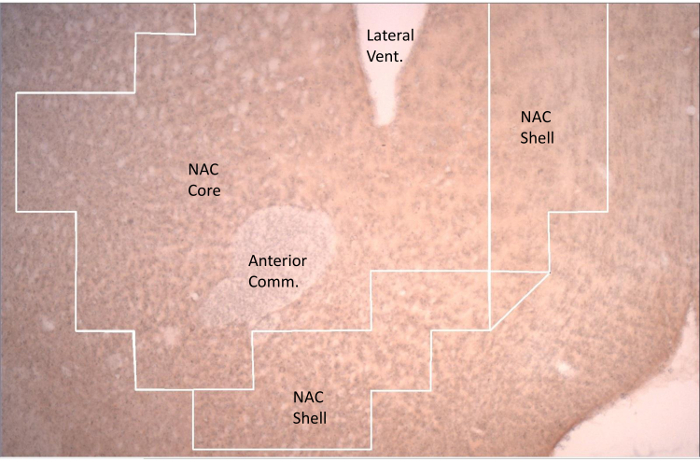
Abbildung 1. Repräsentative Abschnitt des Nucleus accumbens (NAC) durch das Gitter Beschriebenen Regions of Interest angezeigt , mit dem c-fos Counts werden. Die NAC - Shell ist medial und ventral an den NAC Kern gefunden. Der NAC Kern umgibt den vorderen Kommissur (Anterior Comm.). Die ventrale Ausmaß des lateralen Ventrikel (Lateral Vent.) Sichtbar. Bitte klicken Sie hier , um eine größere Version dieser Figur zu sehen.
- Analysieren mindestens drei repräsentativen Scheiben pro Seite, die für alle Tiere in allen von den Testbedingungen.
- Verwenden Sie Software und ein optisches Mikroskop , um die gesamte Region für jeden ROI zu analysieren , indem eine Gliederung (Abbildung 1) zu verfolgen.
- Für einen bestimmten Standort, öffnen Sie die Anwendung und klicken Sie auf den Erwerb im Dropdown-Menü und klicken Sie auf "Live-Bild". Bringen Sie den ROI in den Fokus und klicken Sie auf den Bildschirm, um einen Bezugspunkt zu schaffen. Dann trace die gewählte Hirnregion das Raster als Leitfaden. Sobald die Spur abgeschlossen ist, zählen Zellen (Schritte 5.3.1.1 - 5.3.1.3).
- Doppelklicken Sie auf das Software-Symbol. Gehen Sie auf die Menüleiste klicken Sie auf "Erwerb" und dann "Live-Bild". Bringen Sie den ROI in den Fokus und klicken Sie auf den Bildschirm, um einen Bezugspunkt zu schaffen.
- Gehen Sie auf die Raster-Symbolleiste und klicken Sie auf "Display Grid" und "Use Raster-Etiketten". Skizzieren Sie die ROI mit einer vorgegebenen Spur.
- Zählen Sie alle Zellen in jedem ROI-Bereich, wählen Sie ein "+" in der linken Seitenleiste Zahl von c-fos-Zellen zu halten. Klicken Sie auf jede Zelle einzeln zählt zu registrieren. Betrachten wir eine Zelle positiv für c-fos , wenn eine definierte dunkelroten Kreis beobachtet wird (Abbildung 1).
- Wiederholen Sie diesen Vorgang für jeden Standort.
- Nehmen Sie zählt in einem Labor-Notebook und auf dem Computer für eine spätere Analyse. Gehen Sie auf die Menüleiste klicken Sie auf "Datei", "Save Data File" die Verfolgung und zählt zu speichern.
- Für einen bestimmten Standort, öffnen Sie die Anwendung und klicken Sie auf den Erwerb im Dropdown-Menü und klicken Sie auf "Live-Bild". Bringen Sie den ROI in den Fokus und klicken Sie auf den Bildschirm, um einen Bezugspunkt zu schaffen. Dann trace die gewählte Hirnregion das Raster als Leitfaden. Sobald die Spur abgeschlossen ist, zählen Zellen (Schritte 5.3.1.1 - 5.3.1.3).
- Stellen Sie sicher, dass Interraterreliabilität (unter Verwendung von Korrelation von Zählungen) der beiden uninformiert Rater für jeden Abschnitt in jedem ROI ist immer größer als 0,8 ist.
6. Statistik
- Bewerten Basis Saccharin Einlässe in den ersten vier Tagen mit einem wiederholten Maßnahmen 1-Wege - Varianzanalyse (ANOVA) Vergleich der Saccharin Aufnahme von den Tagen 1, 2, 3 und 4 69.
- Vergleichen Saccharin Aufnahme (Tag 4) mit Testaufnahmen (Tag 5) der sechs Gruppen mit einem randomisierten Block 2-Wege - ANOVA 69.
- Verwenden Sie Tukey Vergleiche (p <0,05) 69 einzelne signifikante Effekte zu bestimmen.
- Bestimmen Sie Interraterreliabilität, und dann mit einem gemeinsamen Zählungen des Betrachters.
- Durchschnittliche c-fos Zählungen für die drei repräsentativen Scheiben für jeden Standort 69.
- Durchführen einer 1-Weg-ANOVA von c-fos-Aktivierung durch Aufnahme der sechs Lösungen induziert (3,5% Maisöl, 8% Glucose, 8% Fructose, 0,2% aromatisierte Saccharin, xaNthan Gummi - Steuerung und Wasser) für die perilimbische mPFC 69.
- Wiederholen Sie parallel Analysen der sechs Gruppen für infralimbischen mPFC, NAC Kern, NAC-Shell, basolateralen AMY, Zentral-cortico-medial AMY, VTA und dorsalen Striatum. Verwenden Sie Tukey Vergleiche (p <0,05) 69 einzelne signifikante Effekte zu offenbaren.
- Vergleichen Maisöl Aufnahme mit den beiden Wasseraufnahme und Aufnahme seines Suspensionsmittel, Xanthan. Vergleichen Fructose und Glucose Einlässe mit sowohl Wasseraufnahme und Aufnahme des nicht-nutritive Süßungsmittel, Saccharin, enthalten.
- Festzustellen, ob signifikante Zusammenhänge zwischen Lösung Einlässe und c-fos-Aktivierung in jeder der Seiten wurden mit Bonferroni r Korrelationen beobachtet (p <0,05).
- Systematisch vergleichen c-fos zählt in der perilimbische und infralimbischen präfrontalen Kortex für jedes Tier in der 3,5% Maisöl-Gruppe.
- Wiederholen Sie systematisch parallel Analysen von jedem Paar der sechs Standorten (VTA, dorsalen Striatum, infralimbic mPFC, perilimbische mPFC, NAC Kern, NAC-Shell, basolateralen AMY, Zentral-cortico-medialen AMY) für die 3,5% Maisöl.
- Wiederholen systematisch parallel Analysen dieser sechs Stellen für die anderen fünf experimentellen Aufnahmebedingungen (8% Glucose, 8% Fructose, 0,2% aromatisierte Saccharin, Xanthangummi Kontrolle und Wasser).
- Nutzen der Tatsache, dass die gleichen Tiere innerhalb einer Lösungsbedingung über alle Standorte durch Bestimmung signifikante Zusammenhänge zwischen den c-fos-Aktivierung in Lösungen und in jeder Lösung wurden bewertet unter Verwendung von Bonferroni r Korrelationen (p <0,05).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Alle Vertreter im Folgenden beschriebenen Ergebnisse wurden bisher 69 veröffentlicht worden sind , und werden hier wieder präsentiert "proof of concept" zu unterstützen , die Wirksamkeit der Technik in angibt.
Lösung Intake
Signifikante Unterschiede in Basis Saccharin Einlässe wurden für alle Tiere (F (3,108) = 57,27, p <0.001) in den ersten vier Tagen beobachtet mit Zufuhr (Tag ...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Das Ziel der Studie war es zu bestimmen, ob die Quelle (VTA) und Vorderhirns Projektionsziele (NAC, AMY, mPFC) von DA Belohnungsbezogenen Neuronen gleichzeitig nach neuen Einnahme von Fett und Zucker in Ratten aktiviert wurden, die zelluläre c-fos-Technik . Die vorliegende Studie ist eine detaillierte Beschreibung der Protokolle einer Studie bisher 69 veröffentlicht. Es wurde vermutet , dass die VTA, seine großen Projektionszonen zum prälimbischen und infralimbischen mPFC, Kern und Schale des NAC und der baso...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben keine konkurrierenden finanziellen Interessen.
Danksagungen
Dank Diana Icaza-Culaki, Cristal Sampson und Theologia Karagiorgis für ihre harte Arbeit an diesem Projekt.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Equipment | |||
| Sprague-Dawley Ratten | Charles River Laboratories | CD-1 | |
| Drahtgeflechtkäfige | Laborprodukte, Seaford, DE | 30-Käfiggestell | |
| Rat Chow | PMI Nutrition International | 5001 | |
| Taut Metal Spring | Lab Products, Seaford, DE | n/a | |
| Rattenwaage | Fisher Scientific Company | n/a | |
| Nalgene Zentrifugenröhrchen | Laborprodukte, Seaford, DE | 10-0501 | |
| Gummistopfen | Laborprodukte, Seaford, DE | n/a | |
| Metallsippers | Laborprodukte, Seaford, DE | n/a | |
| Saccharin | Sigma Chemical Co | 82385-42-0 | |
| Kool-Aid, Kirsche | Kool-Aid | Kommerzielles | |
| Kool-Aid, Traube | Kool-Aid | Kommerzielles | |
| Fruktose | Sigma Chemical Co | F0127 | |
| Glukose | Sigma Chemical Co | G8270 | |
| Maisöl | Mazzola | Kommerzielles | |
| Xanthangummi | Sigma Chemical Co | 11138-66-2 | |
| Gleitmikrotom | Microm International | n/a | |
| Neurolucida Camera | MBF Bioscience | Softwareanwendung | |
| Gelatinebeschichtete Objektträger | Fisher Scientific Company | 12-550-343 | |
| Deckglas | Fisher Scientific Company | 12-545-M | |
| Goldene Nylonbürsten | Loew-Cornell | 2037 | |
| Naturhaar Zobel | Loew-Cornell | 2022 | |
| 24-Well-Platten | Fisher Scientific | 3527 | |
| 6-Well-Platten | Fisher Scientific | 3506 | |
| 1 L Pyrex-Flaschen | Fisher Scientific | 1395-1L | |
| Gewebeeinsatz (Gewebesieb) | Fisher Scientific | 7200214 | |
| Eagle Pipetten | World Precision Instruments | E10 für 1-10μ l | |
| Eagle Pipetten | World Precision Instruments | E100 für 20-100μ l | |
| Eagle Pipetten | World Precision Instruments | E200 für 50-200μ l | |
| Eagle Pipetten | World Precision Instruments | E1000 für 100-1000μ l | |
| Eagle Pipetten | World Precision Instruments | E5000 für 1000-5000μ l | |
| Universal-Spitzen .1-10 μ l | World Precision Instruments | 500192 | |
| Universalspitzen 5-200 μ l | World Precision Instruments | 500194 | |
| Universalspitzen 500-5.000 μ l | World Precision Instruments | 500198 | |
| Blade Vibroslice 100 | World Precision Instruments | BLADE | |
| DPX Eindeckmedium | Elektronenmikroskopie | 13510 | |
| 15 ml Zentrifugenröhrchen | Biologix Research Co. | 10-0501 | |
| Objektträger-Boxen | Biologix Research Co. | 41-6100 | |
| Orbitalschüttler | Madell Corporation | ZD-9556 | |
| Wiegeboote | Fisher Scientific | 02-202-100 | |
| 5 ml Einwegpipetten | Fisher Scientific | 13-711-5AM | |
| Stereo Investigator Software Micro | Bright Field | Software application | |
| Name | <>Company | Katalognummer< | strong>Kommentare |
| Reagenzien | |||
| Paraformaldehyd Granulat | Fisher Scientific | 19210 | |
| NaCl | Fisher | Scientific S271-1 | |
| Natriumphophat monobasisch | Fisher | Scientific S468-500 | |
| Natriumphosphat Diphasic | Fisher Scientific | BP332-500 | |
| Wasserstoff Peroxid | Fisher Scientific | H324-500 | |
| SafeClear II | Fisher Scientific | 23-044-192 | |
| Methanol | Fisher Scientific | A412-1 | |
| Normales Ziegenserum | Vektor S-1000 | ||
| Biotinyliertes Anti-Kaninchen-IgG (H+L) | Vektor | BA-1000 | |
| ABC Kit Peroxidase | Standard Vektor | PK-4000 | |
| Anti-cFos (Ab-5) Kaninchen | EMD chem/Cal Biochem | PC38 | |
| Triton X 100 | SigmaAldrich | X-100 | |
| 3,3' Diaminobenzidintetrahydrochlorid | SigmaAldrich | D5905 | |
| Natriumhydroxid | SigmaAldrich | 5881 | |
| Primärer TH-Antikörper | EMD Millipore | AB152 | |
| Euthosol | Virbac AH |
Referenzen
- Koob, G. F. Neural mechanisms of drug reinforcement. Ann. N.Y. Acad. Sci. 654, 171-191 (1992).
- Wise, R. A. Role of brain dopamine in food reward. Philos. Trans. R. Soc. Lond. B. Biol. Sci. 361, 1149-1158 (2006).
- Salamone, J. D., Correa, M. The mysterious motivational functions of mesolimbic dopamine. Neuron. 76, 470-485 (2012).
- Horvitz, J. C., Choi, W. Y., Morvan, C., Eyny, Y., Balsam, P. D. A "good parent" function of dopamine: transient modulation of learning and performance during early stages of training. Ann. N.Y. Acad. Sci. 1104, 270-288 (2007).
- Wickens, J. R., Horvitz, J. C., Costa, R. M., Killcross, S. Dopaminergic mechanisms in actions and habits. J. Neurosci. 27, 8181-8183 (2007).
- Bjorklund, A., Dunnett, S. B. Dopamine neuron systems in the brain: an update. Trends Neurosci. 30, 194-202 (2007).
- Swanson, L. W. The projections of the ventral tegmental area and adjacent regions: a combined fluorescent retrograde tracer and immunofluorescence study in the rat. Brain Res. Bull. 9, 321-353 (1982).
- Cacciapaglia, F., Wrightman, R. M., Careli, R. M. Rapid dopamine signaling differentially modulates distinct microcircuits within the nucleus accumbens during sucrose-directed behavior. J. Neurosci. 31, 13860-13869 (2011).
- Martinez-Hernandez, J., Lanuza, E., Martinez-Garcia, F. Selective dopaminergic lesions of the ventral tegmental area impair preference for sucrose but not for male sex pheromones in female mice. Eur. J. Neurosci. 24, 885-893 (2006).
- Bassareo, V., Di Chiara, G. Differential influence of associative and nonassociative learning mechanisms on the responsiveness of prefrontal and accumbal dopamine transmission to food stimuli in rats fed ad libitum. J. Neurosci. 17, 851-861 (1997).
- Bassareo, V., Di Chiara, G. Differential responsiveness of dopamine transmission to food-stimuli in nucleus accumbens shell/core compartments. Neurosci. 89, 637-641 (1999).
- Cheng, J., Feenstra, M. G. Individual differences in dopamine efflux in nucleus accumbens shell and core during instrumental conditioning. Learn. Mem. 13, 168-177 (2006).
- Genn, R. F., Ahn, S., Phillips, A. G. Attenuated dopamine efflux in the rat nucleus accumbens during successive negative contrast. Behav. Neurosci. 118, 869-873 (2004).
- Hajnal, A., Norgren, R. Accumbens dopamine mechanisms in sucrose intake. Brain Res. 904, 76-84 (2001).
- Hajnal, A., Smith, G. P., Norgren, R. Oral sucrose stimulation increases accumbens dopamine in the rat. Am. J. Physiol. 286, R31-R37 (2003).
- Bassareo, V., Di Chiara, G. Modulation of feeding-induced activation of mesolimbic dopamine transmission by appetitive stimuli and its relation to motivational state. Eur. J. Neurosci. 11, 4389-4397 (1999).
- Hajnal, A., Lenard, L. Feeding-related dopamine in the amygdala of freely moving rats. Neuroreport. 8, 2817-2820 (1997).
- Bassareo, V., De Luca, M. A., Di Chiara, G. Differential expression of motivational stimulus properties by dopamine in nucleus accumbens shell versus core and prefrontal cortex. J. Neurosci. 22, 4709-4719 (2002).
- Feenstra, M., Botterblom, M. Rapid sampling of extracellular dopamine in the rat prefrontal cortex during food consumption, handling, and exposure to novelty. Brain Res. 742, 17-24 (1996).
- Hernandez, L., Hoebel, B. G. Feeding can enhance dopamine turnover in the prefrontal cortex. Brain Res. Bull. 25, 975-979 (1990).
- Liang, N. C., Hajnal, A., Norgren, R. Sham feeding corn oil increases accumbens dopamine in the rat. Am. J. Physiol. Regul. Integr. Comp. Physiol. 291, R1236-R1239 (2006).
- Dunnett, S. B., Iversen, S. D. Regulatory impairments following selective kainic acid lesions of the neostriatum. Behav. Brain Res. 1, 497-506 (1980).
- Salamone, J. D., Zigmond, M. J., Stricker, E. M. Characterization of the impaired feeding behavior in rats given haloperidol or dopamine-depleting brain lesions. Neurosci. 39, 17-24 (1990).
- Kelley, A. E. Ventral striatal control of appetitive motivation: role in ingestive behavior and reward-related learning. Neurosci. Biobehav. Rev. 27, 765-776 (2004).
- Kelley, A. E. Memory and addiction: shared neural circuitry and molecular mechanisms. Neuron. 44, 161-179 (2004).
- Kelley, A. E., Baldo, B. A., Pratt, W. E. A proposed hypothalamic-thalamic-striatal axis for the integration of energy balance, arousal and food reward. J. Comp. Neurol. 493, 72-85 (2005).
- Kelley, A. E., Baldo, B. A., Pratt, W. E., Will, M. J. Corticostriatal-hypothalamic circuitry and food motivation: integration of energy, action and reward. Physiol. Behav. 86, 773-795 (2005).
- Berendse, H. W., Galis-de-Graaf, Y., Groenewegen, H. J. Topographical organization and relationship with ventral striatal compartments of prefrontal corticostriatal projections in the rat. J. Comp. Neurol. 316, 314-347 (1992).
- Brog, J. S., Salyapongse, A., Deutch, A. Y., Zahm, D. S. The patterns of afferent innervation of the core and shell in the "accumbens" part of rat ventral striatum: immunohistochemical detection of retrogradely transported fluoro-gold. J. Comp. Neurol. 338, 255-278 (1993).
- McDonald, A. J. Organization of amygdaloid projections to the prefrontal cortex and associated stritum in the rat. Neurosci. 44, 1-14 (1991).
- McGeorge, A. J., Faull, R. L. The organization of the projection from the cerebral cortex to the striatum in the rat. Neurosci. 29, 503-537 (1989).
- Sesack, S. R., Deutch, A. Y., Roth, R. H., Bunney, B. S. Topographical organization of the efferent projections of the medial prefrontal cortex in the rat: an anterograde tract-tracing study with Phaseolus vulgaris leucoagglutinin. J. Comp. Neurol. 290, 213-242 (1989).
- Wright, C. I., Beijer, A. V., Groenewegen, H. J. Basal amygdaloid complex afferents to the rat nucleus accumbens are compartmentally organized. J. Neurosci. 16, 1877-1893 (1996).
- Wright, C. I., Groenewegen, H. J. Patterns of convergence and segregation in the medial nucleus accumbens of the rat: relationships of prefrontal cortical, midline thalamic and basal amygdaloid afferents. J. Comp. Neurol. 361, 383-403 (1995).
- Geary, N., Smith, G. P. Pimozide decreases the positive reinforcing effect of sham fed sucrose in the rat. Pharmacol. Biochem. Behav. 22, 787-790 (1985).
- Muscat, R., Willner, P. Effects of selective dopamine receptor antagonists on sucrose consumption and preference. Psychopharmacol. 99, 98-102 (1989).
- Schneider, L. H., Gibbs, J., Smith, G. P. D-2 selective receptor antagonists suppress sucrose sham feeding in the rat. Brain Res. Bull. 17, 605-611 (1986).
- Baker, R. W., Osman, J., Bodnar, R. J. Differential actions of dopamine receptor antagonism in rats upon food intake elicited by mercaptoacetate or exposure to a palatable high-fat diet. Pharmacol. Biochem. Behav. 69, 201-208 (2001).
- Rao, R. E., Wojnicki, F. H., Coupland, J., Ghosh, S., Corwin, R. L. Baclofen, raclopride and naltrexone differentially reduce solid fat emulsion intake under limited access conditions. Pharmacol. Biochem. Behav. 89, 581-590 (2008).
- Weatherford, S. C., Smith, G. P., Melville, L. D. D-1 and D-2 receptor antagonists decrease corn oil sham feeding in rats. Physiol. Behav. 44, 569-572 (1988).
- Azzara, A. V., Bodnar, R. J., Delamater, A. R., Sclafani, A. D1 but not D2 dopamine receptor antagonism blocks the acquisition of a flavor preference conditioned by intragastric carbohydrate infusions. Pharmacol. Biochem. Behav. 68, 709-720 (2001).
- Baker, R. M., Shah, M. J., Sclafani, A., Bodnar, R. J. Dopamine D1 and D2 antagonists reduce the acquisition and expression of flavor-preferences conditioned by fructose in rats. Pharmacol. Biochem. Behav. 75, 55-65 (2003).
- Dela Cruz, J. A., Coke, T., Icaza-Cukali, D., Khalifa, N., Bodnar, R. J. Roles of NMDA and dopamine D1 and D2 receptors in the acquisition and expression of flavor preferences conditioned by oral glucose in rats. Neurobiol. Learn. Mem. 114, 223-230 (2014).
- Dela Cruz, J. A., et al. Roles of dopamine D1 and D2 receptors in the acquisition and expression of fat-conditioned flavor preferences in rats. Neurobiol. Learn. Mem. 97, 332-337 (2012).
- Yu, W. Z., Silva, R. M., Sclafani, A., Delamater, A. R., Bodnar, R. J. Pharmacology of flavor preference conditioning in sham-feeding rats: effects of dopamine receptor antagonists. Pharmacol. Biochem. Behav. 65, 635-647 (2000).
- Yu, W. Z., Silva, R. M., Sclafani, A., Delamater, A. R., Bodnar, R. J. Role of D(1) and D(2) dopamine receptors in the acquisition and expression of flavor-preference conditioning in sham-feeding rats. Pharmacol. Biochem. Behav. 67 (1), 537-544 (2000).
- Touzani, K., Bodnar, R. J., Sclafani, A. Activation of dopamine D1-like receptors in nucleus accumbens is critical for the acquisition, but not the expression, of nutrient-conditioned flavor preferences in rats. Eur. J. Neurosci. 27, 1525-1533 (2008).
- Touzani, K., Bodnar, R. J., Sclafani, A. Dopamine D1-like receptor antagonism in amygdala impairs the acquisition of glucose-conditioned flavor preference in rats. Eur. J. Neurosci. 30, 289-298 (2009).
- Touzani, K., Bodnar, R. J., Sclafani, A. Acquisition of glucose-conditioned flavor preference requires the activation of dopamine D1-like receptors within the medial prefrontal cortex in rats. Neurobiol. Learn. Mem. 94, 214-219 (2010).
- Malkusz, D. C., et al. Dopamine signaling in the medial prefrontal cortex and amygdala is required for the acquisition of fructose-conditioned flavor preferences in rats. Behav. Brain Res. 233, 500-507 (2012).
- Bernal, S. Y., et al. Role of dopamine D1 and D2 receptors in the nucleus accumbens shell on the acquisition and expression of fructose-conditioned flavor-flavor preferences in rats. Behav. Brain Res. 190, 59-66 (2008).
- Bernal, S. Y., et al. Role of amygdala dopamine D1 and D2 receptors in the acquisition and expression of fructose-conditioned flavor preferences in rats. Behav. Brain Res. 205, 183-190 (2009).
- Dragunow, M., Faull, R. The use of c-fos as a metabolic marker in neuronal pathway tracing. J. Neurosci. Methods. 29, 261-265 (1989).
- VanElzakker, M., Fevurly, R. D., Breindel, T., Spencer, R. L. Environmental novelty is associated with a selective increase in Fos expression in the output elements of the hippocampal formation and the perirhinal cortex. Learn. Mem. 15, 899-908 (2008).
- Norgren, R., Hajnal, A., Mungarndee, S. S. Gustatory reward and the nucleus accumbens. Physiol. Behav. 89, 531-535 (2006).
- Park, T. H., Carr, K. D. Neuroanatomical patterns of fos-like immunoreactivity induced by a palatable meal and meal-paired environment in saline- and naltrexone-treated rats. Brain Res. 805, 169-180 (1998).
- Zhao, X. L., Yan, J. Q., Chen, K., Yang, X. J., Li, J. R., Zhang, Y. Glutaminergic neurons expressing c-Fos in the brainstem and amygdala participate in signal transmission and integration of sweet taste. Nan.Fang Yi.Ke.Da.Xue.Xue.Bao. 31, 1138-1142 (2011).
- Mungarndee, S. S., Lundy, R. F., Norgren, R. Expression of Fos during sham sucrose intake in rats with central gustatory lesions. Am. J. Physiol. Regul. Integr. Comp. Physiol. 295, R751-R763 (2008).
- Otsubo, H., Kondoh, T., Shibata, M., Torii, K., Ueta, Y. Induction of Fos expression in the rat forebrain after intragastric administration of monosodium L-glutamate, glucose and NaCl. Neurosci. 196, 97-103 (2011).
- Yamamoto, T., Sako, N., Sakai, N., Iwafune, A. Gustatory and visceral inputs to the amygdala of the rat: conditioned taste aversion and induction of c-fos-like immunoreactivity. Neurosci. Lett. 226, 127-130 (1997).
- Mitra, A., Lenglos, C., Martin, J., Mbende, N., Gagne, A., Timofeeva, E. Sucrose modifies c-fos mRNA expression in the brain of rats maintained on feeding schedules. Neurosci. 192, 459-474 (2011).
- Pecoraro, N., Dallman, M. F. c-Fos after incentive shifts: expectancy, incredulity, and recovery. Behav. Neurosci. 119, 366-387 (2005).
- Hamlin, A. S., Blatchford, K. E., McNally, G. P. Renewal of an extinguished instrumental response: Neural correlates and the role of D1 dopamine receptors. Neurosci. 143, 25-38 (2006).
- Kerfoot, E. C., Agarwal, I., Lee, H. J., Holland, P. C. Control of appetitive and aversive taste-reactivity responses by an auditory conditioned stimulus in a devaluation task: A FOS and behavioral analysis. Learn. Mem. 14, 581-589 (2007).
- Zhang, M., Kelley, A. E. Enhanced intake of high-fat food following striatal mu-opioid stimulation: microinjection mapping and fos expression. Neurosci. 99, 267-277 (2000).
- Teegarden, S. L., Scott, A. N., Bale, T. L. Early life exposure to a high fat diet promotes long-term changes in dietary preferences and central reward signaling. Neurosci. 162, 924-932 (2009).
- Del Rio, D., et al. Involvement of the dorsomedial prefrontal cortex in high-fat food conditioning in adolescent mice. Behav. Brain Res. 283, 227-232 (2015).
- Knapska, E., Radwanska, K., Werka, T., Kaczmarek, L. Functional internal complexity of amygdala: focus on gene activity mapping after behavioral training and drugs of abuse. Physiol. Rev. 87, 1113-1173 (2007).
- Dela Cruz, J. A. D., et al. c-Fos induction in mesotelencephalic dopamine pathway projection targets and dorsal striatum following oral intake of sugars and fats in rats. Brain Res. Bull. 111, 9-19 (2015).
- Paxinos, G., Watson, C. The rat brain in stereotaxic coordinates. , Elsevier. (2006).
- Ranaldi, R., et al. The effects of VTA NMDA receptor antagonism on reward-related learning and associated c-fos expression in forebrain. Behav. Brain Res. 216, 424-432 (2011).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
