Das hier beschriebene Protokoll stellt eine einfache und reproduzierbare Methode dar, die Umkehrphasen-Hochleistungsflüssigkeitschromatographie (RP-HPLC) verwendet, um den Purinstoffwechsel an chronischen lymphatischen Leukämie (CLL)-Zellen zu messen, die unter verschiedenen Bedingungen kultiviert wurden.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
HPLC-basierten Assay extrazelluläre Nucleotid / Nukleosid Metabolismus in menschlichen chronischer lymphatischer Leukämie-Zellen zu überwachen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Dieses Verfahren beschreibt eine empfindliche, spezifische und zuverlässige und reproduzierbare Umkehrphasen-Hochleistungs-Flüssigkeitschromatographie (RP-HPLC) -Test entwickelt und von gereinigtem chronischer lymphatischer Leukämie (CLL) Zellen unter verschiedenen Kulturbedingungen produziert für die Quantifizierung von extrazellulärem Purin Nukleotiden und Nukleosiden validiert . Die chromatographische Trennung von Adenosin-5'-monophosphat (AMP), Adenosin (ADO) und Inosin (INO) wird bei RT auf einem Siliciumdioxid-Basis, Umkehrphasen-Säule durchgeführt, die für die polare Verbindung Retention verwendet wird. Das Verfahren umfasst einen binären mobile Phase, die mit einer Fließgeschwindigkeit von 1,00 ml / min von 7 mM Ammoniumacetat und Acetonitril besteht. Die Eluate werden überwacht, um einen Photodiodenarray-UV-Detektor unter Verwendung von bei 260 nm eingestellt. Eine Standard-Kalibrierungskurve erzeugt, um die Gleichung für die analytische Quantifizierung jedes Purinverbindung zu berechnen. System Steuerung, Datenerfassung und -analyse werden dann durchgeführt. Die Anwendung dieses Protokolls, AMP, INO und ADO eluieren bei 7, 11 und 11,9 min, und die Gesamtlaufzeit für jede Probe beträgt 20 min. Dieses Protokoll kann in verschiedene Zelltypen und Zelllinien (sowohl Suspensions- und adhärente) angewendet werden, als Kulturmedien Matrix. Die Vorteile sind eine einfache und schnelle Probenvorbereitung und das Erfordernis einer geringen Menge an Überstand für die Analyse. Weiterhin ermöglicht die Verwendung eines serumfreien Medium, das Protein-Fällungsschritt mit Acetonitril Skipping, die Auswirkungen auf die Endkonzentration von Purinverbindungen. Eine der Einschränkungen des Verfahrens ist die Forderung der Säule Ausgleich vor jeder einzelnen Probe Lauf laufen, die Gesamtlaufzeit des Experiments mehr machen und Hochdurchsatzscreening-Anwendungen zu verhindern.
Einleitung
Adenosine (ADO) ist ein Purin-Nukleosid mit einem Adenin-Molekül an einem Ribose Molekülteil durch eine glycosidische Bindung. Wenn sie vorhanden sind in der extrazellulären Umgebung, schützt Zellen vor übermäßigen Beschädigung durch die Wirkung des Immunsystems. Diese Rolle wurde mit verschiedenen Krankheitsmodellen hervorgehoben, wie Colitis 1, Diabetes 2, Asthma 3, Sepsis 4 und ischämische Verletzung 5. Eine der Hauptfunktionen ADO ist die Hemmung von Immunreaktionen in der Tumor - Mikroumgebung, einen Beitrag zur Tumor Immunevasion 6. Aus diesem Grund sind die beteiligten Mechanismen in ADO Bildung und Signalisierung von erheblicher therapeutischem Interesse 7.
ADO-Spiegel im Gewebe Mikroumgebung sind relativ gering unter normalen physiologischen Bedingungen und mit Sicherheit unterhalb der Nachweisgrenze von Immunzellen. Jedoch während Hypoxie, Ischämie, Entzündung, Infektion, StoffwechselStress und Tumortransformation sie schnell zu erhöhen 8. Die erhöhten extrazellulären ADO Ebenen in Reaktion auf gewebe Störsignale haben eine Doppelfunktion: Gewebeverletzung in einer autokrinen und parakrinen Weise zu berichten und Gewebereaktionen zu erzeugen, die im Allgemeinen als zytoprotektive betrachtet werden können.
Die extrazelluläre ADO kann durch eine Vielzahl von Mechanismen gebildet werden, die die Freisetzung umfassen von intrazellulären Kompartimenten vermittelt durch Nukleosid - Transporter 9 oder Anhäufung wegen gestörten Abbau von Adenosindeaminase betrieben. Der Hauptweg zu einer erhöhten extrazellulären ADO-Niveaus führt beinhaltet die Wirkung einer Kaskade von ectonucleotidases, welche Membran Ectoenzyme assoziiert ADO durch phosphohydrolysis von Nukleotiden veröffentlicht von toten oder sterbenden Zellen zu erzeugen. Dieser Weg verläuft durch die sequentielle Wirkung von CD39 (ectonucleoside Triphosphat diphosphohydrolase-1), die 5'-triphosphat extrazellulärem Adenosin umwandelt (ATP) oder Adenosin - 5'-diphosphat (ADP) zu Adenosin - 5'-Monophosphat (AMP) und CD73 (5'-nucleotidase), die AMP wandelt 10 bis ADO.
Die extrazelluläre ADO entlockt seiner physiologischen Reaktionen von vier Trans ADO Rezeptoren binden, nämlich A1, A2A, A2B und A3. Jeder Rezeptor hat unterschiedliche Affinitäten für ADO und spezifische Gewebeverteilung. Alle Rezeptoren besitzen sieben Transmembrandomänen und sind G-Protein-gekoppelten intrazellulären GTP-bindende Proteine (G-Proteine), die veranlassen können (Gs-Protein) oder inhibieren (Gi-Protein) Adenylat-Cyclase-Aktivität und anschließend die Produktion von intrazellulärem cAMP. Daher ändert in cytoplasmatischen cAMP Niveaus Einfluss auf die intrazelluläre Protein - Kinase - Aktivität während der physiologischen Reaktionen 11. Unter physiologischen Bedingungen ist extrazelluläre ADO unter 1 & mgr; M, die wahllos A1, A2A und A3-Rezeptoren aktivieren kann. Jedoch erfordert die Aktivierung von A2B-Subtyp wesentlich höherKonzentrationen des Nukleosids, wie die unter pathophysiologischen Bedingungen erzeugt. Alternativ kann extrazellulär ADO zu Inosin (INO) durch Adenosin-Deaminase (ADA) und CD26 abgebaut werden, ein ADA komplexierende Protein lokalisierende ADA auf der Zelloberfläche. Eine andere Möglichkeit ist , dass ADO von der Zelle durch die äquilibrierenden Nukleosid - Transporter (ENT) und phosphoryliert zu AMP durch ADO - Kinase Protein 12,13 internalisiert wird.
Das Ziel dieses Protokolls ist eine analytische Methode der Umkehrphasen-Hochleistungs-Flüssigkeits-Chromatographie (RP-HPLC) zu beschreiben, in einem einzigen Durchlauf des Substrats AMP und die Produkte ADO und INO, zu quantifizieren, wie durch menschliche Lymphozyten erzeugt. Unsere Erfahrung war zunächst erhaltenen Zellen von chronischer lymphatischer Leukämie (CLL) mit, die durch die Expansion eines reifen Population von CD19 + / CD5 + B - Lymphozyten konstitutiv gekennzeichnet exprimieren CD39 14,15. Wir zeigten etwa 30%Patienten von CLL exprimieren das CD73 Ektoenzym und dass dieser Phänotyp korreliert mit einer schlechten Prognose 16. Diese Subpopulation von leukämischen Zellen co-exprimierenden CD39 und CD73 können aktiv extrazelluläre ADO von ADP und / oder AMP produzieren. Vorinkubation von CD73 + CLL - Zellen mit α, β-Methylen-ADP (APCP), ein bekannter Inhibitor der CD73 enzymatischer Aktivität, vollständig blockiert extrazellulärem ADO Synthese bestätigt , dass CD73 die Flaschenhals - Enzym dieser Kaskade 16 darstellt.
CLL-Zellen exprimieren auch ADA und die ADA Komplexbildung Protein CD26, die für die Umwandlung von ADO in INO verantwortlich sind. Durch die Verwendung von spezifischen ADA-Inhibitoren, wie erythro-9- (2-Hydroxy-3-nonyl) I wiadenine (EHNA) hydrochlorid und Desoxycoformycin (dCF) ist es möglich, extrazelluläre ADO Degradation INO zu blockieren. Weiterhin Vorbehandlung mit einem ADA-Inhibitor in Kombination mit Dipyridamol, dass Nukleosid-Transporter-Blöcke erhöht ADO Akkumulation in ZellenStände.
Wir haben dann dieses Protokoll zu Zellen von anderen Abstammungslinien, einschließlich T-Lymphozyten und myeloischen Zellen, bestätigt CD73-abhängige ADO Produktion abgeleitet erweitert. Diese Ergebnisse legen nahe , dass diese HPLC - Protokoll sehr vielseitig ist und dass es an verschiedene Zelllinien angewendet werden kann und auf unterschiedliche Kulturbedingungen (Abbildung 1).
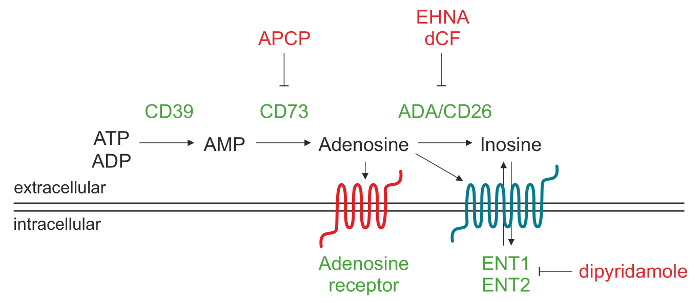
Abbildung 1. Schematische Darstellung der enzymatischen Maschinerie verantwortlich für extrazelluläre ADO - Produktion. Adenosin - 5'-Triphosphat (ATP) und / oder Adenosin - 5'-diphosphat (ADP) durch CD39 an Adenosin - 5'-Monophosphat (AMP) abgebaut werden, die wiederum von CD73 in das Nukleosid Adenosin (ADO) umgewandelt. Sobald ADO in den extrazellulären Raum erzeugt wird, kann es die Zelle durch die Nukleosid-Transporter (ENT) erneut einzugeben, in Inosin umgewandelt werden (INO) oderbinden an verschiedene Typen von P1 ADO - Rezeptoren. Bitte klicken Sie hier , um eine größere Version dieser Figur zu sehen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
CLL Blutproben werden gemäß den Richtlinien des Instituts und Deklaration von Helsinki erhalten.
1. Isolierung von leukämischen Lymphozyten aus Blutproben von CLL-Patienten
- Sammeln Blutprobe in Heparin - Natrium (grün-top) Rohr 17.
- Machen 1: 3-Verdünnung von Vollblut mit RT 1x phosphatgepufferter Kochsalzlösung (PBS).
- Reinige peripheren mononukleären Blutzellen (PBMC) aus Blutproben durch Dichtegradientenzentrifugation.
- Underlay 5 ml Dichtezentrifugation Medien (beispielsweise Ficoll) in einem 15 ml Zentrifugenröhrchen übertragen und vorsichtig 10 ml verdünntes Blut. zentrifugieren sofort bei 1.500 xg für 20 min bei RT.
- Aspirat Teil des Überstands mit einer Pipette Glas Pasteur mit einer Vakuumpumpe verbunden, und die PBMC Ring an der Interphase zwischen Dichtezentrifugation Medien sammeln und verdünntem Plasma mit einer 5 ml Pipette. Transfer in ein 50 ml Zentrifugenröhrchen und wasche mit PBS (50 ml Endvolumen). Zentrifuge bei 500 × g für 5 min bei 4 ° C.
- Saugen Sie den Überstand mit einer Pasteurpipette Glas, das Pellet in 50 ml PBS und die Zellen zählen eine Zählkammer.
- Stain PBMCs mit anti-CD19 und -CD5 Antikörper für Durchfluss - Zytometrie folgenden ein Standardprotokoll für die Immunfärbung und prüfen , ob PBMC Subpopulation Zusammensetzung 18.
Hinweis: CLL - Lymphozyten sind CD19 + / CD5 +. - Überprüfen Sie die% der CD19 + / CD5 + Zellen ein Durchflusszytometer 18 verwendet wird . Reinige B - Lymphozyten von Patienten mit einer ≥95% der CD19 + / CD5 + folgenden leukämischen Zellen die detaillierten Anweisungen in Schritt 2 für die negative Isolierung von B - Zellen 19.
2. Reinigung der leukämischen B-Zellen durch Negative Isolation
- Resuspendieren 10 7 PBMCs / ml in PBS , das 0,1% Rinderserumalbumin (BSA) , 2 mM EDTA, pH 7,4 (Isolierungspuffer).
- In 101; g monoklonalem Maus - anti-CD3, -CD14 und -CD16 primäre Antikörper für 10 7 Zellen und für 30 min bei 4 ° C inkubieren.
- Waschen der Zellen mit dem Isolationspuffer und Zentrifugieren bei 500 xg für 5 min bei 4 ° C.
- Resuspendieren der Zellen in dem Isolationspuffer bei 10 7 PBMCs / ml.
- Bevor mit den Zellen inkubiert, resuspendieren Schaf-Anti-Maus-IgG-Magnetperlen in der Phiole. Transfer von 100 & mgr; l Kügelchen pro 10 7 Zellen in ein Röhrchen.
- 1 ml Isolationspuffer und legen Sie den Schlauch in einem Magnethalter für 1 min. Entsorgen Sie den Überstand mit einer 5 ml Pipette.
- Entfernen Sie den Schlauch aus dem Magneten und Resuspendieren der gewaschenen Kügelchen in 100 ul Isolationspuffer.
- Inkubiere 10 7 Zellen mit 100 ul magnetische Perlen für 30 min bei 4 ° C unter leichtem Kippen und Rotation.
- Das Röhrchen wird in dem Magnethalter für 2 min und den Überstand mit den CD19 + / CD5 + ungebundenen Zellenin ein frisches Röhrchen mit einer 5 ml Pipette.
- Am Ende des Isolierungsprotokolls, Beize 100 ul Zellen mit anti-CD19 und -CD5 Antikörper für die Durchflusszytometrie und inkubiere 30 min bei 4 ° C. Waschen Sie die Zellen mit 3 ml PBS 1% BSA, verwerfen den Überschuss an Überstand und überprüfen Reinheit B - Zellen wieder mittels Durchflusszytometrie 19.
Hinweis: Führen Sie eine zusätzliche negative Isolationsschritt, wenn B-Zell-Reinheit von weniger als 95% beträgt.
3. Herstellung von Standard- und Inhibitoren Stammlösungen
- Um AMP vorbereiten abzuwiegen 0,00345 g AMP und lösen es in 5 ml Serum-freiem Medium, das eine 2 mM Standardlösung von AMP zu haben.
- aus 0,00265 g ADO und lösen es in 5 ml Serum-freiem Medium herzustellen ADO, wiegen eine 2 mM Standardlösung von ADO zu haben.
- aus 0,00268 g INO und lösen es in 5 ml Serum-freiem Medium, um INO herzustellen, wiege eine 2 mM Standardlösung von INO zu haben.
- Bereiten Sie eine 400 & mgr; M Lösung von AMP, ADO undINO durch in 4 ml serumfreies Medium (5 ml Endvolumen) 1 ml der 2 mM Vorratslösung vermischt werden.
- Machen 1: 4 Verdünnung jeder 400 & mgr; M-Standardlösung eine 100 uM-Konzentration durch Pipettieren 500 & mgr; l der 400 & mgr; M-Lösung in 1500 & mgr; l serumfreiem Medium (2 ml Endvolumen) zu erhalten.
- Bereiten Reihenverdünnungen von jeder Verbindung in serumfreiem Medium die folgenden Konzentrationen zu erhalten: 100 uM - 50 uM - 25 uM - 10 uM - 5 uM - 2,5 uM - 1 uM - 0,5 uM - 0,25 uM.
Hinweis: Zum Beispiel Pipette 1 ml der 100 uM Lösung in 1 ml serumfreiem Medium (1: 2 Verdünnung) 50 uM-Konzentration zu erhalten, und mit den verbleibenden Verdünnungen fortzufahren.
- Bereiten Sie eine 10 mM Stammlösung von APCP in PBS gelöst; aliquoten und Lager bei - 30 ° C.
- Bereiten Sie 10 mM Stammlösungen von EHNA Hydrochlorid, DCF- und Dipyridamol gelöst in Dimethylsulfoxid (DMSO); aliquoten und Lager bei -30° C.
4. Programm der HPLC-Methode
- Vorbereiten eines 7 mM Ammoniumacetat-Puffer mit 0,770 g Ammoniumacetat in 2 l doppelt deionisiertes Wasser (Puffer A) gelöst wird. Einstellen auf pH 3,0 mit Salzsäure.
- Bereiten Sie eine Glasflasche mindestens 2 l ultrareinem Acetonitril für die HPLC (Puffer B) enthält, und schließen Sie die Schutzsäule und die Spalte in die HPLC.
Anmerkung: Die Spalten und Puffer sind bei RT während der Benutzung. - Melden Sie sich bei der HPLC-Software und wählen Sie die Schaltfläche "Durchsuchen Projekt" -Taste. Gehen Sie auf die "Datei" -Menü und wählen Sie "neue Methode" und dann "Instrument-Methode".
- Programm der Ausgleichssäulenverfahren gemäß Tabelle 1. Stellen Sie eine Durchflussrate von 1,00 ml / min und programmieren Sie den UV - Detektor bei 260 nm zu lesen. Speichern Sie die Gerätemethode und wählen Sie wieder "neue Methode" aus dem Menü "Datei" und dann auf "Methode set". Wählen Sie das Instrument Methode zuvor gespeicherteund speichern Sie die aktuelle Methode mit dem gleichen Namen gesetzt.
| Zeit | Durchflussrate (ml / min) | %EIN | % B |
| 1,00 | 100 | 0 | |
| 1,24 | 1,00 | 100 | 0 |
| 6.22 | 1,00 | 2 | 98 |
| 18,65 | 1,00 | 2 | 98 |
Tabelle 1: Äquilibrierung Säulenverfahren Schematische Darstellung der Lösungsmitteländerungen für die Äquilibrierung der Säule.. Puffer A: 7 mM Ammoniumacetat, pH 3,0. Puffer B: Acetonitril.
- Wiederholen Sie den Schritt 4.3 die Laufprobenmethode in Tabelle zu programmieren 2. Stellen Sie eine Durchflussrate von 1,00 mL / min und Programm der UV-Detektor bei 260 nm zu lesen. Speichern Sie die Gerätemethode und wiederholen Sie das gleiche Verfahren wie in Schritt 4.4 beschrieben, um das Verfahren Gruppe speichern ..
| Zeit | Durchflussrate (ml / min) | %EIN | % B |
| 1,00 | 0 | 100 | |
| 3,74 | 1,00 | 0 | 100 |
| 13,71 | 1,00 | 15 | 85 |
| 17.00 | 1,00 | 100 | 0 |
| 20.00 | 1,00 | 100 | 0 |
Tabelle 2: Ausführen von Beispielmethode. Schematische Darstellung der Lösungsmittel Änderungen für HPLC-Messung von Purin-Verbindungen. Polierener A: 7 mM Ammoniumacetat, pH 3,0. Puffer B: Acetonitril.
- Wählen Sie die "run Proben" -Taste, wählen Sie "neue Sample-Set-Methode" aus dem Menü "Datei".
- Wählen Sie die "leere" Option und geben Sie die Anzahl der Fläschchen (im Autosampler), den Namen des Samples, das Injektionsvolumen (50 ul). Wählen Sie die Methode Set gespeichert, bevor sie für die "Methode Set" Spalte und geben Sie die gesamte Laufzeit (min).
Hinweis: Geben Sie die Equilibrierung Säulenverfahren (Tabelle 1) in der "Methode Satz" Spalte vor jeder Probelauf und geben Sie die gesamte Laufzeit (min).
5. Generation eines Standard-Kalibrierungskurve für jede Verbindung
- Einzuspritzen 50 ul Zuschnitts (spezifische serumfreies Medium, das nicht Adenosindeaminase enthält) und jeder Standardprobe nach den Verfahren , die in Tabelle 1 und Tabelle 2.
- Verwenden Sie die AusgleichssäuleVerfahren (Tabelle 1) vor jeder Probe fahren , und den Gradienten Bedingungen wie in Tabelle 2 beschrieben eingestellt , um eine angemessene Peakauftrennung erhalten. Siehe Tabelle 3 für gemeldete Retentionszeiten von AMP, ADO und INO unter diesen HPLC - Bedingungen.
| Retentionszeit | λ max | |
| AMPERE | 8.00 min | 260 |
| INO | 11.00 min | 260 |
| ADO | 11.90 min | 260 |
Tabelle 3: Retentionszeiten von Purin - Verbindungen Typische Retentionszeiten beobachtet für AMP, ADO und INO.. Der UV-Detektor ist so programmiert, bei 260 nm zu lesen.
- Den Spitzenbereich von AMP, ADO und INO Bestimmen unterschiedlichen Konzentrationen an den "Prozess" in der HPLC-Software und neben der "Integration" Option auswählen. Alternativ wählen Sie manuell die Anfangs- und Endpunkte der einzelnen Peaks.
- Zeichnen Sie die Peakflächen gegen die Soll-Konzentration von jeder Standard den Neun-Punkte-Kalibrierungskurve zu erhalten (100, 50, 25, 10, 5, 2,5, 1, 0,5, 0,25 uM).
- Berechnen Sie die Gleichung einer geraden Linie für AMP, ADO und INO: y = mx + b,
wobei x die Konzentration uM und y entsprechen der Peakfläche.
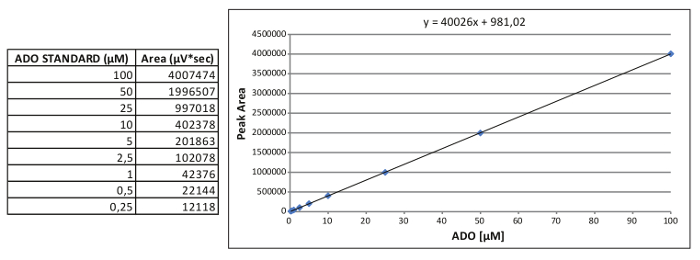
Abbildung 2. Erzeugung eines internen Standardkurve. Repräsentative Kalibrierung Standardkurve für ADO und die relative Gleichung erhalten. Bitte klicken siee eine größere Version dieser Figur zu sehen.
6. Die Vorbehandlung mit der Inhibitoren und Inkubation mit dem Substrat (AMP)
- Um zu testen , AMP Verbrauch, ADO und INO Generation ohne Hemmung der CD73, ADA und Nukleosid - Transporter, Resuspensierbereich 2 x 10 6 CD19 + / CD5 + CLL - Zellen (isoliert und gereinigt in den Schritten 1 und 2) in 250 ul Serum-freiem Medium und Platte Zellen in einer 48-Well-Platte (oder in einem 1,5 ml Mikrozentrifugenröhrchen).
- Um CD73 enzymatische Aktivität blockieren, verdünnt 1: 1000 die Stammlösung von APCP (10 mM) in dem Kulturmedium eine 10 & mgr; M Endkonzentration zu erhalten. Resuspendieren 2 x 10 & sup6 ; CLL - Zellen in 250 ul Kulturmedium , das APCP und vorzubehandeln 60 min bei 37 ° C in einem Zellkulturbrutschrank.
- Um die Umwandlung von ADO in INO blockieren, verdünnen 1: 1000 die Stammlösung von EHNA-Hydrochlorid und / oder DCF-Format (beide 10 mM) in Serum-freiem Medium, das eine 10 & mgr; M Endkonzentration zu haben.Resuspendieren 2 x 10 & sup6 ; CLL - Zellen in 250 ul Kulturmedium , das EHNA und / oder dCF. Inkubieren für 30 min bei 37 ° C in der Zellkultur-Inkubator.
- Um die Aufnahme von ADO durch die Nukleosid-Transporter blockieren, verdünnen 1: 1000 die Stammlösung von Dipyridamol (10 mM) in Serum-freiem Medium, das eine 10 & mgr; M Endkonzentration zu haben. Für 30 min bei 37 ° C in der Zellkultur - Inkubator resuspendieren 2 x 10 & sup6 ; CLL - Zellen in 250 ul Kulturmedium , enthaltend Dipyridamol und inkubieren.
- Bereiten Sie Einzellösungen von APCP, EHNA, DCF- und Dipyridamol, verdünnt 1: 1000 in 400 & mgr; M AMP.
- Nach Eintragen von 250 & mgr; l von 400 & mgr; M AMP oder AMP und Inhibitoren zu einer Endkonzentration von 200 uM AMP zu erhalten. Fügen Sie eine Bedingung in Abwesenheit des Substrats als Blindprobe verwendet werden.
- Inkubiere 30-60 Minuten bei 37 ° C.
Hinweis: Die optimale Konzentration von AMP und der Inkubationszeit experimentell bestimmt wurden. - bei ter am Ende der Inkubationszeit, sammeln 500 ul der Überstände in kalten Mikrozentrifugenröhrchen (auf Eis) und sofort bei 17.000 × g bei 4 ° C für 5 Minuten zentrifugiert werden.
- Die Überstände in neue 1,5 ml Mikrozentrifugenröhrchen und sofort bei -80 ° C oder gehen Probenvorbereitung für die HPLC-Läufen.
7. Die Proben Vorbereitung für die HPLC
- Filtern Sie die Überstände in neue 1,5 ml Mikrozentrifugenröhrchen mit 0,2 & mgr; m-Spritzenfilter. Verwenden Sie 1 ml Spritzen für die Filterung.
- Wenn das HPLC-System mit einem automatischen Probennehmer zur Verfügung gestellt wird, bereiten die Glasfläschchen für HPLC und verwenden Sie die 0,1 ml Mikroeinsätze für kleine Probenvolumina.
- Transfer mindestens 100 ul Probe in das Glasfläschchen mit einer Mikropipette oder einer Glaspasteurpipette. Seien Sie vorsichtig, ohne Blasen zu übertragen und das Fläschchen mit dem Schraubdeckel verschließen.
- Proben zur Analyse durch RP-HPLC nun bereit.
8. HPLC Measuderungen von Purinen
- Wählen Sie die "run Proben" -Taste; "Neue Probe-Set-Methode" aus dem Menü "Datei" wählen.
- Wählen Sie die "leere" Option und zeigen: die Anzahl der Fläschchen (im Autosampler), den Namen des Samples, das Injektionsvolumen (50 ul).
- Wählen Sie das Gleichgewicht Säulenverfahren und die Laufprobe Verfahren beschrieben in Tabelle 1 und Tabelle 2 sind für alle leer und Probe läuft , die folgen.
Hinweis: Stellen Sie die Ausgleichssäulenmethode (Tabelle 1) vor jeder Probe laufen. - Injizieren Sie 50 ul Rohling (Serum-freiem Medium) und jeder Probe.
- Bestimmen Sie die Konzentration von Purinen in jeder Probe, zu quantifizieren , die AMP, ADO und INO durch die Peakflächen erhalten , bei der Retentionszeiten in Tabelle 3 beschrieben.
- Wählen Sie den "Prozess" und neben der "Integration" aus. Alternativ wählen Sie die manuell ein Startnd Endpunkte jedes einzelne Spitze der Flächenmessung zu erhalten. Dies wird durch Verfolgen einer Linie zwischen den Start- und Endpunkten des Peaks durchgeführt.
- Bestimmung der Konzentration uM Anwendung der Gleichung für die Standardkurve erhalten: y = mx + b, wobei x den uM - Konzentration und y ist die Fläche des Peaks von der unbekannten Probe gemessen.
Hinweis: Ein Beispiel für die Kalibrierung ADO Standardkurve wird in Abbildung 2 angegeben, wobei gilt: x = (y Bereich - 981,02) / 40026
- Bedenkt man, dass 2 x 10 6 Zellen in 0,500 ml Medium resuspendiert wurden, berechnen die umol AMP, ADO und INO verbraucht und / oder um 10 6 CLL - Zellen durch Anwendung des folgenden Verhältnis hergestellt:
mymol: 1000 ml = x mymol: 0.250 ml
Anmerkung: Die & mgr; mol in 1000 ml (Anzahl umol in 1 L) von auf der uM Konzentration äquivalent sind und X die umol nutid oder Nukleosid von 10 6 Zellen hergestellt.- Schließlich wandeln die mymol in nmol verbraucht und / oder um 10 6 CLL - Zellen produziert:
nmol = umol x 1000
- Schließlich wandeln die mymol in nmol verbraucht und / oder um 10 6 CLL - Zellen produziert:
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Um den Prozentsatz (%) der leukämischen Zellen in frisch gereinigtem PBMCs aus einem repräsentativen CLL Patienten zu bewerten, werden die Zellen markiert mit Anti-CD19 und anti-CD5 Antikörper. Der linke Teil von Abbildung 3 stellt einen cytofluorimetric Punktdiagramm mit einem selektiven Gate an lebenden Zellen. Abbildung 3 zeigt ein Beispiel von PBMC von einem CLL Patienten vor (Mitte) und nach (rechts) B - Zell - Reinigung.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Das hier beschriebene Protokoll ermöglicht es, die Aktivität des CD39 / CD73 adenosinergen Maschinen in Zellkulturmedien aus gereinigtem menschlichen leukämischen Zellen zu bewerten. Durch diese HPLC-Methode können wir folgen und messen quantitativ die enzymatische Erzeugung von ADO (CD73 abhängig) und dessen anschließende Abbau zu INO (CD26 / ADA abhängig). Die Verwendung von Enzyminhibitoren ermöglicht, das Protokoll zu steuern, und interne Kontrollen zu haben. Die Vorteile und die Neuheiten des Protokolls sind, dass ...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben nichts offenzulegen.
Danksagungen
Diese Arbeit wird von Associazione Italiana Ricerca Cancro (IG # 12754) unterstützt.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Menschliches Blut | |||
| Milli-Q Wasser | Millipore | doppelt deionisiertes Wasser | |
| Ficoll-Paque Plus | GE-Healthcare | 17-1440-03 | |
| gereinigtes Anti-CD3, -CD14, -CD16 | hauseigene | Maus monoklonal | |
| PE-markiert Anti-CD19 | Miltenyi Biotec | 120-014-229 | |
| FITC-markiert Anti-CD5 | Miltenyi Biotec | 130-096-574 | |
| Dynabeads Schaf Anti-Maus | IgG Invitrogen | 11031 | |
| Phosphatgepufferte Kochsalzlösung (PBS) | Amresco | E404-200TABS | Tabletten |
| Rinderserumalbumin (BSA) | ID bio | 1000-70 | |
| Standard-Isolationspuffer | PBS 0,1% BSA 2 mM EDTA, pH 7,4 | ||
| AIM V Serum freies Medium | GIBCO | 12055-091 | flüssig (Forschungsqualität) |
| Adenosin 5'-diphosphat (ADP) | Sigma-Aldrich | A2754 | |
| Adenosin 5'-monosphat (AMP) | Sigma-Aldrich | A1752 | |
| Adenosin (ADO) | Sigma-Aldrich | A9251 | |
| Inosin (INO) | Sigma-Aldrich | I4125 | |
| & alpha;,β-Methylen-ADP (APCP) | Sigma-Aldrich | M8386 | CD73-Inhibitor |
| EHNA-Hydrochlorid | Sigma-Aldrich | E114 | Adenosin-Desaminase-Inhibitor |
| Deoxycoformycin (dCF) | Tocris | 2033 | Adenosin-Desaminase-Inhibitor |
| Dimethylsulfoxid (DMSO) | Sigma-Aldrich | D2650 | |
| Dipyridamol | Sigma-Aldrich | D9766 | Nukleosidtransporter-Inhibitor |
| Acetonitril (CHROMASOLV Plus) | Sigma-Aldrich | 34998 | in HPLC-Qualität |
| Sigma-Aldrich | 9688 | 7 mM, pH 3,0 | |
| Salzsäure | Sigma-Aldrich | 30721-1L | min. 37 |
| %Name | Company | Katalog Anzahl | Kommentare |
| Equipment | |||
| Bü rker Zellzähler | VWR | 631-0920 | Hämozytometer |
| DynaMag-15 Magnet | Invitrogen | 12301D | Dynal magnetischer Bead-Separator |
| Mikrozentrifuge Safe-Lock-Röhrchen | Eppendorf | 030-120-0086 | 1,5 ml |
| PET-Zentrifugenröhrchen | Corning | 430053/430304 | 15 – 50 ml |
| Minisart RC4 Spritzenfilter | Sartorius Stedim Biotech | 17821 | Membran 0,2 &Mikro; m |
| Kurzgewindefläschchen | VWR | 548-0029 | 1,5 ml/Glas |
| Mikroeinsätze | VWR | 548-0006 | 0,1 ml/Glas |
| Schraubverschlüsse | VWR | 548-0085 | 9 mm/PP blau |
| Atlantis dC18 Säulenwasser | 186001344 | 5 & Mikro; m, 4,6 mm x 150 mm | |
| Atlantis dC18 Vorsäule | Wasser | 186001323 | 5 µ m, 4,6 mm x 20 mm |
| Waters Alliance 2965 Trennmodul | Waters | HPLC Trennmodul | |
| Waters 2998 Photodiode Array (PDA) Detektor | Wasser | UV-Detektor | |
| Waters Empower2 Software | Waters |
Referenzen
- Naganuma, M., Wiznerowicz, E. B., Lappas, C. M., Linden, J., Worthington, M. T., Ernst, P. B. Cutting edge: Critical role for A2A adenosine receptors in the T cell-mediated regulation of colitis. J Immunology. 177 (5), 2765-2769 (2006).
- Nemeth, Z. H., et al. Adenosine receptor activation ameliorates type 1 diabetes. FASEB J. 21 (10), 2379-2388 (2007).
- Fan, M., Jamal Mustafa, S. Role of adenosine in airway inflammation in an allergic mouse model of asthma. Int Immunopharmacol. 6 (1), 36-45 (2006).
- Csoka, B., et al. A2B adenosine receptors protect against sepsis-induced mortality by dampening excessive inflammation. J Immunol. 185 (1), 542-550 (2010).
- Peart, J. N., Headrick, J. P. Adenosinergic cardioprotection: multiple receptors, multiple pathways. Pharmacol Ther. 114 (2), 208-221 (2007).
- Ohta, A., et al. A2A adenosine receptor protects tumors from antitumor T cells. Proc Natl Acad Sci U S A. 103 (35), 13132-13137 (2006).
- Hasko, G., Linden, J., Cronstein, B., Pacher, P. Adenosine receptors: therapeutic aspects for inflammatory and immune diseases. Nat Rev Drug Discov. 7 (9), 759-770 (2008).
- Cronstein, B. N. Adenosine, an endogenous anti-inflammatory agent. J Appl Physiol (1985). 76 (1), 5-13 (1994).
- Molina-Arcas, M., Casado, F. J., Pastor-Anglada, M. Nucleoside transporter proteins. Curr Vasc Pharmacol. 7 (4), 426-434 (2009).
- Deaglio, S., et al. Adenosine generation catalyzed by CD39 and CD73 expressed on regulatory T cells mediates immune suppression. J Exp Med. 204 (6), 1257-1265 (2007).
- Linden, J. Regulation of leukocyte function by adenosine receptors. Adv Pharmacol. 61, 95-114 (2011).
- Antonioli, L., Blandizzi, C., Pacher, P., Hasko, G. Immunity, inflammation and cancer: a leading role for adenosine. Nat Rev Cancer. 13 (12), 842-857 (2013).
- Antonioli, L., Csoka, B., Fornai, M., et al. Adenosine and inflammation: what's new on the horizon. Drug Discov Today. 19 (8), 1051-1068 (1051).
- Chiorazzi, N., Rai, K. R., Ferrarini, M. Chronic lymphocytic leukemia. N Engl J Med. 352 (8), 804-815 (2005).
- Abousamra, N. K., Salah El-Din, M., Hamza Elzahaf, E., Esmael, M. E. Ectonucleoside triphosphate diphosphohydrolase-1 (E-NTPDase1/CD39) as a new prognostic marker in chronic lymphocytic leukemia. Leuk Lymphoma. 56 (1), 113-119 (2015).
- Serra, S., et al. CD73-generated extracellular adenosine in chronic lymphocytic leukemia creates local conditions counteracting drug-induced cell death. Blood. 118 (23), 6141-6152 (2011).
- Chen, L. S., Keating, M. J., Gandhi, V. Blood collection methods affect cellular protein integrity: implications for clinical trial biomarkers and ZAP-70 inn CLL. Blood. 124 (7), 1192-1195 (2014).
- Kalina, T., et al. EuroFlow standardization of flow cytometer instrument settings and immunophenotyping protocols. Leukemia. 26 (9), 1986-2010 (2012).
- Deaglio, S., et al. CD38 and ZAP-70 are functionally linked and mark CLL cells with high migratory potential. Blood. 110 (12), 4012-4021 (2007).
- Sachsenmeier, K. F., et al. Development of a novel ectonucleotidase assay suitable for high-throughput screening. J Biomol Screen. 17 (7), 993-998 (2012).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
