Details werden dargelegt, wie die QTL-Kartierung mit einer genomalen Genomsequenz auf genetischer Weise zur Identifizierung eines Arzneimittelresistenzgens in Toxoplasma gondii verwendet werden kann und wie dies mit dem CRISPR / Cas9-System verifiziert werden kann, das ein genomisches Ziel effizient bearbeitet, in diesem Fall die Arzneimittelresistenzgen
Methodenartikel
QTL Mapping und CRISPR / Cas9 Bearbeitung zur Identifizierung eines Drug Resistance Gen in
In diesem Artikel
Zusammenfassung
Zusammenfassung
Wissenschaftliches Wissen ist mit den verfügbaren Technologien und Methoden verbunden. In diesem Artikel werden zwei Methoden vorgestellt, die die Identifizierung und Verifizierung eines Arzneimittelresistenzgens im Apikomplexan-Parasiten Toxoplasma gondii , der Methode der quantitativen Trait Locus (QTL) -Kartierung unter Verwendung einer GGG-basierten genetischen Karte und der Methode ermöglichen Von Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR) / Cas9-basierte Gen-Bearbeitung. Der Ansatz der QTL-Abbildung erlaubt es, zu testen, ob eine Korrelation zwischen einer genomischen Region (en) und einem Phänotyp besteht. Es sind zwei Datensätze erforderlich, um einen QTL-Scan durchzuführen, eine genetische Karte, die auf der Nachkommenschaft eines rekombinanten Kreuzes basiert und ein quantifizierbarer Phänotyp, der in jedem der Nachkommen dieses Kreuzes beurteilt wird. Diese Datensätze werden dann so formatiert, dass sie mit einer R / qtl-Software kompatibel sind, die einen QTL-Scan erzeugt, um signifikante Loci zu identifizieren, die mit dem Phänotyp korreliert sind. Obwohl dies die Suche erheblich einschränken kannIndow von möglichen Kandidaten, QTLs Bereiche, die eine Reihe von Genen enthalten, aus denen das kausale Gen identifiziert werden muss. Nachdem WGS der Nachkommenschaft war entscheidend, um die kausale Arzneimittelresistenz Mutation auf der Gen-Ebene zu identifizieren. Einmal identifiziert, kann die Kandidaten-Mutation durch genetische Manipulation von medikamentenempfindlichen Parasiten verifiziert werden. Die einfachste und effizienteste Methode zur genetischen Veränderung von T. gondii ist das CRISPR / Cas9 System. Dieses System umfasste nur 2 Komponenten, die beide auf einem einzigen Plasmid codiert sind, eine einzelne Leitungs-RNA (gRNA), die eine 20 bp-Sequenz enthält, die komplementär zum genomischen Ziel ist, und die Cas9-Endonuklease, die einen doppelsträngigen DNA-Bruch (DSB) am Ziel erzeugt, Reparatur, die das Einfügen oder Löschen von Sequenzen um die Bruchstelle ermöglicht. Dieser Artikel enthält detaillierte Protokolle zur Verwendung von CRISPR / Cas9-basierten Genom-Editing-Tools, um das für die Sinefungin-Resistenz verantwortliche Gen zu überprüfen und transgene Parasiten zu konstruieren.
Einleitung
Host-Bereich bestimmt das Ausmaß der Prävalenz einer Parasiten. Einige Parasiten haben sehr spezifische Host-Anforderungen, die den Bereich begrenzen, von dem sie gefunden werden, andere sind Generalisten. Ein solcher Generalist ist Toxoplasma gondii ( T. gondii) . Dieser Parasit wird weltweit gefunden, da er alle Säugetiere und viele Vögel infizieren kann. Menschen sind auch anfällig und es wird geschätzt, dass etwa 1/3 der Weltbevölkerung infiziert wurde. Glücklicherweise kontrolliert eine robuste Immunantwort normalerweise das Wachstum des Parasiten, aber in Situationen, in denen das Immunsystem kompromittiert wird, kann der Parasit unkontrolliert wachsen und Krankheiten verursachen, oftmals Enzephalie. Auch dieser Parasit kann angeborene Krankheiten verursachen, wenn zuvor nicht infizierte Frauen während der Schwangerschaft infiziert sind, da ihnen das Immungedächtnis fehlt, um die Ausbreitung des Parasiten schnell zu begrenzen. Darüber hinaus gibt es eine Belastung der okulären Toxoplasmose, die zu Sehverlust führen kann 1 . Für diese reasoNs T. gondii hat sich zu einem Schwerpunkt der Studie, und aufgrund der vielen molekularen Methoden für seine Studie entwickelt, ein Modell für Apikomplexan Parasiten. Zwei Methoden, die hier diskutiert werden, sind Quantitative Trait Locus (QTL) Mapping und Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR) / Cas9 Gen Editing. QTL-Mapping und CRISPR / Cas9-Bearbeitung sind jeweils Vorwärts- und Reverse-Gen-Ansätze, die in früheren Studien zur Identifizierung und / oder Charakterisierung von T. gondii- Virulenzgenen verwendet wurden. Hier werden diese Methoden kombiniert, um die Funktion eines Sinefunginresistenz- (SNF r ) -Gens, TgME49_290860, und seiner Orthologen (als SNR1 bezeichnet ) 2 zu identifizieren und zu bestätigen.
Obwohl T. gondii eine Vielzahl von Zwischenwirten infizieren kann, muss es die intestinalen Epithelzellen eines Felids durchlaufen und infizieren, um den Lebenszyklus abzuschließen. Katzen sind die endgültigen Gastgeber des Parasiten, wo die sEs werden exakte Stadien produziert und eine genetische Rekombination via Meiose auftritt. Um eine QTL-Studie durchzuführen, muss man ein genetisches Kreuz erzeugen, und im Falle von Toxoplasma bedeutet dies, dass zwei verschiedene Parasitenstämme passieren, die sich in einem phänotypischen Merkmal unterscheiden, die Elternflecken durch eine Katze, um rekombinante Nachkommen zu produzieren 3 . Bevor sie den Katzen zugeführt werden, werden die Elternstämme resistent gegen getrennte Medikamente, um eine effizientere Identifizierung von Rekombinanten durch doppelte Arzneimittelselektion der Nachkommenschaft zu ermöglichen. 4 Drei T-Shirts wurden zu diesem Zweck in T. gondii verwendet; Fluorodeoxyribose (FUDR), für die Uracil-Phosphoribosyltransferase ( UPRT ) das Resistenzgen 5 ist , Adenosin-Arabinosid (ARA), für das Adenosin-Kinase ( AK ) das Resistenzgen 6 ist , und Sinusfungin (SNF), für das das Resistenzgen unbekannt war 7 . Mehrere genetische Kreuze warenErstellt für T. gondii , aber nur die 24 Nachkommen des ME49-FUDR r X VAND-SNF r Kreuz wurden mit der ganzen Genomsequenzierung (WGS) 8 genotypisiert. Dies eröffnete die Möglichkeit, das SNF-Resistenzgen unter Verwendung dieses Kreuzes zu markieren und zu identifizieren, da das VAND-Elternteil durch chemische Mutagenese des medikamentenempfindlichen VAND (VAND-SNFs) -Stammes Sinefungin resistent wurde und das VAND-Referenzgenom unter Verwendung des VAND- SNF s- Stamm, so dass die Identifizierung aller Polymorphismen zwischen der Nachkommenschaft WGS und dem VAND-SNF-Referenz-Genom, einschließlich der ererbten parenteralen VAND-SNF r Mutation, die einige der Nachkommen-Sinusfungin resistent gemacht.
Um den kausalen Einzelnukleotidpolymorphismus (SNP) in der SNF r- Nachkommenschaft zu identifizieren, können mehrere rechnerbasierte Open-Source-Ressourcen verwendet werden, um die Daten zu analysieren. Um die genetische Karte für die ME49-FUDR r X VAND-SNF r überqueren die REDHORSE Software-Suite 9 wurde entwickelt, die WGS-Ausrichtungen der Eltern und Nachkommen verwendet, um genau die genomischen Positionen von genetischen Crossovers zu erkennen. Diese Abbildungsinformation kann dann mit den phänotypischen Daten (SNF r in der Nachkommenschaft) kombiniert werden, um einen mit dem 'qtl'-Paket 10 kompatiblen Datensatz in der R-statistischen Programmiersoftware zu formatieren, wo ein QTL-Scan ausgeführt werden kann, um signifikante Loci mit dem zu identifizieren Phänotyp Um das kausale SNP, das sich innerhalb des QTL-Locus befindet, zu identifizieren, kann das WGS-Liest der Nachkommenschaft individuell an das sinefunginempfindliche VAND-Genom mit dem Bowtie 2-Ausrichtungsprogramm 11 angepasst werden, aus dem SNPs mit dem VarScan mpileup2snp-Variantenaufrufprogramm 12 aufgerufen werden können. Mit diesen SNPs kann der QTL-Locus dann auf Polymorphismen gescannt werden, die im SNF r vorhanden sind, aber nichtIn der SNF-Nachkommenschaft. Mit dem in der kodierenden Region eines Gens identifizierten kausalen SNP kann die genetische Veränderung des Kandidaten-SNF- r- Gens in einem SNF- s- Stamm durchgeführt werden, um die Arzneimittelresistenzfunktion zu verifizieren.
Das CRISPR / Cas9-Genom-Editing-System wurde vor kurzem in Toxoplasma 13 etabliert , das wichtige Instrumente für die Erforschung der komplexen Biologie dieses Parasiten, insbesondere für genetische Studien in nicht-laborgerechten Stämmen, hinzugefügt hat. Aufgrund der hochaktiven nicht homologen Endverknüpfung (NHEJ) -Aktivität in WT- Toxoplasma- Zellen ist eine gezielte Genom-Modifikation schwer zu erreichen, da exogen eingeführte DNA zufällig in das Genom mit extrem hoher Frequenz 14 integriert wird . Um die Erfolgsrate der ortsspezifischen Modifikation zu erhöhen, wurden verschiedene Ansätze verwendet, um die Effizienz der homologen Rekombination zu erhöhen und / oder zu verringernE NHEJ Tätigkeit 15 , 16 . Eines dieser Ansätze ist das CRISPR / Cas9-System. Im Vergleich zu anderen Methoden ist das CRISPR / Cas9-System effizient bei der Einführung ortsspezifischer Modifikationen und ist einfach zu entwerfen 13 , 17 , 18 . Darüber hinaus kann es in jedem Toxoplasma- Stamm ohne zusätzliche Modifikation an den Parasiten 13 , 19 verwendet werden .
Das CRISPR / Cas9-System entstand aus dem adaptiven Immunsystem von Streptococcus pyogenes , das es verwendet, um die Invasion von mobilen genetischen Elementen wie Phagen 20 , 21 , 22 zu verteidigen. Dieses System nutzt das RNA-geführte DNA-Endonuklease-Enzym Cas9, um den doppelsträngigen DNA-Break (DSB) in das Target einzuführen, das anschließend repa istEntweder durch das fehleranfällige NHEJ, um Zielgene durch kurze Indelmutationen zu inaktivieren, oder durch Homologie gerichtete Rekombination, um den Zielort genau wie entworfen zu modifizieren 23 , 24 . Die Zielspezifität wird durch ein kleines RNA-Molekül namens Single Guide RNA (gRNA) bestimmt, das eine individuell gestaltete 20 nt Sequenz enthält, die 100% Homologie zur Ziel-DNA 22 hat . Das gRNA-Molekül enthält auch Signaturen, die von Cas9 erkannt werden, die die Nuklease zur Zielstelle führen, die ein spezielles Protospacer-benachbartes Motiv enthält (PAM, Sequenz ist 'NGG') 25 , 26 . Daher arbeiten das gRNA-Molekül und die PAM-Sequenz zusammen, um die Cas9-Schnittstelle im Genom zu bestimmen. Man kann leicht die gRNA-Sequenz ändern, um verschiedene Standorte für die Spaltung zu zielen.
Als das CRISPR / Cas9-System erstmals in Toxop entwickelt wurdeLasma, ein einzelnes Plasmid, das die Cas9-Nuklease exprimiert, und das gRNA-Molekül wurde verwendet, um DSB an der Zielstelle 13 , 17 einzuführen. Es wurde gezeigt, dass das CRISPR / Cas9-System die Effizienz der ortsspezifischen Genommodifikation nicht nur durch homologe Rekombination, sondern auch durch nicht homologe Integration exogener DNA 13 drastisch erhöht. Es tut dies in Wildtyp-Stämme, die NHEJ-Aktivität enthalten. Daher kann dieses System im Wesentlichen jedem Toxoplasma- Stamm für effiziente Genom-Bearbeitung verwendet werden. In einem typischen Experiment werden das zielspezifische CRISPR-Plasmid und das zur Modifizierung des Targets verwendete DNA-Fragment in Parasiten co-transfiziert. Wenn das zur Bestimmung des Targets verwendete DNA-Fragment homologe Sequenzen zum Zielort enthält, kann eine homologe Rekombination zur Reparatur des durch CRISPR / Cas9 eingeführten DSB verwendet werden, um eine präzise Modifikation des Targets zu ermöglichen. Auf der anderen Seite, wenn die intInduzierte DNA-Fragment enthält keine homologe Sequenz, sie kann noch in die CRISPR / Cas9-Targeting-Site integriert werden. Letztere wird häufig verwendet, um Gene durch Insertion von selektierbaren Markern zu stören oder Mutanten an Loci zu ergänzen, die eine negative Selektion erlauben 13 . Hier dient der SNR1- Locus als Beispiel, um zu zeigen, wie CRISPR / Cas9 für die Genunterbrechung und die Erzeugung von transgenen Parasiten verwendet werden kann.
Protokoll
1. Asset SNF r in der Nachkommenschaft des ME49-FUDR r x VAND-SNF r Kreuz
ANMERKUNG: T. gondii ist ein obligatischer intrazellulärer Parasit und die Tachyzoitenstufe wächst leicht in der Gewebekultur.
- Um den T. gondii- Parasiten zu wachsen, pflegen sie in konfluenter Mensch-Vorhaut-Fibroblasten (HFF) -Monolayer-Kultur, die auf T25-Flaschen mit Dulbecco's Modified Eagle's Medium (DMEM) -Medium, ergänzt mit 10% fötalem Rinderserum (FBS) (D10-Medium) bei 37 °, C und 5% CO 2 .
HINWEIS: Siehe Protokoll 1.1 Hinweis in Ergänzungsdatei 1 . - Um einzelne Nachkommen-Klone für die Sinefungin-Resistenz zu testen, wachsen jeden Klon zu einer hohen Parasiten-Dichte in einem T25-HFF-Kulturkolben für 2-3 d, bis die Mehrheit der Parasiten anfängt, die Wirtszellen zu lysieren.
- Die Monoschicht mit einem Zellschaber kratzen und die Parasitenlösung durch eine 10 ml Spritze / 22 G stumpfe Nadel 2-3x t passierenO lyse die Wirtszellen, die Parasiten freisetzen. Die Lösung kann für mehrere Nadeldurchgänge in die Spritze zurückgezogen werden.
- Filtern Sie die Parasitlösung in eine neue konische Röhre durch eine Membran mit der Porengröße von 3 μm, um HFF-Zellen und Zelltrümmer zu entfernen.
- Zähle die Parasiten auf einem Hämocytometer und bestimmt die Anzahl der Parasiten pro ml.
- Mit einer Pipette werden 2,5 x 10 5 Parasiten in einen neuen T25-HFF-Kulturkolben gegeben, der D10-Medien mit 0,3 μM Arbeitskonzentration des Sinus-Fungin-Arzneimittels enthält.
- Wachsen Sie die Parasiten bei 37 ° C und 5% CO 2 für 7-10 d.
- Erziele die Nachkommenschaft für den Wachstums-Phänotyp in Sinefungin-Medikament. Beobachten Sie die Monoschicht unter einem invertierten Phasenkontrastmikroskop und übertreffen 0 für kein Wachstum (Sinusfungin empfindlich), Punkt 1 für Wachstum und Lyse von Monoschicht (Sinusfungin resistent).
HINWEIS: Siehe Protokoll 1.8 Hinweis in Ergänzungsdatei 1 .
2. R.Un a QTL Scan des SNF r Phänotyp in R / qtl
HINWEIS: Siehe Protokoll 2 Hinweis in Ergänzungsdatei 1 .
- Installiere die Programmiersprache R auf einem lokalen Computer. Siehe 27 .
- Führen Sie R aus und installieren Sie das Paket 'qtl'. Entweder dies aus der R GUI-Schnittstellenoption 'Packages-> Installationspaket (e)' ausführen oder den folgenden Befehl aus der R-Befehlszeile ausführen (das erste ">" -Symbol in jedem Beispiel bezeichnet den Anfang eines Befehls, nicht zu sein Kopiert):
> Install.packages ("qtl")
HINWEIS: Sobald R und das Paket 'qtl' installiert sind, gibt es zwei Möglichkeiten, R / qtl aus der R-Befehlszeile auszuführen oder ein grafisches Benutzeroberflächenprogramm (GUI) namens J / qtl 28 : siehe 29 zum Herunterladen von J / Qtl Dieses Protokoll liefert die R / qtl-Befehlszeilen-Syntax mit gelegentlicher Bezugnahme auf die äquivalente Funktion in J / qtl. - Laden Sie das Paket 'qtl':
> Bibliothek (qtl)
HINWEIS: Siehe Protokoll 2.3 Hinweis in Ergänzungsdatei 1 für Dataset-Format und Downloads. - Laden Sie die Dataset-Datei in R / qtl.
- Für das "csv" -Format (siehe: Datendatei 1):
> SNFR <- read.cross (format = "csv", file = "$ PATH / Rqtl-SNFR.csv", genotypes = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - Oder für "gary" -Format (siehe: Datendatei 2):
> SNFR <- read.cross (format = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "genotyp. Txt ", phefile =" phenos.txt ", pnamesfile =" phenonames.txt ", convertXdata = FALSE)
Wo $ PATH ist der Verzeichnispfad zu den Datei (en) mit dem qtl-Dataset. Zum Beispiel: / Users / HotDiggityDog / QTLfiles
HINWEIS: Die Dateien können auch geladen werdenIn die J / qtl mit den vorherigen Befehlen unter Verwendung der Option 'Kommentar einfügen oder Befehl' eintragen oder die Daten mit der GUI 'File-> Load Cross Data' Option laden.
- Für das "csv" -Format (siehe: Datendatei 1):
- Berechnen Sie die Wahrscheinlichkeiten für die Karte:
> SNFR <- calc.genoprob (SNFR, step = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", stepwidth = "fixed") - Führen Sie einen einzigen Scan mit einer binären Verteilung des Sinefungin Resistenz Phänotyp über alle Chromosomen:
> SNFR.scan <- Scanon (Kreuz = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIb "VIII", "IX", "X", "XI", "XII"), pheno.col = c (1), Modell = "binär", Methode = "em")
HINWEIS: Wenn Sie den VIR-Phänotyp ausführen, verwenden Sie die Option "model =" normal ". - Führen Sie 1000 Permutationen aus, um Signifikanzschwellen zu berechnen und dann attrIbute die Permutationen auf die Variable SNFR.scan:
> SNFR.scan.permutations <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" "VIII", "VIII", "IX", "X", "XI", "XII"), pheno.col = c (1), Modell = "binär", Methode = "em", n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
HINWEIS: Die Schritte 2.5 bis 2.7 können in J / qtl mit der Option 'Analysis-> Main Scan-> Run One QTL Genome Scan' ausgeführt werden. - Plot der Scan-Ergebnisse:
> Plot (SNFR.scan, gap = 0, bandcol = "grau")
HINWEIS: Die in J / qtl erzeugte Handlung ist interaktiv.- Plot die Scan-Ergebnisse für nur Chromosom IX, das Chromosom mit dem höchsten Peak:
> Plot (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "grau", show.marker.names = TRUE) - Zeigen Sie alle Markerpositionen und LOD-Scores aus dem einzelnen Scan:
> SNFR.scan - Zeigen Sie die Schwellenwerte des Permutationstests an:
> Summary (SNFR.scan.permutations) - Zeigen Sie nur die Marker an, die größer sind als der Alpha = .05 Schwellenwert (aus der vorherigen Ausgabe):
> SNFR.scan [SNFR.scan $ lod> 2.68,] - Zeigen Sie die Marker mit dem höchsten LOD-Score auf jedem Chromosom:
> Summary (SNFR.scan) - Zeigen Sie diese Marker, die den maximalen LOD-Score-Wert haben (genommen von der vorherigen Ausgabe):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
HINWEIS: Siehe Protokoll 2.13 Hinweis in Ergänzungsdatei 1 .
3. Identifizieren Sie die Causal SNF r Mutation mit WGS Liest aus der Nachkommenschaft
HINWEIS: Siehe Protokoll 3 Hinweis in Ergänzungsdatei 1 .
- Ausrichten von WGS-Lesungen einzelner Nachkommen mit dem sinefunginempfindlichen VAND(VAND-SNF) elterliches Genom.
HINWEIS: Laden Sie das VAND-Referenzgenom (SNFs) von NCBI Assembly AEYJ00000000.2 und das WGS liest (.sra-Dateien) für die 24 Nachkommen von NCBI SRA PRJNA258152. Laden Sie auch die folgenden Programme herunter: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 und MUMmer 31 .- Erstellen Sie einen Bowtie 2-kompatiblen Index aus der VAND-Referenz-Genom-FASTA-Datei mit dem bowtie2-Build-Programm, hier benennen Sie den Index "VAND":
> Bowtie2-bauen GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Konvertieren Sie die SRA-formatierten WGS-Dateien in FASTQ-Dateien mithilfe von fastq-dump mit der Option --split-Dateien für gepaarte Lesevorgänge (die SRR1555372.sra-Datei für die Nachkommenschaft P1_14VB wird als Beispiel verwendet):
> Fastq-dump --split-Dateien SRR1555372.sra
HINWEIS: Führen Sie diese und alle folgenden Befehle in Protokoll 3.1 für alle 24 ausNachkommen. - Richten Sie die WGS-Lesung auf das Referenzgenom mit bowtie2 mit Ausgabe auf eine SAM-Datei (.sam) und die Option --end-to-end aus:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam --end-to-End - Konvertieren Sie die .sam-Datei in eine BAM-Datei (.bam):
> Samtools aussicht -bS SRR155372.sam> SRR155372.bam - Sortieren Sie die .bam-Datei:
> Samtools sortieren SRR155372.bam SRR155372.sort - Index der sortierten .bam-Datei:
> Samtools index SRR155372.sort.bam
- Erstellen Sie einen Bowtie 2-kompatiblen Index aus der VAND-Referenz-Genom-FASTA-Datei mit dem bowtie2-Build-Programm, hier benennen Sie den Index "VAND":
- Rufen Sie SNPs für die Nachkommenschaft mit VarScan an
HINWEIS: Siehe Protokoll 3.2 Hinweis in Ergänzungsdatei 1 .- Konvertieren Sie alle indexierten BAM-Dateien (.sort.bam) in eine pileup-formatierte Datei mit samtools mpileup mit der VAND-Genom-Referenzdatei, alle Nachkommen-.sort.bam-Dateien und Ausgabe in eine Datei mit dem Namen AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. Sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556398.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Rufen Sie alle SNPs mit dem Programm VarScan mpileup2snp mit der AllProgeny-mpileup.txt-Datei, der minimalen Leseabdeckung von 5, der minimalen Variantenfrequenz über den Lesevorgängen von .8, einem p-Wert von 0,01 und der Ausgabe auf die Dateinamen AllProgeny-SNPs auf. txt:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-coverage 5 --min-var-freq .8 --p-Wert .01> AllProgeny-SNPs.txt
HINWEIS: Die AllProgeny-SNPs.txt-Datei ist eine tabulatorgetrennte Textdatei, die in Protokoll 3.4 verwendet wirdDer kausale SNP.
- Konvertieren Sie alle indexierten BAM-Dateien (.sort.bam) in eine pileup-formatierte Datei mit samtools mpileup mit der VAND-Genom-Referenzdatei, alle Nachkommen-.sort.bam-Dateien und Ausgabe in eine Datei mit dem Namen AllProgeny-mpileup.txt:
- Finden Sie VAND-Genom-Koordinaten, die den Koordinaten des ME49-basierten QTL-Locus entsprechen
HINWEIS: Siehe Protokoll 3.3 Hinweis in Ergänzungsdatei 1 .- Verwenden Sie das MUMmer nucmer Programm, um das ME49 Genom (zum Download von ToxoDB.org 32 ) und die VAND Referenz Genom Datei (Ausgabe geht an die out.delta Datei) auszurichten:
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Verwenden Sie das MUMmer-Show-Coords-Programm, um die Koordinaten der beiden Genom-Alignments zu erhalten, und geben Sie eine Datei mit dem Namen ME49vsVAND-coords.txt aus:
> Show-coords out.delta> ME49vsVAND-coords.txt
HINWEIS: Die Datei ME49vsVAND-coords.txt kann verwendet werden, um die VAND-Contigs und Positionen zu finden, die dem QTL-Locus entsprechen. Marker MV359 bis MV366 auf ME49 Chromosom IX zwischen 3,187,537 bis 4,202,258 bp. Es gibt zwei VAND-Contigs, die die Korrespondenz überspannenAufgebender QTL-Locus; KN044604.1: 657.441-1 bp und KN042501.1: 430,910-41,870 bp (beide contigs richten sich umgekehrt zum ME49-Chromosom ab).
- Verwenden Sie das MUMmer nucmer Programm, um das ME49 Genom (zum Download von ToxoDB.org 32 ) und die VAND Referenz Genom Datei (Ausgabe geht an die out.delta Datei) auszurichten:
- Beurteilen Sie die Nachkommen-SNPs, die sich im QTL-Locus befinden, für SNPs, die nur in der SNF r- Nachkommenschaft vererbt wurden
HINWEIS: Siehe Protokoll 3.4 Hinweis in Ergänzungsdatei 1 .- Überprüfen Sie die Datendatei 3, um die kausale Mutation im QTL-Locus zu identifizieren. Scannen Sie die Daten für ein Muster, bei dem die SNF r- Progenie einen SNP und die SNFs nicht haben (machbar, weil die Nachkommen-SNPs im Vergleich zum VAND-SNF-Referenzgenom erhalten wurden). Dies sollte nur zu einer Position mit diesem Muster führen, Position 348130 auf VAND contig KN042501.1.
- Siehe Zeile 6604 in Datendatei 3 ( Abbildung 3 ).
HINWEIS: Siehe Protokoll 3.4.2 Hinweis in Ergänzungsdatei 1 .
4. Verifizierung von identifizierten Hits durch CRISPR / Cas9-Vermittelte Gen-Inaktivierung.
HINWEIS: Um das durch QTL-Mapping und WGS-SNP-Analyse identifizierte kausale SNP zu bestätigen, müssen die entsprechenden genetischen Veränderungen in einem WT-SNF-Hintergrund durchgeführt und der daraus resultierende Phänotyp untersucht werden. Im Falle der Sinefunginresistenz führt die verantwortliche Mutation zur Inaktivierung des SNR1- Gens durch frühzeitige Beendigung 2 . Daher kann eine Störung von SNR1 zur Bestätigung verwendet werden. Hier wird ein detailliertes Protokoll zur Verwendung von CRISPR / Cas9-induzierten Indel-Mutationen bereitgestellt , um SNR1 zu stören, um seine Beteiligung an der Sinefungin-Resistenz zu demonstrieren ( Abbildung 4 ).
- SNR1 spezifische CRISPR Plasmid Konstruktion
HINWEIS: Siehe Protokoll 4.1 Anmerkung in der Ergänzungsdatei 1 , um Plasmide und Karten zu erhalten.- Erhalten Sie die genomische Sequenz für das Zielgen ( SNR1 , TGME49_290860) von ToxoDB 32 .
- Verwenden Sie Online-Tools wie E-CRISP 33 , um zielspezifische gRNAs zu entwerfen. Fügen Sie die PAM-Sequenz (NGG) nicht in die gRNA ein.
HINWEIS: Siehe Protokoll 4.1.2 Hinweis in Ergänzungsdatei 1 . - Synthese von Primern zur Konstruktion des zielspezifischen CRISPR-Plasmids.
- Entsprechend dem Entwurf aus Schritt 4.1.2 werden zwei Primer synthetisiert, um die UPRT- Targeting-gRNA im ursprünglichen CRISPR-Plasmid zu der ausgewählten gRNA-Sequenz durch ortsgerichtete Mutagenese zu verändern.
HINWEIS: Die Sequenzen dieser beiden Primer sind wie folgt: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNTTTAGAGCTAGAAATAGC (N20 ist die zielspezifische gRNA-Sequenz) und gRNA-Rv: AACTTGACATCCCCATTTAC 2 .
- Entsprechend dem Entwurf aus Schritt 4.1.2 werden zwei Primer synthetisiert, um die UPRT- Targeting-gRNA im ursprünglichen CRISPR-Plasmid zu der ausgewählten gRNA-Sequenz durch ortsgerichtete Mutagenese zu verändern.
- Führen Sie die ortsgerichteten Mutagenese-Reaktionen durch.
- Unter Verwendung des UPRT- Targeting-CRISPR-Plasmids (pSAG1 :: CAS9-U6 :: sgUPRT) als Matrize und der beiden oben aufgeführten Primer führen ortsgerichtete Mutagenese-Reaktionen durchNach den Anweisungen des Herstellers.
HINWEIS: Die folgenden Zyklusbedingungen für die PCR: 98 ° C für 1 min, gefolgt von 25 Zyklen von 98 ° C für 10 s, 55 ° C für 30 s und 72 ° C für 5 min, gefolgt von einer endgültigen Verlängerung für 2 min Bei 72 ° C.
- Unter Verwendung des UPRT- Targeting-CRISPR-Plasmids (pSAG1 :: CAS9-U6 :: sgUPRT) als Matrize und der beiden oben aufgeführten Primer führen ortsgerichtete Mutagenese-Reaktionen durchNach den Anweisungen des Herstellers.
- Verwandeln Sie die Mutageneseprodukte, die die GOI-spezifischen CRISPR-Plasmide enthalten, zu E. coli- kompetenten Zellen durch chemische Umwandlung gemäß dem Protokoll des Lieferanten (siehe Tabellen der Materialien ). Wachsen Sie die Transformanten auf Lysogenybrühe (LB) -Platten, die Ampicillin (100 & mgr; g / ml) bei 37 ° C enthalten. Anschließend werden 2-4 Klone geerntet und einzeln in 5 ml LB-Medium gezüchtet, das mit 100 μg / ml Ampicillin für 12-16 h ergänzt wird.
- Extrahieren Sie Plasmide aus den Kulturen unter Verwendung eines DNA-Isolationskits und analysieren sie durch DNA-Gelelektrophorese, um die Größe der Plasmide zu überprüfen (erwartete Plasmidgröße beträgt 9674 bp, verwenden Sie das ursprüngliche CRISPR-Plasmid als cOntrol). Verwenden Sie den M13-Rev-Primer (5'-CAGGAAACAGCTATGACC), um die Plasmide zu sequenzieren, um die zielspezifische gRNA-Sequenz zu bestätigen.
- Sobald positive Klone identifiziert sind, speichern Sie beide Plasmid-DNA bei -20 ° C und entsprechende Bakterienkultur bei -80 ° C für zukünftige Verwendung.
HINWEIS: Das zur Transfektion zu verwendende CRISPR-Plasmid sollte in deionisiertem Wasser gelöst und die Konzentration durch Spektrophotometrie oder ein alternatives Verfahren bestimmt werden.
- Sobald positive Klone identifiziert sind, speichern Sie beide Plasmid-DNA bei -20 ° C und entsprechende Bakterienkultur bei -80 ° C für zukünftige Verwendung.
- Extrahieren Sie Plasmide aus den Kulturen unter Verwendung eines DNA-Isolationskits und analysieren sie durch DNA-Gelelektrophorese, um die Größe der Plasmide zu überprüfen (erwartete Plasmidgröße beträgt 9674 bp, verwenden Sie das ursprüngliche CRISPR-Plasmid als cOntrol). Verwenden Sie den M13-Rev-Primer (5'-CAGGAAACAGCTATGACC), um die Plasmide zu sequenzieren, um die zielspezifische gRNA-Sequenz zu bestätigen.
- Parasiten-Transfektion
HINWEIS: Allgemeine Methoden zur Kultivierung von T. gondii in HFF-Zellen in D10-Medium wurden zuvor beschrieben 34 .- Zwei bis drei Tage vor der Transfektion fügen Sie genügend Parasiten zu einem T25-Kolben hinzu, der eine konfluierende HFF-Zellmonoschicht (0,5-1 x 10 & sup6; für Typ-1-Stämme, 1-2 · 10 & sup6; für andere Stämme) enthält, um 70-80% HFF-Zelle zu erhalten Lyse innerhalb von 2-3 d.
- ExamiNe die Kultur unter einem invertierten Phasenkontrastmikroskop, wenn die HFF-Monoschicht 70-80% von den Parasiten lysiert wird. Entfernen Sie das Medium vorsichtig mit einer Pipette und waschen Sie die Zellen mit 5 ml Cytomixpuffer (120 mM KCl, 0,15 mM CaCl 2 , 10 mM K 2 HPO 4 / KH 2 PO 4 pH = 7,6, 25 mM HEPES, 2 ab MM EDTA, 5 mM MgCl & sub2 ;, pH = 7,6). Anschließend die Parasitlösung auf ein 15-ml-Kegelrohr übertragen.
HINWEIS: Siehe Protokoll 4.2.2 Hinweis in der Ergänzungsdatei 1 . - Pass die Parasitenlösung durch eine 10 ml Spritze / 22 G stumpfe Nadel 2-3x.
- Filtern Sie die Parasitlösung in eine neue konische Röhre durch eine Membran mit der Porengröße von 3 μm, um HFF-Zellen und Zelltrümmer zu entfernen.
- Pellet die gefilterten Parasiten durch Zentrifugation bei 400 xg für 10 min.
- Den Überstand abgießen und die pelletierten Parasiten mit 10 mL Cytomix-Puffer resuspendieren, ein 10 μl Aliquot auf det aufnehmenErmüdet die Parasitenkonzentration mit einem Hämocytometer und pellet den Rest durch Zentrifugation bei 400 x g für 10 min.
- Den Überstand entfernen und das Pellet im Cytomix-Puffer resuspendieren, um eine Dichte von 4 x 10 7 Parasiten / ml zu erhalten.
- In einer 4 mm Spaltküvette 250-300 μl Parasitenlösung (1-1,3 x 10 7 Parasiten) mit 7,5 μg CRISPR-Plasmid, 6 μl ATP (100 mM) und 6 μl Glutathion (GSH) (250 mM) mischen.
- Elektroparate der Parasiten 35 . Eine separate Elektroporation als Negativkontrolle einschließen , bei der ein CRISPR-Plasmid an anderer Stelle zielt, wie das UPRT- Targeting-CRIPSR-Plasmid.
HINWEIS: Die Einstellungen der Elektroporation hängen vom Gerät ab. Für den in den Werkstoffen aufgeführten Elektroporator verwenden Sie die 4 mm Spaltküvetten. Es wird folgendes Protokoll empfohlen: 1.700 V, 176 μs Pulslänge, 2 Impulse mit 100 ms Intervall.
- Bestimmen Sie die Häufigkeit von Sinefungin ResistaNce nach CRISPR-Targeting.
- Seed HFF-Zellen auf Deckgläschen, die in 24-Well-Platten 3-4 d vor der Elektroporation platziert wurden, so dass sie konfluent sind durch die Zeit, um die Transfektion in 4.2 durchzuführen.
- Die HFF-Zellen aus einem konfluenten T25-Kolben untersuchen und anschließend 12 ml D10-Medium zugeben und gut vermischen.
- Fügen Sie ein Deckglas zu jeder Vertiefung einer 24-Well-Platte und aliquot 500 μL HFF-Zell-Lösung in jede Vertiefung. Inkubieren Sie die Platte bei 37 ° C für 3 4 d, um die Zellen zu wachsen, bis sie konfluent sind.
HINWEIS: Zellen aus einem T25-Kolben reichen aus, um eine 24-Well-Platte zu säen. - Füge 50 μl elektroporierte Parasitlösung aus Schritt 4.2.9 in eine Vertiefung von 24-Well-Platte ein, die ein mit konfluenten HFF-Zellen ausgesätes Deckglas enthält. Übertragen Sie den Rest der elektroporierten Parasitenlösung in einen T25-Kolben, der mit konfluenten HFF-Zellen seediert ist.
- Beurteilen Sie die Effizienz der Transfektion.
- Die Zellen in der 24-Well-Platte für 24 h wachsen lassenUnd anschließend die Zellen (Wirtszellen und Parasiten) mit 500 μl 4% Formaldehyd fixieren, um die Expression von Cas9-GFP durch Immunfluoreszenzassay (IFA) zu überprüfen.
- Sonden Sie die Zellen mit einem Anti-GFP-Antikörper und einem Toxoplasma- spezifischen Antikörper (wie Anti-TgALD), um die Gesamtparasiten zu etikettieren. Siehe das Antikörper Produktblatt für die empfohlene Verdünnung (in der Regel 1: 1.000 ist ausreichend für IFAs). Wenn die Antikörper unkonjugiert sind, verwenden Sie zwei verschiedene sekundäre Antikörper, die mit fluoreszierenden Farbstoffen konjugiert sind, um die primären Antikörper zu markieren.
- Beobachten Sie die markierten Zellen auf einem Fluoreszenzmikroskop mit Filtern, die für die sekundären fluoreszierenden Farbstoffe geeignet sind. Erhalten Sie die Transfektionseffizienz, indem Sie die Anzahl der positiven Parasiten von GFP durch die Anzahl der gesamten Parasiten dividieren.
ANMERKUNG: Die beiden für IFA verwendeten Antikörper sollten aus zwei verschiedenen Wirtsarten stammen, beispielsweise unter Verwendung der Kombination von Maus-Anti-GFP und Kaninchen-Anti-TgALD.
- Bestimmen Sie die fAnforderung von Sinefungin-Resistenz bei transfizierten Parasiten.
- Für die transfizierten Parasiten, die in T25-Flaschen kultiviert wurden, wachsen sie für 2-3 d bis natürlicher Austritt. Dann sammeln Sie die Parasiten, stumpfe Nadel-Lyse-Wirtszellen, um intrazelluläre Parasiten freizusetzen, und reinigen sie durch Filtration durch Membranen mit einer Porengröße von 3 μm. Zähle die Parasiten mit einem Hämocytometer, um die Dichte zu schätzen.
- Fügen Sie gereinigte Parasiten in 6-Well-Platten ein, die mit konfluenten HFF-Zellen ausgesät werden: Für die erste Zeile (3 Vertiefungen) fügen Sie 200 Parasiten / Vertiefungen hinzu und wachsen sie in regulärem D10-Medium (2 ml / Vertiefung); Für die zweite Reihe, fügen Sie 5000 Parasiten / well und wachsen sie in D10 Medium mit 0,3 μM Sinusfungin.
- Setzen Sie die Platten in einen 5% CO 2 -Inkubator und wachsen die Parasiten bei 37 ° C 8-10 d ohne Störung, um Plaques zu bilden. Fixieren Sie die Proben mit 70% Ethanol (2 ml / Vertiefung) und färben Sie die Monoschicht mit 0,1% Kristallviolett (2 ml / Vertiefung). Waschen Sie die Brunnen mit Wasser zu visualisierenDie Plaques (klare Zonen), die durch Parasitenwachstum gebildet werden.
HINWEIS: Die Negativkontrolle sollte gleich nebeneinander verarbeitet werden.
- Berechnen Sie die Rate der CRISPR induzierten Sinusfunginresistenz.
- Erhalten Sie die durchschnittliche Anzahl (X) von Plaques aus Vertiefungen, die kein Medikament enthalten, und berechnen Sie die Lebensfähigkeit des Parasiten als X / 200. Erhalten Sie die durchschnittliche Anzahl (Y) von Plaques aus Vertiefungen, die Sinefungin enthalten, um die Rate der CRISPR-induzierten Sinusfunginresistenz zu berechnen, wie folgt:
Rate des CRISPR-induzierten Widerstandes = 200 × Y / (5000 × X × Transfektionseffizienz)
HINWEIS: Die Transfektionseffizienz ergibt sich aus 4.3.2.
- Erhalten Sie die durchschnittliche Anzahl (X) von Plaques aus Vertiefungen, die kein Medikament enthalten, und berechnen Sie die Lebensfähigkeit des Parasiten als X / 200. Erhalten Sie die durchschnittliche Anzahl (Y) von Plaques aus Vertiefungen, die Sinefungin enthalten, um die Rate der CRISPR-induzierten Sinusfunginresistenz zu berechnen, wie folgt:
- Seed HFF-Zellen auf Deckgläschen, die in 24-Well-Platten 3-4 d vor der Elektroporation platziert wurden, so dass sie konfluent sind durch die Zeit, um die Transfektion in 4.2 durchzuführen.
- Untersuche die durch CRISPR / Cas9 induzierten Indel-Mutationen
- Wachsen Sie die elektroporierten Parasiten aus Abschnitt 4.2.9 in einem T25-Kolben, der mit HFF-Zellen für 2 d bei 37 ° C geimpft wurde. Dann ersetzen Sie das Medium mit 5 ml D10 Medium mit 0,3 μM Sinusfungin (Selektionsmedium).
- Halten Sie die Parasiten in Selektionsmedium für mindestens 3 Passagen, bis der resistente Pool stabil wird (angezeigt durch das Fehlen von Parasitenwachstum in der negativen Kontrollgruppe, aber robustes Parasitenwachstum in der experimentellen Gruppe).
- Subklonieren Sie die Sinefungin resistenten Pool, um Klon-Stämme zu erhalten.
- Sammeln Sie frisch ausgelassene Parasiten, reinigen Sie durch 3 μm Membranfiltration und subklonieren Sie in 96-Well-Platten, die mit konfluenten HFF-Zellen in 150 & mgr; l D10-Medium seediert wurden. Die Subklonierungskulturen in einem CO 2 -Inkubator bei 37 ° C für 7 - 10 d wachsen, ohne die Platten zu stören.
HINWEIS: Siehe Protokoll 4.4.2.1 Hinweis in S upplementary Datei 1 .
- Sammeln Sie frisch ausgelassene Parasiten, reinigen Sie durch 3 μm Membranfiltration und subklonieren Sie in 96-Well-Platten, die mit konfluenten HFF-Zellen in 150 & mgr; l D10-Medium seediert wurden. Die Subklonierungskulturen in einem CO 2 -Inkubator bei 37 ° C für 7 - 10 d wachsen, ohne die Platten zu stören.
- Überprüfen Sie die 96-Well-Platten unter einem invertierten Phasenkontrastmikroskop, um nach Brunnen zu suchen, die nur eine Plaque enthalten. Markieren Sie solche Vertiefungen und übertragen Sie anschließend die Zellen von jeder Vertiefung zu 24-Well-Platten, die mit HFF-Zellen unter Verwendung einer Pipette geimpft wurden.
- Wenn 80-90% der HFF-Zellen in einer Vertiefung lysiert werden, ernten Sie die Parasiten (ca. 500 μl) und geben 50 μl Parasitlösung in eine neue Vertiefung, um den Stamm zu erhalten. Verwenden Sie den Rest (≈450 μL), um genomische DNA für die PCR-Amplifikation zu extrahieren.
- Für die genomische DNA-Isolierung aus dem SNF- r- Klon pellet man die Parasiten (kleine Mengen an HFF-Zellkontamination ist erträglich) bei 1000 xg für 10 min. Die pelletierten Parasiten einmal mit phosphatgepufferter Kochsalzlösung (PBS) waschen und erneut pelletieren. Isolieren Sie genomische DNA aus pelletierten Zellen unter Verwendung eines kommerziellen Kits oder durch Kochen. Resaspendieren von Parasiten in 50-100 μl PBS.
HINWEIS: Führen Sie PCR durch, um ein Fragment des SNR1- Gens für die Sequenzierung zu erhalten. Verwenden Sie die folgenden Primer, um den SNR1-Locus zu verstärken: SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC und SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Verwenden Sie hochfrequente DNA-Polymerasen. Verstärken Sie den WT-Locus für Kontrollzwecke.
- Für die genomische DNA-Isolierung aus dem SNF- r- Klon pellet man die Parasiten (kleine Mengen an HFF-Zellkontamination ist erträglich) bei 1000 xg für 10 min. Die pelletierten Parasiten einmal mit phosphatgepufferter Kochsalzlösung (PBS) waschen und erneut pelletieren. Isolieren Sie genomische DNA aus pelletierten Zellen unter Verwendung eines kommerziellen Kits oder durch Kochen. Resaspendieren von Parasiten in 50-100 μl PBS.
- Führen Sie t ausEr PCR mit 20 μL Reaktionsvolumen und läuft mit folgendem Programm: 98 ° C für 1 min, gefolgt von 30 Zyklen von 98 ° C für 10 s, 55 ° C für 30 s und 72 ° C für 2,5 min, gefolgt von Endverlängerung für 2 min bei 72 ° C.
HINWEIS: Sequenzieren Sie die PCR-Produkte unter Verwendung der folgenden Primer: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC und SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Vergleichen Sie die Sequenzen des SNR1- Gens aus Sinefungin-resistenten Mutanten mit dem des WT-Stammes unter Verwendung eines Sequenz-Ausrichtungswerkzeugs.
HINWEIS: Siehe Ergänzende Datei 2 Protokoll 5 für Details zur Verwendung der negativen Selektion am SNR1- Locus für genetische Komplementierung oder transgene Stammkonstruktion .
- Wachsen Sie die elektroporierten Parasiten aus Abschnitt 4.2.9 in einem T25-Kolben, der mit HFF-Zellen für 2 d bei 37 ° C geimpft wurde. Dann ersetzen Sie das Medium mit 5 ml D10 Medium mit 0,3 μM Sinusfungin (Selektionsmedium).
- Plot die Scan-Ergebnisse für nur Chromosom IX, das Chromosom mit dem höchsten Peak:
Ergebnisse
Dieser Artikel beschreibt im Detail mehrere Methoden, die nacheinander verwendet werden können, um ein für die Arzneimittelresistenz verantwortliches Gen zu identifizieren ( Abbildung 1 ). Die 24 Nachkommen des ME49-FUDR r X VAND-SNF r Kreuzes wurden auf Resistenz gegen das Medikament Sinefungin, wie in Protokoll 1 beschrieben, beurteilt. Unter Verwendung der genetischen Karte und des SNF r- Phänotyps der Nachkommenschaft wurde ein QTL-Scan in R / Qtl - Protokoll 2 ( Abbildung 2 ). Dies führte zu einem signifikanten Peak auf Chromosom IX, der etwa 1 Mbp überspannte. In dieser Region befindet sich die Kausalmutation.
Um die kausale Mutation zu identifizieren, wurde die WGS aus der Nachkommenschaft mit dem Vend-SNF-Referenzgenom unter Verwendung von Bowtie2 - Protokoll 3.1 ausgerichtet, SNPs wurden mit VarScan mpileup2snp - Protokoll 3.2 aufgerufen und der QTL - Locus im VAND - Genom wurde mit MUMmer - ProtocOl 3.3. Nachkommen-SNPs innerhalb des QTL-Locus wurden extrahiert und auf ein Muster gescannt, bei dem die SNF r- Progogen einen SNP und die SNFs nicht haben, was möglich ist, weil die Nachkommen-SNPs im Vergleich zum VAND-SNF-Referenzgenom erhalten wurden ( Abbildung 3 ) . Nur ein SNP stimmt mit diesem Muster überein, das zu einem frühen Stopcodon in einem mutmaßlichen Aminosäuretransportergen namens SNR1 führt .
Bestätigung, dass SNR1 das SNF- r- Resistenzgen ist, wurde mit dem CRISPR / Cas9-System durchgeführt. Ein neues CRISPR / Cas9-Plasmid, das für die T. gondii- Genbearbeitung entwickelt wurde, wurde mit einer gRNA, die auf das SNR1- Gen in der Nähe der SNF- R- Mutation hinweist, die in dem Nachkommen-Protokoll Nr. 4 ( 4A ) identifiziert wurde, durchgeführt. Das SNR1- Targeting-CRISPR / Cas9-Plasmid wurde in einen SNF-WT-Parasitenstamm elektroporiert und resistente Mutanten wurden bei Kult erhaltenÖst in 0,3 μM Sinusfungin. Es wurden keine SNF- r- Parasiten erhalten, wenn sie mit dem UPRT-Targeting-CRISPR / Cas9-Plasmid elektroporiert wurden. Mehrere SNF r CRISPR-Mutanten wurden kloniert und die Region um das SNR1- gRNA-Target wurde sequenziert. Jede Mutante hatte einen Indel, der die kodierende Sequenz des SNR1- Gens störte ( Abbildung 4B ). Diese Methode kann auch verwendet werden, um ein Targeting-Konstrukt in den SNR1- Locus über NHEJ einzufügen ( Abbildung 5) oder HR ( Abbildung 6 ) - Ergänzende Datei 2 .
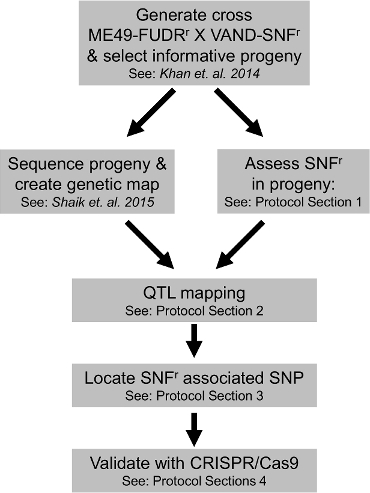
Abbildung 1: Schematischer Workflow für Experimente, die in den Protokollen skizziert wurden. Die Hauptschritte bei der Identifizierung und Bestätigung des SNF r- Gens unter Verwendung des ME49-FUDR r X VAND-SNF r- Kreuzes werden unter Bezugnahme auf die in t skizzierten entsprechenden Protokolle gezeigtSein artikel Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
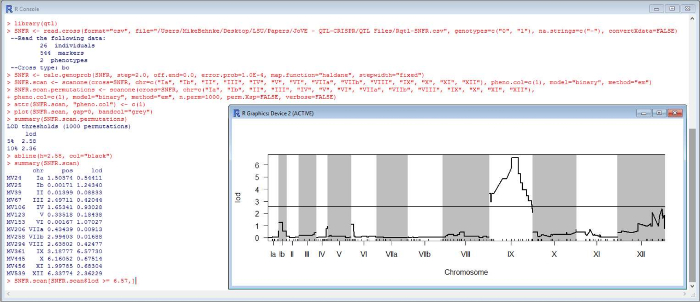
Abbildung 2: R / qtl Befehle zum Ausführen von QTL Scan auf dem SNF r Phänotyp. Die Befehle, wie in Protokoll 2 skizziert, wurden in R mit dem qtl-Paket ausgeführt. Repräsentative Befehle und Plots werden angezeigt. Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
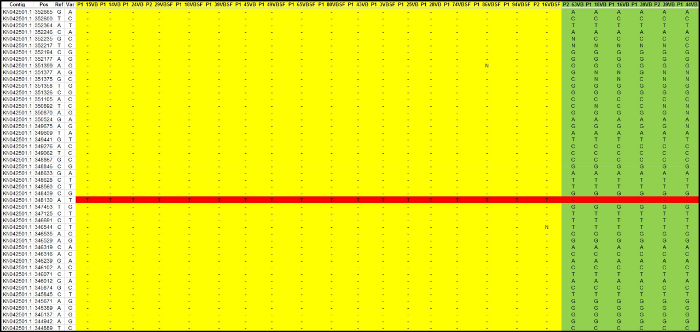
Abbildung 3: Ort des Causal SNP. Nachkommen WGS-Lesungen wurden auf das VAND-SNF-Referenz-Genom mit Bowtie 2 ausgerichtet, SNPs wurden mit VarScan aufgerufen und entsprechen VAND QTL locus mit MUMmer identifiziert. SNPs, die sich innerhalb des QTL-Locus befinden, wurden in eine Kalkulationstabelle importiert und das kausale SNP wurde identifiziert. SNF r Nachkommen (gelb), SNF s Nachkommen (grün), SNF r SNP (rot) (siehe Daten Datei 3 ). Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
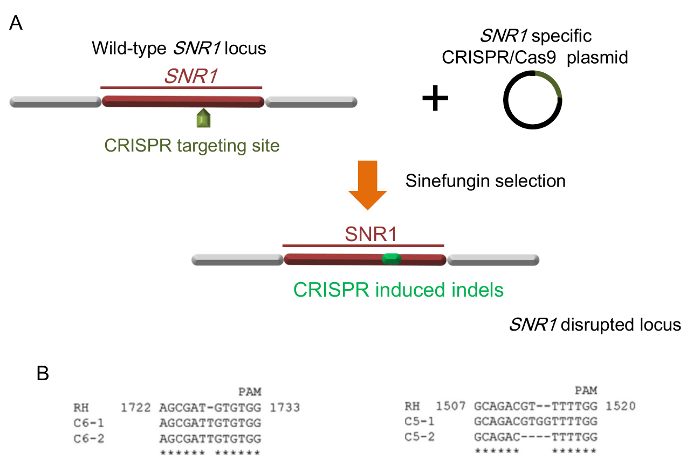
Abbildung 4: Bestätigung von SNR1 als SNF r Gen mit CRISPR / Cas9. ( A ) CRISPR / Cas9 induzierte Indel-Mutationen (grün) im SNR1- Locus. ( B ) Repräsentative Indels in SNR1, die durch zwei verschiedene SNR1 spezifische CRISPR-Plasmide (C5 und C6) verursacht wurden. RH ist der WT-Stamm und C5 und C6 sind SNF- R- Mutanten. (B wird aus der Referenz genommenS = "xref"> 2). Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
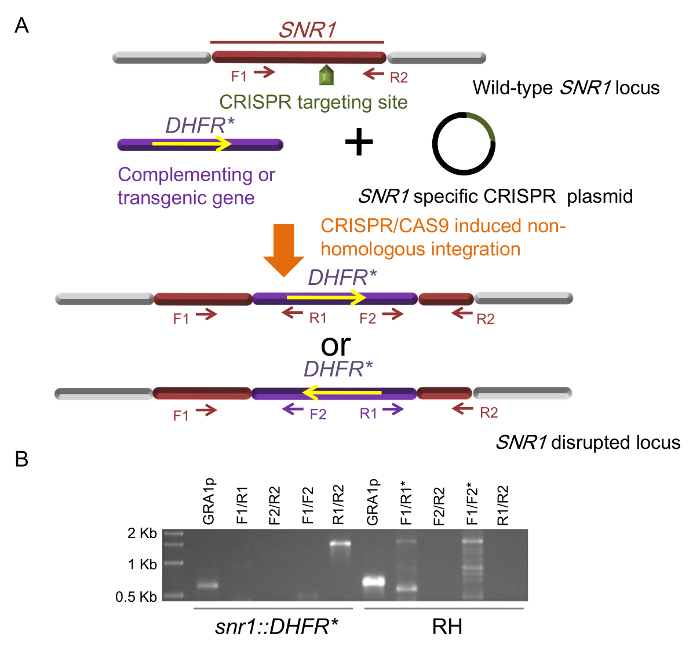
Abbildung 5. Insertionsmutagenese mit CRISPR / Cas9. ( A ) Insertion von komplementären oder transgenen Genen in den SNR1- Locus durch CRISPR / Cas9-vermittelte ortsspezifische Integration. Zwei mögliche Orientierungen des eingefügten DHFR * mini-Gens und der zur Identifizierung verwendeten Primer, F1 / 2 und R1 / 2, repräsentieren die Priming-Stellen von Oligos, die in diagnostischen PCRs verwendet werden. ( B ) Diagnostische PCRs von einem snr1 :: DHFR * Klon, RH wird als WT-Kontrolle verwendet. PCR des GRA1p ist als Kontrolle zur Überprüfung der Qualität der genomischen DNA als Vorlagen enthalten. Asterisks zeigen Bahnen mit unspezifischen Bändern an (Abbildung 5B wird von referen genommenCe 2 ). Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
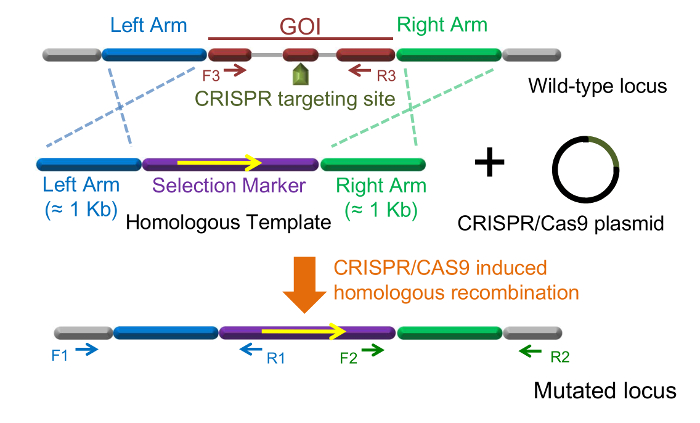
Abbildung 6: Gen-Knockout mit CRISPR / Cas9. Ein klassisches Design für CRISPR / Cas9 vermittelten homologen Genaustausch in T. gondii . Die Orientierung des eingefügten Transgens ist in diesem Fall festgelegt. F1 / R1, F2 / R2 und F3 / R3 repräsentieren die Priming-Stellen von Oligos, die in diagnostischen PCRs verwendet werden. Bitte klicken Sie hier, um eine größere Version dieser Figur zu sehen.
Datendatei 1: ME49-FUDR r X VAND-SNF r Querdatei fOder verwenden Sie in R / qtl, "csv" Format. Eine .csv-Datei, die in R / qtl mit der Format = "csv" Option geladen werden kann. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Datendatei 2: (chrid txt, genotype txt, markerpos.txt, mname.txt, phenonames.txt und phenos.txt). ME49-FUDR r X VAND-SNF r Cross-Dateien zur Verwendung in R / qtl, "gary" Format. Sechs .txt-Dateien, die in R / qtl mit dem Format = "gary" -Option geladen werden können. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Datendatei 3. Spreadsheet mit Nachkommen-SNPs über den SNF r QTL Locus Enthält ein Arbeitsblatt mit den Nachkommen-SNPs und ein zweites Arbeitsblatt mit den phänotypischen Daten der Eltern und der Nachkommenschaft des Kreuzes. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Datei 1: Zusätzliche Protokolldetails. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Akte 2: Protokoll 5 - Verwendung der Negativselektion am SNR1 Locus für genetische Komplementierung oder transgene Dehnungsherstellung Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Diese Protokolle stellen mehrere Methoden vor, die, wenn sie kombiniert sind, die Identifizierung eines Arzneimittelresistenzgens in T. gondii ermöglichen . Vor allem zwei waren integraler Bestandteil des Projektes, der relativ erfahrenen Methode der QTL-Kartierung und der kürzlich entwickelten Methode der CRISPR / Cas9-Genbearbeitung. Lander und Botstein veröffentlichten 1989 ihr einflussreiches Papier, das eine QTL-Kartierung zeigte, die genetische Loci mit Phänotypen korreliert 36 . In jüngster Zeit haben Dounda und Charpentier im Jahr 2012 das CRISPR / Cas9-Editing-System in Streptococcus pyogenes 22 beschrieben , das in vielen verschiedenen Modellen, wie zB T. gondii 13 , 17, als genetisches Werkzeug schnell angepasst wurde . Beide Methoden waren hier nützlich, wo QTL-Mapping den Locus definiert, der die Arzneimittelresistenzmutation enthielt, die letztlich mit der WGS-basierten SNP-Detektion identifiziert wurde, und die CRISPR / Cas9-Bearbeitung lieferte die ich Ans zu bestätigen, dass SNR1 das Sinefungin-Arzneimittelresistenzgen ist.
Die ME49-FUDR r X VAND-SNF r Kreuz 8 wurde ursprünglich entwickelt, um einen Virulenz-Phänotyp 19 zu verhören, aber die Elternstämme hatten auch einen zusätzlichen phänotypischen Unterschied, für den das kausale Gen nicht bekannt war, Sinefungin-Resistenz im VAND-Elternteil. Dies unterstreicht einen Vorteil von Kreuzen, dass sie wiederverwendet werden können, wenn zusätzliche phänotypische Unterschiede in den Eltern beobachtet werden. Dies war der Fall für ein weiteres Toxoplasma- Kreuz, Typ 2 x Typ 3, wo mehrere Gene, die an Virulenz beteiligt waren, durch die Abbildung mehrerer Phänotypen 37 , 38 , 39 , 40 gefunden wurden . Bisher wurden vier verschiedene T. gondii Kreuze beschrieben und verwendet, um Gene zu kennzeichnen, die für Phänotypen verantwortlich sindSs = "xref"> 8 , 37 , 41 , 42 , die alle das Potenzial haben, wiederverwendet zu werden, um neue Phänotypen abzubilden, für die die genetische Basis unbekannt ist. Entlang dieser Linien wurden die Genome für 62 T. gondii- Stämme, die die bekannte globale genetische Diversität darstellen, sequenziert 43 . Neue Kreuze konnten aus diesem Pool für Stämme gemacht werden, die sich in interessanten Phänotypen unterscheiden. Nachdem ich die Vorteile der QTL-Kartierung gepriesen habe, muss man sagen, dass die Erzeugung eines Kreuzes kein geringfügiges Unternehmen ist. Es gibt andere Methoden, die verwendet werden können, um kausale Gene zu identifizieren. Eine leistungsstarke Technik nutzt die chemische Mutagenese, um Mutanten zu erzeugen, die auf Phänotypen untersucht werden können. Um das kausale Gen zu finden, können Mutanten entweder mit Cosmid-Bibliotheken 44 ergänzt werden oder Genom-Resequencing-Verfahren können verwendet werden, um die kausale Mutation zu finden. Für moSiehe hierzu zwei JoVE-Artikel von Coleman et al. Und Walwyn et al. Die diese Ansätze 46 , 47 skizzieren.
Viele der Schritte zur Identifizierung der kausalen SNF-Mutation (Protokolle 2 und 3) beruhen auf Rechenmethoden, die mit Software durchgeführt werden, die für den akademischen Gebrauch frei verfügbar ist. Detaillierte Befehle für jeden Schritt werden zur Verfügung gestellt und wenn mit den richtigen Dateien ausgeführt wird es dem Benutzer, die Datensätze neu zu erstellen, die notwendig sind, um den ursächlichen SNF r SNP zu finden. Denken Sie daran, dass einige der Syntax in den Befehlen auf Dateinamen oder Verzeichnisstruktur ($ PATH) verweisen, die auf die Benutzerpräferenz geändert werden können. Obwohl die hier angegebenen Befehle sicherlich nicht ausschließen, wie man ein Kreuz mit QTL-Analyse und WGS-basierter SNP-Identifikation analysieren kann, sind sie umfangreich genug, um das in diesem Artikel beschriebene Experiment zu wiederholen und es dem Benutzer zu ermöglichen, m zu werden Erz vertraut mit, wie diese Ansätze in einer Schritt-für-Schritt-Mode genutzt werden.
Obwohl QTL-Mapping und WGS-Sequenz-basierte SNP-Detektion ausreichend waren, um ein Kandidaten-SNF- r- Gen zu identifizieren, sind zusätzliche Experimente erforderlich, um seine Rolle in der Arzneimittelresistenz zu bestätigen. Dies kann durch Genunterbrechung oder Knockout-Techniken überzeugend gezeigt werden, die beide mit Hilfe von CRISPR / Cas9-Genbearbeitung erreicht werden können. Detaillierte Verfahren zur Verwendung von CRISPR / Cas9, um entweder Indel-Mutationen zu erzeugen oder transgene Konstrukte in ein Zielgen in T. gondii einzufügen, sind gegeben. Die Zielspezifität, die CRISPR / Cas9 bietet, erhöht die Effizienz der Genbearbeitung über traditionelle Methoden. Auch dies hat es effizienter ermöglicht, nicht-laborgerechte Stämme für genetische Untersuchungen zu verwenden, die bisher schwer zu modifizieren waren 13 . Obwohl in den Kinderschuhen CRISPR / Cas9 bereits verwendet wurde, um Genunterbrechungen zu machenLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , markieren Gene 17 und machen Gen-Knockouts 16 , 19 , 50 , 51 , 52 , 53 , 54 in T. gondii und versprechen, ein nützliches Werkzeug zu sein Für viele andere Studien in der Zukunft.
Die Entdeckung, dass die SNR1- Inaktivierung zu einer Sinefungin-Resistenz führt, macht den SNR1- Locus zu einer vielversprechenden Stelle für die Transgen-Insertion oder genetische Komplementierung. Um den Erfolg der Verwendung von CRISPR / Cas9-vermittelten Gen-Targeting zu maximieren, um die Integration von Transgen in den SNR1- Locus zu lenken , sollten die folgenden Aspekte berücksichtigt werdenRot während des experimentellen Designs. Zuerst wird empfohlen, ein Selektionsmarker in das transgene Konstrukt einzubeziehen, um die Effizienz der Dehnungskonstruktion zu erhöhen. Wenn ein Selektionsmarker enthalten ist, können sowohl positive als auch negative Selektion verwendet werden, was dazu führt, dass fast 100% der doppelt ausgewählten Parasiten mit dem im SNR1- Locus integrierten GOI transgen sind. Im Gegensatz dazu, wenn das transgene Konstrukt keine zusätzlichen auswählbaren Merkmale enthält und auf einer negativen Selektion am SNR1- Locus beruht , hängt die Effizienz der erfolgreichen Transgenese weitgehend von der Effizienz der Cotransfektion des CRISPR-Plasmids und des transgenen Konstrukts ab.
Zweitens, obwohl die CRISPR / Cas9-vermittelte ortsspezifische Integration eines nicht-homologen DNA-Fragments häufig zur Komplementierung und Transgenese verwendet wird, ist zu beachten, dass die Orientierung der Insertion in solchen Fällen nicht gewährleistet werden kann, dass entweder eine Richtung möglich ist. Dies kann sich als sinnvoll erweisenMs zu einigen Anwendungen. Zum Beispiel, um eine Mutante mit verschiedenen Gen-Allelen zu ergänzen, ist es schwierig, sicherzustellen, dass alle Allele in die gleiche Orientierung eingefügt werden, und Diskrepanzen in der Orientierung können Ausdrucksunterschiede verursachen. Für diese Art der Anwendung werden DNA-Konstrukte mit Sequenzen empfohlen, die homolog zum SNR1- Locus sind, was die richtige Integrationsorientierung antreibt ( Abbildung 6 ).
Drittens ist während der Transfektion das Verhältnis zwischen dem CRISPR-Plasmid und dem transgenen DNA-Molekül entscheidend für eine erfolgreiche transgene Dehnungskonstruktion. Dieses Verhältnis muss nach den Auswahlstrategien angepasst werden. Folgende Richtlinien werden empfohlen: 1) Wenn das transgene Konstrukt einen drogenresistenten Marker enthält und das entsprechende Medikament die einzige Selektion ist, die verwendet wird, um transgene Parasiten zu erzeugen, dh Sinefungin wird nicht verwendet, das vorgeschlagene Molverhältnis zwischen dem transgenen Konstrukt und dem CRISPR-PlasmaId ist 1: 5. Die Verwendung von mehr CRISPR-Plasmiden in diesem Fall erhöht die Wahrscheinlichkeit, dass Parasiten, die das transgene Konstrukt erhalten, auch das CRISPR-Plasmid erhalten werden, weshalb die Arzneimittelresistente Parasiten eher die Markierung an der CRISPR-Targeting-Stelle aufweisen. Wenn das Verhältnis umgekehrt ist, werden die meisten Parasiten, die das transgene Konstrukt erhalten, das CRISPR-Plasmid nicht erhalten. Infolgedessen erhält die überwiegende Mehrheit der drogenresistenten Parasiten das transgene Konstrukt durch zufällige Integration, die nicht mit der CRISPR / CAS9-vermittelten ortsspezifischen Insertion assoziiert ist. 2) Wenn das transgene Konstrukt einen drogenresistenten Marker enthält und das entsprechende Medikament zusammen mit Sinusfungin zur Selektion transgener Parasiten verwendet wird, beträgt das vorgeschlagene Molverhältnis zwischen dem transgenen Konstrukt und dem CRISPR-Plasmid 1: 1. Diese Strategie bietet die höchste Effizienz der transgenen Dehnungskonstruktion. 3) Wenn das transgene Konstrukt keinen selektierbaren Hersteller enthält, der sich auf eine negative Selektion stützt,Von Sinefungin allein, um transgene Parasiten zu erhalten, beträgt das vorgeschlagene Molverhältnis zwischen dem transgenen Konstrukt und dem CRISPR-Plasmid 5: 1. Die Begründung für dieses Design ist die gleiche wie in der ersten Leitlinie oben. Da sowohl Pyrimethamin als auch Sinusfungin zur Selektion in Protokoll 5 verwendet wurden, wurde das Verhältnis zwischen DHFR * mini Gen und dem SNR1 Targeting CRISPR Plasmid als 1: 1 eingestellt.
Zusammengenommen haben die hier skizzierten Methoden ein Detaillierungsgrad, das in der ursprünglichen Publikation, die SNR1 2 identifizierte, nicht möglich war. Diese Protokolle; Insbesondere die Kommandozeilen-Syntax, das sequentielle Layout der verwendeten Programme und die Verwendung von CRISPR / Cas9 sollten zukünftige Bemühungen unterstützen, neue Gene zu identifizieren, die für Phänotypen verantwortlich sind.
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden finanziellen Interessen haben.
Danksagungen
Wir danken L. David Sibley und Asis Khan für ihren Beitrag zur ursprünglichen Publikation, auf der diese Protokolle basieren. Diese Arbeit wurde von National Institutes of Health gewährt AI108721 finanziert.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| T25 Kolben | Corning | 430639 | |
| Human Foreskin Fibroblasts (HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49 Stamm | ATCC | 50840 | |
| T. gondiiVAND Stamm | ATCC | PRA-344 | |
| DMEM (ohne Natriumbicarbonat) | Life Sciences | 12800017 | |
| Natriumbicarbonat | Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Fötales Rinderserum (FBS) Premium Grade | VWR International | 97068-085 | |
| L-Glutamin 200 mM | Sigma Aldrich | G7513 | |
| Gentamicin (10 mg/ml) | Life Technologies | ||
| Zellschaber für Kolben | VWR International | 10062-904 | |
| Spritze 10 mL | BD | 309604 | |
| stumpfe Nadeln 22 G x 1" | BRICO Products | BN2210 | |
| Nukleporenfilter 3.0 & Mikro; m, 25 mm | GE Healthcare | 110612 | |
| Swin-Lok Filterhalter 25 mm | GE Healthcare | 420200 | |
| Hämazytometer | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | The R Foundation | https://www.r-project.org/ | |
| J/qtl | The Churchill Group | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | John Hopkins University | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Institute | http://www.htslib.org/ | |
| VarScan | Washington University, St. Louis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii CRISPR-Plasmid zum Schneiden des UPRT-Gens |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii CRISPR-Plasmid zum Schneiden des TG*_290860 SNR1-Gens |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | Vorlage für DHFR* Mini-Gen |
| Q5 Site-Directed Mutagenese Kit | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Bouillon | Fisher Scientific | DF0446-07-5 | |
| Kaliumchlorid | Sigma Aldrich | P9541 | |
| Calciumchlorid | Sigma Aldrich | 746495 | |
| Kaliumphosphat monobasisch | Sigma Aldrich | P9791 | |
| Kaliumphosphat zweibasisch | Sigma Aldrich | P5504 | |
| EDTA | Sigma Aldrich | E5134 | |
| Magnesiumchlorid | Sigma Aldrich | M1028 | |
| Adenosintriposhpat (ATP) | Sigma Aldrich | A6419 | |
| L-Glutathion (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Elektroporationssystem | BTX | 45-0002 | |
| Elektroporationsküvette 4 mm | Harvard Apparatur | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| 6-Well-TC-Platte | Corning | 353046 | |
| 24-Well-TC-Platte | Corning | 353935 | |
| Deckglas 12 mm rund | VWR International | 89015-724 | |
| 96-Well-TC-Platte | Corning | 353075 | |
| Gibson Assembly Cloning Kit (Multi-Fragment) | New England Biolabs | E5510S | |
| Q5 High-Fidelity Polymerase | New England Biolabs | M0491S | |
| Pyrimethamin | TCI AMERIKA | P2037-1G | Verwenden Sie Cuation bei der Verwendung von Pyrimethamin-resistenten Parasiten - siehe Protokoll |
Referenzen
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Nachdrucke und Genehmigungen
