Um die Evolution der Sprache zu untersuchen, ist es wichtig, die Mechanismen des Gehirns beim Menschen mit denen bei nichtmenschlichen Primaten zu vergleichen. Wir haben eine Methode entwickelt, um die Elektroenzephalographie (EEG) von wachen Tieren nicht-invasiv zu messen. Es ermöglicht uns, EEG-Daten zwischen Mensch und Tier langfristig direkt zu vergleichen, ohne ihnen zu schaden.
Methodenartikel
Elektroenzephalographie-Messungen bei wachen Weißbüschelaffen, die den Lautäußerungen von Artgenossen lauschen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die vokale Kommunikation spielt eine entscheidende Rolle in den sozialen Interaktionen von Primaten, insbesondere beim Überleben und der sozialen Organisation. Der Mensch hat eine einzigartige und fortschrittliche vokale Kommunikationsstrategie in Form von Sprache entwickelt. Um die Evolution der menschlichen Sprache zu untersuchen, ist es notwendig, die neuronalen Mechanismen zu untersuchen, die der Stimmverarbeitung beim Menschen zugrunde liegen, sowie zu verstehen, wie sich die Mechanismen des Gehirns entwickelt haben, indem man sie mit denen von nichtmenschlichen Primaten vergleicht. In dieser Arbeit haben wir eine Methode entwickelt, um die Elektroenzephalographie (EEG) von wachen nichtmenschlichen Primaten nichtinvasiv zu messen. Diese Aufzeichnungsmethode ermöglicht Langzeitstudien, ohne die Tiere zu schädigen, und ermöglicht es uns, EEG-Daten von nichtmenschlichen Primaten direkt mit menschlichen Daten zu vergleichen, was Einblicke in die Evolution der menschlichen Sprache gibt. In der aktuellen Studie haben wir die EEG-Aufzeichnungsmethode der Kopfhaut verwendet, um die Gehirnaktivität als Reaktion auf artspezifische Lautäußerungen bei Weißbüschelaffen zu untersuchen. Diese Studie liefert neue Erkenntnisse, indem sie mithilfe von Kopfhaut-EEG weit verbreitete neuronale Repräsentationen bei Weißbüschelaffen während der Stimmwahrnehmung erfasst und Lücken im bestehenden Wissen schließt.
Einleitung
Primaten verwenden artspezifische Lautäußerungen, um biologisch wichtige Informationen zu übermitteln, wie z. B. den emotionalen Zustand des Rufers oder die Absicht, soziale Bindungen aufrechtzuerhalten, die Anwesenheit von Raubtieren oder andere gefährliche Situationen. Die Untersuchung der neuronalen Mechanismen, die der Wahrnehmung der Lautäußerung bei stimmreichen nichtmenschlichen Primaten zugrunde liegen, kann uns entscheidende Hinweise liefern, um die evolutionären Ursprünge der menschlichen Sprache besser zu verstehen.
Weißbüschelaffen sind kleine Primaten, die in Südamerika beheimatet sind. In den letzten Jahren wurden Weißbüschelaffen aufgrund ihrer hohen Fortpflanzung, ihrer Benutzerfreundlichkeit aufgrund ihrer geringen Größe und der Entwicklung nützlicher transgener Techniken zunehmend als Modelltiere neben Makaken eingesetzt 1,2,3. Neben ihrem Nutzen als Krankheitsmodell ist die reichhaltige vokale Kommunikation innerhalb von Gruppen ein weiteres einzigartiges Merkmal dieser Art 4,5,6,7. Weißbüschelaffen tauschen routinemäßig Stimmsignale aus, um mit unsichtbaren Artgenossen im Wald zu kommunizieren. Durch die Untersuchung der Gehirnaktivität, die an der Stimmwahrnehmung und -produktion bei Weißbüschelaffen beteiligt ist, können wir feststellen, wie sie die auditiven Informationen ihrer eigenen oder artverwandten Rufe im Gehirn verarbeiten und welche neuronalen Schaltkreise daran beteiligt sind. Frühere Studien haben gezeigt, dass die neuronale Aktivität im primären auditorischen Kortex 8,9,10,11,12 und im frontalen Kortex 13,14 an der Stimmproduktion bei Weißbüschelaffen beteiligt ist. Darüber hinaus wurden diese erregten und unterdrückten neuronalen Reaktionen durch auditiv-vokale Interaktionen im primären auditorischen Kortex moduliert 8,10. Diese Studien lieferten detaillierte Daten zur neuronalen Aktivität auf der Ebene einzelner Neuronen mit invasiven Aufzeichnungsmethoden. Zahlreiche Studien haben die neuronale Aktivität, die an der Stimmproduktion von Weißbüschelaffen beteiligt ist, weiter untersucht. Die stimmliche Wahrnehmung ist jedoch nach wie vor wenig verstanden15,16.
Mehrere nicht-invasive bildgebende Studien des Gehirns haben die neuronalen Mechanismen der Stimmverarbeitung bei Weißbüschelaffen aufgeklärt 17,18,19; Ihre hohe räumliche Auflösung ist ein Vorteil, aber um die Tiere während des Scannens im wachen Zustand zu halten, sind fortschrittliche Techniken erforderlich. In jüngerer Zeit identifizierten Jafari et al. jedoch frontotemporale Regionen, die an der Stimmwahrnehmung bei wachen Weißbüschelaffen beteiligt sind, mithilfe der funktionellen Magnetresonanztomographie (fMRT)19. Fast alle Experimente zur Aufklärung der Gehirnfunktionen, die an der Stimmwahrnehmung und -produktion beim Menschen beteiligt sind, wurden mit nicht-invasiven Methoden wie der Kopfhaut-Elektroenzephalographie (EEG), der Magnetenzephalographie (MEG)20,21 und der fMRT 22,23,24 durchgeführt. Zahlreiche Studien am Menschen haben die Gehirnaktivität im Zusammenhang mit der stimmlichen Wahrnehmung mittels EEG untersucht. Die meisten dieser Studien konzentrierten sich auf emotionale Informationen 25,26,27 und die Salienz emotionaler Wörter28, wobei die Ergebnisse Veränderungen der ereigniskorrelierten Potenziale während der stimmlichen Wahrnehmung zeigten29. Elektrokortikographie (ECoG) und Einzelneuronenaufnahmen mit intrakraniell implantierten Elektroden beim Menschen wurden bisher nur in einer begrenzten Anzahl von Experimenten an Patienten durchgeführt, die sich einer neurochirurgischen Behandlung unterzogenhaben 30,31.
Eine evolutionäre Perspektive, die Menschen mit Affen vergleicht, ist wichtig, um die einzigartigen neuronalen Mechanismen zu verstehen, die der Stimmwahrnehmung und -produktion zugrunde liegen und sich beim Menschen entwickelt haben. Um die neuronalen Mechanismen, die an der Sprachwahrnehmung und Lautäußerung bei stimmreichen nichtmenschlichen Primaten wie dem Weißbüschelaffen beteiligt sind, direkt mit denen des Menschen zu vergleichen, ist es wichtig, die Daten zwischen den beiden Arten mit der gleichen Methode zu vergleichen. Die funktionelle MRT ermöglicht die Bildgebung des gesamten Gehirns und hat eine hohe räumliche Auflösung. Es hat den Vorteil, dass es die Aktivität senkrecht zum Schädel oder in tiefen Regionen aufzeichnet, die mit EEG oder MEG nur schwer aufzuzeichnen sind. Das MRT-Gerät ist jedoch teuer in der Installation und Wartung, und es gibt viele Einschränkungen bei den Reizen, die aufgrund der Art des Geräts dargestellt werden können. Im Vergleich dazu haben EEG, ereigniskorrelierte Potentiale (ERPs) und MEG eine hohe zeitliche Auflösung, was sie für die Analyse der stimmlichen Verarbeitung von Zeitreihen nützlich macht. EEG hat insbesondere die Vorteile einer hohen Mobilität und der Möglichkeit, in einer Vielzahl von Versuchsumgebungen eingesetzt zu werden, relativ niedrige Kosten und die Notwendigkeit eines einzigen Bedieners.
Da bereits eine große Menge an EEG-Daten beim Menschen gewonnen wurde, sind EEG-Messmethoden mit nicht-invasiven Paradigmen für nicht-menschliche Primaten erforderlich. Unsere Forschungsgruppe hat eine einzigartige nicht-invasive EEG-Aufzeichnungsmethode mit Röhrchen32 für Makaken und Weißbüschelaffen entwickelt. Hier berichten wir über mehrere neue Erkenntnisse zur auditiven Verarbeitung bei nichtmenschlichen Primaten 33,34,35,36,37. Um die Gehirnaktivität als Reaktion auf artspezifische Lautäußerungen bei Weißbüschelaffen zu charakterisieren, haben wir ein experimentelles System zur nichtinvasiven Aufzeichnung der Gehirnaktivität mit Hilfe von Elektroden auf der Kopfhaut konstruiert. In dieser Studie beschreiben wir die EEG-Messmethode für Weißbüschelaffen.
Protokoll
Alle Versuche wurden vom Tierversuchsausschuss des EHUB (Nr. 2022-003, 2023-104) genehmigt und in Übereinstimmung mit dem von EHUB veröffentlichten Leitfaden für die Pflege und Verwendung von Laborprimaten durchgeführt. Für das Experiment wurden neun Weißbüschelaffen (Callithrix jacchus, sechs Männchen und drei Weibchen, 2-12 Jahre alt, mit einem Gewicht von 330-490 g) verwendet.
1. Tiere
- Halten Sie die Weißbüschelaffen in Einzelkäfigen, die mit Nistkästen, Holzstangen und anderen Bereicherungsvorrichtungen ausgestattet sind.
- Halten Sie die Räume unter einem 12-stündigen Hell-Dunkel-Zyklus, wobei Temperatur und Luftfeuchtigkeit bei 28 ± 2 °C bzw. 40 ± 20 % gehalten werden.
- Füttern Sie die Tiere zweimal täglich mit 14 g Pellets von Neuweltaffen, ergänzt durch Futter wie Gummi arabicum und Mehlwürmer. Stellen Sie Wasser ad libitum zur Verfügung.
- Führen Sie alle Experimente in einer schallgedämpften Box in einem Experimentierraum durch.
2. Ausrüstung (Abbildung 1B und Materialtabelle)
- Verwenden Sie 4 mm Silberelektroden. Die AgCl-Beschichtung auf der Elektrodenoberfläche verhindert eine Polarisation und sorgt für eine stabile Aufnahme.
- Verwenden Sie einen Verstärker, um die EEG-Signale aufzuzeichnen. Bandpassfilter (0,016-250 Hz) und Abtastung der Daten bei 1.000 Hz.
- Schließen Sie eine 64-Kanal-Elektrodeneingangsbox an den Verstärker an und platzieren Sie sie vor dem Motiv.
- Platzieren Sie den Lautsprecher 30 cm vom Weißbüschelaffenkopf entfernt und regeln Sie den Schallpegel auf 65-75 dB, gemessen in der Ohrposition. Geben Sie die auditiven Reize über diesen Lautsprecher ab.
- Platzieren Sie die Kamera vor dem Probanden, um seinen Zustand während der EEG-Aufzeichnung zu überwachen.
- Der Primatenstuhl besteht aus Acrylplatten und Kunstharzpfosten. Lassen Sie den Forscher bei den Experimenten die Tiere so halten, wie sie auf der Fußplatte sitzen. Setzen Sie an dieser Stelle ein Halsteil ein und befestigen Sie es an der Halspartie, und setzen Sie das Hüftstück ein und befestigen Sie es an der Hüftpartie. Stellen Sie sicher, dass der gesamte Körper jedes Weißbüschelaffen locker befestigt ist.
3. Anästhesie
- Betäuben Sie die Tiere mit einer intramuskulären Injektion von Alfaxalon (6-8 mg/kg) und Atropin (0,05 mg/kg). Dieses Protokoll ermöglicht es, die Anästhesie für ca. 20 Minuten aufrechtzuerhalten. Verabreichen Sie zusätzliche Dosen von Alfaxalone, um die Dauer der Anästhesie zu verlängern, wenn der Eingriff länger dauert. Verabreichen Sie vorher auch Antiemetika (Maropitant 1 mg/kg, subkutane Injektion), um der Übelkeit entgegenzuwirken, die eine Nebenwirkung von Alfaxalone ist.
HINWEIS: Weißbüschelaffen müssen während der Eingriffe unter Injektions- oder Inhalationsnarkose stehen und sollten sich sofort nach der Haarrasur erholen können. - Überwachen Sie die Vitalwerte mit einem Pulsoximeter und verabreichen Sie bei Bedarf ein Sauerstoff-Luft-Gemisch (Ø2 0,5 l/min, Luft 0,5 l/min).
- Halten Sie die Raumtemperatur über 27 °C und wickeln Sie ein wärmendes Tuch um den Körper des Weißbüschelaffen, um eine Unterkühlung zu vermeiden.
4. Haarentfernung
- Rasieren Sie den gesamten Kopf (auch hinter den Ohrmuscheln) mit einem Elektrorasierer.
- Tragen Sie Haarentfernungscreme für empfindliche Haut auf. Wischen Sie die Creme nach 5 min mit einer feuchten Gaze ab.
5. Vorbereitung der Maske
- Verarbeiten Sie vorab eine thermoplastische Maske, die auf die Größe des Affenstuhls passt. Bohren Sie insbesondere den Teil der Rückenlehne, der aus der vertikalen Länge des Stuhls herausragt, mit vier Schraubenlöchern, so dass er an der Nackenplatte des Stuhls befestigt werden kann.
HINWEIS: Thermoplastische Masken sind sicher und können verwendet werden, um den Kopf während der Strahlentherapie bei Patienten zu immobilisieren. Wir haben eine kleine Maske für Kinder verwendet und sie auf die Größe der Weißbüschelaffen zugeschnitten. Diese Maske wird weich, wenn sie in warmes Wasser bei 75 °C gelegt wird, und härtet aus, wenn die Temperatur sinkt, wenn sie aus dem Wasser genommen wird. - Für die Experimente setzen Sie die Tiere auf einen Primatenstuhl. Stützen Sie das anästhesierte Tier mit Hals- und Hüftplatten ab und befestigen Sie das Tier und diese Platten auf dem Stuhl.
- Erwärmen Sie die Maske in heißem Wasser und formen Sie sie dann so, dass sie zum Kopf des Weißbüschelaffen passt. Nachdem Sie die Maske aus dem warmen Wasser genommen haben, warten Sie, bis die Temperatur gesunken ist (ca. im Bereich von 50 °C), um Verbrennungen zu vermeiden, und legen Sie sie dann auf den Kopf des Motivs, um die Maske zu formen.
- Nehmen Sie die Maske nach dem Abkühlen und Aushärten vom Tier ab und schneiden Sie die Oberseite des Kopf- und Ohrteils der Maske aus, um den Bereich für die Elektrodeneinstellung freizulegen.
HINWEIS: Sobald diese Maske hergestellt wurde, kann sie bei anderen Personen verwendet werden.
6. Stuhl- und Maskenanpassung (30 min/Tag für 3 Tage)
- Gewöhnen Sie das Tier im Wachzustand an den Stuhl, indem Sie es auf einen Stuhl setzen und es ca. 30 Minuten lang belohnen. Wiederholen Sie diesen Vorgang 3 Tage lang.
- Gewöhnen Sie das Tier 2 Tage lang an die Kopffixierung mit der Maske.
HINWEIS: Dieser Anpassungsprozess wurde an den individuellen Zustand angepasst. Nach der Anpassung können die Tiere während des Fangens und des Setzens der Kopfmaske vorübergehend Widerstand leisten, aber sobald sie auf dem Stuhl sitzen und ihr Kopf fixiert ist, werden sie ruhig. - Bewerten Sie während der Stuhlanpassung die folgenden Verhaltensparameter: i) Abgabe von ängstlichen oder alarmierenden Geräuschen, ii) Ablehnung der angebotenen Belohnung und iii) heftige Bewegungen. Wenn eines dieser Verhaltensweisen beobachtet wird, beenden Sie die Sitzung für diesen Tag, damit sich der Weißbüschelaffe allmählich an die Versuchsumgebung anpassen kann.
7. EEG-Aufzeichnung (2 h/Tag)
- Vorbereitung des Themas
- Befestigen Sie einen Transferkäfig an einem kleinen Fenster des Heimkäfigs und bringen Sie den Weißbüschelaffen aus dem Heimkäfig in den Transferkäfig, normalerweise von selbst. Decken Sie den Tragekäfig mit einem Tuch ab und bringen Sie ihn in den Experimentierraum.
- Fixierung des Kopfes
- Fangen Sie den Weißbüschelaffen mit Schutzhandschuhen ein und setzen Sie ihn auf den speziellen Stuhl.
- Lege die vorbereitete Maske auf den Kopf des Weißbüschelaffen. Führen Sie den am Stuhl befestigten Schraubenkörper durch das Loch in der Maske und fixieren Sie ihn mit Rändelschrauben.
- Befestigen Sie den Kopf und die Maske leicht mit einem Band direkt unter der Nase.
HINWEIS: Der Kopf des Probanden musste nicht vollständig fixiert werden, solange die Elektroden nicht durch Bewegung entfernt wurden. Daher haben wir bei allen Probanden die gleiche Maske verwendet.
- Definition der Position der Elektroden
- Verwenden Sie das Nasion, das Inion und die Ohrläppchen als anatomische Orientierungspunkte, um die Position der Elektroden gemäß der Internationalen 10-20-Methode zu bestimmen 32,33,34,35,36,37. Messen Sie den Abstand zwischen Nasion und Inion in der Mittellinie mit einem Maßband. Definieren Sie die Position von Cz in der Mitte der Entfernung. Positionieren Sie die anderen Elektroden (Fz, Pz, Oz, F3 oder F4) mit 20 % der Inion-Neionen-Länge als Elektrodenabstand. Markieren Sie die Elektrodenpositionen auf der Kopfhaut mit einem Dermatographen auf Ölbasis.
- Vorbereitung der Haut
- Reiben Sie die markierte Stelle mit einem dünnen, in Reinigungsalkohol getauchten Wattestäbchen ab, um Schmutz und Talg von der Kopfhaut zu entfernen.
- Elektroden-Einstellungen
HINWEIS: Führen Sie die Schritte 7.2.1 bis 7.2.3 an allen Elektrodenpositionen aus, um Elektroden an Fz, Cz, C3, C4, Pz, A1, A2 und F3 (oder F4) zu platzieren.- Schneiden Sie mit einem Rohrschneider ein Stück Silikonschlauch mit einem Innendurchmesser von 4 mm und einem Außendurchmesser von 7 mm in eine Länge von ca. 20 mm.
- Tragen Sie Klebstoff auf die Ränder der geschnittenen Röhre auf und kleben Sie ihn auf die Kopfhaut.
- Füllen Sie das Innere des Röhrchens mit EEG-Gel mit einer Spritze und einer nicht spitzen Spritzennadel.
- Verbinden Sie die Referenzelektrode mit Pz und die Masseelektroden mit F3 oder F4 (Abbildung 1C).
- Führen Sie Elektroden in das Rohr ein und verbinden Sie das Elektrodenkabel mit der Eingangsbox.
- Starten Sie die Anwendung für EEG-Aufzeichnungen, um die Elektrodenimpedanz zu messen, und passen Sie die Parameter an, um sicherzustellen, dass alle Elektroden unter 5 kΩ liegen.
- Bündeln Sie die Elektrodenkabel, um das Rauschen zu reduzieren.
- Belohnen Sie während der Ruhigstellung des Kopfes und zwischen den Aufgabensitzungen, indem Sie 1-3 ml der flüssigen Belohnung (Kaugummi oder Nahrung) manuell mit einer Spritze verabreichen.
- Geben Sie die zu speichernde Datei in der EEG-Aufzeichnungssoftware an und drücken Sie die Schaltfläche Aufzeichnung starten . Führen Sie das Skript für die Stimuluspräsentation sofort nach dem Start der EEG-Aufzeichnung aus. Drücken Sie die Stopp-Taste an der EEG-Aufzeichnung, wenn die Ausführung des Stimulus-Präsentationsskripts abgeschlossen ist, um alle Aufzeichnungen zu beenden. Wenn die Aufnahme abgeschlossen ist, entfernen Sie die Elektroden und die Kopfmaske.
- Fange die Tiere ein und bringe sie in ihre Tragekäfige zurück. Lassen Sie die Röhren auf der Kopfhaut; Alle Schläuche fielen auf natürliche Weise in etwa 1 Tag ab.
HINWEIS: In der Anfangszeit haben wir Aceton verwendet, um den Kleber aufzulösen und die Tube nach den Aufnahmesessions zu entfernen. Es gab jedoch auch Fälle von Hautverletzungen; Daher brachten wir die Tiere anschließend in ihre Heimatkäfige zurück, ohne den Schlauch zu entfernen. In den Dutzenden von Experimenten, die wir bisher durchgeführt haben, haben Weißbüschelaffen kein Interesse an den entfernten Röhren gezeigt, und es hat nie eine versehentliche Einnahme gegeben. - Reiz
- Zeichnen Sie natürliche, einfache und zusammengesetzte Rufe im Gefangenschafts- oder Versuchsraum von Weißbüschelaffen auf, die in nachfolgenden EEG-Aufzeichnungen nicht verwendet werden. Extrahieren Sie drei speziesspezifische einfache und zusammengesetzte Aufrufe (Phee-, Tsik-Ek- und Tsik-String5-Aufrufe ) aus den aufgezeichneten Dateien.
- Erzeugen Sie zusätzlich zu den Rufreizen mit einer Funktion in der Programmiersoftware weißes Rauschen und verwenden Sie dieses als Stimulus.
- Um diesem Protokoll zu folgen, verwenden Sie im Experiment drei auditive Dateien (16 Bit, 48 kHz) mit Weißbüschelaffen-Rufen. Steuern Sie die Aufgabe mit einem benutzerdefinierten Skript.
HINWEIS: Jeder Block enthält 50 Aufrufe für jeden Stimulus, also insgesamt 200 Aufrufe. Jeder Aufnahmeblock dauert ca. 10 Minuten. Jeder Teilnehmer muss zwei Blöcke absolvieren. Das Intervall zwischen den Anrufen beträgt 3 s. Von den vier Audio-Stimulus-Dateien (siehe Ergänzende Datei 1) war der Phee-Ruf-Stimulus ungefähr 2 s lang, während die anderen drei ungefähr 1 s lang waren. Dies lag daran, dass ein einzelner Phee-Ruf immer noch ein lang anhaltender Anruf ist (Abbildung 1D). - In jeder Sound-Stimulus-Datei enthält der rechte Kanal den Weißbüschelaffen-Ruf oder die Geräuschdaten, und der linke Kanal enthält das Triggersignal für den Beginn des Stimulus. Senden Sie dieses Triggersignal über ein Synchronisationsgerät an das EEG-Aufzeichnungssystem und zeichnen Sie es als Ereigniszeit auf.
8. Datenanalyse
HINWEIS: Der ursprüngliche Code, der in der Programmiersoftware und der Toolbox geschrieben wurde, wurde zur Nachbearbeitung der EEG-Daten verwendet, wie unten beschrieben (Ergänzende Datei 2)37.
- Vorverarbeitung
- Erneuter Verweis auf die verknüpfte Ohrreferenz.
- Hochpassfilter bei 2 Hz.
- Epoche von 100 ms vor bis 1000 ms nach Stimulusbeginn.
- Baseline-Korrektur auf den Mittelwert der 100-ms-Prästimulus-Periode. Lehnen Sie Artefakte mit einem Kriterium von ±150 μV ab.
- Darstellung von ereigniskorrelierten Potenzialen (ERP)
- Mittelwerten Sie alle Studiendaten für jeden Probanden.
- Erhalten Sie gruppengemittelte Wellenformen, indem Sie den Durchschnitt aller Probanden bilden.
- Um die gemittelten ERPs zwischen Ruftypen und Geräuschstimuli zu vergleichen, wenden Sie eine unidirektionale Varianzanalyse (ANOVA) an, bei der Stimuli als Faktor zwischen den Probanden für die Cz-Reaktion verwendet werden.
- Wenden Sie die Post-hoc-Mehrfachvergleichsanalyse mit der Tukey-Methode an.
- Darstellung der ereigniskorrelierten spektralen Störung (ERSP)
- Berechnen Sie den ERSP, um die mittlere ereignisbezogene Änderung der spektralen Leistung über die Zeit in einem breiten Frequenzbereich unter Verwendung von Gleichung (1) zu visualisieren. Fk (f,t) ist die spektrale Schätzung des Versuchs k bei der Frequenz f und der Zeit t:
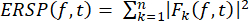 (1)
- Wenden Sie die Zeit-Frequenz-Zerlegung auf die Aktivitäten an, indem Sie sinusförmige Wavelet-Transformationen verwenden, mit drei Zyklen Länge bei der niedrigsten Frequenz (10 Hz), die linear mit der Frequenz bis zu 32 Zyklen bei der höchsten Frequenz (120 Hz) ansteigt.
- Definieren Sie die anfänglichen und transienten Reaktionen in einem Zeitraum von 150 ms nach Stimulusbeginn bei 2-30 Hz und die anhaltenden Reaktionen in einem Zeitraum von 800 ms von 151 bis 950 ms nach Stimulusbeginn bei 40-100 H.
- Um die Unterschiede in den anfänglichen und anhaltenden Reaktionen in Fz und Cz zwischen dem Alter der Probanden und den Ruftypen zu testen, führen Sie eine bidirektionale ANOVA durch, bei der der Ruftyp als Faktor innerhalb des Subjekts und das Alter als Faktor zwischen den Probanden verwendet wird.
- Berechnen Sie den ERSP, um die mittlere ereignisbezogene Änderung der spektralen Leistung über die Zeit in einem breiten Frequenzbereich unter Verwendung von Gleichung (1) zu visualisieren. Fk (f,t) ist die spektrale Schätzung des Versuchs k bei der Frequenz f und der Zeit t:
Ergebnisse
Zuerst haben wir die durchschnittlichen ereigniskorrelierten Potentiale (ERPs) für jeden auditiven Stimulus bei den Weißbüschelaffen aufgetragen (Abbildung 2). Das auditiv evozierte Potential (AEP) war in der Geräuschbedingung ausgeprägt, was den deutlichen Beginn der Reize widerspiegelt (siehe Abbildung 1D). Um die gemittelten ERPs zwischen Ruftypen und Lärmreizen zu vergleichen, haben wir eine unidirektionale Varianzanalyse (ANOVA) mit Stimuli als Faktor zwischen den Probanden in der Cz-Reaktion angewendet. Wir fanden einen signifikanten Haupteffekt von Stimuli auf die Cz-Aktivität bei 13-18 ms, 28-36 ms bzw. 45-88 ms nach Stimulusbeginn (p < 0,05). Post-hoc-Mehrfachvergleichsanalysen mit Tukeys Methode zeigten, dass der Unterschied zwischen Lärm und anderen Rufen bestand (p < 0,05), aber es gab keinen Unterschied zwischen den Ruftypen der Weißbüschelaffen. Das Ergebnis deutet darauf hin, dass Unterschiede in der Gehirnaktivität je nach Ruftyp nicht allein anhand der ereigniskorrelierten Potentiale beobachtet werden konnten.
Als nächstes führten wir für jedes Subjekt eine Zeit-Häufigkeits-Analyse durch. Abbildung 3 zeigt ein Beispiel für die Zeit-Häufigkeits-Karten für den Tsik-String-Ruf , die von Subjekt R (älter, Abbildung 3A) und Subjekt Y (jünger, Abbildung 3B) aufgenommen wurden. Wir fanden heraus, dass die ereigniskorrelierte spektrale Leistung bei einer niedrigeren Frequenz von etwa 20-50 Hz unmittelbar nach Stimulusbeginn zunahm. Diese Reaktionen waren in der Cz. Im Gegensatz dazu nahm die Leistung des Gamma-Bereichs (über 30 Hz) nach Einsetzen des Stimulus im Vergleich zur Ausgangsperiode ab. Zudem hielt dieser Rückgang 1 s an. Bei älteren Personen über 8 Jahre wurde keine Abnahme der ereigniskorrelierten Leistungsfähigkeit beobachtet. In diesen Beispielen zeigten die älteren Personen eine stärkere anfängliche Reaktion auf den Ruf in der Vertex-Region (Cz), während die jüngeren Personen eine anhaltende Abnahme der γ-Band-Aktivität während der Rufpräsentation zeigten. Die Ergebnisse deuten darauf hin, dass es je nach Alter des Probanden Unterschiede in den anfänglichen und anhaltenden Reaktionen gibt.
Schließlich untersuchten wir die Beziehung zwischen dem Alter der Probanden und der ereigniskorrelierten spektralen Störungsleistung (ERSP) in der anfänglichen Einschwingreaktion (Abbildung 4A) und der anhaltenden Reaktion (Abbildung 4B). Eine bidirektionale ANOVA mit dem Stimulustyp als Faktor innerhalb des Subjekts und dem Alter als Faktor zwischen den Subjekten wurde durchgeführt, um den Beitrag der Art des auditiven Stimulus und des Alters des Probanden zur EEG-Aktivität zu bestimmen. Die anfänglichen, transienten Reaktionen in der Fz zeigten signifikante Haupteffekte des Stimulustyps (F (3,24) = 9,020, p < 0,001) und des Alters (F (8,24) = 3,934, p = 0,004). Es gab jedoch keine signifikante Wechselwirkung zwischen dem Stimulustyp und dem Alter (p = 0,144). In den transienten Reaktionen in Cz gab es einen signifikanten Haupteffekt des Stimulustyps (F (3,24) = 8,533, p < 0,001), aber keinen Effekt des Alters (F (8,24) = 2,215, p = 0,073) und keine Wechselwirkung (p = 0,228). Für anhaltende Reaktionen gab es signifikante Haupteffekte sowohl des Stimulustyps als auch des Alters (F (3,24) = 9,020, p < 0,001; F (8,24) = 3,934, p = 0,004) auf Fz. Es wurde keine signifikante Wechselwirkung beobachtet (P = 0,144). Die anhaltenden Reaktionen in Cz zeigten einen signifikanten Haupteffekt des Stimulustyps (F (3,24) = 8,533, p < 0,001), aber keinen Haupteffekt des Alters (F(8,24) = 2,215, p = 0,073) oder der Interaktion (p = 0,228). Diese Ergebnisse deuten darauf hin, dass im mittleren frontalen Bereich (Fz) die anfänglichen transienten Reaktionen auf Ruf- und Lärmreize mit zunehmendem Alter stark variierten, während die anhaltenden Reaktionen in jüngeren Altersgruppen unterdrückt wurden. Diese können die funktionelle Reifung der Stirnregion widerspiegeln.
Frühere neurophysiologische Studien haben über neuronale Reaktionen im primären auditorischen Kortex während der Vokalisation bei Weißbüschelaffen berichtet 9,38. Darüber hinaus zeigen mehr als die Hälfte dieser Neuronen eine inhibitorische Reaktion, die während der Vokalisation anhält 9,38. Darüber hinaus haben frühere elektrophysiologische Studien an nichtmenschlichen Primaten und Menschen gezeigt, dass eine hohe Gammabandenaktivität im lokalen Feldpotential (LFP) und ECoG gut mit den Feuerraten in Neuronen korreliert 39,40,41,42. Das Kopfhaut-EEG ist eine räumlich-zeitlich geglättete Version des LFP, die über eine Fläche von 1 cm2 oder mehr integriertist 43. Obwohl die High-Gamma-Komponente des EEG eine geringere Korrelation mit den Feuerraten aufweist als LFP und ECoG, geht man davon aus, dass sie das Ausgangssignal als integrierten Bereich von mehreren Zentimetern kodiert. Daher könnte die anhaltende Abnahme der Gammabandenleistung, die in unseren Experimenten bei Cz beobachtet wurde, die Aktivität neuronaler Cluster widerspiegeln, die während der Rufemission eine unterdrückte Aktivität zeigen, die in den auditorischen Kortexen zu finden ist. Im Gegensatz dazu haben frühere elektrophysiologische Studien berichtet, dass mehr Neuronen im frontalen Kortex, hauptsächlich im prämotorischen Kortex, während der Ruflautäußerung erregende Reaktionen zeigen13. Interessanterweise wurde in unseren Experimenten auch dann eine anhaltende inhibitorische Aktivität beobachtet, wenn das Fz im frontalen Bereich platziert wurde, obwohl unterschiedliche neuronale Mechanismen zwischen der stimmlichen Wahrnehmung und der Produktion beobachtet wurden. Eine kürzlich durchgeführte fMRT-Studie hat außerdem mehrere Subregionen im frontalen Kortex, einschließlich des anterioren cingulären Kortex sowie des prämotorischen Kortex, als "stimmliche Flecken" identifiziert, die auf artspezifische Rufe bei Weißbüschelaffen reagieren19. Unsere Ergebnisse spiegeln die gesamte Gehirnaktivität in diesen Regionen wider.
Im aktuellen Experiment haben wir nur Mittellinienpositionen für die Explorationselektroden (Fz, Cz, Pz und Oz) verwendet; daher können wir keine Unterschiede zwischen der rechten und linken EEG-Aktivität der auditiven Verarbeitung erwähnen. In Zukunft müssen wir die Lateralität der neuronalen Aktivität untersuchen, die der Stimmverarbeitung zugrunde liegt.
Frühere Studien haben berichtet, dass eine geringe Gamma-Aktivität im LFP und ECoG durch synaptische Inputs in Pyramidenzellen erzeugt wird. Somit reflektiert eine hohe Gammaaktivität eine Signalkomponente, die näher am Ausgang liegt, während eine niedrige Gammaaktivität diejenigen reflektiert, die näher am Eingang39 liegen. In der vorliegenden Studie beobachteten wir eine vorübergehende Aktivität in den Beta- und niedrigen Gamma-Banden unmittelbar nach der Exposition gegenüber einem Ruf. Diese Reaktionen können sensorische Eingangssignale an den Kortex reflektieren. Der Vorteil unserer Methode besteht darin, dass sie die Gehirnaktivität verschiedener neuronaler Populationen als dynamische Veränderungen mit hoher zeitlicher Auflösung erfassen kann. Unseres Wissens ist dies die erste Studie, die zeigt, wie sich die EEG-Signale der Kopfhaut während der artspezifischen Stimmwahrnehmung bei Weißbüschelaffen verändern. Die vorliegenden Ergebnisse liefern neue Einblicke in die Integration neuronaler Repräsentationen durch Aufzeichnungen einer Vielzahl von Hirnregionen.
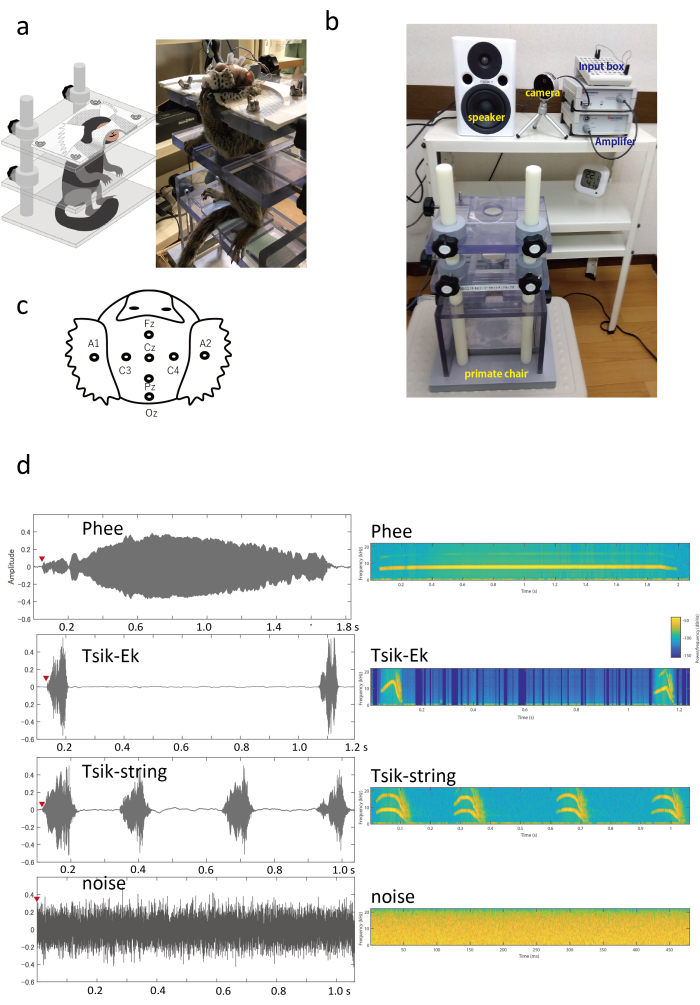
Abbildung 1: Versuchsaufbau. (A) Ein Beispielbild eines Probanden während der Aufnahme. Der Weißbüschelaffe sitzt auf einem Stuhl und der Kopf wird durch eine Maske am Stuhl fixiert. Der Mund wird offen gehalten, um das Atmen und Trinken von Belohnungsflüssigkeiten zu erleichtern, und die Elektroden wurden an der Oberseite des Kopfes befestigt. (B) Ausstattung: Schallreize werden über einen Lautsprecher dargestellt. Außerdem wurden ein Verstärker, eine Elektrodeneingangsbox und eine Überwachungskamera installiert. (C) Position der Elektroden: Die Elektroden wurden gemäß dem Internationalen 10-20-System auf Fz, Cz, Pz, Oz, A1 und A2 platziert. Wir definierten die Position der Elektroden anhand der Inion-, Nasion- und bilateralen präaurikulären Punkte als anatomische Orientierungspunkte. Als Masseelektrode wurde die Elektrode C3 oder C4 verwendet. (D) Sonogramme (linkes Feld) und Spektrogramme (linkes Feld) für alle Audio-Stimuli. Der Phee-Ruf ist ein einzelner langer Ruf, der weniger als 2 s dauert. Der Tsik-Ek-Ruf ist eine Kombination aus einem Tsik gefolgt von einem Ek. Zwei Sätze des zusammengesetzten Rufs zeigten ungefähr 1 s. Der Tsik-String-Ruf ist ein sich wiederholender Ruf von Tsik5, und vier Tsik wurden ungefähr für 1 s im Stimulus präsentiert. Als Nicht-Ruf-Stimulus verwendeten wir ein weißes Rauschsignal, das von einem benutzerdefinierten Skript erzeugt wurde und etwa 1 s dauerte. Die Latenzen des Tonbeginns wurden mit einem digitalen Audio-Editor visuell überprüft. Die roten Pfeile zeigen jede Latenz an, der Phee-Aufruf 49 ms, der Tsik-Ek-Aufruf 35 ms, der Tsik-String-Aufruf 16 ms und das weiße Rauschen 0 ms. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
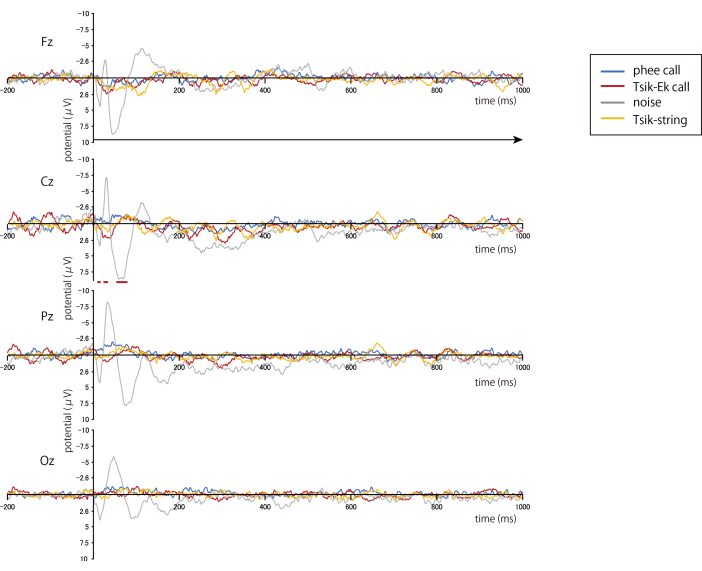
Abbildung 2: Grand-Averaged-Event-bezogene Potenziale für die Phee-, Tsik-Ek- und Tsik-String-Rufe und das Rauschen . (n = 9) Die Aktivität wurde auf den Beginn jedes Rufs oder des weißen Rauschens ausgerichtet. Der schwarze horizontale Pfeil zeigt die Periode für die Stimuluspräsentation an. Der Phee-Ruf dauerte etwa 2 s, der Rest dauerte 1 s. Die roten horizontalen Linien bei Cz zeigen die Perioden mit signifikanten Unterschieden zwischen den auditiven Reizen. Alle diese Rufe betrafen den Noise und die anderen Anrufe, und es gab keine Unterschiede zwischen den Anrufen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
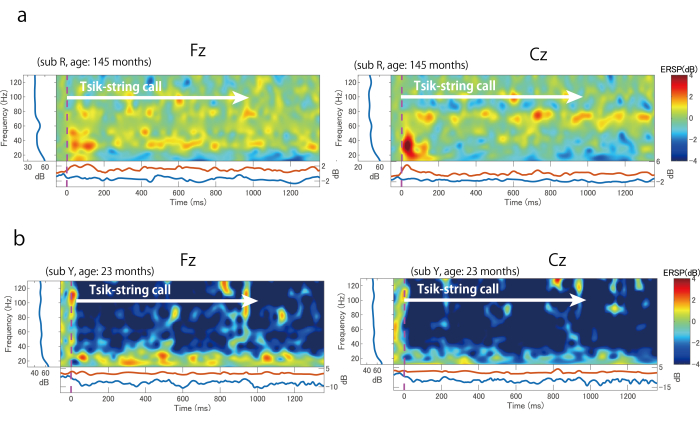
Abbildung 3: Beispiel für Zeit-Häufigkeits-Karten für Rufe. (A) Die ERSP-Karte für den Tsik-String-Ruf bei Subjekt R (145 Monate alt); (B) Die EPSP-Karte für denselben Tsik-String-Aufruf bei Subjekt Y (23 Monate alt). Das linke und rechte Feld zeigen die von den Fz- bzw. Cz-Elektroden aufgezeichneten Daten. Die roten vertikalen Linien zeigen den Zeitpunkt des Beginns der Hördatei an, nicht den Beginn des Anrufs. Abkürzung: EPSP = ereigniskorrelierte spektrale Störung. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
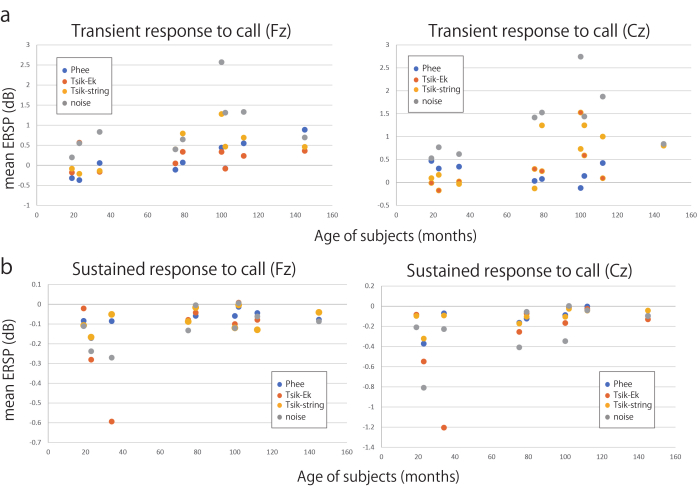
Abbildung 4: Beziehung zwischen der mittleren ereigniskorrelierten Leistung und dem Alter der Probanden. (A) Beziehung zwischen der mittleren ereigniskorrelierten Leistung im α- und β-Band und dem Alter der Probanden. Die mittlere ERSP-Leistung wurde bei 8-29 Hz über einen Zeitraum von 1-150 ms nach jedem Stimulusbeginn im Vergleich zu denen in der Baseline-Periode (-200 bis 0 ms vor Stimulusbeginn) berechnet. Das linke und rechte Feld zeigen die von den Fz- bzw. Cz-Elektroden aufgezeichneten Daten. (B) Beziehung zwischen der mittleren ereignisbezogenen Leistung im γ-Band und dem Alter der Probanden. Die mittlere ERSP-Leistung wurde bei 30-100 Hz aus einem Zeitraum von 151-950 ms nach jedem Stimulusbeginn im Vergleich zu denen in der Baseline-Periode (-200 bis 0 ms vor Stimulusbeginn) berechnet. Negative ERSP-Werte deuten also auf eine Abnahme der Leistung im Vergleich zu der vor der Stimuluspräsentation hin. Abkürzung: ERSP = ereigniskorrelierte spektrale Störung. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Ergänzende Datei 1: Eine ZIP-Datei mit vier Audiodateien, die in den Experimenten verwendet wurden. Die PH.wav Datei enthält einen Stimulus mit einem langen Phee-Ruf ; TE.wav enthält zwei Tsik-Ek-Aufrufe mit einem Intervall zwischen ihnen; MB.wav enthält einen Tsik-String-Call-Stimulus mit vier aufeinanderfolgenden Tsik (auch Mobbing-Call genannt); NO.wav enthält ein programmgeneriertes weißes Gaußsches Rauschen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Datei 2: Eine ZIP-Datei mit Nachbearbeitungscode. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Zu beachtende Punkte zur Anästhesie
Sowohl die Verabreichung von Ketamin als auch von Xylazin wurde versucht, und obwohl diese schmerzlindernd sind und daher für lange, schmerzhafte Aufgaben geeignet sind, neigen Weißbüschelaffen dazu, ohne Sauerstoffinhalation eine Abnahme des Blutsauerstoffgehalts zu erfahren44. Kurz gesagt, Alfaxalon eignet sich wahrscheinlich am besten für schmerzfreie Aufgaben wie die Rasur oder die Herstellung von Masken. Darüber hinaus wäre für die Rasur, die nur 10-15 Minuten dauert, eine Inhalationsanästhesie am besten geeignet. Isofluran wurde während der Intubation aufgrund seiner kurzen Dauer und geringen Konzentration (ca. 1%) nicht angewendet.
Vorteile der EEG-Messung
Das Kopfhaut-EEG ist eine Methode zur Aufzeichnung der Gehirnaktivität durch die Haut, den Schädel und das Unterhautgewebe, die eine geringere räumliche Auflösung aufweist als Aufzeichnungsmethoden, die auf einzelne Neuronen oder intrakranielle Elektroden mit höherer räumlicher Auflösung abzielen. Trotz dieser Nachteile bietet die Messung des Kopfhaut-EEG bei nichtmenschlichen Primaten mehrere Vorteile. Erstens ist die Methode nicht-invasiv und verletzt die Tiere nicht. Zum Beispiel kann man die Gehirnaktivität von sehr wertvollen Tiermodellen einer Krankheit messen, die mit einem sehr schwierigen gentechnischen Verfahren erstellt wurden. In solchen Fällen können diese Techniken sicher verwendet werden, um die Gehirnaktivität zu messen, ohne dass ein chirurgischer Eingriff erforderlich ist. Diese Methode ermöglichte es uns nämlich, neuronale Daten von ein und demselben Probanden über einen langen Zeitraum ohne Verletzungen zu erfassen. Zudem kann die Anzahl der Probanden im Vergleich zu invasiven neurophysiologischen Methoden erhöht werden, da dies einfacher und weniger zeitaufwendig ist. Zweitens können EEG-Daten, die mit dieser Technik von nichtmenschlichen Primaten gewonnen wurden, direkt mit zuvor erhaltenen menschlichen EEG-Daten verglichen werden, die das gleiche Verhaltensparadigma wie Menschen verwenden. Dieser Vorteil ermöglichte es uns, die kognitive neuronale Aktivität aus evolutionärer Sicht zu untersuchen. Drittens ermöglicht unsere Aufnahmemethode Aufnahmen von wachen Primaten. Anästhetika schwächen die kortikale Aktivität signifikant, obwohl die Auswirkungen der Abschwächung, der Grad und das Muster der Hemmung je nach den Mitteln variieren. Mit dieser Methode kann die Gehirnaktivität im Wachzustand aufgezeichnet werden, ohne dass Medikamente Einfluss nehmen. Darüber hinaus kann diese Technik durch die Verabreichung von Medikamenten, die auf das zentrale Nervensystem wirken, und die Beobachtung von Veränderungen in der Gehirnaktivität in Experimenten mit neuronalen Mechanismen angewendet werden.
Die funktionelle Bildgebung des Gehirns ist eine weitere nicht-invasive Methode zur Erforschung der Gehirnmechanismen, die mit der Stimmverarbeitung bei Menschen und nichtmenschlichen Primaten verbunden sind. Jüngste technologische Fortschritte haben die Anwendung von fMRT bei Tieren im wachen Zustand ermöglicht. Die funktionelle Bildgebung des Gehirns hat den Vorteil, dass sie eine Ganzhirnexploration mit hoher räumlicher Auflösung ermöglicht. Allerdings sind die Geräte und ihre Betriebskosten teuer in der Installation und Wartung. Umgekehrt hat das EEG den Vorteil einer hohen zeitlichen Auflösung und zeigt eine dynamischere frequenzspezifische Gehirnaktivität. Darüber hinaus hat das Gerät relativ niedrige Kosten und eine hohe Tragbarkeit und kann von einem einzigen Experimentator durchgeführt werden. Darüber hinaus konnten verschiedene Reize und Geräte leicht eingeführt werden. Die Nutzung dieser Methoden und die Integration von Erkenntnissen aus verschiedenen Techniken wird ein detaillierteres Verständnis der neuronalen Mechanismen ermöglichen, die an der Stimmwahrnehmung bei Weißbüschelaffen beteiligt sind.
Vergleich mit Daten von Menschen oder Makaken
Im EEG müssen die im Gehirn erzeugten Signale die Dura mater, das Unterhautgewebe und den Schädel passieren, bevor sie auf der Kopfhaut aufgezeichnet werden. Diese Gewebe fungieren als Tiefpassfilter. Insbesondere hochfrequente Anteile wie Spikes werden im Vergleich zu den Alpha- und Beta-Band-Anteilen deutlich abgeschwächt. Daher können im Gegensatz zur Elektrokortikographie (ECoG) einige Bestandteile der Gehirnaktivität auf der Kopfhaut nicht nachgewiesen werden. Dies ist eine Einschränkung des Kopfhaut-EEG. Weißbüschelaffen haben einen dünneren Schädel, ein dünneres Unterhautgewebe und eine dünnere Dura mater als Makaken und Menschen, während auch die Größe des Kopfes kleiner ist. Daher ist beim Vergleich der bei Menschen und Makaken erzielten Ergebnisse Vorsicht geboten. So können beispielsweise Signale, die aus dem tiefen Gehirn stammen, wie z. B. dem Hirnstamm, aufgrund der geringeren Dämpfungsrate und des relativ geringen Abstands zwischen Signalquelle und Elektroden als relativ große Signale auf der Kopfhaut aufgezeichnet werden.
Darüber hinaus haben Weißbüschelaffen, wenn überhaupt, nur sehr wenige flache zerebrale Sulci. Damit unterscheiden sie sich deutlich vom Menschen, der viele Sulci hat und bei dem die Hirnrinde als Gyrus verinnerlicht ist. Die Anzahl und Tiefe der zerebralen Sulci unterscheidet sich bei Menschen, Makaken und Weißbüschelaffen. Elektrische Signale werden senkrecht zum Kortex erzeugt und mit Elektroden gemessen, die über der Hirnwindung platziert sind, wo die apikalen Dendriten der Pyramidenneuronen, die die Hauptquellen für EEG-Signale sind, senkrecht zu den Elektroden ausgerichtet sind. In den Sulci werden Signale gedämpft und auf entfernte Elektroden projiziert, da sie horizontal zur Hirnoberfläche erzeugt werden. Beim Vergleich der Ergebnisse beim Menschen mit denen bei Makaken und Weißbüschelaffen ist es notwendig, die Lage der EEG-Aufzeichnungen und die Anatomie des Bereichs zu berücksichtigen.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Diese Arbeit wurde unterstützt durch das Hakubi-Projekt der Universität Kyoto, Grant-in-Aid for Challenging Research (Pioneering) (Nr. 22K18644), Grant-in-Aid for Scientific Research (C) (Nr. 22K12745), Grant-in-Aid for Scientific Research (B) (Nr. 21H02851) und Grant-in-Aid for Scientific Research (A) (Nr. 19H01039). Wir bedanken uns bei Editage (www.editage.jp) für das Lektorat in englischer Sprache.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Alfaxalone | Meiji | Alfaxan | |
| Amplifier Brain | Products | BrainAmp | |
| Atropin | Fuso Pharmaceutical Industries | Atropin Sulfate Injection | |
| Audio Editor | Adobe | Adobe Audition | |
| Datenverarbeitungssoftware | MathWorks | MATLAB | Version R2023a |
| Datenverarbeitungs-Toolbox | University of California-SanDiego | EEGLAB | |
| Datenverarbeitungs-Toolbox | University of California-Davis | ERPLAB | |
| Elektrorasierer | Panasonic | ER803PPA-Elektrode | |
| Unique Medical | UL-3010 | AgCl-beschichtet (kundenspezifisch) | |
| Elektrodengel | Neurospec AG | V16 SuperVisc | |
| Elektroden-Eingabebox | Gehirn Produkte | EIB64-DUO | 64ch |
| Kleber | 3M | Scotch 7005S Haarentfernungscreme | |
| Kracie | Epilat für empfindliche Haut | ||
| Isofluran | Bussan Tiergesundheit | ds isofluran | |
| Flüssiggummi | San-ei Yakuhin Boeki | Arabisch Call SS | Kaugummi arabisch + Wasser |
| Flüssige Ernährung | Nestlé Health Science Company | Isocal 1.0 Junior | Polymer Formel |
| Maropitant | Zoetis | Cerenia injizierbare Lösung | |
| Monitor Kamera | Intel | RealSense LiDAR Kamera L515 | |
| Affenpellets | Orientalische Hefe | SPS | |
| Primate Stuhl | Natsume Seisakusho | Bestellung hergestellt | |
| Pulsoximeter | Covident | Nellcor | PM10N |
| Hautvorbereitung Nudeln | Mammendorfer Institut fü r Physik und Medizin | NeuPrep | |
| Slicon Tube | AsONE& | Phi; 4 x 7mm | |
| Lautsprecher | Fostex | PM0.3 | |
| Synchronisationsgerät | Brain Vision | StimTrak | |
| Thermoplastische Maske | CIVCO | MTAPU Typ Uniframe Thermoplastische Maske 2,4mm |
Referenzen
- Miller, C. T., et al. Marmosets: A neuroscientific model of human social behavior. Neuron. 90 (2), 219-233 (2016).
- Okano, H., Hikishima, K., Iriki, A., Sasaki, E. The common marmoset as a novel animal model system for biomedical and neuroscience research applications. Semin Fetal Neonatal Med. 17 (6), 336-340 (2012).
- t'Hart, B. A., Abbott, D. H., Nakamura, K., Fuchs, E. The marmoset monkey: a multi-purpose preclinical and translational model of human biology and disease. Drug Discov Today. 17 (21-22), 1160-1165 (2012).
- Bezerra, B. M., Souto, A. Structure and usage of the vocal repertoire of Callithrix jacchus. Int J Primatol. 29 (3), 671-701 (2008).
- Agamaite, J. A., Chang, C. J., Osmanski, M. S., Wang, X. A quantitative acoustic analysis of the vocal repertoire of the common marmoset (Callithrix jacchus). J Acoust Soc Am. 138 (5), 2906-2928 (2015).
- Pistorio, A. L., Vintch, B., Wang, X. Acoustic analysis of vocal development in a New World primate, the common marmoset (Callithrix jacchus). J Acoust Soc Am. 120 (3), 1655-1670 (2006).
- Grijseels, D. M., Prendergast, B. J., Gorman, J. C., Miller, C. T. The neurobiology of vocal communication in marmosets. Ann N. Y. Acad Sci. 1528 (1), 13-28 (2023).
- Eliades, S. J., Wang, X. Neural substrates of vocalization feedback monitoring in primate auditory cortex. Nature. 453 (7198), 1102-1106 (2008).
- Eliades, S. J., Wang, X. Comparison of auditory-vocal interactions across multiple types of vocalizations in marmoset auditory cortex. J Neurophysiol. 109 (6), 1638-1657 (2013).
- Eliades, S. J., Wang, X. Contributions of sensory tuning to auditory-vocal interactions in marmoset auditory cortex. Hear Res. 348, 98-111 (2017).
- Eliades, S. J., Wang, X. Neural correlates of the lombard effect in primate auditory cortex. J Neurosci. 32 (31), 10737-10748 (2012).
- Tsunada, J., Wang, X., Eliades, S. J. Multiple processes of vocal sensory-motor interaction in primate auditory cortex. Nat Commun. 15 (1), 3093(2024).
- Miller, C. T., Thomas, A. W., Nummela, S. U., de la Mothe, L. A. Responses of primate frontal cortex neurons during natural vocal communication. J Neurophysiol. 114 (2), 1158-1171 (2015).
- Roy, S., Zhao, L., Wang, X. Distinct neural activities in premotor cortex during natural vocal behaviors in a New World Primate, the common marmoset (Callithrix jacchus). J Neurosci. 36 (48), 12168-12179 (2016).
- Wang, X., Merzenich, M. M., Beitel, R., Schreiner, C. E. Representation of a species-specific vocalization in the primary auditory cortex of the common marmoset: temporal and spectral characteristics. J Neurophysiol. 74 (6), 2685-2706 (1995).
- Zeng, H. -h, et al. Distinct neuron populations for simple and compound calls in the primary auditory cortex of awake marmosets. National Science Review. 8 (11), nwab126(2021).
- Sadagopan, S., Temiz-Karayol, N. Z., Voss, H. U. High-field functional magnetic resonance imaging of vocalization processing in marmosets. Sci Rep. 5, 10950(2015).
- Kato, M., et al. Individual identity and affective valence in marmoset calls: in vivo brain imaging with vocal sound playback. Anim Cogn. 21 (3), 331-343 (2018).
- Jafari, A., et al. A vocalization-processing network in marmosets. Cell Rep. 42 (5), 112526(2023).
- Papanicolaou, A. C., et al. Differential brain activation patterns during perception of voice and tone onset time series: a MEG study. Neuroimage. 18 (2), 448-459 (2003).
- Capilla, A., Belin, P., Gross, J. The early spatio-temporal correlates and task independence of cerebral voice processing studied with MEG. Cereb Cortex. 23 (6), 1388-1395 (2012).
- Belin, P., Zatorre, R. J., Lafaille, P., Ahad, P., Pike, B. Voice-selective areas in human auditory cortex. Nature. 403 (6767), 309-312 (2000).
- Perrodin, C., Kayser, C., Abel, T. J., Logothetis, N. K., Petkov, C. I. Who is that? Brain networks and mechanisms for identifying individuals. Trends Cogn Sci. 19 (12), 783-796 (2015).
- Pernet, C. R., et al. The human voice areas: Spatial organization and inter-individual variability in temporal and extra-temporal cortices. Neuroimage. 119, 164-174 (2015).
- Chen, X., Pan, Z., Wang, P., Zhang, L., Yuan, J. EEG oscillations reflect task effects for the change detection in vocal emotion. Cogn Neurodyn. 9 (3), 351-358 (2015).
- Hiyoshi-Taniguchi, K., et al. EEG correlates of voice and face emotional judgments in the human brain. Cogn Comput. 7 (1), 11-19 (2015).
- Lévêque, Y., Schön, D. Listening to the human voice alters sensorimotor brain rhythms. PloS One. 8, e80659(2013).
- Liu, T., et al. Electrophysiological insights into processing nonverbal emotional vocalizations. NeuroReport. 23, 108-112 (2012).
- Bruneau, N., et al. Early neurophysiological correlates of vocal versus non-vocal sound processing in adults. Brain Res. 1528, 20-27 (2013).
- Flinker, A., et al. Single-Trial speech suppression of auditory cortex activity in humans. J Neurosci. 30, 16643-16650 (2010).
- Greenlee, J. D. W., et al. Human auditory cortical activation during self-vocalization. PloS One. 6 (3), e14744(2011).
- Itoh, K., Konoike, N., Iwaoki, H., Igarashi, H., Nakamura, K. A novel "dip-in electrode" method for electrode application to record noninvasive scalp electroencephalograms and evoked potentials in an awake common marmoset. Neuroimage: Reports. 2 (3), 100116(2022).
- Itoh, K., et al. Cerebral cortical processing time is elongated in human brain evolution. Sci Rep. 12 (1), 1103(2022).
- Itoh, K., Nejime, M., Konoike, N., Nakamura, K., Nakada, T. Evolutionary elongation of the time window of integration in auditory cortex: macaque vs. human comparison of the effects of sound duration on auditory evoked potentials. Front Neurosci. 13, 630(2019).
- Itoh, K., Iwaoki, H., Konoike, N., Igarashi, H., Nakamura, K. Noninvasive scalp recording of the middle latency responses and cortical auditory evoked potentials in the alert common marmoset. Hear Res. 405, 108229(2021).
- Itoh, K., Nejime, M., Konoike, N., Nakada, T., Nakamura, K. Noninvasive scalp recording of cortical auditory evoked potentials in the alert macaque monkey. Hear Res. 327, 117-125 (2015).
- Konoike, N., et al. Comparison of noninvasive, scalp-recorded auditory steady-state responses in humans, rhesus monkeys, and common marmosets. Sci Rep. 12 (1), 9210(2022).
- Eliades, S. J., Miller, C. T. Marmoset vocal communication: Behavior and neurobiology. Dev Neurobiol. 77 (3), 286-299 (2017).
- Ray, S., Hsiao, S. S., Crone, N. E., Franaszczuk, P. J., Niebur, E. Effect of stimulus intensity on the spike-local field potential relationship in the secondary somatosensory cortex. J Neurosci. 28 (29), 7334-7343 (2008).
- Leonard, M. K., et al. Large-scale single-neuron speech sound encoding across the depth of human cortex. Nature. 626 (7999), 593-602 (2024).
- Dubey, A., Ray, S. Comparison of tuning properties of gamma and high-gamma power in local field potential (LFP) versus electrocorticogram (ECoG) in visual cortex. Sci Rep. 10 (1), 5422(2020).
- Ray, S., Crone, N. E., Niebur, E., Franaszczuk, P. J., Hsiao, S. S. Neural correlates of high-gamma oscillations (60-200 Hz) in Macaque local field potentials and their potential implications in electrocorticography. Journal Neurosci. 28 (45), 11526-11536 (2008).
- Buzsáki, G., Anastassiou, C. A., Koch, C. The origin of extracellular fields and currents--EEG, ECoG, LFP and spikes. Nat Rev Neurosci. 13 (6), 407-420 (2012).
- Konoike, N., Miwa, M., Ishigami, A., Nakamura, K. Hypoxemia after single-shot anesthesia in common marmosets. J Med Primatol. 46 (3), 70-74 (2017).
Nachdrucke und Genehmigungen
