Dieser Artikel behandelt die Verfahren zur Induktion von Stressreaktionen unter Verwendung von körperlichem Restrain-Stress bei Mäusen und Ratten. Weitere Überlegungen, die bei der Auswahl und Verwendung von Restraint in Nagetiermodellen zu beachten sind, werden diskutiert.
Methodenartikel
Fixierung, um Stress bei Mäusen und Ratten zu induzieren
In diesem Artikel
Zusammenfassung
Zusammenfassung
Bei allen Tierarten löst die Exposition gegenüber Stressbedingungen Stressreaktionen aus. Eine Methode, um die Auswirkungen von Stress anhand von Nagetiermodellen zu untersuchen, ist das Restraint-Stress-Verfahren. Stress wird seit Jahrzehnten eingesetzt, um Veränderungen in Physiologie, Genetik, Neurobiologie, Immunologie und anderen Systemen zu untersuchen, die von Stress beeinflusst werden. Aufgrund der einfachen Durchführung des Verfahrens, der geringen Kosten und der zahlreichen Modifikationen zur Skalierung für die Intensität und Dauer der Stressexposition wurde in einer umfangreichen Literatur von Studien Rückhaltestress bei Mäusen und Ratten verwendet. Als Beispiel präsentiert diese Studie bereits veröffentlichte Daten, die den Einfluss von Restraint-Stress bei transgenen Mäusen auf den Corticosteronspiegel im Plasma und die optogenetisch induzierte Noradrenalinfreisetzung zeigen. Akuter Fixierungsstress erhöhte den Corticosteronspiegel im Plasma, doch war dieser Effekt bei Mäusen nach wiederholtem Fesselstress abgestumpft. Die stimulierte Noradrenalinfreisetzung im Bettkern der Stria terminalis war jedoch nur in der Gruppe mit wiederholtem Restraint-Stress erhöht. Diese Daten unterstreichen wichtige Überlegungen zu Rückhalteparametern für abhängige Maße. Zusätzliche Beschreibungen der Rückhaltebelastung bei Ratten sind ebenfalls zum Vergleich enthalten. Abschließend wird der Einfluss der Parameter der Fixierung (z.B. akut vs. chronisch) und der Eigenschaften der Probanden (Stamm, Geschlecht, Alter) diskutiert.
Einleitung
Aufgrund der universellen Erfahrung von Stress ist die Erforschung der Mechanismen veränderter Reaktionen nach Stressexposition seit mehreren Jahrzehnten ein konsequentes Forschungsgebiet1. Diese Untersuchungen haben begonnen, Aspekte von Stress herauszufiltern, die vorteilhaft sein könnten, um die Anpassungsfähigkeit und Reaktionsfähigkeit auf akute Stressoren aus Stresserfahrungen zu erhöhen, die maladaptive Veränderungen der physiologischen und Verhaltensfunktionen induzieren, die oft aus einer längeren Exposition gegenüber wiederholten und/oder unvorhersehbaren Stressoren resultieren. Viele dieser Reaktionen auf Stressoren wirken sich auf die Gehirnfunktion, die Hypothalamus-Hypophysen-Nebennieren-Achse (HPA), den sympathischen und parasympathischen Zweig des autonomen Nervensystems und das Immunsystem aus. Die Exposition gegenüber Stressoren führt zu einer erhöhten Freisetzung des Corticotropin-Releasing-Faktors (CRF), um das adrenocorticotrope Hormon (ACTH) und die Glukokortikoidhormone wie Cortisol bei Primaten und vielen anderen Säugetieren und Corticosteron bei Nagetieren zu erhöhen2. Darüber hinaus werden Adrenalin und Noradrenalin in der gesamten Peripherie und im Gehirn als Teil der Reaktion des sympathischen Nervensystems freigesetzt3. Diese chemischen Signale interagieren dann mit einer Reihe physiologischer Systeme wie Immunfunktion, Stoffwechsel, Fortpflanzung und neuronaler Reaktivität4.
Stressige Erfahrungen sind mit einer Vielzahl von Erkrankungen verbunden, darunter eine Zunahme von Angstzuständen und Depressionen, Veränderungen des Lernens und des Gedächtnisses, Beeinträchtigungen der Entscheidungsfindung und der exekutiven Funktion sowie die Anfälligkeit für Substanzkonsumstörungen. Jeder dieser Effekte hängt sowohl von den Parametern des Stressors als auch von den Merkmalen des Individuums ab, das Stress erlebt4. Die Art des Stressors, ob akut oder chronisch, als kontrollierbar oder unvorhersehbar, verändert die beobachteten Ergebnisse erheblich. Diese Aspekte von Stress scheinen zwischen menschlichen Erfahrungen und Tiermodellen konsistent zu sein. Um Stress in Tierversuchen zu modellieren, muss daher sorgfältig abgewogen werden, um Parameter der Stressexposition auszuwählen, die für die Spezies, das Geschlecht und den Zustand geeignet sind.
Obwohl eine Reihe von Stressoren für Studien mit Nagetieren zur Verfügung stehen (einschließlich psychosozialer Stressoren wie sozialer Isolationsstress oder sozialer Niederlage, pharmakologischer Stressoren wie Cortisol- oder Yohimbin-Verabreichung, physischer Stressoren wie Fußschock und Fixierung sowie multimodaler Stressoren, die Bedingungen kombinieren oder zwischen ihnen wechseln), liegt der Schwerpunkt dieses Manuskripts auf der Verwendung von Restraint-Stress bei Mäusen und Ratten. Fixierungsstress kann gegenüber anderen Stressoren gewählt werden, da er einfach durchzuführen ist, kostengünstig ist, an verschiedene Größen von Nagetieren anpassbar ist, sowohl für akute als auch für langfristige Perioden skalierbar ist und selten zu nachteiligen Schäden für das Subjekt führt5. Obwohl sich dieses Manuskript auf die dauerhaften Veränderungen konzentriert, die durch die Stressbelastung durch Zurückhaltung hervorgerufen werden, verwenden einige Studien die Zurückhaltung bei Nagetieren, um Mechanismen und Verhaltensweisen zu untersuchen, die während der Fixierung auftreten, einschließlich des aktiven Bewältigungsverhaltens, das an der Flucht vor dem Stressor beteiligt ist 6,7,8,9. Das Ziel dieses Manuskripts ist es, methodische Überlegungen zu liefern, um die Auswirkungen von Fixierungsstress auf Mäuse oder Ratten zu bewerten.
Protokoll
Die Experimente und Protokolle wurden vom Institutional Animal Care and Use Committee (IACUC) an der University of North Carolina in Chapel Hill (Mäuse) und der Fairfield University (Ratten) genehmigt und folgen den Richtlinien von NIH10.
1. Restraint-Stress bei Mäusen
HINWEIS: Mäuse bieten eine Reihe von Vorteilen, wenn es darum geht, die Auswirkungen von Stress auf die Physiologie und das neuronale System zu untersuchen. Mit der Prävalenz transgener Mauslinien sind mechanistische Untersuchungen der Wechselwirkungen zwischen Genen und Stressexposition leicht durchführbar. Unabhängig davon, ob transgene oder Wildtyp-Mäuse verwendet werden, wird die Berücksichtigung des Hintergrundstamms empfohlen. Darüber hinaus bieten Mäuse aufgrund ihrer Größe und ihrer sozialen Unterbringung einen Vorteil bei der Raumnutzung gegenüber anderen Arten.
- Exposition gegenüber Restrain-Stress
- Ordnen Sie die Mäuse nach dem Zufallsprinzip den Gruppen Homecage Control, Acute Restraint oder Chronic Restraint zu.
- Bestimmen Sie die Dauer der Stressbelastung. Bei akuten Stressoren verwenden Sie eine einzige Sitzung von 5 Minuten bis 12 Stunden, die im Fixierungsgerät eingeschlossen ist. Bei chronischen Stressoren stellen Sie sicher, dass die Sitzung der Länge des akuten Stressors entspricht, aber täglich für nur 3 Tage und bis zu 21 Tage wiederholt wird.
HINWEIS: Da Mäuse keinen Zugang zu Futter und Wasser haben, während sie sich in der Fixierung befinden, sollten Sie prüfen, ob Tiere, die in Heimkäfigen kontrolliert werden, ebenfalls keinen Zugang zu Futter und Wasser haben sollten. - Modifizieren Sie konische 50-ml-Röhrchen, um Beatmungslöcher hinzuzufügen.
- Verwenden Sie eine Bohrmaschine mit einem 1/8-Zoll-Bit, um die Löcher gleichmäßig um jedes konische Rohr herum zu verteilen und so einen Luftstrom in allen Bereichen des Rohrs zu gewährleisten.
- Platzieren Sie diese Löcher, damit die Maus Zugang zu Luft hat, unabhängig davon, in welche Richtung die Maus im Rohr zeigt. Stellen Sie sicher, dass nach der Modifikation keine scharfen Kanten übrig bleiben.
HINWEIS: Diese modifizierten konischen Röhrchen sollten für die meisten erwachsenen Mäuse (~20-40 g) wirksam sein, dürfen aber kleine/junge Mäuse oder größere Stämme nicht zurückhalten.
- In einem Versuchsraum, der von der Tierhaltung und den Verhaltenstests getrennt ist, wird das Tier, dem die Fixierung zugewiesen ist, in das modifizierte konische Rohr gelegt, wobei die Kappe angebracht ist, um die Maus für die vorgesehene Länge der Fixierung in dem Schlauch zu halten.
HINWEIS: Die Besonderheiten des Designs des Testraums können je nach verfügbarem Platz in der Einrichtung variieren. Der Raum kann Abzüge und andere Laborgeräte und/oder Labortische/-bänke enthalten oder ein leerer Behandlungsraum sein. Unabhängig von der Raumeinrichtung sollte die Umgebung des Fixierraums jedoch auch bei wiederholter Fixierung konsistent bleiben, um kontextinduzierte Veränderungen der Stressreaktionen zu vermeiden11. - Legen Sie das Rückhalterohr waagerecht auf eine ebene Fläche. Sichern Sie das Röhrchen bei Bedarf mit Laborklebeband oder einem Pipettenbecken/Reagenzreservoir, damit es nicht mit der Maus hineinrollt.
HINWEIS: Unter Stressbedingungen erzeugen Mäuse Ultraschalllaute. Überlegen Sie, ob das Studiendesign eine Schallisolierung von anderen fixierten Probanden erfordert12. Corticosteron und andere Marker für Stressreaktionen folgen dem zirkadianen Rhythmus. Daher sollten Überlegungen zu den Lichtverhältnissen und der Zeit des Stressors angestellt werden. In allen Stressgruppen sollte die Fixierung zu einer konsistenten Tageszeit erfolgen, vorzugsweise zu Beginn des Lichtzyklus 13,14,15. Für die hier vorgestellte Studie wurden Mäuse nach dem Einschalten des Lichts etwa 3 Stunden lang fixiert. - Überwachen Sie jedes Tier während des Rückhaltestresses mindestens alle 20 Minuten. Stellen Sie visuell fest, ob das Tier ungewöhnliche Reaktionen zeigt (langsame Atmung, Bewegungsmangel). Falls beobachtet, nehmen Sie die Maus aus dem Rückhalteschlauch, wenden Sie sich an einen Tierarzt und schließen Sie die Maus von der Studie aus.
- Setzen Sie die Maus wieder in den Käfig ein und stellen Sie ihnen Futter und Wasser zur Verfügung.
2. Rückhaltestress bei Ratten
HINWEIS: Als größere Nagetiere haben Ratten Vorteile, die bei der Untersuchung der Auswirkungen von Stress zu berücksichtigen sind. Wie Mäuse haben auch Ratten verschiedene Stämme mit unterschiedlichen Reaktionen auf Stressbelastung16,17. Darüber hinaus erleichtert die erhöhte Größe von Ratten die Verwendung von Ratten mit bestimmten Verhaltensmaßnahmen, z. B. der Selbstverabreichung von Medikamenten.
- Exposition gegenüber Restrain-Stress
- Ordnen Sie die Ratte nach dem Zufallsprinzip den Gruppen Hauskäfigkontrolle, akuter Fixierungsstress oder chronischer Fixierungsstress zu.
- Bestimmen Sie die Dauer der Stressbelastung. Bei akuten Stressoren verwenden Sie eine einzige Sitzung von 5 Minuten bis 12 Stunden, die im Fixierungsgerät eingeschlossen ist. Bei chronischen Stressoren stellen Sie sicher, dass die Sitzung der Länge des akuten Stressors entspricht, aber täglich für nur 3 Tage und bis zu 21 Tage wiederholt wird.
HINWEIS: Da Ratten im Ruhezustand keinen Zugang zu Futter und Wasser haben, ist zu prüfen, ob Tiere zur Käfigkontrolle auch keinen Zugang zu Futter und Wasser haben sollten. - Für ein handelsübliches Rückhalterohr befolgen Sie die unten beschriebenen Schritte.
HINWEIS: Im Handel erhältliche Rückhalteschläuche für Ratten sind erhältlich. Diese Geräte haben eine Vielzahl von Designs, darunter Metalldraht, Behälter und Kunststoff-/Plexiglasrohre mit abgerundetem und flachem Boden. Jede Option ist einfach zu bedienen.- Setzen Sie die Ratte in das Gerät ein, fügen Sie dann einen an die Größe des Motivs angepassten Stecker hinzu und verriegeln Sie ihn. Wenn sie in das Rückhalterohr gelegt wird, stellen Sie sicher, dass die Ratte fest eingesperrt ist, um ein Drehen von Kopf bis Schwanz zu verhindern, aber leicht atmen kann.
HINWEIS: Diese Geräte sind für die Fixierung von Ratten konzipiert und müssen für die Beatmung nicht modifiziert werden. In dieser Studie wird der Schwebeschwanz-Rückhalter (Table of Materials) verwendet, der Saugnäpfe auf einer Plattform unter dem Rohr enthält, um das Gerät zu sichern. Ein zusätzlicher Vorteil dieser Vorrichtung besteht darin, dass der Schwanz außerhalb der Vorrichtung zugänglich ist, um das Subjekt während des Einführens und Entfernens aus dem Schlauch oder der Schwanzvenenblutentnahme während der Fixierung zu kontrollieren.
- Setzen Sie die Ratte in das Gerät ein, fügen Sie dann einen an die Größe des Motivs angepassten Stecker hinzu und verriegeln Sie ihn. Wenn sie in das Rückhalterohr gelegt wird, stellen Sie sicher, dass die Ratte fest eingesperrt ist, um ein Drehen von Kopf bis Schwanz zu verhindern, aber leicht atmen kann.
- In einem Versuchsraum, der von der Tierhaltung und den Verhaltenstests getrennt ist, werden die Animas, denen die Fixierung zugewiesen ist, für die festgelegte Dauer der Fixierung in das Fixierungsrohr gelegt. Legen Sie das Rückhalterohr waagerecht auf eine ebene Fläche.
HINWEIS: Unter Stressbedingungen produzieren Ratten auch Ultraschalllaute. Überlegen Sie, ob das Studiendesign eine Schallisolierung von anderen gefesselten Probanden erfordert. - Überwachen Sie jedes Tier während des Rückhaltestresses mindestens alle 20 Minuten. Stellen Sie visuell fest, ob das Tier ungewöhnliche Reaktionen zeigt (langsame Atmung, Bewegungsmangel). Falls beobachtet, nehmen Sie die Ratte aus dem Rückhalterohr, wenden Sie sich an einen Tierarzt und schließen Sie die Ratte von der Studie aus.
- Bringen Sie die Ratte in den Käfig zurück und verschaffen Sie ihr Zugang zu Futter und Wasser.
3. Bewertungen von Stress
- Messung der HPA-Aktivierung
- Falls angebracht, nach der Exposition gegenüber dem Fixierungsstress oder der Entfernung aus dem Homekäfig die Probanden schnell enthaupten, um das Rumpfblut in heparinisierte Röhrchen zu sammeln.
- Isolierung des Plasmas durch Zentrifugation und Lagerung von Plasmaproben bei -80 °C. Analysieren Sie Corticosteron im Blut mit einem ELISA-Kit (Enzyme-Linked Immunosorbent Assay).
HINWEIS: Obwohl Corticosteron häufig als Messwert für die Schwere der Stressexposition verwendet wird, insbesondere bei akutem Stress, korreliert der Corticosteronspiegel nicht immer mit stressinduzierten Verhaltensänderungen6. Darüber hinaus gewöhnt sich die Reaktion der HPA-Achse, die die Corticosteronfreisetzung reguliert, an die wiederholte Exposition gegenüber demselben Stressor18. Alternativ kann das adrenocorticotrophe Hormon (ACTH) ein zuverlässigeres Maß für die Intensität eines akuten Stressors sein4. Er bleibt nach Beendigung der Stressorexposition etwa eine Stunde lang erhöht, aber starker und anhaltender Stress (ca. > 2 Stunden) kann seine Produktion ermüden.
- Auswirkungen auf das Verhalten
- Beurteilen Sie gegebenenfalls nach der Exposition gegenüber dem Fixstress oder der Entfernung aus dem Hauskäfig die Verhaltensleistung des Nagetiers mit der entsprechenden Verhaltensaufgabe.
HINWEIS: Weitere Informationen zu den Auswirkungen von Zurückhaltung auf verschiedene Verhaltensmodelle finden Sie im Diskussionsbereich.
- Beurteilen Sie gegebenenfalls nach der Exposition gegenüber dem Fixstress oder der Entfernung aus dem Hauskäfig die Verhaltensleistung des Nagetiers mit der entsprechenden Verhaltensaufgabe.
- Neurobiologie
- Alternativ oder zusätzlich kann die neurobiologische Funktion nach Exposition oder Kontrolle von Fixierungsstress beurteilt werden. Eine breite Palette von Assays kann die Auswirkungen von Restrain-Stress auf zelluläre, synaptische und Schaltkreise untersuchen. Implantieren Sie je nach Assay ein In-vivo-Messgerät oder entnehmen Sie Hirngewebe, um die ausgewählte Analyse durchzuführen.
HINWEIS: Die Auswirkungen von Stress auf zelltypspezifische Veränderungen in der Proteinsynthese und epigenetische Modifikationen wurden von McEwen und Kollegen gründlich überprüft1. Diese genetischen und Proteinmodifikationen induzieren Plastizität, um synaptische Verbindungen und Schaltkreise zu verändern. Um diese Studien durchzuführen, entnehmen Sie Hirngewebe nach Stressbelastung und führen Sie genomische, proteomische, ex vivo-Physiologie und andere Analysen durch. Alternativ können neurobiologische Veränderungen durch In-vivo-Messungen wie Mikrodialyse, zyklische Fast-Scan-Voltammetrie (FSCV), Faserphotometrie und andere beurteilt werden. Diese Ansätze erfassen die neurochemische Freisetzung und die neuronale Aktivierung, sowohl nach der Exposition gegenüber Restraint 2,19 als auch jetzt während der Fixierung 8,9,20. Der Werkzeugkasten zur Bewertung der neurobiologischen Mechanismen, die den Auswirkungen von Stress zugrunde liegen, wird schnell erweitert und ermöglicht neue Einblicke in die Komplexität von Stress.
- Alternativ oder zusätzlich kann die neurobiologische Funktion nach Exposition oder Kontrolle von Fixierungsstress beurteilt werden. Eine breite Palette von Assays kann die Auswirkungen von Restrain-Stress auf zelluläre, synaptische und Schaltkreise untersuchen. Implantieren Sie je nach Assay ein In-vivo-Messgerät oder entnehmen Sie Hirngewebe, um die ausgewählte Analyse durchzuführen.
Ergebnisse
In einer zuvor veröffentlichten Studie21 wurden die in diesem Manuskript beschriebenen Restraint-Stress-Verfahren verwendet, um den Einfluss von Restraint-Stress auf die Regulation von Cortisol und Noradrenalin zu bewerten, was unter die breiten Möglichkeiten von Veränderungen in der Neurobiologie fällt, die durch Stress induziert werden, die im Protokoll 3.3 erwähnt werden. In dieser Studie haben wir das oben beschriebene Protokoll für die Fixierung von Mäusen verwendet. Zusätzliche Details, die über den Rahmen des Restrain-Schwerpunkts dieses Artikels hinausgehen, z.B. die Begründung für die Hirnregion, optogenetische Stimulationsparameter oder FSCV, finden Sie in dem referenzierten Manuskript.
Wir verwendeten männliche und weibliche transgene Mäuse (DBH:Cre+/-::Ai32+/-), die Channelrhodopsin selektiv in noradrenergen Neuronen exprimierten, und maßen die stimulierte Noradrenalinfreisetzung im Bettkern der Stria terminalis (BNST) mit ex vivo FSCV21. Die Mäuse wurden, wie in Protokoll 1 beschrieben, akut (2 h) und chronisch (2 h/Tag für 5 Tage) oder zur Käfigkontrolle zu Hause fixiert. Nach der Exposition wurde bei einigen Probanden Blut für die Corticosteron-Analyse entnommen, wie in Protokoll 3.1 beschrieben. Unmittelbar nach akutem Fixierungsstress zeigten die Mäuse erhöhte Corticosteronspiegel, aber die Reaktion war nach wiederholtem Stress abgestumpft (siehe Abbildung 1). Zusätzliche Mäuse wurden verwendet, um den Einfluss von Restraint-Stress auf die Noradrenalinfreisetzung zu bewerten. 24 Stunden nach der letzten Stressexposition wurde schnell Hirngewebe entnommen und in Scheiben geschnitten, um die Noradrenalinfreisetzung im BNST zu erfassen. Interessanterweise hatte die akute Fixierung keinen Einfluss auf die stimulierte Noradrenalinfreisetzung, aber wiederholte Stressexposition führte zu einem signifikanten Anstieg der stimulierten Noradrenalinfreisetzung über alle Stimulationsparameter hinweg (siehe Abbildung 2). Diese Ergebnisse stimmen mit früheren Untersuchungen über den Einfluss von Fixierungsstress auf die Noradrenalinfreisetzung bei Ratten unter Verwendung der in Protokoll 2 beschriebenen Ansätze überein17,22.

Abbildung 1: Corticosteron im Plasma von Heimkäfig-Kontrollen (naiv) und nach akutem (einmalig) und chronischem (wiederholt) Fixierungsstress. Nach einer einzigen 2-stündigen Sitzung mit akutem Fixstress waren die Plasma-Corticosteronspiegel sowohl im Vergleich zu naiven als auch zu wiederholten Stressprobanden erhöht. Die Ergebnisse werden als Mittelwert ± SEM ausgedrückt. N = 5-6 Mäuse pro Gruppe. **p < 0,05, ***p < 0,005. Diese Abbildung wurde mit Genehmigung von Schmidt et al.21 geändert. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
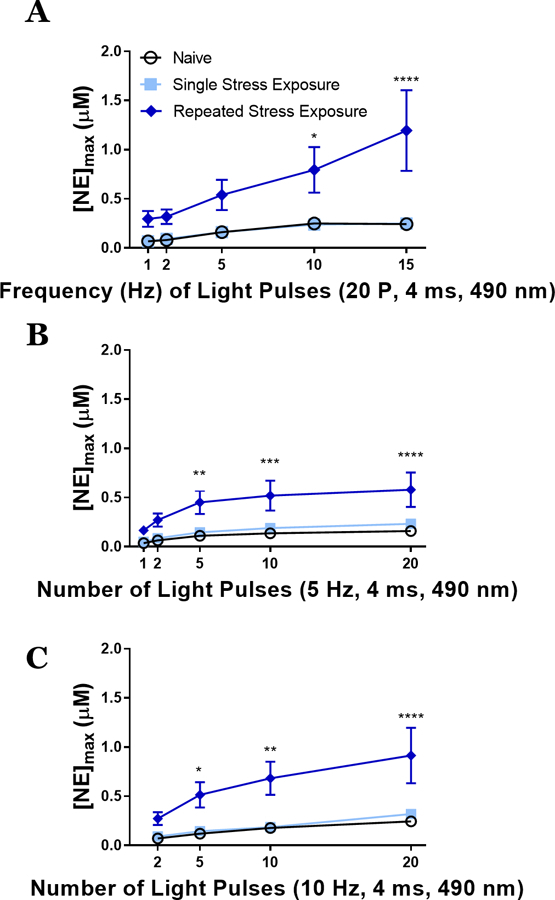
Abbildung 2: Die optogenetisch stimulierte Noradrenalinfreisetzung ist nach chronischem (wiederholtem) Fixierungsstress erhöht. Am Tag nach der letzten Stressexposition wurde eine zyklische Ex-vivo-Fast-Scan-Voltammetrie durchgeführt, um die optogenetisch stimulierte Noradrenalinfreisetzung im Bettkern der Stria terminalis von Mäusen zu messen. (A) Variationen der Frequenz (Hz) von 20 Impulsen (20 P) Stimulationen setzten in der Gruppe mit wiederholtem Stress mehr Noradrenalin frei. (B, C) Schwankungen in der Anzahl der Impulse (2-20) bei einer Stimulationsfrequenz von 5 Hz (B) oder 10 Hz (C) deuteten auf eine höhere Noradrenalinfreisetzung in der Gruppe mit wiederholtem Stress hin. Mittlere ± SEM; n = 5-6 Mäuse/Gruppe mit 7-8 Scheiben/Gruppe. *p < 0,05, **p < 0,05, ***p < 0,005 und ****p < 0,0001. Diese Abbildung wurde mit Genehmigung von Schmidt et al.21 geändert. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Diskussion
Um die Auswirkungen von Stress auf physiologische, neurobiologische und Verhaltensfunktionen in Nagetiermodellen zu untersuchen, müssen Bedingungen verwendet werden, die Stress für Nagetiere erzeugen. Zu diesen Überlegungen gehören die Bedingungen, die Stressreaktionen bei der Person hervorrufen. Fixierung ist ein validiertes Verfahren, um physiologische und verhaltensbezogene Reaktionen bei Nagetieren hervorzurufen, die den Stresseffekten beim Menschen entsprechen. Unter Verwendung einer ähnlichen Methodik wie diesem Protokoll wurde die Fixierung verwendet, um eine Reihe von molekularen, zellulären, endokrinen und physiologischen Reaktionen im Zusammenhang mit Modellen psychiatrischer Störungen zu bewerten, einschließlich Angstzuständen, Depressionen, Schmerzen und Substanzgebrauchsstörungen 1,19. Hier werden Daten aus einer veröffentlichten Studie als Beispiel für Fixierung bei Nagetieren präsentiert, aber die Auswirkungen der Fixierung erstrecken sich über dieses spezielle Beispiel hinaus auf eine Vielzahl von abhängigen Maßnahmen. Die Fixierung könnte für die Verwendung als Stressor ausgewählt werden, da sie bei Mäusen und Ratten leicht durchzuführen ist, kostengünstig zu etablieren und anpassungsfähig ist, um verschiedene Niveaus von Stressreaktionen in Abhängigkeit von den verwendeten Parametern zu induzieren.
Im Vergleich zu anderen stressauslösenden Ansätzen hat die Fixierung einige Einschränkungen, die beim Studiendesign zu berücksichtigensind 4,23. Bemerkenswert ist, dass Stress durch Zurückhaltung nicht immer zu Verhaltensänderungen führt, die bei anderen körperlichen Stressoren wie intermittierendem Fußschock beobachtet werden24. Diese Inkonsistenzen können auf den Vorteil der Rückhaltung zurückzuführen sein, dass sie in einer Vielzahl von Umgebungen auftreten kann, während die Fußschockierung eher auf eine Prüfkammer beschränkt ist, die mit Stoßgitterböden ausgestattet ist. Stresskontexte beeinflussen die daraus resultierenden Effekte stark11. Darüber hinaus ist die Gefangenschaft in einem herkömmlichen Rückhalterohr oder -gerät ein Nachteil, da sie den Zugang zum Subjekt während der Fixierung einschränkt. Neuere Rückhaltevorrichtungen wurden entwickelt, z.B. "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)", um diese Einschränkung zu überwinden und ein Tethering für die neurobiologische Datenerfassung während der Fixierungssitzungen zu ermöglichen 8,9,20. Ein anderer Ansatz, um dieses Hindernis zu überwinden, verwendet Immobilisierungsstress als eine ähnliche Technik wie die Fixierung - oft werden Immobilisierung und Fixierung synonym verwendet, aber mit wichtigen Unterschieden25. Bei der Immobilisierungsbelastung werden die Arme, Beine und der Kopf eines Tieres an einer Oberfläche befestigt, während bei der Fixierung eine restriktive Vorrichtung platziert wird. Als solcher schränkt Immobilisierungsstress die Bewegung ein und bietet gleichzeitig Zugang zum Probanden für die Entnahme von Blut, Liquor, Pupillenreaktionen oder anderen physiologischen Effekten, die für die Stressforschung von Interesse sein könnten. Zu den weiteren Stressfaktoren, die zur Induktion von Stress bei Nagetieren eingesetzt wurden, gehören Kältestress in der Umwelt, die Verabreichung von pharmakologischen Wirkstoffen wie Corticosteron oder Yohimbin, ethologisch relevante Erfahrungen mit sozialer Niederlage oder Geruchsexposition von Raubtieren und multimodaler Stress wie chronischer unvorhersehbarer Stress (CUS). Diese alternativen Stressmodalitäten werden aufgrund ihrer Vorteile bei der Modellierung spezifischer Stressaspekte für den Einsatz ausgewählt. Obwohl beispielsweise Fixierung ein Aspekt von CUS-Modellen bei Mäusen und Rattenist 26, können sich die Auswirkungen von CUS von denen unterscheiden, die durch eine äquivalente Exposition gegenüber chronischem Fixierungsstress hervorgerufen werden27,28. Die Vorhersagbarkeit der wiederholten Fixierung reduziert die Reaktion auf zukünftige Fixierungsepisoden, was die Wirksamkeit von homotypischem Fixierungsstress einschränkt. Als Alternative rotieren CUS und andere heterotypische Stressmodelle Stressoren oder Kontexte, um die Gewöhnung zu minimieren11,18. Diese unvorhersehbaren Stressmodelle können Aspekte menschlicher psychiatrischer Erkrankungen besser modellieren, um Kontrollverlust und Erwartungsverlust vollständig zu erfassen. Ein weiterer Nachteil der Zurückhaltung, den andere Stressmodalitäten besser angehen können, ist der soziale Beitrag zur Stressanfälligkeit und Stresspufferung 29,30,31. Nagetiere und Menschen sind soziale Wesen mit artverwandten Beziehungen und Hierarchien. Obwohl der Stress der Zurückhaltung die Sozialisation nicht beinhaltet, stellen psychosoziale Stressoren wie der Stress der sozialen Niederlage einen ethologisch relevanten Stressor für Nagetiere dar 32,33,34.
Bei der Verwendung von Restraint ist die Intensität und Wiederholung der Verabreichung ein Parameter, der manipuliert werden kann5. Um eine robustere Rückhaltespannung zu erzeugen, kann das Studiendesign eine längere Zeitspanne in der Rückhaltevorrichtung erfordern. Nur 5 Minuten oder 12 Stunden sind mögliche Parameter für akute bzw. verlängerte Fixierungssitzungen35,36. Sobald die Dauer der Fesselexposition bestimmt ist, kann die Wiederholung des Stressors auch ein Faktor bei der Induktion verschiedener Stressniveaus sein35,37. Es ist zu beachten, dass wiederholte Zwangsbelastungen nicht unbedingt eine Zunahme der beobachteten Effekte bedeuten. Oft gewöhnt sich wiederholter Stress an Stressreaktionen oder reduziert sie auf andere Weise18. In den hier vorgestellten Daten beobachteten wir eine Gewöhnung an die Corticosteron-Reaktion auf wiederholten Stress, während wir gleichzeitig Unterschiede in der stimulierten Noradrenalinfreisetzung nur in der Gruppe mit wiederholtem Stress maßen. Daher müssen die Auswirkungen der wiederholten Fixierung sorgfältig untersucht werden, bevor die Gewöhnungseffekte bestimmtwerden 35.
Zusätzlich müssen die Folgen der in Studien mit Zwangsstress verwendeten Haltungsbedingungen berücksichtigt werden. Die Interaktion mit gestressten Artgenossen beeinflusst die Stressreaktionen bei Nagetieren 30,38,39. Um ein konsistentes Ansprechen in allen Versuchsgruppen aufrechtzuerhalten, sollten die Probanden entweder einzeln oder als Gruppe untergebracht werden, wobei alle Käfiggenossen den gleichen Stresszustand aufweisen37. Entscheidend ist, dass ein Nachteil dieses Ansatzes der sozialen Isolation aller Fächer darin besteht, dass die soziale Isolation des Wohnens ebenfalls ein Stressfaktor ist40,41. Unabhängig von den Wohnbedingungen sollte die Stressexposition jedoch nach Möglichkeit isoliert erfolgen, um eine soziale Pufferung von Stress zu verhindern, die sich auf die Ergebnismessungen auswirkt30. Neben diesen Haltungsbedingungen sollte auch der Zeitpunkt der Stressexposition in Bezug auf die Lichtzyklen der Umgebung berücksichtigt werden 14,15. Wie einige Studien feststellen37, folgen die Kortikosteroidspiegel dem zirkadianen Rhythmus, so dass die Verabreichung von Stressoren zu verschiedenen Zeitpunkten im Lichtzyklus zu inkonsistenten Effekten führen kann. Daher ist es wichtig, eine einheitliche Startzeit für die Fixierung festzulegen und beizubehalten. Zum Beispiel zeigt eine Arbeit, die die Auswirkungen von Trainingsstress auf die zirkadiane Kontrolle von Corticosteron untersucht, dass bei Kontrollmäusen Corticosteron spät im Lichtzyklus seinen Höhepunkt erreicht, während Corticosteron bei gestressten Mäusen ohne stabilen Peak erhöht bleibt13. Angesichts dieser Ergebnisse wird empfohlen, Nagetiere früh im Lichtzyklus zu stressen, um die größten Effekte zu erzielen.
Neben den Parametern der Fixierungsbedingungen waren auch die Eigenschaften des Probanden in Studien mit Fixierungsstressoren wichtig. Zum Beispiel berichteten zahlreiche Studien über geschlechtsspezifische Unterschiede bei der Verwendung von Fesselstress 12,35,37,42,43,44. Das Verständnis der Mechanismen, die diesen Unterschieden zugrunde liegen, ist es wert, untersucht zu werden, und könnte zu besseren Ergebnissen für eine gerechte Behandlung führen, wenn Menschen Stress erleben. Vielleicht erleben und verarbeiten Frauen und Männer Stressoren unterschiedlich, was zu einer Zunahme von Angstzuständen und Depressionen bei Frauen führt44. Zum Beispiel verringert Zwangsstress die Lernleistung bei Männern, erhöht aber die Lernleistung bei Frauen45. Historisch gesehen haben Studien zum Stress bei Nagetieren ihre Probanden auf Männchen beschränkt, aber in Zukunft sollten wir Experimente so konzipieren, dass beide Geschlechter einbezogen werden. Ein weiteres Subjektmerkmal, das bei der Planung von Experimenten mit Fixierungs- (und anderen) Stressoren bei Maus- oder Rattenarten zu berücksichtigen ist, ist der Stamm 46,47,48,49,50,51. Dehnungseffekte wurden über eine Reihe von Paradigmen hinweg beobachtet, wobei einige Stämme verstärkte Reaktionen auf Rückhaltestress zeigten. Schließlich sollte das Alter der Probanden berücksichtigt werden, wenn Rückhaltestress verwendet wird. Von pränataler Stressbelastung durch Fixierung einer schwangeren Mutter bis hin zu Fixierung in älteren Bevölkerungsgruppen kann Fixierungsstress an jeden Zeitpunkt angepasst werden. Unterschiede in der Stressreaktion wurden über die Lebensspanne gezeigt 45,52,53,54,55,56. Zusätzlich zu der Notwendigkeit, dass verschiedene Rückhaltevorrichtungen erforderlich sind, um Veränderungen der Körpergröße mit zunehmendem Alter auszugleichen, sollten altersbedingte Stresserfahrungen bei der Verwendung von Fixierungsstressoren berücksichtigt werden.
Die Auswahl der geeigneten Ergebnismessung, sei es eine in 3.2 beschriebene Verhaltensaufgabe oder eine in 3.3 beschriebene neurobiologische Variable, erfordert eine Überlegung. Zum einen hat sich gezeigt, dass akute, leichte Stressbelastung die Leistung bei einigen Lernaufgaben verbessert, aber intensive oder chronische Stressbelastung beeinträchtigt die Leistung bei Lern- und Gedächtnisaufgaben57. Es wird angenommen, dass diese Verschiebungen in der kognitiven Leistungsfähigkeit durch eine Dysregulation der Schaltkreise zwischen dem präfrontalen Kortex, der Amygdala und dem Hippocampus reguliert werden. Die Auswirkungen von Restrain-Stress auf die kognitive Flexibilität sind jedoch gemischter, wobei widersprüchliche Befunde ein klares Bild davon verhindern, wie unterschiedliche Parameter der Restrain-Belastung das Reversal Learning oder Set Shifting verändern58. In Bezug auf die Verhaltenseffekte von Drogen hat sich gezeigt, dass Restrain-Stress, wie andere Stressoren auch, Verhaltensweisen im Zusammenhang mit Substanzkonsumstörungen in einer Reihe von Drogenklassen verstärkt59. Diese Effekte sind jedoch insofern etwas selektiv, als nicht berichtet wird, dass Fesselstress in operanten Konditionierungsmodellen des Rückfalls die Drogensuche antreibt, aber das assoziative Lernen von Drogeneffekten erhöht, gemessen durch konditionierte Ortspräferenzaufgaben, einschließlich der Wiedereinsetzung60. Es wird angenommen, dass diese Diskrepanz auftritt, weil Rückhaltevorrichtungen einen separaten Kontext schaffen als operante Konditionierungskammern, während Fußschockbelastungen in der operanten Umgebung auftreten können. Um diese Einschränkung zu überwinden, hat die Kombination von Stressexposition mit Hinweisen, die während operanter Selbstverabreichungssitzungen präsentiert werden können, einen stressinduzierten Anstieg des Drogenkonsums und der Drogensuche gezeigt61. Die Auswirkungen chronischer Fixierung auf drogenbezogenes Verhalten sind weniger gut charakterisiert. Unter Berücksichtigung von Modellen für affektive Störungen wie Angst und Depression sowohl im Menschen- als auch im Tiermodell erhöht die Stressexposition die Angstmaße. Bei Nagetieren umfassen die Stressbewertungen von Angst Thigmotaxis-Reaktionen im Freilandapparat, die gemessen wurden, indem die Bewegungsreaktion des Tieres entlang der Wände in der Arena im Vergleich zum Zentrum verfolgt wurde. Tiere, die nach der Fixierung ängstliche Verhaltensweisen zeigen, verbringen mehr Zeit in der Nähe der Seiten und haben weniger Mittenkreuzungen. Ein weiterer Ansatz zur Messung von Angst ist das erhöhte Plus-Labyrinth. Bei dieser Aufgabe wird ein Apparat in Form eines Kreuzes verwendet, das etwa 3 Fuß über dem Boden angehoben ist. Zwei Arme des Geräts umfassen Wandbarrieren; Zwei Arme haben offene Seiten. Tiere, die angstähnliche Verhaltensweisen zeigen, verbringen mehr Zeit in den geschlossenen Armen als in den offenen Armen 62,63. Depressionsähnliche Verhaltensweisen werden durch die erzwungene Schwimmaufgabe bewertet, bei der Nagetiere in einen Wasserzylinder gesetzt und auf Kampfreaktionen im Vergleich zu schwimmenden Reaktionen gemessen werden64. Ob das Aufhören des Kampfes um Flucht wirklich ein depressionsähnliches Verhalten darstellt, wurde in Frage gestellt65, doch hat sich die Aufgabe als Nutznießer als Deckmantel für Antidepressiva erwiesen. Depressionsähnliche Verhaltensweisen können auch durch stressinduzierte Reduktionen der Saccharosepräferenz beurteilt werden66. Diese Veränderungen im Konsum von süßer Flüssigkeit werden als Bewertung der Anhedonie-Aspekte der klinischen Depression angesehen.
Zusammenfassend lässt sich sagen, dass die Fixierung bei Mäusen und Ratten ein validiertes Verfahren zur Erzeugung von Stress- und Angstreaktionen in Studien der Physiologie, Genetik, Immunologie und Neurowissenschaften ist. Im Vergleich zu anderen stressauslösenden Ansätzen ist die Fixierung kostengünstig, einfach durchzuführen, nützlich für die Modellierung von Aspekten menschlicher Störungen wie Angstzuständen, Depressionen, Substanzstörungen und posttraumatischen Belastungsstörungen und kann mit einer Vielzahl von Parametern angepasst werden. Aus diesen Gründen ist Rückhaltestress nach wie vor eine nützliche Methode, um die Auswirkungen von Stress bei Nagetieren zu bestimmen.
Offenlegungen
Keine Interessenkonflikte zu melden.
Danksagungen
Ich schätze das redaktionelle Feedback von Holly Rahurahu und Sam Shaffer.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Konisches Universalröhrchen mit Schraubverschluss 50 mL | Globe Scientific | 6288 | |
| Einweg-Pipettenbecken | Fisher Scientific | 13-681-500 | |
| ELISA-Kit für Corticosteron-Arbor-Assays | K014-H | ||
| Tailveiner Rückhalteröhrchen | Braintree Scientific | RTV |
Referenzen
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Nachdrucke und Genehmigungen
