Dieses Manuskript beschreibt die operativen Verfahren und Vorsichtsmaßnahmen, um die potenziell häufigen pathogenen Mechanismen zu untersuchen, die das primäre Sjögren-Syndrom und das Lungenadenokarzinom durch bioinformatische Analyse und experimentelle Verifizierung verbinden.
Methodenartikel
Primäres Sjögren-Syndrom im Zusammenhang mit Lungenadenokarzinom: Untersuchung der potenziellen gemeinsamen pathogenen Mechanismen und experimentelle Verifizierung
In diesem Artikel
Zusammenfassung
Zusammenfassung
Ziel dieser Studie war es, die potenziellen gemeinsamen pathogenen Mechanismen zu untersuchen, die das primäre Sjögren-Syndrom (pSS) und das Lungenadenokarzinom (LUAD) durch bioinformatische Analyse und experimentelle Verifizierung verbinden. Die relevanten Gene, die mit pSS und LUAD assoziiert sind, wurden aus der Gene Expression Omnibus (GEO)-Datenbank und der Genecard-Datenbank abgerufen. Anschließend wurden differentiell exprimierte Gene (DEGs), die mit pSS und LUAD assoziiert sind, als pSS-LUAD-DEGs gescreent. Es wurden Anreicherungsanalysen der Kyoto Encyclopedia of Genes and Genomes (KEGG) und der Gene Ontology (GO) durchgeführt, um die signifikanten biologischen Funktionen von pSS-LUAD-DEGs aufzuklären. Die Kernziele wurden durch den Aufbau des Protein-Protein-Interaktionsnetzwerks (PPI) identifiziert, wobei die diagnostische Genauigkeit der Hub-Gene durch ROC-Kurvenanalysen (Receiver Operating Characteristic) weiter bewertet wurde. In dieser Studie dienten NOD/Ltj-Mäuse als pSS-Tiermodelle und wurden mit Feinstaub 2,5 (PM2,5) stimuliert, um eine Entzündungsreaktion hervorzurufen. Für die relevante molekularbiologische Experimentverifizierung wurden quantitative Real-Time-Polymerase-Kettenreaktion (qPCR), Enzyme-linked Immunosorbent Assay (ELISA) und Western Blotting eingesetzt. Die Ergebnisse der KEGG- und GO-Anreicherungsanalysen deuten darauf hin, dass Entzündungen eine entscheidende Rolle bei der Verknüpfung von pSS und LUAD spielen. IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 und CEP55 wurden als Schlüsselziele von pSS-LUAD bestimmt. BALB/c-Mäuse und NOD/Ltj-Mäuse zeigten nach 21-tägiger Stimulation mit PM2,5 eine erhöhte Expression der inflammatorischen Zytokine IL-6 und IL-1β im Lungengewebe, wodurch der JAK2/STAT3-Signalweg aktiviert und die Expression der tumorassoziierten Gene CCNA2, CCNB2 und CEP55 hochreguliert wurde, wobei NOD/Ltj-Mäuse ausgeprägtere Veränderungen aufwiesen als BALB/c-Mäuse. Dieses Protokoll zeigt, dass die durch die pulmonale entzündliche Mikroumgebung induzierte Karzinogenese ein Hauptgrund für die hohe Inzidenz von LUAD bei pSS-Patienten sein kann. Darüber hinaus können blockierungsbezogene Mechanismen dazu beitragen, das Auftreten von LUAD bei pSS-Patienten zu verhindern.
Einleitung
Das primäre Sjögren-Syndrom (pSS) ist eine Autoimmunerkrankung, die durch eine lymphozytäre Infiltration der exokrinen Drüsen gekennzeichnet ist und zu den klinischen Symptomen trockener Augen (Xerophthalmie) und Mundtrockenheit (Xerostomie) führt1,2. Die pSS wird in der Regel auch von extraglandulären Manifestationen der Beteiligung begleitet, einschließlich Hyperglobulinämie3, interstitieller Lungenerkrankung4, renaler tubulärer Azidose5, neurologischer Schädigung6 und Thrombozytopenie7, die die wichtigsten nachteiligen prognostischen Faktoren darstellen. In den letzten Jahren hat eine Reihe von Studien gezeigt, dass pSS im Allgemeinen mit einer erhöhten Prävalenz von Krebs einhergeht, einschließlich hämatologischer Malignome und solider Tumoren 8,9,10. Lungenkrebs ist eine der häufigsten Krebserkrankungen im Zusammenhang mit pSS, insbesondere das Lungenadenokarzinom (LUAD)11.
Insgesamt deuteten weitere Untersuchungen darauf hin, dass pSS mit LUAD eine gemeinsame Pathogenese aufweisen könnte. Nach unserem derzeitigen Kenntnisstand gibt es noch keine speziellen Studien, die die gemeinsamen Mechanismen zwischen den beiden Erkrankungen erklären. In jüngster Zeit bietet uns die bioinformatische Analyse die Möglichkeit, potenziell gemeinsame Krankheitsmechanismen zwischen den Speziesaufzudecken 12,13,14. Um die zugrundeliegenden Mechanismen weiter aufzudecken, wird die bioinformatische Analyse zur Analyse gemeinsamer Ziele und Signalwege zwischen pSS und LUAD verwendet, und anschließend werden Tiermodelle für die experimentelle Verifizierung etabliert. Die Aufdeckung dieser Mechanismen kann dazu beitragen, eine Evidenzbasis für die klinische Prävention von LUAD bei pSS-Patienten zu schaffen.
In dieser Studie wurden die Datenbanken GEO und Genecard verwendet, um die relevanten Gene abzurufen, die mit pSS und LUAD assoziiert sind. Anschließend wurden DEGs, die mit pSS und LUAD assoziiert sind, als pSS-LUAD-DEGs gescreent. Wir führten KEGG- und GO-Anreicherungsanalysen durch, um die signifikanten biologischen Funktionen von pSS-LUAD-DEGs aufzuklären. Der Aufbau eines PPI-Netzwerks wurde verwendet, um die Kernziele zu identifizieren, und wir bewerteten die diagnostische Genauigkeit der Hub-Gene durch ROC-Kurvenanalysen weiter. Wir verwendeten NOD/Ltj-Mäuse als pSS-Tiermodelle, die mit Feinstaub 2,5 (PM2,5) stimuliert wurden, um eine Entzündungsreaktion zu erzeugen. QPCR, ELISA und Western Blotting wurden durchgeführt, um die Studie experimentell zu verifizieren. Insgesamt deuten die Ergebnisse darauf hin, dass die durch die pulmonale entzündliche Mikroumgebung induzierte Karzinogenese ein kritischer Grund für die hohe Inzidenz von LUAD bei pSS-Patienten sein könnte. Es deutet auch darauf hin, dass das Auftreten von LUAD bei pSS-Patienten durch blockierungsbezogene Mechanismen verhindert werden kann.
Protokoll
Die Versuchstiere wurden in der Tierhaltung des China-Japan Friendship Hospital untergebracht, wo die Haltungsbedingungen der Tierfütterungsumgebung gemäß dem nationalen chinesischen Standard Laboratory Animal-Requirements of Environment and Housing Facilities (GB14925-2010) entsprachen. Alle Tierpflegeverfahren und -versuche entsprachen den ANARRIVE-Richtlinien und basierten auf den 3R-Prinzipien (Reduction, Replacement, Refinement) und den Richtlinien des National Animal Welfare Law of China. BALB/c-Mäuse wurden von SPF (Beijing) Biotechnology Co., Ltd. und NOD/Ltj-Mäuse von Huafukang (Beijing) Biotechnology Co., Ltd. gekauft.
1. Bioinformatische Analyse
- Aufbereitung von Datensätzen
- Öffnen Sie die GEO-Datenbank (Gene Expression Omnibus) (www.ncbi.nlm.nih.gov/geo)15, und verwenden Sie das primäre Sjögren-Syndrom und das Lungenadenokarzinom als Schlüsselwörter, um Genexpressionsprofile zu durchsuchen. Klicken Sie dann auf die Ergebnisse in der GEO DataSets Datenbank und wählen Sie Homo sapiens in Top Organisms aus. Wählen Sie das gewünschte Dataset zusammen mit den entsprechenden Plattforminformationen aus und laden Sie es herunter.
- Öffnen Sie die Genecard-Datenbank (https://www.genecards.org/)16 und verwenden Sie dasSjögren-Syndrom und das Lungenadenokarzinom als Schlüsselwörter, um die Gene von pSS und LUAD zu erhalten. Laden Sie die Tabellen der Krankheitsgene herunter.
- Identifizierung gemeinsamer DEGs zwischen pSS und LUAD
- Laden Sie die R-Software herunter und öffnen Sie sie (https://cran.r-project.org/)17. Installieren Sie das R-Paket GEOquery, das R-Paket stringr, das R-Paket ggplot2, das R-Paket reshape2 und das R-Paket limma in der R-Software.
- Identifizieren und visualisieren Sie differentiell exprimierte Gene (DEGs) in verschiedenen GEO-Datensätzen (GSE84844, GSE51092, GSE32863 und GSE75037) mit der R-Software und vergleichen und analysieren Sie dann die Genexpression zwischen diesen Datensätzen. Betrachten Sie die Gene mit einem adjustierten P-Wert < 0,05 und einer Fold-Change (FC) > 1,2 oder < 0,83 als DEGs.
- Wählen Sie Gene mit einem Expressionsniveau größer oder gleich 20 aus, die mit pSS und LUAD in Verbindung stehen, aus der Genecard-Datenbank.
- Führen Sie die mit pSS verknüpften DEGs und die mit LUAD verknüpften DEGs sowohl aus der GEO-Datenbank als auch aus der Genecard-Datenbank zusammen.
- Installieren und laden Sie das VennDiagram-Paket in R, um die DEGs abzurufen und zu visualisieren, die pSS und LUAD (pSS-LUAD-DEGs) zugeordnet sind.
- Kyoto Encyclopedia of Genes and Genomes (KEGG) Analyse der Anreicherung des Signalwegs
- Hier kommt Metascape (https://metascape.org/)18 ins Spiel. Klicken Sie auf Datei auswählen und laden Sie die Datei im .xlsx Format von pSS-LUAD-DEGs hoch. Wählen Sie H. sapiens in Eingabe als Spezies aus. Wählen Sie auf ähnliche Weise H. sapiens in Analyse als Spezies aus.
- Klicken Sie auf Benutzerdefinierte Analyse. Klicken Sie auf Anreicherung und wählen Sie KEGG Pathway aus. Klicken Sie auf Anreicherungsanalyse und dann auf Analyseberichtsseite , wenn die Anreicherungsanalyse abgeschlossen ist.
- Klicken Sie auf Alles in einer ZIP-Datei , um das Ergebnis herunterzuladen. Greifen Sie auf die Datei _ FINAL_GO.csv im Ordner Download Enrichment_GO zu, um das Ergebnis anzuzeigen.
- Verwenden Sie das ggplot2-Paket, um das Visualisierungsprogramm KEGG in R auszuführen.
- Gen-Ontologie (GO) Anreicherungsanalyse
- Installieren und laden Sie clusterProfiler und enrichplot package in R.
- Importieren Sie die Liste im Textformat von pSS-LUAD-DEGs in R.
- Führen Sie die Pakete clusterProfiler und enrichplot für die GO-Anreicherungsanalyse und die Ergebnisvisualisierung aus. Definieren Sie die statistische Signifikanz in der Analyse bei einem angepassten p-Wert < 0,05.
- Aufbau eines Protein-Protein-Interaktionsnetzwerks (PPI) und Modulanalyse
- Hier kommt die STRING-Datenbank (Retrieval of Interacting Genes) (http://string-db.org/)19 ins Spiel. Klicken Sie auf Durchsuchen und laden Sie die Datei von pSS-LUAD-DEGs hoch. Wählen Sie unter "Organismen" die Option "Homo sapiens" aus und klicken Sie auf "Suchen".
- Klicken Sie auf Weiter. Sobald die Ergebnisse verfügbar sind, klicken Sie auf Einstellungen. Wählen Sie unter Grundeinstellungen > Minimale erforderliche Interaktionsbewertung die Option Hohe Zuverlässigkeit (0,700) aus. Aktivieren Sie in den erweiterten Einstellungen das Häkchen bei Getrennte Knoten im Netzwerk ausblenden und klicken Sie dann auf Aktualisieren.
- Klicken Sie in der Titelleiste auf Exporte , um den PPI-Beziehungstext im TSV-Format herunterzuladen.
- Laden Sie die Cytoscape 3.7.1 Software (https://cytoscape.org/)20 herunter und aktivieren Sie sie. Klicken Sie auf Datei > > Netzwerk aus Datei importieren , um die Datei im TSV-Format zum Erstellen des PPI-Netzwerks zu importieren.
- Verwenden Sie das Werkzeug Netzwerkanalyse , um die topologischen Parameter im Netzwerk zu analysieren. Optimieren Sie die Knotengröße und -farbe über die Stilleiste in der linken Systemsteuerung.
- Wählen Sie in der Menüleiste Extras > Netzwerk analysieren aus. Klicken Sie im Bereich Tabelle auf Grad , um die Komponenten in absteigender Reihenfolge nach Grad zu sortieren. Nehmen Sie die Top 20 Gene mit höheren Graden als Hub-Gene.
- Installieren und laden Sie die Pakete igraph und ggplot2 in R, um Hub-Gene nach Grad zu visualisieren.
- Identifizierung und Validierung von Hub-Genen
- Installieren und laden Sie das pROC-Paket in R.
- Importieren Sie die Liste der Hub-Gene im Textformat in R.
- Zeichnen Sie die ROC-Kurven (Receiver Operating Characteristic) von Hub-Genen und berechnen Sie die Fläche unter den Werten der ROC-Kurve (AUC).
HINWEIS: In der ergänzenden Codierungsdatei 1 finden Sie den R-Code zum Filtern von DEGs.
2. Experimentelle Verifizierung
HINWEIS: In der Materialtabelle finden Sie Einzelheiten zu den Materialien, Reagenzien und Instrumenten, die in diesem Protokoll verwendet werden.
- Zubereitung von Tieren
- Füttern Sie 1 Woche lang 12 neun Wochen alte weibliche BALB/c-Mäuse und 12 neun Wochen alte weibliche NOD/Ltj-Mäuse adaptiv.
- Verwenden Sie eine Zufallszahlentabelle, um 12 neun Wochen alte weibliche BALB/c-Mäuse gleichmäßig in die leere Kontrollgruppe und die PM2,5-Gruppe einzuteilen. Auf ähnliche Weise teilen Sie 12 neun Wochen alte weibliche NOD/Ltj-Mäuse gleichmäßig in die pSS-Gruppe und die pSS-PM2,5-Gruppe auf.
- Vorbereitung der Suspension für Feinstaub 2,5 (PM2,5)
HINWEIS: PM2,5 kann das Auftreten und die Entwicklung von entzündungsbedingter LUAD im Mausmodell21 induzieren. BALB/c-Mäuse und NOD/Ltj-Mäuse wurden durch PM2,5 dazu angeregt, entzündungsbedingte Veränderungen zu entwickeln. Gemäß der von Piao et al.22 beschriebenen Methode wurde die Konzentration der PM2,5-Suspension bei 1 mg/ml hergestellt.- Wiegen Sie die PM2,5-Quarzfasermembranen, schneiden Sie sie in 2 cm × 2 cm große Stücke und tauchen Sie sie in ein Becherglas mit einer angemessenen Menge deionisiertem Wasser.
- Das Becherglas verschließen und in einem Wasserbad-Ultraschallgerät bei 37 °C jeweils 30 min beschallen. Wiederholen Sie diesen Vorgang 3 Mal, bis sich die Partikel vollständig aufgelöst haben.
- Filtern Sie die Flüssigkeit im Becherglas durch 16 Schichten sterile medizinische Gaze und drücken Sie dann die Restfeuchtigkeit aus der Gaze heraus.
- Legen Sie das Filtrat auf eine flache Schüssel und frieren Sie es in einem -20 °C Gefrierschrank in Eisblöcken ein. Anschließend wird ein Gefriertrocknungsgerät (-52 °C, 0,1 mbar, 48 h) verwendet, um die Eisblöcke aus Filtrat zu trocknen und die pulverförmigen Partikel aufzufangen.
- Die pulverförmigen Partikel werden gründlich in Kochsalzlösung gelöst, um eine PM2,5-Suspension mit einer Konzentration von 1 mg/ml herzustellen. Gießen Sie die PM2,5-Suspension in eine Glasflasche, geben Sie sie in einen Hochdrucksterilisator und wenden Sie zur Sterilisation hohen Druck und hohe Temperatur (15 min bei 121 °C, 15 psi) an.
- Führen Sie ein Ultraschall-Rühren durch (200 W, 10 s Rühren, 10 s Ruhe, für 3 Zyklen). Lagern Sie es nach der Behandlung für die spätere Verwendung im 4 °C Kühlschrank.
- Etablierung des PM2,5-Mausmodells
HINWEIS: Der PM2,5-Gruppe und der pSS-PM2,5-Gruppe wurde 28 Tage lang einmal alle 3 Tage eine PM2,5-Suspension per Luftröhrentropf verabreicht, wobei jede Dosis 0,1 ml betrug. Der blinden Kontrollgruppe und der pSS-Gruppe wurde 28 Tage lang einmal alle 3 Tage physiologische Kochsalzlösung per Luftröhrentropf verabreicht, wobei jede Dosis 0,1 ml betrug.- Injizieren Sie der Maus eine Mischung aus Ketamin (100 mg/kg) und Xylazin (10 mg/kg). Bestätigen Sie die chirurgische Ebene der Anästhesie, indem Sie überprüfen, ob keine Reaktion auf ein Zehenklemmen vorliegt und eine vollständige Muskelentspannung sichergestellt wird. Überwachen Sie kontinuierlich die Reflexe, die Atmung und das allgemeine Ansprechen, um sicherzustellen, dass während des gesamten Eingriffs eine angemessene Anästhesie aufrechterhalten wird, bis alle Schritte abgeschlossen sind.
- Positionieren Sie die Maus mit dem Bauch nach oben, dem Kopf nach oben und dem Schwanz in einem Winkel von 45° auf den Rückhalteapparat für Kleintiere. Ziehen Sie die oberen Schneidezähne der Maus mit einem feinen Faden nach oben und befestigen Sie den Faden an einer Schraube am Tierhalter, um sicherzustellen, dass die Mundhöhle der Maus vollständig freigelegt wird.
- Öffnen Sie die Kaltlichtlampe und leuchten Sie das Licht auf die Haut des Maushalses. Ziehe mit einer Pinzette die Zunge der Maus heraus und lege die Stimmritze vollständig frei. Beobachten Sie in der Mundhöhle der Maus einen wiederkehrenden sich öffnenden und schließenden Lichtpunkt, der die Position der Atemwegsöffnung der Maus anzeigt.
- Führen Sie die venöse Verweilnadel 18 G in die Luftröhre der Maus ein, ziehen Sie den Nadelkern heraus, platzieren Sie den Baumwollfaden am äußeren Ende der venösen Verweilnadel und bestätigen Sie den Erfolg, indem Sie beobachten, wie sich der Baumwollfaden mit den Brustbewegungen der Maus bewegt.
- Aspirieren Sie zuerst 0,2 mL Luft mit einer 1 mL Spritze, dann 0,1 mL PM2,5-Suspension und anschließend weitere 0,2 mL Luft. Injizieren Sie das Gemisch durch die venöse Verweilnadel 18 G in die Luftröhre.
- Ziehen Sie die venöse Verweilnadel 18 G heraus. Befestigen Sie den Tierhalter aufrecht und drehen Sie ihn 30 Mal im Uhrzeigersinn und gegen den Uhrzeigersinn, um die PM2,5-Suspension gleichmäßig in der Lunge der Maus zu verteilen. Strecken Sie dann den Hals der Maus gerade aus und legen Sie sie auf die Seite, um ein Ersticken zu verhindern.
- Entnahme von Proben
HINWEIS: Entnehmen Sie am 29. Tag des Versuchs Proben für nachfolgende molekularbiologische Analysen.- Überprüfen Sie die Verbindung des Euthanasiesystems und schalten Sie den Controller ein. Das Kohlendioxid (CO 2)-Flaschenventil öffnen.
HINWEIS: Füllen Sie die Euthanasiekammer nicht vor, bevor Sie die Tiere hineinsetzen. - Setzen Sie die Mäuse in die Kammer und infundieren Sie CO2 in einer Höhe von 30 % bis 70 % des Kammervolumens pro Minute. Setzen Sie die Mäuse 5 Minuten lang CO2 aus und stellen Sie sicher, dass sie unbeweglich sind, nicht atmen und erweiterte Pupillen haben. Schalten Sie das CO2 -Flaschenventil aus und beobachten Sie es weitere 5 Minuten lang, um den Tod zu bestätigen.
- Legen Sie die euthanasierte Maus in Rückenlage auf ein sauberes Präparierbrett. Legen Sie die Luftröhre, das Herz und die Lunge frei.
- Verwenden Sie eine Schere und eine Pinzette, um die Haut und Muskeln zu entfernen, die den ventralen, Brust- und Halsbereich bedecken. Verwenden Sie eine Schere und eine Pinzette, um Schnitte entlang der Rippenränder auf beiden Seiten der Brusthöhle zu machen, um die Brusthöhle freizulegen, in der sich Herz und Lunge befinden. Schneiden Sie dann das Schlüsselbein so ab, dass eine ausreichend breite Öffnung entsteht, um den linken und rechten Lungenlappen gründlich zu untersuchen.
- Schneiden Sie die Nackenmuskulatur heraus, die sich vom Brustbein und den Rippen bis zum Kiefer erstreckt. Führen Sie eine Schere unterhalb des vorderen Randes der Rippen ein und schneiden Sie auf beiden Seiten ein, um den knöchernen Teil zu entfernen, der die Luftröhre bedeckt.
- Fassen Sie die Luftröhre in der Nähe des Kiefers mit einer Pinzette und machen Sie einen vollständigen Querschnitt mit einer Schere, die über der Pinzette platziert wird.
- Ziehen Sie die Luftröhre vorsichtig mit einer Pinzette nach oben und schneiden Sie die Verbindungen des ventralen Gewebes mit einer Schere durch, bis das gesamte Brustgewebe aus dem Körper entfernt ist.
- Lege die Lunge flach auf die Werkbank. Die Oberflächenrückstände des Lungengewebes mit Kochsalzlösung abspülen, mit Filterpapier trocken tupfen, in Kryoröhrchen aliquotieren und bei -80 °C lagern.
- Überprüfen Sie die Verbindung des Euthanasiesystems und schalten Sie den Controller ein. Das Kohlendioxid (CO 2)-Flaschenventil öffnen.
- Quantitative Echtzeit-Polymerase-Kettenreaktion (qPCR)
- Mahlen Sie das Lungengewebe mit einem Mörser, der flüssigen Stickstoff enthält, zu Pulver.
- Wiegen Sie 20 mg gemahlenes Gewebe mit einer Präzisionswaage, kombinieren Sie es mit 750 μl Puffer RL in einem Zentrifugenröhrchen, mischen Sie es gründlich mit einem Vortex-Mischer und lassen Sie es 3 Minuten bei Raumtemperatur (RT) stehen. Dann zentrifugieren Sie es bei 14.000 x g für 5 min bei RT und sammeln Sie den Überstand.
- Legen Sie die Minisäule des genomischen DNA-Filters (gDNA) in ein 2-ml-Entnahmeröhrchen. Den Überstand in die Mini-Säule des gDNA-Filters überführen und bei 14.000 x g für 2 min bei RT zentrifugieren.
- Entsorgen Sie die Mini-Säule des gDNA-Filters. Geben Sie ein gleiches Volumen von 70 % Ethanol in das Filtrat und mischen Sie, indem Sie es 5 Mal auf und ab pipettieren.
- Legen Sie die RNA-Minisäule in ein 2-ml-Sammelröhrchen. 750 μl des Gemischs in die RNA-Minisäule überführen und bei 12.000 x g für 1 min bei RT zentrifugieren.
- Verwerfen Sie das Filtrat und setzen Sie die RNA-Minisäule wieder in das 2-ml-Sammelröhrchen ein. Geben Sie 500 μl Puffer RW1 in die RNA-Minisäule und zentrifugieren Sie bei 12.000 x g für 1 min bei RT.
- Verwerfen Sie das Filtrat und setzen Sie die RNA-Minisäule wieder in das 2-ml-Sammelröhrchen ein. Geben Sie 500 μl Puffer RW2 in die RNA-Mini-Säule. Zentrifugieren Sie bei 12.000 x g für 1 min bei RT. Wiederholen Sie diesen Schritt noch einmal.
- Verwerfen Sie das Filtrat und setzen Sie die RNA-Minisäule wieder in das 2-ml-Sammelröhrchen ein. Zentrifugieren Sie bei 12.000 x g für 2 min bei RT.
- Übertragen Sie die RNA-Minisäule in ein 1,5-ml-Zentrifugenröhrchen, geben Sie 100 μl RNase-freies Wasser in die Mitte der Säulenmembran und inkubieren Sie sie 2 Minuten lang bei RT. Zentrifugieren Sie dann 1 Minute lang bei RT bei 12.000 x g . Entsorgen Sie die RNA-Minisäule und lagern Sie die RNA-Lösung bei -80 °C.
- Nehmen Sie 2 μl der RNA-Lösung und messen Sie sie mit dem NanoDrop-Spektralphotometer gemäß dem Gerätehandbuch, um ihre Konzentration und Qualität zu bestimmen.
HINWEIS: In der Studie wurden die Verhältnisse 260/280 und 260/230 für die RNA-Qualitätskontrolle ausgewählt. - Bereiten Sie die RNA-Lösung vor, indem Sie nacheinander die folgenden Komponenten in ein Mikrozentrifugenröhrchen geben: 1 μg Gesamt-RNA, 4 μl MgCl2 (25 mM), 2 μl reverse Transkription 10x Puffer, 2 μl dNTP-Gemisch (10 mM), 0,5 μl rekombinanter Ribonuklease-Inhibitor, 15 Einheiten reverse Transkriptase, 0,5 μg Oligo(dT)15-Primer , und fügen Sie nukleasefreies Wasser zu 20 μl hinzu. Mischen Sie den Inhalt vorsichtig, um die gesamte Flüssigkeit am Boden des Röhrchens zu sammeln.
HINWEIS: Cocktaillösungen müssen zubereitet werden, um eine konsistentere cDNA-Synthese und RNA-Quantifizierung zu gewährleisten. - Transkribieren Sie die 20-μl-RNA-Lösung in cDNA, indem Sie sie 15 Minuten lang bei 42 °C inkubieren, 5 Minuten lang bei 95 °C denaturieren und dann auf 4 °C abkühlen, gefolgt von einer Lagerung bei -20 °C.
- Kombinieren und mischen Sie 6,4 μl destilliertes Wasser, 10 μl SYBR Green Real-Time-PCR-Mastermix, 2 μl der erhaltenen cDNA-Lösung, 0,8 μl Forward-Primer (10 μM) und 0,8 μL Reverse-Primer (10 μM) (Tabelle 1), um das Reaktionssystem vorzubereiten.
- Führen Sie die Reaktion auf dem PCR-Gerät durch, um die Zyklusschwellenwerte (CT) für die Zielgene und Referenzgene zu erhalten.
- Die anfängliche Denaturierung ist zu Beginn jedes PCR-Zyklus für 60 s auf 95 ΰC einzustellen.
- Führen Sie während der PCR-Zyklen eine Denaturierung bei 95 °C für 15 s, ein Glühen bei 60 °C für 15 s und eine Extension bei 72 °C für 45 s durch, wobei während des Verlängerungsschritts Daten gesammelt werden. Führen Sie insgesamt 40 PCR-Zyklen durch.
- Führen Sie nach Abschluss der PCR-Zyklen automatisch eine Schmelzkurvenanalyse mit dem PCR-Instrument durch.
HINWEIS: Wenn die Schmelzkurve einen doppelten Peak oder eine unregelmäßige Peakform zeigt, deutet dies darauf hin, dass möglicherweise ein Problem mit dem Experiment aufgetreten ist.
- Bestimmen Sie die relativen Expressionsniveaus jedes Zielgens mit der 2-ΔΔCT-Methode, gefolgt von einer weiteren statistischen Analyse. Verwenden Sie die folgende Liste von Formeln für die 2-ΔΔCT-Methode:
ΔCT (Test) = CT (Ziel, Test) - CT (Ref, Test)
ΔCT (Kalibrator) = CT (Ziel, Kalibrator) - CT (Ref, Kalibrator)
ΔΔCT = ΔCT (Test) -ΔCT (Kalibrator)
2-ΔΔCT = Faltige Veränderung der Genexpression
| Name des Gens | Sequenz (5′ bis 3′) |
| Maus CCNA2 vorwärts | CCCAGAAGTAGCAGAGTTTGTG |
| Maus CCNA2 rückwärts | TTGTCCCGTGACTGTGTAGAG |
| Maus ASPM vorwärts | CTTATTCAGGCTATGTGGAGGA |
| Maus ASPM rückwärts | CCAGGCTTGAATCTTGCAG |
| Maus CCNB2 vorwärts | TTGAAATTTGAGTTGGGTCGAC |
| Maus CCNB2 rückwärts | CTGTTCAACATCAACCTCCC |
| Maus NUSAP1 vorwärts | CTCCCTCAAGTACAGTGACC |
| Maus NUSAP1 umgekehrt | TTTAACAACTTGGTTGCCCTC |
| Maus CEP55 vorwärts | CCGCCAGAATGCAGCATCAAC |
| Maus CEP55 Rückwärts | AGTGGGAATGGCTGCTCTGTGA |
Tabelle 1: Prim-Sequenzen für die quantitative real-time PCR.
- Enzyme-linked Immunosorbent Assay (ELISA)
HINWEIS: Äquilibrieren Sie das ELISA-Kit gemäß den Anweisungen des ELISA-Kits auf RT, bereiten Sie einen Waschpuffer vor und verdünnen Sie den Standard. 90 μl konzentrierter biotinylierter Antikörper mit 8910 μl biotinyliertem Antikörperverdünnungspuffer verdünnen, um im Voraus eine biotinylierte Antikörper-Arbeitslösung (1:100) herzustellen. In ähnlicher Weise verdünnen Sie 90 μl des konzentrierten Enzymkonjugats mit 8910 μl des Enzymkonjugat-Verdünnungspuffers, um im Voraus eine enzymkonjugierte Arbeitslösung (1:100) herzustellen.- Mahlen Sie das Lungengewebe mit einem Mörser, der flüssigen Stickstoff enthält, zu Pulver.
- Wiegen Sie 50 mg Lungengewebe mit einer Präzisionswaage, kombinieren Sie es mit 1 ml PBS in einem Mahlröhrchen und mahlen Sie es gründlich auf Eis.
- Die Mischung wird bei 4 °C, 3000 x g für 5 min zentrifugiert und der Überstand als Probe entnommen.
- Geben Sie 100 μl der Probe/des Standards unterschiedlicher Konzentrationen in die entsprechenden Vertiefungen der ELISA-Platte, decken Sie die Reaktionsvertiefungen mit selbstklebender Dichtungsfolie ab und inkubieren Sie sie 90 Minuten lang in einem 37 °C heißen Inkubator.
- Verwenden Sie eine automatische Plattenwaschmaschine, um die ELISA-Platte 4 Mal zu waschen, und injizieren Sie jedes Mal 350 μl Waschpuffer mit einem Intervall von 30 s zwischen Injektion und Aspiration.
- Geben Sie 100 μl biotinylierte Antikörper-Arbeitslösung pro Vertiefung hinzu, verschließen Sie die Vertiefungen mit selbstklebender Dichtungsfolie und inkubieren Sie sie 60 Minuten lang in einem 37 °C-Inkubator. Waschen Sie die ELISA-Platte anschließend 4 Mal nach dem zuvor beschriebenen Verfahren.
- Geben Sie 100 μl enzymkonjugierte Arbeitslösung pro Vertiefung hinzu, verschließen Sie die Vertiefungen mit selbstklebender Dichtungsfolie und inkubieren Sie sie 30 Minuten lang in einem 37 °C-Inkubator. Waschen Sie die ELISA-Platte anschließend 4 Mal nach dem zuvor beschriebenen Verfahren.
- 100 μl chromogenen Wirkstoffs pro Vertiefung zugeben, vor Licht schützen und in einem 37 °C heißen Inkubator für 10-20 min inkubieren. Fügen Sie dann 100 μl Stopplösung pro Vertiefung hinzu, mischen Sie gründlich und messen Sie sofort die optische Dichte bei Werten von 450 nm (OD450).
HINWEIS: Eine 8-Kanal-Pipette wird verwendet, um die biotinylierte Antikörper-Arbeitslösung, die enzymkonjugierte Arbeitslösung und die Stopplösung hinzuzufügen, wodurch die Zugabe schnell abgeschlossen und potenzielle Fehler vermieden werden können. - Generieren Sie mit der CurveExpert-Software (http:// curveexpert.webhop.net/) eine Standardkurve, um die Konzentration der Zielsubstanzen in jeder Probenvertiefung zu berechnen.
- Western-Blotting
- Bereiten Sie die Lösung für den Radioimmunpräzipitationsassay (RIPA) vor, indem Sie RIPA-Lysepuffer, Phenylmethansulfonylfluorid (PMSF) und Phosphatasehemmer im Verhältnis 100:1:1 mischen und auf Eis legen.
- Mahlen Sie das Lungengewebe mit einem Mörser, der flüssigen Stickstoff enthält, zu Pulver.
- Wiegen Sie 20 mg Lungengewebe mit einer Präzisionswaage genau ab und geben Sie es zu 250 μl der RIPA-Mischlösung.
- Inkubieren Sie die Mischung 20 Minuten lang auf Eis, zentrifugieren Sie sie dann 15 Minuten lang bei 4 °C bei 12.000 x g und entnehmen Sie den Überstand als Probe.
- Bereiten Sie die BCA-Arbeitslösung vor, indem Sie Reagenz A und Reagenz B aus dem BCA-Kit im Verhältnis 50:1 mischen.
- Verdünnen Sie den Standard, um verdünnte Standardlösungen mit Konzentrationen von 0, 0,025, 0,05, 0,1, 0,2, 0,3, 0,4 und 0,5 mg/ml herzustellen. Geben Sie 20 μl jeder Standardlösung und der Probe in separate Vertiefungen einer 96-Well-Platte und inkubieren Sie sie 30 Minuten lang bei 37 °C.
- Messen Sie die Extinktion bei 490 nm mit dem Mikroplatten-Reader. Die Standardkurve wird mit den Konzentrationen und Absorptionen der Standardlösungen angepasst und die Probenkonzentration23 berechnet. Stellen Sie die Probenkonzentrationen mit der RIPA-Mischlösung auf das gleiche Niveau ein.
- Mischen Sie den Proteinüberstand mit 5x Ladepuffer im Verhältnis 4:1 in einem Zentrifugenröhrchen. In einem Metallbad 5 min kochen, dann bei 12.000 x g 15 min bei 4 °C zentrifugieren und den Überstand auffangen.
- Führen Sie eine Proteintrennung mit Natriumdodecylsulfat-Polyacrylamid-Gelelektrophorese (SDS-PAGE) durch und übertragen Sie die Proteine elektrisch auf eine Polyvinylidenfluorid (PVDF)-Membran. Blockieren Sie die PVDF-Membran mit 5 % Magermilch bei RT für 1 h.
- Die PVDF-Membran wird 12 Stunden lang mit einem Primärantikörper (verdünnt 1:1000) bei 4 °C inkubiert, anschließend dreimal 10 Minuten lang mit TBST gewaschen und dann mit einem Sekundärantikörper (verdünnt 1:5000) bei RT für 2 Stunden inkubiert.
- Erkennen Sie die Zielbanden mit einem vollautomatischen Elektrochemilumineszenz-Immunoassay-System und führen Sie eine quantitative Analyse mit der integrierten Software durch.
- Statistische Analyse
- Verwenden Sie geeignete Software für die statistische Analyse.
- Präsentieren Sie die experimentellen Daten als Mittelwert ± Standardabweichung.
- Bestimmen Sie die Signifikanz mit Hilfe der unidirektionalen Varianzanalyse (ANOVA).
- Betrachten Sie P < 0,05 als statistisch signifikant.
Ergebnisse
Insgesamt wurden 3290 DEGs aus den 23348 Genen in GSE84884 (pSS) identifiziert, darunter 2659 hochregulierte Gene und 631 herunterregulierte Gene (Abbildung 1A). Für GSE51092 (pSS) wurden insgesamt 3290 DEGs aus den 11409 Genen identifiziert, darunter 667 hochregulierte Gene und 587 herunterregulierte Gene (Abbildung 1B). Die GeneCards-Datenbank erhielt 102 ovarielle pSS-bezogene DEGs, und der Korrelationswert der Screening-Kriterien betrug ≥20. Die Vereinigung und Deduplizierung der pSS-bezogenen DEGs, die aus GEO und GeneCards gewonnen wurden, ergab 453 DEGs (pSS-DEGs). Insgesamt wurden 7154 DEGs aus den 25440 Genen in GSE32863 (LUAD) identifiziert, darunter 3934 hochregulierte Gene und 3220 herunterregulierte Gene (Abbildung 1C). In GSE75037 (LUAD) wurden insgesamt 11235 DEGs aus den 25440 Genen identifiziert, darunter 6125 hochregulierte Gene und 5110 herunterregulierte Gene (Abbildung 1D). Die GeneCards-Datenbank erhielt 600 LUAD-bezogene DEGs im Zusammenhang mit den Eierstöcken, und der Korrelationswert der Screening-Kriterien betrug ≥20. Die Vereinigung und Deduplizierung der LUAD-bezogenen DEGs, die aus GEO und GeneCards gewonnen wurden, ergab 7478 DEGs (LUAD-DEGs). Insgesamt wurden 233 gemeinsame DEGs (pSS-LUAD-DEGs) zwischen pSS-DEGs und LUAD-DEGs ausgewählt und mit Venn-Diagrammen visualisiert (Ergänzende Tabelle 1 und Abbildung 1E).
In Bezug auf die Analyse der Anreicherung des KEGG-Signalwegs standen die Top 10 der identifizierten Signalwege von pSS-LUAD-DEGs in Zusammenhang mit metabolischen Signalwegen nach Entfernung der krankheitsbedingten Signalwege. Zu diesen Signalwegen gehören insbesondere der PI3K-Akt-Signalweg, der MAPK-Signalweg, die Zytokin-Zytokin-Rezeptor-Interaktion, die Nekroptose, die Regulation des Aktin-Zytoskeletts, der FoxO-Signalweg, der NOD-like-Rezeptor-Signalweg, die zelluläre Seneszenz, die Th17-Zelldifferenzierung und der JAK-STAT-Signalweg (Abbildung 2A). Die Top 10 der KEGG-Signalwege und pSS-LUAD-DEGs wurden visualisiert, wie in Abbildung 2B dargestellt.
Die GO-Anreicherungsanalyse von pSS-LUAD-DEGs ergab die folgenden Top 10 biologischen Prozesse (Abbildung 3) und war mit Zellkomponenten (CC) angereichert: Reaktion auf das Virus, angeborene Immunantwort, Abwehrreaktion auf Virus, Abwehrreaktion auf Symbionten, Regulation des Virusprozesses, Regulierung des viralen Lebenszyklus, negative Regulation des viralen Prozesses, negative Regulation der viralen Genomreplikation, Regulation der viralen Genomreplikation, antivirale angeborene Immunantwort; biologischer Prozess (BP): Seite der Membran, äußere Seite der Plasmamembran, extrazelluläre Matrix, äußere Verkapselungsstruktur, kollagenhaltige extrazelluläre Matrix, Kollagentrimer, Membran-Raft, Membran-Mikrodomäne, Plasmamembran-Raft, Caveola; Molekulare Funktion (MF): Zytokinrezeptorbindung, Zytokinaktivität, Aktivität des Signalrezeptorregulators, Bindung an Tumornekrosefaktorrezeptor-Superfamilien, Aktivität des Signalrezeptoraktivators, Bindung des Tumornekrosefaktor-Rezeptors, Aktivität des Tumornekrosefaktor-Rezeptors, Aktivität des Rezeptorliganden, Aktivität der Proteinhomodimerisierung, Aktivität der Transmembranrezeptor-Proteinkinase, Aktivität der Proteinkinase.
Das PPI-Netzwerk umfasste 99 Knoten und 466 Kanten (Abbildung 4A). Die Top 20 Gene mit höheren Graden im PPI-Netzwerk sind STAT3, STAT1, TP53, TNF, IL6, IFNG, EGFR, ISG15, CCNA2, IL10, JAK2, MX1, IL1B, IFIT1, AKT1, SMAD3, ASPM, CCNB2, NUSAP1 und CEP55, die als Hub-Gene dienen (Abbildung 4B).
Es wurde eine ROC-Kurvenanalyse durchgeführt, um die diagnostische Genauigkeit der 20 Hub-Gene zu bewerten (Abbildung 5). Die Flächenwerte unter der Kurve (AUC) für die ROC-Kurven von STAT3, STAT1, TP53, TNF, IL6, IFNG, EGFR, ISG15, CCNA2, IL10, JAK2, MX1, IL1B, IFIT1, AKT1, SMAD3, ASPM, CCNB2, NUSAP1 und CEP55 betrugen 0,543, 0,840, 0,724, 0,892, 0,965, 0,529, 0,721, 0,763, 0,933, 0,784, 0,836, 0,648, 0,936, 0,689, 0,662, 0,548, 0,960, 0,939, 0,934 und 0,953 für GSE32863 (Abbildung 5A, D) und 0,620, 0,811, 0,676, 0,878, 0,955, 0,546, 0,642, 0,765, 0,945, 0,759, 0,804, 0,625, 0,938, 0,753, 0,641, 0,540, 0,958, 0,945, 0,908 und 0,941 für GSE75037 (Abbildung 5B, E). Darüber hinaus betrugen die AUC-Werte für den Validierungssatz GSE31210 (Abbildung 5C, F) 0,505, 0,676, 0,819, 0,688, 0,863, 0,540, 0,720, 0,665, 0,814, 0,562, 0,766, 0,661, 0,806, 0,528, 0,607, 0,652, 0,906, 0,927, 0,910 und 0,898. Die AUC-Werte für IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 und CEP55 lagen bei >0,7, was darauf hindeutet, dass alle acht diagnostische Bedeutung haben.
In Lungengeweben von BALB/c-Mäusen und NOD/Ltj-Mäusen wurde nur eine geringe Menge der proinflammatorischen Faktoren IL-6 und IL-1β-Expression nachgewiesen. Nach Stimulation mit PM2,5 stieg die Expression von IL-6 und IL-1β signifikant an, wobei bei NOD/Ltj-Mäusen im Vergleich zu BALB/c-Mäusen eine deutlich höhere Erhöhung beobachtet wurde (Abbildung 6).
Nach PM2,5-Stimulation veränderten sich die Expressionsniveaus von JAK2/STAT3 im Lungengewebe von BALB/c-Mäusen und NOD/Ltj-Mäusen nicht signifikant. Die Spiegel von p-JAK2 und p-STAT3 stiegen jedoch deutlich an. NOD/Ltj-Mäuse zeigten eine signifikant höhere Expression von p-JAK2 und p-STAT3 im Vergleich zu BALB/c-Mäusen nach PM2,5-Stimulation (Abbildung 7).
Nach PM2,5-Stimulation veränderte sich die mRNA-Expression von ASPM und NUSAP1 sowohl bei BALB/c-Mäusen als auch bei NOD/Ltj-Mäusen nicht signifikant, aber die mRNA-Expression von CCNA2, CCNB2 und CEP55 nahm zu (Abbildung 8). Bemerkenswert ist, dass die mRNA-Expression von CCNA2, CCNB2 und CEP55 bei NOD/Ltj-Mäusen signifikant höher war als bei BALB/c-Mäusen nach PM2,5-Stimulation.
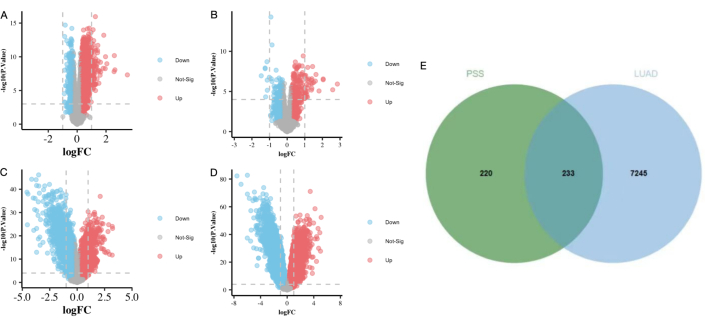
Abbildung 1: Die Vulkankarte und das Venn-Diagramm der DEGs. (A) Die Vulkankarte von GSE84844. (B) Die Vulkankarte von GSE51092. (C) Die Vulkankarte von GSE32863. (D) Die Vulkankarte von GSE75037. (E) Venn-Diagramm der pSS-DEGs und LUAD-DEGs. Hochregulierte Gene sind rot eingefärbt; herunterregulierte Gene sind grün eingefärbt. Abkürzungen: pSS = primäres Sjögren-Syndrom; LUAD = Lungenadenokarzinom; DEGs = differentiell exprimierte Gene. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
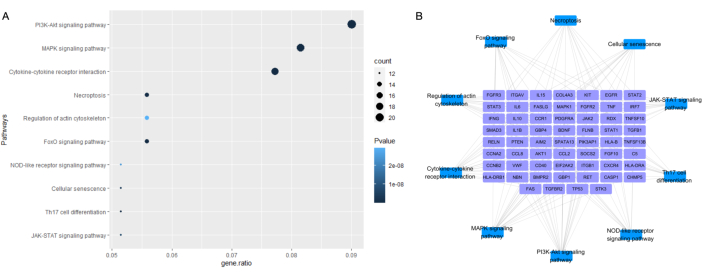
Abbildung 2: Anreicherung des KEGG-Signalwegs von pSS-LUAD-DEGs. (A) TOP10 KEGG-Anreicherungskarte von pSS-LUAD-DEGs. (B) Die Assoziation zwischen TOP10-KEGG-Signalwegen und pSS-LUAD-DEGs. Abkürzungen: KEGG = Kyoto Encyclopedia of Genes and Genomes; pSS = primäres Sjögren-Syndrom; LUAD = Lungenadenokarzinom; DEGs = differentiell exprimierte Gene. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
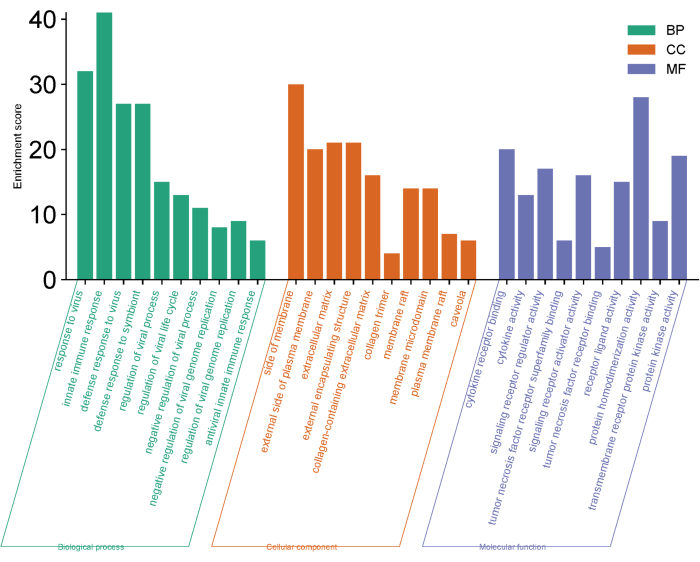
Abbildung 3: GO-Anreicherungsanalyse von pSS-LUAD-DEGs. Abkürzungen: GO = Gene Ontology; pSS = primäres Sjögren-Syndrom; LUAD = Lungenadenokarzinom; DEGs = differentiell exprimierte Gene. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
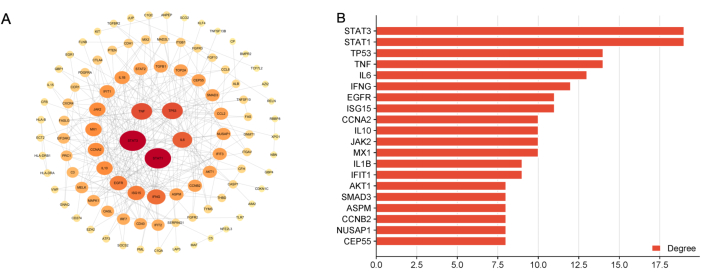
Abbildung 4: PPI-Netzwerk von pSS-LUAD-DEGs. (A) Visualisierung des PPI-Netzwerks. Rötlichere Farbtöne weisen auf eine stärkere Konnektivität des Knotens hin. (B) Die 20 Gene mit den höchsten Graden im PPI-Netzwerk. Abkürzungen: PPI = Protein-Protein-Interaktion; pSS = primäres Sjögren-Syndrom; LUAD = Lungenadenokarzinom; DEGs = differentiell exprimierte Gene. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
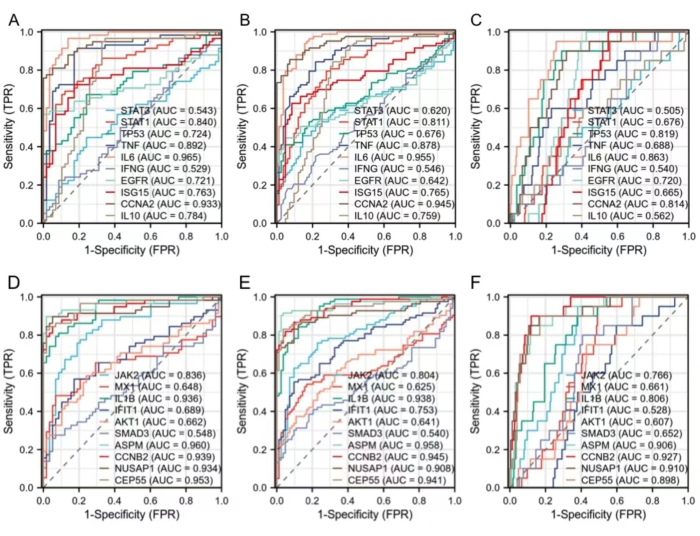
Abbildung 5: ROC-Kurvenanalyse von Nabengenen. (A-F) ROC-Kurvenanalyse von Hub-Genen in GSE32863, GSE75037 und GSE31210. Abkürzungen: ROC = Receiver Operating Characteristic. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
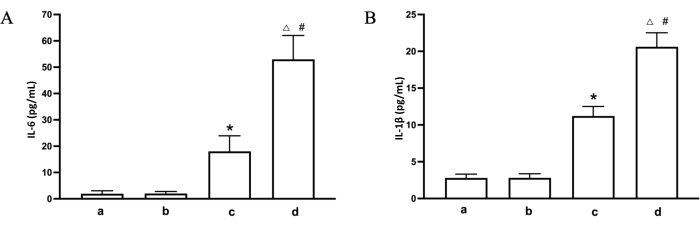
Abbildung 6: Der Einfluss von PM2,5 auf die entzündungsfördernden Faktoren im Lungengewebe von Mäusen. (A) Expression von IL-6 in Maus-Lungengeweben jeder Gruppe. (B) Expression von IL-1β in Lungengeweben von Mäusen jeder Gruppe. a. leere Kontrollgruppe; b. pSS-Gruppe; c. PM2,5-Gruppe; d. pSS-PM2.5-Gruppe. * p < 0,05 im Vergleich zur blinden Kontrollgruppe; # p < 0,05 im Vergleich zur pSS-Gruppe; Δ p < 0,05 im Vergleich zur PM2,5-Gruppe. Abkürzungen: PM2,5 = Feinstaub 2,5. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
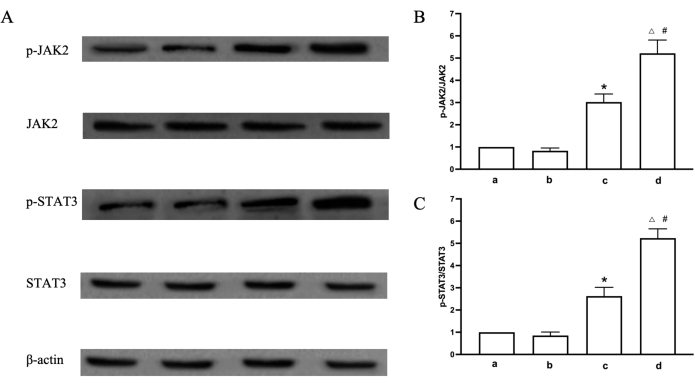
Abbildung 7: Der Einfluss von PM2,5 auf den JAK2/STAT3-Signalweg im Lungengewebe von Mäusen. (A) Expression von p-JAK2, JAK2, p-STAT3, STAT3 und β-Aktin in Maus-Lungengeweben jeder Gruppe. (B) Das Verhältnis von p-JAK2/JAK2 im Lungengewebe der Maus jeder Gruppe. (C) Das Verhältnis von p-STAT3/STAT3 im Lungengewebe der Maus jeder Gruppe. a. leere Kontrollgruppe; b. pSS-Gruppe; c. PM2,5-Gruppe; d. pSS-PM2.5-Gruppe. * p < 0,05 im Vergleich zur blinden Kontrollgruppe; # p < 0,05 im Vergleich zur pSS-Gruppe; Δ p < 0,05 im Vergleich zur PM2,5-Gruppe. Abkürzungen: PM2,5 = Feinstaub 2,5. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
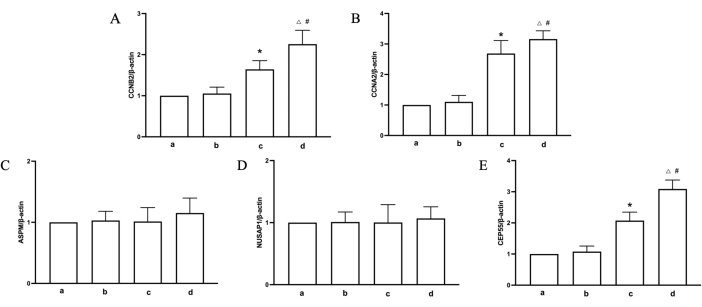
Abbildung 8: Der Einfluss von PM2,5 auf LUAD-verwandte Gene in Lungengeweben von Mäusen. (A) Expression von CCNB2-mRNA in Lungengeweben von Mäusen jeder Gruppe. (B) Expression von CCNA2-mRNA in Lungengeweben von Mäusen jeder Gruppe. (C) Expression von ASPM-mRNA in Lungengeweben von Mäusen jeder Gruppe. (D) Expression von NUSAP1-mRNA in Lungengeweben von Mäusen jeder Gruppe. (E) Expression von CEP55-mRNA in Lungengeweben der Maus jeder Gruppe. a. leere Kontrollgruppe; b. pSS-Gruppe; c. PM2,5-Gruppe; d. pSS-PM2.5-Gruppe. * p < 0,05 im Vergleich zur blinden Kontrollgruppe; # p < 0,05 im Vergleich zur pSS-Gruppe; Δ p < 0,05 im Vergleich zur PM2,5-Gruppe. Abkürzungen: PM2,5 = Feinstaub 2,5. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Ergänzende Tabelle 1: Liste der gemeinsamen DEG (pSS-LUAD-DEGs), die zwischen pSS-DEGs und LUAD-DEGs ausgewählt wurden. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Codierungsdatei 1: R-Code zum Filtern von DEGs. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Obwohl die pSS als eine Krankheit gilt, die in erster Linie durch die Invasion exokriner Drüsen gekennzeichnet ist, kann die Schädigung der Extradrüsen nicht ignoriert werden24. Die Lunge stellt ein Zielorgan für die pSS dar, und die Lungenbeteiligung ist eine häufige extraglanduläre Manifestation der pSS, die typischerweise mit einer lymphozytären Infiltration der Bronchialschleimhaut und des Lungeninterstitiumseinhergeht 25. Untersuchungen zeigen, dass mindestens 20 % der pSS-Patienten an einer interstitiellen Lungenerkrankung (ILD) leiden26,27. ILD ist ein signifikanter Risikofaktor für Lungenkrebs, was bis zu einem gewissen Grad die erhöhte Inzidenz von Lungenkrebs bei pSS28 erklärt. Gleichzeitig weisen pSS-ILD-Patienten einen signifikanten Anstieg der Tumormarker auf, was den Zusammenhang zwischen pSS und pulmonalen Malignomen weiter unterstreicht29,30. Um die Mechanismen der Assoziation zwischen pSS und LUAD zu untersuchen, führte diese Studie zunächst eine bioinformatische Analyse auf der Grundlage der DEGs durch, die sowohl mit pSS als auch mit LUAD assoziiert sind, und etablierte anschließend Tiermodelle, die für beide Krankheiten relevant sind, für die experimentelle Verifizierung.
Nach der Identifizierung von pSS-LUAD-DEGs wurde eine Analyse der Anreicherung des KEGG-Signalwegs durchgeführt, die die entscheidende Rolle des PI3K/Akt-Signalwegs in dieser Assoziation aufzeigte. Der PI3K/Akt-Signalweg katalysiert nach Aktivierung durch PI3K die Bildung von PIP3 und rekrutiert PDK1- und AKT-Proteine an die Plasmamembran. PDK1 phosphoryliert AKT zur Aktivierung und löst damit eine Kaskade von nachgelagerten Effekten aus. Verwandte Studien deuten darauf hin, dass die Beteiligung des PI3K/Akt-Signalwegs am Auftreten, der Proliferation, der Migration, der Apoptose und der Angiogenese von Tumorenbeteiligt ist 31,32,33,34,35,36. Eine Reihe klinischer Studien hat gezeigt, dass der PI3K/Akt-Signalweg in der Tumorentstehung weitgehend aktiviert ist36. In der Zwischenzeit kann AKT den NFκB-Signalweg regulieren, indem es die IκB-Kinase phosphoryliert und so die Transkription verwandter Entzündungsfaktoren kontrolliert37,38. Der MAPK-Signalweg39, die Zytokin-Zytokin-Rezeptor-Interaktion40, der NOD-ähnliche Rezeptor-Signalweg41, die Th17-Zelldifferenzierung42 und der JAK-STAT-Signalweg43 spielen eine entscheidende regulatorische Rolle bei entzündungsbedingten Prozessen. Der FoxO-Signalweg44, die Nekroptose45 und die zelluläre Seneszenz46 beeinflussen jedoch die Tumorgenese, indem sie den Apoptoseprozess in Zellen regulieren. In der Zwischenzeit hat die GO-Anreicherungsanalyse auch gezeigt, dass biologische Prozesse, die eng mit Entzündungen zusammenhängen, wie z. B. die Bindung von Zytokinrezeptoren, die Zytokinaktivität, die Bindung der Tumornekrosefaktor-Rezeptor-Superfamilie und die Bindung des Tumornekrosefaktor-Rezeptors, an diesem Prozess beteiligt sind.
Um die Schlüsselziele zwischen pSS und LUAD weiter zu identifizieren, wurden Kerngene aus pSS-LUAD-DEGs durch PPI-Netzwerkanalyse gewonnen, gefolgt von der Validierung mit dem GSE31210 Datensatz. Letztendlich wurden IL6, CCNA2, JAK2, IL1B, ASPM, CCNB2, NUSAP1 und CEP55 als Schlüsselziele von pSS-LUAD bestimmt. IL6 und IL1B sind wichtige Entzündungsfaktoren, die eine entscheidende Rolle im Entzündungsprozess von pSSspielen 47,48. In der Zwischenzeit dient JAK2 als Schlüsselziel bei der Regulierung des JAK-STAT-Signalwegs, und in den letzten Jahren wurde eine Reihe von JAK-Enzyminhibitoren für die klinische Behandlung von pSS49 getestet. ASPM, CCNB2, NUSAP1 und CEP55 sind an der Regulation der DNA-Replikation beteiligt und spielen somit eine entscheidende Rolle bei der Initiierung und Progression von Tumoren 50,51,52,53,54,55. Studien haben gezeigt, dass ASPM, CCNB2, NUSAP1 und CEP55 die Invasion und das Fortschreiten von LUAD 51,52,55,56,57 fördern. Die obige Studie ergab, dass Entzündungen sowohl bei pSS als auch bei LUAD eine entscheidende Rolle spielen. pSS, gekennzeichnet durch lymphozytäre Infiltration, induziert chronische und anhaltende Entzündungsreaktionen in lokalen Geweben58. Das Auftreten und die Metastasierung von Lungenkrebs sind eng mit dem entzündlichen Mikromilieu der Lunge verbunden59. Zusammenfassend stellten wir die Hypothese auf, dass eine Entzündungsreaktion ein Schlüssel zu dieser Assoziation zwischen pSS und LUAD sein könnte. Ausgehend von diesem Anhaltspunkt wurde eine weitere experimentelle Verifizierung durchgeführt.
Da es derzeit kein gemeinsames Modell für pSS und LUAD gibt, haben wir uns nach Durchsicht der einschlägigen Literatur entschieden, PM2,5-stimulierte pSS-Modellmäuse zu verwenden, um ein für beide Erkrankungen relevantes Modell zu simulieren. PM2,5 bezieht sich auf feine Feststoffpartikel mit einem Durchmesser von weniger als oder gleich 2,5 μm. Es kann in der Luft schweben und tief in die Lunge eindringen und erhebliche gesundheitliche Schäden verursachen60. Untersuchungen deuten darauf hin, dass eine langfristige Exposition gegenüber PM2,5 zu einer chronisch entzündlichen Mikroumgebung in der Lunge führen kann, die letztendlich zum Auftreten von LUAD21,61 führt. NOD/Ltj-Mäuse, die eine lymphozytäre Infiltration in exokrine Drüsen aufweisen, sind ein ideales Modell für die Untersuchung von pSS62. Daher haben wir in weiterer experimenteller Verifizierung NOD/Ltj-Mäuse mit PM2,5 stimuliert, um ein zusammengesetztes Modell von pSS und pulmonalen Entzündungsreaktionen zu etablieren. Die experimentellen Befunde deuten darauf hin, dass die proinflammatorischen Faktoren IL-6 und IL-1β sowohl in NOD/Ltj-Mäusen als auch in BALB/c-Mäusen ohne PM2,5-Stimulation kaum exprimiert wurden. Nach der PM2,5-Stimulation war die Expression von IL-6 und IL-1β jedoch signifikant erhöht, was auf die erfolgreiche Etablierung des experimentellen Modells der pulmonalen entzündlichen Mikroumgebung hinweist. Die Expressionsniveaus von IL-6 und IL-1β waren bei NOD/Ltj-Mäusen höher als bei BALB/c-Mäusen nach PM2,5-Stimulation, was darauf hindeutet, dass pSS empfindlicher auf die durch PM2,5 induzierten Entzündungsreaktionen reagiert.
Der JAK/STAT-Signalweg ist ein Signaltransduktionsweg, der durch Zytokine stimuliert wird und an biologischen Prozessen wie Zellwachstum, Differenzierung, Apoptose und Immunregulation beteiligt ist63. Inflammatorische Zytokine, einschließlich IL-6 und IL-1β, binden an Rezeptoren in der Zellmembran, was zur Phosphorylierungsaktivierung von Januskinasen (JAKs) führt, und JAKs vermitteln die STAT-Phosphorylierung64. Phosphorylierte STAT-Proteine werden in den Zellkern übertragen und regulieren die Expression von STAT-responsiven Genen. Der JAK2/STAT3-Signalweg steht in engem Zusammenhang mit der Regulation tumorbezogener Gene, die hauptsächlich durch IL-6 aktiviert wird und die Expression einer Reihe von Proteinen moduliert, die das Zellwachstum, die Mobilität und die Tumorbildung fördern. Diese Studie zeigte, dass nach Stimulation mit PM2,5 die Proteinspiegel von JAK2 und STAT3 in der Lunge von NOD/Ltj-Mäusen und BALB/c-Mäusen keine signifikanten Veränderungen zeigten, aber die Phosphorylierungsniveaus von JAK2 und STAT3 signifikant anstiegen, was darauf hindeutet, dass der JAK2/STAT3-Signalweg abnormal aktiviert war. Weitere Vergleiche zeigten, dass die Phosphorylierungsniveaus von JAK2 und STAT3 in der Lunge von NOD/Ltj-Mäusen im Vergleich zu BALB/c-Mäusen signifikant anstiegen, was auf eine ausgeprägtere Aktivierung des JAK2/STAT3-Signalwegs in der Lunge von pSS-Mäusen unter äquivalenten PM2,5-Stimulationsbedingungen hindeutet.
Weitere Erforschung der tumorbezogenen Genexpressionsniveaus von CCNA2, ASPM, CCNB2, NUSAP1 und CEP55, wie sie durch bioinformatische Analysen vorhergesagt wurden. Die Ergebnisse zeigten, dass die Expressionsniveaus von CCNA2, CCNB2 und CEP55 in der Lunge nach der PM2,5-Stimulation erhöht waren, wobei bei NOD/Ltj-Mäusen im Vergleich zu BALB/c-Mäusen höhere Werte festgestellt wurden. Es deutete darauf hin, dass CCNA2, CCNB2 und CEP55 eng mit Entzündungsreaktionen nach PM2,5-Stimulation verbunden sein könnten und am möglichen Auftreten und der Entwicklung von LUAD beteiligt sein könnten.
In der zukünftigen Forschung hoffen wir, mit der Thoraxchirurgie zusammenzuarbeiten, um pulmonalchirurgische Proben von pSS-Patienten zu erhalten, einschließlich solcher mit LUAD und nicht-krebsartigen Lungenläsionen, um den Fortschritt von der Lymphozyteninfiltration zu neoplastischen Prozessen durch Einzelzellsequenzierung aufzuklären. In der Zwischenzeit wurden die Entzündungsfaktoren IL-6 und IL-1β sowie der für die Regulierung von Entzündungen entscheidende JAK/STAT-Signalweg mit potenziellen pathogenen Mechanismen bei der Progression von pSS zu LUAD in Verbindung gebracht. Dies deutet darauf hin, dass Medikamente wie Tocilizumab (monoklonale IL-6-Antikörper), Canakinumab (monoklonale IL-1β-Antikörper) und Tofacitinib (JAK-Inhibitoren), die mit Entzündungen in Verbindung gebracht werden, als potenzielle Arzneimittelkandidaten zur Vorbeugung von LUAD bei pSS-Patienten dienen können.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Diese Studie wurde durch die National High Level Hospital Clinical Research Funding (2023-NHLHCRF-BQ-01) und das Youth Project des China-Japan Friendship Hospital (Nr. 2020-1-QN-8) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 3-farbiger vorgefärbter Proteinmarker | Epizyme | WJ103 | Western Blot |
| Antikörperverdünnungspuffer | Epizyme | PS119 | Western Blot |
| BCA Protein Quantification Kit | Epizyme | ZJ101 | Western Blot |
| Cytoscape 3.7.1 Software | National Institute of General Medical Sciences (NIGMS), National Institutes of Health (NIH) | Version 3.7.1. | Open-Source-Software für die Analyse und Visualisierung biologischer Netzwerke |
| ECL Luminous Fluid | Epizyme | SQ203 | Western Blot |
| Elektrophorese Puffer | Epizyme | PS105S | Western Blot |
| GraphPad Prism 10.0 | GraphPad | Version 10.0 | Datenanalyse |
| HRP-konjugierte Ziege Anti-Kaninchen IgG (H+L) (AS014) | abklonal | AS014 | Western Blot |
| JAK2 Antikörper | Zellsignaltechnologie | 3230T | Western Blot |
| Maus IL-1β ELISA-Kit | Peking 4A Biotech Co., Ltd | CME0015 | ELISA |
| Maus IL-6 ELISA Kit | Peking 4A Biotech Co., Ltd | CME0006 | |
| (100&mal;) | Epizyme | GRF102 | Western Blot |
| Phospho-JAK2 (Tyr1007/1008) | Antikörper-Zell-Signaltechnologie | 3776S | Western Blot |
| Phospho-STAT3 (Tyr705) | Antikörper-Zell-Signaltechnologie | 9145S | Western Blot |
| Protease-Inhibitor-Cocktail (100-fach;) | Epizyme | GRF101 | Western Blot |
| Proteinfreier Rapid Blocking Puffer (5&fach;) | Epizyme | PS108 | Western Blot |
| PVDF-Membran | Millipore | IPVH00010 | Western Blot |
| R Software | R Foundation for Statistical Computing | Nicht anwendbar | und Programmiersprache für statistische Analyse, Visualisierung und maschinelles Lernen für Anwendungen in den Bereichen Datenanalyse, Visualisierung und maschinelles Lernen |
| Epizyme | PC101 | Western Blot | |
| Reverse Transkriptionssystem | Promega | A3500 | PCR |
| SDS-PAGE | Epizyme | LK303 | Western Blot |
| SDS-PAGE Protein-Loading-Puffer (5&fach;) | Epizyme | LT103 | Western Blot |
| STAT3 Antikörper | Zellsignaltechnologie | 9139S | Western Blot |
| SYBR Green Realtime PCR Master Mix | TOYOBO | QPK-201 | PCR |
| TBST (10&mal;) | Epizyme | PS103 | Western Blot |
| Western Blot Transferpuffer (10&mal;) | Epizyme | PS109 | Western Blot |
| β-Aktin Antikörper | abklonal | AC026 | Western Blot |
Referenzen
- Thorlacius, G. E., Bjork, A., Wahren-Herlenius, M. Genetics and epigenetics of primary sjogren syndrome: Implications for future therapies. Nat Rev Rheumatol. 19 (5), 288-306 (2023).
- Bjordal, O., Norheim, K. B., Rodahl, E., Jonsson, R., Omdal, R. Primary Sjogren's syndrome and the eye. Surv Ophthalmol. 65 (2), 119-132 (2020).
- Zhong, H., et al. Hyperglobulinemia predicts increased risk of mortality in primary Sjogren's syndrome: Based on a Chinese multicentre registry. Mod Rheumatol. 34 (1), 137-143 (2023).
- Lin, W., et al. Interstitial lung disease in primary Sjogren's syndrome. BMC Pulm Med. 22 (1), 73(2022).
- Aiyegbusi, O., et al. Renal disease in primary Sjogren's syndrome. Rheumatol Ther. 8 (1), 63-80 (2021).
- Liampas, A., et al. Primary sjogren syndrome-related peripheral neuropathy: A systematic review and meta-analysis. Eur J Neurol. 30 (1), 255-265 (2023).
- Wu, J., et al. Clinical and laboratory features of primary Sjogren's syndrome complicated with mild to severe thrombocytopenia. Ann Transl Med. 10 (6), 300(2022).
- Zhong, H., et al. Primary Sjogren's syndrome is associated with increased risk of malignancies besides lymphoma: A systematic review and meta-analysis. Autoimmun Rev. 21 (5), 103084(2022).
- Goulabchand, R., et al. Cancer incidence in primary Sjogren's syndrome: Data from the French hospitalization database. Autoimmun Rev. 20 (12), 102987(2021).
- Witkowski Durand Viel, P., et al. Chronological interplay, clinical features, and treatments among patients with cancer and primary Sjogren's syndrome. Cancer Immunol Immunother. 72 (12), 4309-4322 (2023).
- Xu, Y., et al. The prevalence and clinical characteristics of primary Sjogren's syndrome patients with lung cancer: An analysis of ten cases in China and literature review. Thorac Cancer. 6 (4), 475-479 (2015).
- Shi, L., Du, X., Li, J., Zhang, G. Bioinformatics and systems biology approach to identify the pathogenetic link between psoriasis and cardiovascular disease. Clin Cosmet Investig Dermatol. 16, 2283-2295 (2023).
- Xu, R., Ma, L. L., Cui, S., Chen, L., Xu, H. Bioinformatics and systems biology approach to identify the pathogenetic link between heart failure and sarcopenia. Arq Bras Cardiol. 120 (10), e20220874(2023).
- Lv, Y., et al. Bioinformatics and systems biology approach to identify the pathogenetic link of long COVID and myalgic encephalomyelitis/chronic fatigue syndrome. Front Immunol. 13, 952987(2022).
- Barrett, T., et al. Ncbi geo: Archive for functional genomics data sets--update. Nucleic Acids Res. 41 (database issue), D991-D995 (2013).
- Stelzer, G., et al. The GeneCards suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1.30.1-1.30.33 (2016).
- Liu, S., et al. Three differential expression analysis methods for RNA sequencing: limma, EdgeR, DESeq2. J Vis Exp. 175, e62528(2021).
- Zhou, Y., et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 10 (1), 1523(2019).
- Szklarczyk, D., et al. The string database in 2023: Protein-protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 51 (D1), D638-D646 (2023).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Hill, W., et al. Lung adenocarcinoma promotion by air pollutants. Nature. 616 (7955), 159-167 (2023).
- Piao, C. H., et al. PM2.5 exposure regulates th1/th2/th17 cytokine production through NF-κβ signaling in combined allergic rhinitis and asthma syndrome. Int Immunopharmacol. 119, 110254(2023).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume protein concentration determination using the nanodrop 2000c spectrophotometer. J Vis Exp. 33, e1610(2009).
- Luo, J., et al. Distinct clinical phenotypes of primary Sjogren's syndrome differ by onset age: A retrospective study of 742 cases and review of the literature. Clin Exp Rheumatol. 40 (12), 2373-2380 (2022).
- Luppi, F., et al. Lung complications of Sjogren syndrome. Eur Respir Rev. 29 (157), (2020).
- Berardicurti, O., et al. Interstitial lung disease and pulmonary damage in primary Sjogren's syndrome: A systematic review and meta-analysis. J Clin Med. 12 (7), 2586(2023).
- Roca, F., et al. Interstitial lung disease in primary Sjogren's syndrome. Autoimmun Rev. 16 (1), 48-54 (2017).
- Fisher, D. A., et al. Diagnosis and treatment of lung cancer in the setting of interstitial lung disease. Radiol Clin North Am. 60 (6), 993-1002 (2022).
- Okudela, K., et al. Implications of thyroid transcription factor-1 gene methylation in carcinogenesis of interstitial pneumonia-related non-terminal respiratory unit lung adenocarcinoma. Int J Clin Exp Pathol. 15 (3), 120-130 (2022).
- Sekine, A., et al. Disease activity of lung cancer at the time of acute exacerbation of interstitial lung disease during cytotoxic chemotherapy. Thorac Cancer. 13 (17), 2443-2449 (2022).
- Glaviano, A., et al. PI3K/AKT/mTOR signaling transduction pathway and targeted therapies in cancer. Mol Cancer. 22 (1), 138(2023).
- Ediriweera, M. K., Tennekoon, K. H., Samarakoon, S. R. Role of the PI3K/AKT/mTOR signaling pathway in ovarian cancer: Biological and therapeutic significance. Semin Cancer Biol. 59, 147-160 (2019).
- Hoxhaj, G., Manning, B. D. The PI3K-AKT network at the interface of oncogenic signalling and cancer metabolism. Nat Rev Cancer. 20 (2), 74-88 (2020).
- Liu, R., et al. PI3K/AKT pathway as a key link modulates the multidrug resistance of cancers. Cell Death Dis. 11 (9), 797(2020).
- Manogaran, P., Beeraka, N. M., Paulraj, R. S., Sathiyachandran, P., Thammaiappa, M. Impediment of cancer by dietary plant-derived alkaloids through oxidative stress: Implications of PI3K/AKT pathway in apoptosis, autophagy, and ferroptosis. Curr Top Med Chem. 23 (10), 860-877 (2023).
- Acosta-Martinez, M., Cabail, M. Z. The PI3K/AKT pathway in meta-inflammation. Int J Mol Sci. 23 (23), 15330(2022).
- Chen, G. Y., et al. Prediction of Rhizoma Drynariae targets in the treatment of osteoarthritis based on network pharmacology and experimental verification. Evid Based Complement Alternat Med. 2021, 5233462(2021).
- Chen, G. Y., et al. Total flavonoids of Rhizoma Drynariae restore the MMP/TIMP balance in models of osteoarthritis by inhibiting the activation of the NF-κβ and PI3K/AKT pathways. Evid Based Complement Alternat Med. 2021, 6634837(2021).
- Chen, G. Y., et al. Network pharmacology analysis and experimental validation to investigate the mechanism of total flavonoids of Rhizoma Drynariae in treating rheumatoid arthritis. Drug Des Devel Ther. 16, 1743-1766 (2022).
- Yao, C., Narumiya, S. Prostaglandin-cytokine crosstalk in chronic inflammation. Br J Pharmacol. 176 (3), 337-354 (2019).
- Liu, P., et al. NOD-like receptor signaling in inflammation-associated cancers: From functions to targeted therapies. Phytomedicine. 64, 152925(2019).
- Damasceno, L. E. A., et al. PKM2 promotes Th17 cell differentiation and autoimmune inflammation by fine-tuning stat3 activation. J Exp Med. 217 (10), e20190613(2020).
- Banerjee, S., Biehl, A., Gadina, M., Hasni, S., Schwartz, D. M. JAK-STAT signaling as a target for inflammatory and autoimmune diseases: Current and future prospects. Drugs. 77 (5), 521-546 (2017).
- Jiramongkol, Y., Lam, E. W. FOXO transcription factor family in cancer and metastasis. Cancer Metastasis Rev. 39 (3), 681-709 (2020).
- Tong, X., et al. Targeting cell death pathways for cancer therapy: Recent developments in necroptosis, pyroptosis, ferroptosis, and cuproptosis research. J Hematol Oncol. 15 (1), 174(2022).
- Ou, H. L., et al. Cellular senescence in cancer: From mechanisms to detection. Mol Oncol. 15 (10), 2634-2671 (2021).
- Felten, R., et al. Interleukin 6 receptor inhibition in primary Sjogren syndrome: A multicentre double-blind randomised placebo-controlled trial. Ann Rheum Dis. 80 (3), 329-338 (2021).
- Bardsen, K., et al. Interleukin-1-related activity and hypocretin-1 in cerebrospinal fluid contribute to fatigue in primary Sjogren's syndrome. J Neuroinflammation. 16 (1), 102(2019).
- Barrera, M. J., et al. Tofacitinib counteracts il-6 overexpression induced by deficient autophagy: Implications in Sjogren's syndrome. Rheumatology (Oxford). 60 (4), 1951-1962 (2021).
- Liu, H., Zhou, Q., Xu, X., Du, Y., Wu, J. ASPM and TROAP gene expression as potential malignant tumor markers. Ann Transl Med. 10 (10), 586(2022).
- Qian, X., et al. CCNB2 overexpression is a poor prognostic biomarker in Chinese NSCLC patients. Biomed Pharmacother. 74, 222-227 (2015).
- Mo, M. L., et al. Use of serum circulating CCNB2 in cancer surveillance. Int J Biol Markers. 25 (4), 236-242 (2010).
- Li, L., et al. NuSAP is degraded by APC/C-Cdh1 and its overexpression results in mitotic arrest dependent of its microtubules' affinity. Cell Signal. 19 (10), 2046-2055 (2007).
- Fabbro, M., et al. Cdk1/Erk2- and Plk1-dependent phosphorylation of a centrosome protein, cep55, is required for its recruitment to midbody and cytokinesis. Dev Cell. 9 (4), 477-488 (2005).
- Jeffery, J., Sinha, D., Srihari, S., Kalimutho, M., Khanna, K. K. Beyond cytokinesis: The emerging roles of CEP55 in tumorigenesis. Oncogene. 35 (6), 683-690 (2016).
- Feng, Z., et al. Overexpression of abnormal spindle-like microcephaly-associated (ASPM) increases tumor aggressiveness and predicts poor outcome in patients with lung adenocarcinoma. Transl Cancer Res. 10 (2), 983-997 (2021).
- Zheng, H., et al. Comprehensive pan-cancer analysis reveals NuSAP1 is a novel predictive biomarker for prognosis and immunotherapy response. Int J Biol Sci. 19 (14), 4689-4708 (2023).
- Verstappen, G. M., Pringle, S., Bootsma, H., Kroese, F. G. M. Epithelial-immune cell interplay in primary sjogren syndrome salivary gland pathogenesis. Nat Rev Rheumatol. 17 (6), 333-348 (2021).
- El Rayes, T., et al. Lung inflammation promotes metastasis through neutrophil protease-mediated degradation of Tsp-1. Proc Natl Acad Sci U S A. 112 (52), 16000-16005 (2015).
- Zhao, L., et al. PM2.5 and serum metabolome and insulin resistance, potential mediation by the gut microbiome: A population-based panel study of older adults in china. Environ Health Perspect. 130 (2), 27007(2022).
- Li, J., et al. PM2.5 exposure perturbs lung microbiome and its metabolic profile in mice. Sci Total Environ. 721, 137432(2020).
- Liao, J. H., et al. Network pharmacology-based strategy to investigate the mechanisms of artemisinin in treating primary sjogren's syndrome. BMC Immunol. 25 (1), 16(2024).
- Hu, Q., et al. JAK/STAT pathway: Extracellular signals, diseases, immunity, and therapeutic regimens. Front Bioeng Biotechnol. 11, 1110765(2023).
- Xue, C., et al. Evolving cognition of the JAK-STAT signaling pathway: Autoimmune disorders and cancer. Signal Transduct Target Ther. 8 (1), 204(2023).
Nachdrucke und Genehmigungen
