Alkoholmissbrauch beeinträchtigt die Immunität der Alveolarmakrophagen (AM) aufgrund einer unterdrückten mitochondrialen Atmung und Bioenergetik. Wir haben kürzlich gezeigt, dass die Exposition gegenüber Ethanol (EtOH) die Glutaminabhängigkeit für die mitochondriale Atmung bei AMs erhöht. Hierin werden Methoden zur Bestimmung der Verwendung von Glutamin für die mitochondriale Atmung in EtOH-behandelten AMs unter Verwendung eines extrazellulären Flussbioanalysators bereitgestellt.
Methodenartikel
Bewertung von Glutamin als Brennstoffquelle für Alveolarmakrophagen, die chronischem Ethanol ausgesetzt sind, mit einem extrazellulären Flussbioanalysator
In diesem Artikel
Zusammenfassung
Zusammenfassung
Alveolarmakrophagen (AMs) sind die erste zelluläre Abwehrlinie in den unteren Atemwegen gegen Krankheitserreger. Chronischer und übermäßiger Alkoholkonsum beeinträchtigt jedoch die Fähigkeit von AMs, Krankheitserreger zu phagozytieren und aus dem Alveolarraum zu entfernen, zum Teil durch einen dysregulierten Kraftstoffstoffwechsel und Bioenergetik. Unsere früheren Arbeiten haben gezeigt, dass chronischer Ethanolkonsum (EtOH) die mitochondriale Bioenergetik beeinträchtigt und den Laktatspiegel in AMs erhöht. Darüber hinaus haben wir kürzlich gezeigt, dass EtOH die Glutaminabhängigkeit und die glutaminabhängige maximale Atmung erhöht, während es die Flexibilität verringert und sich weg von der pyruvatabhängigen Atmung und hin zur Glutamin-abhängigen Atmung verlagert. Die Glutaminolyse ist ein wichtiger Kompensationsweg für die mitochondriale Atmung, wenn Pyruvat zur Milchsäureproduktion verwendet wird oder wenn andere Brennstoffquellen nicht ausreichen. Anhand einer AM-Zelllinie der Maus, MH-S-Zellen, die 72 Stunden lang entweder keinem EtOH oder EtOH (0,08%) ausgesetzt waren, bestimmten wir die Abhängigkeit der mitochondrialen Atmung und der Bioenergetik von Glutamin als Brennstoffquelle mit einem extrazellulären Flussbioanalysator. Echtzeitmessungen wurden als Reaktion auf Bis-2-(5-phenylacetamido-1,3,4-thiadiazol-2-yl)-ethylsulfid (BPTES), einen Inhibitor von Glutaminase 1, der die enzymatische Umwandlung von Glutamin in Glutamat verhindert, in einem medialen Vehikel oder als Reaktion auf das Vehikel allein durchgeführt, gefolgt von der Untersuchung des mitochondrialen Stresses. Das hierin bereitgestellte Schritt-für-Schritt-Protokoll beschreibt unsere Methoden und Berechnungen zur Analyse der durchschnittlichen Konzentrationen der glutaminabhängigen basalen mitochondrialen Atmung, der mitochondrialen ATP-gebundenen Atmung, der maximalen mitochondrialen Atmung und der mitochondrialen freien Atmungskapazität über mehrere biologische und experimentelle Replikate.
Einleitung
Über 28 Millionen Menschen in den Vereinigten Staaten sind von Alkoholkonsumstörungen (AUD) betroffen1. Menschen mit AUD haben ein 2-4-mal höheres Risiko, Atemwegsinfektionen zu entwickeln 2,3, was das Risiko für vorzeitige Morbidität und Mortalität erhöht 3,4,5. Alkoholmissbrauch erhöht die Anfälligkeit für Atemwegsinfektionen, zum Teil durch Unterdrückung der Immunfunktion der Lunge. Alveolarmakrophagen (AMs) sind die erste zelluläre Abwehrlinie gegen Krankheitserreger in der unteren Lunge, wo sie eingeatmete Mikroben phagozytieren und beseitigen. Chronischer Alkoholkonsum beeinträchtigt jedoch die Fähigkeit von AMs, Krankheitserreger zu verschlingen und abzutöten 6,7.
Die Immunfunktionen von AMs, wie z. B. die Phagozytose, sind energieintensive Prozesse, die metabolisch aktive Wege erfordern, die für die Bildung von hohem Adenosintriphosphat (ATP) erforderlich sind. Die mitochondriale oxidative Phosphorylierung ist der effizienteste zelluläre Prozess zur Produktion von ATP, aber eine chronische Exposition gegenüber Ethanol (EtOH) erhöht den mitochondrialen oxidativen Stress, der bei AMs zu einer mitochondrialen Dysfunktion führen kann 8,9,10. Die mitochondriale Atmung, die mit der zellulären Sauerstoffverbrauchsrate (OCR) gemessen wird, kann mit einem extrazellulären Flussbioanalysator in Echtzeit quantifiziert werden. Mitochondriale Atmungsprofile, die als Reaktion auf Oligomycin (ATP-Synthase-Inhibitor), Carbonylcyanid-p-Trifluormethoxyphenylhydrazon (FCCP, Protonenentkoppler) und Rotenon/Antimycin A (R/A, mitochondriale Komplex I bzw. III-Inhibitoren) bewertet wurden, werden zur Bestimmung der mitochondrialen Bioenergetik verwendet. Chronisches EtOH verringert die mitochondriale Bioenergetik in AMs, was sich in einer verminderten mitochondrialen Basalatmung, einer ATP-gebundenen Atmung, einer maximalen Atmung und einer freien Atemkapazität zeigt10.
Zellen sind für die ATP-Produktion unterschiedlich stark von Brennstoffquellen wie Pyruvat, Glutamin oder Fettsäuren abhängig. Sie verfügen auch über ein gewisses Maß an Flexibilität, mit dem sie den Brennstoffverbrauch umschalten können, um die zelluläre Bioenergetik zu regulieren. Die Glutaminolyse ist ein Schlüsselweg für die mitochondriale Atmung, insbesondere wenn Pyruvat in Richtung Milchsäureproduktion verlagert wird oder wenn die Fettsäuren nicht ausreichen. Unsere jüngste Studie zeigte, dass eine chronische EtOH-Exposition die AM-Abhängigkeit von Glutamin erhöht und die AM-Flexibilität bei der Verwendung von Glutamin und anderen Brennstoffquellen für die mitochondriale Atmung verringert11. Diese Ergebnisse, zusammen mit Daten, die zeigen, dass die Behandlung von EtOH-exponierten MH-S-Zellen mit dem Pyruvat-Oxidationshemmer UK5099 die mitochondriale Bioenergetik im Vergleich zu den mit UK5099 behandelten MH-S-Zellen der Medienkontrolle nicht veränderte, deuteten auf eine Verschiebung weg von der pyruvatabhängigen Atmung und hin zur Glutamin-abhängigen Atmung in EtOH MH-S-Zellen hin. Diese Verschiebung reicht jedoch nicht aus, um die bioenergetischen Anforderungen der additiven Fertigung zu decken11. Darin beschreiben wir die Methoden zur Bewertung von Glutamin als Brennstoffquelle für die mitochondriale Atmung bei chronischen EtOH-exponierten AMs unter Verwendung eines extrazellulären Flussbioanalysators. Dieses Protokoll wurde für ein 96-Well-Format (11,04 mm2 Fläche) erstellt und optimiert und sollte für größere Zellkultur-Well-Größen angepasst werden. Die Glutaminabhängigkeit für die mitochondriale Bioenergetik wird unter Verwendung von Bis-2-(5-phenylacetamido-1,3,4-thiadiazol-2-yl)ethylsulfid (BPTES, Inhibitor der Glutaminase 1) bestimmt, um die enzymatische Umwandlung von Glutamin in Glutamat selektiv zu hemmen. Bei den in dieser Studie vorgestellten Daten handelt es sich um zusätzliche biologische Repliken für die mit Medienkontrolle und BPTES behandelten Versuchsgruppen von unbehandelten Kontroll- und chronischen EtOH-exponierten Maus-AM-Zelllinien, MH-S-Zellen, die in Crotty et al.11 veröffentlicht wurden.
Protokoll
1. Chronische EtOH-Exposition in vitro
- Kultivieren Sie MH-S-Zellen, eine Alveolarmakrophagen-Zelllinie der Maus, in einem vollständigen Medium, das RPMI-1640 enthält, mit 10 % fötalem Rinderserum, 1 % Penicillin/Streptomycin, 11,9 mM Natriumbicarbonat, 40 mg/ml Gentamicin und 50 μM 2-Mercaptoethanol bei 37 °C mit 5 % CO2 in einem befeuchteten Inkubator.
- Kultivierte MH-S-Zellen mit oder ohne EtOH (0,8 mg/ml oder 0,08 %) sind 72 Stunden lang zu behandeln, wobei das EtOH alle 24 Stunden gewechselt werden sollte. Mit EtOH behandelte MH-S-Zellen werden bei 37 °C mit 5 % CO2 in einem separaten befeuchteten Inkubator mit 0,08 % EtOH im Inkubatorwasser inkubiert.
2. Plattierung von MH-S-Zellen zur Beurteilung von Glutamin als Brennstoffquelle mit einem extrazellulären Flussbioanalysator
- Stellen Sie sicher, dass unbehandelte Kontroll- (Con)- und chronische EtOH-behandelte MH-S-Zellen in T-75-Kolben auf mindestens 50 % Konfluenz (70 % bis 90 % Konfluenz ist ideal) gezüchtet werden, um in eine extrazelluläre 96-Well-Flussmittel-Mikrokulturplatte zu gelangen. Erstellung einer Plattenkarte für 5-6 technische Replikate pro biologischem Replikat der experimentellen Con- und EtOH-Bedingungen und Medienkontrollen für jedes Replikat zum Vergleich mit BPTES-Injektionen (insgesamt vier Gruppen für biologische n = 1).
- Spülen Sie die Zellen mit Medien oder phosphatgepufferter Kochsalzlösung.
- 6 ml serumhaltiges Medium in den Kolben geben.
- Kratzen Sie die Zellen ab, bis sie sich gelöst haben und der Boden der Platte frei ist. Trypsin wird für die MH-S-Zellablösung nicht benötigt, kann aber bei anderen Zelltypen hilfreich sein.
- Trennen Sie die Zellen mit einer serologischen Pipette oder einer 1-ml-Pipette.
- Die suspendierten Zellen werden in ein konisches 15-mL-Röhrchen überführt und bei 200 x g für 6 min zentrifugiert.
- Aspirieren Sie den Überstand.
- Fügen Sie 1 ml Medium hinzu und resuspendieren Sie die Zellen gründlich.
- 10 μl in ein Mikrozentrifugenröhrchen geben und 10 μl Trypanblau hinzufügen. Gut mischen.
- Übertragen Sie 10 μl des Zell-Trypanblau-Gemischs auf eine Seite eines Hämozytometers oder Zellzählers.
- Zählen Sie die Anzahl der Zellen mit einem Lichtmikroskop oder Zellzähler.
- Berechnen Sie die Zelldichte als durchschnittliche Anzahl lebender Zellen pro Milliliter.
- Führen Sie Berechnungen für die erforderlichen Verdünnungen durch:
Anzahl der benötigten Wells x 10000-15000 Zellen = Gesamtzahl der benötigten Zellen.
Anzahl der benötigten Vertiefungen x 80 μl = Gesamtvolumen der benötigten resuspendierten Zellen. - Geben Sie 80 μl Zellen in die erforderlichen Vertiefungen der 96-Well-Mikrokulturplatte für extrazelluläre Flux.
- Lassen Sie die Eckvertiefungen vollständig frei von Zellen oder Medien. Diese Vertiefungen werden für Hintergrundmessungen verwendet.
- Inkubieren Sie die Zellen über Nacht in einem 37 °C befeuchteten Inkubator mit 5 % CO2 , damit die Zellen in der extrazellulären Flussmittel-Mikrokulturplatte anhaften und sich ausgleichen können.
- Behandeln Sie MH-S-Zellen in der extrazellulären 96-Well-Flux-Mikrokulturplatte 72 Stunden lang mit Schritt 1.
- Hydratisieren Sie mindestens 4 Stunden und bis zu 24 Stunden vor dem Ausführen des extrazellulären Flussmittel-Bioanalysator-Experiments eine extrazelluläre Flux-Pak-Kartusche mit 96 Wells.
- Entfernen Sie den oberen Teil des extrazellulären Flussmittelpakts und legen Sie den sondierten Teil des Flussmittelpakts mit der Vorderseite nach oben auf die Bank. Tragen Sie 200 μl extrazelluläre Flussmittelkalibrierungslösung auf jede Vertiefung im unteren Teil der extrazellulären Flussmittel-Pak-Kartusche auf.
- Setzen Sie die Abschnitte zusammen und wickeln Sie die extrazelluläre Flux Pak-Kartusche in Parafilm ein. Stellen Sie es in einen 37 °C Nicht-CO2 -Befeuchtungsinkubator oder ein 37 °C Perlbad.
- Schalten Sie den Computer mit dem Assay-Design ein und öffnen Sie die Betriebs-/Analysesoftware, die an das extrazelluläre Flussbioanalysegerät angeschlossen ist, damit es sich mindestens 4 Stunden vor der Durchführung des Experiments aufwärmen kann.
3. Verwendung eines extrazellulären Fluss-Bioanalysators zur Beurteilung von Glutamin als Brennstoffquelle für die mitochondriale Atmung in MH-S-Zellen
HINWEIS: Eine allgemeine Übersicht über dieses Verfahren ist in Abbildung 1 dargestellt.
- Überprüfen Sie mit Con- und EtOH behandelte kultivierte MH-S-Zellen unter einem Lichtmikroskop und stellen Sie sicher, dass die Zellen gesund sind und in einer Monoschicht an den Vertiefungen haften. Stellen Sie sicher, dass die Zellen zu mindestens 70 % konfluent sind (90 % Konfluenz ist ideal), um den Assay zuverlässig durchzuführen.
- Bereiten Sie das extrazelluläre Flussmittel-Basismedium mit den folgenden Ergänzungen vor:
- Aliquotieren Sie 35 mL extrazelluläres Flussmittel-Basismedium in ein 50-ml-Röhrchen.
- Fügen Sie 350 μl 100 mM Natriumpyruvat (1 mM Endkonzentration), 350 μl D-Glucose (10 mM Endkonzentration) und 350 μl GlutaMAX hinzu, das im Vergleich zu L-Glutamin (2 mM Endkonzentration) lagerstabiler ist.
HINWEIS: Frisches L-Glutamin kann auch in der gleichen Konzentration verwendet werden. - Erwärmen Sie die Lösung auf 37 °C und stellen Sie sicher, dass der pH-Wert bei 37 °C 7,4 ± 0,05 beträgt.
- Saugen Sie das Wachstumsmedium vorsichtig aus der extrazellulären Mikrokulturplatte ab. Lassen Sie so wenig Medien wie möglich, ohne Zellen von unten anzusaugen. Einmal mit maximal 50 μl des mit extrazellulärem Flussmittel ergänzten Basismediums waschen.
- Geben Sie 180 μl extrazelluläres Flussmittel-supplementiertes Basismedium in jede Vertiefung und inkubieren Sie die extrazelluläre Mikrokulturplatte in einem 37 °C großen, nicht CO2 -befeuchteten Inkubator für 30 min bis 1 h, um eine Äquilibrierung zu ermöglichen.
- Reagenzien für den Glutamin-Oxidationstest auflösen:
- Geben Sie in das BPTES-Röhrchen 700 μl extrazelluläres Flussmittel-supplementiertes Basismedium, um eine 120 mM Stammlösung herzustellen. Pipettieren Sie 10 Mal auf und ab, um die Verbindung richtig aufzulösen.
ACHTUNG: BPTES verursacht Haut- und Augenreizungen und kann Atemwegsreizungen verursachen. Tragen Sie bei der Handhabung Schutzhandschuhe, Augenschutz und Gesichtsschutz. Entsorgen Sie den Inhalt und die Behälter bei einer zugelassenen Abfallentsorgungsstelle. - In das Oligomycin-Röhrchen werden 630 μl extrazelluläres Flussmittel-supplementiertes Basismedium gegeben, um eine 100 mM Stammlösung herzustellen. Pipettieren Sie 10 Mal auf und ab, um die Verbindung richtig aufzulösen.
- Geben Sie in das FCCP-Röhrchen 720 μl extrazelluläres Flussmittel-supplementiertes Basismedium, um eine 100 mM Stammlösung herzustellen. Pipettieren Sie 10 Mal auf und ab, um die Verbindung richtig aufzulösen.
ACHTUNG: FCCP ist schädlich, wenn es verschluckt wird, verursacht schwere Hautverbrennungen und Augenschäden, kann allergische Hautreaktionen hervorrufen und kann lang anhaltende schädliche Auswirkungen auf Wasserlebewesen haben. Tragen Sie bei der Handhabung Schutzhandschuhe, Schutzkleidung, Augenschutz und Gesichtsschutz. Entsorgen Sie den Inhalt und die Behälter bei einer zugelassenen Abfallentsorgungsstelle. - Geben Sie in das R/A-Röhrchen 540 μl extrazelluläres Flussmittel-supplementiertes Basismedium, um eine 50 mM Stammlösung herzustellen. Pipettieren Sie 10 Mal auf und ab, um die Verbindung richtig aufzulösen.
ACHTUNG: Rotenon ist tödlich, wenn es verschluckt oder eingeatmet wird, verursacht Hautreizungen, verursacht schwere Augenreizungen, kann Atemwegsreizungen verursachen und ist sehr giftig für Wasserorganismen mit langfristiger Wirkung. Tragen Sie Schutzhandschuhe, Augenschutz, Gesichtsschutz und Atemschutz. Entsorgen Sie den Inhalt und die Behälter bei einer zugelassenen Abfallentsorgungsstelle. Antimycin A ist tödlich, wenn es verschluckt wird, und ist sehr giftig für Wasserlebewesen, mit langfristiger Wirkung. Entsorgen Sie den Inhalt und die Behälter bei einer zugelassenen Abfallentsorgungsstelle.
- Geben Sie in das BPTES-Röhrchen 700 μl extrazelluläres Flussmittel-supplementiertes Basismedium, um eine 120 mM Stammlösung herzustellen. Pipettieren Sie 10 Mal auf und ab, um die Verbindung richtig aufzulösen.
- Bereiten Sie die Arbeitskonzentrationen von Reagenzien für die Substratoxidation und den mitochondrialen Stresstest vor:
- Mischen Sie für BPTES 1.500 μl extrazelluläres Flussmittel, das mit Basismedium ergänzt ist, mit 500 μl 120 mM BPTES-Stammlösung, um eine 30 μM BPTES-Arbeitslösung herzustellen.
- Für Oligomycin mischen Sie 2.520 μl extrazelluläres Flussmittel, das mit Basismedium supplementiert ist, mit 480 μl 100 mM Oligomycin, um eine 16 mM Oligomycin-Arbeitslösung herzustellen.
- Mischen Sie für FCCP 2.865 μl extrazelluläres Flussmittel, das mit Basismedium angereichert ist, mit 135 μl 100 mM FCCP, um eine 4,5 mM FCCP-Arbeitslösung herzustellen.
- Mischen Sie für R/A 2.700 μl extrazelluläres Flussmittel, das mit Basismedium angereichert ist, mit 300 μl 50 mM R/A, um eine 5 mM R/A-Arbeitslösung herzustellen.
- Beladen Sie die Anschlüsse an der Oberseite der extrazellulären Flux Pak-Kartusche mit folgenden Elementen:
- Laden Sie die Hintergrund- und Medienkontrollvertiefungen mit 20 μl extrazellulärem Flussmittel, supplementiertem Basismedium in Port A, 22 μl Oligomycin in Port B, 25 μl FCCP in Port C und 27 μl R/A in Port D.
- Laden Sie die zellhaltigen Wells mit 20 μl Medium Control oder BPTES in Port A (Endkonzentration von 3 μM für BPTES), 22 μl Oligomycin in Port B (Endkonzentration von 2 μM für Oligomycin), 25 μl FCCP in Port C (Endkonzentration von 0,5 μM für FCCP) und 27 μl R/A (Endkonzentration von 0,5 μM für R/A) in Port D.
- Führen Sie das Experiment mit dem extrazellulären Flussbioanalysator unter Verwendung des Computersoftwareprogramms für das Assay-Design und die Analyse durch, das an das Gerät angeschlossen ist, unter Verwendung der folgenden Timing- und Injektionsstrategie:
- Für die Injektion mit Anschluss A für BPTES stellen Sie die Anzahl der Messungen auf 6 ein. Stellen Sie die Mischzeit auf 3 Minuten ein, mit einer Wartezeit von 0 Minuten und einer Messzeit von 3 Minuten.
- Für die Injektion mit Port B für Oligomycin stellen Sie die Anzahl der Messungen auf 3 ein. Stellen Sie die Mischzeit auf 3 Minuten ein, mit einer Wartezeit von 0 Minuten und einer Messzeit von 3 Minuten.
- Für die Injektion mit Anschluss C für FCCP setzen Sie die Anzahl der Messungen auf 3. Stellen Sie die Mischzeit auf 3 Minuten ein, mit einer Wartezeit von 6 Minuten und einer Messzeit von 3 Minuten.
- Für die Injektion mit Anschluss D für R/A setzen Sie die Anzahl der Messungen auf 3. Stellen Sie die Mischzeit auf 3 Minuten ein, mit einer Wartezeit von 0 Minuten und einer Messzeit von 3 Minuten.
- Überprüfen Sie alle Vertiefungen für den Sethintergrund, die Mediensteuerung und die experimentelle Gruppe. Speichern Sie den Assay, und führen Sie ihn aus. Beladen Sie zuerst das extrazelluläre Flux Pak mit A-D-Injektionen. Die Kalibrierung erfolgt, bis die Zellplatte zum Laden bereit ist.
- Entfernen Sie die Zellplatte sofort am Ende des Assays. Speichern Sie die Ergebnisse, um sie später auf einem anderen Gerät zu analysieren.
- Prüfen Sie mit einem Lichtmikroskop, ob die Zellen noch haften. 1x mit phosphatgepufferter Kochsalzlösung waschen und die Zellen mit einem bevorzugten Zelllysepuffer lysieren. Bei -80 °C lagern oder sofort auf Proteinkonzentration testen.
4. Analyse der Ergebnisse zur Bewertung von Glutamin als Brennstoffquelle für die mitochondriale Atmung in MH-S-Zellen
- Extrahieren Sie Protein aus den Zellen in jeder Vertiefung, um die Daten der Sauerstoffverbrauchsrate (OCR) auf das Protein zu normalisieren:
- Berechnen Sie die Konzentration (Nanogramm/Mikroliter [ng/μL]) des Proteins pro Vertiefung.
- Berechnen Sie die durchschnittliche Proteinkonzentration (ng/μl) für die gesamte extrazelluläre Flussmittel-Mikrokulturplatte.
- Teilen Sie die Proteinkonzentration jeder Vertiefung durch die durchschnittliche Proteinkonzentration der Platte, um einen Normalisierungsfaktor zu erhalten.
- Wenden Sie den Normalisierungsfaktor unter Verwendung des Computersoftwareprogramms für das Assay-Design und die Analyse auf die gewünschte Datendatei an.
- Stellen Sie sicher, dass die OCR-Werte aller Hintergrund-Holes nahe 0 liegen.
- Deaktivieren Sie alle Zellvertiefungen, bei denen die OCR zu Studienbeginn < 10 beträgt. Die Daten werden nicht gelöscht, aber die hervorgehobenen Wells werden in der exportierten Datendatei angezeigt.
- Exportieren Sie die Daten aus dem Computer-Softwareprogramm für das Assay-Design und die Analyse in ein Computer-Tabellenkalkulationsprogramm.
- Öffnen Sie die Datei in einem Computer-Tabellenkalkulationsprogramm und sortieren Sie alle Daten, indem Sie die OCR-Werte verringern. Löschen Sie Hintergrund-Wells, Wells, die zuvor abgewählt wurden (und nicht gelöscht wurden), alle Wells mit geringer Zellviabilität, Wells mit geringer Zellkonfluenz, Wells ohne vollständigen Abschluss der Injektionsstrategie, Wells mit ungenauen Proteinkonzentrationswerten, Wells mit OCR < 10 zu Studienbeginn und alle anderen vorgegebenen Kriterien.
- Sortieren Sie alle verbleibenden Daten nach Messung, dann nach Gruppe und dann nach OCR.
- Mittelung der technischen Replikate jedes biologischen N unabhängig voneinander durch Messung. Stellen Sie sicher, dass mindestens 18 verschiedene Werte (3 Ausgangswerte, 3 nach Medien/BPTES, 3 nach Oligomycin, 3 nach FCCP und 6 nach Rotenon/Antimycin A) pro Versuchsgruppe und biologischem N nach Mittelung der technischen Replikate vorhanden sind. Führen Sie dies für jedes biologische N separat durch, damit die Standardabweichung oder der Standardfehler des Mittelwerts später für die analysierten Daten berechnet werden kann.
- Kopieren Sie alle gemittelten Werte in eine neue Tabelle, getrennt nach experimentellen Gruppen.
- Mittelung der OCR-Werte nach Injektionsstrategie in jeder Versuchsgruppe.
- Berechnen Sie die Parameter der mitochondrialen Bioenergetik auf der Grundlage des Sauerstoffverbrauchs:
- Berechnen Sie die basale Atmung:
- Berechnen Sie die basale mitochondriale Atmung wie folgt:
Basale mitochondriale Atmung (pmol O2 verbraucht) = ([AVG OCR-Messungen #1, 2, 3 - AVG OCR-Messungen #16, 17, 18] x [Zeit #3 - Zeit #1])
HINWEIS: Die basale Atmung sollte zwischen der Medienkontrolle und der BPTES-Gruppe ähnlich sein, da dies vor der Injektion des Inhibitors geschieht. - Berechnen Sie die basale mitochondriale Atmung, die nicht von Glutamin abhängig ist, wie folgt:
Basale mitochondriale Atmung unabhängig von Glutamin (pmol O2 verbraucht) = ([AVG OCR-Messungen #4, 5, 6, 7, 8, 9 - AVG OCR-Messungen #16, 17, 18] x [Zeit #9 - Zeit #4])
HINWEIS: Die basale mitochondriale Atmung, die nicht von Glutamin abhängig ist, sollte geringer sein als die basale mitochondriale Atmung, es sei denn, die Zellen sind nicht stark von Glutamin abhängig. - Berechnen Sie die basale mitochondriale Atmung in Abhängigkeit von Glutamin wie folgt:
Basale mitochondriale Atmung abhängig von Glutamin (pmol O2 verbraucht) = ([AVG OCR-Messungen #1, 2, 3 - AVG OCR-Messungen #4, 5, 6, 7, 8, 9] x [Zeit #9 - Zeit #4])
HINWEIS: Die gesamte basale mitochondriale Atmung sollte nicht von der basalen mitochondrialen Atmung abgezogen werden und sollte nicht von Glutamin abhängig sein, da diese zu unterschiedlichen Zeitpunkten berechnet werden.
- Berechnen Sie die basale mitochondriale Atmung wie folgt:
- Berechnen Sie die ATP-gebundene Atmung wie folgt:
- Berechnen Sie die gesamte mitochondriale ATP-gebundene Atmung aus allen Brennstoffen wie folgt:
Gesamte mitochondriale ATP-gebundene Atmung aus allen Brennstoffen (pmol O2 verbraucht) = ([AVG OCR-Messungen #1, 2, 3 - AVG OCR-Messungen #10, 11, 12] x [Zeit #12 - Zeit #10])
HINWEIS: Die durchschnittliche OCR für die Messungen #10, 11 und 12 sollte zwischen der Medienkontrolle und der BPTES-Gruppe ähnlich sein, da Oligomycin die ATP-Synthase stark hemmen sollte und die Hemmung eines Kraftstoffwegs die gesamte ATP-gebundene Atmung nicht verändern sollte. - Berechnen Sie die ATP-gebundene mitochondriale Atmung, die nicht von Glutamin abhängig ist, wie folgt:
ATP-gebundene mitochondriale Atmung, die nicht von Glutamin abhängig ist (PMOL O2 verbraucht) = ([AVG OCR-Messungen #4, 5, 6, 7, 8, 9 - AVG OCR-Messungen #10, 11, 12] x [Zeit #12 - Zeit #10])
HINWEIS: Die ATP-gebundene mitochondriale Atmung, die nicht von Glutamin abhängig ist, sollte geringer sein als die ATP-gebundene mitochondriale Atmung, es sei denn, die Zellen sind nicht stark von Glutamin abhängig. - Berechnen Sie die ATP-verknüpfte mitochondriale Atmung in Abhängigkeit von Glutamin wie folgt:
ATP-gekoppelte mitochondriale Atmung abhängig von Glutamin (pmol O2 verbraucht) = Gesamtmenge an ATP-gebundener mitochondrialer Atmung aus allen Brennstoffen - ATP-gekoppelte mitochondriale Atmung nicht abhängig von Glutamin
- Berechnen Sie die gesamte mitochondriale ATP-gebundene Atmung aus allen Brennstoffen wie folgt:
- Berechnen Sie die maximale Atmung wie folgt:
- Berechnen Sie die gesamte maximale mitochondriale Atmung wie folgt:
Maximale mitochondriale Atmung insgesamt (pmol O2 verbraucht) = ([AVG OCR-Messungen #13, 14, 15 - AVG OCR-Messungen #16, 17, 18] x [Zeit #15 - Zeit #13]) - Berechnen Sie die maximale mitochondriale Atmung, die nicht von Glutamin abhängig ist, wie folgt:
Maximale mitochondriale Atmung unabhängig von Glutamin (PMOL O2 verbraucht) = ([AVG OCR-Messungen #13, 14, 15 der BPTES-Gruppen - AVG OCR-Messungen #16, 17, 18 der BPTES-Gruppen] x [Zeit #15 - #Time 13]) - Berechnen Sie die maximale mitochondriale Atmung in Abhängigkeit von Glutamin wie folgt:
Maximale mitochondriale Atmung abhängig von Glutamin (pmol O2 verbraucht) = Maximale mitochondriale Atmung insgesamt aus allen Brennstoffen - Maximale mitochondriale Atmung nicht abhängig von Glutamin
HINWEIS: Diese Berechnung kann verwendet werden, um die Zellabhängigkeit für die freie Kapazität von Glutamin im Vergleich zu anderen Kraftstoffen zu bestimmen. Je größer die maximale mitochondriale Atmung ist, desto größer ist die Abhängigkeit von Glutamin, die als BPTES-Gruppen ausgedrückt werden kann - Kontrollgruppen, um einen Verlust der maximalen mitochondrialen Atmung oder als Prozentsatz der Gesamtatmung zu zeigen.
- Berechnen Sie die gesamte maximale mitochondriale Atmung wie folgt:
- Berechnen Sie die freie Atemkapazität wie folgt:
- Berechnen Sie die gesamte freie Atemkapazität wie folgt:
Gesamte freie Atemkapazität (pmol O2 verbraucht) = ([AVG OCR-Messungen #13, 14, 15 - AVG OCR-Messungen #1, 2, 3] x [Zeit #15 - Zeit #13]) - Berechnen Sie die freie Atemkapazität, die nicht von Glutamin abhängig ist, wie folgt:
Freie Atmungskapazität, die nicht von Glutamin abhängig ist (PMOL O2 verbraucht) = ([AVG OCR-Messungen #13, 14, 15 der BPTES-Gruppen - AVG OCR-Messungen #1, 2, 3 der BPTES-Gruppen] x [Zeit #15 - Zeit #13]) - Berechnen Sie die von Glutamin abhängige freie Atemkapazität wie folgt:
Freie Atemkapazität in Abhängigkeit von Glutamin (verbrauchtes pmol O2 ) = Gesamte freie Atmungskapazität aus allen Brennstoffen - Freie Atmungskapazität, die nicht von Glutamin abhängig ist
HINWEIS: Diese Berechnung stellt die Flexibilität von Zellen dar, die von Glutamin abhängig sind, und ob sie bei Bedarf eine bessere Atmung ohne Glutamin erreichen können.
- Berechnen Sie die gesamte freie Atemkapazität wie folgt:
- Berechnen Sie die basale Atmung:
- Subtrahieren Sie die Medienkontrollen nach Inhibitorgruppen und normalisieren Sie bei Bedarf das verbrauchte pmolO 2 im Verhältnis zur Kontrollgruppe.
- Erstellen Sie Diagramme der bioenergetischen OCR-Profile (pmol O2/min), der basalen Atmung (pmol O2), der ATP-gebundenen Atmung (pmol O2), der maximalen Atmung (pmol O2) und der freien Atmungskapazität (pmol O2) in Abhängigkeit von Glutamin.
- Die mitochondrialen bioenergetischen Endpunktwerte sind in Balkendiagrammen darzustellen oder als Mittelwert der Inhibitorgruppen im Verhältnis zu den Medienkontrollgruppen auszudrücken. Wenn jedes biologische N separat berechnet wird, dann berechnen Sie die Standardabweichung oder den Standardfehler des Mittelwerts für analysierte Daten über alle biologischen Ns.
5. Statistische Analyse
- Führen Sie alle statistischen Analysen mit geeigneter Datenanalysesoftware durch.
- Für lineare Punkte von bioenergetischen OCR-Profilen führen Sie eine bidirektionale ANOVA durch, gefolgt von Tukeys Post-hoc-Analysen, um die Daten aus diesen vier Versuchsgruppen mit zwei Faktoren (Behandlungs- und Injektionsstrategie) zu vergleichen: Con + Medien, Con + BPTES, EtOH + Medien und EtOH + BPTES.
- Für Balkendiagramme der basalen Atmung, der ATP-gebundenen Atmung, der maximalen Atmung und der freien Atmungskapazität in Abhängigkeit von Glutamin führen Sie Student's t-Test-Analysen durch, um die Daten von zwei Versuchsgruppen, Con + BPTES und EtOH + BPTES, zu vergleichen.
- Präsentieren Sie die Daten als Mittelwert ± Standardfehler des Mittelwerts (SEM). Betrachten Sie p < 0,05 als statistisch signifikant.
Ergebnisse
Eine chronische EtOH-Exposition verringert die Glutaminabhängigkeit in MH-S-Zellen.
Die Glutaminolyse ist ein kritischer Weg für die mitochondriale Atmung und unterstützt Glutamin als wichtige Brennstoffquelle für die zelluläre Bioenergetik. Um festzustellen, ob eine chronische Exposition gegenüber EtOH die Abhängigkeit von MH-S-Zellen von Glutamin als Brennstoffquelle für die mitochondriale Atmung verändert, wurden MH-S-Zellen ohne EtOH-Kontrolle (Con) oder EtOH behandelt, und die OCR wurde im Laufe der Zeit als Reaktion auf serielle Injektionen von Reagenzien gemessen, die mit der mitochondrialen Atmung assoziiert sind. Bioenergetische OCR-Profile als Reaktion auf serielle Injektionen von Oligomycin (ATP-Synthase-Inhibitor), FCCP (Protonen-Entkoppler) und R/A (mitochondriale Komplex I- bzw. Komplex III-Inhibitoren) werden verwendet, um andere Parameter der mitochondrialen Bioenergetik zu berechnen, wie z. B. ATP-gebundene Atmung, maximale Atmung und freie Atemkapazität. Bei allen gezeigten Daten handelt es sich um zusätzliche biologische Replikate von experimentellen Gruppen Con + media, Con + BPTES und EtOH + media, EtOH + BPTES MH-S-Zellen, die in Crotty et al.11 veröffentlicht wurden. Wie in Abbildung 2A gezeigt, verringerte Oligomycin die OCR aufgrund der Hemmung des Komplexes V, FCCP erhöhte die OCR aufgrund der mitochondrialen Entkopplung des Membranpotentials und der mitochondrienabhängigen ATP-Generation12 und R/A schaltete die mitochondrienabhängige OCR effektiv ab. Diese Profile der bioenergetischen OCR-Reaktionen auf die seriellen Injektionen stimmen mit dem Benutzerhandbuch zur Bewertung von mitochondrialem Stress unter Verwendung eines extrazellulären Flussbioanalysatorsüberein 13,14.
Nach der Messung der basalen OCR in Con- und EtOH-behandelten MH-S-Zellen wurde eine Injektion von Media Control oder BPTES, einem Inhibitor der Glutaminase 1, geladen. Con + Medien versus Con + BPTES MH-S Zellen und EtOH + Medien versus EtOH + BPTES MH-S Zellen zeigten keine Unterschiede in den bioenergetischen OCR-Profilen (Abbildung 2A). EtOH + BPTES MH-S-Zellen zeigten eine Abnahme der Glutamin-abhängigen Basalatmung im Vergleich zu Con + BPTES (Messung #4 im Vergleich zu Messung #3 in Abbildung 2A und Abbildung 2B), was darauf hindeutet, dass EtOH die basale Glutaminoxidation der MH-S-Zellen verringert und zur mitochondrialen Atmung beiträgt. EtOH + BPTES MH-S-Zellen zeigten im Vergleich zu Con + BPTES einen Verlust der Glutamin-abhängigen-ATP-gebundenen mitochondrialen Atmung (Abbildung 2C). Obwohl EtOH + BPTES MH-S-Zellen im Vergleich zu Con + BPTES einen abgestumpften Verlust der glutaminabhängigen maximalen Atmung zeigten (Abbildung 2D), zeigten EtOH + BPSTES MH-S-Zellen eine Abnahme der Glutamin-abhängigen freien Atmungskapazität im Vergleich zu Con + BPTES (Abbildung 2E). Diese Ergebnisse deuten darauf hin, dass EtOH MH-S-Zellen die Fähigkeit haben, für die Atmung stärker von Glutamin abhängig zu sein, als wenn sie mit FCCP gestresst sind, aber dass sie dazu möglicherweise nicht in der Lage sind, da ein Anstieg des Glutaminbedarfs durch eine Abnahme der Glutamin-Bioverfügbarkeit aufgewogen wird.
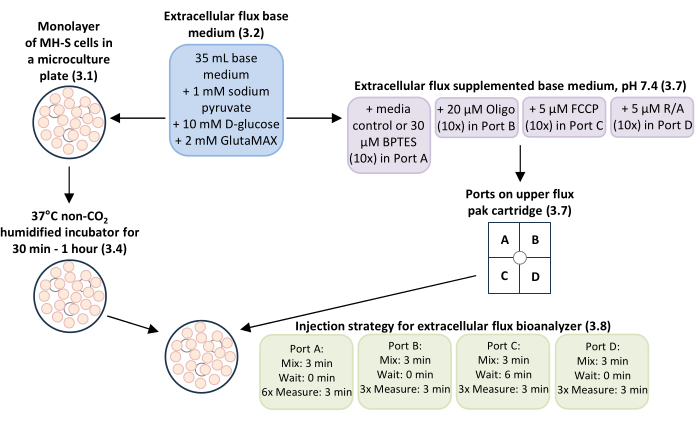
Abbildung 1: Allgemeiner Überblick über den Arbeitsablauf zur Messung der glutaminabhängigen mitochondrialen Atmung und Bioenergetik in MH-S-Zellen, einer Alveolarmakrophagen-Zelllinie der Maus. Monolayer von MH-S-Zellen, die in extrazellulären Flussmittel-Mikrokulturplattenvertiefungen kultiviert wurden (Schritt 3.1), wurden mit extrazellulärem Flussmittel-Basismedium inkubiert und mit Zusätzen (Schritt 3.2) bei 37 °C in einem Nicht-CO2 -befeuchteten Inkubator für 30 min-1 h inkubiert (Schritt 3.4). Das extrazelluläre Flussmittel-Basismedium mit Zusätzen (Schritt 3.2) wurde als Medienkontrolle und zur Verdünnung der Arbeitskonzentrationen des Glutaminoxidationsinhibitors BPTES auf eine Endkonzentration von 3 μM, des mitochondrialen Komplex-V-Inhibitors Oligomycin (Oligo) auf eine Endkonzentration von 0,5 μM, des mitochondrialen Entkopplers Carbonylcyanid-p-trifluormethoxyphenylhydrazon (FCCP) auf eine Endkonzentration von 0,5 μM und der mitochondrialen Complex-I- und Complex-III-Inhibitoren Rotenon/Antimycin A (R/A) auf 0,5 μM verwendet Endkonzentration für die Ladeöffnungen A-D in der oberen extrazellulären Flussmittel-Pak-Kartusche (Schritt 3.7). Die Injektionsstrategie für Misch-, Warte- und Messzeiten für den Versuchslauf mit dem extrazellulären Flussbioanalysator lautete: 3 Minuten Mischzeit, 0 Minuten Wartezeit und 6 Messungen von 3 Minuten Messzeit für Anschluss A (Medienkontrolle oder BPTES); 3 min Mischzeit, 0 min Wartezeit und 3 Messungen à 3 min Messzeit für Port B (Oligo); 3 min Mischzeit, 6 min Wartezeit und 3 Messungen à 3 min Messzeit für Port C (FCCP); und 3 min Mischzeit, 0 min Wartezeit und 3 Messungen von 3 min Messzeit für Port D (R/A). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
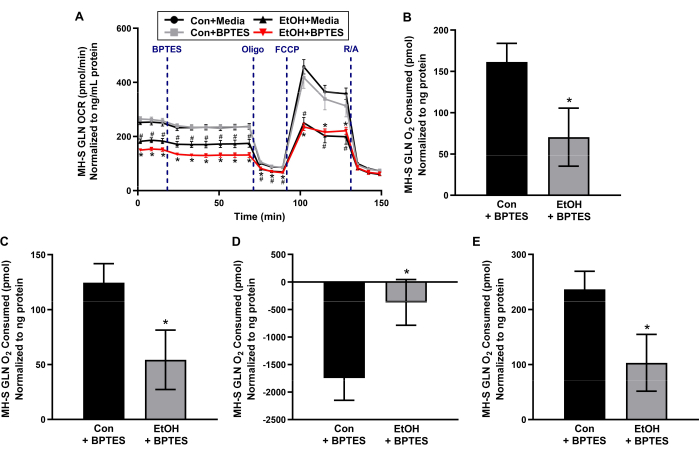
Abbildung 2: Chronisches Ethanol (EtOH) verringert die glutaminabhängige mitochondriale Atmung in MH-S-Zellen, einer Alveolarmakrophagen-Zelllinie der Maus. MH-S-Zellen wurden unbehandelt (Con) oder mit EtOH (0,08 %, 72 h) behandelt, und die Sauerstoffverbrauchsrate (OCR) über die Zeit wurde mit einem extrazellulären Flussbioanalysator vor und nach der Injektion mit Medienkontrolle oder einem Glutamin (GLN)-Oxidationshemmer (3 μM BPTES) gemessen, gefolgt von seriellen Injektionen von mitochondrialen Komplex-V-Inhibitoren (0,5 μM Oligomycin, Oligo), mitochondrialer Entkoppler (0,5 μM Carbonylcyanid-p-trifluormethoxyphenylhydrazon, FCCP) und mitochondriale Inhibitoren des Komplexes I und des Komplexes III (0,5 μM Rotenon/0,5 μM Antimycin A, R/A). (A) Bioenergetische OCR-Profile wurden verwendet, um die glutaminabhängige (B) basale Atmung, (C) ATP-gebundene Atmung, (D) maximale Atmung und (E) freie Atemkapazität zu berechnen. Lineare Punkte stellen Mittelwerte ± SEM dar (n = 4, #p < 0,05 gegenüber Con + Medien und *p < 0,05 gegenüber Con + BPTES, unidirektionale ANOVA mit Tukeys Post-hoc). Die Balken stellen die Mittelwerte ± SEM dar (n = 4, *p < 0,05 gegenüber Con + BPTES, Student's t-Test). Bei den vorgestellten Daten handelt es sich um zusätzliche biologische Replikate für die medienkontrollierten und BPTES-behandelten Versuchsgruppen von unbehandelten kontrollierten und chronischen EtOH-exponierten MH-S-Zellen, die in Crotty et al.11 veröffentlicht wurden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Diskussion
Bei den hierin vorgestellten Daten handelt es sich um zusätzliche biologische Replikate für unbehandelte und chronische EtOH-exponierte MH-S-Zellen, die mit Medienkontrolle oder BPTES behandelt wurden und in Crotty et al.11 veröffentlicht sind. Das beschriebene Protokoll wird verwendet, um die Abhängigkeit von EtOH-exponierten MH-S-Zellen von Glutamin als Brennstoffquelle für die mitochondriale Atmung und Bioenergetik unter Verwendung eines extrazellulären Flussbioanalysators zu bewerten. Das Protokoll enthält mehrere kritische Schritte. Erstens sind die Bildung und Konfluenz von MH-S-Zellen wichtig. MH-S-Zellen werden zunächst in extrazellulären Flussmittel-Mikrokulturvertiefungen bei geringer Konfluenz kultiviert und verwendet, wenn sich die Zellen in einer Monoschicht mit einer endgültigen Konfluenz von 90 % befinden. Da die EtOH-Exposition von MH-S-Zellen 72 h betrug, wurde die endgültige Konfluenz von 90% vor dem experimentellen Lauf auf dem extrazellulären Flussbioanalysator erreicht. Dies stimmt mit anderen Berichten über die Bildung von Zellmonolagen und eine Konfluenz von 90 % bis 100 % überein, bevor diese Experimente durchgeführt wurden 15,16,17. Zweitens ist die Normalisierung der mitochondrialen Atmungswerte gegenüber Protein in jeder Probe von entscheidender Bedeutung. Einige Studien normalisieren die mitochondriale Bioenergetik auf die Zellzahl 18,19,20. Die serielle Injektionsstrategie in diesem Assay ist jedoch darauf ausgelegt, die Mitochondrien sequentiell zu belasten. In Zellen, die primär auf oxidative Phosphorylierung angewiesen sind, wie z.B. AMs, kann dies während des Versuchslaufs auf dem extrazellulären Flussbioanalysator zum Zelltod führen. Daher kann es sein, dass die Zellzahlen vom Beginn des Experiments bis zum Ende des Versuchslaufs nicht konsistent sind, und die Normalisierung der mitochondrialen Atmungswerte auf Protein ist optimal21,22. Hier wird ein Proteinnormalisierungsfaktor vorgeschlagen, der das durchschnittliche Protein über alle Wells hinweg verwendet, um genauere zellspezifische OCR-Profile zu liefern. Drittens ist die Analyse der Ergebnisse über biologische Replikate hinweg von entscheidender Bedeutung. Manchmal werden repräsentative Bilder von mitochondrialen bioenergetischen Profilen präsentiert22,23 anstelle der durchschnittlichen mitochondrialen Atmung über mehrere biologische Replikatehinweg 10,11,24. Diese repräsentativen Bilder liefern jedoch kein vollständiges Bild der Unterschiede zwischen den Experimenten. Durch die separate Berechnung jedes biologischen Replikats kann der Standardfehler des Mittelwerts die Variation der mittleren mitochondrialen Atmungswerte über alle biologischen Replikate zeigen und zur Berechnung statistischer Unterschiede zwischen mitochondrialen bioenergetischen Profilen verwendet werden.
Vor der Ausführung des Assays auf dem extrazellulären Flussmittel-Bioanalysator musste die optimale Zelldichte der MH-S-Zellen für die Kultivierung in der extrazellulären Flussmittel-Mikrokulturplatte bestimmt werden, um eine Monoschicht von Zellen in jeder Vertiefung zu erreichen. Da auch die geeigneten Konzentrationen von Oligo und FCCP für MH-S-Zellen bestimmt werden mussten, wurden Tests verschiedener MH-S-Zelldichten mit seriellen Verdünnungen von Oligo und FCCP durchgeführt21,25. Die anfängliche Kultivierung von 10.000-15.000 MH-S-Zellen führte nach 72 Stunden Exposition mit und ohne EtOH10 zu einer Monoschicht von Zellen mit einer Konfluenz von 90 %. Basierend auf diesen Optimierungsexperimenten wurden 2 μM Oligo und 0,5 μM FCCP als Mindestkonzentrationen dieser Reagenzien bestimmt, die Veränderungen der mitochondrialen Atmung verursachten10.
Echtzeitmessungen der mitochondrialen Atmung zu Studienbeginn und nach der Behandlung mit BPTES, einem Inhibitor von Glutaminase 1, der die enzymatische Umwandlung von Glutamin in Glutamat verhindert, werden verwendet, um die Glutaminabhängigkeit für die basale Atmung in Con- und EtOH-exponierten MH-S-Zellen zu bestimmen. Eine Einschränkung der in dieser Studie vorgestellten Daten besteht darin, dass die Rolle von kurz- und mittelkettigen Fettsäuren als Brennstoffquellen für die mitochondriale Atmung und Bioenergetik zusätzlich zu Glutamin in EtOH-exponierten MH-S-Zellen nicht untersucht wurde. Die Ergebnisse der vorherigen Studie von Crotty et al.11 deuteten darauf hin, dass EtOH MH-S-Zellen eine Verschiebung von der pyruvatabhängigen Atmung zur Glutamin-abhängigen Atmung zeigten, ohne den Verlust der gesamten mitochondrialen Atmung vollständig zu kompensieren. Darüber hinaus konnte durch die Durchführung des gleichen Experiments mit einer kombinierten Injektion von UK5099 (einem Pyruvat-Oxidationshemmer) und Etomoxir (einem langkettigen Fettsäureoxidationshemmer) der Beitrag von Glutamin in Abwesenheit von Pyruvat und Fettsäuren als Brennstoffquellen für die mitochondriale Atmung in EtOH-exponierten MH-S-Zellen bestimmt werden.
Die mitochondriale Atmung wird seit fast siebzig Jahren mit einer Clark-Elektrode gemessen26, und es gibt auch plattenbasierte Fluoreszenzassays zur Messung der mitochondrialen Atmung27. Diese Methoden sind jedoch deutlich zeitintensiver und/oder verfügen nicht über die Sensitivität von Messungen, die mit einem extrazellulären Flussbioanalysator erreicht werden kann. Der Vorteil der Verwendung eines extrazellulären Flussbioanalysators zur Beurteilung von Glutamin als Brennstoffquelle für die mitochondriale Atmung und Bioenergetik besteht darin, dass Experimente mit mehreren biologischen Replikaten gleichzeitig durchgeführt werden können. Darüber hinaus ermöglicht der extrazelluläre Flussbioanalysator die Flexibilität, an isolierten Mitochondrien oder intakten Zellen zu experimentieren. Für Zellen, die keine hohe Konzentration an Mitochondrien aufweisen, wie z. B. glatte Muskelzellen der Lungenarterie, ist es eine Herausforderung, genügend Mitochondrien aus begrenzten Proben zu isolieren. Mit dem extrazellulären Fluss-Bioanalysator kann die mitochondriale Atmung in intakten glatten Muskelzellen der Lungenarterie28 oder primären Maus-AMs 10,11 gemessen werden. Das in dieser Studie verwendete Protokoll könnte verwendet werden, um Glutamin als Brennstoffquelle für die mitochondriale Atmung und Bioenergetik anderer Proben mit begrenzter Stichprobengröße, wie z. B. primären humanen AMs, zu bewerten. Wir haben bereits gezeigt, dass EtOH-induzierter mitochondrialer oxidativer Stress und Störungen in MH-S-Zellen ein ähnliches Profil der mitochondrialen Dysregulation in primären AMs von Mäusen und humanen AM aufweisen 6,7,11,28,29,30. Insgesamt unterstützen Studien die Verwendung dieser Methode zur Bewertung von Glutamin als Brennstoffquelle für die mitochondriale Atmung und Bioenergetik bei AMs unter pathologischen Bedingungen, die durch mitochondrialen oxidativen Stress gekennzeichnet sind.
Offenlegungen
Alle Autoren haben keine relevanten finanziellen Interessenkonflikte zu berichten.
Danksagungen
Wir danken Sarah S. Chang, BS, für ihre Beiträge zur ersten Zellkultur und zur Vorbereitung von MH-S-Zellen für Experimente. Diese Arbeit wurde unterstützt durch NIAAA R01-AA026086 bis SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 bis KMC und NIGMS T32-GM008602 an Randy Hall, Department of Pharmacology and Chemical Biology, Emory University. Der Inhalt dieses Berichts gibt nicht die Ansichten des Ministeriums für Veteranenangelegenheiten oder der US-Regierung wieder.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 15 mL konisches Röhrchen | VWR International, Inc. | 21008-670 | Wird zur Herstellung von Stammkonzentrationen von Mitochondrien-bezogenen Reagenzien verwendet. |
| 2-Mercaptoethanol | Sigma Aldrich Co. | M6250 | Wird zur Kultivierung von MH-S-Zellen verwendet. |
| Zellschaber | Dot Scientific, Inc. | 70-1180 | Wird zum Schaben von MH-S-Zellen aus T-75-Kolben verwendet. |
| Countess 3 FL Instrument: Zellzähler | Fisher Scientific Company | AMQAF2000 | Wird zum Zählen der Anzahl der MH-S-Zellen verwendet, die für Experimente auf die Platte gebracht werden. |
| D-Glukose | Sigma Aldrich Co. | G8270 | Wird für das extrazelluläre Flussmittel-Basismedium verwendet. |
| Ethanol | Fisher Scientific Company | 4355720 | Experimentelle Behandlung von MH-S-Zellen. |
| Fötales Rinderserum | Sciencell Research Laboratories | 500 | Wird zur Kultivierung von MH-S-Zellen verwendet. |
| Gentamicin | Sigma Aldrich Co. | G1397 | Wird zur Kultivierung von MH-S-Zellen verwendet. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Wird für das extrazelluläre Flussmittel-Basismedium verwendet. |
| GraphPad Prism 10.2.3 | GraphPad Software | N/A | Software für statistische Analysen. Nach dem Kauf bei https://www.graphpad.com/features zum Download erhältlich. |
| MH-S-Zellen | American Type Culture Collection | CRL-2019 | Maus-Alveolarmakrophagen-Zelllinie. |
| Mikrozentrifugenröhrchen | USA Scientific, Inc. | 4036-3212 | Wird zur Herstellung von Arbeitskonzentrationen von Mitochondrien-bezogenen Reagenzien verwendet. |
| Microsoft 365 Excel: Computer-Tabellenkalkulationsprogramm | Microsoft | N/A | Software für Datenorganisation und mitochondriale Bioenergetik-Berechnungen. Nach dem Kauf bei https://www.microsoft.com/en-us/microsoft-365/excel herunterladbar. |
| Penicillin/Streptomycin | Fisher Scientific Company | 15140122 | Wird zur Kultivierung von MH-S-Zellen verwendet. |
| Phosphatgepufferte Kochsalzlösung | VWR International, Inc. | 45000-446 | Wird zum Waschen von MH-S-Zellen verwendet. |
| RPMI-1640 | VWR International, Inc. | 45000-396 | Wird zur Kultivierung von MH-S-Zellen verwendet. |
| Seahorse Wave Pro Software: Computer-Softwareprogramm für das Design und die Analyse von Assays | Agilent Technologies, Inc. | N/A | Der Computer ist an das Seahorse XF Pro Analyzer angeschlossen. Herunterladbar unter https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Seahorse XF Base Medium: extrazelluläres Flussmittel-Basismedium, pH 7,4 | Agilent Technologies, Inc. | 103334-100 | Wird zur Vorbereitung von Stamm- und Arbeitskonzentrationen von mitochondrienbezogenen Reagenzien und zur Kultivierung von MH-S-Zellen vor Versuchsläufen verwendet. |
| Seahorse XF Glutamin-Oxidations-Stresstest-Kit | Agilent Technologies, Inc. | 103674-100 | Enthält BPTES, Oligomycin, FCCP und Rotenon/Antimycin A. |
| Seahorse XF Pro Analyzer: Bioanalysator für extrazelluläre Flüsse | Agilent Technologies, Inc. | N/A | Bioanalysator für extrazelluläre Flussmittel. |
| Seahorse XFe96 FluxPak: 96-Well-Kartuschen für extrazelluläre Flux-Paks, 96-Well-Mikrokulturplatten für extrazelluläre Flux-Mikrokulturen und Kalibrierlösung | Agilent Technologies, Inc. | 102416-100 | Zur Vorbereitung von MH-S-Zellen für Assays mit einem extrazellulären Flussbioanalysator. |
| Serologische Pipette | Santa Cruz Biotechnologie, Inc. | sc-550678 | Wird zum Entfernen von Medien aus MH-S-Zellen verwendet. |
| Natriumbicarbonat | Sigma Aldrich Co. | S6014 | Zur Kultivierung von MH-S-Zellen. |
| Natriumpyruvat | Sigma Aldrich Co. | P4562 | Wird für das extrazelluläre Flussmittel-Basismedium verwendet. |
| T-75 Kolben | Santa Cruz Biotechnology, Inc. | sc-200263 | Wird zur Kultivierung von MH-S-Zellen verwendet. |
Referenzen
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Nachdrucke und Genehmigungen
