Zelllinien sind nützlich für Studien an intrazellulären Organismen, die nicht außerhalb ihrer Wirtszellen kultiviert werden können. Obwohl Wolbachia-infizierte Linien viele Entdeckungen ermöglicht haben, kann die Heterogenität innerhalb dieser Linien zu unterschiedlichen experimentellen Ergebnissen führen. Wir stellen ein Protokoll zur Generierung von Einzelzellklonen und kontinuierlichen Kulturen aus Wolbachia-infizierten JW18-Zellen vor.
Methodenartikel
Generierung monoklonaler Kulturen aus Wolbachia-infizierten Drosophila melanogaster JW18-Zelllinien
In diesem Artikel
Zusammenfassung
Zusammenfassung
Zelllinien sind weit verbreitete Modelle in der biologischen Forschung. Sie sind besonders nützlich bei Untersuchungen an intrazellulären Bakterien, die außerhalb von Wirtsorganismen nicht effizient vermehrt werden können. Wolbachia, ein intrazellulärer Symbiont vieler wirbelloser Tiere, induziert bei seinen Insektenwirten starke reproduktive und antivirale Effekte. Wolbachia-infizierte Insektenzellen wurden häufig zur Untersuchung von Wolbachia-Phänotypen verwendet. Diese Zelllinien bestehen jedoch oft aus gemischten Populationen von Zellen mit potenziell unterschiedlichen Phänotypen und Reaktionen auf experimentelle Behandlungen. Insbesondere wurde berichtet, dass Zelllinien mit Wolbachia von einer Passage zur nächsten variable Wachstumsraten und eine variable Prävalenz von Wolbachia-Infektionen aufweisen. Um hier Abhilfe zu schaffen, haben wir monoklonale Zelllinien aus der Wolbachia-infizierten Drosophila melanogaster-abgeleiteten JW18-Zelllinie erzeugt. Diese klonalen Linien wurden zu unterschiedlichen Zeitpunkten etabliert und zeigen unterschiedliche Wolbachia-Infektionsstatus . Diese Variabilität deutet darauf hin, dass jede Behandlung, die auf eine elterliche JW18-Population angewendet wird, zur Selektion von Subpopulationen führen könnte, anstatt die Physiologie der gesamten Kultur zu beeinflussen. Hier stellen wir ein Protokoll zur Generierung von Einzelzellklone und kontinuierlichen klonalen Kulturen aus Wolbachia-infizierten Insektenzellen vor, das kontrolliertere und reproduzierbarere Experimente ermöglicht.
Einleitung
Drosophila melanogaster-Zellen werden häufig in genetischen Studien, in der Krankheitsforschung und als Plattform für das Hochdurchsatz-Wirkstoffscreening eingesetzt1. Sie sind auch hilfreich bei der Untersuchung einer der am weitesten verbreiteten intrazellulären Mikroben auf dem Planeten: Wolbachia. Wolbachia ist ein gramnegatives obligates intrazelluläres Bakterium, das in 40-70% der Insektenarten vorkommt 2,3,4, wo es sich maternal ausbreitet und Fortpflanzungsmanipulationen induziert 5,6,7,8. Wolbachia kann infizierten Wirten auch einen antiviralen Schutz bieten 9,10,11,12,13,14,15, der zusammen mit reproduktiven Manipulationen ausgenutzt wird, um die Übertragung von Arboviren von Mücken auf den Menschen zu kontrollieren 16,17. In verschiedenen Systemen wurde gezeigt, dass Wolbachia die Apoptosekontrolliert 18, essentielle Nährstoffeliefert 19 und die Gen- und Proteinexpression verändert 20,21,22,23,24,25.
Zelllinien erwiesen sich aufgrund ihrer einfachen Biologie, ihrer Bequemlichkeit und ihrer Fähigkeit, sich in großen Mengen zu vermehren, als Modell für die Untersuchung von Wolbachia. Zelllinien haben sich als nützlich erwiesen, um Wolbachia an die Symbiose mit neuen Wirten voranzupassen26 und Wolbachia die Akkumulation von Mutationen zu ermöglichen27,28. Sie wurden verwendet, um nach Anti-Wolbachia-Verbindungen zu suchen, die bei der Behandlung von Filarienkrankheiten hilfreich sein können29 und die Wolbachia-Wirt-Translationsinteraktionzu untersuchen 30. Obwohl Zelllinien in Studien zu Wolbachia-Symbiosen unverzichtbar sind29,30,31, sind die Mechanismen, die den meisten Wolbachia-Phänotypen zugrunde liegen, unbekannt. Dies deutet darauf hin, dass das Zellkulturmodellsystem noch verbessert werden kann.
Wolbachia-infizierte Insektenzelllinien werden aus Insektenembryonen und -larven gewonnen. Aa23, abgeleitet von Aedes albopictus-Embryonen, war die erste stabile Wolbachia-infizierte Linie32, die anschließend für viele Studien an Wolbachia-Symbiose verwendet wurde 33,34,35. Die JW18-Zelllinie war eine der ersten natürlich Wolbachia-infizierten Linien, die aus D. melanogasterhervorgegangen sind 29,36. Diese Linie, die aus 1 bis 15 h alten Embryonen von Mel-infiziertenFliegen stammt, diente auch als Quelle für Wolbachia für andere Drosophila-Zelllinien: 1182-4H und S2R+37. Da Embryonen einen hohen Anteil an pluripotenten Zellen haben, können sie durch die Anpassung an das Wachstum in Kunststoffen neue Eigenschaften erwerben, die manchmal für einzelne Zelllinien unterschiedlich sind. Dies könnte die Heterogenität der Zellmorphologien und der Wolbachia-Infektionshäufigkeit erklären, die in diesen Zellen zu einem beliebigen Zeitpunkt und über Generationen hinweg beobachtet wurden29.
Die zelluläre Vielfalt innerhalb der JW18-Kultur gibt Anlass zur Sorge, da Studien an Mückenzelllinien wie Aag2 gezeigt haben, dass monoklonale und elterliche Zelllinien aufgrund unterschiedlicher Zelleigenschaften unterschiedlich auf Behandlungen ansprechenkönnen 38. Folglich könnte die Verabreichung von Behandlungen an eine gemischte Zellpopulation zu irreführenden Ergebnissen führen. Um das Ansprechen einer homogenen Zellpopulation auf eine Behandlung (nicht die Selektion nach einzelnen Zelltypen) zu untersuchen, haben wir monoklonale Kulturen aus der elterlichen JW18-Zelllinie erzeugt. Es gab bisher keine Versuche, aus diesen Zellen monoklonale Kulturen zu erzeugen. Das Protokoll umfasst die Isolierung einzelner Zellen aus der elterlichen JW18-Zelllinie, gefolgt von deren Wartung und Transfer in Kolben, um kontinuierliche klonale Kulturen zu etablieren. Wir überprüften den Wolbachia-Infektionsstatus einzelner Linien und zeigten, dass sie sich in diesem Schlüsselmerkmal unterscheiden. Homogene Zellkulturen sind entscheidend, um die Genauigkeit und Reproduzierbarkeit zukünftiger Experimente zu gewährleisten.
Protokoll
HINWEIS: Alle Arbeiten mit lebenden Zellen und deren Medien müssen in einer biologischen Sicherheitswerkbank durchgeführt werden, um eine Kontamination zu vermeiden.
1. Vorbereitung der Medien
- Bereiten Sie frisches Nährmedium vor, indem Sie Shield und Sang Insect Medium mit 10 % fötalem Rinderserum (FBS) ergänzen.
- Verbrauchte und konditionierte Medien
- JW18-Zellen werden in einem 25cm großen 2-Kolben gezüchtet, der frisches Shield and Sang Insect Medium enthält, das mit 10 % FBS bei 25 °C ergänzt wird. Inkubieren, bis die Zellen die Konfluenz erreichen (~1 Woche).
- Filtern Sie das 1 Woche alte verbrauchte Zellkulturmedium, das für das Wachstum der Zellen verwendet wurde, um Wolbachia, Zelltrümmer und andere Verunreinigungen zu entfernen: Verwenden Sie einen 5-μm-Sterilfilter und dann einen 0,2-μm-Sterilfilter, der auf eine 50-ml-Spritze aufgesetzt ist.
- Bereiten Sie konditioniertes Medium vor, indem Sie frisches Medium mit 20 % verbrauchtem Medium ergänzen. Bereiten Sie genügend konditioniertes Medium für eine 96-Well-Platte (~30 ml) vor; Mischen Sie mit einer serologischen Pipette 6 ml des filtrierten verbrauchten Mediums mit 24 mL frischem Shield and Sang Insect Medium, das mit 10 % FBS ergänzt wird.
2. Vorbereitung der 96-Well-Platte
- Herstellung der JW18-Zellsuspension
- Kratzen Sie die Zellen mit einem Zellschaber aus einem konfluenten, 1 Wochen alten Kolben ab und resuspendieren Sie sie mit einer serologischen Pipette.
- Zählen Sie die Zellen mit einer Neubauer-Kammer und verdünnen Sie sie mit konditioniertem Medium, um eine Endkonzentration von 2 x 10³ Zellen/ml zu erreichen.
- Zugabe von konditioniertem Medium zur Platte
- Das vorbereitete konditionierte Medium in ein Reagenzreservoir überführen.
- Geben Sie mit einer Mehrkanalpipette 100 μl konditioniertes Medium in jede Vertiefung der 96-Well-Platte, mit Ausnahme der Vertiefung A1.
- Serielle Verdünnung der Zellsuspension
- Geben Sie 200 μl der Zellsuspension in die Vertiefung A1.
- Übertragen Sie mit einer Einkanalpipette 100 μl von Vertiefung A1 in Vertiefung B1 und mischen Sie vorsichtig (Blasen vermeiden) wie in Abbildung 1A.
- Wiederholen Sie die serielle Verdünnung in Spalte 1 und verwerfen Sie die letzten 100 μl aus der letzten Vertiefung.
- Verdünnung über die Platte
- Geben Sie 100 μl konditioniertes Medium in jede Vertiefung der ersten Spalte, bis zu einem Gesamtvolumen von 200 μl. Vorsichtig mischen.
- Mit der Mehrkanalpipette werden 100 μl von der ersten Säule in die zweite übertragen. Vorsichtig mischen.
- Wiederholen Sie diesen Vorgang für alle Spalten (1-12) auf der Platte (Abbildung 1A).
- Nach der Resuspension 100 μl aus der letzten Spalte verwerfen. Zu diesem Zeitpunkt enthält jede Vertiefung 100 μl Zellsuspension.
- Geben Sie weitere 100 μl Kulturmedium in alle Vertiefungen, so dass das endgültige Volumen in jeder Vertiefung 200 μl beträgt.
3. Identifizierung einzelner Zellen
- Decken Sie die Platte ab, versiegeln Sie sie mit Parafilm und beschriften Sie sie entsprechend.
- Beobachten Sie die Platte unter einem Mikroskop und überprüfen Sie jede Vertiefung sorgfältig auf einzelne Zellen (Abbildung 1B). Achten Sie darauf, die Vertiefungen und die Ränder gründlich zu scannen, um das Vorhandensein von nur einer Zelle zu bestätigen.
HINWEIS: Dies ist einer der wichtigsten Schritte im Protokoll. - Notieren Sie die Well-Anzahl der einzelnen Zellen auf einer 96-Well-Plattenkarte (auf Papier).
HINWEIS: Einzelne Zellen sind eher in Vertiefungen am rechten und unteren Rand der Platte zu finden. - Sobald die einzelnen Zellen identifiziert und markiert sind, lagern Sie die Platte in einem Inkubator bei 25 °C. Überwachen Sie die Zellen alle 2 Tage.
4. Wartung und Transfer von Zellen
- Überwachung von Zellen
HINWEIS: JW18-Zellen brauchen in der Regel 3 Tage, um sich von einer einzelnen Zelle zu teilen, und klonale Populationen können unterschiedlich schnell wachsen (Abbildung 2).- Überwachen Sie die Vertiefungen alle 2-3 Tage auf bakterielle Kontamination und um sicherzustellen, dass das Medium nicht ausgetrocknet ist. Wenn die Vertiefungen auszutrocknen scheinen, füllen Sie sie nach Bedarf mit frischem Medium auf.
- Zellerweiterung
- Sobald die Zellen die Konfluenz in der 96-Well-Platte erreicht haben, übertragen Sie sie auf eine 24-Well-Platte (Abbildung 1D).
- Anschließend werden die Zellen auf eine 6-Well-Platte und schließlich in einen Kolben überführt (Abbildung 1E, F).
HINWEIS: Diese schrittweise Expansion erhöht die Wahrscheinlichkeit, dass eine kontinuierliche klonale Zelllinie etabliert wird.
- Einfrieren von Zellen
- Sobald eine klonale Kultur etabliert ist, frieren Sie einen Teil der Zellen für die zukünftige Verwendung ein.
- Die Zellen werden mit einem Zellschaber aus dem Kolben geschabt und in ein 15-ml-Zentrifugenröhrchen überführt. Zentrifugieren Sie bei 250 x g für 5 min bei 4 °C.
- Bereiten Sie ein 2x Gefriermedium vor (Shield und Sang Insect Medium ergänzt mit 20% FBS und 10% DMSO).
- Nach der Zentrifugation wird ein Teil des Überstands verworfen, so dass die Hälfte des gewünschten Endvolumens übrig bleibt. Geben Sie das gleiche Volumen des 2x Gefriermediums in den restlichen Überstand und resuspendieren Sie das Pellet vorsichtig mit einer Pipette.
- Aliquotieren Sie 1 ml der Suspension in jedes 1,5-ml-Kryoröhrchen und stellen Sie die Durchstechflaschen auf Eis. Lagern Sie die Fläschchen über Nacht bei -80 °C und stellen Sie sie am nächsten Tag zur Langzeitlagerung in einen Flüssigstickstofftank um.
- Sobald eine klonale Kultur etabliert ist, frieren Sie einen Teil der Zellen für die zukünftige Verwendung ein.
5. PCR zur Bestätigung des Wolbachia-Status
- Extraktion der DNA aus den monoklonalen Kulturproben unter Verwendung der Phenol-Chloroform-Methode39.
- Geben Sie 1 ml konfluente geschabte und resuspendierte Zellen in Medium in ein 1,5-ml-Mikrozentrifugenröhrchen und zentrifugieren Sie die Zellen bei 290 x g für 5 min bei 4 °C. Entsorgen Sie den Überstand (Zellkulturmedium) und stellen Sie das Röhrchen auf Eis.
- Fügen Sie 250 μl Lösung A hinzu, die aus 0,1 M Tris HCl (pH 9,0), 0,1 M EDTA und 1 % SDS besteht. Die Zellen resuspendieren und bei 70 °C für 30 min in einem Heizblock inkubieren.
- Nach der Inkubation 35 μl 8 M Kaliumacetat hinzufügen, das Röhrchen vorsichtig schütteln (Vortexen vermeiden) und weitere 30 Minuten auf Eis inkubieren.
- Bei 13.000 U/min für 15 min bei 4 °C schleudern, den Überstand in ein neues Röhrchen umfüllen und das gleiche Volumen Phenol-Chloroform hinzufügen. Gut schütteln und erneut drehen, diesen Schritt einmal wiederholen.
- Übertragen Sie den Überstand in ein neues Röhrchen, fügen Sie dann 150 μl Isopropanol hinzu, schütteln Sie es und drehen Sie es 5 Minuten lang bei 10.000 U/min. Entfernen Sie vorsichtig den Überstand, waschen Sie das Pellet mit 1 ml 70%igem Ethanol und schleudern Sie es mit 13.000 U/min.
- Nachdem Sie das Pellet 10 Minuten lang bei Raumtemperatur getrocknet haben, resuspendieren Sie es in 100 μl TE-Puffer. Quantifizieren Sie die DNA und lagern Sie sie bei -20 °C.
- Führen Sie eine konventionelle PCR mit der DNA durch, die aus den monoklonalen Kulturproben extrahiert wurde, um Wolbachia mit dem DreamTaq Green PCR-Mastermix nachzuweisen. Verwenden Sie wsp 81F und wsp 691R Primer40 für Wolbachia und Drosophila rpl32 Primer41 für die DNA-Qualitätskontrolle.
- Fügen Sie 7,5 μl Mastermix, 0,5 μl jedes Primers bei 10 μM, 1 μl 1:50 verdünnte DNA und 5,5 μl Wasser in molekularer Qualität hinzu, um 15 μl des Reaktionsgemisches zu erhalten.
- Verwenden Sie das folgende PCR-Programm: 94 °C für 4 Minuten, 30 Zyklen x (94 °C für 40 Sekunden, 55 °C für 40 Sekunden, 72 °C für 30 Sekunden), 72 °C für 10 Minuten. Bewahren Sie die Proben nach der PCR bei 4 °C auf.
- Führen Sie die Agarose-Gelelektrophorese in einem 2%igen Agarosegel in TAE-Puffer bei 90 V mit den erhaltenen PCR-Produkten durch, um die Banden sichtbar zu machen. Fügen Sie eine DNA-Leiter daneben hinzu, um die Banden für wsp (632 bp) und rpl32 (194 bp) zu identifizieren.
6. FISH-Färbung zur Visualisierung einer Wolbachia-Infektion in Zelllinien
- Durchführung einer fluoreszierenden In-situ-Hybridisierung (FISH), wie im Stellaris FISH-Protokoll beschrieben, für adhärente Zellen zur Färbung von Wolbachia mit dem Quasar 670-markierten 16s rRNA FISH-Sondenset. Färben Sie die Nukleinsäuren mit Hoechst 33342.
HINWEIS: Dieses Sondenset wurde auf derGrundlage der w Mel 16S rDNA-Sequenz entwickelt und stimmt mit dem in Schneider et al.42 veröffentlichten Sondenset überein (siehe Ergänzende Tabelle S1).- Bereiten Sie die Reagenzien (Fixierungspuffer, Hybridisierungspuffer, Waschpuffer A und B, rekonstituiertes benutzerdefiniertes Sondenset) gemäß den Anweisungen des Herstellersvor 43.
- Züchten Sie adhärente Zellen auf 70 % ethanolsterilisiertem 18-mm-Runddeckglas in einer 24-Well-Kulturplatte. Sobald die Zellen die gewünschte Konfluenz erreicht haben, aspirieren Sie das Wachstumsmedium und waschen Sie es mit 1 mL 1x PBS. 1 ml Fixierungspuffer zugeben und 10 Minuten bei Raumtemperatur inkubieren. Waschen Sie die Zellen zweimal mit 1 mL 1x PBS.
- Permeabilisieren, indem das Deckglas mit den Zellen in 1 ml 70 % Ethanol getaucht und über Nacht bei 4 °C inkubiert wird; Lagern Sie die Proben vor der Hybridisierung bis zu 1 Woche bei dieser Temperatur in Ethanol. Aspirieren Sie das Ethanol und fügen Sie 1 ml Waschpuffer A hinzu. Bei Raumtemperatur 2-5 min inkubieren.
- Bereiten Sie eine befeuchtete Kammer vor, indem Sie ein wassergetränktes Papiertuch und eine Schicht Parafilm in eine 150-mm-Kulturschale legen. Pipettieren Sie 100 μl Hybridisierungspuffer mit 1 μl 12,5 μM Sondenmaterial auf den Parafilm. Drehen Sie das Deckglas vorsichtig um und legen Sie die Zellen mit der Zellseite nach unten auf den Tropfen Hybridisierungspuffer. Die Kammer mit Parafilm abdecken und verschließen, dann im Dunkeln bei 37 °C mindestens 4 h (bei Bedarf bis zu 16 Stunden) inkubieren.
- Nach der Hybridisierung werden die Deckglaszellen vorsichtig mit der Seite nach oben in eine frische Vertiefung mit 1 ml Waschpuffer A überführt und 30 Minuten lang bei 37 °C inkubiert. Aspirieren Sie den Puffer und fügen Sie 0,5 μl 20 mM Hoechst Material zu 700 μl Waschpuffer A hinzu. Bei 37 °C 30 min im Dunkeln inkubieren.
- Entfernen Sie die Hoechst-Lösung und fügen Sie 1 ml Waschpuffer B hinzu. Bei Raumtemperatur 2-5 min inkubieren. Geben Sie abschließend einen kleinen Tropfen (10 μL) Eindeckmedium auf einen Objektträger und montieren Sie die Deckglaszellen mit der Seite nach unten auf den Tropfen. Leiten Sie überschüssiges Einbettmedium vorsichtig ab und versiegeln Sie den Umfang des Deckglases mit klarem Nagellack.
- Lagern Sie die Objektträger bei 4 °C und fahren Sie so schnell wie möglich mit der Bildgebung fort.
- Verarbeiten Sie die Bilder mit ImageJ44. Teilen Sie Kanäle und ändern Sie die Farbpalette nach Bedarf.
Ergebnisse
Wir visualisierten den Prozess der Etablierung monoklonaler Kulturen mit Lichtmikroskopie vom Tag der Vorbereitung der Einzelzellsuspension und -plattierung (Tag 0) bis zur Etablierung kontinuierlicher Zelllinien (Tag 45 oder 77, Abbildung 2). Die ersten Anzeichen einer Zellteilung wurden an Tag 3 (4 Tage nach der Beschichtung, da die Beschichtung an Tag 0 durchgeführt wurde) beobachtet, als bereits vier Zellen pro Vertiefung vorhanden waren (Abbildung 2). An Tag 14 wuchsen die Klone entweder als Monoschicht (JW18-B9, C7 und E5) oder als Kugel (JW18-G4), die während der Passage zerstört wurde. Am Tag 28 waren die Unterschiede im Wachstum zwischen den Zelllinien am deutlichsten. Die JW18-C7-Kultur war an Tag 45 konfluent, während die restlichen klonalen Kulturen erst an Tag 77 etabliert wurden. Wir haben auch die vier verschiedenen Kulturen 30 Passagen nach der Etablierung visualisiert, um Unterschiede in der Zellmorphologie zu erfassen (Abbildung 3).
Um den Wolbachia-Infektionsstatus der monoklonalen Kulturen zu bestimmen, führten wir PCR (Abbildung 4) und FISH (Abbildung 5) durch. Wir beobachteten, dass alle bis auf einen Klon (JW18-C7) eine Bande für das wsp-Gen produzierten, was auf eine Wolbachia-Infektion hindeutet. FISH bestätigte die PCR-Ergebnisse: Die Klone JW18-B9, JW18-E5 und JW18-G4 behielten die Wolbachia-Infektion bei, während der Klon JW18-C7 keine Wolbachia aufwies. Insgesamt konnten wir aus einer gemischten JW18-Zellpopulation vier klonale Kulturen etablieren, von denen drei die ursprüngliche Wolbachia-Infektion beibehielten. Die Rohdaten können unter Figshare abgerufen werden: https://figshare.com/s/15fde47ca7338f31dda9.
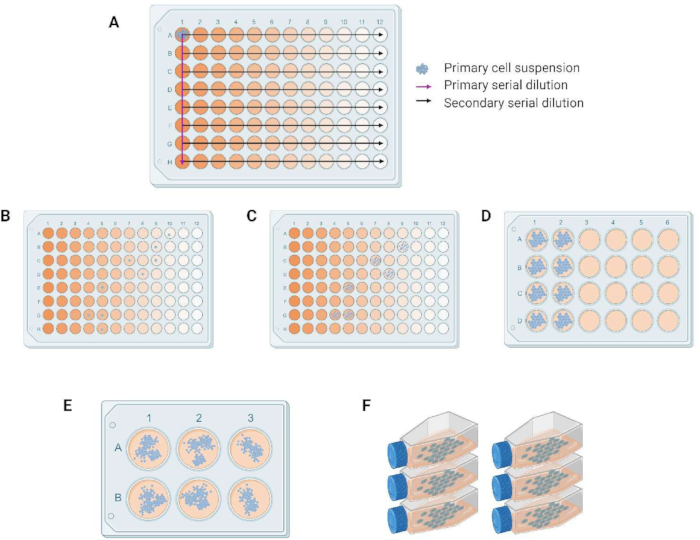
Abbildung 1: Arbeitsablauf für die Generierung monoklonaler Kulturen. (A) Primäre und sekundäre Verdünnungen in der 96-Well-Platte. (B) Einzelzellen nach serieller Verdünnung. (C-E) Fortschreiten der Vermehrung von Zellen und Transfer von einer 96-Well- auf eine 24- bzw. 6-Well-Platte. (F) Kontinuierliche Kulturen in 25cm 2-Zell-Kulturflaschen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
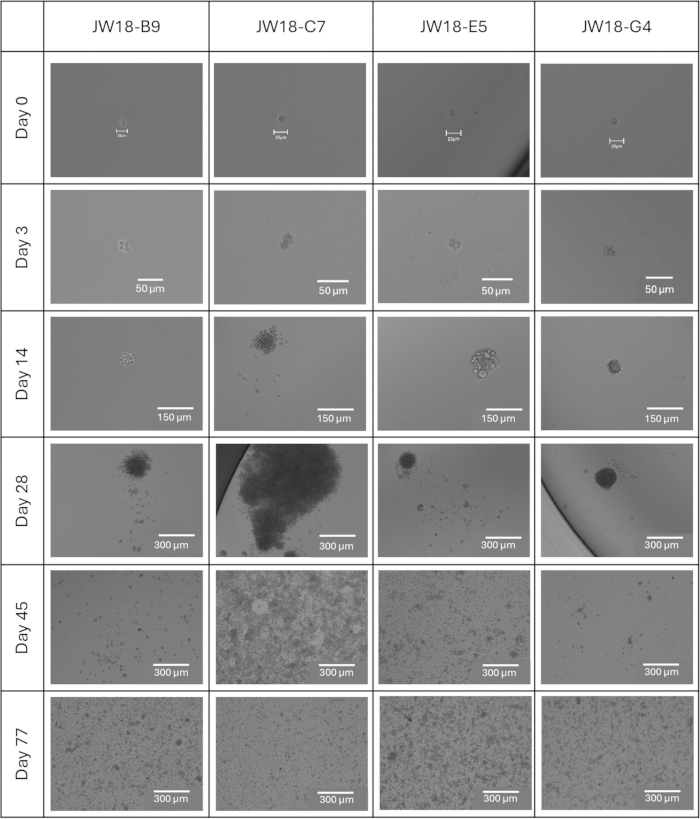
Abbildung 2: Progression der klonalen JW18-Linien von einer Einzelzell- zu einer mehrzelligen Kultur. Hellfeldbilder von klonalen Linien vom Tag 0 (Tag der Platingierung) bis zum Tag 77, an dem alle Linien erfolgreich in einem 25 cm 2-Zell-Kulturkolben etabliert wurden. Maßstabsbalken = 25 μm (Tag 0), 50 μm (Tag 3), 150 μm (Tag 14), 300 μm (Tag 28, 45, 77). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
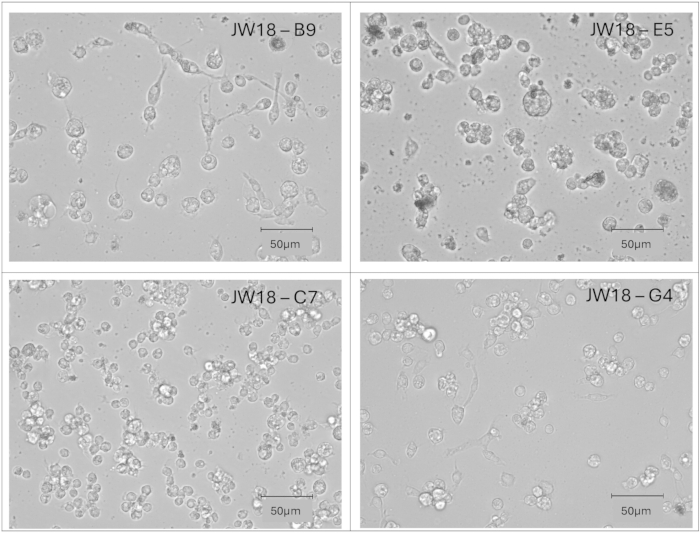
Abbildung 3: Morphologie einzelner klonaler Linien von JW18. Hellfeldbilder von klonalen Linien, die die Zellmorphologien bei Passage 30 nach der Etablierung zeigen. Maßstabsleisten = 50 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
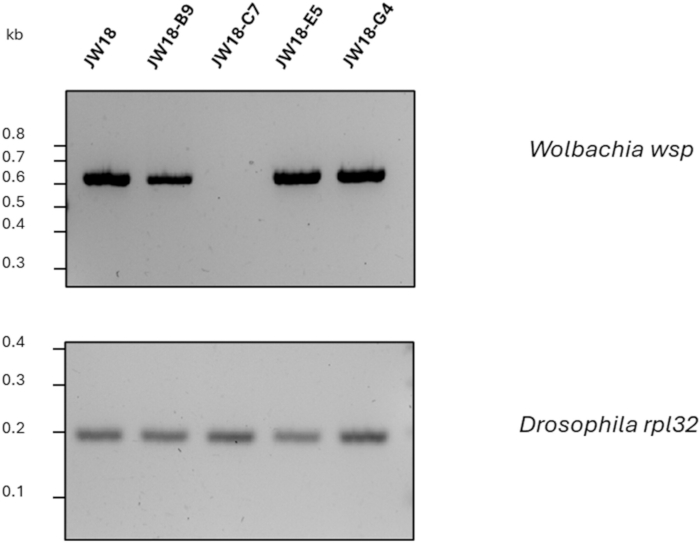
Abbildung 4: Wolbachia-Status von klonalen Kulturen, die mittels PCR untersucht wurden. PCR für Wolbachia in der elterlichen Zelllinie JW18 und den klonalen Linien JW18-B9, JW18-C7, JW18-E5 und JW18-G4 in Passage 11 nach der Etablierung. Die Wolbachiawsp-Bande bestätigt das Vorhandensein von Wolbachia, während die Drosophilarpl32-Bande eine DNA-Qualitätskontroll-PCR ist. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
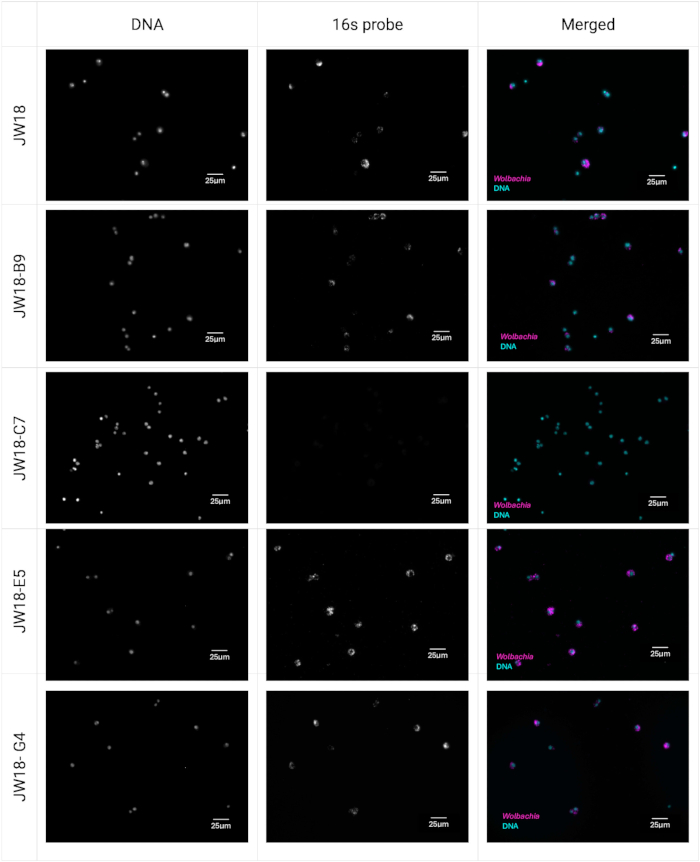
Abbildung 5: Wolbachia-Status von klonalen Kulturen, die mit FISH untersucht wurden. JW18 elterliche Zelllinie und Klone JW18-B9, JW18-C7, JW18-E5, JW18-G4 sichtbar durch FISH-Färbung in Passage 13 nach der Etablierung. Wolbachia wird mit dem Quasar 670-markierten 16s rRNA Stellaris FISH-Sondenset in Magenta gefärbt, und Nukleinsäuren werden mit Hoechst 33342 in Cyan gefärbt. Maßstabsbalken = 25 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Ergänzende Tabelle S1: Oligonukleotidsonden gegen Wolbachia wMel 16S rDNA und ihr Vergleich mit den von Schneider et al. veröffentlichten Sonden42. Bitte klicken Sie hier, um diese Tabelle herunterzuladen.
Diskussion
In dieser Arbeit skizzieren wir eine standardisierte Methode zur Erzeugung einzelliger Klone aus der JW18 D.melanogaster-Zelllinie, die auf andere Drosophila- und Insektenzelllinien angewendet werden kann. Das Protokoll beinhaltet die serielle Verdünnung einer vorbereiteten Zellsuspension auf einer 96-Well-Platte, um einzelne Zellen zu isolieren. Diese Zellen werden dann unter optimalen Bedingungen inkubiert, um kontinuierliche Kulturen zu etablieren. Das Protokoll umfasst auch die Zugabe von 20 % konditionierten Medien zur Förderung des Zellüberlebens und der Einzelzellteilung45,46.
Ein kritischer Schritt im Protokoll ist die Überprüfung des Vorhandenseins einer einzelnen Zelle in jeder Vertiefung nach der seriellen Verdünnung. Dieser Schritt erfordert akribische Aufmerksamkeit, da er für den Erfolg des gesamten Protokolls unerlässlich ist. Um die spätere Bestätigung des Einzelzellursprungs zu erleichtern, wird empfohlen, Bilder der ausgewählten Wells aus verschiedenen Blickwinkeln aufzunehmen.
Ein weiterer wichtiger Schritt ist der Transfer von Zellen zwischen Kulturschalen. Um die erfolgreiche Etablierung einer kontinuierlichen Kultur zu gewährleisten, sollten Zellen erst dann übertragen werden, wenn sie die Konfluenz erreicht haben. Wenn das Zellwachstum länger als zwei Wochen stagniert, kann eine Auffrischung des Mediums das weitere Wachstum fördern. Ein vorzeitiger Transfer von Zellen vor dem Zusammenfluss kann zum Zelltod führen.
Dieses Protokoll ist zwar zeit- und arbeitsintensiver als andere häufig verwendete Methoden, wie z. B. die fluoreszenzaktivierte Zellsortierung (FACS)38,46, bietet aber mehrere Vorteile. Dazu gehören Kosteneffizienz, minimales Risiko von Zellschäden, keine Notwendigkeit für fluoreszierende Marker, teure Geräte und Optimierungszeit. Insgesamt eignet sich dieses Protokoll gut für die Generierung homogener Insektenzellpopulationen aus kontinuierlichen Zelllinien.
Eigenschaften der monoklonalen Kulturen
Unsere Ergebnisse zeigen, dass sich die monoklonalen Kulturen in Bezug auf die Geschwindigkeit ihrer Etablierung und den Wolbachia-Infektionsstatus unterscheiden (Abbildung 2, Abbildung 4 und Abbildung 5). Der Wolbachia-freie Klon JW18-C7 war der schnellste Klon, der in unserem Einzelzellisolationsprotokoll eine Konfluenz erreichte. Wolbachia könnte in dieser Zelllinie entweder immer nicht vorhanden gewesen sein, oder sie könnte verloren gegangen sein, weil sie nicht in der Lage war, mit der Teilungsrate der Wirtszelle Schritt zu halten. Es könnte auch aufgrund der anfänglich geringen Zelldichte in unserem Klonierungsprotokoll verloren gegangen sein. Da dies bei den anderen klonalen Zelllinien jedoch nicht der Fall war, halten wir dies für unwahrscheinlich. Die experimentelle Infektion von JW18-C7 mit Wolbachia (neben anderen, mit Tetracyclin behandelten Klonen) könnte beantworten, ob diese Linie für den Symbionten permissiv ist.
Die zelluläre Heterogenität ist nicht nur für die JW18-Zelllinie spezifisch und wurde bereits für andere Wolbachia-infizierte Zelllinien berichtet: 32,47,48,49,50,51,52. Ein früherer Versuch zur Verbesserung der Besserung betraf einen Transfer von Wolbachia aus D. simulans-Eiern oder Aa23-Zellen auf eine C7-10 A. albopictus-Zelllinie 53. C7-10 wurde viele Jahre vor dem Wolbachia-Transfer kloniert54,55, und die Transfers stellen nicht die natürliche Infektion dar, die wir untersuchen wollen.
Der Unterschied im Wolbachia-Infektionsstatus und zum Zeitpunkt der Etablierung einer monoklonalen Kultur (ein Hinweis auf Unterschiede in der Zellteilungsrate) für einzelne JW18-Klone kann tiefgreifende Auswirkungen auf frühere Studien haben, die den Wolbachia-Titer und die Wachstumsrate von Insektenzellen als Reaktion auf spezifische Behandlungen miteinander verbinden. Veränderte Zellzahlen, Symbiontendichten oder Veränderungen der Genexpression während der Behandlung könnten eher aus der Selektion nach Zelltypen mit spezifischen Eigenschaften resultieren als aus Veränderungen des Zustands aller Zellen in einer gemischten Population. Die Verabreichung von Behandlungen an eine gemischte Zellpopulation mit der Variabilität der Schlüsselmerkmale kann daher zu verzerrten, nicht reproduzierbaren Ergebnissen führen.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Wir danken William Sullivan (University of California, Santa Cruz, USA), Laura Serbus (Florida International University, USA) und Luis Teixeira (Universidade Católica Portuguesa, Lissabon, Portugal) für die JW18-Zelllinie und nützliche Vorschläge, wie man damit arbeiten kann. Wir danken Nidhi Krishna Shrivastava (Jagiellonen-Universität, Krakau, Polen) für nützliche Vorschläge zum Protokoll. Wir danken Yuliya Chykunova (Jagiellonen-Universität, Krakau, Polen) für das Korrekturlesen des Manuskripts.
Abbildung 1 wurde mit BioRender erstellt (Chrostek, E. (2024) https://BioRender.com/o69b306).
Diese Arbeit wird durch den ERC Starting Grant (Grant Agreement ID: 101040311) unterstützt, der an EC vergeben wird, und das Promotionsstipendium der Doctoral School of Exact and Natural Sciences (Jagiellonen-Universität), das an die NF vergeben wird. Die geäußerten Ansichten und Meinungen sind jedoch ausschließlich die der Autoren und spiegeln nicht unbedingt die Ansichten und Meinungen der Europäischen Union oder der Exekutivagentur des Europäischen Forschungsrats wider. Weder die Europäische Union noch die Bewilligungsbehörde können für sie verantwortlich gemacht werden.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 0,22 &Mikro; m Spritzen-Fliter | Wärmekraftwerk | 99722 | Keimfrei |
| 10x phosphatgepufferte Kochsalzlösung (PBS) | ThermoFisher Scientific | 70011044 | Keimfrei |
| 12 oder 18 mm rundes Deckglas | Jede Marke | ||
| 15 mL Falcon Röhrchen | Genoplast | 601052 | Keimfrei |
| 24-Well-Platte | CytoOne | Artikel-Nr.: CC7682-7524 | Behandelte Gewebekultur |
| 5 & Mikro; M Spritzenvorsatzfilter | Whatman | 10462000 | Keimfrei |
| 6-Well-Platte | CytoOne | Artikel-Nr.: CC7682-7506 | Behandelte Gewebekultur |
| 96-Well-Platte | CytoOne | Nr. CC7682-7596 | Behandelte Gewebekultur |
| Agarose | ThermoFisher Scientific | Nr. J66501.30 | |
| Zellkulturflasche, 25 cm2 | Greiner Bio-one | 391-3103 | Keimfrei |
| Zellen-Abstreifer | Greiner Bio-one | 391-3010 | Keimfrei |
| Klarer Nagellack | Jede Marke | ||
| CryoPure Fläschchen | Sarstedt | 72.379 | Keimfrei |
| DMSO, Zellkulturqualität | Merck | D2650-100ML | Keimfrei |
| DreamTaq PCR-Mastermix | ThermoFisher Scientific | Nr. K1081 | |
| EDTA | Merck | Artikel-Nr.: 324503-100GM | Keimfrei |
| Elektrophorese-Stromversorgung | Merck | PS 251-2 | |
| Eppendorf Konzentrator Plus | Merck | EP5305000509 | Stattdessen kann ein Vakuumkonzentrator jeder Marke verwendet werden. |
| Ethanol | Merck | 1009861000 | |
| EVOS M5000 Bildgebungssystem | ThermoFisher Scientific | AMF5000 | Inverse Mikroskope jeder Marke können zur Überwachung des Klonfortschreitens verwendet werden. Für die Visualisierung von FISH ist ein Fluoreszenzmikroskop erforderlich. |
| Fötales Rinderserum | Merck | Nr. F9665 | Hitzeinaktiviert |
| Formaldehyd | ThermoFisher Scientific | 047377.9L | |
| Formamid | Merck | Nr. F7503-100ML | |
| Gelelektrophorese-Tanks | Hackbeil Wissenschaftlich | MSMIDI | |
| Gel-Imager | BioRad | 12009077 | GelDoc Go Gel-Bildgebungssystem |
| GeneRuler 100 bp DNA-Leiter | ThermoFisher Scientific | Nr. SM0243 | |
| Heizblock | ThermoFisher Scientific | 88870005 | |
| Herasafe 2025 Biologische Sicherheitswerkbank Klasse II | ThermoFisher Scientific | 51033314 | Biologische Sicherheitswerkbänke jeder Marke können verwendet werden, solange sie eine sterile Umgebung im Inneren aufrechterhalten. |
| Hoechst 33342 Lösung (20 mM) 5 mL | ThermoFisher Scientific | 62249 | Im Dunkeln lagern. |
| Salzsäure | Merck | 258148-2.5L | |
| Integra Biosciences Corp PIPETBOY acu 2 Pipettierhilfe | Fisher Scientific | NC0085686 | Serologische Pipettensteuerungen jeder Marke können verwendet werden. |
| Isopropanol | Merck | I9516-1L | |
| Gefrierschrank für Labors | Liebherr | LGUex 1500 MediLine | Jeder Gefrierschrank, der in der Lage ist, eine konstante Temperatur aufrechtzuerhalten, ist geeignet. |
| Behälter für flüssigen Stickstoff | ThermoFisher Scientific | CY50985 | |
| Objektträger | Merck | CLS294875X25-72EA | |
| Wasser in molekularer Qualität | |||
| Mehrkanal-Pipette | Eppendorf | 3125000036 | |
| Nanotropfen | Peqlab | ND-1000 | |
| Neubauer Hämozytometer | Merck | BR717810-1EA | |
| Parafilm M Siegelfolie | Merck | HS234526B-1EA | |
| Peltier-gekühlter Inkubator | Memmert | IPP55plus | Gibt es einen Inkubator, der in der Lage ist, konstant 25 zu halten? C geeignet ist. Für die JW18-Zelllinie oder ihre Klone ist keine CO2-Kontrolle erforderlich. |
| Phenol/Chloroform/Isoamylalkohol (25:24:1) | ThermoFisher Scientific | 327115000 | |
| Pipetten-Set | Eppendorf | EP2231300008 | |
| Kaliumacetat | Merck | P1190-500G | Keimfrei |
| Quasar 670-markierte 16s rRNA FISH-Sonde Garnitur | Biosearch-Technologien | Sonderanfertigungen, Sequenzen der Sonden finden Sie in Tabelle 1. | |
| Gekühlte Mikrozentrifuge | Labnet | C2500-R | |
| RPL32 Primer Forward 5'-CCGCTTCAAGGGACAGTATC-3' | Eurofins Genomik | Sonderanfertigungen auf der Grundlage der in der Arbeit zitierten Referenz | |
| rpl32 Grundierung rückwärts 5'-CAATCTCCTTGCGCTTCTTG-3' | Eurofins Genomik | Sonderanfertigungen auf der Grundlage der in der Arbeit zitierten Referenz | |
| SDS | ThermoFisher Scientific | AM9823 | Keimfrei |
| Serologische Pipetten | Corning | 357771 | |
| Schilde und Sang M3 Insect Medium | Merck | Nr. S8398 | Keimfrei |
| Stellaris RNA FISH-Hybridisierungspuffer | Biosearch-Technologien | SMF-HB1-10 | Keimfrei |
| Stellaris RNA FISH Waschpuffer A | Biosearch-Technologien | SMF-WA1-60 | Keimfrei |
| Stellaris RNA FISH Waschpuffer B | Biosearch-Technologien | SMF-WB1-20 | Keimfrei |
| Sterile Reagenz-Reservoire | ThermoFisher Scientific | 8094 | Keimfrei |
| TAE-Puffer | Merck | 1061741000 | 1x |
| TE-Puffer | Merck | 93283 | Keimfrei |
| Thermocycler | Syngen Biotech | Thermoblock 96 | Stattdessen können Thermocycler jeder Marke verwendet werden. |
| Tris-Basis | Merck | 10708976001 | Keimfrei |
| Ultratiefkühlschrank | PHC Unternehmen | MDF-DU502VH-PE | Gibt es einen Laborgefrierschrank, der in der Lage ist, -80 ? C verwendet werden. |
| Vectashield Eindeckmedium | Vector Laboratorien | H-1000-10 | |
| WSP Primer Forward 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | Eurofins Genomik | Sonderanfertigungen auf der Grundlage der in der Arbeit zitierten Referenz | |
| WSP Primer Reverse 5'-AAAAATTAAACGCTACTCCA-3' | Eurofins Genomik | Sonderanfertigungen auf der Grundlage der in der Arbeit zitierten Referenz |
Referenzen
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
Nachdrucke und Genehmigungen
