In diesem Artikel wird ein Co-Kulturmodell von Rinder-, Theka- und Granulosazellen vorgestellt. Diese Methode hat das Potenzial, als zuverlässige Grundlage für Analysen zu dienen, die sich auf die Untersuchung der parakrinen Kommunikation und des Substrattransports zwischen den somatischen Zellen innerhalb des Follikels konzentrieren.
Methodenartikel
Ein modifiziertes Co-Kultursystem zum Verständnis von Granulosa-Theka-Zell-Interaktionen im Rinder-Eierstock
In diesem Artikel
Zusammenfassung
Zusammenfassung
Eine zuverlässige Co-Kultur von Granulosa- (GCs) und Thekazellen (TCs) hat das Potenzial, ein umfassenderes Verständnis der Interaktionen, Signalwege und des Substrataustauschs zwischen beiden Zellkompartimenten im Rinder-Ovarialfollikel zu ermöglichen. Unter Verwendung kommerziell erhältlicher Zellkulturinsertionen wurde ein reproduzierbares Co-Kulturmodell von Rinder-GCs und -TCs etabliert. Es wurde beobachtet, dass primäre Theka- und Granulosazellen im Vergleich zu Zelllinien deutlich mehr Zeit benötigen, um sich an die Insertionsmembran zu heften. Zunächst wurden die TCs auf die invertierte Einsatzmembran gesät, wobei ein abgeschnittenes Rohr als Impfbehälter diente, um ein Austreten des Mediums zu verhindern. Nach einer Inkubationszeit von 72 Stunden wurde das Insert invertiert, so dass die GCs auf der gegenüberliegenden Seite der Membran kultiviert werden konnten. Diese Co-Kultur wurde dann einer weiteren 6-tägigen Inkubation bei 37 °C und 5 % CO2 unterzogen, wobei alle zwei Tage ein Medienaustausch stattfand. Die Expression von Markergenen deutete auf zelltypspezifische Muster, wobei CYP17A1 in TCs sehr häufig und in GCs nicht exprimiert wurden. Umgekehrt zeigten CYP19A1 hohe Spiegel in GCs und nur niedrige Spiegel in TCs. Die Hormonanalyse unterstützte das Vorhandensein eines physiologischen Co-Kultursystems, was durch die Synthese von Östradiol belegt wurde. Dieses modifizierte Co-Kultur-Modell unterstützt reproduzierbare Studien der parakrinen Signalübertragung und des Substrattransports zwischen den somatischen Zellen des Follikels.
Einleitung
Während der Follikulogenese löst ein Anstieg des luteinisierenden Hormons (LH) eine Kaskade physiologischer Veränderungen im Eierstock aus, die schließlich zur Freisetzung einer reifen Eizelle während des Eisprungs führt 1,2. Dieser Prozess wird von den follikulären somatischen Zellen streng reguliert, die die Reifung der Eizellen wesentlich unterstützen und eine ordnungsgemäße Ovulationsfunktion gewährleisten3. Der Follikel besteht aus zwei Arten von steroidogenen somatischen Zellen, einer inneren Schicht aus Granulosazellen (GCs) und einer äußeren Schicht aus Thekazellen (TCs). Unter diesen durchlaufen GCs nach dem LH-Anstieg die ausgeprägtesten morphologischen und funktionellen Veränderungen, was ihre entscheidende Rolle bei der Orchestrierung der letzten Stadien der Follikelentwicklung unterstreicht4. Folglich sind GCs von erheblichem Interesse für die Analyse von Faktoren, die die Follikulogenese, den Eisprung und die Luteinisierung beeinflussen könnten.
Zuvor wurde ein Zellkulturmodell von Rinder-GCs etabliert, das einen östradiolaktiven Status nachahmt 5,6,7,8,9,10,11. Dieses serumfreie Kulturmodell ermöglicht eine zuverlässige Analyse der GC-Physiologie und möglicher Effektoranalysen in den Signalwegen, der Genregulation und der Hormonsynthese 12,13,14. Die Follikelstruktur ist jedoch viel komplexer, wie die 2-Zell-2-Gonadotropin-Hypothese15 zeigt. Dies unterstreicht die Abhängigkeit und Vernetzung der Zelltypen im Zusammenhang mit der Aufteilung der Steroidsynthese zwischen den beiden Schichten.
In einer Reihe von Studien wurden TC-Kulturmodelle beschrieben, die den zuvor etablierten GC-Monokultursystemen ähneln 16,17,18. Es wurde jedoch über ein Co-Kultursystem aus porzinen Theka- und Granulosazellen berichtet, bei dem beide Zellpopulationen in einer einzigen Schale mit einem Verhältnis von 4:1 von GCs zu TCs kultiviert werden 19,20,21. In diesem Modell konnte gezeigt werden, dass es ein funktionelles System und eine Interaktion zwischen Granulosa- und Thekazellen gibt, was eine höhere Menge an Östradiol im Co-Kultursystem als in der Monokultur zeigt. Es ist jedoch zu beachten, dass dieses Modell nicht in der Lage ist, die Interaktion und den Substrataustausch zwischen Granulosa- und Thekazellen adäquat zu analysieren, da beide Zelltypen unterschiedlich betroffen sein können. Daher ist die Analyse von GCs und TCs unabhängig voneinander auf molekularer Ebene nahezu nicht ohne ein aufwendiges Sortierverfahren möglich, was sich wiederum auf die Zellphysiologie auswirken könnte. Darüber hinaus ist es wichtig zu berücksichtigen, dass dieses Modell die Situation vor dem LH-Anstieg, wenn GCs und TCs durch eine Basalmembran getrennt sind, möglicherweise nicht genau repliziert3. Beim Rind wurde ein membranbasiertes Zellkultursystem vorgeschlagen, bei dem beide Zelltypen auf beiden Seiten einer Kollagenmembran kultiviert werden, wodurch die in vivo Situation genauer widergespiegeltwird 22,23,24,25,26.
In Anlehnung an das ursprüngliche Konzept eines membranbasierten Systems zielte diese Methode darauf ab, ein Co-Kulturmodell für bovine GCs und TCs mit Zellkulturinsertionen zu etablieren, um zukünftige Studien der parakrinen Signalübertragung zwischen beiden Zellkompartimenten zu ermöglichen. Das vorgestellte Verfahren verwendet kommerziell erhältliche hängende Zellkultureinsätze anstelle eines kundenspezifischen Membransystems, was Vorteile wie höhere Reproduzierbarkeit, standardisierte Qualität und verbesserte Produktstabilität bietet. Dieser Ansatz gewährleistet die Konsistenz über alle Experimente hinweg und ist damit ein wertvolles Werkzeug für Forscher, die die Interaktion zwischen follikulären Zellen untersuchen. Das Kulturverfahren umfasst eine anfängliche Aussaat von 1,7-1,8 x 10⁵ Thekazellen auf der Unterseite des Einsatzes, gefolgt von etwa 1,0 x 10⁵ Granulosazellen auf der Oberseite nach der Inversion und einer 72-stündigen Vorinkubation. Die Kulturen werden in einem definierten Medium unter Standardbedingungen (37 °C, 5 % CO2) aufbewahrt, wobei das Medium jeden zweiten Tag gewechselt wird. Um einen parakrinen Austausch über Kompartimente hinweg zu ermöglichen, wurden 0,4 μm Zellkultureinsätze aus Polyester, wie z.B. Polyethylenterephthalat (PET), verwendet (kommerziell erhältlich). Membranen dieser Porengröße ermöglichen die Diffusion löslicher Makromoleküle wie Hormone, Wachstumsfaktoren und Proteine und verhindern gleichzeitig die Zellmigration27,28.
Durch die räumliche Trennung bei gleichzeitiger Beibehaltung der parakrinen Kommunikation bietet dieses Co-Kultursystem eine physiologisch relevante Umgebung für die Untersuchung von Granulosa-Theka-Zellinteraktionen, Signalwegen und Substrataustausch. Das Modell eignet sich besonders für Studien, die kontrollierte Bedingungen erfordern, wie z. B. Hormonregulation, Genexpressionsanalyse oder Medikamententests. Forscher, die sich für Follikeldynamik, Fortpflanzungsphysiologie oder Eierstockerkrankungen interessieren, können diese Methode für ihre Studien anwendbar finden. Darüber hinaus ermöglicht die Verwendung standardisierter Inserts eine einfache Anpassung an unterschiedliche experimentelle Anforderungen, einschließlich Änderungen der Kulturdauer, der Zelltypen oder der Behandlungsbedingungen.
Protokoll
Die Rindereierstöcke wurden aus einem örtlichen kommerziellen Schlachthof gewonnen. In diesem Versuchsaufbau erfolgt die Präparation der Eierstöcke innerhalb von 2 h nach der Aufnahme. Die Sammlung von Schlachtnebenprodukten bedarf nach deutschem Recht keiner ethischen Genehmigung.
HINWEIS: Die Isolierung und Kryokonservierung von bovinen GC wurde bereits in einem früheren Methodenbericht6 beschrieben und gezeigt und kann entsprechend durchgeführt werden.
1. Vorbereitung der Reagenzien und Vorbereitung für die Dissektion von Eierstockfollikeln
- Bereiten Sie 1x PBS (pH 7,4) vor, ergänzt mit 100 IE Penicillin, 0,1 mg/ml Streptomycin und 0,5 μg/ml Amphotericin für den Transport der Eierstöcke. Die Lösung kann bis zu 4 Wochen bei 4 °C gelagert werden.
- Bereiten Sie die Aufschlusslösung vor, die 10x Hanks-Salzpuffer enthält, ergänzt mit 25 mM HEPES, 100 IE Penicillin, 0,1 mg/ml Streptomycin und 0,5 μg/ml Amphotericin. Die Aufschlusslösung kann bei 4 °C für 2-3 Wochen gelagert werden.
- Füllen Sie 1 ml Aufschlusslösung in 1,5 ml-Röhrchen für jeden geplanten präparierten Follikel und erwärmen Sie die Lösung auf 37 °C.
- Fügen Sie kurz vor der Zubereitung 10 μl Kollagenase NB8 hinzu, um eine Konzentration von 0,1 % der Aufschlusslösung zu erreichen.
- Bereiten Sie die folgenden Gerichte für die Vorbereitung, Isolierung und den Waschvorgang vor.
- Glasschalen mit einem Mindestdurchmesser von 3 cm, um die Eierstöcke zum Sezieren zu platzieren.
- Eine 6-Well-Platte mit 1 mL 1x PBS (ergänzt mit Antibiotika) zum Waschen.
- Eine 12-Well-Schale mit ca. 10 μl Aufschlusslösung.
- Für die Kryokonservierung bereiten Sie eine Gefrierlösung vor, die zu 80 % aus fötalem Kälberserum (FCS) und zu 20 % DMSO besteht.
HINWEIS: Die Endkonzentration von DMSO für die Kryokonservierung beträgt 10%.
2. Follikeldissektion mit anschließendem Verdau von Rinder-Thekazellen
- Führen Sie die Zellverdauungsverfahren sowie die Zellkulturarbeit unter einer Laminar-Flow-Bank durch.
- Waschen Sie die Eierstöcke 2-3x in 1x PBS (ergänzt mit Antibiotika, siehe Schritt 1.1), um Blut und andere Rückstände von der Oberfläche zu entfernen. Legen Sie die Eierstöcke in einen Tumbler, füllen Sie ihn mit 1x PBS, so dass die Eierstöcke bedeckt sind, und entsorgen Sie die Lösung anschließend. Wiederholen Sie diesen Schritt 3-4x, bis die Eierstöcke sauber sind.
- Legen Sie einen Eierstock in eine Glasschale und wählen Sie Follikel von 5-11 mm, gemessen mit einem Lineal, zum Sezieren aus.
- Aspirieren Sie die Follikelflüssigkeit mit einer 3-ml-Spritze und einer 18-g-Nadel, indem Sie einen ausgewählten Follikel punktieren. Entsorgen Sie die Follikelflüssigkeit.
- Schneiden Sie den Follikel mit einer Schere auf, beginnend an der Stelle, an der die Nadel während der Aspiration eingeführt wurde. Verwenden Sie ein Fernglas für präzises Schneiden.
- Verwenden Sie eine Pinzette an der Schneide des Follikels, um die innerste Schicht, die Theca interna, zu erfassen.
- Versuchen Sie, die Theca interna von der Innenseite der offenen Follikelwand abzuziehen.
HINWEIS: Je nach Alter oder Stadium des Follikels kann die Thekazellschicht leichter abgezogen werden, was zu einer intakten Thekaschicht führt.
- Legen Sie die Thekazellschicht in eine Schale, die mit 1x PBS (ergänzt mit Antibiotika, siehe Schritt 1.1.) gefüllt ist, um die restlichen Granulosazellen zu entfernen.
- Kratzen Sie die Granulosazellen vorsichtig mit einem Skalpell von der Innenseite der Membran ab. Die Zellen sollten sich in großen Clustern leicht ablösen.
- Legen Sie die Thekazellschicht zum Waschen in eine neue Schale, die mit 1x PBS gefüllt ist.
- Spülen Sie die Membran vorsichtig aus, indem Sie das frische 1x PBS einschwenken, um lose Zellen zu entfernen.
HINWEIS: Ab dem nächsten Schritt unter der Laminar-Flow-Box arbeiten.
- Die Theca interna in die vorbereitete Aufschlusslösung der 12-Well-Platte überführen (siehe Schritt 1.2 und 1.3.3) und mit einem Skalpell in kleine Stücke, vermutlich 1-3 mm, schneiden.
HINWEIS: Es wird empfohlen, Thekazellen aus verschiedenen Follikeln unabhängig voneinander zu verdauen, um die Verstopfung von Geweben unterschiedlicher Herkunft zu verhindern. - Die Theka-Schnipsel werden in ein vorbereitetes 1,5-ml-Reaktionsröhrchen überführt (siehe Schritt 1.2.1 und 1.2.2). Inkubieren Sie die Theka in einem Thermoskannen-Schüttel-Inkubator bei 800 U/min bei 37 °C für 45-50 Minuten.
- Nach 30 min Schütteln beginnen Sie, die Reaktionsgefäße 3-5 s lang zu wirbeln und stellen Sie sie wieder in den Schüttelinkubator.
- Wiederholen Sie diesen Schritt 3-4x in der verbleibenden Inkubationszeit.
- Nach der Inkubation werden die verdauten Zellen mit einer Pipette wieder suspendiert.
- Beseitigen Sie das unverdaute Gewebe durch Filtration mit dem 100-μm-Zellsieb, das auf ein 50-ml-Röhrchen gelegt wird, und fahren Sie sofort mit der Zählung und Kryokonservierung der Zellen fort, um das Verdauungsmedium zu entfernen.
3. Zählung und Kryokonservierung von TCs
- Um die Anzahl der lebensfähigen Zellen zu zählen, bereiten Sie ein Röhrchen mit 1,5 μl einer 0,25%igen Trypanblau-Lösung vor. Lebende Zellen bleiben ungefärbt, während tote Zellen aufgrund des Zugangs von Trypanblau durch gebrochene Zellbarrieren blau erscheinen.
- 15 μl der verdauten Zellsuspension zur Trypanblau-Lösung geben und vorsichtig mischen.
- Geben Sie 10 μl der Mischung in beide Kammern eines Hämozytometers. Zähle die Anzahl der lebenden (= farblosen) Zellen in einem großen Quadrat pro Kammer.
- Bestimmen Sie die Anzahl der lebenden Zellen mit dem Mittelwert beider Kammerquadrate nach Standardrichtlinien. Beachten Sie, dass der Anteil lebender Zellen zwischen den Eierstöcken unterschiedlich sein kann.
- Unverdaute Teile der Thekazellsuspension (siehe Schritt 2.9) werden eingefroren, um einen beabsichtigten Vergleich als nicht kultivierte Kontrolle durchzuführen und eine Bewertung einer möglichen Kreuzkontamination mit GC durchzuführen (wie in Abbildung 2 gezeigt).
- Das unverdaute Gewebe jeder präparierten Theca interna, das in dem 100 μm Zellsieb verbleibt (siehe Schritt 2.10), wird in ein markiertes Röhrchen überführt.
- Das Rohr vor der Lagerung bei -80 °C in flüssigem Stickstoff schockfrosten.
- Durchführung einer Kryokonservierung der isolierten Thekazellen, um eine verbesserte Planung von Zellkulturen zu ermöglichen, insbesondere im Hinblick auf die Anzahl der benötigten Zellen.
- Die verdaute Zellsuspension wird bei 500 x g 5 min bei Raumtemperatur (durchschnittlich 20 °C) zentrifugiert. Entsorgen Sie den Überstand.
- Lösen Sie das Zellpellet vorsichtig in 1 ml 100 % FCS auf. Geben Sie 1 ml Gefriermedium (siehe Schritt 1.4) in die Zelllösung. Die Endkonzentration von DMSO für die Kryokonservierung beträgt 10%. Übertragen Sie das Gemisch in die angegebenen 2 mL Kryofläschchen.
- Stellen Sie die Fläschchen in eine Kühlvorrichtung, um die Temperatur kontrolliert abzusenken. In diesem Setup wurde ein spezieller Gefrierbehälter verwendet, der eine Gefrierrate von -1 °C/min garantiert, wenn er mindestens 4 h bei -80 °C aufgestellt wird. Anschließend können die Fläschchen in Flüssigstickstoff-Lagersystemen gelagert werden.
4. Vorbereitungen für die Zellkulturarbeit
- Schneiden Sie den Deckel von einem 1,5-ml-Reaktionsröhrchen ab. Schneiden Sie dann das Reaktionsrohr mit Hilfe eines Skalpells (vorzugsweise erwärmt) oder eines geeigneten Schlauchschneiders ca. 1 cm von der Öffnung entfernt ab. Anschließend werden die geschnittenen Röhrchen und Deckel autoklaviert. Die Deckel können für nachfolgende Eingriffe der Zellkultur erforderlich sein (siehe Schritt 5.5).
HINWEIS: Stellen Sie sicher, dass die 1,5-ml-Röhrchen fest auf dem gewählten Einsatz sitzen. - Stellen Sie sicher, dass die Einsätze mit 0,02 % Kollagen R beschichtet sind, damit sich GC und TC in der Kultur anheften.
HINWEIS: Führen Sie das Verfahren der Beschichtung unter einer sterilen Laminar-Flow-Haube durch.- Verwenden Sie gereinigtes Wasser (geeignet für Zellkulturen), um eine 0,02%ige Kollagen-R-Lösung herzustellen. Bereiten Sie 80 μl dieser Lösung für jeden benötigten Zellkultureinsatz vor.
- Legen Sie den Einsatz kopfüber in einen Deckel einer 24-Well-Platte. Geben Sie vorsichtig 40 μl Kollagen-R-Lösung in die Membran des Einsatzes und stellen Sie sicher, dass sie an Ort und Stelle bleibt. Lassen Sie die Kollagen-R-Lösung 4-5 Stunden unter der Laminar-Flow-Haube trocknen.
- Drehen Sie den Einsatz und hängen Sie ihn in die Vertiefungen der 24-Well-Platte, um die zweite Seite erneut mit 40 μl Kollagen-R-Lösung zu beschichten. Lassen Sie die Lösung nochmals 4-5 h trocknen.
- Bestrahlen Sie die Einsätze 10-15 Minuten lang mit UV-Licht, um die Kontamination zu verringern.
- Die Einsätze sollten in der 24-Well-Platte (vorzugsweise im sterilen Lieferbeutel) und im Kühlschrank bei 4 °C gelagert werden und können bis zu 4 Wochen verwendet werden.
- Bereiten Sie das Medium 8,10 wie folgt vor:
HINWEIS: Führen Sie das Verfahren der Medienvorbereitung unter einer sterilen Laminar-Flow-Haube durch.- Ergänzen Sie das α-Minimial Essential Medium (α-MEM) mit 2 mM L-Glutamin, 0,084 % Natriumbicarbonat, 0,1 % BSA, 20 mM HEPES, 4 ng/mL Natriumselenit, 5 μg/mL Transferrin, 10 ng/ml Insulin und 1 mM nicht-essentiellen Aminosäuren.
HINWEIS: Um die Konsistenz zu gewährleisten, wird empfohlen, im Voraus genügend Medium für das gesamte Experiment vorzubereiten. Das vorbereitete Medium kann bei 4 °C gelagert werden. Verwenden Sie für den beschriebenen Aufbau 750 μL pro Zellkulturvertiefung. - Des Weiteren fügen Sie dem vorbereiteten Medium 100 IE Penicillin, 0,1 mg/ml Streptomycin und 0,5 μg/ml Amphotericin hinzu.
- Das Medium bei 37 °C im Wasserbad vorwärmen.
HINWEIS: Nach dem Vorwärmen des Mediums sind die Antibiotika ca. 48 h stabil. Aliquotieren Sie daher nur die gewünschte Menge an Medien für die Erwärmung. - Ergänzen Sie zusätzlich das α-MEM mit 20 ng/ml follikelstimulierendem Hormon (FSH), 50 ng/ml R3 IGF-1 und 2 μM Androstendion für eine physiologische Zellumgebung 7,8,10,11.
HINWEIS: Fügen Sie diese Komponenten kurz vor Beginn des Kultur- oder Medienaustauschs hinzu. Um eine kompromittierte Aktivität zu verhindern, ist es zwingend erforderlich, wiederholte Gefrier-Tau-Zyklen der FSH- und IGF-1-Stammlösungen zu vermeiden.
- Ergänzen Sie das α-Minimial Essential Medium (α-MEM) mit 2 mM L-Glutamin, 0,084 % Natriumbicarbonat, 0,1 % BSA, 20 mM HEPES, 4 ng/mL Natriumselenit, 5 μg/mL Transferrin, 10 ng/ml Insulin und 1 mM nicht-essentiellen Aminosäuren.
5. Co-Kultur von TCs und GCs
- Bereiten Sie die Impfkammer für die Kultur der Thekazellen vor (Abbildung 1A).
- Legen Sie den beschichteten Einsatz kopfüber in eine größere Platte (z. B. 12-Well-Platte).
- Legen Sie das geschnittene und autoklavierte Rohr auf einen umgekehrten Einsatz (siehe Schritt 4.1). Stellen Sie sicher, dass der Schlauch fest auf dem Einsatz sitzt, um ein Austreten von Medien zu verhindern.
- Tauen Sie die kryokonservierten Thekazellen in einem Wasserbad von 37 °C schnell für 3-5 min auf und überführen Sie die Zellsuspension sofort nach dem Auftauen in das vorgewärmte Medium.
- Die Thekazellensuspension wird bei 500 x g 3 min bei Raumtemperatur (durchschnittlich 20 °C) zentrifugiert und der Überstand verworfen. Fügen Sie das supplementierte α-MEM hinzu und resuspendieren Sie die Zellen vorsichtig.
- 1,7-1,8 x 10⁵ Zellen pro Einsatz in der Impfkammer in einem Endvolumen von 200 μl Medium aussäen. Schließen Sie mindestens drei technische Replikate pro Bedingung ein.
- Um die Zellkulturschale mit einem Deckel zu verschließen, kann es erforderlich sein, den Abstand zwischen der Schale und dem Deckel zu vergrößern, wenn die Impfkammer verwendet wird.
- Verwenden Sie die abgeschnittenen und autoklavierten Kappen aus den 1,5-ml-Reaktionsröhrchen (siehe Schritt 4.1) und setzen Sie sie in jede Ecke der Zellkulturplatten ein. Die Kappen dienen als Stützen, um den Deckel der Platte leicht anzuheben und genügend Platz für die Impfkammer zu bieten, während die Kulturschale dennoch ausreichend abgedeckt ist.
- Verschließen Sie die Well-Platte vorsichtig und stellen Sie sicher, dass sie stabil bleibt und die Membran oder Kammer nicht berührt.
- Übertragen Sie die Platte vorsichtig in einen befeuchteten Zellkultur-Inkubator.
- Inkubieren Sie die Thekazellen 3 Tage lang bei 37 °C mit 5 % CO2 , um die Zellanheftung an der Membran zu ermöglichen.
- Drehen Sie den Einsatz nach 3 Tagen Kultur, um die Aussaat mit GCs vorzubereiten (Abbildung 1B).
- Bereiten Sie eine 24-Well-Platte vor und füllen Sie sie mit 500 μl Medium in jede der gewünschten Vertiefungen.
- Entfernen Sie mit einer Pipette alle Medien aus der Impfkammer. Entferne die Impfkammer vorsichtig mit einer Pinzette aus dem Einsatz.
- Legen Sie den Einsatz mit den angeschlossenen Thekazellen in die vorbereitete 24-Well-Platte, wobei Sie darauf achten, dass die TCs nach unten zeigen (siehe Abbildung 1B für weitere Details).
- Um Granulosazellen aus der Kryokonservierung zu säen, führen Sie die Schritte 5.2 und 5.3 aus.
- Etwa 1,0 x 10⁵ Zellen pro Einsatz in ein Endvolumen von 250 μl Medium aussäen, das in den Einsatz eingesetzt wird.
- Anschließend wird die Co-Kultur bei 37 °C mit 5 % CO2 für weitere sechs Tage inkubiert.
- Führen Sie alle 48 Stunden nach dem GC-Seeding einen Medienaustausch durch, wenn nur zwei Drittel des Nährmediums ausgetauscht werden. Dies soll den Stress des Eingriffs reduzieren und helfen, sich an die neu hinzugekommenen Medien anzupassen.
6. Nachfolgende Analyse von kultivierten Theka- und Granulosazellen
- Führen Sie eine morphologische Beurteilung von Theka- und Granulosazellen in der gesamten Zellkultur mit einem Phasenkontrastmikroskop durch, um die Anheftung und Ausbreitung beider Zelltypen zu überwachen (siehe Abbildung 3).
- Für die Steroidhormonanalyse das Medium auffangen und bei -20 °C einfrieren. Verwenden Sie eine geeignete Methode, um die Konzentrationen der gewünschten Steroidhormone zu analysieren (z. B. wurde in diesem Arbeitsablauf Östradiol über RIA 5,29 analysiert).
HINWEIS: Eine Steroidhormonanalyse hilft, den physiologischen Zustand der Kultur zu beurteilen7. - Um die Genexpression zu analysieren, isolieren Sie zunächst die RNA mit einer geeigneten Technik (z. B. Kit-Verfahren).
HINWEIS: Beachten Sie, dass während des Isolierungsverfahrens beide Zelltypen unabhängig voneinander vorbereitet werden.- Dissoziieren Sie die Zellen von beiden Seiten der Membran mit einem geeigneten Reagenz (z. B. Trypsin oder Accutase). Platzieren Sie das Dissoziationsmedium sowohl in den Einsatz (z. B. 200 μl Accutase) als auch in die Vertiefungen der Platte (z. B. 500 μl Accutase), so dass die Membran vollständig von dem Dissoziationsmedium umgeben ist.
- Sammeln Sie die Granulosazellen aus dem Einsatz, während die abgelösten Thekazellen aus der Vertiefung entnommen werden können. Übertragen Sie jeden Zelltyp in ein 1,5-ml-Röhrchen.
- Die Zellen werden bei 500 x g 3 min lang zentrifugiert und der Überstand verworfen.
- Lysieren Sie die Zellen, führen Sie eine RNA-Isolierung durch und messen Sie anschließend die RNA-Konzentration.
HINWEIS: Das Protokoll kann bei den meisten Isolierungsverfahren nach der Lyse der Zellen gestoppt werden, so dass die Proben kurzfristig bei -20 °C gelagert werden können. Für eine längere Lagerung können die lysierten Zellen bei -80 °C gelagert werden. - Anschließend synthetisieren Sie cDNA, um die Häufigkeit der interessierenden Transkripte mittels qPCR zu messen. Bei der cDNA-Synthese werden 100 ng RNA mit zufälligen Hexamer- und Oligo-dT-Primern verwendet. Für die qPCR wurden genspezifische Primer verwendet, wie zuvor beschrieben 5,30. Kurz gesagt, die Zyklusbedingungen waren wie folgt: Vorinkubation bei 95 °C für 5 min, 40 Zyklen Denaturierung bei 95 °C für 20 s, Glühen bei 60 °C für 15 s, Verlängerung bei 72 °C für 15 s und Einzelpunkt-Fluoreszenzaufnahme für 10 s. Ein externer Standard von fünf verschiedenen Konzentrationen (5x10-12- 5x10-16 g DNA/Reaktion) wurde co-amplifiziert. Zur Normalisierung der Transkripthäufigkeit wurde das geometrische Mittel von RPLP0 und TBP berechnet.
- Um eine mögliche Kreuzkontamination auszuschließen, ist die Reinheit von Theka- und Granulosazellpräparaten zu bewerten, indem die Genexpression der zellspezifischen Marker analysiert wird, die aus den frisch isolierten Zellpräparaten von TCs und GCs CYP17A1 und CYP19A1 wurden (Abbildung 2).
HINWEIS: Eine statistische Auswertung sollte mindestens drei Replikate verschiedener Zellkulturen umfassen. In diesem Versuchsaufbau wurde ein t-Test bzw. die unidirektionale ANOVA nach Überprüfung auf Normalität und Varianz durchgeführt.
Ergebnisse
Obwohl TCs und GCs mit etablierten mechanischen Trenntechniken isoliert wurden, die auf follikulärer Kompartimentierung basieren, wurde die Expression von zelltypspezifischen Genen CYP17A1 und CYP19A1 untersucht, um das Risiko einer Kreuzkontamination auszuschließen. CYP17A1 wurde ausschließlich in frisch isolierten TCs exprimiert, während CYP19A1 überwiegend in frisch isolierten GCs exprimiert wurde (Abbildung 2).
Das Co-Kultur-System ermöglicht die Kompartimentierung von bovinen Theka- und Granulosazellen auf gegenüberliegenden Seiten eines Membraninserts und ahmt dadurch die räumliche Organisation in vivo nach. Nach drei Tagen in Kultur zeigten die TCs eine abgeflachte und längliche Morphologie, als sie sich über die Oberfläche der kollagenbeschichteten Insertmembran ausbreiteten, was auf eine erfolgreiche Anheftung hinweist (Abbildung 3A). Wenn sie über den gesamten Zeitraum von 9 Tagen allein kultiviert wurden, vermehrten sich die TCs weiter und erreichten am 9. Tag die Konfluenz (Abbildung 3B). Im Gegensatz dazu entwickelten GCs, die allein 6 Tage lang auf der kollagenbeschichteten Insertmembran kultiviert wurden, einen Fibroblasten-ähnlichen Phänotyp, der für GCs in vitro charakteristisch ist (Abbildung 3C). Darüber hinaus neigten GCs, wie zuvor beschrieben, dazu, Cluster zu bilden, ein typisches Merkmal dieser Zellen in Kultur 5,7,31,32. Im Co-Kultursystem wurden weder bei TCs noch bei GCs im Vergleich zu ihren jeweiligen zeitlich angepassten Monokulturen offensichtliche morphologische Unterschiede beobachtet (Abbildung 3D), was darauf hindeutet, dass die insertbasierte Umgebung ein normales zelluläres Verhalten beibehält. Aufgrund technischer Einschränkungen bleibt die mikroskopische Bewertung der Co-Kultur jedoch eine Herausforderung, insbesondere bei der Unterscheidung und Beurteilung der TC-Morphologie unabhängig von den anderen Zellen. Um diese Einschränkungen zu überwinden, wird derzeit ein optimiertes Protokoll für die Zellfixierung entwickelt, indem alternative Strategien zur Zellidentifizierung in Abwesenheit von zellspezifischen Antikörpern für die Immunfärbung erforscht werden.
Die Funktionalität des Co-Kultursystems wurde durch die Analyse der Hormonproduktion und der Expression von Schlüsselmarkergenen für TCs und GCsbewertet 33,34, was die zelltypspezifische steroidogene Rolle bestätigte. Ein Vergleich zwischen dem GC-Monokultur- und dem Co-Kulturmodell ergab ähnliche Östradiol (E2)-Werte, die in vitro produziert wurden. Wie erwartet produzierte die TC-Monokultur jedoch nur vernachlässigbare Mengen an E2, was mit der 2-Zell-2-Gonadotropin-Hypothese (Abbildung 4A)15 übereinstimmt, die besagt, dass Thekazellen nicht in der Lage sind, E2 unabhängig zu synthetisieren.
Um die physiologische Relevanz der Kulturbedingungen weiter zu bewerten, wurde die Expression von Schlüsselmarkergenen33 untersucht. In Übereinstimmung mit der 2-Zell-2-Gonadotropin-Hypothese wurde CYP19A1 überwiegend in GCs exprimiert, während CYP17A1 hauptsächlich in TCs nachgewiesen wurde, ein Muster, das sowohl unter Mono- als auch unter Co-Kulturbedingungen beobachtet wurde (Abbildung 4B,C). Bemerkenswert ist, dass die Transkripthäufigkeit von CYP19A1 in GCs innerhalb des Co-Kultursystems im Vergleich zur GC-Monokultur höher war, obwohl keine Unterschiede in den Östradiolkonzentrationen beobachtet wurden.
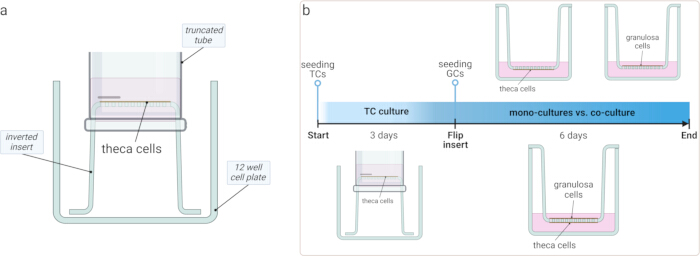
Abbildung 1: Schematische Darstellung des Zellkulturaufbaus. (A) Ein Diagramm, das die speziell angefertigte Impfkammer veranschaulicht, in der ein abgeschnittenes Röhrchen auf dem umgedrehten Einsatz verwendet wird, um ein Austreten des Mediums während der anfänglichen Kulturperiode zu verhindern. (B) Zeitplan des experimentellen Verfahrens: TCs wurden drei Tage lang auf dem invertierten Insert kultiviert, um eine Bindung zu ermöglichen. Das Insert wurde umgedreht und die GCs wurden auf der gegenüberliegenden Seite ausgesät, gefolgt von weiteren sechs Tagen Kultur. Die Studie verglich TCs und GCs, die getrennt mit dem TC-GC-Co-Kultursystem kultiviert wurden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
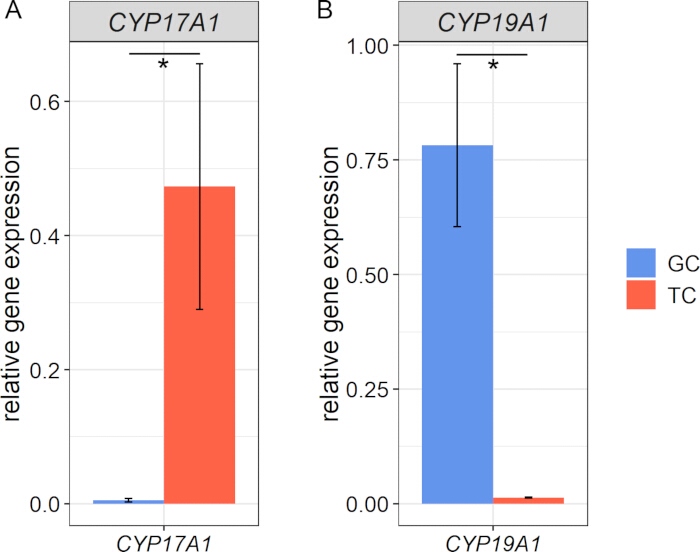
Abbildung 2: Genexpression von zelltypspezifischen Markern in frisch isolierten Granulosa- und Thekazellen. (A) CYP17A1 wurde ausschließlich in TCs exprimiert, während (B) CYP19A1 überwiegend in GCs nachgewiesen wurde, was die Spezifität und anfängliche Reinheit der isolierten Zellpopulationen vor der Kultur bestätigt. Die Daten werden als relative Expression normiert zum geometrischen Mittel der Referenzgene RPLP0 und TBP dargestellt. Mittelwerte und Standardfehler der Mittelwerte sind dargestellt, die Daten wurden auf Normalität und Varianz getestet, Sternchen zeigen signifikante Unterschiede an (n=3, t-Test). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
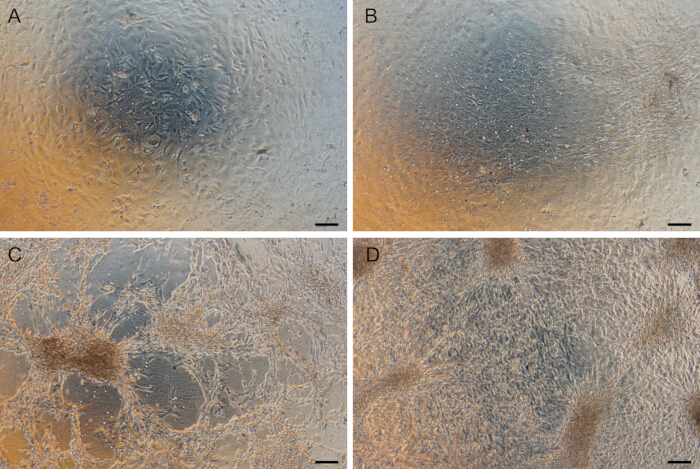
Abbildung 3: Morphologie von Theka- und Granulosazellen in Kultur. (A) TCs, die 3 Tage lang kultiviert wurden, wurden an die kollagenbeschichtete Insertmembran gebunden. (B) TCs wuchsen nach dem gesamten 9-Tage-Zeitraum in der Monokultur zu einem Zusammenfluss. (C) GCs zeigen nach 6 Tagen in Kultur den typischen Fibroblasten-ähnlichen Phänotyp. (D) Die Kokultur von TC und GC zeigt keinen offensichtlichen morphologischen Unterschied im Vergleich zu den jeweiligen zeitlich angepassten Monokulturen. Dieses Bild wurde nach 6 Tagen GC-Kultur und 9 Tagen TC-Kultur (am Endpunkt des Co-Kultur-Experiments) aufgenommen. Maßstabsstäbe 100 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
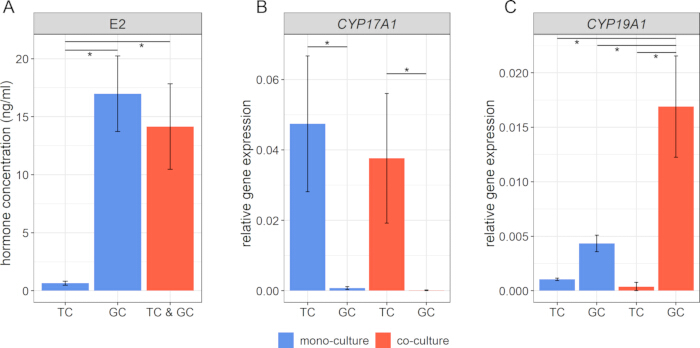
Abbildung 4: Analyse der funktionellen Marker im Co-Kultursystem. (A) Die Hormonkonzentrationen von Östradiol (E2) bestätigen die physiologische Funktionalität des Zellkultursystems. (B, C) Die Genexpressionsanalyse des TC-Markers CYP17A1 und des GC-Markers zeigt CYP19A1 die Identität und den Funktionszustand beider Zellpopulationen. Zur Berechnung der relativen Expression wurde das geometrische Mittel der Referenzgene RPLP0 und TBP verwendet. Mittelwerte und Standardfehler der Mittelwerte sind dargestellt, die Daten wurden auf Normalität und Varianz getestet, Sternchen zeigen signifikante Unterschiede an (n=3, einfache ANOVA). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
Diskussion
Voraussetzung für die Durchführung dieses Co-Kultur-Modells ist eine gut durchgeführte Isolierung beider Zelltypen, um eine Kreuzkontamination zu verhindern. Die Reinheit beider Zellpräparate wurde anhand der Genexpression des TC-spezifischen Markers CYP17A1 und des GC-spezifischen Markers CYP19A1 bewertet. Wie bereits gezeigt, zeigte die Technik der GC- und TC-Isolierung keine relevante Kreuzkontamination30.
Dieses Co-Kultur-Modell ermöglicht die gleichzeitige Kultivierung von Theka- und Granulosazellen auf gegenüberliegenden Seiten einer Membran, wobei ihre räumliche Organisation innerhalb des Follikels nachgeahmt und der physiologische Zustand beider Zellpopulationen unterstütztwird 3. Die Validität des Modells wird durch sein Hormonproduktionsprofil und seine Genexpressionsmuster verstärkt, die mit der 2-Zell-2-Gonadotropin-Hypothese übereinstimmen15. Erwartungsgemäß bestätigen die niedrigen Östradiolspiegel in der TC-Monokultur, dass Thekazellen allein nicht in der Lage sind, Östradiol zu synthetisieren, was das etablierte Wissen über die follikuläre Steroidogenese unterstützt35. Trotz der höheren CYP19A1 Expression in co-kultivierten GCs blieben die Östradiolspiegel vergleichbar mit denen der GC-Monokultur, was auf den Einfluss von Regulationsmechanismen wie Substratverfügbarkeit, Feedback-Hemmung oder Unterschieden in der Enzymaktivität hindeutet. Eine weitere Erforschung der Signalwege und der zugrundeliegenden Mechanismen ist als Gegenstand künftiger Studien gerechtfertigt. Nichtsdestotrotz ist die Etablierung eines funktionierenden Co-Kultursystems von Rinder-TC und GC zwingend erforderlich, wie in dieser Studie dargelegt. Die vorliegende Studie konzentrierte sich auf die Östradiolproduktion und die mRNA-Expressionsniveaus von CYP17A1 und CYP19A1 als Schlüsselindikatoren für die Funktionalität des Co-Kulturmodells. Beide stellen empfindliche Marker für die Granulosa- und Thekazellfunktiondar 4,8,36 und stehen in direktem Zusammenhang mit der 2-Zell-2-Gonadotropin-Hypothese15. Obwohl die Bedeutung der Proteinexpression anerkannt wurde, schloss der Mangel an zuverlässigen Antikörpern eine genaue Bewertung aus. Daher ging eine umfassende Analyse der Proteingehalte über den Rahmen dieser ersten Untersuchung hinaus.
Generell handelt es sich bei diesem Modell um eine Weiterentwicklung des traditionellen 2D-Kulturmodells, das teilweise die Struktur des Ovarialfollikelsnachahmt 3. Die Ergebnisse unterstützen einen physiologischen Status beider Zellkompartimente, der sich durch die Expression sensitiver Marker für die GC- und TC-Physiologie zeigt.
Ein Vorteil gegenüber herkömmlichen 2D-Kulturmodellen besteht darin, die parakrine Interaktion zwischen Theka- und Granulosazellen zu erleichtern und gleichzeitig ihre räumliche Trennung beizubehalten und die in vivo follikuläre Struktur besser nachzuahmen. Im Gegensatz dazu fehlt diese strukturelle Organisation bei Co-Kultursystemen auf der Schale, bei denen TCs und GCs in einer einzigen Vertiefung gemischt werden. Studien, in denen solche Systeme verwendet wurden, haben üblicherweise ein GC:TC-Verhältnis von 4:1 19,20,21 verwendet, aber dieser Ansatz spiegelt nicht die in vivo gefundene Kompartimentierung wider und ist daher möglicherweise nicht für die Analyse des Substrataustauschs geeignet. Darüber hinaus können Veränderungen, die auf Zellebene gefunden werden, nicht ohne weiteres erkannt werden, wenn dieses GC-TC-Gemisch auf komplexe Weise sortiert werden muss.
Dreidimensionale Co-Kulturmodelle für Granulosa- und Thekazellen sind nach wie vor rar, aber erste Versuche haben vielversprechende Ergebnisse gezeigt. Die Gruppe von Kotsuji 22,23,24,37 beschrieb zuvor die Interaktion von Granulosa- und Thekazellen in Kultur unter Verwendung einer Kollagenmembran als physikalischem Separator. Dieses System stützte sich jedoch auf eine speziell angefertigte Kollagenmembran, was die Reproduzierbarkeit und Standardisierung erschwerte. Im Gegensatz dazu profitiert das vorgestellte Co-Kultur-Modell von kommerziell erhältlichen hängenden Kultureinsätzen, die die Reproduzierbarkeit, Standardisierung und Produktqualität verbessern und eine breitere Anwendbarkeit in Laboren gewährleisten. Obwohl das hier vorgestellte Modell zu einer höheren Östradiolproduktion führte als die Vorgängermodelle, ist der Vergleich dieser Modelle schwierig, da es an Einheitlichkeit der Zellkulturzusätze mangelt, insbesondere an den verwendeten Konzentrationen26 oder der zusätzlichen Verwendung von IGF-1 22,23,24,37.
Einer der wichtigsten Schritte des Verfahrens ist die Kultur der TCs in der Impfkammer. Die Sicherstellung, dass die Kammer sicher auf dem umgedrehten Einsatz platziert ist, ist unerlässlich, um ein Austreten von Medien zu verhindern, das sonst die Befestigung und das Überleben des TC beeinträchtigen könnte. Daher wird empfohlen, die Impfkammer mit Hilfe einer Pinzette fest auf den umgedrehten Einsatz zu drücken und die Platzierung der Impfkammer visuell zu überprüfen. Außerdem erfordert das Entfernen der Impfkammer und das Umdrehen des Einsatzes nach drei Tagen technische Präzision. Um diesen Schritt durchzuführen, ohne die angehängten Zellen zu stören und/oder zu beschädigen, kann ein gewisses Training erforderlich sein. Ein weiterer wichtiger Aspekt ist die Aussaatdichte von GCs. Eine höhere Zelldichte, die den optimalen Wert von 1,0 x 10⁵ Zellen pro Insert überschreitet, kann zu einer Differenzierung der GCs führen, was sich möglicherweise auf die steroidogene Produktion auswirkt. Darüber hinaus ergab die vorgestellte Kryokonservierungsmethode nach dem Auftauen eine Viabilität von 80-90% für beide Zelltypen.
Obwohl das beschriebene Modell ein physiologisches und reproduzierbares System zur Untersuchung von Granulosa- und Thekazell-Interaktionen bietet, sollten einige Einschränkungen berücksichtigt werden. Die Methode ist auch an andere Arten anpassbar; Speziesspezifische Unterschiede können jedoch eine Optimierung von Zellkulturparametern wie Zelldichten, Timing oder Medienzusammensetzung erfordern. Die Skalierbarkeit dieses Modells ist auf die Verfügbarkeit der Zellkultureinsätze beschränkt, könnte aber für die meisten Effektorstudien ausreichend sein. Schließlich ist dieses Co-Kultur-Modell ein weiterer Schritt zur Nachahmung der In-vivo-Situation des Follikels, aber es fehlt noch die volle Komplexität des Ovarialfollikels.
Zusammenfassend lässt sich sagen, dass das vorgestellte Modell leicht modifiziert werden kann, um unterschiedlichen experimentellen Anforderungen gerecht zu werden, wie z. B. die Verlängerung der Kulturperiode, die Anpassung der Zellzahlen oder -verhältnisse oder die Einbeziehung zusätzlicher Faktoren. Mit der Weiterentwicklung stellt dieses System ein wertvolles Werkzeug dar, um die Follikelfunktion, die Steroidogenese und die Zellsignalisierung zwischen beiden Zellkompartimenten zu untersuchen. Darüber hinaus birgt es Potenzial für Anwendungen in der Reproduktionstoxikologie, da es eine kontrollierte Plattform zur Bewertung der Auswirkungen verschiedener Verbindungen auf Follikelzellen bietet.
Offenlegungen
Alle Autoren erklären, dass sie keine Interessenkonflikte haben.
Danksagungen
Wir bedanken uns bei Veronica Schreiter, Maren Anders und Olivier Seidel für ihre hervorragende technische Unterstützung. Des Weiteren möchten wir uns bei dem gewerblichen Schlachthof "DANISH CROWN Teterower Fleisch GmbH" (Deutschland) bedanken, von dem wir die Eierstöcke für diese Studie erhalten haben.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 10x Hank's Balanced Salt Solution HBSS (w Mg/Ca, Phenolrot) | Bio& Bio Verkaufen | BS. Nr. L201-10 | in Reinstwasser auflösen; Stellen Sie den pH-Wert der Aufschlusslösung (HBSS und HEPES) auf 7,4 ein und führen Sie vor der Verwendung eine Sterilfiltration durch |
| 18 G Nadel, 40 mm, Durchmesser 1,2 mm | Roth | 281T.1 | Einwegnadel, kurzer Schnitt |
| 3 ml Spritze (Omnifix Luer) | Roth | LY22.1 | |
| Accutase | Merck | Nr. A6964 | Firmenzweig: Sigma-Aldrich |
| Amphotericin B (250 µ g/ml) | Bio& Bio Verkaufen | BS. AB17.01050 | |
| Androstendion | Merck | 46033 | Wir verwenden eine Stammlösung von 10 mM, verdünnt in 100 % Ethanol; Filiale: Supelco |
| Fernglas Carl Zeiss Technival2 | Carl Zeiss Jena | nicht zutreffend | in Verbindung mit Auflicht Schott KL 1600 LED |
| BSA (5 %) | Merck | Nr. A3311 | Firmenzweig: Sigma-Aldrich |
| Zellsieb (100 & Mikro; M Porengröße) | Sarstedt | 83.3945.100 | passend für 50 ml Zentrifugationsröhrchen |
| Kollagen R (0,2 %) | Serva | 47254 | |
| Kollagenase NB8 (10%) | Nordmark | S1745601 | |
| CoolCell LX Behälter zum Einfrieren von Zellen | Merck | CLS432002 | Produkt von Corning |
| Fläschchen zur Kryokonservierung (2 ml) | TPP Faust | TPP89020 | |
| Kulturschale, 12 Wells, flacher Boden | TPP Faust | TPP92112 | |
| Kulturschale, 24 Wells, flacher Boden | TPP Faust | TPP92424 | |
| Kulturschale, 6 Vertiefungen, flacher Boden | TPP Faust | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| DPBS ohne Ca2+, Mg2+ | Bio& Bio Verkaufen | BS. Nr. L182-10 | Vor Gebrauch in Reinstwasser auflösen und autoklavieren |
| Östradiol, 17b-[2,4,6,7-3H] | Hartmann Analytik | ART1555 | |
| Fötales Kälberserum (FBS Superior stabil) | Bio& Bio Verkaufen | FBS. Nr. S0615 | |
| FSH (~7.000 IE/mg; aus menschlicher Hypophyse) | Merck | Nr. F4021 | Wir bevorzugen eine Stammlösung von 2 & micro; g/ml, verdünnt in 0,9 % NaCl; Firmenzweig: Sigma-Aldrich |
| hängende Zellkultureinsätze (0,4 &Mikro; M Porengröße) | cellQART | 9320412 | Achten Sie bei der Bestellung auf die unterschiedlichen Eigenschaften von Beilagen. wir bevorzugen eine klare PET-Membran für die Phasenkontrastmikroskopie |
| HEPES (1 M) | Roth | 9105.2 | Stellen Sie den pH-Wert der Aufschlusslösung (HBSS und HEPES) auf 7,4 ein und führen Sie vor der Verwendung eine Sterilfiltration durch |
| Holo-Transferrin (Rinder) | Merck | Nr. T1283 | in sterilem Wasser auflösen; Firmenzweig: Sigma-Aldrich |
| innuPREP RNA Mini Kit 2.0 | IST innuscreen | Artikel-Nr.: 845-KS-2040250 | |
| Insulin (10 mg/ml; aus der Bauchspeicheldrüse des Rinders) | Merck | Nr. I0516 | in 1x PBS auflösen; Firmenzweig: Sigma-Aldrich |
| L-Glutamin (200 mM) | Bio& Bio Verkaufen | BS. Nr. K0283 | |
| LR3-IGF-1 | Merck | Nr. I1146 | Wir verwenden eine Stammlösung von 200 & Mikro; g/ml, gelöst in 10 mM HCl und 1x PBS mit 1 mg/ml BSA; Firmenzweig: Sigma-Aldrich |
| NanoDrop 1000 Spektralphotometer | ThermoScientific | nicht zutreffend | Messung der RNA-Konzentration |
| NEA (100-fach) | Bio& Bio Verkaufen | BS. Nr. K0293 | |
| Penicillin/Streptomycin (10.000 IE/10 mg/ml) | Bio& Bio Verkaufen | BS. Nr. A2213 | |
| Gereinigtes Wasser, geeignet für Zellkulturen | Merck | W3500 | Firmenzweig: Sigma-Aldrich |
| SensiFAST cDNA-Synthese-Kit | Biolinie | BIO-65054 | Lieferung über den Vertriebspartner BioCat |
| Natriumbicarbonat (7,5%) | Bio& Bio Verkaufen | BS. Nr. L1713 | |
| Natriumselenit | Merck | Nr. S9133 | in sterilem Wasser auflösen; Firmenzweig: Sigma-Aldrich |
| Thermoschüttler TS-100C | Fischer Scientific | 12357627 | in Verbindung mit HC18-Block (Kat.-Nr. 12337627) |
| α-MEM | Bio& Bio Verkaufen | BS. Nr. F0915 |
Referenzen
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Nachdrucke und Genehmigungen
