Die stabile In-vitro-Amplifikation der Primordial Germ Cell-Like Cells (PGCLCs), eines aus pluripotenten Stammzellen gewonnenen Surrogatmodells der embryonalen primordialen Keimzellen, stand vor technischen Herausforderungen. Dieses Protokoll unterstützt die langfristige Expansion von PGCLCs in einem in vitro-Zustand ohne Serum- oder Feeder-Layer-Zellen.
Methodenartikel
Langzeitkultur von humanen primordialen keimzellähnlichen Zellen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Primordiale Keimzellen (PGCs) sind gemeinsame Vorläufer aller männlichen und weiblichen Keimbahnzellen. PGCs entstehen in periimplantierten Säugetierembryonen und werden bei sexueller Differenzierung der Gonadenanlage zu geschlechtsspezifischen Keimzellvorläufern. Das In-vitro-Modell , das allgemein als PGC-ähnliche Zellen (PGCLCs) bekannt ist und aus menschlichen pluripotenten Stammzellen erzeugt wird, ist ein nützlicher Ersatz für die humanen embryonalen PGCs und bietet eine einzigartige Gelegenheit, die menschliche Gametogenese in vitro zu erforschen. Das hier vorgestellte Protokoll unterstützt die langfristige in vitro Expansion von humanen PGCLCs. Frisch isolierte PGCLCs werden zunächst auf einer STO-Feeder-Schicht gehalten und dann in einem feederfreien Zustand auf Basalmembranextrakt expandiert. Die Langzeitkultur-PGCLCs (LTC-PGCLCs) können mit Fluoreszenz-aktivierter Zellsortierung (FACS) als CD38-positive Zellen angereichert werden und lassen sich als reine, feeder- und serumfreie monotone Kultur ohne offensichtliche Einschränkungen wie Seneszenz leicht auf Dutzende von Millionen von Zellen amplifizieren. Es ist praktisch machbar, aus einigen tausend frisch isolierten PGCLCs eine reine Population von mehr als 1 Million humanen PGCLCs zu gewinnen. Die humane LTC-PGCLC-Zellkultur ist ein nützliches und praktisches In-vitro-Modell zur Untersuchung der Biologie menschlicher Keimzellen und der Differenzierung in die nachgeschalteten Keimbahnzellen.
Einleitung
Primordiale Keimzellen (PGCs) sind die frühesten Vorläuferzellen aller Keimbahnzellen. Humane PGCs entstehen aus posterioren Epiblasten - vermutlich nicht gebundenen Amnion-Vorläuferzellen - in der frühen Postimplantation von gastrulierenden Embryonen in der 2-3. Schwangerschaftswoche 1,2,3,4,5,6,7. Für die Spezifizierung von PGCs bei Mensch und Maus spielen die Signalwege, die durch die knochenmorphogenetischen Proteine (BMPs) und WNT3 aktiviert werden, eine entscheidende Rolle 3,6. Während die Induktion von drei Transkriptionsfaktoren, BLIMP1, PRDM14 und TFAP2C, für die Spezifizierung von Maus-PGCs notwendig ist, ist bei der humanen PGC-Spezifizierung die Rolle von PRDM14 verringert. SOX17, das für die PGC-Spezifikation von Mäusen entbehrlich, aber für die PGC-Spezifikation beim Menschen unerlässlich ist, wird durch BMP-Signalübertragung in einer Weise induziert, die ausschließlich von EOMES oder sowohl EOMES als auch TBXT abhängt 7,8,9. Humane PGCs wandern vom posterioren Epiblasten zu den Gonadenanlagen in den Genitalleisten durch das dorsale Mesenterium in der 5-6 Schwangerschaftswoche 10,11,12,13,14,15,16. Die Migration des menschlichen PGC könnte durch Chemotaxis ausgelöst werden, obwohl sie auf eine experimentelle Bestätigung wartet. Die transkriptomischen Profile der wandernden humanen PGCs sind nicht identisch mit denen der PGCs der Maus im gleichen Stadium 17,18. So exprimieren z.B. humane PGCs DAZL bereits vor ihrer Absiedlung in den Gonadenanlagen, während Maus-PGCs DAZL erst nach ihrer gonadalen Absiedlungexprimieren 9. Mit Beginn der geschlechtsspezifischen Differenzierung der gonadalen Körperzellen differenzieren sich PGCs auch zu Prospermatogonien (auch Gonozyten genannt) oder Oogonien.
Da der Zugang zu humanen embryonalen PGCs aufgrund technischer und ethischer Barrieren äußerst schwierig ist, wird die Verwendung von PGC-ähnlichen Zellen (PGCLCs), die aus pluripotenten Stammzellen gewonnen werden, immer beliebter3. PGCLCs von Mäusen ähneln dem Postmigrationsstadium von PGCs, das durch eine fortgeschrittene Demethylierung der globalen genomischen DNA (gDNA) gekennzeichnet ist, und sie sind in der Lage, befruchtungsfähige Spermien und Eizellen zu erzeugen 19,20,21. Im Gegensatz dazu ähneln humane PGCLCs früheren Stadien embryonaler PGCs mit begrenzter globaler gDNA-Demethylierung 7,22,23,24. Es häufen sich die Hinweise darauf, dass humane PGCLCs trotz ihres relativ unreifen Status in der Lage sind, sich in vitro zu fortgeschritteneren Stadien von Keimzellen zu differenzieren, die Oogonien25,26 oder Prospermatogonien27 ähneln.
Seit Irie et al. im Jahr 2015 die erste Generation von PGCLCs aus humanen pluripotenten Stammzellen veröffentlichthaben 7, haben eine Reihe von Laboratorien verschiedene Protokolle für die humane PGCLC-Produktion veröffentlicht. Die frühen Standardprotokolle beinhalten die Bildung von pluripotenten Zellaggregaten, die oft als Embryoidkörper bezeichnet werden 7,22,24,26,28,29. Humane PGCLCs können unter Verwendung verschiedener aggregatbasierter Protokolle hergestellt werden, die vergleichbare transkriptomische Profile aufweisen, die alle wichtige PGC-Markergene wie PRDM1, SOX17, TFAP2C, POU5F1 und NANOS3 stark exprimieren, während die Expression des Pluripotenzmarkers SOX2 oder des PGC-Markers DDX4 im späten Stadium häufig unterdrückt wird24. Es wurde auch berichtet, dass es erfolgreiche Versuche gab, humane PGCLCs aus Monolayer-Zellkulturen herzustellen, um die Skalierbarkeit und den Komfort zu verbessern30. Obwohl die Ausbeute an PGCLCs relativ gering ist, trägt die erfolgreiche Herstellung von humanen PGCLCs aus pluripotenten Stammzell-abgeleiteten In-vitro-Modellen der Embryonen im Gastrulationsstadium wesentlich zur Aufklärung der Mechanismen der Keimbahnspezifikation und der PGC-Entwicklung im Frühstadium bei 31,32,33,34,35,36.
Obwohl sich die Ausbeute und Qualität von humanen PGCLCs, die unter Verwendung verschiedener Zellkulturmethoden hergestellt wurden, verbessert haben, stellt die technische Schwierigkeit bei der Zellkulturerweiterung von humanen PGCLCs ein erhebliches Hindernis für ihre Anwendung in Experimenten dar, die große Mengen homogener Zellpopulationen erfordern, wie z. B. chemisches oder genetisches Screening, sowie für die Produktion fortgeschrittener Stadien von Keimbahnzellen26. Gell et al. berichteten über die Aufrechterhaltung von humanen PGCLCs für bis zu 21 Tage an STO-Futterautomaten in einem FR10-basierten Medium, das den Stammzellfaktor (SCF) und 2,5 % fötales Kälberserum (FCS) enthielt; PGCLCs neigten jedoch dazu, von der PGC-ähnlichen Identität zu anderen Zelltypen zu divergieren, die für die Entwicklung von Keimbahnzellen möglicherweise nicht relevant sind37. Murase et al. eliminierten wiederholt solche unerwünschten Zellen aus der Kultur per FACS bei jedem Passaging und zeigten, dass humane PGCLCs in der Lage sind, ihr Proliferationspotenzial langfristig in vitro zu erhalten 38. Später berichteten Murase et al. über eine erfolgreiche Amplifikation von humanen PGCLCs in einem Medium, das 2,5 % FCS39 enthielt, aber ihre Methode erfordert die m220-5-Feeder-Layer-Zellen, bei denen es sich um spontan entstandene MMC-resistente Subklone der embryonalen m220-Mauszellen handelt, die die membrangebundene Form von Maus-SCF aus einem exogenen Vektor exprimieren40. Bis heute sind m220-5-Zellen noch nicht in einem öffentlich zugänglichen Repositorium hinterlegt. Daher bleibt es eine große Herausforderung, die humane PGCLC-Kultur in vitro auf eine große Anzahl homogener Zellen auszudehnen und ihre PGC-ähnlichen Eigenschaften in einem einfachen Zustand zu erhalten, der keine nicht standardmäßige Feeder-Zellressource erfordert und frei von tierischen Reagenzien ist, deren Effizienz von Charge zu Charge variieren kann.
Um die oben genannte technische Hürde zu überwinden, wurde eine Methode entwickelt, die eine langfristige in vitro-Expansion von humanen PGCLCs als homogene Zellpopulation ermöglicht und die PGC-ähnlichen Eigenschaften in einem Zustand ohne Serum- oder Feeder-Layer-Zellen beibehält41. Da humane PGCLCs Telomerase exprimieren, vermehren sich diese Zellen mindestens 150 Tage lang mit einer konstanten Rate ohne Anzeichen von Seneszenz oder Abweichung von anderen Zelltypen. Die Langzeitkultur-PGCLCs (LTC-PGCLCs) behalten ihre humanen PGC-ähnlichen transkriptomischen Eigenschaften bei, obwohl ihre globale gDNA bei wiederholten Passagen leicht demethyliert wird. LTC-PGCLS werden leicht in pluripotente embryonale keimzellähnliche Zellen (EGCLCs) umgewandelt, wodurch das iPSC-ähnliche Transkriptom und das gDNA-Methylom wiederhergestellt werden, obwohl die geprägte allelische Restriktion der H19-RNA-Expression verloren geht. LTC-PGCLCs sind auch in der Lage, sich in der xenobiotischen Organoidkultur von xrTestis in DAZL-exprimierende Zellen zu differenzieren, die Prospermatogonien ähneln27. Somit stellt das humane LTC-PGCLC-Modell eine neuartige stabil erhaltene, pluripotentenzrelevante Zellkulturressource dar, die die biologischen Eigenschaften von PGCLCs dauerhaft beibehält und in vitro als stabile Zelllinie leicht erweitert werden kann.
Dieser Artikel beschreibt die Methode zur Anpassung einer frisch isolierten, mit FACS angereicherten reinen Population humaner PGCLCs an eine serumfreie, langfristige Erhaltungskultur durch zeitliche Unterstützung durch die Standard-STO-Feeder-Layer-Zellen und dann in einem feederfreien Zustand mit Basalmembranextrakt (BME). Diese Methode unterstützt die In-vitro-Expansion von humanen PGCLCs, die unter Verwendung des embryoidkörperabhängigen Protokolls hergestellt wurden, wie zuvor beschrieben 24,41,42 oder von Sasaki et al. 22 berichtet, und die Monolayer-Kulturmethode, über die Overeem et al.berichtet wurde 30. Bei Anwendung auf humane PGCLCs, die wie beschriebenhergestellt wurden 41, kann eine anfängliche Population von 10.000 Zellen in 1,5 - 2 Monaten auf fast 1 x 10⁹ Zellen erweitert werden, mit einer Verdopplungszeit der Population von 4 -4,5 Tagen 41. Die Anwendbarkeit dieser Methode auf humane PGCLCs, die mit anderen Methoden hergestellt wurden, wird ebenfalls erwartet.
Protokoll
1. Vorbereitung des Zellkulturmediums
- Bereiten Sie die Medien vor, wie in Tabelle 1, Tabelle 2, Tabelle 3 und Tabelle 4 beschrieben. Bewahren Sie Aliquots dieser Medien eingefroren auf.
- Bereiten Sie PGCLC Basalmedium vor, wie in Tabelle 1 beschrieben. Machen Sie 40 ml Aliquote und lagern Sie sie 6 Monate lang bei -20 °C. Bereiten Sie STO Medium 1 vor, wie in Tabelle 2 beschrieben. 50 mL Aliquots in 50 mL Zentrifugenröhrchen bei 4 °C für 1 Monat lagern.
- Bereiten Sie STO medium 2 wie in Tabelle 3 beschrieben vor. Sofort verwenden. Bereiten Sie das mit Mitomycin-C behandelte STO-Zellen (MMC-STO)-Speichermedium vor, wie in Tabelle 4 beschrieben. Lagern Sie 10 mL Aliquots 6 Monate lang bei -20 °C.
ACHTUNG: Da Dimethylsulfoxid als gefährlich (brennbare Flüssigkeit) gilt, sollte es von Hitze, Funken, offenen Flammen oder heißen Oberflächen ferngehalten werden. Befolgen Sie das örtliche Regulierungsprotokoll für die Entsorgung.
2. Aufbereitung von MMC-behandelten STO-Zellen
HINWEIS: Die MMC-Behandlung von STO-Zellen inaktiviert deren Proliferationsaktivität, ohne ihre Lebensfähigkeit wesentlich zu beeinträchtigen. Die MMC-STO-Zellen werden sowohl als Feeder-Layer-Zellen während der Erstkultur von humanen PGCLCs (Schritt 4) als auch als Quelle des zellfrei konditionierten Mediums (Schritt 3) verwendet.
- Züchten Sie STO-Zellen in STO-Medium 1 in vier P15-Schalen bis zur Nähe des Zusammenflusses. Wechseln Sie das STO-Medium 1 auf 23 ml/Schale. Geben Sie 23 μl/Schale mit einer Konzentration von 10 mg/ml MMC direkt in das Medium bis zu einer Endkonzentration von 10 μg/ml.
- Gut schwenken und bei 37 °C in einem CO2 -Inkubator 4 h inkubieren.
ACHTUNG: MMC ist tödlich, wenn eine große Menge verschluckt wird, und es steht im Verdacht, krebserregend zu sein. Die Handhabung und Entsorgung dieser Verbindung sollte den lokalen behördlichen Protokollen entsprechen. - Spülen Sie die Zellen mit 20 mL/Schale Dulbecco's PBS (Ca/Mg-frei) 2x bei Raumtemperatur.
- Dissoziieren Sie die Zellen mit 4 mL/Schale TrypLE Express in einem CO2 -Inkubator für 2 min. Suspendieren Sie die Zellen durch sanftes Pipettieren in eine Einzelzellsuspension.
- Zwei Schalen mit Zellsuspension (8 ml) werden in ein 50-ml-Zentrifugenröhrchen mit 30 ml eiskaltem STO-Medium-1 gegeben. Wiederholen Sie dies für die anderen beiden Schalen, um zwei Röhrchen mit 38-ml-Zellsuspension herzustellen.
- Zählen Sie Zellen in Gegenwart von 0,2 % Trypanblau zur Beurteilung der zellulären Lebensfähigkeit mit einem Hämozytometer oder einem automatisierten Zellzähler.
- Zellen bei 300 x g für 5 min bei 4 °C zentrifugieren. Überstand verwerfen. Resuspendieren Sie Zellpellets in eiskaltem, gefrorenem Zellspeichermedium auf 5 x 10⁶ Zellen/ml.
- Bereiten Sie 1 ml Aliquots von MMC-behandelten STO-Zellen in den kryogenen Fläschchen vor. Frieren Sie die Zellen langsam in einer Styroporbox oder einem Slow-Freeze-Gerät ein und lagern Sie sie bis zu 12 Monate bei -80 °C.
3. Aufbereitung des STO-konditionierten Mediums (S-CM)
HINWEIS: Das zellfrei konditionierte Medium der MMC-STO-Zellen (hergestellt in Schritt 2) unterstützt das Überleben und die Proliferation von humanen PGCLCs, während es deren Abweichung zu Zellen unterdrückt, die PGC-ähnliche Eigenschaften verlieren.
- Tag 1: MMC-behandelte STO-Zellen aus gefrorenen Beständen auftauen und 5 x 10⁶ Zellen in eine gelatinebeschichtete P10-Schale mit 10 ml/Schale STO-Medium 2 inokulieren. Die typische Größe einer Charge besteht aus 4 bis 8 P10-Schalen. Inkubieren Sie die Zellen über Nacht bei 37 °C in einem CO2 -Inkubator.
- Um die Vertiefungen mit Gelatine zu beschichten, fügen Sie 1 ml/Vertiefung 0,1 % Gelatine hinzu und inkubieren Sie sie mindestens 20 Minuten lang bei Raumtemperatur. Aspirieren Sie die überschüssige Gelatinelösung und lassen Sie die Vertiefungen in der Biosicherheitswerkbank offen, bis sie trocken sind. Lagern Sie gelatinebeschichtete Kunststoffartikel 2 Wochen lang bei Raumtemperatur oder 3 Monate bei 4 °C.
- Tauen Sie die Aliquoten des PGCLC-Basalmediums über Nacht bei 4 °C auf.
HINWEIS: Es wird nicht empfohlen, dieses Medium bei einer höheren Temperatur schneller aufzutauen. PGCLC-Basalmedium nicht länger als 1 Woche bei 4 °C lagern. - Tag 2: Entfernen und entsorgen Sie das STO-medium 2. Waschen Sie die Zellen mit warmem DPBS (~10 mL/Schale), gefolgt von einer Wäsche mit warmem PGCLC Basalmedium (2 mL/Schale). Geben Sie warmes PGCLC-Basalmedium (12 ml/Schale) hinzu und inkubieren Sie die Zellen über Nacht bei 37 °C in einem CO2 -Inkubator.
- Tag 3: Sammeln Sie das gesamte konditionierte Medium in einem 50 mL Zentrifugenröhrchen. Wiederholen Sie die PGCLC-Basalflüssigkeit (12 ml/Schale) und die Inkubation, um das konditionierte Medium am nächsten Tag aus derselben STO-Zellkultur zu gewinnen. Das bei 300 x g gesammelte konditionierte Medium wird 5 min lang bei 4 °C zentrifugiert. 10 mL Aliquots des Überstands (S-CM) in 15 mL Zentrifugenröhrchen herstellen. Entnehmen Sie nicht die letzten 3 ml des Mediums, das am Boden der 50-ml-Röhrchen verbleibt, um eine Kontamination der MMC-STO-Zellen in S-CM zu vermeiden. Lagern Sie die Aliquots bei -80 °C bis zu 6 Monate.
- Tag 4: Ernten Sie S-CM, indem Sie Schritt 3.4 jeden Tag wiederholen, bis sich die MMC-STO-Monolayer-Kultur nach 5-6 Tagen Kultur in PGCLC Basalmedium verschlechtert. Stoppen Sie die Ernte, wenn sich 25 % oder mehr Zellen von der Schale gelöst haben.
4. Anpassung humaner PGCLCs an die Langzeitkultur
- Kultivieren Sie frisch isolierte humane PGCLCs auf der MMC-STO-Feeder-Schicht. Präparation humaner PGCLCs unter Verwendung einer zuvor veröffentlichten Methode (Mitsunaga et al.24; Kobayashi et al.41). Detaillierte Protokolle der PGCLC-Induktion beim Menschen wurden ebenfalls veröffentlicht42,43.
- Nach der ersten Amplifikation für bis zu 28 Tage halten Sie PGCLCs als LTC-PGCLCs auf dem BME als feederfreie Kultur. Während dieser beiden Schritte der PGCLC-Kultur ist das STO-konditionierte Medium (S-CM, hergestellt in Schritt 3) mit SCF-Supplementierung, aber ohne Einbeziehung von FCS zu verwenden. Der ROCK-Inhibitor ist nur unmittelbar nach der Passage notwendig.
HINWEIS: Als BME wurde in unserem Labor Matrigel in ESC-Qualität verwendet. Andere kommerzielle Produkte unterstützten die langfristige Ausbreitung von LTC-hPGCLCs nicht. - Tag 1: MMC-behandelte STO-Feeder-Layer-Zellen in gelatinebeschichteten 6-Well-Platten auf 8 x 10⁴ Zellen/cm2 mit 3 mL/Well-STO-Medium 2 inokulieren. Inkubieren Sie die Feeder-Schicht bei 37 °C in einem CO2 -Inkubator über Nacht.
- Tag 2: Entsorgen Sie das STO-Medium aus der Kultur und waschen Sie die Zellen mit warmem Dulbecco's MEM (serumfrei), 3 mL/Well. Fügen Sie 3 ml/Well S-CM frisch ergänzt mit 0,1 mM 2-Mercaptoethanol, 50 μg/ml Ascorbinsäure, 100 ng/ml humanem rekombinantem SCF und 10 μM Y-27632 hinzu. Impfen Sie 500 - 2.000 frisch isolierte humane PGCLCs in jeder Vertiefung auf die STO-Feeder-Schicht. Inkubieren Sie die Zellen über Nacht bei 37 °C in einem CO2 -Inkubator.
HINWEIS: Das Vorhandensein von Serum, selbst in geringen Konzentrationen, neigt dazu, das Auftreten unerwünschter Zelltypen aus humanen PGCLCszu verursachen 41. Das Wachstum von humanen PGCLCs hängt streng von SCF41 ab. Y-27632 unterstützt das Überleben von einzelligen humanen PGCLCs zum Zeitpunkt der Inokulation, ist aber während der Erhaltungskultur nicht erforderlich. 2-Mercaptoethanol, Ascorbinsäure, SCF und Y-27632 frisch in das Medium geben. In einem typischen Experiment werden PGCLCs in alle Vertiefungen einer 6-Well-Platte inokuliert. Wenn eine größere Anzahl von PGCLCs als Ausgangsmaterial zur Verfügung steht, ist eine höhere Dichte von bis zu 10.000 PGCLCs pro Well akzeptabel. - Tag 3: Ersetzen Sie die Hälfte des Mediums (1,5 ml/Well) durch warmes S-CM, das frisch mit 0,1 mM 2-Mercaptoethanol, 50 μg/mL Ascorbinsäure, 100 ng/ml humanem rekombinantem SCF, aber ohne Y-27632 ergänzt wird. PGCLCs dürfen nicht gestört werden, da sie sich durch einen starken Medienstrom von der Feederschicht lösen können.
- Tag 5 - 28: Wiederholen Sie Schritt 4.5 jeden zweiten Tag. Da sich PGCLCs typischerweise nach 4,5 Tagen zur Verdopplungszeit der Populationvermehren 41, entstehen kleine Cluster von PGCLCs am Tag 6-7 oder später (Abbildung 1A-D). Die Sternhaufen werden an Tag 14-15 deutlicher (Abbildung 1E,F). Wenn unerwünschte Arten von zellulären Clustern mit anomalen morphologischen Merkmalen auftreten, die von den korrekten PGCLCs abweichen, verwerfen Sie Vertiefungen, die solche Cluster enthalten, oder versuchen Sie, die anomalen Zellen unter Verwendung der später in Schritt 4.9 beschriebenen differentiellen Adhäsionstechnik zu eliminieren.
- Wenn sich PGCLCs zu Clustern ausdehnen, die mehr als 20 % der Kulturfläche abdecken (~Tag 28), dissoziieren Sie die Zellen mit der Zellablösungslösung (CDS). Entfernen Sie S-CM aus den Vertiefungen der PGCLC-Kultur und fügen Sie vorgewärmtes CDS in einer Menge von 1 ml/Vertiefung ohne Waschzellen hinzu. Die Zellen werden 5 Minuten lang bei 37 °C in einem CO2 -Inkubator inkubiert, bis sich die PGCLCs aus den Vertiefungen lösen.
HINWEIS: Accutase wird als CDS für eine leichte Dissoziation empfohlen. CDS nicht länger als 5 Minuten bei 37 °C vorwärmen. Die PGCLC-Ablösung kann durch schonendes Pipettieren erleichtert werden, aber PGCLCs müssen nicht vollständig zu einer Einzelzellsuspension dissoziiert werden. Kleine Aggregate von PGCLCs können die Lebensfähigkeit erhöhen. Wenn unerwünschte Zelltypen auftauchen und schnell wachsen, passen Sie die Inkubationszeit in CDS während der Zellablösung für die selektive Sammlung von PGCLCs an, die dazu neigen, sich früher abzulösen als Feeder-Zellen und die meisten Arten unerwünschter Zellen. Wenn das anhaltende Auftreten unerwünschter Zelltypen die Expansion von PGCLCs stört, versuchen Sie, die unerwünschten Zellen zu entfernen, indem Sie ihre schnellere Adhäsion an gelatinebeschichteten Vertiefungen nutzen, wie in Schritt 4.9 beschrieben. Da die Anreicherung von PGCLCs durch FACS dazu neigt, einen erheblichen Teil der lebenden PGCLCs zu verlieren, sollte die Flächengröße der Feeder-Schicht entsprechend reduziert werden. - Um die Zellablösung durch CDS zu stoppen, verdünnen Sie die Zellsuspension mit 10x Volumen warmem PGCLC Basalmedium und zentrifugieren Sie bei 300 x g für 5 min bei 4 °C. Beachten Sie, dass die enzymatische Aktivität einiger CDS, wie z. B. Accutase, nicht durch Serum- oder Trypsininhibitoren unterdrückt wird. Den Überstand verwerfen und die Zellen in 3 ml warmem S-CM resuspendieren, frisch ergänzt mit 0,1 mM 2-Mercaptoethanol, 50 μg/ml Ascorbinsäure, 100 ng/ml humanem rekombinantem SCF und 10 μM Y-27632.
- Die Zellsuspension wird in Vertiefungen mit 6-Well-Platten geimpft, die mit 0,1 % Gelatine beschichtet sind, und 30 Minuten lang bei 37 °C in einem CO2 -Inkubator inkubiert, um MMC-STO-Zellen (und unerwünschte Zelltypen) zu entfernen, die schnell an den gelatinebeschichteten Vertiefungen haften.
HINWEIS: Es wird empfohlen, die Zellen nach 20 Minuten Inkubation sowie nach 30 Minuten der Inkubation durch Phasenkontrastmikroskopie zu untersuchen, um die Adhäsion der Feederzellen zu beurteilen. Es kann erforderlich sein, die Inkubationszeit auf bis zu 45 Minuten zu verlängern. Die Verwendung von FACS oder MACS zur Eliminierung von Feeder-Zellen ist im Allgemeinen nicht erforderlich, da MMC-behandelte STO-Zellen im S-CM nicht vermehren und sich verschlechtern können. - Übertragen Sie PGCLCs, die von anomalen Zelltypen abgereichert wurden, in mit Basalmembranmatrix beschichtete Vertiefungen, um eine feederfreie Langzeitkultur von humanen PGCLCs zu starten. Für eine einzelne Vertiefung in einer 6-Well-Platte wird die Inokulation von 1 x 10⁵ lebensfähigen PGCLCs empfohlen.
HINWEIS: In der Regel ist es notwendig, hPGCLCs aus bis zu 6 Vertiefungen zu poolen, um 1 x 10⁵ lebensfähige (Trypanblau-Färbung negativ) PGCLCs zu sammeln und in einer einzigen Vertiefung zu säen, um die Zelldichte des Inokulums zu erhöhen. Wenn die Anzahl der geernteten PGCLCs 1 x 10⁵ nicht erreicht, verwenden Sie eine kleinere Well-Größe, z. B. eine 12-Well- oder 24-Well-Platte, um eine relativ hohe PGCLC-Dichte zu erhalten. Zum Zeitpunkt der ersten Subkultur sind die meisten MMC-STO-Feeder-Layer-Zellen verschlechtert und überleben den Passage-Vorgang nicht. Eine kleine Anzahl lebensfähiger MMC-STO-Zellen wird durch die Differentialadhäsionstechnik effektiv entfernt. Selbst wenn einige wenige MMC-STO-Zellen in BME-beschichteten Wells kontaminiert sind, verschwinden sie bei mehrfacher Passage aus der Kultur. - Humane PGCLCs wachsen als hochdisperse Zellpopulation ohne signifikante Anzeichen eines direkten physischen Kontakts zwischen einzelnen Zellen (Abbildung 1). Wenn Zellcluster entstehen, die enge interzelluläre Wechselwirkungen aufweisen (Abbildung 2A), durchlaufen Sie die Kultur mit der in Schritt 4.7 beschriebenen Technik. Einmal pro Woche ist eine Passage (1:4) in der Regel ausreichend.
HINWEIS: Eine FACS-Anreicherung von humanen PGCLCs ist in der Regel nicht erforderlich. Wenn jedoch unerwünschte anomale Zellen nach wiederholter differentieller Adhäsionstechnik, die in Schritt 4.11 beschrieben ist, nicht effektiv entfernt werden können, erleichtern einige Zyklen der FACS-Anreicherung von humanen PGCLCs als CD38-positive Zellen42,43 die Etablierung einer reinen Population von LTC-hPGCLCs. Beispiele für PGCLC-abgeleitete anomale Zellen, die auf BME-beschichteten Schalen in Abwesenheit einer Feederschicht wachsen, sind in Abbildung 3 dargestellt. Es ist wichtig, eine relativ hohe Dichte an PGCLC-Zellkulturen aufrechtzuerhalten, um das Risiko der Induktion unerwünschter Zelltypen zu verringern.- Bereiten Sie BME-beschichtete Gerichte wie zuvor beschriebenzu 42,43. Tauen Sie den BME über Nacht im Kühlschrank oder in einem Kühlraum auf Eis auf. Tauen Sie gefrorenes BME nicht bei Raumtemperatur auf und verwenden Sie kein warmes Wasserbad.
- Aliquot BME (~200 μL; das Volumen eines Aliquots wird vom Hersteller für jede Charge bestimmt und auf dem Etikett des Fläschchens angegeben) in sterile und vorgekühlte Low-Bind-Zentrifugenröhrchen oder Kryokonservierungsröhrchen für Zellen auf Eis abgefüllt. Es ist wichtig, den BME während der Dosierung eiskalt zu halten, um eine Verfestigung zu vermeiden. Die Aliquots bei -80 °C lagern.
- Verdünnen Sie ein Aliquot BME mit 25 mL eiskaltem DMEM/F12 und verteilen Sie es auf drei 10-cm-Schalen (~8 mL/Schale) oder vier 6-Well-Platten (insgesamt 24 Wells, 1 mL pro Well). Die Schalen mindestens 1 h bei Raumtemperatur inkubieren. Nach dem Überziehen kann das Geschirr mit transparenter Folie versiegelt und bis zu 1 Woche bei Raumtemperatur gelagert werden.
- Unmittelbar vor Gebrauch Medium aus dem Geschirr ansaugen. Es ist nicht notwendig, das beschichtete Geschirr zu spülen.
- Halten Sie eine relativ hohe Dichte an LTC-PGCLC-Kultur auf dem BME aufrecht, um das Auftreten unerwünschter Zelltypen zu unterdrücken. Passage PGCLCs wird empfohlen, wenn die Zellen eine Konfluenz von mehr als 25 % erreichen. Die Hälfte des Mediums (1,5 ml/Well) sollte durch warmes S-CM ersetzt werden, das frisch mit 0,1 mM 2-Mercaptoethanol, 50 μg/mL Ascorbinsäure und 100 ng/ml humanem rekombinantem SCF ergänzt wird.
HINWEIS: Die Inokulation von PGCLCs mit einer geringeren Dichte erhöht das Risiko, unerwünschte Zellen zu produzieren. Da die Verdopplungszeit der Population von humanen PGCLCs etwa 4,5 Tage beträgt41, ist eine routinemäßige wöchentliche Passage in der Regel ausreichend, um die Langzeitkultur aufrechtzuerhalten. Die Aufnahme des ROCK-Inhibitors (Y-27632) ist erst nach der Passage erforderlich, um die Lebensfähigkeit des PGCLC zu verbessern. - PGCLCs dürfen nicht gestört werden, da sie sich durch einen starken Medienstrom von der Feederschicht lösen können.
HINWEIS: Da humane PGCLCs Telomerase exprimieren, vermehren sie sich ohne offensichtliche Anzeichen von Seneszenz, wie z. B. eine Verkürzung der Telomere oder die Expression der Seneszenz-assoziierten β-Galactosidase41. - Wenn humane PGCLCs eine stabile Proliferation erreichten, ohne signifikante Mengen unerwünschter Zelltypen zu erzeugen, sollten ihre PGC-ähnlichen Eigenschaften durch Expressionsprofilierung von Markergenen untersucht werden.
HINWEIS: Analytische Ansätze, die für die Charakterisierung jeder einzelnen Zelle geeignet sind (z. B. Immunfluoreszenz, FACS oder Einzelzell-RNA-Seq), werden empfohlen, um eine mögliche Kontamination unerwünschter Zelltypen zu bewerten. Wenn die Ergebnisse solcher Analysen die PGC-ähnliche Natur der PGCLCs unterstützen, wird die Etablierung einer LTC-hPGCLC-Kultur bestätigt. - Lagern Sie LTC-PGCLCs, die in einem Zellgefriermedium eingefroren sind (1 x 10,6 Zellen/ml pro kryogenes Fläschchen). Ausgehend von insgesamt 10.000 humanen PGCLCs als Ausgangsmaterial ist die Gesamtausbeute von 1 x 10⁶ PGCLCs in 6 Wochen erzielbar. Legen Sie eine Papier- oder Kunststoffschachtel mit den Kryophienfläschchen in eine dicht verschließbare Styroporbox. Stellen Sie die versiegelte Box über Nacht in einen -80 °C Gefrierschrank, um sie langsam einzufrieren. Stellen Sie die Fläschchen dann in einen -80 °C-Gefrierschrank oder einen Flüssigstickstofftank.
- Um die Kultur aus einem Fläschchen mit gefrorenen Zellen zu starten, befolgen Sie die unten beschriebenen Schritte.
- Tauen Sie die Zellen schnell in einem 37 °C warmen Wasserbad mit manuellem Schütteln auf, während der Boden des Fläschchens im Wasser bleibt. Wenn >80 % des Inhalts in der Durchstechflasche aufgetaut sind, trocknen Sie die Durchstechflasche mit fusselfreien Taschentüchern oder gleichwertigem Laborpapier und wischen Sie die Kappe mit einem Alkoholtupfer ab.
- Die Zellen werden in ein 15-ml-Zentrifugenröhrchen gegeben, das vorgewärmtes (37 °C) PGCLC-Basalmedium enthält. Wenn kleine gefrorene Zellen in der Durchstechflasche verbleiben, gewinnen Sie sie mit dem PGCLC-Basalmedium durch Pipettieren.
- Die Zellen werden sofort bei 300 x g für 5 min bei Raumtemperatur zentrifugiert und der Überstand entfernt.
- Resuspendieren Sie das Zellpellet mit 9 mL vorgewärmtem S-CM, das frisch mit 0,1 mM 2-Mercaptoethanol, 50 μg/mL Ascorbinsäure, 100 ng/mL humanem rekombinantem SCF und 10 μM Y-27632 ergänzt wurde. Suspendieren Sie die Zellen vorsichtig mit 1.000-ml-Pipettenspitzen.
- Impfen Sie 3 ml/Vertiefung in 3 Vertiefungen der BME-beschichteten Platte, um die Kultur zu starten. Schütteln Sie die Platten vorsichtig vertikal und horizontal, um eine gleichmäßige Verteilung der Zellen zu gewährleisten. Vermeiden Sie kreisförmige Bewegungen des Schüttelns, da eine solche Bewegung die Zellen in die Mitte der Vertiefungen bewegt. Die Lebensfähigkeit der Zellen unmittelbar nach der Rückgewinnung aus einem gefrorenen Bestand liegt in der Regel bei mehr als 80 %.
Ergebnisse
Repräsentative Ergebnisse - PGCLCs bilden in der Regel innerhalb von 2 Wochen nach der Inokulation sichtbare Cluster auf der MMC-STO-Feederschicht (Abbildung 1A-D). Es dauert ca. 3-4 Wochen, bis PGCLCs für die feederfreie Kultur bereit sind. Da PGCLCs eine starke zytokinetische Aktivität aufweisen, ist ihre interzelluläre Interaktion schwach, wenn sie Cluster auf der Feeder-Schicht bilden (Abbildung 1E,F). PGCLCs, die sich aus den Clustern bewegen, werden häufig beobachtet (Abbildung 1F, rote Pfeilspitzen). Ohne eine Feeder-Schicht wachsen LTC-PGCLCs als verstreute Zellen mit geringen Anzeichen interzellulärer Adhäsion, selbst wenn die Zelldichte hoch ist (Abbildung 3). Jedes LTC-PGCLC behält die ursprüngliche Morphologie des frisch isolierten humanen PGCLC bei und zeigt Anzeichen einer aktiven Zytokinese. Wenn Zellen auftauchen, die von den PGC-ähnlichen morphologischen Merkmalen abweichen (Abbildung 2), verbessert die Anreicherung von PGCLCs durch wiederholte differentielle Adhäsionstechnik oft die Kulturqualität. Wenn anomale Zellen persistieren, kann eine gelegentliche FACS-Anreicherung von PGCLCs als CD38-positive Zellen hilfreich sein.
In einer früheren Veröffentlichung wurden humane PGCLCs als PRDM1-positive, TFAP2C-positive, aber SOX2-negative Zellen identifiziert41. Sie exprimieren ebenfalls POU5F1, aber ihre Vorläufer-iPSCs exprimieren ebenfalls diesen Pluripotenzmarker41. Es wird dringend empfohlen, die Ausbeute und die Markerexpressionsprofile der expandierenden humanen PGCLCs auf Einzelzellebene so bald wie möglich mit genetisch induzierbaren Markern, Immunfluoreszenz, FACs oder Einzelzell-RNA-Seq zu bestätigen. Ohne solche bestätigenden Analysen kann die Ausbeute und Qualität von humanen PGCLCs in Gegenwart oder Abwesenheit der Feederzellen jedoch bequem mit der Standard-Phasenkontrastmikroskopie abgeschätzt werden, wie in Abbildung 1, Abbildung 2 und Abbildung 3 gezeigt.
Während der Langzeitkultur erhalten LTC-PGCLCs eine homogene Zellpopulation mit einer aktiv proliferierenden Subpopulation, wie frühere Einzelzell-RNA-seq-Daten zeigten41. Das transkriptomische Profil der ursprünglichen PGCLCs bleibt weitgehend erhalten, mit der Ausnahme, dass die Expression der PGCLC-Marker GATA2 und GATA3 im Frühstadium schnell verloren geht41. Der globale DNA-Methylierungsgrad in humanen iPSCs beträgt etwa 73 % und sinkt auf etwa 64 % in den frisch produzierten PGCLCs41. Das globale DNA-Methylierungsniveau sinkt bei LTC-PGCLCs nach 12-wöchiger In-vitro-Expansion weiter auf etwa 54 %41. Die meisten transkriptomischen und epigenetischen Eigenschaften menschlicher LTC-PGCLCs werden bei der Umwandlung in die pluripotenten embryonalen Keimzellen vollständig umgekehrt zu denen in den ursprünglichen iPSCs, mit der Ausnahme, dass die allelspezifischen epigenetischen Markierungen an mehreren Prägungskontrollregionen in PGCLCs gelöscht werden und nie wieder zurückkehren41.
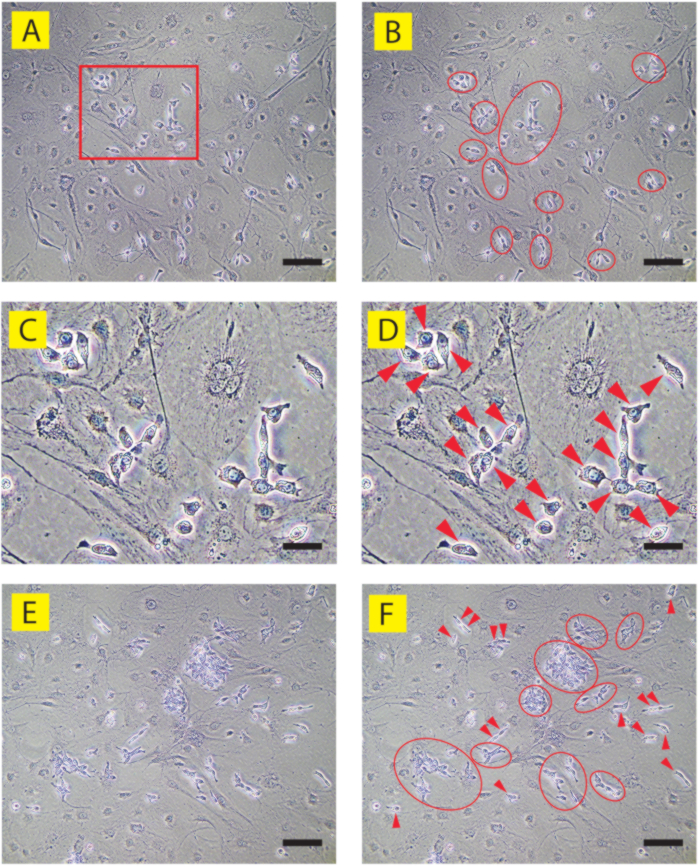
Abbildung 1: Phasenkontrastbilder von korrekten humanen PGCLCs auf der STO-Feeder-Schicht (humaner iPSC-Klon 9A13). (A, C, E) sind jeweils in (B, D, F) annotiert. (A-D) Tag 6: Kultur. Ein Teil von (A), der in einem roten Rechteck dargestellt ist, wird in (C, D) vergrößert. Die meisten PGCLCs werden als dispergierte Zellen beobachtet, die oft lose Cluster (rote Ovale) bilden. Einzelne PGCLCs (rote Pfeilspitzen) stehen nicht in engem Kontakt miteinander und sind in der Phasenkontrastmikroskopie leicht als Zellen zu identifizieren, die aus den sich verschlechternden, flachen und weit verbreiteten STO-Feederzellen herausragen. (E, F) Tag 15: Kultur. Mehrere Cluster von PGCLCs sind leicht zu identifizieren (rote Ovale), während der interzelluläre Kontakt noch lose ist. Einige PGCLCs befinden sich außerhalb der Haufen, oft als Dutolen (rote Pfeilspitzen), was ihre aktive Proliferation widerspiegelt, während sie zufällig auf und zwischen der stark verschlechterten Feeder-Schicht wandern. Maßstabsleisten = 50 μm (A, B, E, F) oder 15 μm (C, D). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
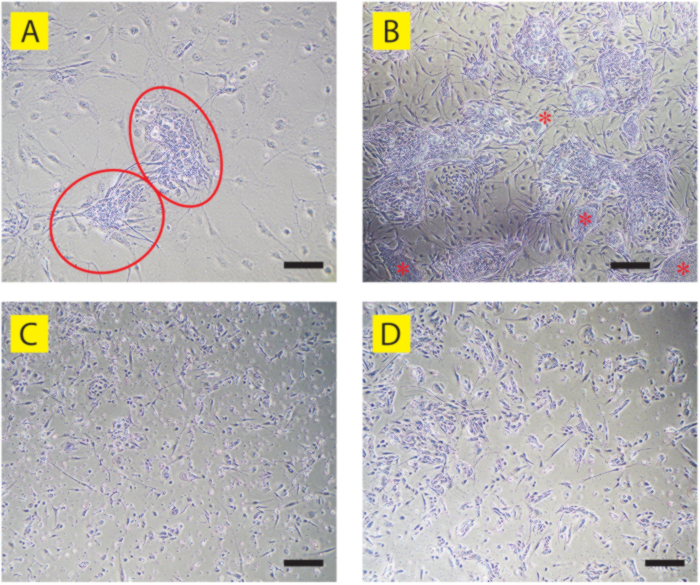
Abbildung 2: Phasenkontrastbilder von humanen PGCLCs, die von den PGC-ähnlichen Eigenschaften abweichen. (A) Zwei anomale Cluster von PGCLCs (rote Ovale) erschienen in der Tag-9-Kultur von 9A13 PGCLCs auf der STO-Feeder-Schicht. Anders als die korrekten PGCLC-Cluster (siehe Abbildung 1A-D) zeigen Zellen einen starken interzellulären Kontakt, der die Grenzen jeder einzelnen Zelle verschleiert. (B) Kultur an Tag 18 der menschlichen PGCLC-Kultur, gezeigt in (A). Es werden mehrere anomale PGCLC-Cluster beobachtet, von denen einige dichte Kolonien aufweisen, die den Vorläufer-iPSCs ähneln (rote Sternchen). Beachten Sie, dass die meisten der Fibroblasten-ähnlichen länglichen Zellen, die zwischen den Clustern gefunden werden, auch von PGCLC abgeleitete anomale Zellen sind, während die meisten STO-Feeder-Zellen verschlechtert und verdrängt sind. (C) LTC-hPGCLCs (humaner iPSC-Klon B6) mit massivem Zelltod und anomalen Morphologien auf BME-beschichteten, Feeder-freien Schalen. (D) LTC-hPGCLCs, die weitgehend von Zellen mit anomalen Morphologien auf BME-beschichteten, feederfreien Schalen abweichen (humaner iPSC-Klon T548). Vergleichen Sie diese anomalen LTC-hPGCLCs mit den korrekten LTC-hPGCLCs, die in Abbildung 3B dargestellt sind. Maßstabsleisten = 50 μm (A, B) oder 100 μm (C, D). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
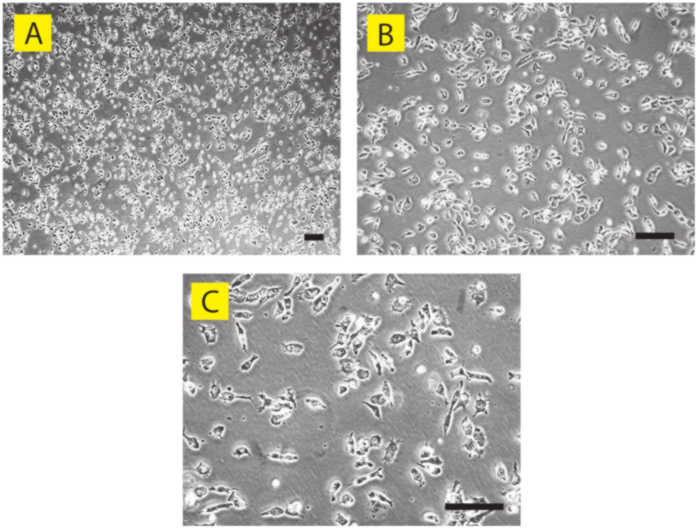
Abbildung 3: Phasenkontrastbilder von korrekten humanen PGCLCs als feederfreie Kultur (humaner iPSC-Klon A4). Die Feeder-freie Kultur von LTC-PGCLCs an Tag 56 auf BME-beschichteten Schalen ist in (A) niedriger, (B) mittlerer und (C) hoher Vergrößerung dargestellt. Obwohl die Zelldichte relativ hoch ist, bildet jedes einzelne PGCLC keine engen interzellulären Kontakte, außer bei Zellen, die kürzlich die Zellteilung abgeschlossen haben. Aufgrund der aktiven Zytokinese zeigen einige PGCLCs eine längliche Morphologie, während andere rund sind. Maßstabsleisten = 50 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
| PGCLC Basalmedium | |
| Zutaten | Volumen |
| Glasgows MEM | 500 mL |
| Knockout-Serum-Ersatz (KSR) | 75 mL |
| MEM NEAA (100-fach) | 6 mL |
| Natriumpyruvat (100X) | 6 mL |
| Penicillin-Streptomycin (100-fach) | 6 mL |
Tabelle 1: PGCLC-Basalmedium. Zusammensetzung des PGCLC-Basalmediums (593 mL).
| STO mittel 1 | |
| Zutaten | Volumene |
| Das MEM von Dulbecco | 445 mL |
| Fötales Kälberserum | 50 mL |
| Penicillin-Streptomycin (100-fach) | 5 mL |
Tabelle 2: STO mittel 1. Zusammensetzung des STO-Mediums 1 (500 mL).
| STO mittel 2 | |
| Zutaten | Volumen |
| Das MEM von Dulbecco | 47 mL |
| Fötales Kälberserum | 2,5 mL |
| Penicillin-Streptomycin (100-fach) | 0,5 mL |
| FGF2 (200 μg/ml) | 2,5 μL |
Tabelle 3: STO mittel 2. Zusammensetzung des STO-Mediums 2, das mit FGF2 für ein verstärktes Wachstum der STO-Zellen (50 mL) ergänzt wird.
| MMC-STO Speichermedium | |
| Zutaten | Volumen |
| Das MEM von Dulbecco | 42,5 mL |
| Fötales Kälberserum | 5 mL |
| Dimethylsulfoxid | 2,5 mL |
Tabelle 4: MMC-STO-Speichermedium. Zusammensetzung des MMC-STO-Speichermediums, das zur Vorbereitung von gefrorenen Beständen von MMC-behandelten STO-Feederzellen (50 mL) verwendet wird.
Diskussion
Die in diesem Artikel beschriebene Methode der menschlichen PGCLC-Wartung ist relativ einfach, ohne dass spezielle Geräte oder nicht standardmäßige Materialien erforderlich sind. Bisher veröffentlichte Methoden zur Aufrechterhaltung von PGCLC beim Menschen erfordern eine häufige FACS-Sortierung, da die Zellen signifikant vom PGCLC-ähnlichen Statusabweichen 38. Diese Methoden erfordern auch eine nicht standardmäßige Feeder-Layer-Zelllinie (m220-5), die nicht ohne weiteres über öffentlich und international zugängliche Repositorien verfügbar ist39,40. Die Aufnahme von FCS in ihre Medien führt zu Unsicherheiten aufgrund der Abhängigkeit von der Leistung einer bestimmten Charge des Serums. Im Gegensatz dazu erhält die derzeit vorgestellte Methode ohne weiteres viele Millionen humane PGCLCs, die unter Beibehaltung einer hohen Lebensfähigkeit (> 90%) gefroren gelagert werden können, ohne dass Serum oder andere tierische Reagenzien erforderlich sind. Das Protokoll erfordert die standardmäßige STO-Feeder-Layer-Zelllinie, die in vielen öffentlichen Repositories verfügbar ist. Die Methode bietet ein noch nie dagewesenes Maß an Bequemlichkeit, um humane PGCLCs so zu handhaben, als ob es sich um herkömmliche Zelllinien handeln würde. Die unbegrenzte Versorgung mit humanen PGCLCs, die mit dieser Methode erreicht wird, wird den Anwendungsbereich von humanen PGCLCs in Bereichen wie der experimentellen Produktion menschlicher Keimzellen und/oder Gameten, der Bewertung menschlicher Keimzellerkrankungen wie Unfruchtbarkeit (einschließlich der Versuche der In-vitro-Gametogenese) oder Keimzelltumoren sowie der toxikologischen Bewertung potenzieller Keimzellgiftstoffe erweitern.
Die Methode schließt FCS im S-CM aus, um das Auftreten unerwünschter Zelltypen aus humanen PGCLCszu minimieren 41. Mehrere iPS-Klone neigten dazu, während der Feeder-abhängigen Phase oder danach unerwünschte Zelltypen zu produzieren, und einige von ihnen mussten zwei oder drei Runden der FACS-Aufreinigung von PGCLCs durchlaufen. Sobald jedoch die LTC-PGCLC-Kultur mit einer Konfluenz von mehr als 50 % etabliert ist, ist die Notwendigkeit einer FACS-Aufreinigung in der Regel geringer. Das Wachstum von humanen PGCLCs in vitro hängt streng vom Vorhandensein von SCF41 ab. Wenn die Wachstumsrate von LTC-PGCLCs abnimmt, wird empfohlen, verschiedene Chargen oder SCF-Reagenzien der Hersteller zu testen. Da humane PGCLCs Telomerase exprimieren, kommt es während der Langzeitexpansion in vitro nicht zu einer Seneszenz 41. Es wurde erfolgreich eingesetzt, um LTC-PGCLCs zu etablieren, die von männlichen und weiblichen humanen iPSCs mit unterschiedlichem ethnischem Hintergrund abgeleitet wurden41. Beispiele für eine erfolgreiche Anwendung der derzeit vorgestellten Methode sind die männlichen humanen iPS-Klone A4 und A5 (kaukasisches Neugeborenes), PGP1 (kaukasisches adultes Kind) und 9A13 (japanisches adultes Kind) sowie die weiblichen iPSC-Klone ATCC-BXS0116 (kaukasisch) und ATCC-BXS0115/ACS-1029 (hispanisch). Die allgemeine Anwendbarkeit dieser Methode und der Vorhersagemarker muss in zukünftigen Studien etabliert werden.
Die Notwendigkeit einer gelegentlichen FACS-Aufreinigung von humanen PGCLCs hängt vom Vorläufer-iPSC-Klon ab. Während einige iPS-Klone nach der anfänglichen Isolierung von PGCLCs als CD38-positive Zellen nie eine FACS-Anreicherung benötigten, mussten einige PGCLCs während der feeder-abhängigen Phase bis zu dreimal als CD38-positive Zellen durch FACS angereichert werden. FACS-angereicherte PGCLCs wurden in frisch präparierte MMC-STO-Feeder geimpft. Eine FACS-Anreicherung ist in der Regel nicht bei jedem Durchgang erforderlich, sobald PGCLCs eine stabile Amplifikation auf dem BME ohne den Feeder starten.
Detaillierte Daten über den Anteil der Zellen, die die PGC-ähnlichen Eigenschaften beibehalten, im Vergleich zu den Zellen, die bei jedem Durchgang zu unerwünschten Zelltypen für den einzelnen iPSC-Klon abweichen, liegen derzeit nicht vor. Im Allgemeinen ist die LTC-hPGCLC-Kultur nach 2-4 Wochen Kultur durch wiederholtes Passaging stabilisiert. Wenn humane PGCLCs dazu neigen, unerwünschte Zelltypen zu erzeugen, kann die Methode der differentiellen Adhäsion PGCLCs effektiv anreichern, da die meisten unerwünschten Zellen dazu neigen, stärker an der Kulturschale zu haften als PGCLCs. Wenn wiederholte Versuche der differentiellen Adhäsion die PGCLC-Anreicherung nicht unterstützen, eliminiert die FACS-Anreicherung von humanen PGCLCs als CD38-positive Zellen oft die unerwünschten Zellen, und danach kann das reine LTC-hPGCLC nur mit der differentiellen Adhäsionsmethode aufrechterhalten werden. Die Etablierung einer Langzeitkultur von humanen PGCLCs, die mit der von Overeem et al. beschriebenen 2-D-Methode erzeugt wurden, war manchmal eine Herausforderung. Dieselben humanen PGCLCs, die durch CRISPR-Knockout pro-apoptotischer Gene Apoptoseresistenz erlangten, konnten jedoch ohne weiteres auf LTC-hPGCLCs erweitert werden. Details zur Kompatibilität dieser Methode mit jedem einzelnen humanen iPSC und PGCLC müssen in zukünftigen Studien untersucht werden.
Während die MMC-behandelten STO-Feeder-Layer-Zellen zunächst das Überleben und die Proliferation frisch isolierter humaner PGCLCs unterstützen, expandieren schnell proliferierende PGCLCs in vitro ohne Feeder-Schicht, solange sie durch das STO-konditionierte Medium und die BME-Beschichtung der Schalen unterstützt werden. Der einzigartige Vorteil der derzeit vorgestellten Methode gegenüber anderen Ansätzen ist die Möglichkeit, LTC-hPGCLCs als Feeder-freie Kultur zu etablieren. Die Zellen der MMC-STO-Feederschicht zeigen nach 5-6 Tagen Kultur erste Anzeichen einer Verschlechterung des S-CM-Mediums. An Tag 6-7 (Abbildung 1A-D) zeigt die Feeder-Schicht leichte Schäden, die an Tag 14-15 deutlicher werden (Abbildung 1E,F). In Abwesenheit der Feeder-Zellen ist die Überlebensrate von frisch isolierten humanen PGCLCs in der Regel niedrig, was offenbar auf ihre geringe Effizienz beim Anhaften am Boden von Zellkulturschalen zurückzuführen ist. Es wird spekuliert, dass die extrazellulären Matrixproteine, die von den MMC-STO-Zellen abgelagert werden, die Adhäsion und das Überleben von PGCLCs auch nach dem Abbau der MMC-STO-Zellen erleichtern. Sobald die Anzahl der menschlichen PGCLCs groß genug ist, um am 14. und 15. Tag sichtbare Cluster zu bilden, könnte die extrazelluläre Matrix, die von den PGCLCs selbst abgelagert wird, ausreichen, um ihr weiteres Überleben und ihre Proliferation zu unterstützen. Diese Annahme wird durch die Inokulation von frisch isolierten humanen PGCLCs mit einer hohen Dichte (z. B. 100.000 Zellen in einer Vertiefung einer 12-Well-Platte) in feederfreie, BME-beschichtete Vertiefungen unterstützt, die häufig eine erfolgreiche Expansion der LTC-hPGCLC-Kultur einleitet. Auf der anderen Seite ist die Verwendung des MMC-STO-konditionierten Mediums in der gesamten menschlichen PGCLC-Kultur unbedingt erforderlich, was die Bedeutung einer kontinuierlichen Konditionierung durch die MMC-STO-Zellen unterstreicht.
Es ist wichtig, eine relativ hohe Dichte an LTC-PGCLC-Kultur auf BME aufrechtzuerhalten, um das Auftreten unerwünschter Zelltypen zu unterdrücken. Es wird empfohlen, PGCLCs mit einer Konfluenz von mehr als 25 % zu passieren. Die Inokulation von PGCLCs mit geringerer Dichte erhöht das Risiko, unerwünschte Zellen zu produzieren. Da die Verdopplungszeit der Population von humanen PGCLCs etwa 4,5 Tage beträgt41, ist eine routinemäßige wöchentliche Passage in der Regel ausreichend, um die Langzeitkultur aufrechtzuerhalten. Wenn ein großer Teil der PGCLCs von ihren PGC-ähnlichen Eigenschaften abweicht und wenn die differentielle Adhäsionstechnik oder FACS nicht ausreicht, um die unerwünschten Zellen zu entfernen, sollten Sie in Betracht ziehen, die MMC-STO-Feeder-Schicht in BME-beschichtete Vertiefungen anstelle einer Gelatinebeschichtung zu inokulieren und/oder die Kultur von MMC-STO-Zellen auf 3 oder 4 Tage vor der Inokulation von PGCLCs zu verlängern.
Die morphologischen und Markerexpressionsmerkmale der unerwünschten Zelltypen variieren erheblich, obwohl sie mit der Standard-Phasenkontrastmikroskopie leicht identifiziert werden können (Abbildung 2). Zellen, die aggregierte Wachstumsmerkmale oder ein abgeflachtes Aussehen aufweisen, weichen von PGC-ähnlichen Eigenschaften ab. Die Expression der Standard-PGC-Marker wie PRDM1 oder TFAP2C ist in solchen unerwünschten Zellen typischerweise vermindert, obwohl derzeit keine klaren Kriterien zur Unterscheidung der unerwünschten Zellpopulation von der überzeugend PGC-ähnlichen Zellpopulation verfügbar sind, was durch Immunfluoreszenzfärbung, FACS oder Einzelzell-RNA-Seq bestätigt werden kann. Bis heute sind die Identitäten oder die Relevanz der Nicht-PGC-Zelltypen, die während der Expansion von LTC-hPGCLCs entstehen, unbekannt.
Obwohl das in diesem Artikel vorgestellte Verfahren die STO-Feeder-Layer-Zellen verwendet, können die SNL 76/7-Zellen auch für die Herstellung des konditionierten Mediums und der Feeder-Schicht verwendet werden. Einige PGCLC-Kulturen waren in der Lage, sich an die Langzeitkultur anzupassen, ohne die Feeder-abhängige Kultur zu durchlaufen, insbesondere wenn die Kultur mit einer großen Inokulumgröße (>100.000 Zellen) begonnen wurde. Auf der anderen Seite kann die Etablierung einer LTC-PGCLC-Kultur eine Herausforderung darstellen, wenn die Anfangsgröße kleiner als 10.000 Zellen ist. Obwohl die Schlüsselkomponenten des STO-konditionierten Mediums bereits zuvor beschrieben wurden, wurden Komponenten, die eine langfristige PGCLC-Expansion unterstützen, noch nicht identifiziert44.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Diese Arbeit wurde durch NIH-Zuschüsse R01ES035401, R21ES034468, R21HD110839, R21DA059789 und R21CA290650 an TS unterstützt. TS ist außerdem Empfänger eines Stipendiums der John Templeton Foundation 63299 (PI, John McCarrey, University of Texas, San Antonio). Ein Teil der vorgestellten Studie wurde auch vom James Patrick Stowe Fund (PI, Philip Saylor, Massachusetts General Hospital) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 6-Well-Zellkulturplatten | Corning | 3506 | |
| Accutase | Innovative Zelltechnologien | Nr. AT104 | Bei -20 Grad lagern; C für 6 Monate. |
| Zellkulturbehandelte 10 cm Kunststoffschalen (P10 Schale) | Corning | 353003 | |
| Zellkulturbehandelte 15 cm Kunststoffschalen (P15 Schale) | Corning | 353025 | |
| Kryo-Fläschchen | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | STEMCELL-Technologien | 7930 | Bei 4 °C lagern. |
| Dimethylsulfoxid | Fisher Scientific | Nr. BP231-1 | Bei Raumtemperatur lagern. Qualität der Zellkultur. |
| Dulbecco; s Phosphatgepufferte Kochsalzlösung (Ca/Mg-frei) (DPBS) | Gibco | 14190144 | Bei Raumtemperatur lagern. Qualität der Zellkultur. |
| Dulbeccos Minimum Essential Medium (Dulbeccos MEM) | Corning | 10-013-CM | Bei 4 °C lagern. nVerwenden Sie ein Medium, das 4,5 g/l Glukose, 1x l Glutamin und 1x Natriumpyruvat enthält. |
| Fötales Kälberserum | CPS-Serum | FBS-500 | Bei -20 Grad lagern; C für 12 Monate. |
| Gelatine | STEMCELL-Technologien | 7903 | 0,1 % Wasser. Keimfrei. |
| Glasgow's Miminum Essential Medium (Glasgow's MEM) | Gibco | 11710-035 | Bei 4 °C lagern. |
| Humaner rekombinanter Fibroblasten-Wachstumsfaktor 2 (FGF2) | PeproTech | 100-18 Mrd. | Bei -80 Grad lagern; C für 3 Monate. |
| Humaner rekombinanter Stammzellfaktor (SCF) | PeproTech | 300-07 | In Wasser gemäß den Anweisungen des Herstellers rekonstituieren. Bei -80 Grad lagern; C für 3 Monate. |
| Knockout Serum Ersatzq | Gibco | 10828-028 | Bei -20 Grad lagern; C für 6 Monate. |
| Matrigel (für humane embryonale Stammzellen qualifiziert) | Corning | 354277 | |
| Minimum Essentielles Medium Nicht-essentielle Aminosäuren (MEM NEAA) | Gibco | 11140-050 | Bei 4 °C lagern. |
| Mitomycin-C (10 mM in Wasser) | Millipore-Sigma | Nr. M5353 | Mitomycin-C (MMC) in Wasser auflösen und steril filtrieren (0,22 mM Porengröße). Lagern Sie 100 mL Aliquots bei -20 & deg; C für 6 Monate. Um gefrorenes MMC aufzutauen, tauen Sie violette Kristalle im heißen Wasserbad (>60 &Grad; C) in dunkelviolette Lösung. |
| Penicillin-Streptomycin (100-fach) | Gibco | 15140-122 | Bei 4 °C lagern. |
| Zentrifugenröhrchen aus Kunststoff (15 mL) | Corning | 352196 | |
| Zentrifugenröhrchen aus Kunststoff (50 mL) | Corning | 352070 | |
| Natriumpyruvat (100X) | Gibco | 11360-070 | Bei 4 °C lagern. |
| STO-embryonale Fibroblasten der Maus | ATCC | CRL-1503 | |
| Trypanblau (0,4 %) | Fisher Scientific | Nr. T10282 | Bei Raumtemperatur lagern. |
| TrypLE Express | Gibco | 12604-013 | Bei Raumtemperatur lagern. |
| Y-27632 (10 mM in Wasser) | Tocris | 1254 | Y-27362, ein ROCK-Inhibitor, wird in Wasser auf 10 mM aufgelöst und filtriert (0,22 mM Porengröße). Lagern Sie 100 mL Aliquots bei -20 & deg; C für 6 Monate. |
Referenzen
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar