Diese Studie optimiert ein auf heißem Phenol basierendes Verfahren zur RNA-Extraktion aus Mycobacterium, das hochwertige RNA liefert, die für transkriptomische Analysen geeignet ist. Im Vergleich mit TRIzol und RNeasy unter identischen Bedingungen erbrachte die Methode eine höhere Ausbeute, eine vergleichbare Integrität und eine verbesserte Kosten-Effizienz und bietet somit eine praktische Alternative für groß angelegte Genexpressionsstudien.
Methodenartikel
Optimierte RNA-Extraktion auf Basis von heißem Phenol aus Mykobakterien: Ein robuster Ansatz für eine zuverlässige Genexpressionsanalyse
176 Aufrufe
⸱
11. September 2026
In diesem Artikel
Zusammenfassung
Zusammenfassung
Mycobacterium tuberculosis (Mtb) bleibt eine bedeutende globale Gesundheitsbedrohung, was die Notwendigkeit zuverlässiger transkriptomischer Studien unterstreicht, um seine Biologie und Mechanismen der Arzneimittelresistenz zu verstehen. Solche Analysen hängen davon ab, RNA von hoher Qualität und Ausbeute zu gewinnen. Obwohl mehrere Methoden zur RNA-Extraktion verfügbar sind, erfordern viele teure Reagenzien, große Kulturvolumina oder spezielle Geräte, was ihre Eignung für groß angelegte Studien, insbesondere in ressourcenarmen Umgebungen, einschränkt. Hier wird eine optimierte, auf heißem Phenol basierende Methode zur RNA-Extraktion vorgestellt, die speziell auf Mykobakterien zugeschnitten ist. Die Methode verwendet minimale Kulturvolumina und allgemein verfügbare Reagenzien, um konsistent hochwertige RNA zu liefern, die für hochdurchsatzfähige transkriptomische Anwendungen geeignet ist. Menge und Integrität der RNA wurden mittels Gelelektrophorese und RNA-Integritätsanalyse (RIN) bewertet, und ihre Eignung für nachgeschaltete Anwendungen wurde durch qPCR und Qubit 4 bestätigt. Um die Leistung der optimierten Methode zu bewerten, wurde eine parallele RNA-Extraktion unter identischen experimentellen Bedingungen – einschließlich derselben Mycobacterium-Arten, Kulturvolumina, Wachstumsphasen (logarithmisch und stationär) und Lysierungsbedingungen – mit TRIzol und RNeasy durchgeführt. Dies ermöglichte einen direkten Vergleich hinsichtlich Ausbeute, Qualität, Durchführbarkeit und Kosten. Die optimierte Heiß-Phenol-Methode zeigte eine vergleichbare oder verbesserte RNA-Ausbeute und -qualität, während die Reagenzienkosten und die Abhängigkeit von Spezialgeräten deutlich reduziert wurden. Aufgrund ihrer Effizienz, Reproduzierbarkeit und Kostengünstigkeit bietet diese Anleitung eine praktikable Alternative für groß angelegte Genexpressions- und transkriptomische Studien an Mtb und anderen mykobakteriellen Arten.
Einleitung
M. tuberculosis (Mtb), der Erreger der Tuberkulose (TB), bleibt die häufigste Todesursache durch einen einzelnen infektiösen Erreger und übertrifft damit HIV/AIDS. Im Jahr 2024 waren weltweit etwa 1,3 Millionen Todesfälle auf TB zurückzuführen1. Diese Belastung wird durch die zunehmende Verbreitung multiresistenter (MDR) und extrem resistenter (XDR) Stämme verschärft. Daher besteht dringender Bedarf darin, die molekularen Grundlagen der TB-Pathogenese zu verstehen und neue therapeutische Zielstrukturen zu identifizieren2.
Die transkriptionelle Profilierung von Mtb ist zu einem wichtigen Werkzeug zur Aufklärung funktioneller Elemente geworden, die an Wirt-Pathogen-Interaktionen3, der Anpassung an Umweltstress4 und den Mechanismen der Arzneimittelresistenz5 beteiligt sind. Fortschrittliche Methoden wie Echtzeit-PCR, Mikroarrays und RNA-Sequenzierung (RNA-seq) haben die Fähigkeit zur Analyse des mykobakteriellen Transkriptoms erheblich verbessert6. Der Erfolg dieser Methoden hängt jedoch stark von der Verfügbarkeit hochwertiger RNA ab, was wiederum von einer effizienten Zelllyse während der Extraktion abhängt. Die komplexe Mycolyl–Arabinogalactan–Peptidoglycan-Zellwand von Mtb macht die RNA-Extraktion besonders schwierig7. Bestehende Lysismethoden wie enzymatische Hydrolyse8, Beschallung9 und Kugelmahlung10 erfordern oft kostspielige Geräte und große Kulturvolumina, was ihre Anwendbarkeit in vielen BSL-3-Laboren einschränkt. Zudem erfordert das langsame Wachstum von Mtb verlängerte Kultivierungszeiten, um ausreichende Biomasse zu erhalten11.
Um diese Einschränkungen zu überwinden, wurde eine optimierte, schnelle und kostengünstige RNA-Extraktionsmethode auf Basis von heißem Phenol entwickelt. Aus lediglich 3 mL einer Kultur in der mittleren logarithmischen Wachstumsphase ergibt die Methode 45–60 µg hochwertige RNA, die für nachgeschaltete transkriptomische Analysen geeignet ist. Die Zelllyse wird mithilfe eines kompakten, handgehaltenen Gewebemühlers und leicht verfügbaren Reagenzien erreicht, wodurch der Bedarf an teuren Geräten entfällt. Obwohl die Heiß-Phenol-Methode bereits früher beschrieben wurde11,12, verbessert die optimierte Heiß-Phenol-Methode die Handhabung, Kosteneffizienz und die RNA-Ausbeute. Die Optimierung erfolgte unter Verwendung von M. smegmatis mc2155 (Msmeg) und wurde erfolgreich mit Mtb H37Rv validiert.
Protokoll
Die verwendeten Reagenzien und Geräte sind in der Tabelle der Materialien aufgeführt.
1. Kultivierung von Mycobacterium
- Inokulieren Sie 1 mL aus dem Glycerin-Bestand von Msmeg oder Mtb in 10 mL Middlebrook 7H9-Medium, das mit 0,2 % Glycerin, 0,05 % Tween 80 und 10 % ADC ergänzt wurde, bei 37 °C unter Schütteln mit 150 U/min, bis die OD 1–1,5 erreicht.
- Züchten Sie die Sekundärkultur, indem Sie 1 % der Primärkultur in 10 mL 7H9-Medium geben, bis die mittlere logarithmische Wachstumsphase erreicht ist (OD600nm = 0,6–0,7).
- Teilen Sie die Kultur in 3-mL-Aliquote auf und zentrifugieren Sie sie bei 2000 x g für 5 Minuten bei Raumtemperatur (23–25 °C).
- Lagern Sie die Pellets bei -80 °C bis zur RNA-Extraktion.
ACHTUNG: Bei Mtb-Kulturen sind die entsprechenden BSL3-Richtlinien einzuhalten; inaktivieren Sie die Pellets durch Erhitzen auf 95 °C für 20–25 Minuten.
HINWEIS: Abbildung 1 zeigt das Flussdiagramm der grundlegenden Schritte, die bei der RNA-Extraktion nach der Hot-Phenol-Methode befolgt werden.
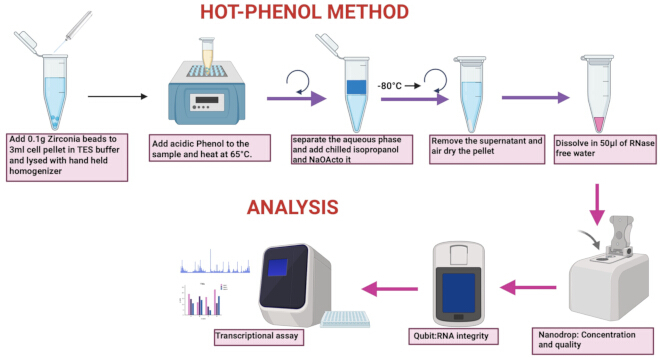
Abbildung 1: Eine schematische Darstellung des Heiß-Phenol-Verfahrens und der Analyse. Klicken Sie bitte hier, um eine vergrößerte Version dieser Abbildung anzusehen.
2. RNA-Extraktion
- Heiß-Phenol-Methode (HP-Methode)
- 200 µL TES-Puffer (100 mM Tris-HCl, pH 8,0; 5 mM EDTA, pH 8,0; 0,1 M NaCl; % SDS; 1 % β-Mercaptoethanol) zum Zellpellet hinzufügen und das Pellet durch Vortexen resuspendieren.
- Etwa 0,1 g 0,1 mm große Silikaperlen zum Probenansatz geben. Mit einem manuellen Gewebemörser 10–15 s lang bearbeiten, bis das Pellet vollständig auf Eis aufgetaut ist. Diesen Schritt noch zweimal wiederholen, wobei nach jeder Wiederholung eine schnelle Einfrierung in flüssigem Stickstoff erfolgt.
- ODER einen Hochgeschwindigkeits-Bead-Ruptor am Tischgerät 1 min lang bei der Geschwindigkeitseinstellung 5 (5,0 m/s) bei Raumtemperatur verwenden. Diesen Schritt dreimal wiederholen und die Probe nach jedem Durchgang auf Eis lagern, um eine Erwärmung zu verhindern.
HINWEIS: Die Lyse von Mtb-Zellen mit entweder einem manuellen Gewebemörser oder einem Bead-Ruptor für 6–8 Zyklen (jeweils 1 min pro Zyklus) wiederholen und zwischen den Zyklen intermittierend auf Eis abkühlen. Für die Herstellung aller zur RNA-Extraktion benötigten Puffer und Reagenzien DEPC-(Diethylpyrocarbonat-)behandeltes Wasser verwenden. - Zusätzlich 200 µL TES-Puffer (vorher auf 65 °C vorgewärmt) zu jeder Probe hinzufügen, um das Gesamtvolumen auf 400 µL aufzufüllen. Zu jeder Probe 200 µL sauren Phenol (Phenol, der mit 100 mM Citratpuffer, pH 4,5, gesättigt wurde) und 200 µL Chloroform hinzufügen (sauren Phenol und Chloroform im Verhältnis 1:1 mischen, bevor sie zur Probe gegeben werden).
- Die Probe 30 min lang bei 65 °C auf einem Wärmepuffer unter Schütteln bei 900 U/min inkubieren und anschließend 15 min bei Raumtemperatur mit 12000 x g zentrifugieren. Nach der Zentrifugation eine klare Phasentrennung sicherstellen (eine klare obere wässrige Phase, die RNA enthält, eine deutliche Interphase mit DNA sowie eine untere organische Phase, die Proteine und Lipide enthält).
- Die obere wässrige Phase abnehmen und in ein neues 1,5-mL-Mikrozentrifugenröhrchen überführen. Erneut ein gleiches Volumen sauren Phenol:Chloroform hinzufügen. 15 min bei Raumtemperatur mit 12000 x g zentrifugieren. Eine klare Phasentrennung sicherstellen.
- Die obere wässrige Phase in ein frisches 1,5-mL-Mikrozentrifugenröhrchen überführen, dann 30 µL 3 M Natriumacetatpuffer, pH 5,3, und 240 µL gekühltes Isopropanol hinzufügen. 30 min bis 1 h bei −80 °C inkubieren.
HINWEIS: Das Mikrozentrifugenröhrchen kann an dieser Stelle über Nacht bei −80 °C gelagert werden. Das Mikrozentrifugenröhrchen mit mehreren Schichten Parafilm abdichten, um ein Öffnen bei 65 °C während der Inkubation zu verhindern.
VORSICHT: Phenol und Chloroform sind gefährliche Chemikalien; daher sind geeignete persönliche Schutzausrüstungen (PSA), technische Schutzmaßnahmen wie Abzüge und spezifische Entsorgungsverfahren einzuhalten. - 60 min bei Raumtemperatur mit 12000 x g zentrifugieren. Die Bildung eines Pellets sicherstellen und das Überstandvolumen vorsichtig entfernen, ohne das Pellet zu stören.
- Das Pellet in 1 mL 75 %igem Ethanol resuspendieren und 1 min bei Raumtemperatur mit 12000 x g zentrifugieren. Diesen Schritt zweimal durchführen und das Pellet lufttrocknen.
- Das Pellet in 50 µL nukleasefreiem Wasser resuspendieren.
HINWEIS: Um die RNA aufzulösen, diese 10–30 min bei Raumtemperatur in RNasefreiem Wasser inkubieren.
- TRIzol-Methode
- 200 µL TRIzol-Reagenz zum Zellpellet hinzufügen.
VORSICHT: TRIzol ist eine gefährliche Chemikalie; daher sind geeignete persönliche Schutzausrüstungen (PSA), technische Schutzmaßnahmen wie Abzüge und spezifische Entsorgungsverfahren einzuhalten. - Die Zelllyse nach den Schritten 2.1.2–2.1.3 durchführen.
- Zusätzlich 200 µL TRIzol-Reagenz hinzufügen, gefolgt von 200 µL Chloroform, und 1 min lang vortexen. 15 min bei 4 °C mit 13400 x g zentrifugieren. Nach der Zentrifugation eine ordnungsgemäße Phasentrennung sicherstellen.
- Die wässrige Phase vorsichtig in ein neues 1,5-mL-Mikrozentrifugenröhrchen überführen.
- Die RNA durch Zugabe von 500 µL Isopropanol zur wässrigen Phase ausfällen und 30 min bis 1 h bei −80 °C inkubieren.
- Die RNA durch Zentrifugation 20 min bei 4 °C mit 15000 x g pelletieren. Das Pellet sorgfältig beobachten und den Überstand entfernen, ohne das Pellet zu stören.
- Das Pellet mit 1 mL 75 %igem Ethanol resuspendieren und 1 min bei 4 °C mit 13400 x g zentrifugieren. Diesen Schritt zweimal wiederholen, das Pellet 30 min bei Raumtemperatur lufttrocknen und in 50 µL nukleasefreiem Wasser resuspendieren.
- 200 µL TRIzol-Reagenz zum Zellpellet hinzufügen.
- Methode mit kommerziell erhältlichem RNA-Extraktionskit
- Das Zellpellet in 200 µL Resuspensionspuffer (im Kit enthalten) resuspendieren.
- Die Zelllyse nach den Schritten 2.1.2–2.1.3 durchführen.
- Die weiteren Schritte gemäß den Herstelleranweisungen durchführen.
3. DNase-Behandlung, Quantifizierung und Visualisierung
- Um Kontamination mit genomischer DNA zu entfernen, 1 µL DNase I (10 Einheiten) und 5 µL RDD-Puffer (1x) zu jeder RNA-Probe hinzufügen und 30 Minuten bei Raumtemperatur inkubieren.
- Die RNA-Probe mittels Nanodrop spektrophotometrisch quantifizieren und die RNA-Integrität mit einem Qubit4 bestimmen. Akzeptabler RIN-Wert liegt zwischen 7,5 und 10. Akzeptable Werte für A260/A280 und A260/A230 liegen im Bereich von 1,8–2,0 bzw. 2,0–2,2.
- Die RNA auf einem 1 %igen Agarosegel unter Verwendung von 1X RNA-Ladefarbstoff sichtbar machen.
4. cDNA-Synthese und quantitative Echtzeit-PCR
- Richten Sie eine 20 µL Reaktion zur cDNA-Präparation mit dem cDNA Reverse Transcription Kit und 1 µg RNA gemäß den Herstelleranweisungen in einem Thermocycler ein.
- Richten Sie eine 10 µL Echtzeit-PCR-Reaktion mit 50 ng cDNA, 0,4 µM jedes Primers und SYBR gemäß den Herstelleranweisungen ein. Führen Sie die Probe auf dem Echtzeit-PCR-Thermocycler durch.
HINWEIS: Für die qPCR-Analyse wurden die folgenden Primer verwendet:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3', Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3', Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3', Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3', Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3', Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3', Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. Statistische Analyse
- Führen Sie den Student’schen t-Test mit allen biologischen Wiederholungen mithilfe von Graph Pad Prism durch; ein P-Wert ≤ 0,05 wurde als statistisch signifikant angesehen. Die Fehlerbalken stellen den Standardfehler aus mindestens drei biologischen Wiederholungen dar.
Ergebnisse
RNA-Qualität und -Ausbeute
Die RNA-Qualität und -Menge wurde mittels Agarose-Gelelektrophorese bewertet (Abbildung 2). Für alle Extraktionsmethoden wurden klare, scharfe Banden beobachtet, die den 23S- und 16S-rRNA entsprechen, was eine erfolgreiche Isolierung der Gesamt-RNA bestätigt. Die Hot-Phenol- und die TRIzol-Methode zeigten jeweils drei deutliche Banden, die 23S (~2900 bp), 16S (~1500 bp) und 5S rRNA (~120 bp) repräsentieren und auf intakte, hochwertige RNA hinweisen. Im Gegensatz dazu zeigte die Säulen-basierte Kit-Methode nur die 23S- und 16S-Banden, wobei die 5S-rRNA-Bande fehlte oder unterhalb der Nachweisgrenze lag, vermutlich aufgrund eines selektiven Verlusts kleiner RNA-Moleküle während der Säulenreinigung. Bezüglich der Ausbeute lieferte die Hot-Phenol-Methode 1,5- bis 2-fach mehr RNA als die TRIzol- und die RNeasy-Methode (Abbildung 2A,C). Die durchschnittlichen Ausbeuten betrugen etwa 60 µg für Hot Phenol, etwa 45 µg für TRIzol und etwa 30 µg für RNeasy, wobei letztere eine um rund 50 % geringere Ausbeute als Hot Phenol darstellt. Trotz der Unterschiede in der Ausbeute waren Integrität und Reinheit der RNA zwischen den Methoden vergleichbar (Abbildung 2D,E).
Um die Effizienz des Lysiansatzes zu bewerten, wurde die RNA ebenfalls mit einem Kugelmühler extrahiert. Dabei wurden vergleichbare Ausbeuten, Qualität und Integrität erzielt, was zeigt, dass eine effektive Zelllyse mit einem einfachen manuellen Gewebemörser ohne spezielle Geräte wie einen Kugelmühler oder -zerstörer erreicht werden kann (Abbildung 2B,F–H).
Da Mtb gegenüber der Lyse resistenter ist als Msmeg, validierten wir die optimierte Hot-Phenol-Methode zusätzlich am Mtb-Stamm H37Rv. Die Zelllyse sowohl mit dem Handhomogenisator als auch mit dem Bead Ruptor ergab RNA in guter Ausbeute, Qualität und Integrität (Abbildung 3A–D), was die Robustheit der Methode bestätigt. Obwohl die RNA-Extraktion mittels manuellem Gewebemörser eine geringere Ausbeute (~35–45 µg/3 mL Kultur) aufwies im Vergleich zum Bead Ruptor (50–60 µg/3 mL), erwies sich der Unterschied als statistisch nicht signifikant; zudem lag die Menge im akzeptablen Bereich für groß angelegte Genexpressionsstudien. Alle RNA-Extraktionen wurden mehrfach wiederholt, und alle unabhängigen biologischen Wiederholungen sind dargestellt. Eine Dichtemessanalyse (Densitometrie) der Gelelektrophoresebilder wurde durchgeführt, die die statistischen Unterschiede in der RNA-Ausbeute zwischen den verschiedenen Methoden weiter bestätigt, wobei die Hot-Phenol-Methode die höchste Ausbeute lieferte (Zusatzmaterial Abbildung 1A–D).
RNA-Reinheit und -Integrität
Alle Methoden lieferten RNA mit akzeptablen A260/A280-Verhältnissen um 2,0, was auf eine geringe Protein-Kontamination hinweist (Abbildung 2D). Die RNA-Integrität (RIN) war bei allen Methoden vergleichbar, wobei die Werte zwischen 7,5 und 10 lagen (Abbildung 2D–H, ergänzende Abbildung 2, untere Darstellung). Dies weist auf eine gute Qualität, Integrität und minimale Degradation hin.
Quantitative PCR-Analyse zur Überprüfung der RNA-Qualität
Um die Eignung der RNA, die mit jeder Methode extrahiert wurde, für nachgeschaltete Genexpressionstudien zu bewerten, wurde eine qRT-PCR durchgeführt. Wir untersuchten die Genexpression des housekeeping-Gens Msmeg, mysA (MSMEG 2758) und zwei transkriptionelle Regulatoren, sigE (MSMEG 5072) und sigH (MSMEG 1914) unter Verwendung äquivalenter RNA-Mengen als Input. Die erhaltenen Ct-Werte (Schwellenzyklus) spiegeln die relative Häufigkeit intakter, amplifizierbarer RNA in jeder Probe wider. Wie in (Abbildung 2I), ergaben RNA, die mit Hot Phenol und TRIzol extrahiert wurde, vergleichbare Ct-Werte im Bereich von etwa 22–25, was auf eine höhere RNA-Integrität und Kompatibilität mit der reversen Transkription und Amplifikation hinweist. Die Kit-Methode wies leicht höhere Ct-Werte (~27–30) auf, was auf geringere Mengen nachweisbarer Transkripte hindeutet. Die Schmelzkurvenanalyse zeigte eine spezifische Amplifikation von mysA, sigE und sigH Gene, die Spezifität und Effizienz der qPCR zeigen (Zusatzabbildung 2, oberes Panel). Die qPCR-Analyse unter Verwendung von Mtb-Genen zeigte ebenfalls akzeptable Ct-Werte (~20–25), was die Eignung für nachgeschaltete Genexpressionsstudien bestätigt (Abbildung 3E).
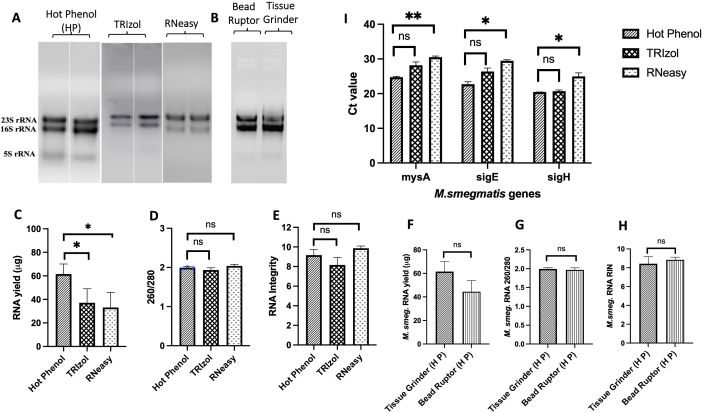
Abbildung 2: Vergleich von Methoden zur RNA-Isolierung für Mycobacterium. (AAgarosegelelektrophorese zur Darstellung der gesamten RNA, die mit den Methoden Hot Phenol, TRIzol und RNeasy extrahiert wurde. In allen Proben sind deutliche 23S- und 16S-rRNA-Banden sichtbar, was auf intakte RNA hinweist.BAgarose-Gelelektrophorese zur Darstellung der mit heißer Phenol-Methode extrahierten Gesamt-RNA über verschiedene Lysemethoden, d. h. Bead Ruptor und manuelle Gewebemühle. (C) Gesamt-RNA-Ausbeute, wobei die höchste Ausbeute aus Hot Phenol resultierte, gefolgt von TRIzol und der Kit-Methode. (DDie RNA-Reinheit wurde anhand der A260/A280-Verhältnisse bewertet, wobei alle Methoden Werte von etwa ~2,0 ergaben, was auf eine geringe Proteinkontamination hinweist.E) RNA-Integritätszahl (RIN) mit vergleichbarer Integrität. (F–HVergleich der RNA-Ausbeute, des 260/280-Verhältnisses und der RNA-Integrität zwischen Proben, die mit einem manuellen Gewebemörser und einem Bead Ruptor lysiert und mit der Hot-Phenol-Methode isoliert wurden.I) Ct-Werte aus der qRT-PCR, die ein Housekeeping-Gen (z. B. mysA) und Transkriptionsfaktoren (sigE und sigH). Die Fehlerbalken stellen den Standardfehler aus drei biologischen Wiederholungen dar (n = 3). P-Wert, berechnet mit dem t-Test nach Student t-Test. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
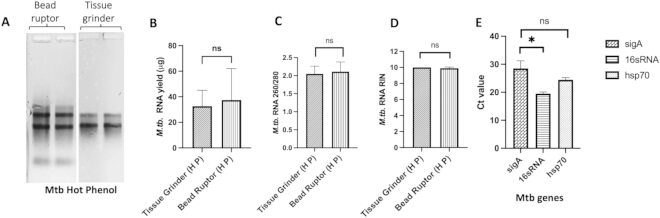
Abbildung 3: RNA-Isolierung aus Mtb mittels der Hitzephenol-Methode. (A) Agarose-Gelelektrophorese zur Darstellung der gesamten RNA, die unter Verwendung eines Bead-Ruptors und eines manuellen Gewehomogenisators mit der optimierten Hitzephenol-Methode aus dem Mtb-Stamm H37Rv extrahiert wurde. (B–D) Vergleich der isolierten RNA hinsichtlich Ausbeute, 260/280-Verhältnis und Schätzung der RNA-Integrität (RIN). (E) Ct-Werte aus der qRT-PCR, die auf die Gene sigA, 16s rRNA und hsp70 abzielt. Die Fehlerbalken zeigen den Standardfehler aus drei biologischen Wiederholungen (n = 3). Der P-Wert wurde mittels Students t-Test berechnet. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Heißes Phenol | Trizol | RNeasy-Kit | |
| Ausbeute | 60 -70 μg | 35 -50 μg | 30 - 45 μg |
| Zeit | 2,5–3 Std. | 2–2,5 Std. | 30–45 Min. |
| Kosten/Reaktion | 0,10–0,20 $ | 1,50–2,00 $ | 7,00–10,00 $ |
| Einschränkungen | Zeitaufwändig, starke Denaturierungsmittel (Phenol/SDS) | Zeitaufwändig, hochgiftige Reagenzien wie Trizol, Notwendigkeit einer Kaltzentrifuge, 15-mal teurer als die Heiß-Phenol-Methode | Teuer (72-mal teurer als Heißes Phenol), geringere Ausbeute, Säulensperre |
| Vorteile | Höhere Ausbeute bei geringerem Volumen, niedrige Kosten, keine Notwendigkeit eines Zerkleinerungsgeräts zur Zelllyse, keine Kaltzentrifugation erforderlich | Mittlere Ausbeute und mittlere Kosten, Kaltzentrifugation erforderlich | Mittlere Ausbeute, sehr teuer |
| Wesentlicher Kostentreiber | Gängige Laborreagenzien (TES-Pufferbestandteile, saures Phenol, Chloroform, Isopropanol, Ethanol) | Kommerzielles TRI-Reagenz®, Chloroform oder Chloroform:Isoamylalkohol, Isopropanol, Ethanol | Eigentümerschaftliche Qiagen-Spin-Säulen und Puffer |
| RIN | 8–10 RIN | 7,5–10 RIN | 9–10 RIN |
Tabelle 1: Vergleich von Kosten, Zeit und Einschränkungen bei drei verschiedenen RNA-Extraktionsverfahren (Hot-Phenol-, TRIzol- und RNeasy-Methoden).
Abbildung S1: Optimierung der RNA-Extraktion. (A) RNA-Extraktion unter Verwendung von heißem Phenol und Lyse mithilfe eines manuellen Gewebemühls. (B) RNA-Extraktion unter Verwendung von TRIzol. (C) RNA-Extraktion unter Verwendung der RNeasy-Methode. (D) Densitometrische Analyse der Gelelektrophoresebilder der RNA-Extraktion aus Msmeg mittels verschiedener Methoden. Die Fehlerbalken stellen den Standardfehler dar, berechnet mit GraphPad Prism (n = 8). (E) RNA-Extraktion mittels heißem Phenol aus dem Mtb-Stamm. Alle Gele sind unabhängige biologische Wiederholungen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Abbildung S2: (Oberes Feld) Schmelzkurvenanalyse von mysA, sigE, und sigH aus M. smeg, n = 3; (Unteres Feld) Analyse der RNA-Integrität. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Um eine einfache und robuste RNA-Extraktionsmethode für Mycobacterium zu entwickeln, wurde die Hot-Phenol-Methode optimiert. Anschließend wurde die extrahierte RNA mit zwei weit verbreiteten Methoden verglichen: TRIzol und eine Säulen-basierte Kit-Methode12,13. Diese Techniken wurden hinsichtlich RNA-Ausbeute, Reinheit, Integrität, Kosten und Verarbeitungsdauer verglichen, um ihre Eignung für nachgeschaltete molekularbiologische Anwendungen zu bewerten. Sowohl die Hot-Phenol- als auch die TRIzol-Methode lieferten – trotz eines relativ höheren Zeitaufwands im Vergleich zur Kit-Methode – intakte, hochwertige RNA. Alle drei Methoden ergaben RNA mit vergleichbarer Reinheit und Integrität; die Hot-Phenol-Methode lieferte jedoch durchgängig eine höhere RNA-Ausbeute. Außerdem zeigten die mit Hot-Phenol und TRIzol extrahierten RNA-Proben ähnliche Ct-Werte. Bei einem Vergleich der Ct-Werte zwischen der Hot-Phenol- und der RNeasy-Methode hingegen wurde ein statistisch signifikanter Unterschied beobachtet. Da in dem Experiment gleiche Mengen an RNA verwendet wurden, waren vergleichbare Ct-Werte bei allen Methoden zu erwarten. Die bei der RNeasy-Methode beobachteten Unterschiede könnten auf Unterschiede in der Chemie der RNA-Extraktion zurückzuführen sein. Hot-Phenol und TRIzol sind organische Methoden und erweisen sich oft als effektiver bei der Löslichkeit anspruchsvoller Transkripte, wie beispielsweise solcher, die intrinsische Membranproteine kodieren, oder Transkripte mit hohem GC-Gehalt. Im Gegensatz dazu basiert RNeasy auf einer Silica-Säule und kann zu einer geringeren Rückgewinnung bestimmter Transkripte führen, die nicht effizient an die Membran binden oder während der Waschschritte verloren gehen, verglichen mit phenolbasierten Methoden (Abbildung 2). Bedeutsamerweise wurden vergleichbare RNA-Ausbeuten sowohl mit einem manuellen Gewehomogenisator als auch mit einem Kugelmühlsystem für die Zelllyse erzielt, wodurch eine betriebliche Flexibilität bei der Zelllyse gegeben ist. Zudem wurde die Extraktionsmethode so optimiert, dass sie mit geringen Kulturvolumina funktioniert und keine kalte Zentrifugation erfordert. Diese Vereinfachung verbessert die Gesamtheffizienz und Benutzerfreundlichkeit der Probenvorbereitung.
Ein wichtiger Faktor bei der Auswahl einer RNA-Extraktionsmethode ist das Gleichgewicht zwischen Kosten, Zeit und Ausbeutequalität (Tabelle 1). Die heiße Phenol-Methode bleibt trotz ihres etwas höheren Zeitaufwands aufgrund der Verwendung gängiger Laborchemikalien und ihrer Fähigkeit, hohe RNA-Ausbeuten (Msmeg-RNA 60–70 µg und Mtb-RNA 35–45 µg pro 3 mL Kultur im mittleren log-Phasen-Volumen) auch aus geringen Kulturvolumina von 3 mL und ohne den Einsatz teurer Beatmühlen, wie sie bei den meisten bisher veröffentlichten Methoden erforderlich sind, zu erzielen, äußerst kosteneffizient. Dies macht sie besonders vorteilhaft für Labore, die unter ressourcenarmen Bedingungen arbeiten. Bisher veröffentlichte, auf heißem Phenol basierende RNA-Extraktionsmethoden unterscheiden sich in mehreren entscheidenden Aspekten. Mangan et al. verwendeten beispielsweise M. bovis für die RNA-Extraktion mittels der heißen Phenol-Methode und berichteten über eine Ausbeute von etwa 20 µg RNA pro 109 Zellen. Wichtige Parameter wie Kulturvolumen und Extraktionstemperatur wurden jedoch nicht eindeutig angegeben. Außerdem beinhaltet ihre Methode eine Detergenzwäsche mit Divolab-1 vor der mechanischen Zellaufschließung, ein Reagenz, das nicht leicht verfügbar ist, gefolgt von der Extraktion mit Chloroform und Isoamylalkohol11. Bei einer anderen heißen Phenol-Methode wurde RNA aus Mtb-Zellen extrahiert, wobei etwa 39 µg Gesamt-RNA gewonnen wurden, was mit der hier beschriebenen optimierten Methode vergleichbar ist. Diese Methode erforderte jedoch ein relativ hohes Kulturvolumen (25 mL), was die Bearbeitungszeit verlängert und die Verwendung größerer Zentrifugen notwendig macht. Außerdem wird bei dieser Methode eine Mischung aus Chloroform und Isoamylalkohol verwendet, und die Extraktionstemperatur ist nicht angegeben12,14. TRIzol wird ebenfalls häufig verwendet, um bei moderaten Kosten eine gute RNA-Ausbeute und -qualität zu erzielen15; die Ausbeute war jedoch vergleichsweise gering. Das RNeasy-Kit bietet hervorragenden Komfort und Geschwindigkeit, was es für zeitaufwändige Arbeitsabläufe oder weniger erfahrene Anwender geeignet macht, ist jedoch deutlich teurer als die beiden anderen Methoden, und die Ausbeute war signifikant niedrig. Zusammenfassend bietet die hier beschriebene Methode eine operationelle Flexibilität bei der mykobakteriellen Zelllyse und anschließenden RNA-Extraktion. Sie ermöglicht es den Anwendern, die am besten geeignete Methode basierend auf ihren Prioritäten – sei es Kosten und Ausbeute oder Bearbeitungszeit – auszuwählen, während eine vergleichbare RNA-Qualität und -Integrität über alle drei Methoden hinweg erhalten bleibt.
Offenlegungen
Es bestanden keine Interessenkonflikte zwischen den Autoren. Alle Autoren haben die Einreichung genehmigt.
Danksagungen
Ich möchte die Unterstützung durch das Department of Biotechnology (DBT), den Indian Council of Medical Research (ICMR) und den Science and Engineering Research Board (SERB) anerkennen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 0,1 mm Silikabeads | MP Biomedicals | MP116911050 | |
| 2-Propanol | Sigma | 278475 | |
| Bead Ruptor 4 | revvity | ||
| Chloroform | Sigma | 288306 | |
| Kaltzentrifuge | ThermoScientific | 42541217 | |
| DNase I | qiagen | 79254 | |
| EDTA | sigma | E02SS | |
| HCl | SRL | 62889 | |
| Heizblock | MIULAB | MU-E02-1049 | |
| High-Capacity cDNA Reverse Transcription Kit | Thermo Fischer Scientific | 4368814 | |
| Motorbetriebener Gewebemörser G10 | Coron | G22616008 | |
| NaCl | sigma | S5886 | |
| Nanophotometer N50 | IMPLEM | T51601 | |
| Phenol, äquilibriert mit 0,1 M Citratpuffer, pH 4,5 | Sigma | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| Qubit 4 Fluorometer | Invitrogen | 2.32262E+12 | |
| Echtzeit-PCR-Thermocycler | Analytik Jena AG | 844-00503-2 | |
| RNA easy Kit | Qiagen | 74104 | |
| SDS | Sigma | S9888 | |
| Natriumacetat | Sigma | S2889 | |
| Thermocycler | Biorad | 621BR29739 | |
| TRI Reagent | Sigma | T9424 | |
| Tris-Basis | Himedia | MB029 | |
| β-Mercaptoethanol | Sigma | 516732 |
Referenzen
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
Nachdrucke und Genehmigungen
