Dieses Protokoll beschreibt einen quantitativen Defäkationstest bei jungen RAC1/CED-10-mutierten Caenorhabditis elegans und bietet ein einfaches Modell zur Untersuchung der prodromalen Parkinson-Stadien. Es überwindet die Einschränkungen anderer Tiermodelle und erleichtert die Erprobung therapeutischer Strategien, die auf frühe Parkinsonsche Pathologie abzielen.
Methodenartikel
Bewertung der gastrointestinalen Motilität bei Caenorhabditis elegans RAC1/CED-10-Mutanten als Werkzeug zur Untersuchung der frühen Parkinson-Krankheit
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Parkinson-Krankheit (PD) gehört zu den häufigsten neurodegenerativen Erkrankungen und wird anhand motorischer Symptome diagnostiziert, die nach erheblichem Verlust dopaminergerer Neuronen auftreten. Nichtmotorische Symptome wie Verstopfung sind am häufigsten und treten oft früher auf, was auf den Beginn der Krankheit hinweist. Viele Tiermodelle werden zur Untersuchung neurodegenerativer Erkrankungen verwendet, doch die meisten konzentrieren sich auf die späteren Stadien. Da es schwierig ist, den genauen Beginn der Neurodegeneration zu bestimmen, stellt kein einzelnes Modell den gesamten Krankheitsverlauf vollständig dar. Säugetiermodelle sind aufgrund ihrer langen Lebenszyklen besonders zeitaufwendig und teuer. Im Gegensatz dazu ermöglicht Caenorhabditis elegans (C. elegans), ein transparenter 1-mm-Nematode mit kurzer Lebensdauer und Fortpflanzungszyklus (~3 Wochen und 3 Tage), dank seines schnellen Generationswechsels schnellere und kosteneffizientere Experimente. Das Defäkationsmotorprogramm bei C. elegans besteht aus rhythmischen Zyklen, die von einem komplexen genetischen Netzwerk reguliert werden, an dem Rho/rac GTPasen teilnehmen, und RAC1 (CED-10 bei C. elegans) gehört dazu. Wir haben gezeigt, dass RAC1/CED-10-Mutanten eine beeinträchtigte GABAerge Morphologie und Funktion aufweisen, was zu gestörten Defäkationszyklen führt. Hier stellen wir das experimentelle Protokoll zur Messung von Verstopfung bei RAC1/CED-10 C. elegans in frühen Stadien vor. Neben der Funktion als prädiktives Werkzeug zur Untersuchung früher PD-Symptome vor der Neurodegeneration könnte dieses Protokoll auch als früher Endpunkt zur Bewertung der Wirksamkeit pharmakologischer Interventionen eingesetzt werden. Da diese Veränderungen nicht krankheitsspezifisch sind, glauben wir, dass dieses Modell ein wertvolles Werkzeug zur Untersuchung von frühen Veränderungen bei anderen Erkrankungen bietet.
Einleitung
Die Parkinson-Krankheit (PD) ist die zweithäufigste neurodegenerative Erkrankung und eine der Hauptursachen für neurologische Behinderungen 1,2. Zu seinen pathologischen Merkmalen gehören Lewy-Körper und Lewy-Neurite, die hauptsächlich aus α-Synuklein bestehen, sowie neuronaler Verlust in der Substantia nigra und anderen Hirnregionen3.
Klinisch wird PD als Bewegungsstörung klassifiziert, ist aber auch durch ein breites Spektrum nicht-motorischer Symptome gekennzeichnet. Motorische Beeinträchtigungen entstehen durch die Degeneration dopaminergerer Neuronen in der Substantia nigra und den striatalen Dopamindepletion. Nichtmotorische Symptome wie Verstopfung, Angst und REM-Schlafverhaltensstörungtreten jedoch oft Jahre früher auf, während der Prodromalphase, wenn Neurodegeneration extranigrale Strukturen (z. B. Hirnstamm, Riechsystem und autonome Bahnen) betrifft5.
Eine große Herausforderung in der PD-Forschung ist das verzögerte klinische Auftreten: Motorische Symptome treten typischerweise erst auf, nachdem 60 % bis 80 % der dopaminergen Neuronenverloren gegangen sind, bis zu diesem Zeitpunkt die therapeutische Intervention weniger wirksam ist. Frühe nichtmotorische Symptome (z. B. autonome Dysfunktion) könnten als Biomarker für prodromale PD6 dienen, aber ihre Nicht-Spezifität erschwert die endgültige Diagnose. Angesichts dieser Einschränkungen sind Tiermodelle unerlässlich, um frühe PD-Stadien zu untersuchen, die Symptomcharakterisierung zu standardisieren und neuroprotektive Therapien zu entwickeln – derzeit fehlend –, die Neurodegeneration verlangsamen oder verhindern könnten.
RAC1/CED-10 C. elegans-Mutanten wiederholen wichtige frühe und späte PD-Merkmale6. Wir haben zuvor gezeigt, dass die RAC1-Aktivität entscheidend für das Überleben und die Funktion dopaminergerer Neuronen ist und vor α-synukleininduzierter Toxizitätschützt 7. Darüber hinaus zeigen RAC1/CED-10-Mutanten phänotypische Veränderungen, die einer frühen PD ähneln, einschließlich einer Dysregulation des Lipidstoffwechsels und GABAergerger, letztere spiegeln sich in gestörten Defäkationszyklen6 wider. Diese Erkenntnisse belegen RAC1/CED-10-Mutanten als ein handhabbares Modell zur Untersuchung der prädegenerativen PD-Pathophysiologie.
Hier beschreiben wir einen optimierten Defäkationstest für RAC1/CED-10-Mutanten, der quantitativ die Darmdysmotilität erfasst und so systematische Untersuchungen der gastrointestinalen Merkmale während der Prodromalphase von PD ermöglicht.
Protokoll
HINWEIS: Wildtyp: N2 Bristol wurde verwendet. Modell des frühen PD RAC1/CED-10: Der Stamm BR3579 ist genotypisiert als ced-10(n3246) und wird hier RAC1/CED-10 genannt. Es war eine großzügige Spende von Dr. Ralf Baumeister (Albert-Ludwig-Universität, Freiburg/Breisgau, Deutschland). Diese Variante von ced-10(n3246) ist ein starkes Allel. Die Mutation ced-10(n3246) ist ein G-zu-A-Übergang, der zu einer Veränderung von Glycin 60 von CED-10 zu Arginin (G60R) führt, was zu einer nicht-null veränderten Funktion 8,9 führt. Die Schwere dieses Allels ist im Vergleich zu anderen CED-10-Allelen 10 stärker. Hermaphroditen wurden während der gesamten Studie eingesetzt.
1. Wurmpflege
- Gieße 25 ml Nematodenwachstumsmedium (NGM) in 150 mm Petrischalen und lasse den Agar erstarren. Säen Sie jede Platte mit 500 μL einer Escherichia coli OP50-Kultur aus und verteilen Sie die Suspension gleichmäßig über die Agaroberfläche. Inkubieren Sie Platten über Nacht bei 30 °C, um das Bakterienwachstum zu ermöglichen. Bereiten Sie die Teller 24 Stunden vor der Verwendung vor.
2. Zur Synchronisierung von Würmern im 4 . Entwicklungsstadium der Larve (L4)
- Messungen der Darmbeweglichkeit mit Würmern durchführen, die im L4-Larvenstadium synchronisiert sind. Um Würmer in diesem Entwicklungsstadium zu erhalten, folgen Sie dem unten beschriebenen Bleichprotokoll (angepasst von 11) mit leichten Modifikationen im Zusammenhang mit dem Rac1/CED-10-Phänotyp11.
- Fügen Sie 10 trächtige erwachsene Tiere zu den NGM-Platten mit Escherichia coli OP50 hinzu, die wie in Schritt 1 zubereitet sind, um Eier zu legen und die Würmer drei Tage lang wachsen zu lassen. Alternativ kann ein Agar-Stück von einer NGM-Platte mit gemischter Population auf eine neue NGM-Platte übertragen werden. In diesem Fall ist die Lebenszykluskontrolle nicht so präzise wie bei der Verwendung von 10 schwangeren Erwachsenen. Nach 80 Stunden wurde bei Wildtypen eine gemischte Population von C elegans-Hermaphroditen mit trächtigen Erwachsenen beobachtet. RAC1/CED-10-Mutanten zeigten 6 Stunden verzögerte Entwicklung6, sodass trächtige Erwachsene bei 86 Stunden erschienen.
HINWEIS: Trächtige Erwachsene werden identifiziert, weil sie Eier im Inneren haben. - Waschplatten mit 10 mL M9 zur Wiederherstellung trächtiger Erwachsener in 15-mL-Röhren (mit dem entsprechenden Genotyp gekennzeichnet).
- Pelletieren Sie die Würmer durch 2 Minuten Zentrifugation bei 2000 x g (~1500 U/min bei einer Standard-Tischzentrifuge) bei Raumtemperatur, entsorgen Sie das Überlagerungsmittel und fügen Sie 10 ml frischen M9-Puffer hinzu.
HINWEIS: Obwohl es bei Raumtemperatur funktioniert, haben wir bessere Ergebnisse durch Zentrifugation bei 10 °C festgestellt. - Führe Schritt 2.4 3-mal durch oder bis der Puffer frei von Bakterien ist (transparenter Supernatant). Das Vorhandensein von Bakterien lässt sich daraus ableiten, dass der Supernatant leicht gelblich und trüb erscheint.
- Fügen Sie M9-Puffer zu einem Gesamtvolumen von 3,5 ml hinzu.
HINWEIS: Nach unserer Erfahrung kann steriles destilliertes Wasser – oder sogar Leitungswasser – in diesem Schritt verwendet werden, ohne eine Kontamination einzuführen, da der anschließende Bleichprozess alle Mikroben eliminiert. Wir empfehlen jedoch M9-Puffer oder steriles Wasser, um die Reproduzierbarkeit in verschiedenen Laboren zu gewährleisten. - Mischen Sie 0,5 ml 5M NaOH mit 1 ml Bleichmittel, um die Bleichlösung herzustellen. Machen Sie diese Lösung frisch vor der Benutzung. Geben Sie 1,5 ml des Gemisch in das Zentrifugenrohr mit den Würmern.
- Bewegen Sie die Röhrchen während des Bleichens kräftig, während Sie die Zerstörung des erwachsenen Gewebes unter einem Sezierenden Mikroskop überwachen. Stoppen Sie die Reaktion, sobald nur noch Spuren von Erwachsenen sichtbar sind.
HINWEIS: Die Bleichbehandlung elilysiert erwachsene Würmer und Larven, während Embryonen lebensfähig bleiben, da ihre Eierschale sie vor Bleichmittel schützt. Dieser Schritt ist entscheidend, um Überlebende zu finden. Ein Überschuss an Zeit kann alle Würmer töten. Ein Vortex wird dringend empfohlen, aber dann sollte man die Zerstörung der Nagelhaut alle 3 Minuten überprüfen. RAC1/CED-10-Mutanten reagieren empfindlicher auf Bleichmittel. Überwachen Sie den Zerfall des erwachsenen Gewebes alle 2 Minuten und überschreiten Sie niemals 8 Minuten. - Stoppen Sie die Reaktion, indem Sie M9-Puffer hinzufügen, um das Rohr zu füllen (~15 mL). Zentrifugiere schnell (da die Behandlung noch aktiv sein kann) für 1 Minute bei 2.000 x g und entsorge Supernatant.
- Waschen Sie das Pellet dreimal, indem Sie das Rohr mit M9-Puffer füllen und wie oben beschrieben zentrifugieren. Nach der letzten Waschung entferne ich vorsichtig das Überdachungsmittel, bis etwa 0,1 ml übrig sind.
- Gib diese Eier in ein neues 15-mL-Rohr und gib M9 auf 5 mL. Inkubieren Sie bei Raumtemperatur mit sanfter Rotation. Eine angemessene Belüftung sollte bereitgestellt werden.
HINWEIS: Wir erzielten gute Synchronisationsergebnisse mit Leitungswasser statt M9 in allen Schritten außer Schritt 2.9. - Nach 24 Stunden stoppt man die Rotation und pelletiert die Würmer durch Zentrifugation bei 2.000 x g für 1 Minute bei 10 °C.
- Platte 30–50 μL mit pelletierten Würmern der entsprechenden Genotypen in 150 cm NGM-Platten, die mit OP50 besät und mit dem entsprechenden Genotyp markiert sind. Mehrere RAC1/CED-10-Würmer schienen tot zu sein, als intrinsische Eigenschaft des RAC1/CED-10-Genotyps (persönliche Beobachtung). Entsprechend verdoppelt man das Volumen dieser Mutanten und überwacht sie am nächsten Tag.
HINWEIS: Das Volumen der verplattenten Würmer hängt vom Ertrag des Bleichprotokolls ab. Überschreite niemals die Anzahl von 250 Würmern pro Teller, da das Futter schneller zur Neige geht und Würmer verhungern könnten. Der Unterschied in der Entwicklungszeit könnte sinnvoll genutzt werden, um Zeit zu haben, die ersten Defäkationszyklen von Wildtyp- und dann RAC1/CED-10-Würmern aufzuzeichnen (siehe nächsten Abschnitt). - Suchen Sie nach 34 Stunden Inkubation nach Wildtypwürmern im L4-Entwicklungsstadium der Larven. Die gleiche Entwicklungsstufe für RAC1/CED-10-Würmer wird in 40 Stunden6 erreicht. Unterscheide L4-Würmer von L3 und jungen Erwachsenen, indem du ihre Größe (~650 μm) misst und ihre mondähnliche Vulvastruktur12 prüfst.
3. Aufzeichnung der Darmmotilität
- Waschen Sie die Platten mit 3 ml M9, um L4-Würmer in zwei 1,5-mL-Zentrifugenröhren zurückzugewinnen.
- Zentrifugiere mit 2.000 x g für 1 Minute (Abbildung 1A), entsorge Supernatant und füge 1 ml frischen M9-Puffer hinzu. Schritt dreimal wiederholen.
- Plattieren Sie diese gewaschenen Würmer in einer NGM-Platte ohne OP50 (Abbildung 1B). Mit diesen Wasch- und Endanrichtenschritten beseitigen Sie überschüssige Bakterien.
- Transferieren Sie die Würmer einzeln auf 12-Well-Platten mit besetzten 5 μL OP50-Bakterien (Abbildung 1C). Lass die Würmer sich 1 Stunde bei 20 °C anpassen.
HINWEIS: Diese Platten wurden ausgesät und trocknen lassen, bevor die Würmer hinzugefügt wurden. Es ist besser, diese Platten nicht im Voraus vorzubereiten, da ein Überwuchern von Bakterien die Visualisierung des Defäkationszyklus erschweren kann. - Legen Sie die 12-Well-Platten mit Würmern unter das Mikroskop, lokalisieren Sie einen Wurm und beginnen Sie mit der Aufnahme. Rekord der Defäkationszyklen für 15 Minuten (15 Zyklen; Abbildung 1D). Verwenden Sie ein 5x-Objektiv für die Bildaufnahme mit einer Kamera, die eine 12-Bit-Auflösung und eine Bildrate von 60 Bildern pro Sekunde (fps) bietet. Führen Sie Videoaufnahmen mit dem Snipping Tool unter Windows durch. Beginnen Sie mit der Aufnahme, wenn Sie den ersten Defäkationszyklus erkennen.
HINWEIS: Wenn das Mikroskop an einen Computer angeschlossen ist, kann man den Bildschirm direkt mit dem Snipping Tool aufnehmen. Wir empfehlen dringend, einen Computerchronometer zur Überwachung des Defäkationszyklus zu haben. Klicken Sie jedes Mal am Ende des Defäkationszyklus auf den Runden-Button.
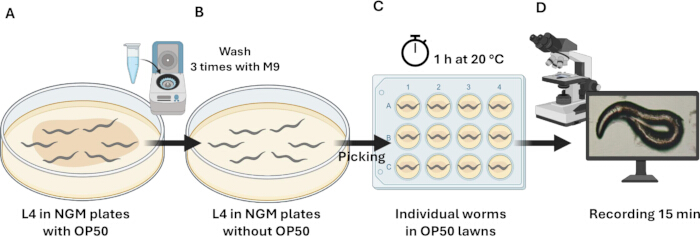
Abbildung 1: Schematisches Diagramm des experimentellen Protokolls zur Messung der Darmbeweglichkeit. (A) Synchronisierte Würmer im L4-Entwicklungsstadium. Diese Würmer wurden dreimal mit M9 gesammelt und gewaschen. (B) Gewaschene Würmer wurden mit NGM-Platten ohne OP50 versehen. (C) Die Würmer wurden einzeln in einer 12-Brunnen-Platte mit OP50 gepflückt und 1 Stunde bei 20 °C kriechen lassen. In dieser Zeit passen sich die Würmer an das neue Medium an und entspannen sich vom Stress des Transfers. (D) Einzelne Würmer wurden 15 Minuten lang registriert, um die Darmbeweglichkeit zu analysieren. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
4. Analyse des Defäkationszyklus
HINWEIS: Bei C. elegans besteht das Defäkationsmotorprogramm aus rhythmischen Zyklen, die von einem komplexen genetischen Netzwerk orchestriert werden. Dieses Programm besteht aus drei aufeinanderfolgenden, unterschiedlichen Muskelkontraktionen, die jeweils unter einem Dissektionsmikroskop leicht nachweisbar sind. Der erste Schritt beinhaltet die Kontraktion der hinteren Körperwandmuskeln (pBoc), gefolgt von der Kontraktion der vorderen Körperwandmuskeln (aBoc) und schließlich von den enterischen Muskelkontraktionen (EMC), die zum Ausstoßen des Darminhalts führen (Exp)13 (Abbildung 2).
- Führen Sie Experimente bei 20 °C durch. Sobald alle Videos aufgenommen sind, beginnen Sie mit der Datenanalyse.
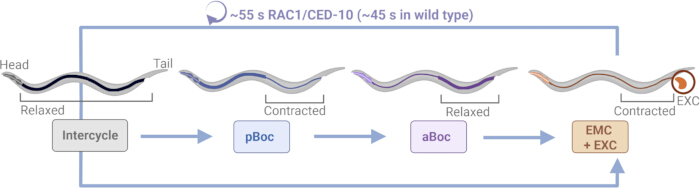
Abbildung 2: Defäkationszyklus bei C. elegans RAC1/CED-10-Mutanten. Eine diagrammatische Darstellung des C. elegans-Defäkationszyklus in RAC1/CED-10 mutierten Nematoden. pBoc bezeichnet die Kontraktion der hinteren Körperwandmuskulatur; aBoc bezeichnet die Kontraktion der vorderen Körperwandmuskulatur, und EMC + EXC entspricht dem Ausstoßen des Darminhalts. Bei Wildtypen, nicht gestörten Fütterungstieren wird dieses motorische Programm alle 45 Sekunden mit sehr hoherRegelmäßigkeit von 18 eingeleitet. Die Würmer sind so ausgerichtet, dass der Kopf nach links und der Schwanz nach rechts zeigt. Exkretion (EXC) ist orange hervorgehoben. Diese Zahl wurde von6 geändert. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
5. Videoanalyse
- Öffne ein Video mit einem Videoplayer-Programm.
HINWEIS: Wir haben Windows Media Player Legacy v12 verwendet. Andere Videoplayer-Programme können verwendet werden. - Bereite die Tabellenkalkulation vor. Öffnen Sie die bereitgestellte Vorlagendatei (ergänzende Tabelle 1). Geben Sie den Videodateinamen und die Wurmgröße (optional) in die vorgesehenen Felder ein und starten Sie dann die Videowiedergabe.
- Definiere und notiere die erste Ausscheidung. Definieren Sie Zeit Null als den Moment, in dem die Aufzeichnung beginnt, wenn Würmer unter das Mikroskop gelegt werden. Beobachten Sie die Anusregion des Wurms und identifizieren Sie das erste Ausscheidungsereignis. Notieren Sie die Zeit (in s) für dieses Ereignis in der Zelle mit der Bezeichnung Erste Ausscheidung der Tabelle.
HINWEIS: Die erste Ausscheidungszeit variiert zwischen den Würmern (z. B. Wurm 1 = 5 s, Wurm 2 = 26 s, Wurm 3 = 34 s), da der Zeitpunkt der letzten Ausscheidung vor der Aufzeichnung unbekannt ist. - Aufzeichnen Sie nachfolgende Ausscheidungsereignisse: Setzen Sie die Wiedergabe fort und dokumentieren Sie jede folgende Ausscheidung nacheinander (Ausscheidung 2, Ausscheidung 3 usw.), bis insgesamt 16 Ausscheidungen eingebracht wurden.
- Berechnung von Zyklusintervallen: Die Vorlage bestimmt automatisch das Intervall zwischen aufeinanderfolgenden Ausscheidungen (z. B. Ausscheidung 2 - Ausscheidung 1; Ausscheidung 3 - Ausscheidung 2; ...). Verwenden Sie diese Intervalle als Zykluslänge.
- Bestimmung der gesamten Zykluszeit: Sobald die 16 Ereignisse aufgezeichnet sind, berechnet die Vorlage die Zeit, die der Wurm benötigt, um 15 Zyklen abzuschließen. Dieser Wert wird in der Zelle mit der Bezeichnung Gesamtzeit der Tabelle angezeigt. Wiederhole diesen Vorgang für jeden Wurm.
HINWEIS: Derzeit erkennt keine automatisierte Software zuverlässig Defäkationszyklen in C. elegans. Obwohl Plattformen wie WMicrotracker effektiv sind, um Bewegungsparameter (Geschwindigkeit, zurückgelegte Strecke, Wurmzahl oderKörpergröße 14,15) zu quantifizieren, bieten sie nicht die nötige Auflösung, um die Anusregion zu überwachen und Kontraktionen oder Ausscheidungsereignisse zu identifizieren. Daher bleibt eine manuelle Wertung notwendig, ähnlich der Einschränkung bei den Assays der Pharyngealpumpung16.
6. Messungen der Zykluslänge
- Werte die Zykluslänge als die Zeit zwischen zwei aufeinanderfolgenden Ausscheidungen. Berechnen Sie, indem Sie die Endzeit eines Zyklus von der Endzeit des nächsten Zyklus subtrahieren, wie in Tabelle 1 und Gleichung 1 erklärt.
Zykluslänge (n) (in Sekunden) = Zeitausscheidung (n+1) - Zeitausscheidung (n) Gleichung 1
Zykluslänge (1st) = 66 s ((Zeitausscheidung 2 = 71 s) - (Zeitausscheidung 1 = 5 s)) - Für jeden Datensatz berechnen Sie den Mittelwert des Defäkationszyklus, die Standardabweichung (SD) und den Standardfehler des Mittelwerts (SEM) mit einer statistischen Analysesoftware.
7. Rhythmizität oder Regelmäßigkeit des Defäkationszyklus
- Der Variationskoeffizient (CV) wird verwendet, um die relative Variabilität zu beschreiben und erklärt, wie die Daten im Vergleich zum Mittelwert verteilt sind. Es wurde zuvor als Indikator für die Regelmäßigkeit des Defäkationszyklus bei C. elegans6 verwendet. Berechnen Sie den CV für jeden Wurm durch Anwendung von Gleichung 2.
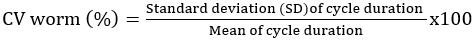 Gleichung 2
- Für jede C. elegans-Dehnung berechnen Sie den Mittelwert CV, die Standardabweichung (SD) und den Standardfehler des Mittelwerts (SEM) mit einer statistischen Analysesoftware.
8. Statistische Analyse
- Führen Sie Experimente in drei unabhängigen Replikaten durch, wobei pro Bedingung fünf Würmer analysiert werden. Bewerten Sie die Datennormalität mit dem Shapiro-Wilk-Test (α=0,05), der für n < 50 empfohlen wird.
- Da die Zykluslängenmessungen keiner Normalverteilung folgten, wurde die Analyse mit dem nichtparametrischen Mann-Whitney-Test durchgeführt, der gut geeignet ist, Unterschiede in Mediangrößen bei kleinen Stichprobengrößen zu erkennen. Umgekehrt sind CV-(%) Daten normalverteilt; analysieren Sie sie mit einem ungepaarten t-Test und Welchs Korrektur, um ungleiche Varianzen zu berücksichtigen.
- Führen Sie alle statistischen Analysen mit einer Analysesoftware durch. Für Experimente mit mehr als zwei Stämmen wenden Sie einen alternativen Test an, wie z. B. Einweg-ANOVA, mit kontinuierlicher Überprüfung der Probenverteilung.
Ergebnisse
Der beschriebene videobasierte Test wurde im C. elegans RAC1/CED-10-Modell der frühen PD eingesetzt, um die darmbewegliche Beweglichkeit quantitativ zu beurteilen. Angesichts der Entwicklungsverzögerung der RAC1/CED-10-Mutanten wurden synchronisierte Populationen angepasst, um stufengleiche Vergleiche mit Wildtyp-Kontrollen sicherzustellen. Einzelne Würmer wurden im L4-Stadium registriert, und 15 aufeinanderfolgende Defäkationszyklen wurden analysiert, um Zykluslänge und Regelmäßigkeit zu bestimmen. Dieser Ansatz ermöglicht eine genaue, hochauflösende Messung der Darmmotorik und ermöglicht die Erkennung subtiler nicht-motorischer Veränderungen früher PD-Phänotypen bei C. elegans.
Entwicklungsverzögerung bei RAC1/CED-10-Tieren für synchronisierte Experimente
Angesichts der beobachteten Entwicklungsverzögerung bei C. elegans RAC1/CED-10 Mutant6 erfordern parallel durchgeführte Synchronisationsexperimente mit Wildtyp-Tieren eine zeitliche Anpassung. Um diese Verzögerung auszugleichen und während der Videoaufnahme stufengleiche Vergleiche zu gewährleisten, wurden RAC1/CED-10-Tiere am selben Tag 6 Stunden früher als Wildtyp-Kontrollen verpflanzt.
RAC1/CED-10-Würmer zur Untersuchung von Defäkationsänderungen im Zusammenhang mit Parkinson-Krankheit
Verstopfung kann bereits zwei Jahrzehnte vor der Diagnose der motorischen PD festgestellt werden, was sie zu einem der ersten erkennbaren Anzeichen für den Beginn der Krankheitmacht. Wir haben zuvor gezeigt, dass das RAC1/CED-10-Modell nicht-motorische Veränderungen im L4-Entwicklungsstadium aufweist, also vor Beginn der Neurodegeneration6, und eine veränderte Darmmotilität ist eine davon. Wie im Protokoll beschrieben, wurden einzelne Würmer im L4-Stadium registriert. Abbildung 3 zeigt einen repräsentativen RAC1/CED-10-Wurm.
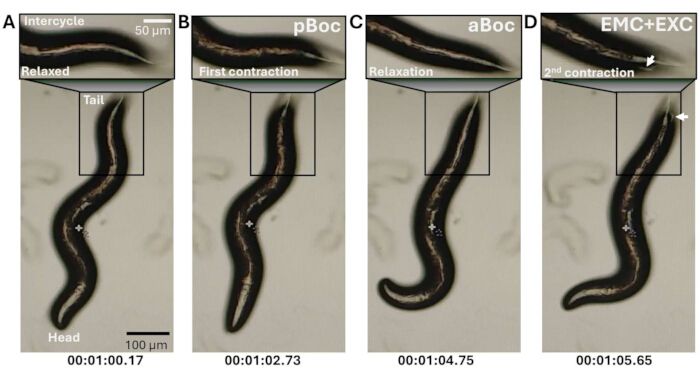
Abbildung 3: Defäkationszyklus von C. elegans in Bildern von RAC1/CED-10 mutierten Tieren. Defäkationszyklus bei RAC1/CED-10-Mutanten auf Bildern. Die Würmer sind kopfüber ausgerichtet. Die Schwanzregionen, die in horizontalen Kästchen hervorgehoben sind, zeigen die Abfolge der Defäkationsmotorschritte, wie in6 beschrieben und in Abbildung 2 schematisiert: (A) entspannter vorderer Trakt, (B) Kontraktion des hinteren Körpers (pBoc), (C) Kontraktion des vorderen Körpers (aBoc) und (D) enterische Muskelkontraktion mit Ausstoßung (EMC+EXC). Die Zyklusdauer ist unten angegeben. Pfeile markieren ausgestoßenes Material. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Die zwei Parameter zur Analyse der Darmmotilität sind Zykluslänge undZyklusregularität 13. Zuerst maßen wir 15 Zyklen jedes Wurms, dargestellt in Abbildung 4.
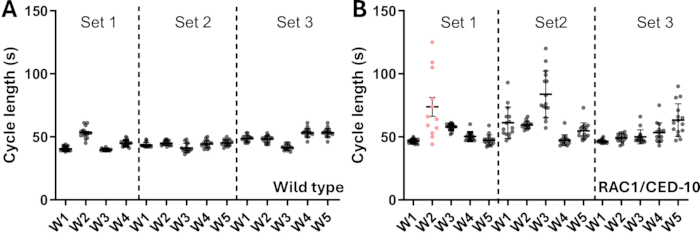
Abbildung 4: Zyklusdauer von Wildtypen (A) und RAC1/CED-10-Individuen (B). Menge 1, 2 und 3 zeigt unabhängige Replikationen an. Jeder Punkt steht für einen Defäkationszyklus, und es gibt 15 Zyklen pro Wurm. Pink W2 in B wurde für weitere Analysen verworfen, da es keine 15 Zyklen abschloss. W = Wurm. In dieser Abbildung wurde keine statistische Analyse durchgeführt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Einzelne Würmer wurden mit W (W1, W2 usw.) über die verschiedenen experimentellen Replikate verteilt (Set = 1, 2, 3). Für jeden Wurm (W) wurden 15 Messungen innerhalb von 15 Minuten durchgeführt. In der ersten Experimentreihe mit Wildtyp-Tieren (Abbildung 4A, Set 1) wurde ein Wurm ausgeschlossen, weil es sich um einen jungen Erwachsenen und nicht um einen L4 handelte. Im Fall von RAC1/CED-10 wurde ein Wurm verworfen, weil er nach der Datenverarbeitung nicht innerhalb von 15 Minuten 15 Zyklen absolvierte. Deshalb empfehlen wir, die Uhranwendung zu verwenden, um zu wissen, wie viele Zyklen abgeschlossen wurden, da RAC1/CED-10-Würmer ziemlich unregelmäßig waren.
Basierend auf diesen individuellen Werten wurden der Mittelwert und die Standardabweichung der Zykluslänge für Wildtypwürmer und RAC1/CED-10-Mutanten berechnet (Tabelle 1 und Abbildung 5). Wiezuvor veröffentlicht, zeigen RAC1/CED-10-Würmer längere und weniger regelmäßige Zyklen als Wildtypwürmer. Wildtyp-Würmer zeigen kürzere Zyklen (46 s ± 5 s) als RAC1/CED-10-Mutanten (55 s ± 12 s).
Tabelle 1: Repräsentativer Datensatz der Ausscheidungszyklusmessungen für einzelne Würmer. Die Tabelle fasst repräsentative Daten zusammen, die von drei Tieren gesammelt wurden. Für jeden Wurm enthält der Datensatz die Videodatei-Identifikator, Körpergröße (μm), Zeitpunkte (in s), die einzelnen Ausscheidungsereignissen entsprechen, die berechneten Zykluslängen über 15 aufeinanderfolgende Zyklen und die gesamte Aufzeichnungsdauer. Die Zykluslänge wurde ermittelt, indem aufeinanderfolgende Ausscheidungszeitpunkte subtrahiert wurden (z. B. betrug bei Wurm VID_154028 die erste Zykluslänge 66 Sekunden, berechnet als 71–5 Sekunden). Die übrigen Einträge veranschaulichen ähnliche Messungen für zwei weitere Würmer und bieten Beispiele für typische Variabilität innerhalb des Datensatzes. Bitte klicken Sie hier, um diese Tabelle herunterzuladen.
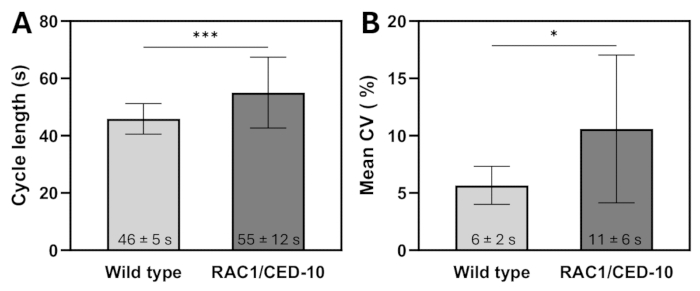
Abbildung 5: Parameter des Defäkationszyklus. (A) Länge des Defäkationszyklus und (B) Mittlerer CV von Wildtyp- und RAC1/CED-10-Würmern. Die Daten stellen den Mittelwert ± SD dar. N=3 n=5. Für die Defäkationszykluslänge wurde ein nichtparametrischer Mann-Whitney-Test angewendet. Ein ungepaarter t-Test mit Welchs Korrektur wurde für die mittleren CV-Daten angewendet. p < 0,001 * p < 0,05. Siehe Schritt 8 für Informationen zur statistischen Analyse. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Die Zyklusregularität wird mit dem mittleren Variationskoeffizienten (CV) berechnet, der den Mittelwert der Variationskoeffizienten für jeden Wurm imExperiment 18 darstellt. Abbildung 5B zeigt eine größere Variabilität bei RAC1/CED-10 mutierten Tieren im Vergleich zu Wildtyp-Tieren. Der mittlere CV liegt bei Wildtypen bei 6 % ± 2 %, verglichen mit 11 % ± 6 % bei RAC1/CED-10-Mutanten.
Ergänzende Tabelle 1: Vorlage zur Berechnung der Defäkationszykluslänge in Caenorhabditis elegans. Benutzer sollten den Namen jeder Wurmdatei in die erste Spalte eingeben und optional die Körperlänge des Wurms notieren. Die Zeit (in s), die jedem Ausscheidungsereignis entspricht (Ausscheidung 1-16), wird dann fortlaufend eingegeben, wie sie aus der Videowiedergabe bestimmt wird. Die Vorlage berechnet automatisch das Intervall zwischen aufeinanderfolgenden Ausscheidungen (Zeitausscheidung N – Zeitausscheidung N-1) und stellt die Länge des Defäkationszyklus dar. Sobald 16 Ausscheidungsereignisse eingetragen wurden, wird die Gesamtzeit für den Abschluss von fünfzehn vollen Zyklen automatisch berechnet und in der Zelle Gesamtzeit (mm:ss) angezeigt. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
C. elegans als leistungsstarkes Modell zur Untersuchung von prodromaler PD
Während sich die meisten neurodegenerativen Krankheitsmodelle auf Pathologie19 im späten Stadium konzentrieren, bleibt die Untersuchung des frühen Krankheitsbeginns technisch herausfordernd. Traditionelle Säugetiermodelle wie Mäuse, Ratten oder Primaten sind durch lange Lebenszyklen und hohe Kosten eingeschränkt. Der mikroskopisch kleine Nematode C. elegans überwindet diese Einschränkungen mit seiner Lebensspanne von drei Wochen, seinem dreitägigen Fortpflanzungszyklus und seiner genetischen Bewältigbarkeit – was ihn zu einem idealen System für effiziente, groß angelegte Studien zur Neurodegeneration6 macht.
Der Mutant C. elegans RAC1/CED-10 bietet drei wichtige Vorteile zur Untersuchung der frühen PD-Pathogenese. Erstens ermöglicht seine präzise zeitliche Auflösung, neurodegenerative Ereignisse über wohldefinierteEntwicklungsstadien hinweg zu verfolgen. Zweitens bietet das Modell außergewöhnliche experimentelle Vielseitigkeit durch genetische Behandlungsfähigkeit, geringe Wartungsanforderungen und hohe Durchsatzkompatibilität 6,7. Drittens bietet C. elegans keinen endogenen α-Synuklein-Homolog, einschließlich des RAC-1/CED-10-Modells, einen wertvollen Vorteil. Forscher können präklinische PD-Mechanismen ohne α-Synuklein-Interferenz untersuchen, was fortgeschrittenere Stadien6 markiert. Dies positioniert das Modell als hervorragendes Werkzeug zur Untersuchung initialer pathogener Ereignisse und zur späteren Integration der α-Synuklein-Expression zur Untersuchung fortgeschrittener Pathogenese. Schließlich stellt die evolutionäre Konservierung der Homologie von CED-10 mit menschlichem RAC1 direkte translationale Relevanz10,20 sicher.
Das hier beschriebene C. elegans-Modell eignet sich hervorragend für pharmakologische Tests17,21. Da RAC-1/CED-10-Mutanten eine Entwicklungsverzögerung aufweisen, ist eine Blendung im Anfangsschritt nicht möglich, da ihre Identität im Vergleich zum Wildtyp nicht verborgen werden kann. Bei pharmakologischen Screenings kann jedoch eine Verzerrung minimiert werden, indem ein doppelblindes Design gewählt wird, bei dem der Experimentator, der die Daten sammelt, und die Prüferin alle experimentellen Variablen nicht kennen.
Verstopfung betrifft fast alle PD-Patienten während der Prodromalphase und geht oft motorischen Symptomen5 voraus. C. elegans bietet einzigartige Vorteile bei der Untersuchung dieser frühen gastrointestinalen Dysfunktion. Im Gegensatz zu Säugetiermodellen, die invasive Interventionen erfordern, ermöglichen die Transparenz und Einfachheit des Nematoden eine nicht-invasive, Echtzeit-Beobachtung seines stark stereotypen Defäkationsmotorprogramms – ein Merkmal, das entscheidend für die Quantifizierung von Darmmotilitätsdefekten ist. Der kurze Lebenszyklus und die präzise Rhythmik der C. elegans-Defäkation ermöglichen eine schnelle und reproduzierbare Analyse funktioneller Beeinträchtigungen. Bei RAC1/CED-10-Mutanten spiegeln Abweichungen im Defäkationszeitpunkt verstopfungsähnliche Phänotypen wider, die bei prodromaler PD6 beobachtet wurden. Diese Ergebnisse bieten einen grundlegenden Rahmen für spätere Validierung bei komplexen Säugetieren (z. B. Mäusen, Primaten) und verbinden RAC1-Signale direkt mit enterischer Dysfunktion.
Über seine mechanistische Relevanz hinaus bietet das RAC1/CED-10-Modell auch translationalen Nutzen. Der Defäkationstest ist einfach, reproduzierbar und skalierbar, was ihn für Medikamententests im Frühstadium geeignet macht. Verbindungen, die den Zykluszeitpunkt oder die Regelmäßigkeit normalisieren, können schnell für Tests in Säugetiermodellen priorisiert werden und so einen kosteneffizienten Filter für therapeutische Kandidaten bieten. Da gastrointestinale Funktionsstörungen bei mehreren neurodegenerativen Erkrankungen häufig auftreten4, kann dieser Test auch über PD hinaus angewendet werden und dient sowohl als Entdeckungsinstrument als auch als translationale Brücke zur präklinischen Forschung.
Kritische Schritte im Protokoll
Wir präsentieren eine verfeinerte Methodik zur Untersuchung der Darmdysmotilität bei RAC1/CED-10-Mutanten, einem wichtigen nicht-motorischen Phänotyp, der für prodromale PD relevant ist. Obwohl es auf den etablierten Defäkationstests18,22 basiert, adressiert dieses Protokoll einzigartige Herausforderungen, die RAC1/CED-10-Mutanten stellen, um robuste und reproduzierbare Ergebnisse sicherzustellen.
Die wichtigsten Anpassungen für RAC1/CED-10-Mutanten sind wie folgt:
Synchronisationsanpassungen: RAC1/CED-10-Mutanten zeigen eine reduzierte Fruchtbarkeit im Vergleich zu Wildtyp-Stämmen (persönliche Beobachtung). Um den geringeren Nachkommenertrag auszugleichen, wenden Sie während der Synchronisation folgende Anpassungen vor: Plattenstück-Methode – verwenden Sie ein größeres Inokulum, etwa das Doppelte des Volumens von Wildtypstämmen, um eine erhöhte Entwicklungsvariabilität auszugleichen. Schwangere Erwachsenenmethode – Transfer von 15–20 Erwachsenen (statt Standard-10), um eine ausreichende Anzahl von Embryonen für weitere Experimente sicherzustellen.
Bleichmittelsensitivität: Embryonen von RAC1/CED-10-Mutanten zeigen eine erhöhte Sensitivität gegenüber der Behandlung mit Hypochlorit. Um Schäden zu minimieren, sollten Sie die Bleichmittelexpositionszeit im Vergleich zu Wildtyp-Protokollen um 20 % bis 30 % reduzieren und nach der Behandlung die Integrität des Embryos mikroskopisch überprüfen.
Überlegungen zur Entwicklungsverzögerung: RAC1/CED-10-Mutanten reifen langsamer als Wildtypwürmer10. Um eine korrekte Synchronisation bei Aufnahmen zu erreichen, beginnen Sie mit Videoanalysen mit Wildtypwürmern, um eine zeitliche Referenz zu etablieren, und dokumentieren Mutanten in übereinstimmenden morphologischen Stadien (z. B. Vulvalmorphologie) statt nach chronologischem Alter.
Workflow-Begründung: Die Durchführung von Erstexperimenten mit Wildtyp-C. elegans kontrolliert die Umweltvariabilität und bietet eine Referenz für normale Defäkationsrhythmen. Aufgrund von Entwicklungsverzögerungen bei RAC1/CED-10-10-Mutanten sollten die Aufnahmepläne so angepasst werden, dass sie stufenangepasste (statt streng altersangepasste) Vergleiche priorisieren.
Stammspezifische Timing-Überlegungen: Entwicklungsverzögerungen bei Mutanten erfordern flexible experimentelle Zeitpläne, wobei der Schwerpunkt auf der Angleichung der Entwicklungsstadien über Genotypen hinweg liegt, anstatt sich ausschließlich auf das chronologische Alter zu verlassen.
Einschränkungen des Nematodenmodells
Obwohl C. elegans nicht über die anatomische Komplexität und Signalwegredundanz von Säugetiersystemen verfügt – eine Einschränkung für einige translationale Studien –, ist seine Einfachheit vorteilhaft, um diskrete biologische Funktionen zu untersuchen. Der Fokus auf die Darmmotilität nutzt diese Stärke, da die schlanke Physiologie des Nematoden eine präzise Analyse spezifischer funktioneller Parameter ermöglicht. Obwohl komplementäre Säugetierstudien für die therapeutische Validierung notwendig sind, bietet C. elegans eine außergewöhnliche Plattform für die mechanistische Untersuchung konservierter biologischer Prozesse21,23.
Unser Modell fehlt außerdem endogenes α-Synuklein, was für die Untersuchung früher, präklinischer Parkinson-Störung (Parkinson-Krankheit) vorteilhaft ist, einem Stadium, in dem Verstopfung als prodromales Symptom3 auftreten kann. Die Länge des Defäkationszyklus bietet eine objektive, hohe Durchsatzmessung, spiegelt jedoch nur einen Aspekt der gastrointestinalen Dysfunktion wider und ist nicht krankheitsspezifisch.
Obwohl dieser Test keine progressive α-Synuklein-Aggregation, komplexe Neurodegeneration oder altersbedingte systemische Pathologie, wie sie beim menschlichen PD5 beobachtet wird, beobachten wir eine veränderte dopaminerge und GABAerge Funktion sowie gestörte Rac1-Signalübertragung6, was die mechanistische Relevanz dieses Modells unterstreicht. Daher bleibt es wertvoll für die Analyse früher, PD-bezogener neuro-gastrointestinaler Mechanismen und konservierter Signalwege.
Offenlegungen
Die Autoren haben nichts offenzulegen.
Danksagungen
A.M.J. würdigt das Ph.D.-Stipendium (FPU18/05190) im Rahmen der Biotechnologie-Promotion an der Universitat Autònoma de Barcelona. AL und AMJ erkennen die Finanzierung PID2021-122645OB-100 und PID2024-1576370B-100 durch MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa" an; das "Severo Ochoa"-Programm für Exzellenzzentren in F&E CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446 sowie das Forschungs- und Innovationsprogramm Horizon Europe der Europäischen Union im Rahmen der Fördervereinbarung Nr. 101057527 (NextGEM). EDC erkennt die Unterstützung durch den APR-2024-Zuschuss (PMI24006) an, der von der Fundació d'Estudis Superiors en Ciències de la Salut (FESS) und dem Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC) gefördert wird.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 12 Brunnen-Mehrbrunnenplatten, behandelt, steril | LabBox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | Vorbereitung von NGM-Platten |
| Bactopepton | VWR | 90000-264 | Vorbereitung von NGM-Platten |
| Bleach | Jeder Haushalt | Für den Bleichprozess | |
| CaCl2 | Labkem | CACH-02P-1K0 | Vorbereitung von NGM-Platten |
| Zentrifuge Sorvall ST8 | Sorvall | 15194923 | |
| Cholesterin | Sigma-Aldrich | C8667-25G | Vorbereitung von NGM-Platten |
| Uhr | Fenster | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Ethanol | Panreac | 131086.1214 | Vorbereitung von NGM-Platten |
| Inkubator 20 & Grad; C | Ecogen | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | Zur Vorbereitung des M9-Puffers |
| KPO4 | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4; Vorbereitung von NGM-Platten |
| MgSO4 | Sigma-Aldrich | M7506 | NGM-Platten vorzubereiten; Zur Vorbereitung des M9-Puffers |
| Mikroskop | Olympus | Olympus BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | Zur Vorbereitung des M9-Puffers |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | Zur Vorbereitung des M9-Puffers |
| NaCl | Sigma-Aldrich | S5886 | NGM-Platten vorzubereiten; Zur Vorbereitung des M9-Puffers; LB |
| NaOH | Sigma-Aldrich | 567530 | Für den Bleichprozess; LB |
| Schnittwerkzeug in Windows | Fenster | v 11.2504.42.0 | |
| Trypton | CONDA | 1612 | LB |
| Hefeextrakt | CONDA | 1702 | LB |
Referenzen
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Nachdrucke und Genehmigungen
