In dieser Studie wird ein Protokoll zur Bewertung der Auswirkungen von Curcumin auf das Zellverhalten von Retinoblastomen durch Modulation des Wnt/β-Catenin-Signalwegs und der miR-22-Expression vorgestellt.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Forschungsartikel
miR-22-vermittelte Regulation des Wnt/β-Catenin-Signalwegs durch Curcumin beim Retinoblastom
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Das Retinoblastom (RB) ist ein häufiger intraokularer bösartiger Tumor, der Säuglinge und Kinder betrifft, dessen genaue Ätiologie und Pathogenese jedoch noch nicht vollständig verstanden sind. Curcumin, ein bioaktives Polyphenol, hemmt das Fortschreiten des Tumors durch microRNA-vermittelte Modulation der Wnt/β-Catenin-Signalkaskade. Ziel dieser Studie war es zu klären, wie Curcumin seine Antitumorwirkung bei RB vermittelt, indem die Regulation der miRNA-22 (miR-22)-Expression und die zugrunde liegenden molekularen Mechanismen untersucht wurden. Zwei validierte Retinoblastommodelle (SO-RB50/WERI-Rb-1) wurden mit Curcumin in unterschiedlichen Konzentrationen behandelt. Um die Regulation des Wnt/β-Catenin-Signalwegs durch miR-22 zu beschreiben, wurden die Zielzellen entweder mit einem miR-22-imitierten Lentivirus oder einem nicht-funktionellen Kontroll-Lentivirus transduziert. Xenotransplantat-Tumormodelle wurden an Mäusen unter Verwendung menschlicher RB-Zellen etabliert, um die in vivo Auswirkungen von Curcumin auf die Tumorgröße, die miR-22-Expression und die Wnt/β-Catenin-Proteinspiegel zu beobachten. Zelluläre Proliferation, Invasion und Apoptose wurden mit dem CCK-8-, Transwell- bzw. Annexin V-APC-PI-Dual-Färbeassay bewertet. Die miR-22-Spiegel wurden mittels RT-PCR quantifiziert, und die Wnt1- und β-Catenin-Expressionsprofile wurden durch Western-Blot-Analyse bestimmt. Die Behandlung mit Curcumin führte zu einer verminderten Proliferation und Invasivität in RB-Zellen, während sie die Apoptose verbesserte und die miR-22-Expression erhöhte. Die Hemmung von miR-22 verringerte die Wirkung von Curcumin auf den Wnt/β-Catenin-Signalweg. In Xenotransplantat-Studien reduzierte Curcumin die Tumorgröße signifikant und erhöhte die miR-22-Expression in den Tumoren, wodurch die Wnt/β-Catenin-Signalgebung effektiv unterdrückt wurde. Diese Ergebnisse zeigen, dass Curcumin die Proliferation und Invasivität von RB-Zellen hemmt und gleichzeitig die Apoptose fördert, die hauptsächlich durch die Hochregulierung von miR-22 und die anschließende Hemmung des Wnt/β-Catenin-Signalwegs vermittelt wird.
Einleitung
Das Retinoblastom (RB), eine pädiatrische Malignerkrankung mit hoher Aggressivität, die im Netzhautgewebe auftritt, stellt eine erhebliche Gesundheitsbedrohung dar, insbesondere für Kinder unter fünf Jahren. Genetische Mutationen, insbesondere solche, die das RB1-Gen betreffen, sind eng mit der Entwicklung dieser Krankheitverbunden 1. In Anbetracht der signifikanten Prävalenz des Retinoblastoms (RB) bei Säuglingen und Kindern und der Tatsache, dass jährlich etwa 9000 neue Fälle gemeldet werden, vor allem in einkommensschwachen Ländern und Entwicklungsländern, ist ein umfassendes Verständnis der Krankheitsmechanismen unerlässlich, um wirksame therapeutische Strategien zu entwickeln und die Patientenergebnisse zu verbessern2. Im Laufe der Jahre konzentrierte sich die Forschung an RB hauptsächlich auf genomische Veränderungen, insbesondere in der miRNA-Expression3. Sicherlich haben sich miR-34a und miR-22 als wichtige Akteure bei der Tumorgenese von RB 4,5 herausgestellt. Unter diesen miRNAs hat miR-22 seine Beteiligung an der Tumorgenese bei verschiedenen Krebsarten nachgewiesen 6,7,8 und beeinflusst die Proliferation, Invasion und Migration 6,9. Darüber hinaus haben frühere Forschungen auf eine verminderte miR-22-Expression sowohl in Maus- als auch in menschlichen RB-Zelllinien hingewiesen, was seine potenzielle Rolle bei dieser Krankheit weiter unterstreicht10.
Curcumin, ein bioaktives Curcuminoid in Curcuma longa-Rhizomen, ist ein grundlegender Bestandteil der traditionellen Medizin und der asiatischen Küche11. Sein reichhaltiges pharmakologisches Profil, das antitumorale, antimikrobielle, entzündungshemmende, antioxidative und neuroprotektive Wirkungen umfasst, hat in der biomedizinischen Forschung große Aufmerksamkeit erregt 12,13,14. Zahlreiche Studien haben seine Rolle als Antitumor bei RB untersucht und seinen Einfluss auf verschiedene Signalwege hervorgehoben, darunter NF-κB15, JAK/STAT16 und MRP117. Im Vergleich zu diesen zuvor untersuchten Signalwegen könnte die Curcumin-miR-22/Wnt/β-Catenin-Achse einen gezielteren und spezifischeren Ansatz bieten, der möglicherweise die therapeutische Wirksamkeit verbessert und Off-Target-Effekte reduziert.
Frühere Studien haben gezeigt, dass Curcumin Antitumorwirkungen erzielt, indem es die Achse des TET1/Wnt/β-Catenin-Signalwegs in hepatozellulären Karzinomen18 und Dickdarmkrebszellen19 moduliert. Ob Curcumin die Tumorprogression in RB-Zellen unterdrücken kann, indem es den Wnt/β-Catenin-Signalweg beeinflusst, ist jedoch unbekannt. Jüngste Studien haben über eine verminderte miR-22-Expression in Retinoblastomzellen und oralen Plattenepithelkarzinomen berichtet, die mit Veränderungen der Aktivität des Wnt/β-Catenin-Signalwegs verbunden sind20,21. Unter Berücksichtigung der praktischen Anwendbarkeit zeigt Curcumin eine wirksame Antitumoraktivität innerhalb eines definierten Konzentrationsbereichs (10-40 μM in vitro)15,22 und kann in vivo mit überschaubaren pharmakokinetischen Eigenschaften verabreicht werden, was die translationale Forschung erleichtert. Daher zielt diese Studie darauf ab, ein RB-Modell zu etablieren, um zu untersuchen, ob Curcumin die miR-22-Spiegel erhöht und anschließend die Wnt/β-Catenin-Signalaktivität verringert, was eine potenziell effizientere und klinisch relevantere therapeutische Strategie im Vergleich zu herkömmlichen NF-κB-, JAK/STAT- oder MRP1-Modulationsansätzen bietet.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
Alle Eingriffe mit Tieren wurden vom Animal Ethics and Welfare Committee (AEWC) des Tianjin Eye Hospital überprüft und genehmigt (Zulassungs-Nr. NKYY-DWLL-2023-054). Die verwendeten Reagenzien und die verwendeten Geräte sind in der Materialtabelle aufgeführt.
1. Zellkultur
Zellen der humanen Retinoblastomlinien WERI-Rb-1 und SO-RB50 wurden in Dulbeccos modifiziertem Eagle-Medium mit hohem Glukosegehalt kultiviert, das mit 10 % fötalem Rinderserum und 1 % Penicillin-Streptomycin ergänzt wurde. Die Zellen wurden mit einer geeigneten Dichte in Kulturflaschen ausgesät und bei 37 °C in einer befeuchteten Atmosphäre, die %CO2 enthielt, aufbewahrt. Das Medium wurde alle 2-3 Tage ausgetauscht und die Zellen wurden bei 70%-80% Konfluenz unter Verwendung der Standardtrypsinisierung passageiert.
2. Tierversuche
Insgesamt wurden 48 spezifisch pathogenfreie Balb/c-Nacktmäuse (4 Wochen alt, 16-18 g) verwendet. Die Tiere wurden in sterilen, individuell belüfteten Käfigen unter laminarer Luftströmung mit kontrollierten Umgebungsbedingungen von 26-28 °C und 40 % bis 60 % relativer Luftfeuchtigkeit untergebracht. Futter, Wasser und Einstreu wurden vor der Verwendung sterilisiert. Die Mäuse erhielten freien Zugang zu Futter und Wasser und wurden vor den Experimenten eine Woche lang akklimatisiert.
3. Gruppierung und Behandlung von Tieren
Für die Tumorinokulation wurden WERI-Rb-1- und SO-RB50-Zellen verwendet, die stabil mit einer miR-22-Imitation oder einer negativen Kontrollsequenz transfiziert wurden. Zellen in logarithmischer Wachstumsphase wurden geerntet, in steriler phosphatgepufferter Kochsalzlösung resuspendiert und auf eine Dichte von 5 × 10⁷ Zellen/ml eingestellt. Jeder Maus wurden 0,1 ml der Suspension subkutan in die rechte Vordergliedmaße injiziert. Die Mäuse wurden nach dem Zufallsprinzip in sechs Gruppen eingeteilt (n = 6 pro Gruppe): Modellgruppe, Curcumin-Gruppe, miR-22-mimische Gruppe, miR-22-mimische + Curcumin-Gruppe, miR-22-negative Kontrollgruppe und miR-22-negative Kontrolle + Curcumin-Gruppe. In Gruppen, die Curcumin erhielten, erhielten Mäuse intraperitoneale Injektionen von 15 mg/kg Curcumin einmal täglich, beginnend unmittelbar nach der Inokulation der Tumorzellen. Die übrigen Gruppen erhielten die gleichen Mengen DMSO wie die Fahrzeugsteuerung.
4. Messung des Tumorgewichts und -volumens
Die Tumoraufnahmerate lag bei xenotransplantierten Nacktmäusen bei etwa 80%-90%. Die Tumorgröße wurde wöchentlich mit einem digitalen Messschieber gemessen, wobei der längste Durchmesser als Länge (L) und der kürzeste Durchmesser als Breite (W) aufgezeichnet wurde. Das Tumorvolumen wurde mit der Formel V = (L × W2)/2 berechnet. Mäuse wurden regelmäßig auf Tumorwachstum und Gesundheitszustand überwacht, und humane Endpunkte wurden angewendet, wenn die Tumore eine Körpergröße von mehr als 1.500 mm3 erreichten oder wenn die Tiere Anzeichen von Stress oder Gewichtsverlust zeigten. Am Ende von Woche 4 wurden die Mäuse durch CO2 -Inhalation euthanasiert, gefolgt von einer Gebärmutterhalsluxation, um den Tod zu gewährleisten. Die Tumore wurden unmittelbar nach der Entnahme präpariert und gewogen.
5. microRNA-Transfektion
Für die Transfektion wurden synthetische Oligonukleotide verwendet, darunter die miR-22-Mimimi, die Negativkontrolle, die Anti-miR-22 (20-Methoxy-modifiziert), die Anti-miR-Negativkontrolle, Wnt1-spezifische siRNAs und die Kontroll-siRNA. Zellen mit einer Konfluenz von 70 % bis 80 % wurden einen Tag vor der Transfektion in 6-Well-Platten ausgesät. Die Transfektion wurde mit einem Reagenz auf Lipidbasis gemäß den Anweisungen des Herstellers durchgeführt. Für jede Vertiefung wurden die Nukleinsäuren in serumfreiem Medium verdünnt und mit dem Transfektionsreagenz im empfohlenen Verhältnis zu Komplexen kombiniert, die 15-20 Minuten bei Raumtemperatur inkubiert wurden, bevor sie tropfenweise den Zellen im vollständigen Medium zugesetzt wurden. Das endgültige Volumen pro Vertiefung betrug 2 ml. Nach 6 h Inkubation bei 37 °C mit 5 % CO2 wurde das Medium durch frisches vollständiges Medium ersetzt. Die Zellen wurden vor nachfolgenden Assays 48 Stunden lang aufbewahrt. Die Transfektionseffizienz wurde mittels quantitativer real-time PCR bewertet. Drei verschiedene siRNAs, die auf Wnt1 abzielen (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGCTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCAACAA-3') wurden einzeln oder als äquimolare Mischung verwendet, um Off-Target-Effekte zu minimieren.
6. Zellzählkit-8 (CCK-8) Assay
Die Zellen wurden in 96-Well-Platten mit einer Dichte von 5 × 10³ Zellen pro Well in 100 μl vollständigem Medium ausgesät und über Nacht haften gelassen. Nach der Behandlung mit den angegebenen Konzentrationen von Curcumin für die angegebene Dauer wurden 10 μl CCK-8-Arbeitslösung direkt in jede Vertiefung gegeben. Vertiefungen, die nur Medium enthielten, dienten als Blindkontrollen. Die Platten wurden 4 h lang bei 37 °C mit 5 % CO2 inkubiert, danach wurde die Absorption bei 490 nm mit einem Mikroplatten-Reader gemessen. Die Zellviabilität wurde wie folgt berechnet:
Rentabilität (%) = 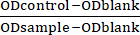 x 100
Es wurden Dosis-Wirkungs-Kurven erstellt und die halbmaximale Hemmkonzentration (IC50) von Curcumin entsprechend bestimmt.
7. Transwell-Assay
Für den Migrationsassay wurden die Zellen in serumfreiem Medium suspendiert und in die oberen Kammern der Transwell-Inserts (Porengröße 8 μm) bei 3 × 10⁵ Zellen in 200 μl pro Insert ausgesät. Die unteren Kammern wurden mit 600 μl vollständigem Medium gefüllt, das 10 % fötales Rinderserum als Chemoattraktor enthielt. Die Platten wurden bei 37 °C mit 5 % CO2 für 24 h inkubiert. Nach der Inkubation wurden nicht-migrierende Zellen auf der Oberseite der Membran vorsichtig mit einem sterilen Wattestäbchen entfernt. Die Einlagen wurden zweimal mit phosphatgepufferter Kochsalzlösung gespült, 30 min lang in 5 % Glutaraldehyd bei 4 °C fixiert, erneut gespült und 30 min lang bei Raumtemperatur mit 0,1 % Kristallviolett gefärbt. Überschüssiger Farbstoff wurde durch Waschen in PBS entfernt. Die Membranen wurden an der Luft trocknen gelassen und migrierte Zellen wurden unter einem inversen Mikroskop mit 400× Vergrößerung sichtbar gemacht. Zur Quantifizierung wurden drei zufällige Felder pro Insert abgebildet und die durchschnittliche Anzahl der Zellen berechnet.
8. Annexin V-APC-PI-Assay
Zellen aus jeder Gruppe wurden geerntet, zweimal mit vorgekühlter phosphatgepufferter Kochsalzlösung (PBS) gewaschen und bei 300 × g für 5 min bei 4 °C zentrifugiert. Das Pellet wurde in 300 μl 1× Bindungspuffer bei einer Dichte von etwa 1 × 10⁶ Zellen/ml resuspendiert. Annexin V-APC (5 μl) wurde zugegeben, und die Proben wurden 15 Minuten lang bei Raumtemperatur im Dunkeln inkubiert. Unmittelbar vor der Durchflusszytometrie wurden 5 μl Propidiumiodid zu 200 μl der Zellsuspension gegeben und 5 Minuten lang bei Raumtemperatur inkubiert. Die Proben wurden auf einem Durchflusszytometer unter Verwendung geeigneter Kanäle (APC und PI) analysiert, und die Daten wurden mit Standard-Gating-Strategien verarbeitet, um lebende, frühapoptotische, spätapoptotische und nekrotische Zellen zu unterscheiden.
9. qRT-PCR-Profilerstellung
Die Gesamt-RNA wurde mit einer Phenol-Chloroform-Methode extrahiert, und Konzentration und Reinheit wurden durch Ultraviolett-Spektrophotometrie bestimmt. Für die reverse Transkription wurde 1 μg Gesamt-RNA in einer 20 μL-Reaktion mit einem reversen Transkriptions-Mastermix gemäß dem Protokoll des Herstellers verwendet. Die quantitative PCR wurde in 20-μl-Reaktionen durchgeführt, die 2 μl cDNA, 10 μl SYBR Green Mastermix und 0,4 μM jedes Primers enthielten. Die Reaktionen wurden auf einem real-time PCR-System mit dem folgenden Zyklusprogramm durchgeführt: 95 °C für 1 min, gefolgt von 40 Zyklen mit 95 °C für 15 s und 63 °C für 25 s, mit Fluoreszenzerfassung am Ende jedes Zyklus. Es wurde eine Schmelzkurvenanalyse von 55 °C bis 95 °C durchgeführt, um die Produktspezifität zu überprüfen. Jede Probe wurde in dreifacher Ausfertigung analysiert, und die relative Expression wurde mit der 2-ΔΔCt-Methode quantifiziert. U6 diente als Referenzgen für die microRNA-Quantifizierung, und β-Aktin wurde für die mRNA-Normalisierung verwendet.
Die Primersequenzen waren wie folgt: U6: vorwärts 5'-CTCGCTTCGGCAGCACA-3', rückwärts 5'-AACGCTTCACGAATTTGCGT-3'; miR-22: vorwärts 5'-GCCTGAAGCTGCCAGTTGA-3', rückwärts 5'-GTGCAGGGTCGAGGT-3'; Wnt1: vorwärts 5'-CGATGGTGGGGGTATTGTGAAC-3', rückwärts 5'-CCGGATTTTGGCGTATCAGAC-3'; β-Aktin: vorwärts 5'-AGTGTGACGTGGACATCCGCAAAG-3', rückwärts 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. Die Amplifikationsdaten wurden mit Hilfe der Systemsoftware verarbeitet. Alle Primer wurden von einem kommerziellen Anbieter bezogen.
10. Westlicher Blot
Proteine wurden aus kultivierten Zellen oder Geweben unter Verwendung eines Lysepuffers extrahiert, der Proteaseinhibitoren enthielt, und die Proteinkonzentrationen wurden mit der Bicinchoninsäure-Methode bestimmt. Gleiche Mengen an Protein (40 μg pro Lane) wurden unter konstanter Spannung (80 V für das Stapeln von Gel und 120 V für das Auflösen von Gel) durch 10 % SDS-PAGE getrennt und mit einem Nasstransfersystem bei 100 V für 90 min auf Polyvinylidendifluoridmembranen übertragen. In 5 % Magermilch, die in Tris-gepufferter Kochsalzlösung mit 0,1 % Tween-20 (TBST) hergestellt wurde, wurden die Membranen 1 h lang bei Raumtemperatur blockiert. Primäre Antikörper gegen Wnt1, β-Catenin und β-Aktin wurden 1:1000 in TBST mit 1 % Magermilch verdünnt und mit den Membranen über Nacht bei 4 °C inkubiert. Nach dreimaligem Waschen mit TBST (je 10 min) wurden die Membranen mit einem Meerrettichperoxidase-konjugierten Sekundärantikörper (1:5000 Verdünnung) für 1 h bei Raumtemperatur inkubiert. Nach weiteren drei Waschungen mit TBST wurden die Proteinbanden mit einem verbesserten Reagenz zur Chemilumineszenzdetektion sichtbar gemacht und Signale mit einem digitalen Bildgebungssystem erfasst. Die Bandenintensitäten wurden mit der ImageJ-Software quantifiziert.
11. Luziferase-Assay
Es wurde ein Wildtyp-Reporterplasmid (Wnt1-WT) konstruiert, das die 3′UTR von Wnt1 mit vorhergesagten miR-22-Bindungsstellen enthält, und ein mutierter Reporter (Wnt1-MUT) mit gestörten Bindungsstellen. Humane Retinoblastomzellen wurden in 24-Well-Platten mit einer Dichte von 1 × 10⁵ Zellen pro Well ausgesät und entweder mit Wnt1-WT- oder Wnt1-MUT-Reporterplasmiden zusammen mit einer miR-22-Mimik- oder Negativkontrolle unter Verwendung eines lipidbasierten Transfektionsreagenzes co-transfiziert. Für jede Vertiefung wurden 500 ng Reporterplasmid und 50 nM miRNA-Nachahmung oder -Kontrolle verwendet. Nach 48 h Inkubation bei 37 °C mit 5 % CO2 wurden die Zellen in 100 μl passivem Lysepuffer lysiert. Die Luciferase-Aktivitäten von Firefly und Renilla wurden nacheinander mit einem Dual-Luciferase-Reporter-Assay-System gemäß dem Protokoll des Herstellers gemessen. Die Luciferase-Aktivität von Firefly wurde auf die Renilla-Luciferase-Aktivität normalisiert, um die Transfektionseffizienz zu kontrollieren. Jede Bedingung wurde in dreifachen Vertiefungen getestet und in drei unabhängigen biologischen Replikaten wiederholt.
12. Statistische Analyse
Alle Daten werden als Mittelwert ± Standardabweichung (SD) von mindestens drei unabhängigen biologischen Replikaten dargestellt. Die statistischen Analysen wurden mit Hilfe einer Statistiksoftware durchgeführt. Vergleiche zwischen mehreren Gruppen wurden durch eine Einweg-Varianzanalyse (ANOVA) durchgeführt, gefolgt von Tukeys Post-hoc-Test. Ein p-Wert von <0,05 wurde als statistisch signifikant angesehen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Dosisabhängige antiproliferative und anti-invasive Wirkungen von Curcumin auf humane Retinoblastomzellen, begleitet von einer Deaktivierung des Wnt/β-Catenin-Signalwegs
Humane RB-Zellen wurden über einen Zeitraum von 24 Stunden mit unterschiedlichen Curcumin-Dosen behandelt. Die Ergebnisse zeigten einen dosisabhängigen Rückgang der Zellviabilität und -invasion, gekoppelt mit einer Zunahme der Apoptose. Insbesondere mit zunehmender Curcuminkonzentration von 10 auf 50 μM nahm die Zellproliferation sowoh...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Curcumin, ein Polyphenol, das aus Curcuma longa-Rhizomen gewonnen wird, ist bekannt für seine entzündungshemmenden, antiangiogenen, antiproliferativen und antioxidativen Eigenschaften23,24. Darüber hinaus hat es antitumorale Eigenschaften, insbesondere seine Fähigkeit, Apoptose in bösartigen Zellen zu induzieren25. Obwohl frühere Forschungen die wachstumshemmende Wirkung von Curcumin auf RB-Zellen betont h...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren haben keine Interessenkonflikte anzugeben.
Danksagungen
Nationale Naturwissenschaftliche Stiftung Chinas (82271218); Tianjin Eye Hospital Science Fund (Allgemeines Projekt ykyb1908).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Annexin V-APC/PI Doppel-Färbeset | Solarbio GmbH | CA1020 | die Apoptose in RB-Zellen mittels Durchflusszytometrie quantitativ zu beurteilen |
| CCK-8 Assay-Kit | Beyotime | Nr. C0038 | Messung der Extinktion bei 490 nm zur Beurteilung der proliferativen Kapazität der Zellen |
| CO2 Inkubator | Eppendorf | Aufrechterhaltung optimaler Kulturbedingungen (37°; C, 5 % CO2 und gesättigte Luftfeuchtigkeit) für die Vermehrung von RB-Zellen | |
| Curcumin | Sigma | Nr. 1386 | Untersuchung der antitumoralen Wirkung von Curcumin auf das Retinoblastom (RB) |
| ECL chemilumineszierendes Substrat | Biografie | Nr. C05-07004 | Visualisierung von Proteinbanden in der Western-Blot-Analyse |
| Fötales Rinderserum (FBS) | VivaCell | C04001-500 C04002-500 | Zellkultur |
| Durchflusszytometrie | Beckman Coulter | Gallios | die Apoptoserate von Zellen quantitativ zu analysieren |
| ImageJ Software | Nationale Gesundheitsinstitute | Variante 6 | Western-Blot-Bandenanalyse, Beurteilung der Proteinexpressionsniveaus |
| Inverses Mikroskop | Olymp | CKX53 | Beobachten und zählen Sie invasive Zellen im 400-fachen Bereich; Vergrößerung im Transwell-Assay |
| Lipofectamin 3000 | Invitrogen | L3000015 | Zelltransfektion |
| Mikroplatten-Reader | Thermo | K3 | Quantifizierung des Enzyme-linked Immunosorbent Assay (ELISA) |
| miR-22 imitiert das Lentivirus | Hanheng Biotechnologie | has-miR-22 | Etablierung einer stabil transfizierten Zelllinie für Tierversuche |
| Multiplex-Real-Time-PCR-System | Bio-Rad | CFX384 | Durchführung einer quantitativen RT-PCR (qRT-PCR) für eine präzise Genexpressionsanalyse |
| Penicillin-Streptomycin (PS) | Abbkine | BMC1030 | Zugabe zu Zellkulturmedien, um eine bakterielle Kontamination zu verhindern |
| Protein-Extraktions-Kit | Solarbio GmbH | BC3640-50T | Proteinisolierung aus Zell- und Gewebeproben |
| psiCHECK-2 Vektor | Promega | JR20110328 | Konstruktion von Wnt1-WT (Wildtyp) und Wnt1-MUT (Mutante) Reporterplasmiden zur Untersuchung der Wechselwirkung zwischen miR-22 und Wnt1 3'UTR |
| PVDF-Membran | Merck | ISEQ00010 | Protein-Blotting |
| Kaninchen-IgG-Sekundärantikörper | Technologien zur Zellsignalisierung | 14708 | Western-Blot-Nachweis durch Bindung an den Primärantikörper |
| SPSS Statistiksoftware | IBM | SPSS 20.0 | Durchführung statistischer Analysen der experimentellen Daten |
| SuperScript III SuperMix-Kit für die Erststrangsynthese | Invitrogen | 11752-050 | reverse Transkription von RNA in cDNA für die anschließende RT-PCR-Analyse |
| SYBR Premix Ex Taq II Bausatz | TaKaRa Bio | RR820A | Für die RT-PCR zum quantitativen Nachweis der Expression von Wnt1, β-Aktin und anderen Zielgenen |
| TRIzol-Reagenz | Invitrogen | 12183-555 | RNA-Extraktion sowohl aus Zell- als auch aus Gewebeproben |
| UV-Spektralphotometer | Beckman | DU800 | Bestimmung der Konzentration und Reinheit von RNA-Proben |
| Wnt1 Antikörper | Abcam (Englisch) | AB15251 | Western-Blot-Analyse zum Nachweis der Wnt1-Proteinexpression |
| β-Aktin-Antikörper | Abcam (Englisch) | AB8227 | wird als interne Referenz zur Normalisierung der Proteinbeladung in der Western-Blot-Analyse verwendet |
| β-Catenin-Antikörper | Technologien zur Zellsignalisierung | 37447 | Western-Blot-Analyse zum Nachweis der β-Catenin-Proteinexpression |
Referenzen
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.