Dieses Protokoll stellt eine detaillierte Methode zur Isolierung hochwertiger Einzelzell-Suspensionen sowohl aus gesundem als auch tumortragendem Mauslungengewebe vor. Dieses Protokoll kann auf scRNA-Seq, Durchflusszytometrieanalyse und primäre Zellisolation angewendet werden.
Methodenartikel
Optimierte Vorbereitung von ganzem, tumortragendem Lungengewebe der Maus für Durchflusszytometrie und Einzelzell-RNA-Sequenzierung
In diesem Artikel
Zusammenfassung
Zusammenfassung
NSCLC ist für etwa 85 % der Lungenkrebserkrankungen verantwortlich, und das Kirsten-Rattensarkom (KRAS) ist das am häufigsten mutierte Gen in NSCLC. Obwohl das Management des NSCLC in den letzten Jahren deutlich weiterentwickelt hat, sind seine Heterogenität und Plastizität weiterhin unvollständig verstanden. Die Einzelzell-RNA-Sequenzierung (scRNA-seq) ist zu einem unverzichtbaren Werkzeug zur Analyse zellulärer Heterogenität in komplexen Geweben wie der Lunge geworden. Die Herstellung hochwertiger Einzelzell-Suspensionen aus tumortragendem Lungengewebe ist jedoch eine Herausforderung, insbesondere während der Tumorbildung, wenn das Gewebe fibrotisch und heterogen wird. Eine zentrale Voraussetzung für einen erfolgreichen scRNA-seq ist die Vorbereitung lebensfähiger Einzelzellen mit minimalem prozessbedingtem Stress oder Schaden. Hier wird ein detailliertes Schritt-für-Schritt-Protokoll zur Isolierung hochwertiger Einzelzell-Suspensionen sowohl aus gesundem als auch tumortragendem Mauslungengewebe in einemKras G12D vorgestellt; tdTomato Reporter Mausmodell. Das Verfahren umfasst Gewebeperfusion, kontrollierte enzymatische Verdauung, sanfte mechanische Dissoziation, rote Blutkörperchenlyse, Filtration und Vitalitätsbewertung und erreicht >85 % lebensfähige Zellen vor scRNA-seq. Schließlich werden die tdTomato+ -Tumorzellen effizient durch FACS isoliert und können mit scRNA-seq mit diesem Protokoll als eigenständige Cluster nachgewiesen werden.
Einleitung
Lungenkrebs ist weltweit eine der Hauptursachen krebsbedingter Todesfälle. Er lässt sich grob in zwei Hauptsubtypen einteilen: Kleinzelllungenkrebs (SCLC) und nicht-kleinzelliger Lungenkrebs (NSCLC)1. NSCLC macht etwa 85 % aller Lungenkrebsfälle aus, wobei Adenokarzinom das häufigste histologische Subtyp-2 ist. Obwohl sich die therapeutischen Strategien für NSCLC in den letzten Jahrzehnten erheblich verbessert haben, bleibt die Sterblichkeitsrate von Lungenkrebshoch. Chemotherapie und Immuntherapie sind die beiden Hauptbehandlungsmodalitäten in der klinischen Praxis; Viele Patienten erleben jedoch Arzneimittelresistenz oder sprechen nicht auf die Immuntherapie 4,5 an.
Das Tumormikromilieu (TME) spielt eine entscheidende Rolle bei Tumorinitiation, -progression und therapeutischer Resistenz6. Zunehmende Belege deuten darauf hin, dass sich die Zusammensetzung des TME im Laufe der Zeit dynamisch ändert 7,8. Antitumor-Immunzellen werden typischerweise während der frühen Stadien der Tumorentfremdung im TME angereichert, während immunsuppressive und krebsassoziierte Zellpopulationen mit der Entwicklung desTumors vorherrschen. Daher ist das Verständnis der Heterogenität und Plastizität des TME während des Fortschreitens von Lungenkrebs unerlässlich, um Krankheitsmechanismen aufzuklären und therapeutische Ergebnisse zu verbessern.
Die Einzelzell-RNA-Sequenzierung (scRNA-seq) ermöglicht eine hochauflösende Profilierung der Genexpression auf Zellebene und ermöglicht so eine umfassende Charakterisierung komplexer Gewebetranskriptome10. Diese Technik ist unverzichtbar geworden, um zelluläre Heterogenität zu untersuchen und Mechanismen zu identifizieren, die dem Tumorfortschritt und der Medikamentenresistenz beimLungenkrebs zugrunde liegen. Die Herstellung einer hochwertigen Einzelzellsuspension ist ein entscheidender Bestandteil eines erfolgreichen scRNA-seq, da Zellstress oder Schäden während der Dissoziation zu ungenauen Ergebnissen führen können12,13.
Dieses Protokoll ermöglicht die Sequenzierung von RNA aus allen Einzelzellen, die aus ganzen tumortragenden Lungen gereinigt werden, unabhängig von der Zellgröße und ohne jegliche lebende Zellsubpopulationen zu verwerfen. Viele frühere Studien haben eine Einzelzellsequenzierung tumortragender Lungen berichtet, die entweder auf Tumorzellen fokussierten und CD45+-Zellen14, 15, 16 verworfen oder sich auf Immunzellen oder andere spezifische Zelltypen17 konzentrierten und Tumorzellen verworfen hatten. Dieses Protokoll zielt darauf ab, alle Zelltypen effizient von ganzem, tumortragendem Mausgewebe zu dissoziieren, während gleichzeitig die Freisetzung bösartiger Zellen sichergestellt und die Lebensfähigkeit normaler Zellen erhalten bleibt. Durch die Einbeziehung aller lebenden Einzelzellen ermöglicht dieses Protokoll die Untersuchung aller relevanten Zelltypen im tumorführenden Lungenmikromilieu, einschließlich krebsassoziierter makrophagenähnlicher Zellen (CAMLs)18. Optionale Fluoreszenz-aktivierte Zellsortierung (FACS)-Schritte sind zur Qualitätskontrolle und Anreicherung spezifischer Zellpopulationen enthalten. Zusätzliche Hinweise werden für Antikörperfärbung, 4', 6-Diamidino-2-Phenylindol (DAPI)-Markierung und kurzfristige Fixierungsverfahren gegeben, wenn eine sofortige Sortierung nicht möglich ist.
Eine mögliche Einschränkung dieses Protokolls besteht darin, dass es für Lungengewebe mit Tumoren im Frühstadium und einer Tumorlast unter 40 % optimiert und validiert wurde. Bei Lungen mit höhergradigen Tumoren oder bei denen die Tumorbelastung über 50 % liegt, kann die Dissoziationseffizienz durch das Vorhandensein dichter stromaler Komponenten und umfangreiche Fibrose19,20 beeinträchtigt sein, die die vollständige Freisetzung bösartiger Zellen blockieren könnte.
Protokoll
Alle tierbezogenen Versuche wurden gemäß den Scripps Research Richtlinien für die Pflege und Nutzung von Tieren durchgeführt und vom Scripps Research Institutional Animal Care and Use Committee gemäß Protokoll #10-0019 genehmigt. Die KrasLSL-G12D/+; TdTomato+/- Mäuse wurden erzeugt, indem KrasLSL-G12D/+ Mäuse mit TdTomato Reporter-Mäusen gekreuzt wurden. Neun oder zehn Wochen alter KrasLSL-G12D/+; TdTomato+/- Mäuse wurden als Lungenkrebsmodelle verwendet. Sie sind intratracheal mit dem Lentivirus infiziert, das Cre-Rekombinase exprimiert, mit einem viralen Titer von 5 × 10 5 plaquebildenden Einheiten pro Maus. Tumortragende Lungengewebe wurden nach 25 Wochen entnommen. Mögliche Verdauungsprobleme und Fehlerbehebung sind in ergänzender Tabelle 1 aufgeführt. Die Reagenzien und die verwendeten Geräte sind in der Materialtabelle aufgeführt.
1. Vorbereitung von Puffern
- DMEM/F12 Medium: Bereite 2% (v/v) hitzeinaktiviertes FBS im DMEM/F12-Medium vor.
- Zellreinigungspuffer: Bereiten Sie 2 % (v/v) wärmeinaktiviertes FBS in Ca+/Mg+ freiem PBS (pH 7,4) vor.
- Perfusionspuffer: Vorgekühltes Ca+/Mg+ freies PBS (pH 7,4).
- Enzymstocklösungen: 10 mg (1600 U/mg) Kollagenase IV in 1 mL DMEM/F12-Medium auflösen, um eine 16000 U/mL Kollagenase-IV-Lagerlösung zu erhalten; 42 mg (1,19 U/mg) Dispase II in 1 mL DMEM/F12-Medium auflösen, um eine 50 U/mL Dispase-II-Lagerlösung zu erhalten; Lösen Sie 5 mg DNase I in 1 ml DMEM/F12-Medium, um eine 5 mg/mL DNase-I-Lagerlösung zu erhalten.
- Verdauungsmedium: Mischen Sie 250 μL Kollagenase IV, 200 μL Dispase II und 100 μL DNase-I-Lagerlösungen in 5 mL DMEM/F12-Medium, um eine Endkonzentration von 800 U/mL Kollagenase IV, 2 U/mL Dispase II und 0,1 mg/mL DNase I zu erhalten.
- Resuspensionspuffer: Mischen Sie 1 μL 0,5 M EDTA (10 μM), 1 ml wärmeinaktiviertes FBS (2 % v/v) in 50 mL Ca+/Mg+ freies PBS (pH 7,4).
- BSA-Stocklösung: 0,5 g BSA in 100 mL Ca+/Mg+ freiem PBS auflösen, um eine 0,5%ige (w/v) BSA-Stocklösung zu erhalten.
- FACS-Puffer: Mischen Sie 2,5 mL 1 M HEPES, 200 μL 0,5 M EDTA in 100 mL BSA-Lagerlösung, um eine Endkonzentration von 25 mM HEPES und 1 mM EDTA zu erhalten.
2. Sammlung von Mauslungengewebe
HINWEIS: Alle chirurgischen Instrumente werden zwischen den Proben mit 70 % Ethanol desinfiziert. Die Proben werden zwischen jedem Schritt auf Eis gehalten, und alle Kunststoffwaren sind zertifiziert als DNase/RNase-frei.
- Euthanasie die Maus in einerCO2-Kammer (nach institutionell genehmigten Protokollen). Lege die Maus auf den Rücken auf ein Sektionspad und stecke die Füße fest. Sprühe großzügig mit 70 % Ethanol.
- Machen Sie einen 2–3 cm breiten Mittellinienschnitt durch Haut und Muskeln des unteren Bauches. Öffnen Sie vorsichtig den Thorax und vermeiden Sie es, die Lunge oder das Herz zu schneiden.
- Befestigen Sie eine Sicherheits-Multifly-21-G-Nadel an einer 50-ml-Spritze und saugen Sie einen 30-mL-Perfusionspuffer an.
- Führe die Nadel in den linken Ventrikel und schneide mit der scharfen, geraden Schere einen kleinen Schnitt im rechten Vorhof.
- Vollkörper21 mit 15 ml Perfusionspuffer.
HINWEIS: Die Aufhellung der Leber zeigt, dass die Ganzkörperdurchführung abgeschlossen wurde. - Entfernen Sie die Lunge aus dem Thorax und schneiden Sie überschüssiges Gewebe ab, das an der Lunge befestigtist 22. Geben Sie die Lunge in 10 ml vorgekühltes Ca+/Mg+ freies PBS, um überschüssiges Blut abzuwaschen.
- Übertragen Sie die Lunge in ein 1,5-ml-Rohr mit 500 μL eiskalten DMEM/F12.
3. Herstellung der Lungen-Einzelzell-Suspension
- Schneiden Sie das Lungengewebe in kleine Stücke (1–2 mm3) mit einer extra schmalen, geraden Schere für 2–3 Minuten.
- Das gehackte Lungengewebe wird in eine 6 cm große Schale mit 5 ml Verdauungsmedium übertragen.
- Stellen Sie eine 6-cm-Schüssel auf einen Thermostatshaker bei 50 U/min für 25 Minuten bei 37 °C. Die Federung alle 8 Minuten mit einer 1-mL-Pipette mischen.
- Setze ein 100 μm großes Mesh-Sieb in eine 10 cm lange Schale. Lass das Sieb mit 1 ml DMEM/F12-Medium vorbefeuchten.
- Übertragen Sie die verdaute Suspension in das Sieb. Drücken Sie das Gewebe mit dem Gummiende eines sterilen Spritzen-Kolben durch das Sieb.
- Lege ein 70 μm großes Sieb über ein 50 mL Zentrifugenrohr. Lass das Sieb mit 1 ml DMEM/F12-Medium vorbefeuchten.
- Filtern Sie die Zellsuspension durch ein Sieb und spülen Sie das Sieb mit 5 mL DMEM/F12-Medium.
- Zentrifugieren Sie die gefilterte Zellsuspension bei 400 g für 10 Minuten bei 4 °C und entfernen Sie das Übersetzungsmittel vorsichtig. Das Zellpellet in 1 ml Red Blood Cell Lysing Buffer für 2 Minuten bei Zimmertemperatur aufhängen.
- Fügen Sie 14 ml Zellenspülpuffer hinzu und zentrifugieren Sie bei 400 g für 10 Minuten bei 4 °C.
HINWEIS: Wenn das Pellet nach dem Waschen noch rot ist, wiederhole Schritte 8 und 9. - Entsorge das Supernatant und suspendiere die Zellen in einem 20-mL-Resuspensionspuffer erneut.
- Mische 10 μL Einzelzellensuspension mit gleichem Volumen Trypanblau und gib 10 μL der Mischung zum Zellzählkammer-Objektträger. Überprüfen Sie die Lebensfähigkeit lebender Zellen, die Zellnummer und den Status der Einzelzelle mit einem Zellzähler.
4. Flowzytometrie-Analyse
- Die Zellen werden in einen eiskalten FACS-Puffer wieder suspendiert und 100 μL Zellsuspension in 1,5-ml-Röhren übertragen, die 1 μL Fc-Blockantikörper enthalten (1:100). Proben 15 Minuten auf Eis inkubieren.
- Zentrifugiere die Proben bei 500 g für 5 Minuten und entsorge das Supernatant. Die Zellen werden in 200 μL CD326-APC-Antikörper (1:100) wieder suspendiert und 45 Minuten im Dunkeln bei 4 °C inkubiert.
- Zentrifugiere die Proben bei 500 g für 5 Minuten und entsorge das Supernatant. Resuspendieren Sie die Zellen in 500 μL FACS-Puffer, der DAPI-Färbung enthält (1:5000).
- Übertragen Sie alle Proben in FACS-Röhren und schützen Sie sie vor Licht.
- Analysieren Sie die Proben mit dem Durchflusszytometer. Folgende Fluorophore wurden verwendet: DAPI-V450, Tdtomato-YG585, CD326-APC. Die Gating-Strategie ist in Abbildung 1 dargestellt.
Ergebnisse
Hohe Zellviabilität wurde in der mit diesem optimierten Protokoll hergestellten Einzelzellsuspension erreicht. Veränderungen, die die Lebensfähigkeit der Zellen für tumortragende Lungen verbesserten, umfassten die Optimierung der Enzymkonzentration (ergänzende Tabelle 2), das Schütteln und Mischen der Proben während der Inkubation bei 37 °C. Außerdem wurde in Schritt 6 der Einsatz eines zusätzlichen 40-μm-Gittersiebs weggelassen, um mechanische Scherspannungen zu reduzieren, die die Wahrscheinlichkeit von Zellschäden erhöhen; Die Einbindung des zusätzlichen Siebs kann die Multipletbildung verringern. Im Durchschnitt überstieg die Zelllebensfähigkeit 85 %, verglichen mit weniger als 80 % vor der Optimierung (Tabelle 1). Unterschiede in der Zellkonzentration wurden hauptsächlich auf Unterschiede in der Lungengröße und dem verwendeten Suspensionsmedium zwischen den Replikaten zurückgeführt.
In diesem von KrasG12D gesteuerten Mausmodell des Lungenadenokarzinoms sind Tumorknoten vorhanden, und die Tumorbelastung liegt zwischen 10 % und 40 % fünfundzwanzig Wochen nach Tumorinitiation23. Zwei Ganzlungen-Einzelzell-Suspensionen wurden auf der 10x-Genomics-Plattform scRNA-seq unterzogen. Die Qualitätsbewertung des Cell Ranger identifizierte 23.488 und 21.436 geschätzte Zellen in den beiden Proben (Tabelle 2). Der Barcode-Plot zeigte eine minimale Kontamination der RNA in der Umgebung und spiegelte vermutlich die hohe Zelllebensfähigkeit wider (Abbildung 2A,B).
Die Hauptkomponentenanalyse (PCA) sowie die Approximation und Projektion von einheitlichen Mannigfaltigkeiten (UMAP) zeigten wohldefinierte Cluster, bei denen alle Haupttypen der Lungenzellen dargestellt sind (Abbildung 3A). Punktdiagramme repräsentativer Markergene bestätigten, dass kanonische Biomarker in ihren entsprechenden Zelltypen hoch exprimiert sind (Abbildung 3B). Darüber hinaus wurden TdTomato+ -Zellen in epithelbezogenen Clustern angereichert, und TdTomato+/EpCAM+- Zellen wurden erfolgreich durch FACS isoliert (Abbildung 1).
Zusammenfassend ermöglicht dieses optimierte Protokoll eine effiziente Dissoziation von tumortragendem Lungengewebe in der Maus, was zu hoher Zelllebensfähigkeit, geringer RNA-Kontamination und umfassender zellulärer Repräsentation führt.
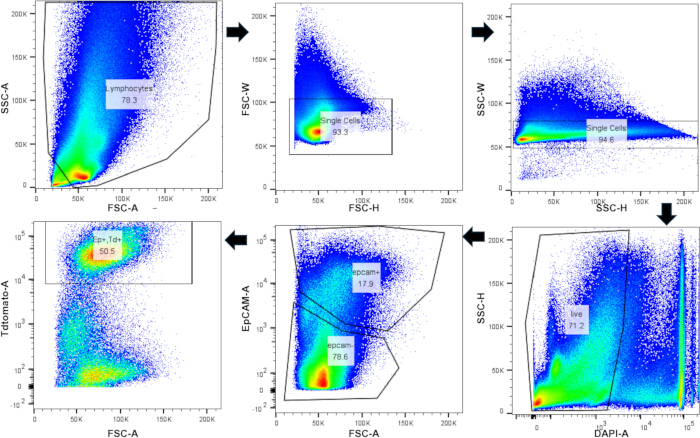
Abbildung 1: Isolierung von TdTomato+/CD326 (EpCAM+)-Zellen mittels Durchflusszytometrie. Durchflusszytometrie-Gating-Strategie für Mauslungen-Einzell-Suspension. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
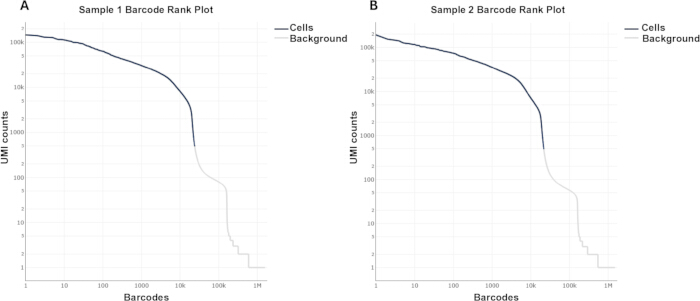
Abbildung 2: ScRNA-seq Barcode-Rangdiagramm der tumortragenden Lungen der Maus. KrasLSL-G12D/+; Die Lungen von TdTomato+/- Mäusen wurden 25 Wochen nach der Infektion mit Lentivirus-Cre entnommen. (A,B) Tumortragende Lunge Barcode-Rangdiagramm aus der Cellranger-Analyse Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
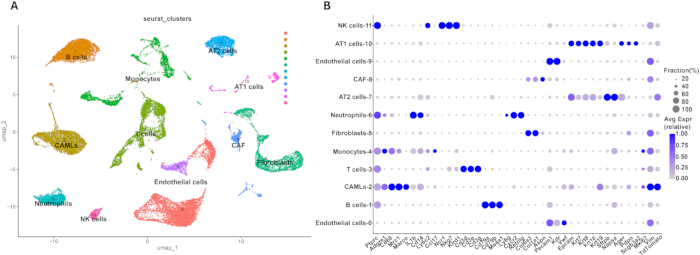
Abbildung 3: Einzelzell-Transkriptomik-Analyse der tumortragenden Lungen der Maus. (A) UMAP-Projektion ganzer tumortragender Lungendatensätze. (B) Punktdiagramm klassischer Gene, die für Clusterannotationen verwendet werden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
| Vor der Optimierung | Nach der Optimierung | |||
| Wiederholung 1 | Wiederholung 2 | Wiederholung 1 | Wiederholung 2 | |
| Gesamtzellenzahl | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Lebende Zellen | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Prozentsatz lebender Zellen | 76% | 77% | 83% | 89% |
Tabelle 1: Tumortragende Lungen-Einzell-Suspensionszell-Lebensfähigkeit vor und nach der Optimierung. Die Zellkonzentration und der Prozentsatz lebender Zellen werden vor und nach der Anwendung dieses Protokolls bestimmt.
| Beispiel 1 | Beispiel 2 | |
| Geschätzte Anzahl der Zellen | 23,488 | 21,436 |
| Mittlere Reads pro Zelle | 18,354 | 20,542 |
| Mediangene pro Zelle | 2,565 | 2,513 |
| Insgesamt nachweiste Gene | 30,893 | 30,556 |
| Median UMI-Zählungen pro Zelle | 6,864 | 6,583 |
| Gültige Barcodes | 95.90% | 95.80% |
| Sequenzierende Sättigung | 26.10% | 28.20% |
| Fraktionslesungen in Zellen | 94.10% | 95.40% |
Tabelle 2: ScRNA-seq Qualitätskontrollanalyse durch Cell Ranger. Die wichtigsten Schätzungen der Einzelzelldaten, die von Cell Ranger gewonnen wurden
Ergänzende Tabelle 1: Fehlerbehebungslösungen. Es werden Lösungen vorgeschlagen, um Probleme anzugehen, die während des Verdauungsprozesses auftreten können. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Tabelle 2: Enzymcocktailkomponenten vor und nach der Optimierung. Die endgültigen Konzentrationen des Enzymcocktails, der vor und nach der Optimierung verwendet wird. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Dieses Protokoll bietet ein detailliertes Schritt-für-Schritt-Verfahren zur Herstellung hochwertiger Einzelzell-Suspensionen aus Mauslungengewebe. Mehrere kritische Schritte sind erforderlich, um optimale Ergebnisse zu erzielen.
Vor der enzymatischen Verdauung muss eine Ganzkörperperfusion durchgeführt werden, um Blut aus der Lunge zu entfernen. Dies stellt sicher, dass durch scRNA-seq entdeckte Immunzellen aus Lungengewebe und nicht aus zirkulierem Blut stammen. Während der Perfusion ist es wichtig, die Nadel in den linken Ventrikel einzuführen, um zu verhindern, dass das Perfusat in den Lungenkreislauf gelangt und Lungenzellen schädigt. Um die Lebensfähigkeit der Zellen zu erhalten, sollten alle Puffer, einschließlich Wasch, Resuspension und Perfusionslösungen, auf Eis vorgekühlt werden. Angesichts der inhärenten Heterogenität von Lungengewebe24 sollten Proben vor und während der Verdauung im DMEM/F12-Medium aufbewahrt werden, da dieses Medium essentielle Nährstoffe liefert, die die Zelllebensfähigkeit sichern.
Hohe Zelllebensfähigkeit und gut definierte Zellcluster, die in diesem Protokoll beobachtet wurden, bestätigen, dass die Enzymkombination sowohl mild als auch wirksam ist. Calcium- und Magnesiumionen sind dafür bekannt, die Zellverklumpung zu fördern und die enzymatische Aktivitätzu steigern 25,26. Daher wird Ca+/Mg+-freies PBS verwendet, um die meisten Puffer vorzubereiten, um Klumpen zu minimieren, während DMEM/F12 mit diesen Ionen als Basalmedium für den Verdauungspuffer dient, um eine ausgewogene enzymatische Effizienz aufrechtzuerhalten.
Während frühere Studien dissoziierende Mauslungen oder Tumorgewebe beschrieben haben, zeigen diese oft signifikante Variabilität oder eine unvollständige Beschreibung der Protaseselektion und -konzentration 11,15,27. Zum Beispiel verwendeten Han et al.11 Enzymcocktails, ohne die Konzentration zu melden, was die Replikation erschwert. Umgekehrt ist eine hochspezialisierte Methode, beschrieben von Chen et al.28, effektiv zur Dissoziation von Alveolaren Typ-II-(AT2)-Zellen, erfordert jedoch einen komplexen Arbeitsablauf, der unpraktisch ist, wenn mehrere Mäuse gleichzeitig gesammelt werden müssen.
Eine entscheidende Herausforderung in der Lungenonkologieforschung ist die strukturelle Heterogenität der tumortragenden Lunge, die sowohl aus fragile normalen als auch aus bösartigen Tumorzellen besteht. Standardprotokolle oder kommerzielle Kits werden oft speziell für normales Gewebe oder Tumorproben entwickelt. Sie führen entweder zu einer unvollständigen Verdauung, der Nichtfreisetzung von Krebszellen aus dem Tumorkern oder zu einer Überverdauung, die erheblichen Stress und Zelltod im empfindlicheren normalen Gewebe in tumortragenden Lungenproben verursacht.
Dieses Protokoll behandelt dies, indem der enzymatische Cocktail (Kollagenase IV, Dispase II und DNase I) feinjustiert wird, um eine ausgewogene Dissoziation zu erreichen. Diese Optimierung stellt die Freisetzung bösartiger Zellen sicher, während die Lebensfähigkeit normaler Zellen erhalten bleibt. Dies wird durch eine Durchflusszytometrieanalyse unterstützt, bei der wir erfolgreich zwei unterschiedliche Epithelzellen identifizierten und aufgelöst haben. Die Epithelzellen sind gut in TdTomato+- oder TdTomato-Zellen unterteilt. Dieses Auflösungsniveau zeigt, dass diese Methode geeignet ist, die gesamte tumortragende Lungenmikroumgebung zu untersuchen, ohne die Integrität des Wirtsgewebes zu opfern. Durch die Einbeziehung aller lebenden Einzelzellen in die Analyse ermöglicht dieses Protokoll die Untersuchung aller relevanten Zelltypen innerhalb der tumortragenden Lungenmikroumgebung, einschließlich krebsassoziierter makrophagenähnlicher Zellen (CAMLs) (Abbildung 3), die in früheren Studien nicht breit berichtet wurden 15,16,17.
Nach der Verdauung zeigten scRNA-seq-Analysen, dass dieses Verfahren verschiedene Zelltypen erfolgreich isoliert. Enzymlösungen sollten am Tag des Experiments frisch vorbereitet werden. Alle Verdauungsparameter sind für eine einzelne ganze Mauslunge optimiert. Bei Verwendung nur eines einzelnen Lappens oder mehrerer Lungen sollte die Verdauungszeit angepasst werden, um eine hohe Zelllebensfähigkeit und eine vollständige Gewebedissoziation sicherzustellen. Kontamination und Bildung von Umgebungs-RNA sind zwei Hauptfaktoren, die die SCRNA-Seq-Qualität29 beeinflussen. Obwohl Totezellentfernungskits oft zur Verbesserung der Lebensfähigkeit eingesetzt werden, liefert dieses Protokoll nach der Verdauung konstant über 80 % der lebenden Zellen, sodass dieser Schritt optional ist. Der Barcode-Rangdiagramm bestätigte eine minimale Kontamination der umgebenden RNA, selbst ohne Entfernung von toten Zellen.
Die aktuelle Studie validiert diese Methodik im Kontext der gesamten tumortragenden Mauslunge. Diese optimierte enzymatische Verdauung bietet eine Vorlage für die Untersuchung verschiedener anderer tumortragender Gewebe, die durch ähnliche Mikroumgebungen gekennzeichnet sind. Darüber hinaus machen die hohe Zelllebensfähigkeit und Erhaltung aller durch dieses Protokoll erreichten Zelltypen es geeignet für fortschrittliche Sequenzierungstechnologien wie CITE-seq für die Oberflächenproteinkartierung und ATAC-seq für epigenetische Profilierung.
Obwohl dieses Protokoll hochwertige Einzelzell-Suspensionen kostengünstig erzeugt, kann prozessinduzierter zellulärer Stress während der enzymatischen Verdauung dennoch auftreten. Um stressbedingte Genexpressionsartefakte zu minimieren, sollte ein einzelner Operator nicht mehr als vier Proben gleichzeitig verarbeiten.
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden Interessen haben.
Danksagungen
Diese Arbeit wurde vom National Institute of Health, dem National Eye Institute (NEI), USA, unterstützt, Stipendien 5R01EY026202, R01EY035333; das National Institute of Dental and Craniofacial Research (NIDCR) vergibt R01DE031044, 2R01DE014756 sowie das National Cancer Institute (NCI) Fördermittel R01CA271500 und 2R01CA211187.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Zellkultur |
| Kollagenase Typ IV | Sigma Aldich | C5138 | Verdauungsenzyme |
| Dispase II | Sigma Aldich | D4693 | Verdauungsenzyme |
| DNase I | Roche | 11284931001 | DNA entfernen |
| Falcon 70 Zellsieb | Falcon | 352350 | Entfernen Sie unverdautes Gewebe |
| Sterile Schere | FST | 14088-10 | Schnittgewebe |
| Puffer zur Lyse roter Blutkörperchen | Sigma Aldich | R7757 | Entfernen Sie Blutzellen |
| Hitzeinaktikiertes FBS | Phoenix Scientific | PS100 | Zellen schützen |
| Ca+/Mg+ kostenloses PBS | Thermo Fisher | 10010023 | Lösende Enzyme/Waschzellen |
| Safety-Multifly 21G Nadel | Sarstedt | 3051524 | Ganzkörperperfusion |
| 50 ml Spritze | BD | 300866 | Ganzkörperperfusion |
| 6 cm Schüssel | Corning | 430116 | Verdauungsgewebe |
| 10-cm-Schüssel | Corning | 430167 | Verdauungsgewebe |
| Fc-Blockantikörper | BD | 553141; RRID:AB_394655 | Durchflusszytometrie |
| DAPI | BD | 564907; RRID:AB_2869624 | Durchflusszytometrie |
| CD326 | BD | 563478; RRID:AB_2738234 | Durchflusszytometrie |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U von Iowa-7556 | Lentivirous |
| ZE5 (Yeti) Durchflusszytometer | Bio-Rad | Durchflusszytometrie-Analyse | |
| KrasLSL-G12D/+ Maus | Jackson-Labor | 008179; RRID:IMSR_JAX:008179 | |
| TdTomato Reporter-Maus | Jackson-Labor | 007909; RRID:IMSR_JAX:007909 |
Referenzen
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Nachdrucke und Genehmigungen
