Die Studie präsentiert eine Methode zur in-vitro-Untersuchung bakterieller Infektionen unter Verwendung von Gewebestammzell-abgeleiteten Intestinalorganoiden. Das Protokoll beschreibt, wie man Organoide in zwei Dimensionen kultiviert und differenziert, sie mit adhärent-invasiven Escherichia coli infiziert und wichtige Werte bewertet, darunter das Durchbrechen der Epithelbarriere, die Bildgebung der Infektion und die Antwort der epithelialen RNA.
Methodenartikel
Eine zweidimensionale Organoidkultur auf Invasin- oder Basementmembranextrakt zur Untersuchung von Wirts-Bakterien-Interaktionen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Organoid-Technologie bietet eine experimentelle In-vitro-Plattform zur Untersuchung der menschlichen Physiologie in Gesundheit und Krankheit. Im Vergleich zu anderen in-vitro-Systemen , wie krebsabgeleiteten Zelllinien oder Expflanzen, bieten Organoide aus Gewebestammzellen (TSC) wichtige Vorteile: Sie können unbegrenzt erweitert werden, während die genomische Stabilität erhalten bleibt, und sind für CRISPR-Modifikation geeignet. Da diese Organoide aus normalen TSCs gebildet werden, enthalten sie die Zelltypen ihres Ursprungsgewebes. Dies macht Organoide besonders wertvoll für die Untersuchung von Wechselwirkungen zwischen Bakterien und differenzierten, nicht-tumoralen menschlichen Zellen. Intestinale Organoide werden als zweidimensionale, polarisierte Monoschichten auf Zellkultur-Einsätzen gezüchtet, die mit Basement Membrane Extract (BME) oder Invasin beschichtet sind – eine tierfreie, kostengünstige Alternative, und können in Typen der großen intestinalen Epithelzellen für eine Infektion mit pathogenen adhärent-invasiven E. coli differenziert werden. Wichtige Infektionsanzeigen umfassen die Überwachung der epithelialen Genexpression mittels Reverse Transcription quantitative PCR (RT-qPCR), die Visualisierung von Bakterien-Epithel-Interaktionen mittels Konfokalmikroskopie sowie die Quantifizierung des Durchbruchs der epithelialen Barriere. Das Protokoll lässt sich leicht anpassen, um andere Organe und Bakterienarten zu untersuchen, und bietet eine vielseitige Plattform zur Untersuchung von Wirts-Mikroben-Interaktionen bei Organoiden.
Einleitung
Das Darmepithel bildet die erste Abwehrlinie gegen pathogene Bakterien, die im Darmlumen vorhanden sind. In-vitro-Modelle des intestinalen Epithels wurden weit verbreitet verwendet, um zu untersuchen, wie Bakterien mit Epithelzellen interagieren, wie diese Zellen auf Infektionen reagieren und wie Bakterien die Epithelschranke durchbrechen1. Diese Modelle sind besonders wertvoll für die Untersuchung menschenspezifischer Krankheitserreger in einer kontrollierten, reduktionistischen Umgebung. Historisch basierte die In-vitro-Infektionsbiologie auf tumorabgeleiteten Zelllinien, z. B. Caco-2-Zellen, oder auf patientenabgeleiteten Expflanzen, die ex vivo 2,3 erhalten wurden. In jüngerer Zeit haben sich intestinale Organoide, die aus menschlichen Gewebestammzellen gewonnen werden, als mächtiges Werkzeug hervorgetreten, das die Vorteile beider Ansätze vereint: Wie Zelllinien können Organoide durchgeführt, erweitert, kryokonserviert, aufgetaut und genetisch manipuliert werden; Und wie Explants stammen sie aus nicht-tumoralen Stammzellen, die sich in alle wichtigen Epithelzelltypen 4,5 differenzieren können.
Wenn sie in eine Matrix wie Matrigel oder Basement Membrane Extract (BME) eingebettet sind, organisieren sich menschliche Darmorganoide typischerweise selbst zu kugelförmigen, polarisierten Strukturen mit einer apikalen Oberfläche, die nach innen zeigt, und einer basalen Oberfläche nach außen. Da die meisten intestinalen Krankheitserreger von der apikalen Seite an Epithelzellen zugreifen, wurden mehrere Strategien entwickelt, um diese Oberfläche inOrganoiden den Bakterien auszusetzen. Ein Ansatz ist die Mikroinjektion von Bakterien direkt in das organoide Lumen6. Ein weiterer besteht darin, die Polarität der Organoide umzukehren, indem sie aus der extrazellulären Matrix gelöst werden, wodurch "apikal-heraus" Organoide in Suspension7 entstehen. Eine dritte Strategie besteht darin, Organoide in einzelne Zellen zu dissoziieren und sie auf Zellkultur-Einsätzen zu pflanzen, um polarisierte, zweidimensionale Monoschichten (2D-Organoidplatten) zu bilden, wobei die apikale Seite dem oberen Kompartiment8 zugewandt ist. Die ersten beiden Methoden haben wichtige Einschränkungen: Mikroinjektion ist zeitaufwendig und arbeitsintensiv, begrenzt den Durchsatz, und apikale Organoide überleben nur wenige Tage ohne Matrixunterstützung und können nicht unterschiedenwerden 1. Im Gegensatz dazu unterstützen 2D-Organoid-Blätter Hochdurchsatz (Bakterien können einfach in das obere Kompartiment angebracht werden) und können mehrere Wochen erhalten bleiben, während sie in Typen9 der großen Darmepithel differenziert werden.
Im Gegensatz zu unsterblichen Zelllinien, die sich leicht an Kunststoffoberflächen festsetzen, benötigen organoid-abgeleitete Zellen eine Plattenbeschichtung für eine effiziente Haftung. Die Beschichtung kann mit verdünntem BME10 oder alternativ mit Invasin durchgeführt werden, einem bakteriellen Protein, das Integrine an organoide Zellen11 bindet. Invasin ist im Labor leicht herzustellen, deutlich kostengünstiger als BME oder Matrigel und vollständig tierfrei.
Dieses Protokoll beschreibt die Etablierung und Differenzierung von intestinalen Organoiden als zweidimensionale polarisierte Monoschichten auf Zellkultur-Einsätzen, die mit Invasin oder Basement Membrane Extract (BME) beschichtet sind. Die differenzierten organoiden Blätter werden anschließend mit Adherent-invasiver Escherichia coli (AIEC) infiziert, einem pathogenen Stamm, der mit entzündlicher Darmerkrankung12 assoziiert ist. Mehrere nachgelagerte Infektionsanzeigen werden erstellt, um Epithelreaktionen und bakterielle Translokationen zu bewerten. Da AIEC in Epithelzellen eindringt und das Darmepithel durchbricht – ein Mechanismus, der als Beitrag zu seiner Pathogenität gilt – wird das epitheliale Durchbrechen quantifiziert, indem Bakterien gemessen werden, die nach Bestätigung der Barriereintegrität durch transepitheliale/transendotheliale elektrische Widerstandsmessung (TEER) die basolaterale Kammer des Zellkultureinsatzes erreichen13. Es werden außerdem Verfahren zur Fixierung und Bildgebung infizierter Monoschichten zur Visualisierung intra- und extrazellulärer AIEC sowie zur RNA-Extraktion zur Bewertung der epithelialen transkriptionellen Antworten auf Infektionen bereitgestellt. Das vollständige Protokoll kann in weniger als zwei Wochen durchgeführt werden und erfordert nur allgemein verfügbare Laborausrüstung, darunter ein BSL-2-Gehäuse, ein Konfokalmikroskop und ein quantitatives PCR-Gerät.
Insgesamt bietet dieses Protokoll eine kosteneffiziente, vielseitige und zugängliche Methode zur Untersuchung bakterieller Infektionen des differenzierten menschlichen Darmepithels in vitro. Es lässt sich leicht an andere organoide Systeme und andere mikrobielle Arten anpassen, was es zu einem nützlichen Bauplan für In-vitro-Infektionsbiologiestudien macht.
Protokoll
Die menschlichen Darmorganoide wurden aus dem Abfallmaterial von Patienten erzeugt, die sich einer Darmkrebsoperation am University Medical Centre Utrecht (UMCU) unterzogen. Die Patienten gaben eine informierte Einwilligung zur Erzeugung ihrer Organoide gemäß dem Protokoll UPORT Cancer Biobank 21-042, das vom örtlichen Ethikkomitee für Biobanking genehmigt wurde. Abbildung 1A illustriert die 8 Abschnitte des Protokolls. Die Angaben zu Reagenz und Ausrüstung sind in der Materialtabelle aufgeführt.
1. Beschichtung des Zellkultureinsatzes
- Beschichtung mit Invasin
- Führen Sie alle Eingriffe in einer Gewebekulturhaube unter sterilen Bedingungen durch.
- Bereiten Sie eine 5 μg/mL Lösung von Invasin in steriler phosphatgepufferter Kochsalzlösung (PBS) vor.
- Fügen Sie 100 μL dieser Lösung in das obere Kompartiment jedes 3 μm großen Poren-Polyesterzellkultur-Inserts hinzu, das in einer 24-Well-Platte platziert ist.
- Stellen Sie sicher, dass die Membran vollständig bedeckt ist.
- Über Nacht bei 4 °C inkubieren.
HINWEIS: Vermeiden Sie die Bildung von Blasen beim Dosieren, da Blasen eine gleichmäßige Beschichtung verhindern.
- Beschichtung mit Basementmembran-Extrakt (Alternative)
- Auftaumembranextrakt auf Eis.
- Bereite eine 10%ige Lösung in eiskalten DMEM vor.
HINWEIS: Lassen Sie die Lösung kalt, um eine vorzeitige Polymerisation zu verhindern. - Fügen Sie 100 μL der verdünnten Lösung in das obere Kompartiment jedes 3 μm großen Porenzellkultureinsatzes ein.
- Stellen Sie eine vollständige Abdeckung der Membranoberfläche sicher.
- Inkubieren Sie 1 Stunde bei Zimmertemperatur.
2. Aussäung organoider Zellen
- Herstellung von Organoiden
- Entfernen Sie das Kulturmedium von den Organoidplatten, die unter Ausdehnungsbedingungen (3-5 Tage nach der Spaltung) erhalten bleiben.
- Organoide in 1 ml eiskaltes DMEM14 wieder suspendieren.
- Übertragen Sie die Federung auf ein 15-mL konisches Rohr mit 4 mL eiskalten DMEM.
HINWEIS: Verwenden Sie ungefähr 1 Full Well von einer 12-Well-Platte zu Samen-4-Zellkultur-Einsätzen.
- Pelletierende Organoide
- Zentrifugiere 5 Minuten bei 500 × g bei 4 °C.
- Entferne das Überdachte vollständig.
- Dissoziierende Organoide
- Suspendiere das Pellet in 3 ml rekombinantem Trypsin-Ersatz.
- Pipette hoch und runter mit einer P1000-Pipette, um die Organoide mechanisch zu stören.
- Inkubieren Sie bei 37 °C für 15–20 Minuten, bis Einzelzellen oder kleine Cluster (3–4 Zellen) erreicht sind.
HINWEIS: Überschreiten Sie die 20-minütige Inkubation nicht. Pipette alle 5 Minuten, um die Dissoziation zu erleichtern. Führe eine P10-Spitze in eine P1000-Spitze, wenn weitere mechanische Kraft erforderlich ist.
- Waschzellen
- Gib 5 ml eiskaltes DMEM dazu.
- Zentrifugiere 5 Minuten bei 500 × g bei 4 °C.
- Entferne das Überwasser.
- Zellsuspension vorbereiten
- Resuspendiere Zellen im Expansionsmedium (100 μL pro Zellkultureinsatz; siehe Tabelle 1 zur Zusammensetzung des Expansionsmediums).
HINWEIS: Keine Antibiotika verwenden. Fügen Sie einen Rho-Kinase-Inhibitor hinzu, um Anoikis zu verhindern. - Zählen Sie die Zellen mit einem Zellzähler oder Hämozytometer.
- Einstellen Sie auf etwa 2 × 10⁶ Zellen /mL.
- Resuspendiere Zellen im Expansionsmedium (100 μL pro Zellkultureinsatz; siehe Tabelle 1 zur Zusammensetzung des Expansionsmediums).
- Aussäen der Zellkultur-Einsätze
- Entferne die Beschichtungslösung von den Einsätzen.
- Fügen Sie 100 μL Zellsuspension (2 × 10⁵Zellen ) dem oberen Kompartiment hinzu.
- Fügen Sie 500 μL Expansionsmedium in das untere Fach hinzu.
3. Zellkultur, Kultur einfügen und Differenzierung
- Inkubieren Sie bei 37 °C mit 5 % CO2, bis die Zusammenfluss erreicht ist (ca. 3 Tage).
HINWEIS: Füllen Sie das Medium in beiden Fächern alle 4-5 Tage auf, falls erforderlich. - Sobald sie zusammenfließen, waschen Sie beide Fächer mit vorgewärmtem DMEM.
- Füge 500 μL Differenzierungsmedium (Tabelle 2) dem unteren Kompartiment hinzu.
- Fügen Sie dem oberen Kompartiment 100 μL Advanced DMEM/F12 ergänzt mit HEPES und Glutamax (AdvDMEM++) (Tabelle 3) hinzu.
- Inkubiere 5 Tage bei 37 °C mit 5 %CO2.
- Wechseln Sie alle zwei Tage das Medium in beiden Fächern.
4. Messung des transepithelialen/transendothelialen elektrischen Widerstands (TEER)
- Sterilisiere TEE-Elektroden 15 Minuten lang in 70 % Ethanol.
- Elektroden in sterilem PBS ausspülen.
- Führe die kurze Elektrode in das obere Fach und die lange Elektrode in das untere Kompartiment.
HINWEIS: Berühren Sie die Monoschicht nicht mit der Elektrodenspitze. - Record-Widerstandswerte.
- Messen Sie den Blankwiderstand mit einem zellfreien Einsatz, der PBS enthält (100 μL oben, 500 μL unten).
- Berechnung von TEER: TEER = (R_cell Kultureinsatz − R_blank) × Oberfläche (cm²)
HINWEIS: Für 24-Bohrloch-Einsätze gilt die Oberfläche = 0,33 cm².
5. Infektion mit AIEC
- Bakterienkultur vorbereiten
- Inokuliere fluoreszierende AIEC in 3 mL LB-Medium15.
- Über Nacht bei 37 °C mit Schütteln inkubieren.
VORSICHT: Führen Sie alle bakteriellen Eingriffe in einer BSL-2-Haube durch.
- Inokulum bereiten
- Zentrifugiere 500 μL Kultur für 5 Minuten bei 1500 × g.
- Resuspendieren in 1 mL AdvDMEM++.
- Messen Sie die optische Dichte (OD).
- Verdünnen zu etwa 1 × 10⁸ CFU/mL in AdvDMEM++.
HINWEIS: OD = 1 entspricht ungefähr 1 × 10⁹ CFU/mL.
- Infizieren der Monoschichten
- Ersetzen Sie Medien in beiden Fächern.
- Füge 500 μL Differenzierungsmedium zum unteren Abteil hinzu.
- Fügen Sie 100 μL bakterielle Suspension in das obere Kompartiment für die infizierte Erkrankung hinzu.
- Fügen Sie 100 μL AdvDMEM++ zum oberen Kompartiment für die nicht infizierte Erkrankung hinzu.
- Inkubieren bei 37 °C, 5 % CO₂.
6. Bewertung des Epithelbruchs
- 2,5 Stunden nach der Infektion werden 100 μL aus dem unteren Kompartiment entnommen.
- Verdünne es in PBS und trichtere es auf LB Agar.
- Fügen Sie 100 μL frisches Differenzierungsmedium in das untere Fach hinzu.
- Teller über Nacht bei 37 °C inkubieren.
- Wiederholte Probenahme 5 Stunden nach der Infektion.
- Count Colony-Forming Unit (CFU) am folgenden Tag.
- CFUs pro Zellkultur-Insert berechnen: CFUs/Zellkultur-Insert = Kolonien × 5 × Verdünnungsfaktor
7. Bildinfektion
- 5 Stunden nach der Infektion entfernen Sie das Medium und fixieren Sie es mit 4 % Paraformaldehyd.
VORSICHT: Paraformaldehyd ist giftig und flüchtig. Führe sie in einer Abzugshaube mit Handschuhen. - Korrektur für 30 Minuten.
- Dreimal mit PBS waschen.
- Entfernen Sie den Membraneinsatz und platzieren Sie Zellen, die nach oben zeigen, in eine Bohrlochplatte.
- Färbe mit fluoreszierendem Phalloidin für 1–2 Stunden.
- Dreimal mit PBS waschen.
- Kerne 10 Minuten mit DAPI färben.
- Dreimal mit PBS waschen.
- Auf einen Glasschlitten mit Montagemedium montieren und einen Deckdeckel anbringen.
- Mit Nagellack versiegeln.
- Erfassen Sie konfokale Bilder von DAPI, Aktin und Bakterienkanälen.
- Erhalten Sie einen z-Stack, der sich von Basal- bis Apikalflächen mit 1 μm Intervallen erstreckt.
- Offene Bilder in Fidschi.
- Wählen Sie Bild → Z Projekt → durchschnittliche Intensität.
- Wählen Sie Bild → Stapel → orthogonalen Ansichten aus, um Querschnitte zu visualisieren.
8. Analyse der Epithelantwort
- 5 Stunden nach der Infektion entfernen Sie das Medien.
- Fügen Sie dem oberen Kompartiment einen 350-μL-Lysispuffer hinzu.
- Pipetten, um die Zellen zu lysieren und in einen RNase-freien Eisschlauch zu übertragen.
- Führen Sie die RNA-Extraktion gemäß den Kit-Anweisungen durch.
- Messung der RNA-Konzentration und Normalisierung der Proben.
- Führen Sie eine umgekehrte Transkription durch.
- Führen Sie quantitative PCR gemäß den Anweisungen des Herstellers durch (Primer-Sequenzen für TNFα und das Referenzgen β-Actin sind in Tabelle 4 angegeben).
Ergebnisse
Nach Erreichen der Konfluenz zeigten die Darmzellen auf dem Zellkultur-Einsatz ein mosaikartiges Muster (Abbildung 1B) ohne sichtbare Lücken in der Monoschicht. Nach der Differenzierung wurde die epitheliale Dichtigkeit durch Messung des transepithelialen elektrischen Widerstands (TEER) bewertet (Abbildung 1C). TEER-Werte über 500 Ω·cm² stimmten mit der Bildung einer dichten epithelialen Monoschicht¹⁶ überein.
Die im basolaterale Kompartiment festgestellte Menge an AIEC nahm im Laufe der Zeit zu, was auf ein bakterielles Durchbrechen der Epithelbarriere hindeutet (Abbildung 2A,B). Das Fehlen von AIEC im unteren Kompartiment würde auf das Versagen der bakteriellen Translokation hindeuten.
Der Arbeitsablauf zur Visualisierung einer Infektion ist in Abbildung 3A zusammengefasst. Konfokale Bildgebung zeigte die Bildung einer polarisierten Monoschicht, deren Kerne basal lokalisiert sind, und eine apikale Anreicherung des Aktinnetzwerks (Abbildung 3B). Eine höhere Vergrößerung zeigte sowohl intrazelluläre AIEC- als auch extrazelluläre Bakterien, die an der apikalen Membran gebunden sind (Abbildung 3C).
Die RT-qPCR-Analyse zeigte eine Hochregulierung der TNFα-Expression als Reaktion auf eine AIEC-Infektion (Abbildung 4A,B) und bestätigte die Aktivierung einer epithelialen Entzündungsreaktion.
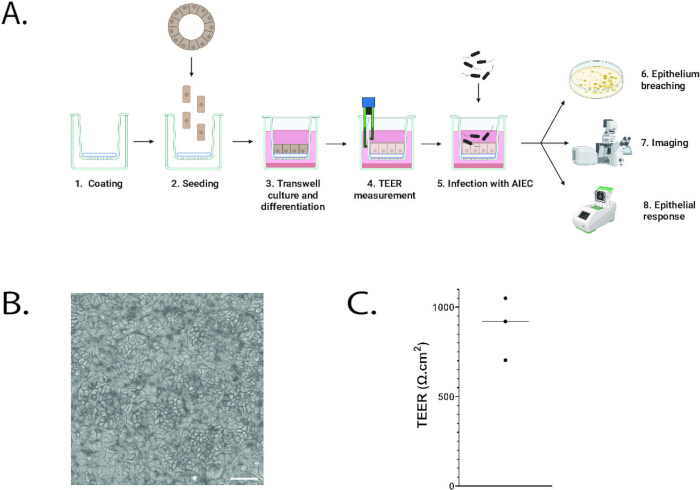
Abbildung 1: Überblick über das Protokoll. (A) Pläne des Protokolls. (B) Helles Feldbild von intestinalen organoiden Zellen, kultiviert und differenziert auf einem invasinbeschichteten Zellkultureinsatz. Skalenbar: 50 μm. (C) Transepitheliale/transendotheliale elektrische Resistenz (TEER) von intestinalen Organoiden, die auf invasinbeschichteten Zellkultur-Einsätzen gezüchtet und differenziert wurden. Jeder Punkt zeigt ein unabhängiges Experiment. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
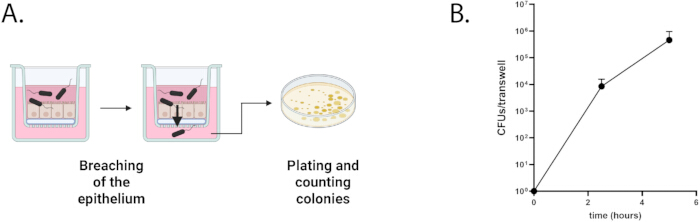
Abbildung 2: Bewertung der Epithelverletzung (A) Schaltpläne des Protokolls. (B) Quantifizierung der koloniebildenden Einheiten (CFUs) von AIEC über die Zeit im unteren Kompartiment des Zellkultureinsatzes. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
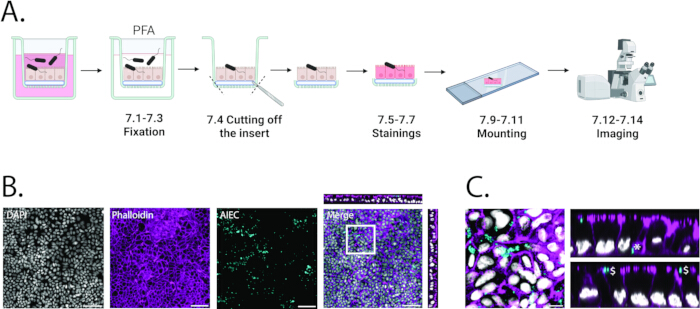
Abbildung 3: Bildgebende Infektion. (A) Pläne des Protokolls. (B) Konfokale Bildgeberstellung von intestinalen Organoiden, infiziert mit fluoreszierendem AIEC für 5 Stunden. Grau: DAPI. Magenta: Phalloidin. Cyan: AIEC. Maßstabsanzeige: 50 μm. Orthogonale Ansichten des zusammengeführten Bildes sind oben und rechts dargestellt. (C) Hohe Vergrößerung des weißen Quadrats in B. Grau: DAPI. Magenta: Phalloidin. Cyan: AIEC. Maßstabsleiste: 10 μm. Orthogonale Ansichten sind rechts dargestellt. Intrazelluläre AIEC (*) und extrazelluläre AIEC, die an die apikale Membran der Epithelzellen ($) gebunden sind, sind hervorgehoben. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
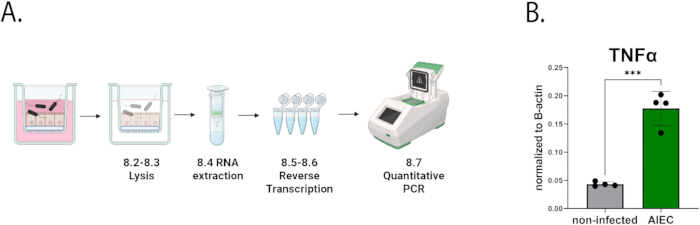
Abbildung 4: Analyse der Epithelantwort. (A) Pläne des Protokolls. (B) Expression von TNFα durch intestinale Organoide nach 5 Stunden Infektion mit AIEC (grün) versus nicht-infizierte Kontrolle (grau). Die TNFα-Expression wurde mit der Formel 2-(Cq(TNFα)-Cq(β-Actin)) auf die B-Aktin-Expression normalisiert. n=4 repliziert. Die statistische Analyse erfolgte mit einem ungepaarten Schüler-t-Test. P < 0,001. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
| Komponente | Schwerpunkt |
| Adv DMEM | 1x Finale |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| Wnt-Surrogat | 0,5 nM |
| R-spo1 UPE | 2 % v/v |
| Noggin UPE | 1% v/v |
| B27 ohne Vitamin A | 2 % v/v |
| N-Acetylcystein | 1,25 mM |
| Nikotinamid | 10 μM |
| hEGF | 50 ng/mL |
| A83-01 (TGF-β-Inhibitor) | 0,5 μM |
| SB202190 (p38-Inhibitor) | 3 μM |
| Prostaglandin E2 | 1 μM |
| Rho-Kinase-Inhibitor | 10 μM |
Tabelle 1: Expansionsmedium für menschliche Darmorganoide. Zusammensetzung des Expansionsmediums, das zur Erhaltung und Proliferation menschlicher Darmorganoide verwendet wird.
| Komponente | Schwerpunkt |
| Adv DMEM | 1x Finale |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| R-spo1 UPE | 2 % v/v |
| Noggin UPE | 1% v/v |
| B27 ohne Vitamin A | 2 % v/v |
| NAC | 1,25 mM |
| hEGF | 50 ng/mL |
Tabelle 2: Differenzierungsmedium für menschliche Darmorganoide. Zusammensetzung des Differenzierungsmediums, das zur Förderung der epithelialen Reifung menschlicher Intestinalorganoid-Monoschichten verwendet wird.
| Komponente | Schwerpunkt |
| Adv DMEM | 1x Finale |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
Tabelle 3: Vorteil DMEM++ bei Infektion. Zusammensetzung des fortgeschrittenen DMEM/F12-Mediums, ergänzt mit HEPES und Glutamax (Adv DMEM++), das bei bakteriellen Infektionstests verwendet wird.
| Name | Abfolge |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| β-Actin F | TGACGTTGACATCCGTAAAG |
| β-Aktin R | GAGGAGCAATGATCTTGATCT |
Tabelle 4: Primer für qPCR von TNFα. Zeigt die Primer-Sequenzen, die für die quantitative PCR-Analyse von TNFα unter Verwendung von β-Actin als Referenzgen verwendet werden.
Diskussion
Diese Studie etablierte ein Protokoll zur Untersuchung bakterieller Infektionen menschlicher Darmepithelzellen mit TSC-abgeleiteten Organoiden, die auf Zellkultur-Einsätzen kultiviert werden. Einsätze mit 3 μm Poren ermöglichten eine effiziente Zellbindung und bakterielle Translokation, während 0,4 μm Poren keinen AIEC-Durchgang erlauben, was der etwa 1 μm großen Größe von E. coli entspricht. Es wurde keine Translokation organoider Zellen durch 3-μm-Poren beobachtet, vermutlich aufgrund ihres epithelialen und nicht-invasiven Phänotyps.
Mehrere experimentelle Variablen waren entscheidend für die Reproduzierbarkeit, darunter effiziente Zellanheftung, angemessene Aussaatdichte und vollständige Konfluenz vor der Infektion. Organoid-abgeleitete Epithelzellen haften nicht an unbeschichtetem Kunststoff, weshalb die Beschichtung unerlässlich ist. BME sorgte für eine durchgehend hohe Befestigungseffizienz. Die Invasin-Beschichtung lieferte vergleichbare Ergebnisse und stellt eine kostengünstige Alternativedar, obwohl sie intern hergestellt werden muss. Kollagenbeschichtung wurde ebenfalls als Alternativevorgeschlagen.
Bakterielle Wachstumsbedingungen beeinflussen die Infektionseffizienz stark. E.-coli-Stämme wachsen gut in DMEM; Allerdings können Restantibiotika die Vermehrung hemmen. Unter optimalen Bedingungen zeigen infizierte Kulturen in der Regel eine erhöhte Trübung im Vergleich zu Kontrollen, und das Bakterienwachstum kann durch das Plattieren des apikalen Kompartimentinhalts bestätigt werden.
Die Bildgebungsstrategie ermöglichte die Visualisierung sowohl intra- als auch extrazellulärer Bakterien, indem AIEC gezielt ein Fluorophor unter einem konstitutiven Promotor exprimiert (z. B. unter Verwendung des Plasmids pMB1-spect-PthrC-eGFP). Alternative Methoden ermöglichen den selektiven Nachweis intrazellulärer Bakterien, einschließlich differenzierter Immunfluoreszenzfärbung18 oder Reporter, die in definierten Invasionsstadien19 exprimiert sind. Gentamicin-Schutzassays bieten einen zusätzlichen quantitativen Ansatz20.
Dieses Modell ist bewusst reduktionistisch und konzentriert sich auf direkte Wechselwirkungen zwischen Bakterien und dem Darmepithel. Sie ermöglicht die Untersuchung von Infektionen in einer differenzierten epithelialen Monoschicht ohne zusätzliche in vivo Zelltypen. Das Differenzierungsmedium induzierte überwiegend die Enterozyten- und Becherzelldifferenzierung21, kann jedoch modifiziert werden, um die Epithelzusammensetzungzu verändern 22,23. Die Systemkomplexität kann durch Kokultivierung von Immun- oder Stromalzellen im Basalkompartiment24 erhöht werden.
Das System rekapituliert nicht die dreidimensionale Architektur der Darmschleimhaut. Organ-on-Chip-Plattformen überwinden einige strukturelle Einschränkungen25, benötigen jedoch größere technische Komplexität und Ressourcen. Darüber hinaus eignet sich das Modell am besten für akute Infektionen, da bakterielles Überwuchern die Experimente auf etwa 8 Stunden begrenzt. Komplexere Systeme, wie mikrofluidische Plattformen, die einen kontinuierlichen Medienaustausch ermöglichen, sind erforderlich, um chronische Infektionen in vitrozu untersuchen.
Ähnliche zellkulturbasierte organoide Infektionssysteme wurden auf verschiedene Gewebe und Krankheitserreger angewendet, darunter Magenorganoide, die mit Helicobacter pylori27,28 infiziert sind, intestinale Organoide infiziert mit Shigella29, Atemwegsorganoide mit Pseudomonas aeruginosa10 und urotheliale Organoide, die mit Enterococcus faecalis30 infiziert sind. Dieses Protokoll bietet daher einen vielseitigen Rahmen zur Untersuchung von Epithel-Bakterien-Interaktionen über Organsysteme hinweg, sofern pathogenspezifische Wachstumsanforderungen berücksichtigt werden.
Die Organoid-Technologie liefert physiologisch relevante menschliche Modelle zur Untersuchung von Wirts-Pathogen-Interaktionen in nicht-transformierten Epithelzellen 4,5. Angesichts der zunehmenden Belastung antibiotikaresistenter Infektionen und deren Zusammenhang mit chronischen entzündlichen Erkrankungen und Krebs stellen solche In-vitro-Systeme wertvolle Werkzeuge für mechanistische und translationale Forschung dar.
Offenlegungen
H.C. ist Erfinder mehrerer Patente im Zusammenhang mit der Organoid-Technologie. Die vollständige Offenlegung von H.C. erfolgt bei https://www.uu.nl/staff/JCClevers/.
Danksagungen
Die Autoren danken dem Utrecht Portal for Organoid Technology (UPORT), insbesondere Anneta Brousali, Jorieke Salij und Arnold Binda, sowie den Patienten und Chirurgen des Universitätsmedizinischen Zentrums Utrecht für die Bereitstellung von Darmgewebe. Die Autoren danken auch Nicolas Barnich für das Teilen des AIEC-Stamms LF82. Diese Arbeit wurde durch einen CRUK-Zuschuss OPTIMISTIC (C10674/A27140) unterstützt. TG wurde durch das Forschungs- und Innovationsprogramm Horizon 2020 der Europäischen Union im Rahmen des Marie Sklodowska-Curie-Förderprogramms 101107988 finanziert. Schaltpläne wurden mit BioRender (https://www.biorender.com/) erstellt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| A83-01 (TGF-Β Inhibitor) | Tocris | 2939 | |
| Adherent-invasive Escherichia coli LF82 | freundliches Geschenk von Nicolas Barnich | ||
| Fortgeschrittenes DMEM/F12 | Invitrogen | 12634-010 | |
| B27 ohne Vitamin A | Invitrogen | 12587010 | |
| cDNA-Kit | Angewandte Biosysteme | 4387406 | Das Handbuch ist hier erhältlich: https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| Zellzähler | DeNovix | H2796 | |
| Zellzähler | Leica | Stellaris | |
| Deckschichten 24 mm x 50 mm | Menzel-Glä ZER | BB024050S1 | |
| Cultrex-Basementmembran-Extrakt (BME) | R& D-Systeme, Bio-Techne | 3533-001-02 | |
| DAPI | Sigma-Aldrich | 10236276001 | |
| Einweg-Skalpell steril N° 10 | Swann Morton | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Fidschi | Fidschi | Fiji ist Open Access und kann hier heruntergeladen werden: https://imagej.net/software/fiji/downloads | |
| Glutamax | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasin | maßgeschneidert nach Wijnakker et al. PNAS 2024 | ||
| LB | Thermofisher | CM0996 | |
| LB Agar | Thermofisher | CM1116 | |
| Malassez-Kammer | KOVA | 87144E | |
| Objektträger mit dem Mikroskop | Skycraft | 18901 | |
| Milli-Zellen-Voltohmmeter (TEER-Messung) | Merck | MERS00002 | |
| Montagemedium | Vektor-Labore | Vectashield H-1000-10 | |
| N-Acetylcystein | Sigma-Aldrich | A9165 | |
| Nikotinamid | Sigma-Aldrich | N0636 | |
| Noggin UPE | IPA-Therapeutika | N002 | |
| ParaFormaldehyd-Lösung 4% | Sigma-Aldrich | 1.00496 | |
| Phalloidin 647 | Sigma-Aldrich | 65906-10NMOL | |
| Plasmid pMB1-Spect-PthrC-eGFP | Addgene | 107408 | |
| Prostaglandin E2 | Tocris | 2296 | |
| qPCR-Maschine | Biorad | C1000-Touch | |
| Rho-Kinase-Inhibitor | AbMole | M1817 | |
| RNA-Extraktionsset | Qiagen | 74534 | Das Handbuch ist hier erhältlich: https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | IPA-Therapeutika | R001 | |
| SB202190 (p38-Inhibitor) | Sigma-Aldrich | S7076 | |
| Spectinomycin | Sigma-Aldrich | S9007 | |
| Aufhängungsplatte für Organoidkultur | Greiner | 665102 | |
| SYBR grün | Biorad | 170-8887 | Das Handbuch ist hier verfügbar: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| Thermocycler | Biorad | T100 | |
| Zellkultur-Einsatz | Transwells 24w 3 & micro; M pores, Greiner | 662631 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| TrypLE | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Wnt-Surrogat | U-Protein Express | Sonderbestellung | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
Referenzen
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
Nachdrucke und Genehmigungen
