SNRNP70 zeigt Potenzial als diagnostischer Marker für Arthrose (OA), mit einer konstant niedrigeren Expression in OA-Geweben als bei Kontrollgruppen. Es kann auch entzündungshemmende Wirkungen haben, was auf einen therapeutischen Weg hindeutet. Zukünftige mechanistische Studien könnten dazu beitragen, das Management von OA voranzubringen.
Forschungsartikel
SNRNP70 ist mit fokalen adhäsionsbezogenen Signaturen und einer Chondrozytenentzündung bei Arthrose assoziiert
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Arthrose (OA) ist eine degenerative Gelenkerkrankung, die durch fortschreitenden Knorpelabbau und Synovialentzündung gekennzeichnet ist, doch die wichtigsten molekularen Treiber ihrer Pathogenese sind weiterhin unvollständig verstanden. Hier wurde untersucht, ob SNRNP70 – ein Kernbestandteil des U1 snRNP-Komplexes, der für das Pre-mRNA-Spleißen unerlässlich ist – zur OA-Entwicklung beiträgt. Die Analyse von zehn öffentlichen transkriptomischen Datensätzen zeigte , dass SNRNP70 im OA-Knorpel im Vergleich zu normalen Kontrollgruppen konstant herunterreguliert war. Eine Metaanalyse zeigte zudem eine gute diagnostische Genauigkeit für OA, mit einem gepoolten AUC von 0,92. In primären Ratten-Chondrozyten, die mit Interleukin-1β (IL-1β) stimuliert wurden, wurde SNRNP70 Expression unter entzündlichen Bedingungen unterdrückt. Die erzwungene Expression von SNRNP70 reduzierte nicht nur die Produktion proinflammatorischer Mediatoren (IL-6 und MMP-13), sondern stellte auch wichtige Komponenten der extrazellulären Matrix (ECM) (ACAN und COL2A1) wieder her und förderte die Migration und Wundheilung der Chondrozyten. Die Pearson-Korrelation, gefolgt von der KEGG-Anreicherung, zeigte, dass fokale Adhäsionssignale ein mit SNRNP70 Regulierung assoziierter Weg ist. Rettungsexperimente unterstützten die Vorstellung, dass SNRNP70 die Reparaturfähigkeit der Chondrozyten zumindest teilweise durch die Aktivierung dieses Weges verbessert. Zusammen deuten diese Ergebnisse darauf hin, dass SNRNP70 als bisher unbekannter Regulator der Funktion der entzündlichen Chondrozyten und der Knorpelhomöostase dienen könnte. Sie werfen zudem die Möglichkeit eines mechanistischen Zusammenhangs zwischen Spliceosomenaktivität und fokal-adhäsion-vermittelter Matrixsynthese auf, was eine weitere Bewertung der SNRNP70 als Kandidat-Diagnosemarker oder therapeutisches Ziel bei OA rechtfertigt.
Einleitung
Arthrose (OA) stellt eine häufige Gelenkerkrankung dar, die überwiegend Personen ab 65 Jahren betrifft und etwa 7 % der Weltbevölkerung betrifft. Erstaunlicherweise stieg zwischen 1990 und 2019 die weltweite Prävalenz von OA um beeindruckende 113,25 % und stieg von 247,51 Millionen auf 527,81Millionen Fälle. OA ist hauptsächlich durch das heimtückische Fortschreiten degenerativer Veränderungen im Gelenkgewebe gekennzeichnet, wobei insbesondere Knorpelabbau und Synovialentzündung 4,5,6 auftreten. Bemerkenswert ist, dass mechanische Überlastung und der unaufhaltsame Lauf der Zeit als die beiden ausgeprägtesten Risikofaktoren etabliert wurden, die zu ihrer Pathogenesebeitragen 7,8. Darüber hinaus unterstreichen immer mehr Studien die entscheidende Rolle der Meniskendegeneration als integrales Element der komplexen Pathologie von OA9. Frühere Untersuchungen haben überzeugend gezeigt, dass Meniskusläsionen 68 % bis 90 % der OA-Patientenbetreffen.
Auf molekularer Ebene deutet eine wachsende Menge an Belegen darauf hin, dass OA nicht nur eine Folge biomechanischen Stresses und Alterns ist, sondern auch eine Krankheit, die durch komplexe Veränderungen in der Genregulation und posttranskriptionellenKontrolle ausgelöst wird. Unter diesen Mechanismen hat das Spliceosom in verschiedenen Krankheitskontexten zunehmend Aufmerksamkeit erregt. Interessanterweise ist die Rolle des Spliceosoms bei der OA zwar im Mittelpunkt umfangreicher Forschung zur Pathogenese von Entzündungen, aber die Rolle des Spliceosoms bei OA bleibt deutlich unterschätzt 15,16,17. Im Wesentlichen kann das Spliceosom als proteingerichtetes Metallribozym18,19 konzeptualisiert werden. Unter diesen Mechanismen hat sich das RNA-Spleißen als entscheidender Determinant für den Chondrozytenphänotyp und die ECM-Homöostase erwiesen. Präzises Spleißen gewährleistet die korrekte Expression von Struktur- und Signalproteinen, die für die Integrität des Knorpels unerlässlich sind, während abweichendes Spleißen den ECM-Wechsel stören, katabolische Signalwege fördern und die Knorpeldegeneration beschleunigenkann 20,21,22.
Jüngste Studien haben spliceosomale Proteine als Schlüsselregulatoren der Homöostase des Gelenkgewebes hervorgehoben, doch die Rolle dieser Proteine in der OA-Pathogenese ist weitgehend unerforscht23. Insbesondere steuert SNRNP70, eine Kernkomponente des U1-kleinen nuklearen Ribonukleoproteinkomplexes, die Erkennung von 5′-Spleißstellen während der Prä-mRNA-Verarbeitung und beeinflusst damit die Einbeziehung oder Ausschluss spezifischer Exonen24,25. Eine Dysregulation von SNRNP70 wurde mit verschiedenen pathologischen Zuständen in Verbindung gebracht, aber ihr Beitrag zur Knorpeldegeneration wurde bisher nicht charakterisiert. Ein mögliches Ziel der spliceosomvermittelten Regulation ist die fokale Adhäsionskinase (FAK), ein zentrales Signalmolekül, das mechanische und biochemische Hinweise integriert, um Chondrozytenadhäsion, zytoskelettale Dynamik, Überleben und Mechantransduktion26 zu steuern. Eine erhöhte FAK-Aktivität wurde mit einer erhöhten fokalen Adhäsionssignalisierung in Verbindung gebracht, die wiederum die ECM-Synthese und Hochregulierung wichtiger knorpelspezifischer Proteine, darunter Aggrecan (ACAN) und Kollagen Typ II Alpha 1 (COL2A1)27,28, fördert. Diese Proteine sind unverzichtbar für die Aufrechterhaltung der Knorpelstruktur und -funktion, und ihre Downregulation ist ein Kennzeichen für das Fortschreiten der Artrose.
Trotz Fortschritten in der transkriptionellen und epigenetischen Forschung zu OA bleibt die Rolle der spliceosom-vermittelten FAK-Regulation bei der Kontrolle der fokalen Adhäsionssignale und des ECM-Stoffwechsels weiterhin schlecht definiert. Basierend auf diesen Beobachtungen wurde geschlossen, dass SNRNP70 das Chondrozytenverhalten und die ECM-Homöostase beeinflussen könnte, indem es das FAK-Alternative-Spleißen und die nachgeschaltete fokale Adhäsionssignalisierung moduliert. Um diese Idee zu testen, war die erste Frage, ob SNRNP70 Ausdruck in OA verändert wird; Sein Potenzial als diagnostischer Marker wurde bewertet, und mögliche Verbindungen zu entzündlichen Reaktionen und fokalen adhäsionsbezogenen Signalwegen in Chondrozyten wurden untersucht.
Protokoll
Das Tierversuchsprotokoll wurde vom Ethikausschuss der Guangxi Medical University und dem ersten assoziierten Krankenhaus der Guangxi Medical University genehmigt (Protokollcode 202109001, NR. 2022-KY-E-252).
VORSICHT: Alle Verfahren müssen den institutionellen und nationalen Tierpflegerichtlinien folgen. Geschultes Personal muss beim Umgang mit Tieren oder Proben PSA (Handschuhe, Masken, Laborkittel) tragen. Operationen erfordern eine angemessene Anästhesie und postoperative Überwachung. Melden Sie unerwünschte Ereignisse (Blutungen, Infektionen, Verhaltensänderungen) umgehend. Entsorgen Sie Kadaver und kontaminierte Materialien ordnungsgemäß. Führen Sie regelmäßige Inspektionen durch, um die Einhaltung sicherzustellen. Die kommerziellen Details der in dieser Studie verwendeten Tiere, Reagenzien und Geräte sind in der Materialtabelle aufgeführt.
Patienten und Genexpressionsdatensätze
Um die Expressionsmuster von SNRNP70 bei OA zu untersuchen, wurden öffentlich verfügbare RNA-Sequenzierungs- (RNA-seq) und Mikroarray-Datensätze systematisch aus der Gene Expression Omnibus (GEO)-Datenbank (https://www.ncbi.nlm.nih.gov/geo/)21 abgerufen. Die Suchstrategie umfasste folgende Schlüsselwörter: "SNRNP70 ODER RPU1 ODER Snp1 ODER U1AP ODER U170K ODER U1RNP ODER RNPU1Z ODER SNRP70 ODER U1-70K" kombiniert mit "OA." Die Einschlusskriterien wurden wie folgt definiert: (i) Datensätze, die aus menschlichen Proben stammen; (ii) Studien, die sich speziell auf OA konzentrieren, wobei rheumatoide Arthritis und andere entzündliche Gelenkerkrankungen ausgeschlossen sind; (iii) Verfügbarkeit von mindestens drei unabhängigen biologischen Replikaten sowohl in OA- als auch in Normalkontrollgruppen (NC), wodurch die Berechnung standardisierter Mittelwertdifferenzen (SMD) ermöglicht wird. Datenverarbeitungs-Workflow: Nach der Identifizierung geeigneter Datensätze wurden die Rohexpressionsdaten und die entsprechenden klinischen Metadaten heruntergeladen. Für Microarray-Datensätze wurden Sondendaten mit dem robusten Multi-Array-Average-(RMA)-Algorithmus normalisiert, und Sonden wurden mit offiziellen Gensymbolen annotiert und die Annotationsdateien der Plattform verwendet. Für RNA-seq-Datensätze wurden die Rohzählungen in Transkripte pro Million (TPM) umgewandelt und anschließend log2-transformiert, um Vergleichbarkeit zwischen Datensätzen sicherzustellen. Wenn mehrere Sonden auf dasselbe Gen abgebildet wurden, blieb die Sonde mit der höchsten Expressionsvarianz über die Proben erhalten. Qualitätskontrolle und Harmonisierung: Um Batch-Effekte über verschiedene Studien hinweg zu minimieren, wurde die ComBat-Funktion aus dem "sva"-R-Paket angewendet. Die Hauptkomponentenanalyse (PCA) wurde sowohl vor als auch nach der Korrektur durchgeführt, um die Wirksamkeit der Batch-Effekt-Entfernung zu bewerten. Datensätze, die schlechte Qualität, unvollständige Annotationen aufwiesen oder nicht zwischen OA- und NC-Gruppen unterscheiden, wurden von weiterer Analyse ausgeschlossen.
Identifizierung von differenziell exprimierten SNRNP70 in Arthrose und normalem Knorpelgewebe
Um die differenzielle Expression von SNRNP70 zwischen OA- und normalem Knorpelgewebe (NC) zu bewerten, wurde ein mehrstufiger analytischer Ansatz angewandt. Zunächst wurden Expressionsdaten für SNRNP70 aus verfügbaren Datensätzen extrahiert. Statistische Vergleiche zwischen OA- und NC-Gruppen wurden mit dem Student's t-Test durchgeführt, um festzustellen, ob sich die durchschnittlichen Ausdrucksniveaus signifikant unterschieden. Um die Diskriminierungskraft von SNRNP70 weiter zu bewerten, wurden Empfänger-Betriebscharakteristik (ROC)-Kurven mit GraphPad Prism 8.0 und der Sangerbox-Plattform (http://vip.sangerbox.com/) erzeugt. Die Fläche unter der Kurve (AUC) wurde berechnet, um die diagnostische Effizienz SNRNP70 Ausdrucksniveaus zu quantifizieren.
Anschließend wurde eine Metaanalyse mit Stata 14.0 durchgeführt, um Ergebnisse über mehrere Datensätze hinweg zu integrieren. Die statistische Heterogenität wurde mit dem Cochran-Q-Test undder I2-Statistik bewertet. Wenn die Heterogenität gering war (p > 0,01 und I2 < 50 %), wurde ein Modell mit festen Effekten angewendet; ansonsten wurde ein Random-Effects-Modell übernommen. Die standardisierte mittlere Differenz (SMD) mit dem entsprechenden 95%-Konfidenzintervall (KI) wurde berechnet, um die differenzierte SNRNP70 Expression zwischen OA- und NC-Geweben zu quantifizieren. Zur diagnostischen Genauigkeit wurde eine diagnostische Metaanalyse mit dem Midas-Modul in Stata durchgeführt. Diese Analyse schätzte die gepoolte Sensitivität, Spezifität, positives Likelihood-Verhältnis (PLR), negatives Likelihood-Verhältnis (NLR) und diagnostisches Odds-Verhältnis (DOR) für SNRNP70. Zusätzlich wurde eine zusammenfassende Empfänger-Betriebscharakteristik (sROC)-Kurve erstellt, um eine Gesamtbewertung der diagnostischen Leistung zu liefern. Schließlich wurden Sensitivitätsanalysen durchgeführt, indem einzelne Datensätze sequentiell ausgeschlossen wurden, um die Robustheit und Stabilität der zusammengefassten Ergebnisse zu bewerten. Der potenzielle Publikationsbias wurde mit dem Funnelplot-Asymmetrietest von Deeks bewertet. Mit diesem integrierten analytischen Rahmen wurden die Expressionsmuster und das diagnostische Potenzial von SNRNP70 in OA-Geweben im Vergleich zu NC-Geweben systematisch bewertet.
Zellisolierung und -kultur
Primäre Chondrozyten wurden aus dem Gelenkknorpel der postnatalen Sprague–Dawley-Ratten am zweiten Tag isoliert. Für jede Isolation wurden insgesamt sechs neonatale Ratten eingesetzt. Da die Tiere in einer frühen postnatalen Phase gesammelt wurden, wurde das Geschlecht nicht bestimmt. Für jede unabhängige Zellpräparation wurden Knorpelgewebe aller sechs Ratten entnommen und vor der Kultur gesammelt. Jede unabhängig isolierte Chondrozytenpräparat – abgeleitet von einer separaten Tiergruppe – wurde als eine biologische Replikation behandelt. Technische Replikate, einschließlich wiederholter Wells oder wiederholter qRT-PCR-Reaktionen aus derselben Zellpräparate, wurden nicht als unabhängige biologische Replikate betrachtet.
Kurz gesagt, Neugeborenenratten wurden unter sterilen Bedingungen eingeschläfert, und die Kniegelenke wurden seziert, um den Gelenkknorpel freizulegen. Knorpelgewebe wurde vorsichtig mit einer mikrochirurgischen Schere vom subchondralen Knochen getrennt, in Fragmente von etwa 1 mm³ zerkleinert und anschließend sequentiell mit Enzymen verdaut. Die Gewebefragmente wurden zunächst mit 0,25 % Trypsin–EDTA für 30 Minuten bei 37 °C inkubiert, um das restliche Bindegewebe zu entfernen. Nach dem Waschen mit phosphatgepufferter Kochsalzlösung wurden die verbleibenden Fragmente mit 0,2 % Kollagen Typ II in serumfreiem DMEM für 4–6 Stunden bei 37 °C mit sanftem Rühren verdaut. Die resultierende Zellsuspension wurde durch ein 70 μm Zellsieb gefiltert, bei 300 × g für 5 Minuten zentrifugiert und in vollständigem DMEM neu suspendiert, ergänzt mit 10 % fetalem Rinderserum, 100 U/mL Penicillin und 100 μg/mL Streptomycin. Die Zellen wurden in Kulturkolben ausgesät und bei 37 °C in einem befeuchteten Inkubator mit 5 % CO₂ gehalten. Das Medium wurde alle 2–3 Tage gewechselt. Für nachfolgende Experimente wurden nur Chondrozyten Passage 1 oder 2 verwendet, um die Dedifferenzierung zu minimieren.
Die Identität und Reinheit der Chondrozyten wurden vor der experimentellen Anwendung bestätigt. Morphologisch zeigten Primärzellen unter Phasenkontrastmikroskopie ein typisches polygonales oder kopfsteinartiges Chondrozyten-Aussehen. Auf molekularer Ebene wurde die Chondrozytenidentität durch die Expression von knorpelassoziierten Markern, darunter COL2A1 und ACAN, unter Verwendung eines Western-Blots bestätigt. Für das in-vitro-Entzündungsmodell wurden primäre Chondrozyten mit rekombinantem Ratteninterleukin-1β (IL-1β) bei 10 ng/mL für 48 Stunden stimuliert. Unbehandelte Zellen, die unter identischen Bedingungen kultiviert wurden, dienten als normale Kontrollgruppe. Für SNRNP70 Überexpressionsexperimente wurden Chondrozyten aus unabhängigen biologischen Präparaten separat transfiziert, und jede biologische Replikation wurde unabhängig während der Transfektion, IL-1β-Stimulation, RNA/Protein-Extraktion und statistischer Analyse verarbeitet.
Echtzeit-quantitative PCR (qRT-PCR)
Die Gesamt-RNA wurde aus subkonfluenten Chondrozytenkulturen (~80 % Konfluenz) mit dem RNAfast200-Kit isoliert. Die RNA-Reinheit wurde mit einem NanoDrop 2000 bewertet, wobei nur Proben mit einem A260/280-Verhältnis von 1,8–2,0 akzeptiert wurden, und die Integrität wurde durch 1 % Agarose-Gel-Elektrophorese bestätigt. Erststrang-cDNA wurde aus 1 μg Gesamt-RNA mit dem qPCR RT Kit in einer 20-μL-Reaktion mit zufälligen Primern und dNTPs rückwärts transkribiert. Das thermische Profil für die Reverse-Transkription betrug 42 °C für 30 Minuten, gefolgt von 95 °C für 5 Minuten. qPCR wurde mit einem SYBR Green-basierten Premix auf einem Echtzeit-PCR-System durchgeführt. Jede 20-μL-Reaktion bestand aus 10 μL SYBR Green Master Mix, jeweils 0,5 μL Vorwärts- und Rückwärtsprimern (10 μM), 2 μL cDNA und 7 μL nukleasefreiem Wasser. Die Radfahrbedingungen waren: 95 °C für 30 Sekunden, dann 40 Zyklen mit 95 °C für 5 Sekunden und 60 °C für 30 Sekunden. Die Analyse der Schmelzkurve wurde nach der Amplifikation durchgeführt, um die Spezifität eines einzelnen Produkts zu überprüfen. GAPDH diente als interne Referenz, und die relative Expression wurde mit der 2−ΔΔCt-Methode berechnet. Die Reaktionen wurden dreifach mit drei unabhängigen biologischen Replikaten durchgeführt. Die Primer-Sequenzen sind in Tabelle 1 aufgeführt.
Westlicher Blot
Die Proteinexpression von ACAN, COL2A1 und MMP13 wurde in Chondrozyten nach der Behandlung von IL-1β und SNRNP70 Überexpression untersucht. Die Zellen wurden zweimal mit eiskalten phosphatgepufferten Kochsalzlösung (PBS) gewaschen und in RIPA-Puffer mit Protease- und Phosphataseinhibitoren lysiert. Die Lysate wurden 30 Minuten auf Eis mit periodischem Vortexing inkubiert und anschließend bei 12.000 × g für 15 Minuten bei 4 °C zentrifugiert. Die Proteinkonzentrationen in den freigegebenen Supernatanten wurden mit einem BCA-Kit bestimmt. Gleiche Mengen Protein (30 μg pro Lane) wurden durch 10 % SDS-PAGE getrennt und durch Nasstransfer auf PVDF-Membranen übertragen. Die Membranen wurden mit 5 % fettarmer Milch in TBST bei Raumtemperatur 1 Stunde lang blockiert und dann über Nacht bei 4 °C mit primären Antikörpern gegen ACAN (1:1000), COL2A1 (1:1000) oder MMP13 (1:1000) untersucht. Nach drei TBST-Waschen (jeweils 10 min) wurden die Membranen mit HRP-konjugierten sekundären Antikörpern (1:5000) für 1 Stunde bei Raumtemperatur inkubiert. Das Signal wurde mit ECL-Reagenz entwickelt und auf einem ChemiDoc XRS+-System erfasst. Die Banddensitometrie wurde mit ImageJ durchgeführt, und alle Zielproteinsignale wurden als Ladekontrolle auf GAPDH normalisiert. Die Daten werden als relative Proteinwerte im Vergleich zur Kontrollgruppe präsentiert.
Transfektion
Chondrozyten wurden mit einem SNRNP70 Überexpressionsplasmid (Oe-SNRNP70) transfektiert, sobald die Kulturen etwa 80 % Konfluenz erreicht hatten. Zur Transfektion wurden die Zellen in 6-Well-Platten mit 2 × 10⁵ Zellen pro Bohrloch ausgesat und über Nacht in einem Standard-Wachstumsmedium (DMEM ergänzt mit 10 % fetalem Rinderserum und 1 % Penicillin/Streptomycin) bei 37 °C bei 5 % CO₂ anhaftet. Transfektionen wurden mit LipoFiter 3.0 gemäß den Anweisungen des Herstellers durchgeführt. Kurz gesagt, 2–3 μg Plasmid-DNA pro Bohrloch wurden in 100 μL serumfreiem Medium verdünnt und mit der entsprechenden Menge Lipidreagenz vermischt. Die DNA-Lipid-Komplexe wurden 15–20 Minuten bei Raumtemperatur inkubiert, um die Komplexbildung zu ermöglichen, und dann vorsichtig jedem Brunnen mit Chondrozyten in frischem, serumfreiem Medium hinzugefügt. Nach 6 Stunden wurde das Medium durch vollständiges Wachstumsmedium ersetzt, um die Zytotoxizität zu verringern.
Transfektionseffizienz und SNRNP70 Expression wurden 48–72 Stunden nach der Transfektion bewertet. SNRNP70 mRNA-Spiegel wurden mittels quantitativer Echtzeit-PCR (qRT-PCR) gemessen, wobei GAPDH die interne Kontrolle war. Die Proteinexpression wurde mit dem Simple Western Automated Western Blot System gemäß dem Protokoll des Herstellers bewertet. Kurz gesagt: Zelllysate wurden vorbereitet, Proteinkonzentrationen gemessen und Proben auf Kapillarkartuschen geladen, um automatisierte Trennung und Immundetektion mit Anti-SNRNP70-Antikörpern durchzuführen. Die Transfektionseffizienz wurde berechnet, indem SNRNP70 Expression in oe-SNRNP70-transfizierten Zellen mit der in Kontrollzellen verglichen wurde, die mit dem leeren Vektor transfiziert wurden.
Immunfluoreszenz
Immunfluoreszenz wurde verwendet, um IL-6- und MMP-13-Proteinwerte in Oe-SNRNP70-Chondrozyten nach IL-1β-Stimulation zu untersuchen. Kurz gesagt wurden die Zellen in 24-Well-Platten auf sterile Glasdeckschichten ausgesät und unter Standardbedingungen kultiviert, bis sie 70–80 % Zusammenfluss erreichten. Anschließend wurden sie mit 4 % Paraformaldehyd für 15 Minuten bei Zimmertemperatur fixiert und dreimal mit PBS gewaschen. Zur Permeabilisierung wurden 0,1 % Triton X-100 in PBS für 10 Minuten bei Raumtemperatur aufgetragen. Unspezifische Bindungsstellen wurden blockiert, indem die Zellen 1 Stunde lang bei Raumtemperatur in 5%iges Rinderserumalbumin (BSA) in PBS inkubiert wurden.
Nach der Blockierung wurden die Zellen über Nacht bei 4 °C mit primären Antikörpern gegen IL-6 und MMP-13 inkubiert (verdünnt 1:200 in 1 % BSA/PBS). Nach drei Waschen mit PBS zur Entfernung ungebundener Primärantikörper wurden die Zellen mit artspezifischen, fluorophorkonjugierten sekundären Antikörpern (verdünnt 1:500) für 1 Stunde bei Raumtemperatur im Dunkeln inkubiert. Die Kerne wurden 5 Minuten lang mit 4′,6-Diamidino-2-Phenylindol (DAPI) gegenfärbt. Deckfolien wurden auf Glasfolien mit Antifade-Montagemedium montiert, und Fluoreszenzbilder wurden mit einem Fluoreszenzmikroskop bei 20× Vergrößerung aufgenommen. Für die quantitative Analyse wurden 10 zufällig ausgewählte Zellen pro Probe in ImageJ analysiert, um die Fluoreszenzintensität der Zielproteine zu messen. Die mittlere Fluoreszenzintensität wurde für jede Gruppe berechnet und für den statistischen Vergleich verwendet.
Zellkratz-Wundverschluss-Assay
Ein Scratch-Wundverschluss-Assay wurde durchgeführt, um die Fähigkeit der Chondrozyten zu bewerten, eine künstliche Wundlücke unter verschiedenen Behandlungsbedingungen zu schließen. Primäre Chondrozyten wurden in 6-Well-Platten mit einer Dichte von 1 × 10⁵ Zellen pro Bohrloch ausgesat und kultiviert, bis etwa 90 % Konfluenz erreicht war. Ein linearer Kratzer wurde in der Zellmonoschicht mit einer sterilen 200-μL-Pipettenspitze erzeugt. Abgetrennte Zellen wurden zweimal mit PBS gewaschen und anschließend ein frisches, vollständiges Kulturmedium mit den angezeigten Behandlungen hinzugefügt. Die Zellen wurden folgenden Gruppen zugeordnet: normale Kontrolle, IL-1β-behandelt und IL-1β plus SNRNP70 Überexpression. Bilder desselben Wundbereichs wurden nach 6 und 12 Stunden nach dem Kratzen mit einem umgekehrten Mikroskop aufgenommen (ergänzende Abbildung 1). Der Wundverschluss wurde als prozentuale Verringerung der Wundfläche im Vergleich zur anfänglichen Wundfläche bei 0 h mit folgender Formel berechnet:
Wundverschluss (%) = [(Wundbereich bei 0 h – Wundfläche zum angegebenen Zeitpunkt) / Wundbereich bei 0 H] × 100. (1)
Statistische Analyse
Alle quantitativen Daten werden als Mittelwert ± Standardabweichung (SD) von drei unabhängigen biologischen Replikaten (n = 3) präsentiert, sofern nicht anders angegeben. Statistische Analysen wurden mit GraphPad Prism 8.0 durchgeführt. Für Vergleiche zwischen zwei Gruppen wurde ein ungepaarter Schüler-t-Test verwendet. Die statistische Signifikanz wurde wie folgt angegeben: *p < 0,05 und **p < 0,01.
Ergebnisse
SNRNP70 Expression im Gelenkhöhlengewebe
Um die Rolle von SNRNP70 bei OA umfassend zu untersuchen, wurde ein systematisches Screening von 10 öffentlich zugänglichen RNA-seq- und Microarray-Datensätzen durchgeführt, die strenge Ein- und Ausschlusskriterien erfüllten (Tabelle 2). SNRNP70 Expressionsniveaus wurden sorgfältig extrahiert und in diesen Datensätzen analysiert. Auffällig ist, dass in 6 von 10 Kohorten SNRNP70 Expression in OA-Geweben im Vergleich zu normalen Kontrollgruppen signifikant herunterreguliert war (s. < 0,05), was auf ein konsistentes Muster der transkriptionellen Suppression hindeutet (Abbildung 1).
Bemerkenswert ist, dass drei Datensätze (GSE114007, GSE169077 und GSE19060) keine statistisch signifikanten Unterschiede zwischen OA- und Kontrollproben zeigten. Anstatt diese Unstimmigkeiten zu ignorieren, wurden Batch-Korrektur- und Datensatzintegrationsstrategien genutzt, um die Robustheit und Zuverlässigkeit der Analyse zu verbessern. Konkret wurden Datensätze, die von identischen Sequenzierungsplattformen stammen, zusammengeführt, um die statistische Leistungsfähigkeit zu erhöhen. Zum Beispiel wurde GSE114007 mit GSE89408 kombiniert, um GSE114007-89408 zu erzeugen, während GSE169077, GSE12021 und GSE55457 zu GSE169077-12021-55457 zusammengeführt wurden (Abbildung 1). Dieser integrative Ansatz minimierte die Variabilität zwischen den Studien und stärkte die Reproduzierbarkeit der Ergebnisse. Zusammenfassend zeigen Analysen menschlicher Datensätze eine konsistente Downregulation der SNRNP70 in OA-Artikulargeweben, was auf sein Potenzial als diagnostischer Biomarker hindeutet. Ob dieser Rückgang beim Menschen direkt zu einer Dysregulation des Spleißens oder Knorpeldegeneration führt, ist jedoch unklar und wartet noch auf Verifikation, vorzugsweise in menschlichen Gewebemodellen.
Klinische diagnostische Fähigkeit von SNRNP70
Um den diagnostischen Wert der SNRNP70 bei OA rigoros zu bewerten, wurde eine umfassende Metaanalyse durchgeführt, die Daten von 165 OA-Proben und 125 normalen Kontrollgruppen integrierte. Dies stellt nach bestem verfügbaren Wissen die systematische Bewertung von SNRNP70 als potenziellen diagnostischen Biomarker bei OA dar. Die Heterogenitätsanalyse zeigte signifikante Heterogenität zwischen Datensätzen (I2 = 72,9 %; p = 0,001), was ein Random-Effects-Modell notwendig macht. Die Pool-Analyse zeigte eine robuste und konsistente Reduktion der SNRNP70-Expression in OA-Geweben im Vergleich zu normalen Kontrollgruppen, mit einer standardisierten Mittelwertdifferenz (SMD) von -1,07 (95%-KI: -1,34 bis -0,80) (Abbildung 2A–B). Über das Ausdrucksprofiling hinaus wurde die diagnostische Leistung von SNRNP70 weiter bewertet. Die gebündelten diagnostischen Testergebnisse zeigten eine kombinierte Sensitivität von 0,82 (95 % KI: 0,57–0,94) und eine Spezifität von 0,88 (95 % KI: 0,73–0,95), was die starke Diskriminierungsfähigkeit unterstreicht (Abbildung 3A). Konsistent ergab die Kurve des Summary Receiver Operating Characteristic (SROC) eine Fläche unter der Kurve (AUC) von 0,92 (95%-KI: 0,90–0,94), was die hohe Genauigkeit von SNRNP70 bei der Unterscheidung von OA-Patienten von gesunden Personen weiter unterstreicht (Abbildung 3B).
Um die Robustheit dieser Ergebnisse zu gewährleisten, wurde eine Sensitivitätsanalyse durchgeführt, die bestätigte, dass der sequentielle Ausschluss einzelner Datensätze die Gesamtwirkungsgröße nicht wesentlich veränderte (Abbildung 4A). Wichtig ist, dass sowohl Deeks Funnelplot-Asymmetrietest (p = 0,41) als auch Eggers Test keinen signifikanten Publikationsverzerrung zeigten, was die Glaubwürdigkeit der Ergebnisse unterstreicht (Abbildung 4B). Zusammen zeigen diese Daten, dass SNRNP70 Expression bei OA reduziert ist und deuten darauf hin, dass sie als diagnostischer Biomarker dienen könnte. Dennoch rechtfertigen die Heterogenität zwischen Datensätzen und das Fehlen einer unabhängigen Validierungskohorte Vorsicht. Diese Ergebnisse gelten daher als vorläufig und warten auf weitere Studien, um den klinischen Nutzen von SNRNP70 bei der Diagnose und Behandlung von Arthrose zu klären.
SNRNP70 Modulation der entzündlichen Genexpression bei OA
Um die regulatorische Rolle von SNRNP70 bei der entzündlichen Signalübertragung während des Progressions von OA zu definieren, wurde zunächst ein in-vitro-OA-Modell entwickelt, indem Chondrozyten IL-1β, einem gut charakterisierten pro-inflammatorischen Zytokin, exponiert wurden. qRT-PCR-Analyse nach 48 Stunden IL-1β-Stimulation zeigte eine signifikante Downregulation der SNRNP70 mRNA-Spiegel im Vergleich zur NC-Gruppe (Abbildung 5). Diese Unterdrückung der SNRNP70-Expression unter entzündlichen Bedingungen stimmte mit transkriptomischen Daten aus öffentlich verfügbaren OA-Datensätzen überein und lieferte damit robuste Hinweise darauf, dass SNRNP70 bei OA-assoziierten Entzündungen konstant unterdrückt wird. Um weiter zu untersuchen, ob die Wiederherstellung SNRNP70 Expression den entzündlichen Phänotyp der Chondrozyten modulieren könnte, wurden Zellen mit einem SNRNP70-Überexpressionsplasmid (oe-SN) transfektiert. Bemerkenswerterweise linderte die erzwungene Expression von SNRNP70 die IL-1β-induzierte Entzündung erheblich, was sich sowohl in transkriptionellen als auch translationalen Veränderungen widerspiegelt. Konkret zeigte qRT-PCR eine robuste Reduktion der IL-6- und MMP-13-mRNA-Spiegel in der oe-SN-Gruppe im Vergleich zu mit IL-1β behandelten Kontrollgruppen (Abbildung 5).
Zusätzlich zu diesen molekularen Befunden lieferte die Immunfluoreszenzfärbung direkte zelluläre Belege für das entzündungshemmende Potenzial von SNRNP70. In IL-1β-behandelten Zellen zeigte IL-6 eine ausgeprägte zytoplasmatische Ansammlung, was mit einem aktivierten Entzündungszustand übereinstimmt. Bemerkenswert ist, dass die Überexpression von SNRNP70 zu einer deutlichen Abschwächung der zytoplasmatischen Färbungsintensität von IL-6 führte (Abbildung 6A), was ihre Fähigkeit hervorhebt, die Entzündungsreaktion auf zellulärer Ebene umzukehren. Ein ähnliches Muster wurde bei MMP-13 beobachtet, wobei die IL-1β-Behandlung dessen Expression verbesserte, SNRNP70 Überexpression jedoch die MMP-13-Lokalisierung und Signalintensität deutlich unterdrückte (Abbildung 6B).
Im Gegensatz zu früheren Untersuchungen, die sich hauptsächlich auf strukturelle Knorpelschäden konzentrierten, deuten die in-vitro-Daten von Rattenchondrozyten darauf hin, dass SNRNP70 als Regulator der entzündlichen Genexpression wirkt. Insbesondere die erzwungene Expression von SNRNP70 abgeschwächten IL-1β-getriebenen pro-inflammatorischen Mediatoren, darunter IL-6 und MMP-13, in diesem Rattenmodell. Wichtig ist, dass diese Experimente, da sie ausschließlich in einem Rattenentzündungsmodell durchgeführt wurden, die Ergebnisse des menschlichen Datensatzes nicht direkt wiederholen. Dennoch bieten diese Ergebnisse einen konzeptionellen Rahmen, der darauf hindeutet, dass SNRNP70 nicht nur als Spleißfaktor, sondern auch als potenzieller Modulator von Entzündungen fungieren kann – eine Möglichkeit, die einer weiteren Untersuchung im menschlichen Gewebe würdig ist.
Identifikation von SNRNP70-verwandten Signalwegen bei OA
Um biologische Wege zu erforschen, die mit SNRNP70 Expression bei Arthrose assoziiert sind, wurde die Pearson-Korrelationsanalyse separat in den öffentlichen transkriptomischen Datensätzen GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 und GSE82107-19060 durchgeführt. Gene mit einem absoluten Korrelationskoeffizienten (|r|) > 0,8 und p < 0,05 wurden in jedem Datensatz als signifikant korreliert mit SNRNP70 Expression betrachtet. Die Vereinigung korrelierter Gene über alle Datensätze hinweg wurde erzeugt, was 929 SNRNP70-verwandte Gene ergab.
Die KEGG-Anreicherungsanalyse des Signalwegs wurde anschließend mit dem clusterProfiler-Paket durchgeführt, mit Anpassungen für mehrfache Tests mittels der Benjamini–Hochberg-Methode. Diese Analyse zeigte eine signifikante Anreicherung der identifizierten Gene in mehreren Signalwegen, einschließlich des fokalen Adhäsionswegs (Abbildung 7). Diese Signalkaskade ist dafür bekannt, die Chondrozytenadhäsion, die Mechanotransduktion und die ECM-Remodellierung zu regulieren, die allesamt Schlüsselprozesse im Verlauf von OA sind. Zusammen deuten diese Ergebnisse auf einen Zusammenhang zwischen SNRNP70 Expression und fokaladhäsionsbezogenen Genexpressionssignaturen in OA-Datensätzen hin.
SNRNP70 vermittelt die Reparatur der entzündlichen Chondrozyten über den fokalen Adhäsionsweg
Um die Rolle von SNRNP70 bei der Wundheilungsfähigkeit von entzündlichen Chondrozyten zu bewerten, wurde ein Scratch-Wundverschluss-Test mit primären Chondrozyten durchgeführt. Die Zellen wurden drei Gruppen zugeteilt: normale Kontrolle, IL-1β-behandelt und IL-1β plus SNRNP70 Überexpression. Die IL-1β-Stimulation verringerte im Vergleich zur normalen Kontrollgruppe das Ausmaß der Kratzlücke und deutet auf eine beeinträchtigte Wundheilungsfähigkeit unter entzündlichen Bedingungen hin. Im Gegensatz dazu förderte SNRNP70 Überexpression den Scratch-Gap-Verschluss in IL-1β-behandelten Chondrozyten im Vergleich zur IL-1β-Behandlung allein (Abbildung 8A). Zusammen deuten diese Ergebnisse darauf hin, dass SNRNP70 Überexpression die Wundverschlussreaktion der mit IL-1β behandelten Chondrozyten verstärkt.
Auf molekularer Ebene zeigten Western-Blot-Analysen, dass die IL-1β-Behandlung die Expression der Knorpelmatrixproteine ACAN und COL2A1 unterdrückte und gleichzeitig die Hochregulation des abbaubaren Enzyms MMP13 förderte. Wichtig ist, dass SNRNP70 Überexpression nicht nur ACAN- und COL2A1-Werte wiederherstellte, sondern auch das MMP13 erheblich herunterregulierte und so die ECM-Integrität bewahrte (Abbildung 8B). Mechanistisch, in vitro, waren die vorteilhaften Effekte von SNRNP70 eng mit der Aktivierung des fokalen Adhäsionssignalwegs verbunden.
Zusammenfassend zeigen Analysen des menschlichen Datensatzes, dass SNRNP70 bei OA herunterreguliert ist und dass seine Expression mit Genen korreliert, die am fokalen Adhäsionsweg beteiligt sind. Bei Rattenchondrozyten, die IL-1β-Stimulation ausgesetzt sind, fördert die erzwungene Expression von SNRNP70 die entzündliche Zellreparatur und ECM-Synthese und ist außerdem mit der fokalen Adhäsionssignalisierung assoziiert. Obwohl diese In-vitro-Beobachtungen aus einem Rattenmodell suggestiv sind, bestätigen sie die aus menschlichen Datensätzen gewonnenen Ergebnisse nicht direkt. Dennoch stützen diese konvergenten Evidenzlinien ein Modell, in dem SNRNP70 zur Pathogenese der menschlichen OA durch fokale Adhäsionssignale beiträgt – eine Hypothese, die nun auf eine endgültige Bestätigung in menschlichen Geweben oder in vivo-Modellen mit menschlicher Relevanz wartet.
DATENVERFÜGBARKEIT:
Die in dieser Studie verwendeten und analysierten Datensätze sind aus dem GEO-Datensatz (https://www.ncbi.nlm.nih.gov/geo/) verfügbar. Alle während dieser Studie generierten oder analysierten Daten wurden vollständig präsentiert und im Manuskript diskutiert. Die Rohdaten dieser Studie werden als ergänzende Datei hochgeladen.
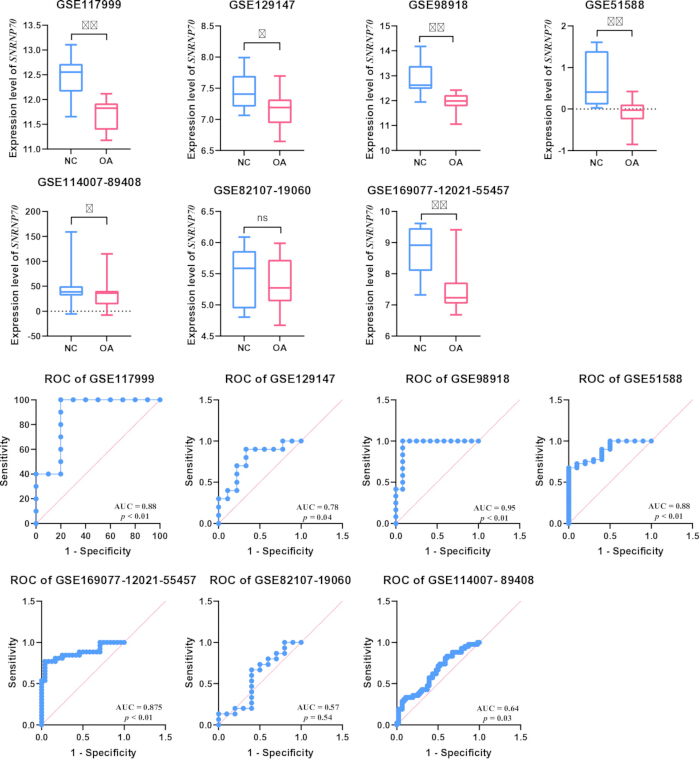
Abbildung 1: Der T-Test der Schüler und die ROC-Kurve für sieben Studien. Die Ergebnisse deuteten darauf hin, dass SNRNP70 Expression in OA-Geweben niedriger war als in NC-Geweben in GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 und GSE169077-12021-55457 (S. < 0,05), und der ROC AUC deutete auf eine hohe Machbarkeit hin. p < 0,05 (*), p < 0,01(**). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
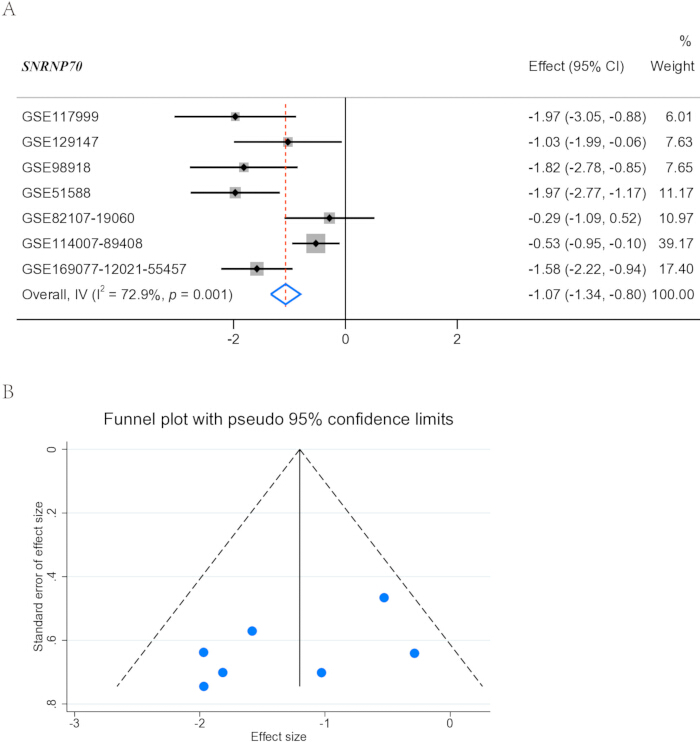
Abbildung 2: Die Metaanalyse für sieben Datensätze. (A) Die Ergebnisse zeigten, dass I2 = 72,9 %, p = 0,001 und der Gesamt-SMD -1,07 betrug. (B) Das Funnel-Diagramm wurde in der Metaanalyse auf Publikationsverzerrung bewertet. Es wurde festgestellt, dass es im Grunde symmetrisch ist. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
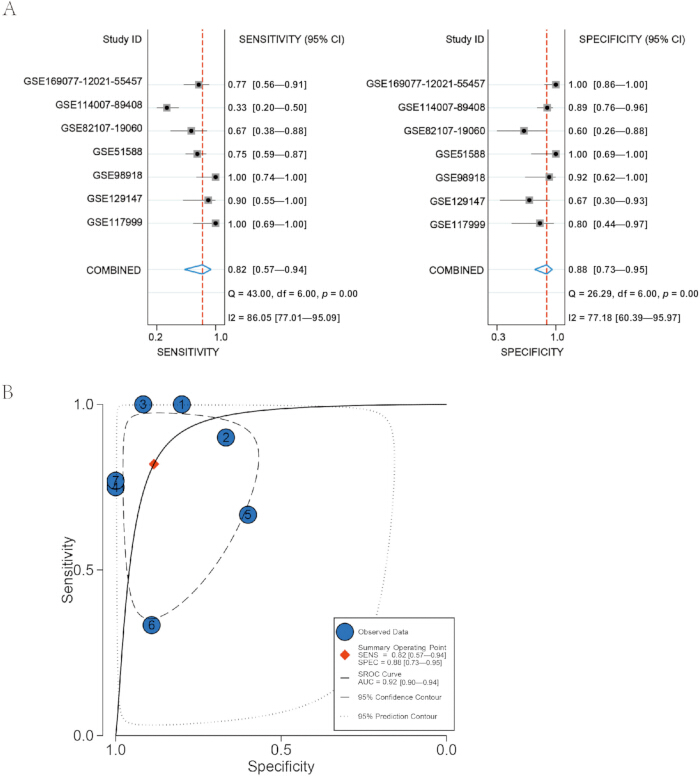
Abbildung 3: Die diagnostische Leistung von SNRNP70. (A) Der Q-Test zeigte, dass sowohl Sensitivität als auch Spezifität p-Werte < 0,05 aufwiesen, wobei I2-Werte von 86,05 % bzw. 77,18 % eine erhebliche Heterogenität anzeigen. Die Studie berichtete über eine Sensitivität von 0,82 und eine Spezifität von 0,88, was ihre bemerkenswerte Leistung hervorhebt. (B) Der AUC des sROC lag bei 0,92, was auf ein hohes Vertrauen in die Forschung hinweist. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
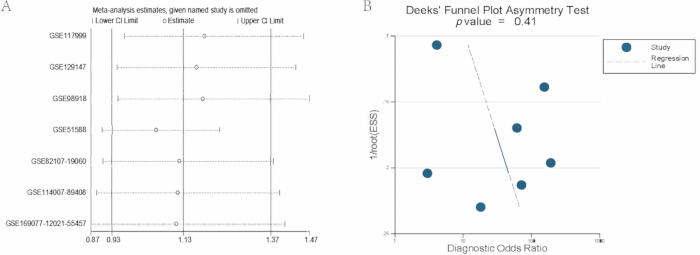
Abbildung 4: Einflussanalyse und Deeks Funnel-Diagramm. (A) Die Einflussanalyse zeigte, dass der Ausschluss einer einzelnen Studie die Gesamtergebnisse nicht signifikant beeinflusste. (B) In sieben Studien zeigten alle Ergebnisse keinen signifikanten Bias (p = 0,41). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
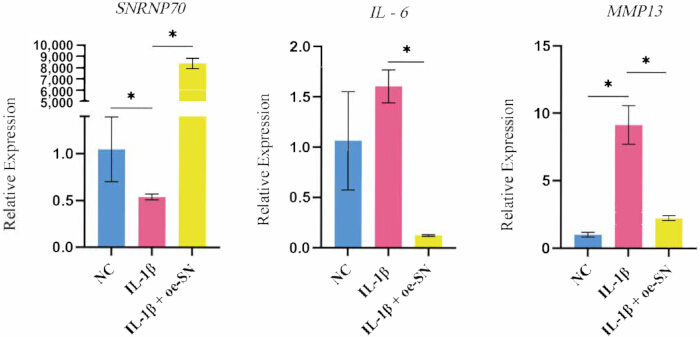
Abbildung 5: Die qRT-PCR-Ergebnisse zeigen eine signifikante Reduktion der SNRNP70-Expression in Chondrozyten nach der IL-1β-Behandlung. In der Oe-SN-Gruppe gab es einen deutlichen Rückgang der Expressionsniveaus der Entzündungsmarker IL-6 und MMP13 im Vergleich zur IL-1-Gruppe, was darauf hindeutet, dass eine Überexpression von SNRNP70 die Entzündungsmarker in mit IL-1β behandelten Chondrozyten umkehren kann. Die Daten werden als Mittelwert ± SD aus n = 3 unabhängigen biologischen Replikaten präsentiert. p-Werte < 0,05 (*), p-Werte < 0,01(**). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
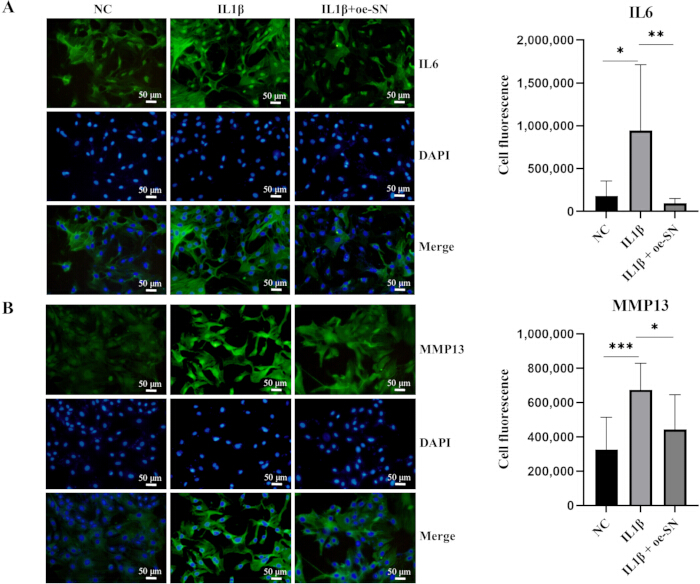
Abbildung 6: Die IF-Analyse der mit IL-1β behandelten Chondrozyten nach der IL-1β-Behandlung, die die Fluoreszenzintensität zeigt. (A) Die Fluoreszenzintensität von IL-6 und (B) MMP13 hat signifikant zugenommen. Die Überexpression von SNRNP70 führte jedoch zu einer deutlichen Reduktion der Fluoreszenzintensität der Entzündungsmarker IL-6 und MMP13. Diese Ergebnisse deuten darauf hin, dass SNRNP70 Überexpression Entzündungen in mit IL-1β behandelten Chondrozyten mildern kann. Alle mikroskopischen Bilder wurden mit 10-facher Vergrößerung aufgenommen. Die Daten werden als Mittelwert ± SD aus n = 3 unabhängigen biologischen Replikaten präsentiert. p-Werte < 0,05 (*), p-Werte < 0,01(**). Maßstabsleiste = 50 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung zu sehen.
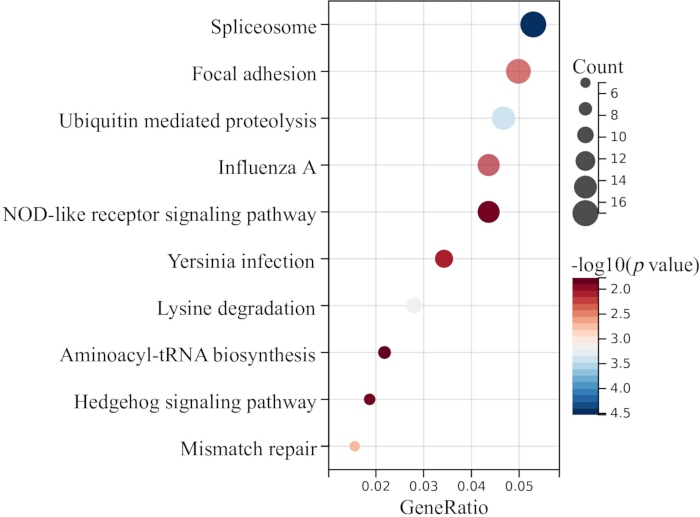
Abbildung 7: Korrelationsbasierte KEGG-Anreicherungsanalyse von SNRNP70-assoziierten Genen in Arthrose-Datensätzen. Top 10 angereicherte Wege, identifiziert durch clusterProfiler (Benjamini–Hochberg-Korrektur). Blasengröße = Genanzahl; Farbe = Bedeutung (-log10(p-Wert)). Der fokale Adhäsionsweg (hervorgehoben) vermittelt Chondrozytenadhäsion, Mechanotransduktion und ECM-Remodellierung bei OA. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
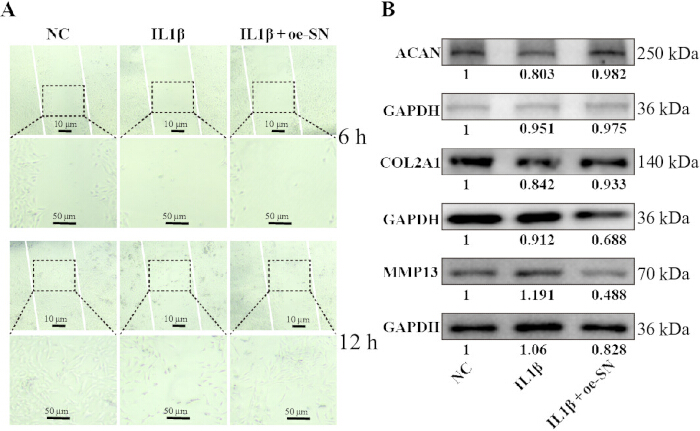
Abbildung 8: SNRNP70 Überexpression stellt die ECM-Reparatur in IL-1β-behandelten Chondrozyten wieder her. (A) Bilder von Kratzwoundverschluss in Kontrolle, IL-1β-behandelt, und IL-1β plus SNRNP70-Überexpressions-Chondrozyten. (B) Repräsentative westliche Blots der Schlüsselknorpelmatrix und kataboler Proteine. Die Membranen wurden auf ACAN, COL2A1 und MMP13 untersucht. GAPDH wird als Laststeuerung angezeigt. Die Vergrößerungen sind wie folgt: NC-, IL-1β- und IL-1β+oe-SN-Gruppen: Bei 4x Vergrößerung: Skala = 10 μm. Bei 10-facher Vergrößerung: Skala = 50 μm. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Ergänzende Abbildung 1: Quantitative Analyse des Wundverschlusses und der Western-Blot-Densitometrie. (A) Quantifizierung des Kratzwound-Verschlusses in primären Chondrozyten aus den NC-, IL-1β- und IL-1β + Oe-SNRNP70-Gruppen. (B) Densitometrische Quantifizierung der ACAN-, COL2A1- und MMP13-West-Blot-Bänder. Die Bandintensitäten wurden mit ImageJ quantifiziert und auf GAPDH normalisiert. Die Daten werden als Mittelwert ± SD aus n = 3 unabhängigen biologischen Replikaten präsentiert. *p < 0,05, **p < 0,01. Bitte klicken Sie hier, um diese Datei herunterzuladen.
| Zielgen | Vorwärts-Primer-Sequenz | Vorwärts-Primer-Sequenz |
| GAPDH | 5'-TCTCTGCTCCTCCCTGTGTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCCCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
Tabelle 1: Die Primer für die Zielgene. Vorwärts- und Rückwärts-Primersequenzen für GAPDH, SNRNP70, IL6 und MMP13 , die in qRT-PCR verwendet werden, sind alle in der 5′- > 3′-Ausrichtung dargestellt. GAPDH war die interne Kontrolle.
| Studien-ID | Plattform | NC (n) | OA (n) | Gewebe |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Knorpel |
| GSE117999 | GPL20844 | 10 | 10 | Knorpel |
| GSE129147 | GPL15207 | 9 | 10 | Knorpel |
| GSE169077 | GPL96 | 5 | 6 | Knorpel |
| GSE12021 | GPL96 | 13 | 20 | Synoviums |
| GSE55457 | GPL96 | 10 | 10 | Synoviums |
| GSE89408 | GPL11154 | 28 | 22 | Synoviums |
| GSE82107 | GPL570 | 7 | 10 | Synoviums |
| GSE19060 | GPL570 | 3 | 5 | Meniskus |
| GSE98918 | GPL20844 | 12 | 12 | Meniskus |
| GSE51588 | GPL13497 | 10 | 40 | Subchondrales Knochen |
Tabelle 2: Die Datensätze dieser Studie aus der GEO-Datenbank. Zusammenfassung von 11 öffentlich zugänglichen GEO-Datensätzen, die die Einschlusskriterien erfüllen. Für jeden Datensatz werden Accession-ID, Plattform sowie die Anzahl der Proben der normalen Kontrolle (NC) und Arthrose (OA) sowie Gewebetyp angegeben. n = Anzahl der Proben.
Diskussion
Die vorliegenden Arbeiten legen nahe, dass SNRNP70 als Schutzgen in der Pathogenese von OA fungieren könnte, einer facettenreichen Gelenkerkrankung, die eine bedeutende globale Herausforderung im Gesundheitswesen darstellt29,30. Diese Studie ist die erste, die die Rolle von SNRNP70 bei OA berichtet. In dieser Studie zeigten wir eine signifikante Downregulation der SNRNP70-Expression in OA-Geweben, wie die Analyse der GEO-Daten belegt (Gesamt-SMD = -1,07, 95%-KI: -1,34, -0,80; Abbildung 2). Wichtig ist, dass dieses Ergebnis anschließend in mit IL-1β behandelten Chondrozyten validiert wurde. Darüber hinaus untersuchte diese Studie die Rolle von SNRNP70 in der entzündlichen Antwort der mit IL-1β behandelten Chondrozyten. Als mit OA assoziiertes protektives Gen zeigte SNRNP70 die Fähigkeit, das Fortschreiten von OA zu behindern, indem es die Expression von IL-1 und MMP13 unterdrückte. Bis heute ist dies die erste experimentelle Studie, die eine erkennbare Diskrepanz in SNRNP70 Expressionsniveaus zwischen OA- und NC-Geweben berichtet, was auf eine mögliche Rolle für SNRNP70 bei der OA-Pathogenese hindeutet. Diese faszinierende Beobachtung veranlasst uns, die möglichen diagnostischen Implikationen von SNRNP70 bei OA zu betrachten.
Die von uns durchgeführte Metaanalyse, die mehrere RNA-Seq-Datensätze und -Arrays einbezog, lieferte Hinweise auf die potenzielle diagnostische Relevanz von SNRNP70. Der SMD von -1,07 unterstrich die konsequente Downregulation von SNRNP70 in OA-Geweben und erhöht die Möglichkeit ihres Nutzens als diagnostisches Kriterium. Die Analyse der ROC-Kurve betonte dieses Potenzial weiter mit einem AUC von 0,92, was auf eine robuste Diskriminierungskraft hinweist. Darüber hinaus unterstützten die kombinierten Sensitivitäts- und Spezifitätswerte die Vorstellung, dass SNRNP70 eine frühere und genauere OA-Diagnose ermöglichen könnte. Abgesehen von seinem diagnostischen Potenzial bleibt SNRNP70 ein Kandidat von Interesse im Kontext des OA-Managements. Die Pathogenese der OA ist ein multifaktorieller Prozess, der mechanische Überlastung, Alterung, genetische Veranlagung und Entzündungbeinhaltet 31,32. Unter diesen Faktoren wird die Entzündung zunehmend als Haupttreiber für das Fortschreiten von OAanerkannt 33,34. Sie orchestriert eine Kaskade von Ereignissen, darunter Knorpelabbau, Synovialentzündung und veränderte Gelenkhomöostase.
Diese Studie untersuchte das entzündungshemmende Potenzial von SNRNP70, motiviert durch seine Rolle als Spliceosom-Komponente35,36. Mit einem in-vitro-Modell wurden Chondrozyten mit rekombinanter Ratte IL-1β behandelt, um die entzündliche Mikroumgebung in OA-Gelenken nachzuahmen. Diese Ergebnisse deuten darauf hin, dass SNRNP70 eine Rolle bei der Modulation der Entzündung in IL-1β-stimulierten Chondrozyten spielen könnte. IF-Tests lieferten weitere Unterstützung für die entzündungshemmenden Eigenschaften von SNRNP70. Mit IL-1β behandelte Chondrozyten zeigten eine erhöhte Expression entzündlicher Proteine, die durch Oe-SN abgeschwächt wurden. Diese Modulation der entzündlichen Proteinexpression durch SNRNP70 verdeutlicht einen möglichen Zusammenhang mit der entzündlichen Kaskade, die mit der OA-Pathogenese verbunden ist.
Obwohl diese Studie beobachtende Belege für das diagnostische und therapeutische Potenzial von SNRNP70 bei OA liefert, bleiben die genauen Mechanismen ihrer Wirkung ein interessantesGebiet 37. SNRNP70 ist ein entscheidender Bestandteil des Spliceosoms, eines Komplexes, der am RNA-Spleißen beteiligt ist, einem grundlegenden Prozess in der Regulation der Genexpression. RNA-Splicing spielt eine entscheidende Rolle bei der Genexpression, indem es nicht-kodierende Regionen (Introns) entfernt und codierende Regionen (Exone) von mRNA-Molekülen verbindet, wodurch letztlich das Proteom 38,39,40 formt. Es ist plausibel, dass die Beteiligung von SNRNP70 am RNA-Splicing die Expression von Genen beeinflussen kann, die mit der OA-Pathogenese assoziiert sind. Die spezifischen RNA-Ziele und Spleißvorgänge, die durch SNRNP70 in OA-betroffenen Geweben reguliert werden, müssen noch geklärt werden. Das Verständnis dieser Mechanismen kann wertvolle Einblicke in die molekularen Grundlagen von OA und mögliche Ziele für weitere Untersuchungen bieten. Darüber hinaus sollte zukünftige Forschung die Wechselwirkung von SNRNP70 mit anderen Molekülen untersuchen, die an der OA-Pathogenese beteiligt sind. Die Untersuchung des Übersprechens mit Signalwegen, die an Entzündungen, Knorpelabbau und Gelenkremodellierung beteiligt sind, könnte ein umfassenderes Verständnis seiner vielfältigen Effekte ermöglichen.
Diese Studie hat bestimmte Einschränkungen, die eine Berücksichtigung verdienen. Obwohl die Metaanalyse eine beträchtliche Anzahl von Datensätzen umfasste, können Unterschiede im Studiendesign, in der Patientendemografie und in der Datenverarbeitung Heterogenität verursachen. Darüber hinaus variierten die eingeschlossenen Datensätze in der Gewebeherkunft (z. B. Knorpel versus Synovium) und in den Verarbeitungsplattformen, was teilweise die beobachtete Heterogenität zwischen den Studien erklären könnte (I2 = 73,3 %). Darüber hinaus basierte diese integrative Analyse auf öffentlich verfügbaren menschlichen Datensätzen, während die funktionalen Experimente Chondrozyten verwendeten, die aus neonatalen Ratten isoliert wurden. Diese artübergreifende Diskrepanz begrenzt das Ausmaß, in dem In-vitro-Befunde direkt auf die menschliche OA-Pathophysiologie extrapoliert werden können. Ein weiterer Vorbehalt ist die Abhängigkeit von einem akuten IL-1β-Stimulationsmodell, das nur die frühe Entzündungsreaktion erfasst und die chronische, progressive und multifaktorielle Natur der OA beim Menschen nicht vollständig wiederholt. Außerdem beschränkten sich die funktionalen Experimente auf Gain-of-Function-Ansätze (SNRNP70 Überexpression); Funktionsverlust-Experimente (z. B. SNRNP70 Knockdown) wurden nicht durchgeführt, was eine Einschränkung der aktuellen Studie darstellt. Schließlich wurden zwar die Korrelationsanalysen SNRNP70 in den fokalen Adhäsionsweg einbeziehen, aber FAK-Splicing-Ereignisse wurden nicht direkt untersucht, und experimentelle Belege dafür, dass die fokale Adhäsionssignale stromabwärts von SNRNP70 verändert sind, wurden nicht vorgelegt. Daher ist eine Validierung in größeren Patientenkohorten und Tiermodellen notwendig, um die Robustheit dieser Ergebnisse zu stärken. Darüber hinaus verwendeten die in-vitro-Experimente ein Zellkulturmodell, das möglicherweise nicht vollständig die komplexe in-vivo-Mikroumgebung der OA-Gelenke wiederbildet. Künftige Studien sollten die Auswirkungen SNRNP70 in Tiermodellen der OA untersuchen, um ihr therapeutisches Potenzial in einem physiologisch relevanteren Kontext zu bewerten.
Offenlegungen
Die Autoren haben keine Interessenkonflikte.
Danksagungen
Diese Forschung wurde vom Guangxi Key Research, China (GuiKe AB22035014), dem Special Fund of Characteristic Innovation Team des First Affiliated Hospital of Guangxi Medical University (YYZS2022003) und dem Hainan Provincial Health Science and Technology Innovation Joint Project (WSJK2026QN087) 2026 finanziert.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Primärantikörper, Verdünnung 1:1000 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | Primärantikörper, Verdünnung 1:1000 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | Antibiotika für Zellkultur |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | Primärantikörper, Verdünnung 1:1000 |
| BCA protein assay kit | Thermo Fisher Scientific | 23225 | Gesamtproteinkonzentrationsbestimmung |
| CFX96 Real-Time PCR Detection System | Bio-Rad | 1855195 | Real-Time PCR-Detektionssystem |
| ChemiDoc XRS+ imaging system | Bio-Rad | 1708265 | Chemilumineszenz-Bildgebungssystem |
| Collagenase type II | Sigma-Aldrich | C6885 | Knorpelgewebeverdauung, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Nukleare Gegenfärbung |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | Basalzellkulturmedium |
| ECL reagent | Thermo Fisher Scientific | 34580 | Verbessertes Chemilumineszenzreagenz |
| Fetal bovine serum | Gibco | 10082147 | 10% Konzentration als Kultursupplement |
| Fluorescent microscope | Olympus | BX53 | Immunfluoreszenz-Bildgebung (20x Vergrößerung) |
| GEO database | NCBI | N/A | Öffentliche RNA-Seq- und Mikroarray-Datensätze |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC-Kurvenanalyse |
| HRP-conjugated secondary antibodies | Santa Cruz Biotechnology | sc-516102 | Sekundärantikörper |
| ImageJ software | NIH | N/A | Densitometrische Analyse-Software |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Transfektionsreagenz |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA-Reinheits- und Konzentrationsmessung (A260/280 Verhältnis) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Überexpressionsplasmid |
| Penicillin | Thermo Fisher Scientific | 15140122 | Antibiotikum für Zellkultur |
| Primer-BLAST | NCBI | N/A | Genspezifische Primergestaltung |
| Primers (synthesized) | Sangon Biotech | N/A | Kommerzielle Synthese von PCR-Primern |
| protease and phosphatase inhibitor cocktails | Roche | 4693159001 | Cocktail aus Protease- und Phosphatase-Inhibitoren |
| PVDF membrane | Millipore | IPVH00010 | Proteintransfermembran |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Synthese der ersten cDNA-Strang |
| RIPA buffer | Beyotime | P0013B | Zelllysepuffer mit Protease- und Phosphatase-Inhibitoren |
| Recombinant rat interleukin-1β | PeproTech | 400-01B | Induziert eine Entzündungsreaktion in Chondrozyten |
| Sangerbox platform | http://vip.sangerbox.com/ | N/A | ROC-Kurvenanalyse |
| Simple Western Automated Western Blot System | ProteinSimple Jess | Jess (model 004-600) | Automatisiertes Proteinexpressions-Detektionssystem |
| Stata 14.0 | Stata | N/A | Meta-Analyse |
| Streptomycin | Thermo Fisher Scientific | Antibiotikum für Zellkultur | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | Real-Time quantitative PCR |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Totale RNA-Extraktion aus Chondrozyten |
| Trypsin-EDTA | Gibco | 25200072 | Zelldetachment, 0,25% Trypsin-EDTA |
Referenzen
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).