In dieser Studie haben wir durch einen Vergleich der Nachweisergebnisse von 24 kultivierten Bakteriensuspensionen von Helicobacter pylori (H. pylori), die mit Antigennachweis- und digitaler PCR-Methode erhalten wurden, deren Korrelationen analysiert, um deren Bedeutung bei der Charakterisierung von H. pylori Referenzmaterialien und der in vitro-diagnostischen Bewertung zu untersuchen.
Forschungsartikel
Korrelation der H. pylori-Antigentiter mit der digitalen Polymerase-Kettenreaktion zur Quantifizierung: Analytische Bewertung kultivierter, inaktivierter Isolate
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Standardisierung der Diagnose von Helicobacter pylori (H. pylori) bleibt aufgrund heterogener Nachweismethoden eine Herausforderung. Die Immunchromatographie erfasst H. pylori-spezifische Antigene, liefert jedoch nur qualitative Ergebnisse, die durch Interferenzen von löslichen bakteriellen Proteinen anderer Spezies beeinträchtigt werden können, die zu unspezifischer Bindung oder kompetitiver Hemmung führen. Im Gegensatz dazu ermöglicht die digitale PCR (dPCR) eine präzise Quantifizierung genomischer DNA-Kopien und identifiziert sowohl lebensfähige als auch nicht lebensfähige Bakterien. In dieser Studie wurden Endpunkttiter, die mittels Immunchromatographie ermittelt wurden (semi-quantitative Werte, berechnet als Kehrwert der höchsten nachweisbaren Verdünnung in zweifacher serieller Verdünnungsreihe), mit mittels dPCR quantifizierten Nukleinsäure-Kopienzahlen verglichen. Zwölfundzwanzig H. pylori-Bakteriensuspensionen, die 72 h bei 37 °C auf Brucella-Agar mit Zusatz von 5 % defibriniertem Schafsblut unter mikroaerophilen Bedingungen (85 % N2, 10 % CO2, 5 % O2) kultiviert wurden, wurden parallel antigenetischen Tests und dPCR-Analysen unterzogen. Zur statistischen Auswertung wurden die Korrelation nach Pearson und eine lineare Regression angewandt. Es zeigte sich eine signifikante positive Korrelation zwischen Antigentiter und genomischer Kopienzahl (r = 0,536, n = 24, P = 0,007). Der niedrige Determinationskoeffizient (R2 = 0,287) deutete jedoch auf eine begrenzte Vorhersagekraft hin, da der Antigentiter lediglich 29 % der durch dPCR gemessenen Varianz erklärte und keine zuverlässige Einzelprognose zulässt. Diskrepante Profile mit hohen dPCR-Werten bei niedrigen Titern könnten auf nicht lebensfähige Bakterienreste oder freie genomische DNA zurückzuführen sein. Antigenbasierte und nukleinsäurebasierte Assays quantifizieren biologisch verwandte, aber nicht austauschbare Analyten. Für die Entwicklung von Referenzmaterialien und die Validierung diagnostischer Assays wird eine mehrparametrige Charakterisierung vorgeschlagen, die koloniebildende Einheiten, Antigentiter und Genomkopienzahlen kombiniert. Diese Arbeit unterstreicht die Notwendigkeit spezifischer Konsensusleitlinien für H. pylori, um diagnostische Diskrepanzen zu klären.
Einleitung
Helicobacter pylori (H. pylori) ist ein mikroaerophiler, gramnegativer Stab, der häufig den menschlichen Magen-Darm-Trakt besiedelt, insbesondere den Antrum des Magens. Er ist die Hauptursache für chronische Gastritis, peptische Ulzera und Magenkarzinom1,2. Die Übertragung von H. pylori unter Menschen erfolgt hauptsächlich über orale oder fäkale Routen und ist weltweit verbreitet, wobei die Infektionsraten je nach Region variieren. In Industrieländern liegt die Infektionsrate bei etwa 50 %, während sie in einigen Entwicklungsländern bis zu 80 % erreichen kann3. 1994 klassifizierte die Weltgesundheitsorganisation (WHO) H. pylori als Karzinogen der Gruppe 1 für Magenkrebs4. Wichtige Virulenzfaktoren wie CagA (zytotoxinassoziiertes Antigen A) und VacA (vakolisierendes Zytotoxin A) verursachen chronische Entzündungen und epitheliale Schäden und tragen somit zu den pathogenetischen Mechanismen bei, die seiner Einstufung als Karzinogen der Gruppe 1 zugrunde liegen. 2018 belief sich die Zahl der Krebsfälle, die auf eine H. pylori-Infektion zurückzuführen waren, auf 810.000, was die kombinierte Zahl der durch humane Papillomviren (HPV), Hepatitis-B-Virus (HBV) und Hepatitis-C-Virus (HCV) verursachten Zervix- und Leberkrebsfälle überstieg5. Diese Statistik verdeutlicht das erhebliche Krebsrisiko durch H. pylori, das unbehandelt laut einigen Studien mit einer Wahrscheinlichkeit von etwa 1–3 % zum Magenkarzinom führen kann. Aufgrund der hohen globalen Prävalenz der H. pylori-Infektion ist eine präzise Quantifizierung – nicht nur der Nachweis – eine öffentliche Gesundheitspriorität, da eine genaue Bestimmung der Bakterienlast therapeutische Entscheidungen leiten und unnötige oder erfolglose Eradikationstherapien vermeiden kann. Daher sind eine genaue Detektion und Quantifizierung von H. pylori von großer Bedeutung für epidemiologische Untersuchungen, die Auswahl von Therapieplänen sowie die Beurteilung der therapeutischen Wirksamkeit.
Angesichts der erheblichen Krebslast, die auf H. pylori zurückzuführen ist, sind eine genaue Detektion und Quantifizierung entscheidend für die epidemiologische Überwachung, die Auswahl der Therapie und die therapeutische Kontrolle. Zu den derzeit verfügbaren nicht-invasiven Methoden gehören der Stuhlantigentest (SAT), der Harnstoff-Atemtest und molekulare Assays. Obwohl die digitale PCR (dPCR) eine hohe Präzision und eine absolute Quantifizierung ermöglicht, ist ihre klinische Anwendung im Vergleich zum SAT durch höhere Kosten, technische Komplexität und apparative Anforderungen eingeschränkt. Diese Diskrepanz ist der Grund, warum die Korrelation zwischen den beiden Methoden untersucht werden muss, um mithilfe der dPCR als quantitativen Referenzmethoden die Standardisierung des SAT zu verbessern.
Die digitale PCR (dPCR), eine neuartige Technologie zur absoluten Quantifizierung, kann die absolute Kopienzahl von Zielgenen direkt nachweisen, ohne auf eine Standardkurve angewiesen zu sein. In der H. pylori-Forschung wurde die dPCR zur bakteriellen Quantifizierung in Magenschleimhaut-, Speichel- und Stuhlproben verwendet6,7.
Bei der Entwicklung, Qualitätsbewertung und Regulierung von in vitro-Diagnostics-Reagenzien sind die Herstellung und Kalibrierung von Referenzmaterialien grundlegend, um die Genauigkeit, Vergleichbarkeit und Rückverfolgbarkeit der Ergebnisse sicherzustellen. Bei bakteriellen in vitro-Diagnostics-Reagenzien (wie beispielsweise Nachweismethoden für H. pylori-Antigen- oder -Antikörper) müssen Referenzmaterialien häufig Stämme oder klinische Proben mit genau definierten Konzentrationen oder Aktivitätseinheiten enthalten. Die traditionelle Methode zur Quantifizierung von Bakterien ist die Bestimmung der koloniebildenden Einheiten (CFU/mL), die direkt die Anzahl lebensfähiger, proliferationsfähiger Bakterien widerspiegelt und häufig zur Wertbestimmung bakterieller Standardsubstanzen, zur Beurteilung der Empfindlichkeit von Reagenzien sowie zu methodischen Vergleichen herangezogen wird8. Obwohl die CFU-Methode nach wie vor weit verbreitet ist, weist sie offensichtliche Einschränkungen hinsichtlich der Nachweisdauer, des Materialverbrauchs und der Arbeitskosten auf9.
Mit der zunehmenden Anwendung von in vitro-Diagnostiktechnologien ermöglichen molekulare Methoden wie die dPCR mittlerweile eine genauere und empfindlichere Quantifizierung von Krankheitserregern. Gleichzeitig finden immunologische Methoden wie die Antigentitration zunehmend Anwendung in der klinischen Praxis. In der praktischen Durchführung sind die meisten gesammelten klinischen Isolate oder hergestellten Standardproben jedoch inaktivierte oder langfristig konservierte Proben, wodurch eine Kultivierung lebender Bakterien und die Bestimmung der Koloniebildenden Einheiten (CFU) schwierig oder unmöglich wird10. Bei der Herstellung von Referenzmaterialien muss aus Gründen der Biosicherheit und zur Gewährleistung der Langzeitstabilität eine Inaktivierung durchgeführt werden. Quantifizierungsmethoden, die auf Antigenen oder Nukleinsäuren basieren, stellen daher unverzichtbare Verfahren zur Wertbestimmung dar8,11.
Dies wirft eine praktische Frage hinsichtlich der Korrelation und Äquivalenz dieser beiden unterschiedlichen quantitativen Ansätze auf: Besteht beim Einsatz der Antigennachweis- und dPCR-Methode zur Bewertung von Standardsubstanzen eine stabile und quantifizierbare Beziehung zwischen den Ergebnissen dieser beiden Verfahren? Vorläufige Experimente unter Verwendung eines begrenzten Satzes inaktivierter H. pylori-Proben zeigten eine konsistente positive Korrelation zwischen der Signalintensität immunchromatographischer Assays und den mittels dPCR bestimmten DNA-Kopienzahlen. Wir vermuteten, dass eine signifikante und konsistente positive Korrelation zwischen der H. pylori-Antigentiter, gemessen mittels immunchromatographischer Assays, und den DNA-Kopienzahlen, quantifiziert mittels dPCR, in inaktivierten Bakterienproben besteht. Falls eine solche Korrelation existiert, wäre es möglich, antigenbasierte qualitative Ergebnisse in quantitative Nukleinsäureäquivalente umzurechnen. Dies würde eine wichtige Grundlage für die Leistungsbewertung von Reagenzien, die Etablierung von Standards, die Zuteilung von Referenzmaterialien sowie die Interpretation klinischer Testergebnisse liefern, wenn der traditionelle Kulturansatz nicht durchführbar ist.
Derzeit ist die Forschung zur Beziehung zwischen den Antigenergebnissen von H. pylori und dem Nukleinsäuregehalt unzureichend, und es fehlen systematische Daten, um Überprüfungs-, Regulierungs- und Standardisierungsarbeiten zu unterstützen. Um diese Hypothese zu überprüfen, führte diese Studie eine parallele Untersuchung an 24 kultivierten Bakteriensuspensionen von H. pylori durch, um systematisch die Korrelation zwischen der durch die kolloidale Immunchromatographie ermittelten Antigenkonzentration und dem absolut quantitativen Ergebnis der dPCR zu analysieren. Basierend auf unseren Ergebnissen formulieren wir Referenzempfehlungen zur Leistungsbewertung von H. pylori-Nachweisreagenzien und zur Festlegung von Standardmaterialwerten.
Protokoll
Alle in dieser Studie enthaltenen Helicobacter pylori-Isolate wurden ursprünglich aus menschlichen Magenbiopsien und Stuhlproben durch das Fünfte Angegliederte Krankenhaus der Zhengzhou-Universität gewonnen, das vollständig aufbereitete, anonymisierte Bakteriensuspensionen für unsere in vitro-Experimente bereitstellte. Alle ursprünglichen Verfahren (Sammlung klinischer Proben, bakterielle Isolierung und initiale Kryokonservierung) wurden vom Ethikkomitee des Fünften Angegliederten Krankenhauses der Zhengzhou-Universität genehmigt (Ethische Genehmigungsnummer: KY2026080). Von allen Teilnehmern wurde vor der Probennahme eine informierte Einwilligung eingeholt, und alle Verfahren erfolgten streng nach der Deklaration von Helsinki und den einschlägigen nationalen ethischen Richtlinien für biomedizinische Forschung. Alle patientenidentifizierbaren Informationen wurden durch das ausstellende Krankenhaus dauerhaft vor der Probenaufgabe entfernt, und aus den in dieser Studie beschriebenen experimentellen Materialien oder Ergebnissen kann keine Rückschlüsse auf individuelle Patientenidentitäten gezogen werden.
Die vorliegende Studie erfordert keine zusätzliche unabhängige ethische Genehmigung oder informierte Einwilligung. Alle Experimente umfassen ausschließlich in vitro-Analysen unter Verwendung anonymisierter Bakteriensuspensionen, ohne Zugriff auf ursprüngliches menschliches Probenmaterial, Patientenakten oder private personenbezogene Daten. Gemäß den nationalen Vorschriften zur Biomedizin-Forschungsethik erfüllt nicht-interventionelle in vitro-Forschung, die vollständig anonymisierte mikrobielle Isolate verwendet, die Kriterien für eine ethische Befreiung. Die ursprüngliche ethische Genehmigung des Fünften Angegliederten Krankenhauses der Zhengzhou-Universität umfasst bereits alle legitimen sekundären akademischen Anwendungen dieser anonymisierten Stämme, was vom institutionellen Ethikkomitee offiziell bestätigt wurde.
Alle H. pylori in vitro Die Experimente wurden in Laboren mit gültiger Biosicherheitszertifizierung (Biosicherheitsstufe 2, BSL-2, Biosicherheitsregistrierung von Laboratorien der Gesundheitskommission des Bezirks Dongcheng in Peking [2020] Nr. 059) gemäß den internen Standardarbeitsanweisungen durchgeführt und erfüllten alle Anforderungen der Biosicherheitsprüfung und -genehmigung. Die Biosicherheitsgenehmigung für diese Studie umfasst alle Verfahren, die mit hitzeinaktivierten Proben verbunden sind. H. pylori Material, einschließlich der Arbeit mit nicht vollständig inaktivierten Proben (d. h. solchen, die noch lebensfähige Organismen enthalten, wie durch Viabilitäts-PCR charakterisiert). Während der gesamten Studie wurde strikt auf die Einhaltung standardisierter mikrobiologischer Verfahren, die Anforderungen an persönliche Schutzausrüstung (PSA) sowie auf Verfahren zur Dekontamination von Abfällen geachtet. Alle bakteriellen Proben wurden vor der Entsorgung gemäß den institutionellen Richtlinien für die Entsorgung von biohazardhaltigem Abfall ordnungsgemäß inaktiviert. Die Angaben zu allen verwendeten Reagenzien, Geräten und der Software für die statistische Analyse sind in der Tabelle der Materialien
Stamm und Kultur
ACHTUNG: H. pylori ist ein humanpathogenes Risikogruppe-2-Agens. Alle Arbeiten mit lebensfähigen Kulturen (Inokulation, Inkubation und Suspensionsherstellung) müssen in einem zertifizierten Sicherheitswerkbank im Rahmen von BSL-2-Anlagen unter Tragen eines Laborkittels, von Handschuhen und Augenschutz durchgeführt werden.
Die Hitzeinaktivierung bei 56 °C für 25 min verringert die Anzahl lebensfähiger Organismen drastisch, eliminiert sie jedoch nicht vollständig (siehe Abschnitt 1); teilweise inaktivierte Suspensionen müssen weiterhin unter BSL-2-Bedingungen behandelt werden. Alle biologischen Abfälle und kontaminierten Verbrauchsmaterialien müssen vor der Entsorgung im Autoklaven (121 °C, ≥30 min) oder gemäß den institutionellen Verfahren für die Bio-Sicherheit desinfiziert werden. Die hier beschriebene BSL-2-Arbeit wurde im Rahmen derselben Bio-Sicherheitsanmeldung genehmigt (Labor-Bio-Sicherheitsanmeldung der Gesundheitskommission des Bezirks Dongcheng in Peking [2020] Nr. 059).
Die Helicobacter pylori In dieser Studie verwendete Stämme waren 24 kultivierte Bakteriensuspensionen, die ursprünglich aus menschlichen Magenbiopsien und Stuhlproben durch das Fünfte Anhui-Krankenhaus der Zhengzhou-Universität gewonnen und anschließend in Form von Bakteriensuspensionen an die Stammsammlung des In vitro Diagnostische Abteilung für Infektiologie am Nationalen Institut für Arzneimittelkontrolle (NIDC), Peking, China, und sämtliche experimentellen Arbeiten in dieser Studie wurden am NIDC (Peking, China) durchgeführt. Diese Stämme wurden auf Brucella-Medium-Platten, die mit 5 % defibriniertem Schafsblut ergänzt waren, ausgestrichen und unter mikroaerophilen Bedingungen (85 % N₂, 10 % CO₂, 5 % O₂₂) bei 37 °C für 72 h. Diese Kultivierungszeit entspricht der stationären Wachstumsphase, in der die Antigenexpression jedes Stammes relativ stabil ist. Anschließend wurden die bakteriellen Suspensionen gesammelt.
Die Hitzeinaktivierung wurde in einem digitalen Wasserbad bei 56 °C für 25 min durchgeführt. Diese Behandlung erfolgte, um die Anforderungen an die Biosicherheit zu erfüllen und die Langzeitstabilität der Referenzmaterialien sicherzustellen. Die Hitzeinaktivierung bei 56 °C für 25 min reduziert die bakterielle Vitalität drastisch, eliminiert jedoch nicht vollständig alle lebensfähigen Organismen, wie durch anschließende Vitalitäts-PCR-Analysen bestätigt wurde, die einen medianen Restanteil an lebensfähigen Zellen von 4,6 % (Bereich 0,00 %–33,00 %) in den 24 kultivierten Bakteriensuspensionen ergaben (siehe Ergebnisse Abschnitt 6 und Diskussion). Die Genehmigung zur Biosicherheit für diese Studie umfasst Arbeiten mit Material, das nicht vollständig inaktiviert ist (siehe ethische und biosicherheitliche Erklärung). Die mögliche Auswirkung der Hitzeinaktivierung auf den Nachweis von Antigenen wird als geringfügig angesehen, da die thermische Behandlung unterhalb der Denaturierungsschwelle der meisten H. pylori-Oberflächenantigene liegt; sie könnte jedoch die Integrität einiger hitzelabiler Proteinantigene beeinträchtigen. Für die DNA-Quantifizierung führt die Hitzeinaktivierung nicht zum Abbau der genomischen DNA und kann die Extraktions-Effizienz sogar verbessern, indem sie die Zellmembranen aufbricht.
Nachweis von Antigenen
Die 24 gesammelten bakteriellen Suspensionen wurden 100-fach mit PBS verdünnt, um Proben für die Antigennachweisbestimmung vorzubereiten. Eine anfängliche 100-fache Verdünnung passt die Antigenkonzentration an den linearen Nachweisbereich kommerzieller Kits an und minimiert Matrixstörungen, wodurch zuverlässige und genaue Nachweisergebnisse gewährleistet werden. Die Verdünnung spart zudem Probenvolumen ein. Diese Proben wurden mit acht zugelassenen H. pylori-Antigennachweiskits getestet (Tabelle 1), darunter dem kolloidalen Gold-Verfahren, dem Latex-Verfahren und dem immunchromatographischen Verfahren. Falls das Ergebnis positiv war, wurde die verdünnte Probe seriell weiterverdünnt (1:2, 1:4, 1:8 usw.) und erneut getestet, bis das Ergebnis negativ ausfiel. Das höchste Verdünnungsverhältnis, das noch positiv war, wurde notiert und als „endgültiges positives Verdünnungsverhältnis des Antigens“ definiert (z. B. 1:64). Die seriellen Verdünnungen in Zweierschritten wurden in phosphatgepufferter Kochsalzlösung (PBS, 0,01 M, pH 7,2–7,4) hergestellt. Nach der Probenauftragung wurde jeder Streifen 15–20 Minuten bei Raumtemperatur inkubiert, bevor das Ergebnis abgelesen wurde; die Auswertung erfolgte visuell durch einen geschulten Bediener im Vergleich zur Kontrolllinie, und der Endpunkt wurde als die höchste Verdünnung festgelegt, bei der noch eine sichtbare Testlinie auftrat. Da kolloidale Gold-Streifen visuell ausgewertet werden, hängt die Grenze der Nachweisbarkeit vom Bediener ab.
Für jede Probe, die mit mehreren kommerziellen Antigennachweiskits getestet wurde, ist die Endpunkt-Titration als Median aller individuellen Kit-Titrationen definiert. Da die acht in dieser Studie verwendeten Kits mit unterschiedlichen Zielantigenen und Nachweisprinzipien konzipiert wurden, wurden Cohens Kappa oder CV% nicht zur Quantifizierung der Übereinstimmung zwischen den Kits herangezogen, da diese Indikatoren das Vorhandensein eines gemeinsamen Referenzstandards voraussetzen. Die beobachtete Variabilität zwischen den Kits spiegelt daher die tatsächliche biologische und analytische Heterogenität wider und nicht Messfehler. Der Median als robustes Maß der zentralen Tendenz kann kit-spezifischen Abweichungen wirksam entgegenwirken. Bei den 24 Proben reichte die Streuung innerhalb der Proben zwischen dem höchsten und niedrigsten Kit-Titer von 2-fach bis 16-fach (Median: 4-fach): sechs Proben unterschieden sich um den 2-fachen, vierzehn um den 4-fachen, drei um den 8-fachen und eine um den 16-fachen Faktor zwischen den Kits. Die jeweils pro Kit minimalen, medianen und maximalen Titer für jede Probe sind in ergänzender Tabelle 1 aufgeführt.
Quantitativer Nachweis mittels digitaler PCR
Die gesammelten 24 Bakteriensuspensionen wurden 500-fach mit PBS verdünnt und anschließend als Proben für die quantitative dPCR-Detektion verwendet. Die absolute Quantifizierung dieser verdünnten Proben erfolgte durch vier dPCR-Labore (Tabelle 2). Die dPCR wurde unter Verwendung plattformspezifischer, proprietärer Primer- und Sondensätze durchgeführt, die auf konservierte H. pylori-Genomsequenzen abzielen. Die in dieser Studie verwendeten dPCR-Nachweiskits sind universelle Reagenzkits, die auf mehrere Erreger und mehrere Zielstrukturen anwendbar sind. Jede Plattform entwarf und optimierte unabhängig die spezifischen Primer/Sonden-Sequenzen und Ziel-Genregionen, die deren zentrales geistiges Eigentum darstellen. Diese Sequenzen wurden den Endnutzern nicht offengelegt. Wir erhielten lediglich die Information, dass das spezifische Nachweisziel für H. pylori eine konservierte genomische Region ist, deren Eignung für den spezifischen Nachweis verifiziert wurde. Die 23S-rRNA-Gensequenzen von 24 Helicobacter pylori-Stämmen wurden bei NCBI GenBank unter dem BioProject-Zugangscode PRJNA1520048 eingereicht. Diese Sequenzen wurden zur Bestätigung der Stammidentität eingereicht und stellen nicht das dPCR-Quantifizierungsziel dar. Da das Primer/Sonden-Design, die Amplifikationschemie und die Poisson-basierte Partitionszählung für jede Plattform proprietär sind, hängen diese Schritte von der jeweiligen Plattform ab und können ohne Zugang zum Hersteller nicht reproduziert werden; im Gegensatz dazu sind die oben beschriebenen Schritte der Probenverdünnung, der Extraktionsreplikation und der Datenaggregation plattformunabhängig und vollständig spezifiziert. Die absoluten Kopienzahlen wurden mithilfe des Poisson-Verteilungsalgorithmus berechnet, der in der proprietären Analyse-Software des Geräts implementiert ist. Die spezifischen rechnerischen Parameter und der Quellcode sind dem Hersteller vorbehalten und wurden den Endnutzern nicht offengelegt. Schließlich wurde die absolute Kopienzahl (Kopien/mL) des Zielgens in der ursprünglichen Lösung basierend auf der Poisson-Verteilung und dem Verdünnungsfaktor berechnet.
Vier unabhängige dPCR-Labore (Sniper, Jiangsu Bioperfectus Technologies Co., Ltd., Ustar Biotechnologies Ltd. und TargetingOne) nahmen an dieser Studie teil, wobei jedes Labor eigene, für seine Instrumentenplattform optimierte Extraktionskits und dPCR-Reagenzien verwendete, die alle auf konservierte genomische Sequenzen von H. pylori abzielten. Jede Plattform erhielt die undiluierte Bakteriensuspension und bereitete die Proben gemäß ihrem eigenen Protokoll vor: Ustar verwendete die undiluierte Suspension direkt, während Sniper, Jiangsu Bioperfectus Technologies Co., Ltd. und TargetingOne diese vor der Extraktion 500-fach in PBS verdünnten. Für jeden Isolat auf jeder Plattform wurden zwei unabhängige Nukleinsäureextraktionen aus derselben 500-fach verdünnten Bakteriensuspension durchgeführt, und jeder Extrakt wurde dreifach getestet, was sechs Messungen pro Isolat und Plattform ergab (mit einer Ausnahme bei Ustar, bei der eine Extraktion nur zwei gültige Replikate lieferte). Eine Reaktion wurde als ungültig klassifiziert und ausgeschlossen, wenn die Anzahl positiver Tröpfchen unterhalb der unteren Nachweisgrenze des Instruments lag oder die Kontrolle ohne Matrize eine unspezifische Amplifikation zeigte; ungültige Reaktionen wurden einmal wiederholt, wobei anhaltende Fehlschläge zum Ausschluss der gesamten Extraktion führten. Die plattformspezifischen Rohdaten sind in Supplementary Table 1 enthalten.
Die Datenaggregation folgte einem zweistufigen Verfahren: Zunächst wurden alle gültigen Rohmesswerte (Kopien/µL) innerhalb jeder Plattform gemittelt und mithilfe plattformspezifischer Umrechnungsformeln in die ursprüngliche Konzentration der undiluierten Bakteriensuspension (Kopien/mL) umgerechnet; anschließend wurden die aus den vier Plattformen ermittelten Konzentrationen für jeden Isolat gemittelt (arithmetisches Mittel), um einen endgültigen einzelnen Kopienzahlwert zu erhalten. Dieses Vorgehen gewährleistet einen gleichmäßigen Beitrag aller Plattformen, unabhängig von der Variation innerhalb der Plattformreplikate, und verringert gleichzeitig systematische Verzerrungen, die einzelnen Geräten oder Reagensystemen inhärent sind.
Jede kultivierte Bakteriensuspension wurde parallel auf vier dPCR-Plattformen quantifiziert, und der Variationskoeffizient (CV) der log₁₀-transformierten Kopienzahlen über die Plattformen hinweg wurde für jeden Isolat berechnet, um die zwischenlaboratorische Variabilität zu bewerten. Die entsprechenden Ergebnisse sind im Abschnitt Ergebnisse angegeben.
Statistische Analyse
Die H. pylori Der Antigentiter wurde definiert als der Kehrwert des höchsten Probenverdünnungsfaktors, bei dem ein positives Ergebnis beobachtet wurde (z. B. entspricht eine Verdünnung von 1:64 einem Titer von 64). Für jeden Isolat wurden die acht kitspezifischen Antigentiter durch ihren Median zusammengefasst und die vier plattformspezifischen dPCR-Konzentrationen durch ihr arithmetisches Mittel, um pro Isolat einen einzelnen repräsentativen Wert für die nachfolgende Korrelationsanalyse zu erhalten. Diese Strategie der Datensreduktion ist methodisch begründet, weil: (i) die acht Antigenkits denselben Analyten unter vergleichbaren Immunoassay-Prinzipien detektieren und der Median einen robusten Schätzwert darstellt, der gegenüber sporadischen Ausreißerwerten resistent ist; (ii) jede der vier dPCR-Plattformen eine konservierte H. pylori genomische Lokus, und das arithmetische Mittel von logarithmisch-normalverteilten Konzentrationsschätzungen liefert eine unverzerrte zentrale Tendenz; und (iii) diese Aggregation entspricht dem primären Ziel der Studie – die Übereinstimmung zwischen antigentiterbasierten und DNA-basierten Quantifizierungsverfahren auf der Ebene einzelner Isolate zu beurteilen – anstatt die analytische Leistungsfähigkeit zwischen verschiedenen Kits oder Plattformen zu bewerten. Der Zusammenhang zwischen Antigentiter und der dPCR-Quantifizierung (Kopien/mL) wurde zunächst mittels Pearson-Korrelationsanalyse untersucht. Beide Variablen sind nach logarithmischer Transformation annähernd normalverteilt (Schiefe: log10 dPCR = −0,66; log2 Antigentiter = −0,60; Regressionsresiduen-Schiefe = −0,16), wodurch die Voraussetzungen für die Pearson-Korrelation erfüllt waren. Der Antigentiter wurde log2-transformiert, um die Linearisierung einer zweifachen seriellen Verdünnung widerzuspiegeln, während die dPCR-Ergebnisse log10-transformiert wurden, was ebenfalls dem üblichen Berichtsformat der bakteriellen Laststandards entspricht. Anschließend wurden zur Beurteilung des linearen Zusammenhangs Pearson-Korrelation und lineare Regressionsanalysen unter Verwendung des log2-transformierten Antigentiters und der log10-transformierten dPCR-Ergebnisse durchgeführt. Für alle Analysen wurde ein Signifikanzniveau (α) von 0,05 wurde angewendet, mit P < Ein Wert von 0,05 wurde als statistisch signifikant angesehen. Alle statistischen Analysen wurden mit der Online-Statistikplattform SPSSPRO durchgeführt.
Ergebnisse
Comparison of H. pylori antigen titer and dPCR absolute quantification results
Among the total of 24 cultured bacterial suspensions, the antigen titer ranged from 8 to 256, with a median of 32 (Table 1). The dPCR quantification results ranged from 2.67 × 10⁷ copies/mL to 2.04 × 10⁹ copies/mL, with a median of log₁₀ = 8.61 (≈4.09 × 10⁸ copies/mL) (Table 2). The relationship exhibited non-linear characteristics in the raw data, suggesting a power-law or exponential association, which justified the subsequent logarithmic transformations applied to both antigen titer and dPCR quantification values.
Linear association between log-transformed antigen titer and dPCR quantitative results
To test whether there is a significant correlation between the results of the two detection methods, we applied logarithmic transformation and performed Pearson correlation analysis, as both variables are approximately normally distributed after log transformation. As shown in Figure 1, after transformation, the antigen titer (log2-transformed) and the absolute quantitative result of dPCR (log10-transformed) exhibited a significant moderate positive linear correlation (r = 0.536, n = 24, P = 0.007).
Quantitative modeling of the relationship between antigen titer and dPCR copy number
To quantify the relationship between the two detection methods and assess the potential for mutual prediction, we applied linear regression analysis to the log-transformed data, so as to utilize the regression model to predict bacterial load through antigen titer in the future. The analysis reveals a linear relationship between log2 (antigen titer) and log10 (dPCR), yielding the equation: log10(dPCR) = 0.1588 × log2(titer) + 7.7988 (R2 = 0.287). The regression coefficients (with standard errors and 95% confidence intervals) were: slope 0.1588 ± 0.053 (95% CI 0.048–0.270) and intercept 7.7988 ± 0.292 (95% CI 7.193–8.404); the residual standard error was 0.318 log10 units, and the overall regression was significant (F(1,22) = 8.84, P = 0.007). This indicates that for every doubling of the antigen titer, the dPCR copy number only increases by 1.441 times (100.1588). However, for a given antigen titer, the 95% prediction interval of the dPCR results can span nearly two orders of magnitude (for example, at a titer of 1:32, the prediction interval is approximately 8.3 × 10⁷ to 1.85 × 10⁹copies/mL). This indicates that in practical applications, the antigen titer alone cannot accurately predict the copy number of nucleic acid in a single sample, but using this model may provide a coarse estimation of the order of magnitude for group-level comparisons, though it is limited for individual sample prediction due to the moderate explanatory power (R2 = 0.287).
Inter-platform variability of dPCR quantification and sensitivity analysis of the correlation
Interlaboratory variability was assessed on log10-transformed concentrations to account for the log-normal distribution of microbial quantification data. The CV% across the four platform-derived log10 concentrations ranged from 0.9% to 8.3% (median 1.8%, mean 2.5%) across 24 isolates. One outlier (Hp06, CV = 8.3%) showed a >30-fold discrepancy between Sniper (5.93 × 10⁸ copies/mL) and TargetingOne (1.50 × 10⁷ copies/mL); excluding this isolate, CVs ranged from 0.9% to 6.4%. To ensure that this outlier did not drive the observed antigen–dPCR correlation, a sensitivity analysis was performed excluding Hp06, which yielded r = 0.479, R2 = 0.230, and P = 0.021 (n = 23) — comparable to the primary analysis including all 24 isolates — confirming that the headline correlation does not depend on this isolate. This dispersion reflects systematic differences among platforms in extraction efficiency, reagent sensitivity, and instrument calibration rather than random measurement error, which supports cross-platform averaging to reduce platform-specific bias.
Defining and classifying results using dual-method thresholds
Based on the analyses above and on exploratory, dataset-specific criteria, this study set the median titer of antigen detection at 1:32 as the threshold for high antigen detection, due to the non-normal distribution of antigen titer data, and selected the actual median log₁₀(dPCR) = 8.61 (≈4.09 × 10⁸ copies/mL) as the threshold for high nucleic acid content. These thresholds are exploratory, dataset-specific cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. Consequently, any application of these cutoffs to other sample collections or analytical contexts would require re-derivation from the corresponding data rather than direct transfer.
Using the exploratory thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), the four-quadrant classification of the 24 cultured bacterial suspensions (Figure 2, Table 3) is as follows: 9 samples (Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25) fall into the high antigen–high nucleic acid category (37.5%); 3 samples (Hp09, Hp26, Hp27) are classified as low antigen–high nucleic acid (12.5%); 8 samples (Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17) exhibit high antigen–low nucleic acid (33.3%); and 4 samples (Hp06, Hp07, Hp12, Hp20) belong to the low antigen–low nucleic acid category (16.7%). Because the 24 isolates were divided into six titer groups with an average of only 4 samples per group, formal inter-group comparison (e.g., Kruskal-Wallis testing) would lack sufficient statistical power; therefore, only descriptive summaries of dPCR quantitative results across titer groups are reported.
Residual viable fraction after heat inactivation (viability PCR)
To quantify residual viable bacteria following heat inactivation, a viability PCR reagent system was used for all 24 isolates. Briefly, each heat-inactivated suspension (200 µL) was incubated with the membrane-impermeable Viability PCR Reagent (10 µM final concentration) at 37 °C for 75 min, with a parallel reagent-omitted control (−VR) processed identically. The reagent was then chemically inactivated by adding Viability PCR Neutralization Buffer (20 µL, 10×) and incubating at room temperature for 15 min. Genomic DNA was extracted from both the +VR and −VR aliquots, and dPCR was performed on each extract; the viable fraction was calculated as the ratio of +VR to −VR copy numbers × 100%. The median viable fraction was 4.6% (range 0.00%–33.00%; full per-isolate results in Supplementary Table 2). The viable percentage did not correlate significantly with antigen titer (r = 0.03, P = 0.90) or with dPCR copy number (r = 0.37, P = 0.08).
DATA AVAILABILITY:
The 23S rRNA gene sequences of 24 Helicobacter pylori strains have been deposited in NCBI GenBank under BioProject accession PRJNA1520048. These sequences were used solely for strain identity confirmation and do not represent the dPCR quantification target, which is a manufacturer-proprietary conserved genomic region, as described in Protocol.
The raw kit-specific antigen titers from eight commercial colloidal gold immunochromatographic kits and the platform-specific dPCR quantitative values from four digital PCR instruments cannot be deposited in a public repository because of commercial sensitivity, manufacturer confidentiality agreements, and regulatory restrictions associated with CE-marked/National Medical Products Administration-approved in vitro diagnostic products.
Additional restricted data may be made available confidentially when necessary, subject to the applicable confidentiality and regulatory restrictions.
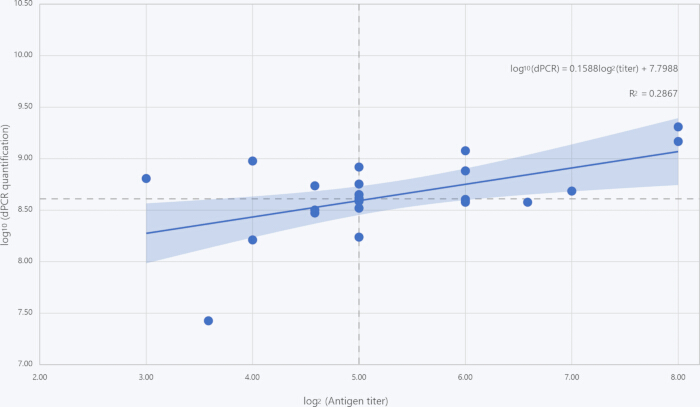
Figure 1: Correlation between Helicobacter pylori antigen titer and digital polymerase chain reaction (dPCR) quantification. A scatter plot with a regression line is presented to illustrate the relationship between antigen titer and DNA copy numbers in 24 cultured bacterial suspensions (n = 24). Antigen titers were ascertained via a colloidal gold immunochromatographic assay with visual reading. Serial dilutions of each sample were examined, and the titer is expressed as the highest dilution factor that yields a positive result (presented on the x-axis as log2-transformed, dimensionless values). DNA copy numbers were quantified through dPCR and are presented on the y-axis as log10-transformed concentrations (log10 copies/mL). Each dot represents an individual bacterial suspension sample. The blue solid line represents the linear regression fit. The shaded band around the regression line represents the 95% confidence interval of the fitted mean response. The dashed vertical and horizontal lines indicate the exploratory classification thresholds (log₂ titer = 5, i.e., 1:32; log₁₀ dPCR = 8.61, i.e., 4.09 × 10⁸ copies/mL) used in Figure 2 and Table 3. Correlation was evaluated using the Pearson correlation coefficient, resulting in r = 0.536, P = 0.007, R2 = 0.287, which indicates a statistically significant positive correlation between the two methods. Please click here to view a larger version of this figure.
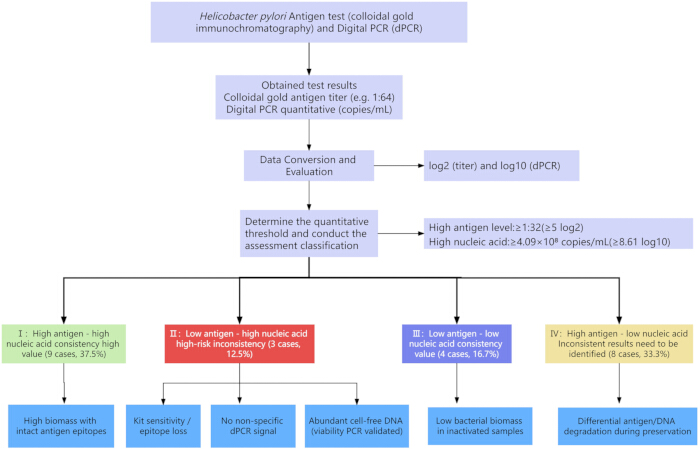
Figure 2: Analytical classification framework for H. pylori testing combining antigen test results with dPCR quantification. This figure depicts the four-quadrant classification of 24 cultured bacterial suspensions (n = 24) based on the concordance between immunochromatographic antigen titer and dPCR quantitative results. Using exploratory, dataset-specific thresholds (antigen titer ≥ 1:32 as high, ≤ 1:16 as low; dPCR log₁₀ ≥ 8.61 as high nucleic acid load), samples are classified into: high antigen–high nucleic acid (n = 9, 37.5%), high antigen–low nucleic acid (n = 8, 33.3%), low antigen–high nucleic acid (n = 3, 12.5%), and low antigen–low nucleic acid (n = 4, 16.7%). These thresholds are exploratory cutoffs derived from cultured isolate data and do not represent validated clinical diagnostic criteria. The classification framework illustrates the agreement and discordance between immunological and molecular detection methods. Categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation. This framework is intended for analytical comparison purposes and does not constitute clinical diagnostic or treatment recommendations. Please click here to view a larger version of this figure.
| No. | Detection reagent | Manufacturer |
| 1 | Helicobacter pylori antigen detection kit (colloidal gold method) | Bioneovan Co., Ltd |
| 2 | Gastric Helicobacter pylori (HP) Antigen Detection Kit (Colloidal Gold Method) | Shanghai Chemtron BIOTECH Co., Ltd |
| 3 | Helicobacter pylori antigen detection kit (colloidal gold method) | Jiangsu Mole Bioscience Co., Ltd |
| 4 | Helicobacter pylori antigen detection kit (colloidal gold method) | Hangzhou Genesis Biodetecton & Biocontrol Ltd |
| 5 | Helicobacter pylori antigen detection kit (colloidal gold method) | JIANGSU COWIN BIOTECH CO., LTD |
| 6 | Helicobacter pylori antigen detection reagent (latex method) | ABON Biopharm (Hangzhou) Co. Ltd |
| 7 | Helicobacter pylori (HP) antigen detection reagent (immunochromatographic method) | GUANGZHOU WONDFO BIOTECH CO., LTD |
| 8 | Helicobacter pylori antigen detection kit (colloidal gold method) | Beijing Core Technology Co., Ltd |
Table 1: List of Helicobacter pylori Antigen Detection Reagents and Their Manufacturers. The table enumerates eight commercially accessible immunochromatographic assays for the detection of H. pylori antigen, which were assessed in this study. For each product, the No. (as supplied by the manufacturer), the commercial designation of the detection reagent, and the manufacturer's name are presented. These kits were chosen on the basis of their extensive utilization in clinical diagnostics and point-of-care testing. All information was retrieved from the manufacturers' product inserts and official websites (accessed in March 2026). The inclusion of these reagents does not signify an endorsement; they are representative of the diversity of available tests.
| No. | Instrument model | Digital PCR Platforms |
| 1 | DQ24 | Sniper |
| 2 | Bio Rad QX200 Droplet Digital PCR | Jiangsu Bioperfectus Technologies Co., Ltd |
| 3 | DQ24 Pro | Ustar Biotechnologies (Hangzhou) Ltd |
| 4 | TD-1 Digital PCR System | TargetingOne |
Table 2: List of Digital PCR (dPCR) Platforms and Instrument Models. This table enumerates four laboratory platforms equipped with dPCR systems, along with the corresponding instrument models employed for testing. These platforms were chosen in consideration of their technological diversity and representativeness of the current implementation of dPCR. All information is provided by each respective platform. The inclusion of these platforms does not signify an endorsement; they simply represent the scope of existing dPCR systems.
| Type | Number of cases | Proportion | Sample number |
| High antigen - High nucleic acid | 9 | 37.5% | Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25 |
| Low antigen - High nucleic acid | 3 | 12.5% | Hp09, Hp26, Hp27 |
| Low antigen - Low nucleic acid | 4 | 16.7% | Hp06, Hp07, Hp12, Hp20 |
| High antigen - Low nucleic acid | 8 | 33.3% | Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17 |
Table 3: Classification and Proportion of Antigen Test and Nucleic Acid Test Results in This Study. This table classifies 24 cultured bacterial suspensions according to the concordance between antigen titer (determined by immunochromatographic assay, expressed as the highest dilution factor resulting in a positive result) and absolute quantitative digital polymerase chain reaction (dPCR) results (expressed as log₁₀ copies/mL). Using an antigen titer cutoff of 1:32 (high ≥ 1:32, low ≤ 1:16) and a dPCR quantification cutoff of 4.09 × 10⁸ copies/mL (log₁₀ = 8.61) as exploratory, dataset-specific thresholds, isolates were classified into four subgroups: High Antigen-High Nucleic Acid, Low Antigen–High Nucleic Acid, High Antigen–Low Nucleic Acid, and Low Antigen-Low Nucleic Acid. Among the 24 samples, 9 were categorized as High Antigen–High Nucleic Acid (37.5%; Hp03, Hp04, Hp11, Hp13, Hp18, Hp19, Hp21, Hp22, Hp25), 3 as Low Antigen–High Nucleic Acid (12.5%; Hp09, Hp26, Hp27), 8 as High Antigen–Low Nucleic Acid (33.3%; Hp01, Hp02, Hp05, Hp08, Hp10, Hp14, Hp15, Hp17), and 4 as Low Antigen–Low Nucleic Acid (16.7%; Hp06, Hp07, Hp12, Hp20). For each category, the table shows the number of cases (n), the proportion relative to the total sample size (%), and the sample numbers within each category. This classification illustrates the agreement and discordance between immunological and molecular detection methods; categories with discrepancies may reflect factors such as antigen stability, bacterial viability, or DNA copy number variation, offering insights for the interpretation of analytical test results.
Supplementary Table 1: Aggregated dataset of antigen detection and dPCR quantification for the 24 Helicobacter pylori isolates. Sheet 1 (Antigen Detection): per-kit endpoint titers from the eight commercial colloidal gold immunochromatographic kits for each isolate, with the per-sample minimum, median, and maximum titer and within-sample fold range. Sheet 2 (Digital PCR Quantitative Detection): platform-specific dPCR concentrations (copies/mL) for each isolate, with inter-platform summary statistics (median, minimum, maximum, and CV% of log₁₀-transformed concentrations). Sheet 3 (Correlation and Regression Analysis): strain-level log₂-transformed antigen titers and log₁₀-transformed dPCR concentrations, Pearson correlation and linear regression results (r, R2, regression equation), sensitivity analysis excluding the outlier Hp06, and detailed regression statistics (standard errors, 95% confidence intervals, residual standard error, F-statistic, and P-value). Kit-specific and platform-specific identifiers are anonymized for commercial confidentiality; the dataset contains all values required to reproduce Figures 1–2 and Table 3.Please click here to download this file.
Supplementary Table 2: Viability PCR results for the 24 Helicobacter pylori isolates. Per-isolate dPCR copy numbers of the viability reagent–treated (+VR) and reagent-omitted (−VR) aliquots after heat inactivation at 56 °C for 25 min, with the calculated viable fraction (%) and equivalent ΔCq for each isolate. The median viable fraction across all isolates was 4.6% (range 0.00%–33.00%).Please click here to download this file.
Diskussion
In dieser Studie mit 24 kultivierten H. pylori-Isolaten zeigte sich eine moderate, aber signifikante positive Korrelation zwischen dem immunochromatographischen Antigentiter und der dPCR-Genomkopienzahl (r = 0,536, P = 0,007); der Antigentiter erklärte jedoch nur 29 % der Varianz der dPCR-Kopienzahl (R2 = 0,287), sodass die beiden Messgrößen zwar zusammenhängen, aber nicht austauschbar sind. Die wesentliche Einschränkung dieser Studie ist die geringe Stichprobengröße (n = 24), die die statistische Aussagekraft einschränkt und den explorativen Charakter der unten verwendeten Klassifizierungsschwellenwerte erklärt.
Diese Studie analysierte quantitativ den Antigentiter in H. pylori Kulturen und die mittels dPCR detektierten Nukleinsäure-Kopienzahlen, wobei eine moderate, jedoch signifikante Korrelation zwischen den Nachweisergebnissen dieser beiden Methoden aufgezeigt wurde (r = 0,536, P = 0,007). Obwohl auf Populationsebene eine signifikante Korrelation zwischen den beiden Methoden beobachtet wird, treten in der klinischen Praxis häufig Diskrepanzen auf individueller Ebene auf. Dies liegt daran, dass unterschiedliche Nachweisziele verschiedene biologische Eigenschaften von Krankheitserregern widerspiegeln. Insbesondere detektieren Antigentests Proteine, die nach der bakteriellen Eliminierung weiterbestehen können, während Nukleinsäuretests DNA nachweisen, die auch nach dem Verschwinden lebensfähiger Bakterien in geringen Mengen persistieren kann. Eine solche Diskrepanz ist bei verschiedenen infektiösen Erkrankungen gut dokumentiert. Zum Beispiel führt bei der klinischen Diagnose einer Clostridioides-difficile-Infektion die Tatsache, dass einige Träger positive Ergebnisse bei der Toxingendetektion, aber negative Ergebnisse bei der Detektion des Toxin-Proteinantigens aufweisen, zu einer Fehldiagnose als infizierte Person und verursacht eine Überbehandlung sowie die Entstehung von Arzneimittelresistenzen. Daher die Infectious Diseases Society of America (IDSA)12 eindeutig die klinische Bedeutung unterschieden "Nachweis von Toxinen" und "Nachweis von Toxingenen" für Clostridioides difficile in den Leitlinien. Eine alleinige Diagnosestellung mittels Nukleinsäuretest ist nicht ausreichend; es wird empfohlen, Methoden einzusetzen, die direkt das aktive Toxinprotein nachweisen können. Zudem nimmt bei ambulant erworbenen Pneumonien nach antibiotischer Behandlung die bakterielle DNA-Last im Sputum des Patienten rasch ab, während das Harnantigen nach der Genesung weiterhin positiv bleibt und mehrere Wochen bis Monate persistiert.13. Ähnliche Phänomene werden ebenfalls bei der Diagnose und Behandlung beobachtet H. pylori Infektion. Im Jahr 2022 stellte Mayo Clinic Laboratories bei 223 Patienten nach antibiotischer Behandlung fest, dass die PCR relativ empfindlich war, um geringe Mengen an Rest-DNA in Stuhlproben nachzuweisen. Einige Patienten zeigten, obwohl klinisch genesen und antigen-negativ, noch wochenlang PCR-positive Ergebnisse14. All dies bestätigt weiterhin die biologischen Unterschiede verschiedener Nachweisziele.
In dieser Studie bietet die Identifizierung einer quantitativen Korrelation und Äquivalenz zwischen der Antigentiter von H. pylori, die mittels immunchromatographischer Methode nachgewiesen wurde, und den dPCR-Quantifizierungswerten eine praktische Anleitung für die Charakterisierung von H. pylori-Referenzmaterialien sowie für die Bewertung von in vitro-Diagnosticsreagenzien. 1) Förderung der Weiterentwicklung des Produktleistungs-Bewertungsmodells: Derzeit erfolgt die klinische Prüfung von H. pylori-Antigennachweisreagenzien durch blinde, synchrone Vergleiche mit klinischen „Goldstandards“ wie Histologie, Kultur oder Harnstoff-Atemtest15. Diese Studie schlägt vor, dass Regulierungsbehörden von Unternehmen verlangen sollten, im Zulassungsverfahren relevante Korrelationsdaten zwischen ihren Testergebnissen und nukleinsäurebasierten Quantifizierungsmethoden vorzulegen und die Leistung ihrer Produkte im Bereich „inkonsistenter Ergebnisse“ klar zu definieren, um die Detektionsfähigkeit des Produkts in komplexen klinischen Szenarien realistischer widerzuspiegeln und die Nachweisgrenze (LOD) des Reagenz umfassender festzulegen. 2) Dies eröffnet einen neuen Ansatz für die Wertzuweisung bakterieller Referenzmaterialien: Qualitätskontroll- und Kalibrationsreferenzmaterialien können sich von einem einzelnen „CFU“-Wert hin zu „mehrdimensionalen Kenngrößen“8 weiterentwickeln, die sowohl den Antigentiter als auch die Kopienzahl der Nukleinsäure umfassen. Das in dieser Studie etablierte Regressionsmodell kann eine grobe Abschätzung der Größenordnung der Beziehung zwischen diesen beiden Werten liefern und somit eine quantitative Grundlage für den Einsatz von Referenzmaterialien sowie für vergleichende interlaboratorische Untersuchungen schaffen.
Wir empfehlen, dass Hersteller neben der Nachweisgrenze (LOD) in analytischen Einheiten (z. B. KBE/mL oder Antigen-Titer) auch deren Äquivalenz in genomischen Kopien angeben – bestimmt mittels digitaler PCR (dPCR) –, um einen Vergleich und die Abstimmung von Ergebnissen zwischen verschiedenen Laboren und Plattformen zu ermöglichen. Eine solche Angabe in Doppelleinheiten entspricht den Anforderungen zur metrologischen Rückverfolgbarkeit gemäß ISO 175118 und dem Rahmenwerk zur Bewertung der Nachweisfähigkeit nach CLSI EP17-A216.
Die möglichen Gründe für das Auftreten von „niedrigem Antigen–hochgradiger Nukleinsäure“-Proben sind folgende: 1) Genetische Variation des Stammes: Wenn die Aminosäure im antigenen Epitop ersetzt wird oder wenn das Sekretionsprotein während Transport und Sekretion blockiert ist, kann ein „Escape“-Phänomen bei der Antigennachweisung auftreten17. 2) dPCR ist darauf ausgelegt, konservierte Gensequenzen gezielt zu erfassen und zu amplifizieren. Das spezifische Gen, das in dieser Studie mittels dPCR anvisiert wurde, wurde in der Herstellerdokumentation nicht offengelegt. Handelsübliche Antigennachweiskits können jedoch unterschiedliche H. pylori-Antigene ansprechen (z. B. VacA, Urease, Flagellinproteine oder Gesamtzellantigene), und jede Diskrepanz zwischen dem von dPCR anvisierten Gen und dem vom Kit erkannten Antigen könnte sich als quantitative Diskrepanz in den vier Quadranten des Streudiagramms zeigen – hohe dPCR/niedriges Antigen, niedrige dPCR/hohes Antigen, hohe Übereinstimmung (hoch/hoch) oder niedrige Übereinstimmung (niedrig/niedrig) – anstatt als binäre Positiv/Negativ-Abweichung18. 3) Grenzen der Nachweismethode: Die Antigennachweistechnologie ist durch extrem niedrige oder extrem hohe Antigenkonzentrationen eingeschränkt, was aufgrund unzureichender Affinität zu Antikörpern oder einer Übersättigung das Signal abschwächen kann, und wird zudem durch die Probenmatrix beeinflusst. 4) Asymmetrie der Nachweisgrenzen: Die untere Nachweisgrenze (LOD) von dPCR kann 10–100 Kopien/mL erreichen, während die Nachweisgrenze der kolloidalen immunochromatographischen Methode für Urease etwa 104–105 KBE/mL beträgt. Wenn die Bakterienmenge im kritischen Bereich liegt, tritt leicht das Phänomen „niedriges Antigen–hohe Nukleinsäure“ auf. 5) Der Einfluss des Infektionsstatus auf klinische Ergebnisse ist erheblich, insbesondere bei der Unterscheidung bakterieller von viralen Infektionen. Im Verlauf der Infektion besteht keine konstante Korrelation zwischen Kopienzahl des Gens und Expressionsspiegel des Antigens. Nach erfolgreicher Therapie können die Nukleinsäurespiegel rasch abnehmen, während die Antigeneliminierung zeitlich verzögert sein kann19.
Die in dieser Studie verwendeten bakteriellen Suspensionen stammten sowohl von Magenbiopsieproben als auch von Stuhlproben und repräsentierten unterschiedliche Matrixumgebungen mit jeweils spezifischen Störfaktoren. Isolate aus Magenbiopsien sind weitgehend frei von stuhltypischen PCR-Inhibitoren, könnten jedoch während der Probenvorbereitung einer Restexposition gegenüber Pepsin unterliegen. Im Gegensatz dazu enthalten Stuhlproben PCR-Inhibitoren (z. B. Gallensalze, komplexe Polysaccharide, Abbauprodukte von Hämoglobin), die die Amplifikationseffizienz verringern und zu einer Unterschätzung der dPCR-Quantifizierung führen können, sowie intestinale Proteasen, die Zielantigene abbauen können, selbst wenn die bakterielle DNA intakt bleibt. Diese matrixelspezifischen Effekte wirken unabhängig von den oben beschriebenen Mechanismen der Zielbereich-Unverträglichkeit und zeigen, dass Probenvorbereitungsprotokolle und Methodenvalidierungen an den Probentyp angepasst werden sollten, wenn quantitative Diskrepanzen zwischen klinischen Proben interpretiert werden.
Um experimentell das Verhältnis von lebensfähigen zu nicht lebensfähigen Bakterien nach der Hitzeinaktivierung zu quantifizieren, wurde eine Viabilitäts-PCR mit einem Viabilitäts-PCR-Reagenssystem an allen 24 kultivierten Isolaten durchgeführt. Dieses Reagens wirkt analog zum Propidiummonoazid (PMA): Es dringt selektiv in Zellen mit beschädigten Membranen ein und modifiziert deren genomische DNA kovalent, wodurch eine anschließende Amplifikation blockiert wird. Der Prozentsatz an lebensfähigen Bakterien wurde mit folgender Formel berechnet: Lebensfähig % = (DNA-Kopien/µL, behandelt mit Viabilitätsreagenz (VR)) / (DNA-Kopien/µL ohne VR) × 100. Bei allen Isolaten betrug der mediane Anteil an lebensfähigen Bakterien nach Hitzeinaktivierung 4,6 % (Bereich: 0,00 %–33,0 %), was bestätigt, dass unsere Hitzeinaktivierung bei 56 °C über 25 Minuten die bakterielle Lebensfähigkeit drastisch reduziert, jedoch nicht vollständig alle lebensfähigen Organismen eliminiert. Diese Daten zur Lebensfähigkeit stützen nachdrücklich unsere Interpretation, dass diskrepante Profile mit hohem dPCR-Signal und niedrigem Antigen-Titer hauptsächlich von restlicher freier DNA und DNA in nicht lebensfähigen bakteriellen Partikeln ausgehen und nicht von intakten, lebensfähigen H. pylori. Die vollständigen Ergebnisse der Viabilitätsquantifizierung für alle 24 Stämme sind in Ergänzungstabelle 2 zusammengefasst.
In dieser Studie zeigte die Viertelklassifizierung (basierend auf explorativen, datensatzspezifischen Schwellenwerten), dass 8 Proben hohe Antigene und niedrige Nukleinsäuren aufwiesen und 4 Proben der Kategorie niedrige Antigene – niedrige Nukleinsäuren angehörten, neben 9 hoch–hoch- und 3 niedrig–hoch-konkordanten Kategorien. Das Vorhandensein von Proben mit hohen Antigenen und niedrigen Nukleinsäuren (n = 8) legt nahe, dass Antigenexpression und Nukleinsäuregehalt nicht immer übereinstimmen, selbst in reinen Kulturen. Alle 24 Isolate wurden in der stationären Wachstumsphase geerntet (72 h-Kultur; siehe Protokollabschnitt 1). In der stationären Phase hat die DNA-Replikation weitgehend aufgehört, während strukturelle und metabolische Antigene weiterhin vorhanden sind oder sogar weiter anreichern; diese Entkopplung der Wachstumsphase bietet eine plausible biologische Erklärung für die Asymmetrie zwischen der häufigen Klasse mit hohen Antigenen und niedrigen Nukleinsäuren (n = 8) und der kleinen Klasse mit niedrigen Antigenen und hohen Nukleinsäuren (n = 3), obwohl sie allein andere Mechanismen wie interstammspezifische Unterschiede in der Antigenexpression oder eine partielle Lyse während der Hitzedinaktivierung nicht ausschließen kann. Das Vorhandensein von Proben mit niedrigen Antigenen und hohen Nukleinsäuren (n = 3) bestätigt, dass ein niedriger Antigentiter nicht zwangsläufig mit einer niedrigen Nukleinsäurelast einhergeht, was zeigt, dass die Nukleinsäuretestung die Antigentestung in bestimmten Szenarien ergänzt. Diese Schwellenwerte sind explorativ und datensatzspezifisch und stellen keine validierten klinischen Diagnosekriterien dar.
Diese Studie ist durch die geringe Stichprobengröße (n = 24) begrenzt, wodurch die statistische Power unzureichend ist, um belastbare Subgruppenanalysen zu unterstützen. Die Stichprobe wurde in sechs Titergruppen unterteilt, mit durchschnittlich nur vier Proben pro Gruppe, sodass formelle zwischen Gruppen vergleichende Analysen nicht über ausreichende statistische Power verfügen, um aussagekräftige Unterschiede zu erkennen. Daher wurde der Kruskal-Wallis-Test nicht angewendet, um inferenzstatistische Ergebnisse mit unzureichender Power zu vermeiden. Zudem handelte es sich bei allen Proben um kultivierte Isolate, die die komplexeren Matrixeffekte klinischer Proben wie Magenschleimhaut, Fäzes oder Speichel nicht abbilden.
Offenlegungen
Die Autoren haben nichts offenzulegen.
Bei der Erstellung, Überarbeitung, statistischen Analyse, Codeentwicklung oder Vorbereitung der Abbildungen dieses Manuskripts wurden keine KI-Tools verwendet.
AUTORENBEITRÄGE:
Alle Autoren bestätigten ihre jeweiligen Beiträge zu dieser Arbeit. Die individuellen Autorenrollen sind unten aufgeführt. Alle Autoren haben die endgültige eingereichte Fassung gelesen und genehmigt und übernehmen volle Verantwortung für die Genauigkeit und Integrität der Forschungsdaten. Wenwen Sun: Untersuchung, Datenaufbereitung, Formale Analyse, Methodik, Erstellen des Entwurfs, Beschaffung von Fördermitteln; Xiaona Han: Untersuchung, Methodik; Jin Zhang: Untersuchung, Methodik; Xinxin Duan: Untersuchung, Methodik; Tingting Li: Konzeptionalisierung, Betreuung; Manyu Li: Konzeptionalisierung, Betreuung, Schreiben – Überprüfung und redaktionelle Bearbeitung; Haiwei Zhou: Konzeptionalisierung, Betreuung, Schreiben – Überprüfung und redaktionelle Bearbeitung.
Danksagungen
Diese Studie wird von der Youth Development Research Foundation der National Institutes for Drug Control (NIDC) (Förderkennzeichen Nr. 2025C5) finanziert.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 2X dPCR-Probe-Master-Mix Plus (Rox) | Sniper | RT021096A | Reagenz für die quantitative Detektion mittels digitaler PCR |
| Kit zur Extraktion bakterieller genomischer DNA | Tiangen Biochemical Technology (Beijing) Co., Ltd. | Y2213/DP302-02 | Extraktion bakterieller Nukleinsäuren |
| Bio-Rad QX200 Droplet Digital PCR-System | Jiangsu Bioperfectus Technologies Co., Ltd. | QX200 | Quantitative Detektion mittels digitaler PCR |
| Integrierte digitale PCR-Maschine | Sniper | DQ24 | Quantitative Detektion mittels digitaler PCR |
| Integrierte digitale PCR-Maschine | Ustar Biotechnologies (Hangzhou) Ltd. | DQ24 | Quantitative Detektion mittels digitaler PCR |
| Digitaler Wasserbad | Yiheng Scientific Instrument Co., Ltd. | DK-8D | Inaktivierung bakterieller Suspensionen bei 56 °C |
| Forward-Primer | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplifikation von Nukleinsäuren mittels digitaler PCR |
| Kit zum Nachweis von Helicobacter pylori-Antigen aus dem Magen (Kolloidales Gold-Verfahren) | Shanghai Chemtron Biotech Co., Ltd. | B202301020 | Nachweis von H. pylori-Antigen |
| Helicobacter pylori-Agar-Medium (fest) | Qingdao Haibo Biotechnology Co., Ltd. | HB8647 | Kulturmedium für H. pylori |
| Kit zum Nachweis von Helicobacter pylori-Antigen (Kolloidales Gold-Verfahren) | Bioneovan Co., Ltd. | 202403001 | Nachweis von H. pylori-Antigen |
| Kit zum Nachweis von Helicobacter pylori-Antigen (Kolloidales Gold-Verfahren) | Jiangsu Mole Bioscience Co., Ltd. | 20240310 | Nachweis von H. pylori-Antigen |
| Kit zum Nachweis von Helicobacter pylori-Antigen (Kolloidales Gold-Verfahren) | Hangzhou Genesis Biodetection & Biocontrol Ltd. | GG230601021 | Nachweis von H. pylori-Antigen |
| Kit zum Nachweis von Helicobacter pylori-Antigen (Kolloidales Gold-Verfahren) | Jiangsu Cowin Biotech Co., Ltd. | 28223 | Nachweis von H. pylori-Antigen |
| Kit zum Nachweis von Helicobacter pylori-Antigen (Kolloidales Gold-Verfahren) | Beijing Core Technology Co., Ltd. | 2415810 | Nachweis von H. pylori-Antigen |
| Reagenz zum Nachweis von Helicobacter pylori-Antigen (Immunochromatographisches Verfahren) | Guangzhou Wondfo Biotech Co., Ltd. | W028402001 | Nachweis von H. pylori-Antigen |
| Reagenz zum Nachweis von Helicobacter pylori-Antigen (Latex-Verfahren) | ABON Biopharm (Hangzhou) Co., Ltd. | 0000805308 | Nachweis von H. pylori-Antigen |
| Heracell Tri-Gas-Inkubator | Thermo Fisher Scientific | N/A | Mikroaerobe Kultur; Gaszusammensetzung: 5 % O2, 10 % CO2, 85 % N2 |
| Mikrozentrifugenröhrchen (1,5 mL / 2 mL) | Axygen Scientific Inc. | MCT-150-C / MCT-200-C | Probenverdünnung und Nukleinsäure-Extraktion |
| Reagenzien zur Extraktion oder Reinigung von Nukleinsäuren | Jiangsu Bioperfectus Technologies Co., Ltd. | SDK60105 | Extraktion bakterieller Nukleinsäuren |
| Reagenz zur Nukleinsäure-Extraktion | TargetingOne | Pathogens TNA-B1 (11019) | Extraktion bakterieller Nukleinsäuren |
| PBS, 1X (pH 7,2–7,4, 0,01 M, Zellkultur) | Solarbio Science & Technology Co., Ltd. | P1020 | Probenverdünnung |
| Petri-Schalen (90 mm) | Beekman Biotech | N/A | Sterile Kulturplatten zur bakteriellen Isolierung und Subkultur |
| Pipettenspitzen (10 µL / 200 µL / 1000 µL) | Axygen Scientific Inc. | T-300 / T-200-Y / T-1000-B | Sterile, gefilterte Spitzen für Probenverdünnung und Reagenzdosierung |
| Probe | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplifikation von Nukleinsäuren mittels digitaler PCR |
| Reverse-Primer | Sangon Biotechnology (Shanghai) Co., Ltd. | / | Amplifikation von Nukleinsäuren mittels digitaler PCR |
| Online-Plattform für statistische Analyse SPSSPRO | SPSSPRO | Webbasiert (https://www.spsspro.com/; abgerufen im August 2026) | Statistische Analyse: Pearson-Korrelation, lineare Regression |
| Steriles defibriniertes Schafsblut | Solarbio Science & Technology Co., Ltd. | TX0030-100 mL | Zusatz für H. pylori-Kulturplatten |
| TD-1 Digital-PCR-System | TargetingOne | TD-1 | Quantitative Detektion mittels digitaler PCR |
| Viability-PCR-Reagenssystem | Promega | A8881 | Beurteilung der Vitalität von hitzeinaktiviertem H. pylori mittels PCR |
| Vortex-Mischer | Scientific Industries Inc. | SI-0256 | Homogenisierung bakterieller Suspensionen |
Referenzen
- Ndip RN, et al. Helicobacter pylori isolates recovered from gastric biopsies of patients with gastro-duodenal pathologies in Cameroon: current status of antibiogram. Trop Med Int Health. 2008;13(6):848-54.
- Malfertheiner P, et al. Management of Helicobacter pylori infection: the Maastricht VI/Florence consensus report. Gut. 2022;71(9):1724-62.
- Hooi JKY, et al. Global prevalence of Helicobacter pylori infection: systematic review and meta-analysis. Gastroenterology. 2017;153(2):420-9.
- International Agency for Research on Cancer. Schistosomes, liver flukes and Helicobacter pylori. IARC Monogr Eval Carcinog Risks Hum. 1994;61:1-241.
- de Martel C, et al. Global burden of cancer attributable to infections in 2018: a worldwide incidence analysis. Lancet Glob Health. 2020;8(2):e180-90.
- Wang YK, et al. Diagnosis of Helicobacter pylori infection: current options and developments. World J Gastroenterol. 2015;21(40):11221-35.
- Hindson BJ, et al. High-throughput droplet digital PCR system for absolute quantitation of DNA copy number. Anal Chem. 2011;83(22):8604-10.
- International Organization for Standardization. ISO 17511:2020, In vitro diagnostic medical devices—requirements for establishing metrological traceability of values assigned to calibrators, trueness control materials and human samples. International Organization for Standardization; Geneva; 2020.
- Morisset D, et al. Quantitative analysis of food and feed samples with droplet digital PCR. PLoS One. 2013;8(5):e62583.
- World Health Organization. WHO international standard for SARS-CoV-2 RNA, NIBSC code 20/146. World Health Organization; Geneva; 2020.
- Forootan A, et al. Methods to determine limit of detection and limit of quantification in quantitative real-time PCR (qPCR). Biomol Detect Quantif. 2017;12:1-6.
- Johnson S, et al. Clinical practice guideline by the Infectious Diseases Society of America (IDSA) and Society for Healthcare Epidemiology of America (SHEA): 2021 focused update guidelines on management of Clostridioides difficile infection in adults. Clin Infect Dis. 2021;73(5):e1029-44.
- Hyams C, Williams OM, Williams P. Urinary antigen testing for pneumococcal pneumonia: is there evidence to make its use uncommon in clinical practice? ERJ Open Res. 2020;6(1):00223-2019.
- Marrero Rolon R, et al. Erratum for Marrero Rolon et al., “Clinical evaluation of a real-time PCR assay for simultaneous detection of Helicobacter pylori and genotypic markers of clarithromycin resistance directly from stool.” J Clin Microbiol. 2022;60(2):e0245221.
- China Food and Drug Administration. Technical review guidelines for registration of Helicobacter pylori antigen/antibody detection reagents. China Food and Drug Administration; Beijing; 2018.
- Clinical and Laboratory Standards Institute. EP17-A2, Evaluation of detection capability for clinical laboratory measurement procedures; approved guideline. 2nd ed. Clinical and Laboratory Standards Institute; Wayne, PA; 2012.
- Yamaoka Y, Graham DY. Helicobacter pylori virulence and cancer pathogenesis. Future Oncol. 2014;10(8):1487-500.
- Leal YA, et al. Utility of stool sample-based tests for the diagnosis of Helicobacter pylori infection in children. J Pediatr Gastroenterol Nutr. 2011;52(6):718-28.
- Devonshire AS, et al. The use of digital PCR to improve the application of quantitative molecular diagnostic methods for tuberculosis. BMC Infect Dis. 2016;16:366.