Dieser Artikel beschreibt detaillierte Protokolle zur Pflege einer Carausius morosus-Laborkolonie, einschließlich wichtiger Verfahren zur Tierhaltung, Eibehandlung, Aufzucht der Nachkommen, repräsentativer Leistungsmetriken sowie einen Überblick über die Lebensdauer und biologischen Merkmale der Art.
Methodenartikel
Ein standardisiertes Protokoll zur Zucht von Carausius morosus (Phasmatodea, Insecta) unter Laborbedingungen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Carausius morosus, die indische Stabhecke, ist ein schlanker, zweigähnlicher Insekt, das in Indien endemisch ist. Obwohl diese Art durch Haltung weltweit verbreitet wurde und häufig in Laboren eingesetzt oder als Haustier gehalten wird, fehlen standardisierte Laborprotokolle für die Tierhaltung. Hier berichten wir detaillierte Kultivierungsbedingungen im Labor für C. morosus. Wir führen Bestände bei 23 °C, 70 % relative Luftfeuchte und einem 12:12 h Licht-Dunkel-Photoperiodus. Diese Kultur wurde unter diesen Bedingungen erfolgreich über zwei Jahre lang aufrechterhalten, wobei standardisierte Protokolle für Ernährung und Käfigeinrichtung etabliert sind. Wir beschreiben zudem Methoden zur Ei- und Nachzuchtpflege, um laufende Experimente mit C. morosusUnter unseren Kulturbedingungen schlüpften 105 überwachte Gelege, die innerhalb desselben 24-Stunden-Zeitraums abgelegt wurden, innerhalb eines konstanten Zeitraums von 12 Tagen, und 13,9 % der geschlüpften Jungtiere erreichten erfolgreich das Erwachsenenstadium. Diese standardisierten Methoden verbessern die Reproduzierbarkeit und Zugänglichkeit und ermöglichen die breitere Verwendung von C. morosus als Labormodellsystem für eine Vielzahl von Studien, einschließlich der Analyse von Entwicklung, Verhalten und Physiologie.
Einleitung
Da das Interesse an alternativen, nicht-mammalen Modellsystemen wächst, bieten Insekten die Möglichkeit, eine breite biologische Vielfalt zu erforschen, gleichzeitig kostengünstigere Forschungsmodelle bereitzustellen, eine einfachere Pflege zu erfordern und weniger regulatorische Hürden als Säugetiermodelle aufzuweisen1. Aufstrebende Insekten-Modellsysteme ermöglichen die Untersuchung einzigartiger biologischer Phänomene, beispielsweise der Parthenogenese bei Stabschrecken wie Carausius morosus (Sinéty, 1901)2. Während die Fruchtfliege Drosophila melanogaster seit Anfang des 20. Jahrhunderts unser Verständnis von Entwicklungs- und Genprozessen geprägt hat3, eröffnen andere Insekten-Modellsysteme wie C. morosus nicht nur in der Entwicklungsbiologie, sondern auch bei der Erforschung von motorischer Kontrolle, Fortbewegung und neurohormonell regulierten Systemen einzigartige Möglichkeiten4.
Darüber hinaus sind innerhalb des Fachgebiets der evolutionären Entwicklungsbiologie hemimetabole (direkt entwickelnde) Insekten unterrepräsentiert, wobei das holometabole (indirekt entwickelnde oder eine Metamorphose durchlaufende) D. melanogaster das am besten untersuchte Modellinsekt darstellt. Die Untersuchung direkt entwickelnder Insektenarten wie C. morosus, das mehrere nymphale Entwicklungsstadien durchläuft, bevor es die sexuelle Reife erreicht5, ermöglicht es uns, wichtige phylogenetische Lücken in der Forschung zur evolutionären Entwicklungsbiologie zu schließen. Dies erlaubt den Vergleich zwischen hemimetabolen und holometabolen Insekten, die sich früh in der Insekten-Evolution voneinander trennten, aber in gegenwärtigen Labor-Modellsystemen nicht gleichmäßig vertreten sind. Die breitere Anwendung von C. morosus als Labororganismus war bisher durch inkonsistente und nicht reproduzierbare Haltungsbedingungen sowie durch fehlende klare Referenzwerte für Entwicklung und Überleben eingeschränkt. Hier stellen wir ein Schritt-für-Schritt-Protokoll mit definierten Kulturbedingungen und erwarteten Ergebnissen vor, das in verschiedenen Laboren angewendet werden kann und vielfältige Anwendungen unterstützt, darunter die Verfolgung der Embryogenese, die longitudinale Beobachtung der Entwicklung sowie Experimente zur Fortpflanzungsleistung.
C. morosus lassen sich in Gefangenschaft leicht aufziehen, was sie besonders gut für Laborforschung und Lehrzwecke geeignet macht. Ihre Fähigkeit, sich parthenogenetisch zu vermehren6, macht komplexe Zuchtanlagen überflüssig, verringert den Pflegeaufwand und vereinfacht das Management von Populationen. Obwohl eine erfolgreiche Aufzucht von kontrollierten Umweltbedingungen profitiert, bleibt die Haltung im Vergleich zu vielen anderen Labormodellen unkompliziert und kostengünstig. C. morosus nimmt Nahrung bereitwillig von gänglichem Pflanzenmaterial wie Efeu (Hedera helix), Brombeere (Rubus fruticosus) oder Rosenblättern (Rosa spp.) auf. Weitere Vorteile dieses Modells sind Autotomie, die Fähigkeit, Beine zu regenerieren7, eine große Körperform und die Fähigkeit, eine Vielzahl von Wirtspflanzen zu verwerten. Allerdings weist diese Art auch Einschränkungen auf, darunter die fehlende öffentlich zugängliche Genomsequenz, eine vergleichsweise lange Entwicklungsdauer sowie eine harte embryonale Exochorion, die Injektionen erschweren kann8. Trotz dieser Nachteile bietet C. morosus ein praktisches und effektives Modell für Forschungs- und Lehranwendungen.
Standardisierte Aufzuchtprotokolle für C. morosus sind entscheidend, um in Forschungsstudien konsistente und reproduzierbare Ergebnisse zu erzielen. Obwohl mehrere Laborstudien zu C. morosus in der Literatur beschrieben wurden6,9,10,11,12, sind nach unserem Wissen bislang keine detaillierten Protokolle zur Laboraufzucht von C. morosus veröffentlicht worden. In dieser Studie haben wir erfolgreich einen umfassenden Satz standardisierter Protokolle für C. morosus-Laborzuchten etabliert, einschließlich der Aufzucht von Eiern, Nymphen und reproduktionsfähigen adulten Tieren. Mit diesen Methoden möchten wir dieses Insekt für die breitere biologische Forschungsgemeinschaft zugänglicher machen.
Protokoll
1. Environmental rearing conditions
- Maintain the laboratory culture in a climate-controlled room or incubator with environmental settings as follows: 23 °C, relative humidity 70%, light-dark photoperiod of 12:12 h.
NOTE: Under these conditions, C. morosus eggs are expected to hatch approximately 74-80 days after being laid.
2. Establishment and maintenance of mesh enclosures
NOTE: Mesh insect enclosures with fabric mesh ventilation on three sides are recommended for housing C. morosus. An enclosure measuring 61 x 61 x 91.5 cm is suitable for maintaining up to 50 adults or, when establishing a new colony, up to 500 hatchlings.
- Select a mesh enclosure of appropriate size. Ensure the container is clean and free of debris before introducing the animals.
- For establishing a new colony using mature adults, place 25–50 adult females into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Mesh openings should be in the range of 0.2–1.0 mm to prevent escape of the small first instar hatchlings. - For establishing a new colony using hatchlings, transfer up to approximately 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
3. Feeding and maintenance
- During cage cleanings, let the insects stay in the enclosure; gently take them off foliage and place them on the bottom of the mesh enclosure while cleaning around them.
NOTE: Expect cleaning to take roughly 10–20 min per cage. - Provide fresh foliage such as ivy, bramble, or rose once per week. Ensure all plant material is pesticide-free. Wash foliage with tap water prior to addition to cages to remove surface debris and contaminants.
- Trim stems to fit vessels (small jars or bottles) filled with tap water to maintain leaf hydration. Place the prepared foliage inside the enclosure, making sure leaves are elevated and accessible to the insects. Carefully close the enclosure after placement.
- During weekly cage cleanings, remove wilted or dried foliage and any accumulated excrement from the bottom of the enclosure.
NOTE: Replace foliage when leaves show signs of dehydration, such as dryness, brittleness, wilting, or discoloration. Maintaining a clean environment is essential for colony health and well-being. - Lightly mist each enclosure daily with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Reduce density if rapid food depletion occurs.
4. Collection and maintenance of Carausius morosus hatchlings
NOTE: In this study, we use “hatchling” to refer to individuals immediately after emerging from the egg (first instar), while “nymph” refers to juvenile stages following postembryonic molts.
- Gather 6 cm Petri dishes with newly emerged hatchlings.
- Using blunt plastic forceps, gently transfer no more than 500 hatchlings into a clean 61 cm x 61 cm x 91.5 cm mesh enclosure.
NOTE: Collect only fully emerged, stretched out nymphs that have completed exoskeleton expansion. Disturbing the nymphs before they have fully emerged from the egg may impair body extension and lead to premature death. For similar reasons, try to minimize direct handling of nymphs following transfer to the mesh enclosure. - Provide fresh foliage as described in section 3.
- Label new colony enclosures with the following information: egg batch collection date(s), date of hatching or range of hatching dates, and number of hatchlings added.
NOTE: This tracks enclosure age and predicts the start of reproductive maturity. - Lightly mist each enclosure immediately after hatchling transfer, and daily thereafter, with 1–2 sprays of tap water from a 250 mL spray bottle to ensure proper hydration.
NOTE: This is especially crucial on the first day post-hatching. Hatchlings may remain in the same enclosure throughout development until adulthood. Under the laboratory conditions described in section 1, approximately 13% of hatchlings survive to adulthood in 4–5 months (Table 1). - Remove any dead or damaged hatchlings during weekly cage cleaning to prevent contamination.
5. Collection and maintenance of C. morosus eggs
- Open an enclosure containing adult females.
- Using a gloved hand, gently sweep the substrates on the bottom of the cage, which contain both eggs and fecal matter, towards the front opening.
- Carefully transfer the material using a gloved hand to a 15 cm Petri dish for egg retrieval.
6. Termination of insects and disposal of enclosure waste
NOTE: When C. morosus are no longer needed for experiments, have died, or eggs are not required:
- Euthanasia/Disposal of insects: Transfer live or dead insects no longer needed for culture or experiments into an autoclavable waste bag, and store in a -20 °C freezer for at least 72 h.
- Egg destruction: To prevent overpopulation, remove any eggs not used for experiments from cages or Petri dishes, place them in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- Waste handling: Place any contaminated waste from enclosures or materials used for egg or insect collection in an autoclavable waste bag, and store at -20 °C for at least 72 h.
- After freezing materials, transfer the autoclavable waste bag to a biohazard bin for proper disposal.
NOTE: As C. morosus is an invasive species outside of India, it is crucial that all materials are properly disposed of as described above to prevent accidental release into the environment.
7. Egg retrieval
- Using blunt plastic forceps, carefully pick up each egg and place it into a clean 6 cm Petri dish.
NOTE: Mature eggs are protected by a hardened exochorion and are dark brown, resembling plant seeds. Using a white background can help differentiate droppings from eggs when sorting. - Label the dish with the date and time of collection for tracking purposes. Keep the lid off during incubation to allow ventilation.
NOTE: A 6 cm Petri dish is sufficient for storing up to 200 eggs. - Approximately 1 week before the expected hatching window (74–80 days after egg laying; Kovacikova & Extavour, unpublished data), replace the Petri dish cover.
- Begin daily monitoring of egg containers before the expected hatching date to observe emerging hatchlings.
8. Life expectancy
- After hatching, monitor individuals as they undergo five to six molts before reaching reproductive maturity, which under the laboratory conditions described in Section 1, happens on average 139 days after hatching (Table 1).
- To follow this protocol, define developmental timing under these culture conditions as follows: embryogenesis duration (egg laying to hatching) is 74–80 days; time from hatching to sexual maturity (onset of oviposition) is approximately 135 days, corresponding to approximately 200 days from egg laying to sexual maturity, and total lifespan from egg laying to death is approximately 9.5 months.
Ergebnisse
Wir sammelten Daten, die die erfolgreiche Laborzucht von C. morosus von Eiern bis zu geschlechtsreifen Erwachsenen zwischen September 2024 und November 2025 dokumentieren. Während dieses 14-monatigen Zeitraums richteten wir fünf Käfige ein, die wir etablierten, pflegten und überwachten, um eines oder mehrere der folgenden Parameter zu erfassen: Sterblichkeit der Erwachsenen, abgelegte Eier, Zeitpunkt des Ei-Ausschlüpfens und Überleben der Jungtiere bis zum Erwachsenenalter. Unsere Methode ermöglicht die langfristige Koloniepflege ohne offensichtliche Anzeichen krankheitsbedingter Erkrankungen oder reproduktiver Einbußen, die jeweils suboptimale Ergebnisse darstellen würden. Über einen Zeitraum von mehr als zwei Jahren kontinuierlicher Kultur hinweg beobachteten wir keine offensichtlichen, pathogenbedingten Massentodesfälle, und die Produktion von Eiern sowie Jungtieren blieb über mehrere Generationen hinweg stabil.
Die in Abbildung 1 und Abbildung 2 gezeigten Daten zeigen Beobachtungen aus den fünf überwachten Käfigen vom Aufbau bis zur Erwachsenenphase der Schlüpflinge, einschließlich der gelegten Eier und der Erwachsenensterblichkeit für jeden Käfig. Nachdem die ursprünglichen Individuen in jedem Käfig die Geschlechtsreife erreicht und mit der Eiablage begonnen hatten, erfassten wir die Anzahl der erwachsenen Tiere in jedem Käfig, um die Startpopulation zu Beginn der Eiablage festzulegen. Die Anzahl der erwachsenen Tiere in jedem Käfig über die Zeit ist in Abbildung 1 und Tabelle 1 dargestellt. Wir interpretieren den stetigen Rückgang der Überlebensrate als altersbedingte Mortalität.
Wir überwachten parallel die Eiablage in denselben fünf Käfigen, in denen auch die Überlebensrate der erwachsenen Tiere beobachtet wurde (Abbildung 1 und Abbildung 2). Die tägliche Anzahl an Eiern pro Käfig war während der ersten 30–50 Tage der Eiablage am höchsten und nahm danach allmählich ab. Obwohl die Gesamtanzahl der gelegten Eier zwischen den Käfigen variierte (Tabelle 2), war dieses allgemeine Muster in allen fünf unabhängigen Käfigen konsistent. Wir untersuchten die Schlupfdynamik über einen Zeitraum von 50 Tagen für insgesamt 105 Eiablagen, wobei jede Eiablage eine Gruppe von Eiern bezeichnet, die innerhalb eines Zeitraums von 24 Stunden im selben Käfig abgelegt wurden. Für die Analysen zur Gelegegröße, die in Abbildung 3 dargestellt sind, wurden 75 Gelege in die Kategorien klein, mittel und groß eingeteilt. Wir fanden heraus, dass nach dem Schlupf des ersten Eis einer Gelegegruppe die Schwellenmarke von 90 % Schlupfabschluss innerhalb von 12 Tagen erreicht wurde (Abbildung 3D), unabhängig von der Gelegegröße (Abbildung 3B). Unter Verwendung des Begriffs „Schlupfabschluss“ zur Beschreibung des Anteils der Eier in einer Gelegegruppe, die zu einem bestimmten Zeitpunkt nach dem Schlupf des ersten Jungtiers geschlüpft sind, stellen wir fest, dass die Verteilung der Eigelege nach dem Tag des 90 %igen Schlupfabschlusses darauf hinweist, dass die meisten Gelege diesen Schwellenwert zwischen den Schlupftagen 10 und 14 (Abbildung 3C) nach dem Schlupf des ersten Jungtiers erreichten.
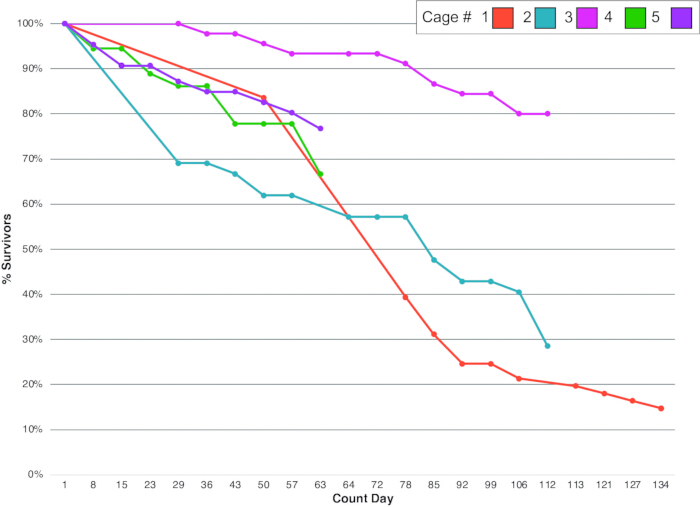
Abbildung 1. Dynamik der Erwachsenensterblichkeit. Überlebensverläufe in fünf unabhängigen C. morosus-Versuchskäfigen im Zeitverlauf. Die prozentuale Überlebensrate ist für die Individuen in jedem beobachteten Käfig über die Zeit aufgetragen. Siehe Zusammenfassung der Kenngrößen in Tabelle 1. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
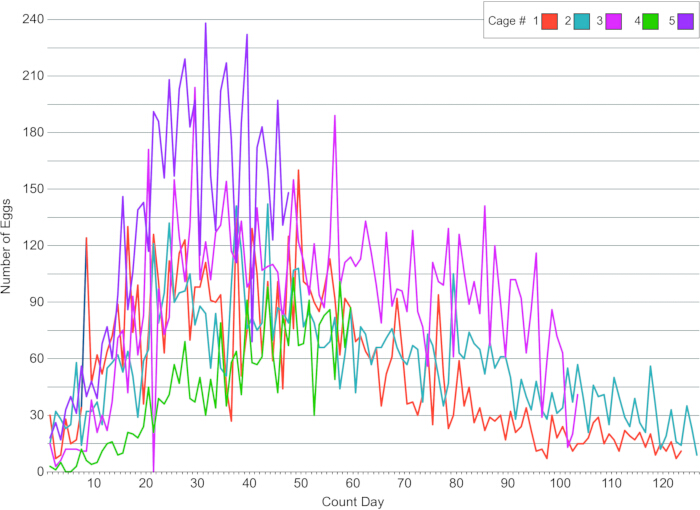
Abbildung 2. Dynamik der Eiablage Die Anzahl der Eier, die aus denselben fünf Käfigen gesammelt wurden, die überwacht wurden in Abbildung 1. Die Käfige 1 bis 5 wurden jeweils 47, 58, 106, 129 und 132 Tage lang täglich überwacht. Das Diagramm zeigt Daten der ersten 126 Tage der Eiablage. Siehe Zusammenfassung der Kenngrößen in Tabelle 2. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzuzeigen.
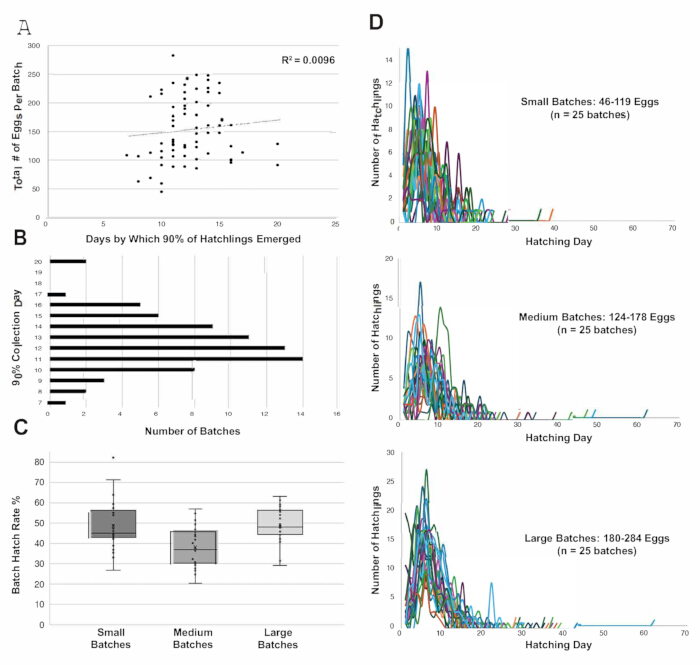
Abbildung 3. Schlupfdynamik. (A) Beziehung zwischen der Gesamtanzahl der Eier pro Charge und der Anzahl der Tage, die benötigt wurden, um eine Schlupfquote von 90 % zu erreichen. (B) Verteilung der Eierchargen nach dem Tag, an dem sie eine Schlupfquote von 90 % erreichten, innerhalb der Schlupftage 7–20. (C) Verteilung der Schlupfrate pro Charge über kleine, mittlere und große Eierchargen hinweg. n = 25 Chargen pro Größenkategorie. (D) Schlupfverläufe über einen Sammelzeitraum von 70 Tagen für die 75 Eierchargen, die in der Größenanalyse verwendet wurden. Insgesamt wurden 105 Eierchargen beobachtet; für die hier gezeigten Analysen wurden 75 Chargen anhand von Drittelschnittwerten nach der Gesamtanzahl der Eier gruppiert. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
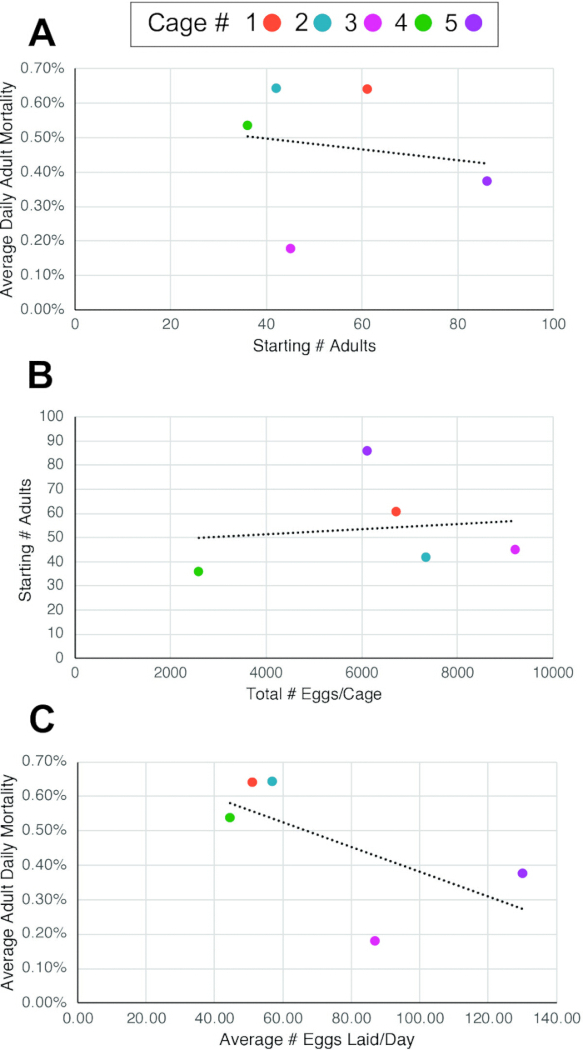
Abbildung 4. Beziehungen zwischen der Anzahl erwachsener Tiere, der Sterblichkeit erwachsener Tiere und der Eiproduktion pro Käfig. (A) Es besteht kein signifikanter Zusammenhang (R2 = 0,025) zwischen der durchschnittlichen täglichen Sterblichkeit erwachsener Tiere und der Anzahl der ursprünglich eingesetzten erwachsenen Tiere in einem Käfig. (B) Es besteht kein signifikanter Zusammenhang (R2 = 0,017) zwischen der Gesamteiproduktion und der Anzahl der ursprünglich eingesetzten erwachsenen Tiere in einem Käfig. (C) Es besteht eine moderate negative Korrelation (R2 = 0,411) zwischen der durchschnittlichen täglichen Eiproduktion und der durchschnittlichen täglichen Sterblichkeit erwachsener Tiere. Durchschnittliche tägliche Sterblichkeit erwachsener Tiere = (% Gesamtsterblichkeit) / (Gesamtanzahl überwachter Tage). Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Käfig Nr. | alte Käfignummer | Erster Tag, an dem Jungtiere dem Stammkäfig hinzugefügt wurden | Letzter Tag, an dem Jungtiere dem Stammkäfig hinzugefügt wurden | Anzahl der dem Käfig hinzugefügten Jungtiere | Zeitraum in Tagen, in dem Jungtiere hinzugefügt wurden | Durchschnittliche Zeit zwischen Käfigbeginn und Adultanzählung | Erster Tag der Adultzählung | Erster Tag, an dem Adults mit der Eiablage begannen | Verstrichene Zeit zwischen Schlüpfen und Erwachsenenalter | Verstrichene Zeit zwischen Schlüpfen und Eiablage | Anfangsanzahl an Adults | Überlebensrate der Jungtiere bis zum Erwachsenenalter | Letzter Tag der Adultzählung | Endanzahl an Adults | Zeitraum, über den die Anzahl der Adults überwacht wurde [Tage] | Durchschnittliche Adultsterblichkeit während der Überwachung [%] | Durchschnittliche tägliche Adultsterblichkeit [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14,00 | 166,00 | 5/29/ 2025 | 5/29/ 2025 | 173,00 | 173,00 | 61,00 | ND | 10/9/ 2025 | 9,00 | 133,00 | 85,25% | 0,64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27,00 | 130,00 | 7/17 /2025 | 7/17/ 2025 | 157,00 | 157,00 | 42,00 | ND | 11/5/ 2025 | 12,00 | 111,00 | 71,43% | 0,64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | ND | 7,00 | 110,00 | 7/17/ 2025 | 7/27/ 2025 | 103,00 | 113,00 | 45,00 | ND | 11/5/ 2025 | 36,00 | 111,00 | 20,00% | 0,18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14,00 | 121,00 | 9/4/ 2025 | 9/13/2 025 | 119,00 | 128,00 | 36,00 | 10,29% | 11/5/ 2025 | 24,00 | 62,00 | 33,33% | 0,54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14,00 | 117,00 | 9/4/ 2025 | 9/24/ 2025 | 104,00 | 124,00 | 86,00 | 16,04% | 11/5/ 2025 | 66,00 | 62,00 | 23,26% | 0,38% |
| Mittelwerte | 15,20 | 128,80 | 131,20 | 139,00 | 54,00 | 13,17% | 29,40 | 95,80 | 46,65% | 0,48% |
Tabelle 1: Überleben und Sterblichkeitsdynamik von erwachsenen Tieren in den experimentellen Käfigen. Ergebnisse zum Überleben erwachsener Tiere in fünf replizierten experimentellen Käfigen. Für jeden Käfig werden der Zeitraum der Käfigeinrichtung, die Anzahl der zur Einrichtung jedes Käfigs verwendeten Schlüpflinge (für 2 der 5 Käfige), das Überleben der Schlüpflinge bis zum Erwachsenenstadium (für 2 der 5 Käfige), der Zeitraum zwischen Käfigeinrichtung, Beginn der Zählung erwachsener Tiere und Beginn der Eiablage, die Dauer der Überwachung der erwachsenen Tiere, die anfängliche und endgültige Populationsgröße der erwachsenen Tiere, die Sterblichkeit der erwachsenen Tiere während des Überwachungszeitraums sowie die durchschnittliche tägliche Sterblichkeit angegeben. Die Berechnung des Überlebens der Schlüpflinge bis zum Erwachsenenstadium erfolgte nur für Käfige mit bekannter Anfangsanzahl an Schlüpflingen.
| Käfig Nr. | Datum Beginn der Eiersammlung | Datum Ende der Eiersammlung | Dauer der Eiersammlung [Tage] | Gesamtanzahl Eier/Käfig | Durchschnittliche Anzahl gelegter Eier/Tag | Anfangsanzahl erwachsener Individuen | Gesamtanzahl Eier/Anfangsanzahl Erwachsene | Durchschnittliche Anzahl Eier/Anfangsanzahl Erwachsene/Tag |
| 1 | 29.05.2025 | 08.10. 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 04.07.2025 | 10.11.2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 27.07.2025 | 10.11.2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 13.09.2025 | 10.11.2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 24.09.2025 | 10.11.2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| Mittelwerte | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
Tabelle 2: Eiablageleistung in den experimentellen Käfigen. Eiablageleistung von fünf unabhängigen experimentellen Käfigen mit ausgewachsenen Tieren. Für jeden Käfig werden der Beginn und das Ende der Eiersammlung, die gesamte Dauer der Eiersammlung, die kumulative Eiablage pro Käfig sowie die durchschnittliche Anzahl der pro Tag gelegten Eier angegeben.
Diskussion
Die hier beschriebenen Haltungsverfahren bieten einen einfachen, reproduzierbaren Rahmen zur Aufzucht von Laborpopulationen von C. morosus. Obwohl C. morosus bereits seit langem in Laboren oder als Haustier gehalten wird, haben sich die Haltungsprotokolle für Laboruntersuchungen in verschiedenen Studien unterschieden6,9,10,11,12. Die Gewährleistung konsistenter Umweltbedingungen und Fütterungspraktiken ist wichtig, um C. morosus zu einem zuverlässigen Labor-Modellorganismus für entwicklungsgenetische, physiologische und evolutionäre Forschung zu machen.
Entwicklungsdauer von C. morosus im Vergleich zu anderen Modellinsekten
Im Vergleich zu holometabolen Insekten wie der Fruchtfliege Drosophila melanogaster weist C. morosus langsamere Entwicklungsraten und eine verlängerte juvenile Phase auf. Während D. melanogaster die Embryogenese in etwa 24 Stunden abschließt und bei 25 °C innerhalb von 10–12 Tagen die Fortpflanzungsreife erreicht13, benötigt C. morosus unter unseren Zuchtbedingungen 74–80 Tage für die Embryogenese und ungefähr 135–139 Tage nach dem Schlüpfen, um die Fortpflanzungsreife zu erreichen, was insgesamt etwa 200 Tage von der Eiablage bis zur Fortpflanzungsreife bei 23 °C entspricht (Daten nicht gezeigt). Diese verlängerte Zeitspanne spiegelt grundlegende physiologische und evolutionäre Unterschiede zwischen hemimetabolen und holometabolen Insekten wider14,15 und wird immer wieder innerhalb der Phasmatodea beobachtet16,17,18. Obwohl andere hemimetabole Insekten, wie die Grille Gryllus bimaculatus, die Embryogenese und die Geschlechtsreife in kürzerer Zeit erreichen (zehn Tage bzw. sechs Wochen bei 29 °C19), bietet die langsamere Entwicklung von C. morosus eine einzigartige Gelegenheit für reproduzierbare Forschung und detaillierte, longitudinale Untersuchungen der Embryogenese und der juvenilen Entwicklung.
Laubquelle und Fütterungspraktiken
In diesem Protokoll berichten wir, Hedera helix (Efeu) als Hauptnahrungsquelle für unsere C. morosus-Kolonie zu verwenden, wobei das Laub ganzjährig an einem konstanten Standort auf dem Campus gesammelt wurde. Obwohl Efeu nicht für alle Labore zugänglich ist, wurden mehrere alternative Pflanzen als geeignete Nahrungsquellen zur Aufzucht von C. morosus-Kolonien beschrieben, darunter Brombeere (Rubus spp.), Liguster (Ligustrum spp.), Feuerdorn (Pyracantha spp.), Rose (Rosa spp.), Weißdorn (Crataegus monogyna), Eiche (Quercus spp.) und Hasel (Corylus spp.)20. Ein wichtiger Aspekt beim Einsatz von außerhalb gesammeltem Laub ist, dass der Nährstoffgehalt weniger kontrolliert ist als in Laborsystemen, die auf standardisierten Diäten basieren (z. B. Drosophila melanogaster), was zu einer variablen Nährstoffzufuhr führen kann. Um dies einzuschränken, verwendeten wir über alle Jahreszeiten hinweg dieselbe Pflanzenart von derselben Fundstelle und boten das Laub wöchentlich während der routinemäßigen Käfigpflege allen Käfigen an. Die zum Füttern verwendeten Efeuzweige wiesen in der Regel eine Mischung aus jungen und ausgereiften Blättern auf; wir wählten die Zweige nicht nach einem bestimmten Entwicklungsstadium der Blätter aus. Alle Blätter wurden vor dem Einlegen in die Käfige gewaschen. Unser wöchentlicher Erneuerungsplan, bei dem das gesamte Laub entfernt und am selben Tag ersetzt wurde, diente der Konsistenz und der effizienten Bewirtschaftung der Kolonie. Geschnittenes Efeulaub wurde innerhalb der Käfige in wassergefüllten Behältern aufbewahrt, um über die Woche hinweg die Hydratation sicherzustellen. In den meisten Fällen blieben die Blätter die gesamte Woche in gutem Zustand, obwohl gelegentlich Austrocknung oder Abnahme auftreten konnte; in solchen Fällen ersetzten wir das Laub vorzeitig, also früher als nach einer Woche.
Koloniegröße, Überlebensraten und Fortpflanzung der Erwachsenen
Eine sachgemäße Kolonieeinrichtung und eine sorgfältige Kontrolle der Populationsdichte waren entscheidend, um die Bestände gesund zu halten. Die Aufzucht von maximal etwa 500 Nachzuchten oder 50 erwachsenen Tieren pro 61 cm x 61 cm x 91,5 cm großem Terrarium ermöglichte stabile Bedingungen, eine zuverlässige Koloniepflege und reproduzierbare Beobachtungen der Entwicklung.
Vergleich der durchschnittlichen täglichen Mortalität mit der Anzahl der Gründungsindividuen in einem Käfig (Abbildung 4A und Tabelle 1) ergab keinen vorhersagbaren Zusammenhang zwischen diesen beiden Parametern. Ebenso bestand keine starke vorhersagende Beziehung zwischen der Gesamtzahl der Gründungsindividuen und der Gesamteierproduktion (Abbildung 4B, Tabelle 1und Tabelle 2). Stattdessen wiesen Käfige mit geringerer durchschnittlicher täglicher Erwachsenenmortalität eine leichte Tendenz zu höherer durchschnittlicher täglicher Eiablage auf (Abbildung 4C). Allerdings deuten Unterschiede zwischen den Käfigen darauf hin, dass die Eiproduktion zwischen den erwachsenen Tieren variierte (Tabelle 1 und Tabelle 2), was darauf hindeuten könnte, dass Faktoren jenseits der Überlebensfähigkeit im Erwachsenenalter zur Fruchtbarkeitsmuster beitragen, und dass sich individuelle Weibchen auch dar darin unterscheiden können, wie viele Eier sie jeden Tag ablegen.
Die Eiproduktion in allen überwachten Käfigen nahm im Verlauf des Experiments generell ab (Abbildung 2). Die meisten Käfige wiesen die höchsten täglichen Eiablage-Raten zu Beginn der Fortpflanzungsphase (erste 50 Tage) auf, danach ging die Produktion allmählich zurück (Abbildung 2). Dieses Muster stimmt mit unserer Beobachtung überein, dass Individuen typischerweise etwa 135 Tage nach der Schlüpfung die Geschlechtsreife erreichen und mit der Eiablage beginnen und dass die Mortalität ungefähr 90 Tage später einsetzt (~225 Tage nach der Schlüpfung; Daten nicht gezeigt).
Zeitliche Abfolge und Dynamik des Schlüpfens
Bei den überwachten Ei-Partien erfolgte das Schlüpfen überwiegend innerhalb eines konstanten Zeitraums von 12 Tagen nach Beginn der Schlupfphase (Abbildung 3D). Ebenso bestand keine Korrelation zwischen der Partiengröße und dem Zeitpunkt des Erreichens von 90 % Schlupfquote (Abbildung 3A), und die meisten Partien erreichten 90 % Schlupfquote zwischen Tag 10 und 14 nach dem ersten geschlüpften Jungtier (Abbildung 3B). Diese vorhersehbare Schlupfphase ist eine nützliche Eigenschaft im Management von C. morosus-Kolonien, da sie es ermöglicht, die geschlüpften Tiere in altersähnliche Kohorten einzuteilen, wodurch die Entwicklungsklassifizierung verbessert und die experimentelle Variabilität verringert wird. Die Kenntnis darüber, wann ein massenhafter Schlupf stattfinden wird, erlaubt zudem eine bessere Planung des Wechsels der Behausungen und der Ressourcenverteilung, einschließlich der rechtzeitigen Vorbereitung von Behausungen, Futterpflanzen und Materialien zur Verfolgung, was besonders bei großangelegten oder langfristigen Studien wichtig ist. Obwohl sowohl sexuell fortpflanzende als auch parthenogenetische Phasmatodea-Arten untersucht wurden, ist uns keine Evidenz bekannt, dass der Fortpflanzungsmodus allein Unterschiede in der Embryogenese-Dauer verursacht. Stattdessen wurde berichtet, dass die Entwicklung variabel ist und artspezifisch sowie durch Umweltbedingungen beeinflusst wird2.
Behandlung von Eiern und Überlegungen zum Substrat
Unsere Methode zum Umgang mit Eiern beinhaltet das Sammeln der Eier direkt vom Boden des Terrariums und die Inkubation in belüfteten Petrischalen. Dieser Ansatz ermöglicht eine einfache Beobachtung der Eier, im Gegensatz zu Grillensystemen, bei denen Eier in Substraten wie Kokosfasern oder Watte dochtartig gesammelt werden21. Die harte Exochorionhülle der C. morosus-Eier bietet Schutz während der Handhabung sowie vor Austrocknung und ermöglicht eine sichere Inkubation in Petrischalen ohne zusätzliches Substrat unter unseren Kulturbedingungen. Insgesamt bieten diese standardisierten Verfahren einen strukturierten Ansatz zur Aufzucht gesunder C. morosus-Populationen für reproduzierbare entwicklungsgenetische, verhaltensbiologische, genetische oder physiologische Untersuchungen. Konsistente Umweltbedingungen (23 °C, 70 % Luftfeuchtigkeit, 12:12-Stunden-Licht-Dunkel-Zyklus), regelmäßige Pflege der Terrarien und vorhersehbare Entwicklungszeiträume machen C. morosus zu einem leicht handhabbaren und kostengünstigen Modellsystem. Im Gegensatz zu einigen Grillensystemen, bei denen Überbevölkerung, Kannibalismus oder hohe Pathogenlast Kolonien schnell destabilisieren können22, sind C. morosus-Kolonien einfach zu pflegen und daher besonders gut für großangelegte Experimente sowie für Studien über mehrere Generationen hinweg geeignet. Da C. morosus zunehmend als Modellart für hemimetabole Entwicklung anerkannt wird, sollten standardisierte Methoden die Reproduzierbarkeit und Vergleichbarkeit von Studien in verschiedenen Bereichen der Insektenbiologie fördern.
Überleben von der Schlupfphase bis zum Erwachsenenstadium
Die Überlebensrate von Schlüpflingen bis zum Erwachsenenstadium in unserer Studie (~13 %) ist deutlich niedriger als die in einer anderen quantitativen Studie berichtete Überlebensrate von C. morosus-Nymphen unter kontrollierten Laborbedingungen, bei der 68 % der Individuen bei kalorischer Restriktion bis zum Erwachsenenstadium überlebten und bis zu 87 % bei ad libitum-Fütterung23. Wir vermuten, dass die in unserer Kolonie beobachtete niedrigere Überlebensrate (~13 %) im Vergleich zu der früheren Studie auf Unterschiede in der Haltung der Tiere zurückzuführen ist, die wiederum den unterschiedlichen Zielsetzungen unserer Kultur und der vorherigen Studie entsprechen. Unser Protokoll wurde darauf ausgelegt, große, kontinuierlich reproduzierende Kolonien aufrechtzuerhalten, anstatt das Überleben einzelner Gruppen zu maximieren. Daher hielten wir die Tiere in relativ hohen Dichten, im Gegensatz zu der früheren Studie, die Tiere von der Eiablage bis zum Erwachsenenstadium einzeln in separaten Käfigen aufzog23. Wir vermuten, dass die hier beschriebene Hochdichtekultur im Vergleich zur Einzelhaltung die Mortalität erhöhen könnte, insbesondere in den frühen Nymphenstadien, in denen die Individuen möglicherweise empfindlicher gegenüber Überbesetzung oder Konkurrenz sind. In unseren größeren Käfigen könnte zudem eine Variation in der Pflanzenqualität eine Rolle gespielt haben, im Vergleich zu der Einzelzucht, bei der den Individuen kontrolliert große, aus Blättern geschnittene Pflanzenscheiben verfüttert wurden23. Trotz der vergleichsweise niedrigeren Überlebensrate produzierte unsere Kolonie jedoch kontinuierlich große Mengen an Eiern und blieb über die Zeit stabil (Abbildung 1, Abbildung 3, Tabelle 1 und Tabelle 2). Dies legt nahe, dass der hier beschriebene Ansatz effektiv ist, um eine langfristige Laborzucht aufrechtzuerhalten.
Faktoren, die das Überleben beeinflussen, und protokollbedingte Einschränkungen
Mehrere Faktoren in diesem Protokoll beeinflussen wahrscheinlich das Überleben und sollten sorgfältig kontrolliert werden. Die Populationsdichte ist ein wichtiger Parameter, da Überbevölkerung das Überleben verringern kann, insbesondere in frühen Larvenstadien. Ein weiterer Parameter, der das Überleben beeinflusst, ist eine ausreichende Hydratation, besonders in frühen Larvenstadien. Alle im Protokoll beschriebenen Verfahren und Zeitpunkte basieren auf den spezifischen Umweltbedingungen, die in dieser Studie verwendet wurden. Änderungen in Luftfeuchtigkeit, Temperatur, Luftstrom oder Pflanzenart können jedoch die Häufigkeit des Besprühen mit Wasser, wie oft das Futterpflanzenmaterial erneuert werden muss, die Schlupfzeit der Eier und das Gesamtüberleben beeinflussen. Beispielsweise kann unter trockeneren Kulturbedingungen eine häufigere Besprühung mit Wasser und ein häufigerer Pflanzenwechsel erforderlich sein, um die Hydratation aufrechtzuerhalten. Unterschiedliche Pflanzenarten können ebenfalls die Nahrungsaufnahme und Entwicklung beeinflussen. Diese Faktoren sollten je nach Aufzuchtbedingungen und experimentellen Zielen angepasst werden. Bei Anwendungen, die eine hohe Überlebensrate von Jungtieren, individuelle Nachverfolgung oder Verhaltensanalysen erfordern, sind niedrigere Startdichten möglicherweise vorzuziehen.
Offenlegungen
Die Autoren erklären, dass keine Interessenkonflikte bestehen.
Danksagungen
Dieses Projekt wurde durch die Auszeichnung IOS 22207477 der National Science Foundation an CGE unterstützt, der Investigator des Howard Hughes Medical Institute ist. Wir anerkennen, dass Carausius morosus vermutlich aus Tamil Nadu in Indien stammt und dass Laborzuchten dieser Art außerhalb Indiens seit mindestens 1908 gepflegt werden. Wir danken Stanislav Gorb und Thies Büscher (Universität Kiel) herzlich dafür, dass sie die ursprüngliche Gruppe erwachsener Tiere bereitgestellt haben, die zur Einrichtung unserer Zucht verwendet wurde, sowie allen Mitgliedern des Extavour-Labors für ihre Unterstützung, einschließlich des ehemaligen Labormitarbeiters Dr. Upendra Bhattarai (aktuelle Zugehörigkeit: Brown University), der die erste Kolonie eingerichtet hat.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Autoklavierbare Polypropylenbeutel, 30,5 cm × 61 cm | VWR | 95042-554 | Zur Entsorgung von Insekten, Eiern und Abfällen aus der Haltung |
| Bioabfallbehälter | N/V | N/V | Zur Entsorgung nach dem Einfrieren |
| Stumpfe Kunststoffpinzette | Amazon | B07YZ5FB27 | Zum Sammeln und Handhaben von Eiern und Jungtieren |
| Klimakontrollierter Raum oder Inkubator | N/V | N/V | Zur Aufrechterhaltung von 23 °C, 70 % Luftfeuchtigkeit und einem 12:12-Stunden-Licht-Dunkel-Photoperiode |
| Einweghandschuhe | N/V | N/V | Für das Sammeln von Eiern und das Handhaben von Abfällen |
| Einweg-Petri-Schalen, 150 × 15 mm | VWR | 25384-326 | Für die Eiersammlung |
| Einweg-Petri-Schalen, 60 × 15 mm | VWR | 25384-092 | Für die Ei-Inkubation |
| Frisches Laub (Efeu, Brombeere oder Rosenblätter) | N/V | N/V | Pestizidfreie Nahrungsquelle |
| Gefrierschrank, -20 °C | N/V | N/V | Für die Euthanasie/Entsorgung sowie zum Einfrieren von Eiern oder Abfällen vor der Entsorgung |
| Netz-Insektengehege | Amazon | B09GS2CH1G | Zur Unterbringung von Insekten |
| Sprühflasche, 250 mL | Amazon | B000H88PCU | Zum Besprühen der Netzgehege |
| Hoher Glasbehälter, 18–23 cm Höhe | N/V | N/V | Zum Halten von Wasser und Pflanzenstielen |
| Leitungswasser | N/V | N/V | Für das Besprühen und zur Aufrechterhaltung der Feuchtigkeit der Pflanzen |
| Weißer Sortieruntergrund oder -behälter | N/V | N/V | Zur Unterscheidung von Eiern und Ausscheidungen beim Sortieren |
Referenzen
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
Nachdrucke und Genehmigungen
