Dieses Protokoll beschreibt eine standardisierte Methode zum Schneiden innerhalb einer Kammer, um den Beginn, den Zeitpunkt des Maximums und die Kinetik wundinduzierter flüchtiger Emissionen zusammen mit simultanen Gaswechsel-Messungen zu erfassen.
Methodenartikel
Eine Methode zum Schneiden innerhalb einer Kammer zur Echtzeit-Quantifizierung von Blattverletzungs-Flüchtigstoffen und des Gasaustauschs
31 Aufrufe
⸱
11. September 2026
In diesem Artikel
Zusammenfassung
Zusammenfassung
Flüchtige organische Verbindungen (VOCs), die von Pflanzenblättern freigesetzt werden, spielen eine Schlüsselrolle bei Stresssignale, Pflanze-Atmosphäre-Wechselwirkungen und Pflanzenabwehr. Unter diesen werden wundinduzierte VOCs (wVOCs) innerhalb von Sekunden nach mechanischer Beschädigung, Fraßaktivität oder Umweltstörungen emittiert. Ihre Emissionsdynamik hängt stark von der zeitlichen Abfolge, Schwere und Art der Gewebeverletzung ab. Dennoch bleibt eine genaue Quantifizierung aufgrund mechanischer Artefakte, variabler Expositionsbedingungen und Verzögerungen zwischen Verletzung und Messung herausfordernd. Diese Studie stellt einen standardisierten Protokollansatz zur Blattabschneidung innerhalb einer Messkammer für die Echtzeitüberwachung von wVOCs und Gasaustausch vor. Eine chirurgische Schneidvorrichtung wurde in eine tragbare Gasaustauschmesskammer integriert, um saubere, kontrollierte Schnitte innerhalb einer geschlossenen Kammer unter stabilen Licht-, Feuchtigkeits-, CO2- und Temperaturbedingungen durchzuführen. Ein Protonen-Transfer-Reaktions-Time-of-Flight-Massenspektrometer (PTR-TOF-MS) maß kontinuierlich die flüchtigen Emissionen am Kammerausgang, wodurch Verzögerungen und Signalverzerrungen minimiert wurden. Diese Anordnung ermöglicht eine hochaufgelöste Erfassung des Emissionsbeginns, des Zeitpunkts des Maximalwerts, der maximalen Anstiegsrate und der gesamten Freisetzungsquantität. Die Anwendung der Methode auf Quercus rubra, Acer platanoides und Gossypium hirsutum zeigte ihre Fähigkeit, unterschiedliche wundinduzierte Emissionsmuster bei kontrastierenden Blatttypen aufzulösen. Durch die Eliminierung von Verzögerungen, die mit herkömmlichen Probennahmeverfahren verbunden sind, erfasst diese Methode die vollständige kinetische Trajektorie wundinduzierter Emissionen und überwindet wesentliche Einschränkungen früherer Ansätze. Sie bietet einen robusten Rahmen zur Untersuchung schneller Stressreaktionen in der Pflanzenphysiologie, ökologischen Biochemie und Pflanze-Atmosphäre-Wechselwirkungen.
Einleitung
Pflanzen reagieren auf Verletzungen mit der Freisetzung eines schnellen chemischen Signals, dessen genaue Erfassung jedoch technisch anspruchsvoll bleibt. Innerhalb von Sekunden nach Herbivorie, Windbeschädigung oder mechanischer Störung setzen Pflanzen einen vorübergehenden Schub flüchtiger organischer Verbindungen (VOCs) frei, der innere Abwehrmechanismen aktiviert und benachbarte Pflanzen voraktiviert1,2,3,4. Zu diesen wundinduzierten VOCs (wVOCs) gehören grüne Blatt-Volatilen (GLVs), Methanol, kurzkettige Alkohole und Aldehyde, Terpenoide sowie Oxylipin-Derivate. Sie entstehen entweder durch neuartige Synthese in Mesophyllzellen oder durch das Platzen von Speicherstrukturen wie Harzkanälen und Trichomen. Als unmittelbare Stresssignale koordinieren wVOCs physiologische Abwehrreaktionen, vermitteln die Pflanze-Pflanze-Kommunikation und interagieren mit der Atmosphärenchemie1,5,6,7.
Da natürliche Herbivorie mechanische Schädigung mit Speichel- und mikrobiellen Auslösern kombiniert, verwenden experimentelle Studien simulierte Verletzungen, um allein die Reaktionen auf physische Schädigung zu isolieren8. Aufgrund der flüchtigen Natur von wVOCs ist deren Erfassung jedoch grundsätzlich schwierig. Herkömmliche Methoden wie die statische Headspace-Probenahme gekoppelt mit Gaschromatographie-Massenspektrometrie (GC-MS) verpassen häufig den initialen Emissionsausbruch und verfälschen dessen kinetisches Profil9,10. Gleichgewichtsverzögerungen, erhöhte Inkubationstemperaturen und verlängerte Probenahmeleitungen verlängern die Verweilzeit und verzerren das aufgezeichnete Signal, insbesondere für reaktive Verbindungen wie Sesquiterpene9,11,12. Zusammen reduzieren diese Artefakte die Signalstärke und verschleiern die zeitliche Dynamik der wundinduzierten flüchtigen Emissionen, wodurch die Interpretation von Pflanzenstressreaktionen erschwert wird.
Viele Studien unterbrechen die Messung zudem, um Blätter außerhalb der Kammer zu verletzen. Diese Unterbrechung destabilisiert den Gasfluss, verändert den Zeitpunkt der Verletzung und verringert die Kontrolle über die Präzision des Einschnitts13,14,15. Dadurch gehen die ersten Minuten nach der Verletzung häufig verloren oder werden verzerrt13, genau dann, wenn die Emissionsraten ihren Höhepunkt erreichen und charakteristische kinetische Muster auftreten3,6,16,17. Einige Ansätze verlagerten die Blattentfernung in Großvolumen-Kammern unter Verwendung von Teflon-Klingen oder mechanischen Stanzgeräten12,18,19. Diese Aufbauten führten jedoch häufig zu Instabilitäten bei der Abdichtung, inkonsistenten Schnittlängen und ungleichmäßigen Einschnitten aufgrund von Verschiebungen des Schneidewerks oder Unterschieden in der Blattfestigkeit. Das große Kammervolumen verzögerte zudem den Luftaustausch und verbreiterte das flüchtige Signal16. Insgesamt verhindern diese experimentellen Einschränkungen eine genaue Charakterisierung der zeitlichen Dynamik wundinduzierter Emissionen unter stabilen physiologischen Bedingungen.
Um diese Herausforderungen zu bewältigen, stellt diese Studie ein Echtzeit-Protokoll zur Wundbehandlung innerhalb der Messkammer vor, das einen chirurgischen Schneidkopf in ein mit einer Protonen-Transfer-Reaktions-Time-of-Flight-Massenspektrometrie (PTR-TOF-MS) gekoppeltes Gasaustauschsystem integriert. Das Protokoll ermöglicht eine synchrone Verletzung der Blätter und Detektion flüchtiger Stoffe unter kontrollierten Umweltbedingungen sowie gleichzeitige Messung der Flüchtlingsflüsse und des Gasaustauschs mit hoher zeitlicher Auflösung. Durch die Durchführung der Blattexzision innerhalb der Messkammer minimiert das Protokoll Verzögerungen bei der Probenahme, die mit herkömmlichen Methoden verbunden sind, bewahrt die zeitlichen Dynamiken schnell emittierter, wundinduzierter flüchtiger Verbindungen und zeigt ein standardisiertes Schneidverfahren für Blätter mit unterschiedlichen mechanischen Eigenschaften auf. Diese zeitliche Auflösung ermöglicht eine direkte Charakterisierung des Beginns, des Zeitpunkts des Maximums sowie der artspezifischen Kinetik wundinduzierter Emissionen flüchtiger Stoffe.
Das Protokoll wurde anhand von drei Arten mit kontrastierenden anatomischen und physiologischen Eigenschaften (Quercus rubra, Acer platanoides und Gossypium hirsutum) evaluiert, um seine Anwendbarkeit auf unterschiedliche Blatttypen zu demonstrieren. Die Anwendung identischer Messbedingungen über alle Arten hinweg zeigt, dass das Protokoll wundinduzierte VOC-Dynamiken über ein breites Spektrum von Emissionsmustern hinweg auflösen kann, während es die experimentelle Variabilität minimiert. Der Ansatz ist allgemein anwendbar auf Studien, die hochauflösende zeitliche Messungen wundinduzierter VOCs unter kontrollierten Umweltbedingungen erfordern. Zusammen bieten diese Merkmale einen standardisierten Rahmen zur Untersuchung schneller pflanzlicher Stressantworten und erleichtern die Anwendung des Protokolls über verschiedene Arten und experimentelle Systeme hinweg.
Protokoll
Alle Pflanzen wurden unter kontrollierten Umweltbedingungen in Wachstumskammern kultiviert. Die verwendeten Reagenzien und Geräte sind in der Tabelle der Materialien aufgeführt.
1. Konstruktion und Installation des innerhalb der Kammer befindlichen Blattschneiders
- Stellen Sie einen rotierenden Blattschneider her, der auf die Innendimensionen (4 cm × 2 cm) des standardmäßigen Messkopfs zugeschnitten ist.
- Befestigen Sie eine Rasierklinge mithilfe von Silberlot an einer Edelstahlstange (1 mm Durchmesser), um mechanische Stabilität zu gewährleisten.
ACHTUNG: Rasierklingen sind äußerst scharf. Tragen Sie beim Umgang schnittfeste Handschuhe. Entsorgen Sie Rasierklingen nach Gebrauch gemäß den Sicherheitsvorschriften Ihrer Institution für scharfe Gegenstände. Führen Sie das Silberlöten unter geeigneter Belüftung durch und tragen Sie Schutzbrille. - Führen Sie die klingenhaltende Stange in eine Edelstahlspritzennadel (Außendurchmesser 1,6 mm) ein, um eine freie axiale Drehung zu ermöglichen.
- Versiegeln Sie beide Enden der Nadel mit einem emissionsarmen Polytetrafluorethylen- (PTFE-)Stopfen, um luftdichte Bedingungen bei gleichzeitiger Erhaltung der Drehbarkeit zu gewährleisten.
- Befestigen Sie einen manuellen Drehknopf am proximalen Ende der Stange, um eine kontrollierte Rotation des inneren Schneiders zu ermöglichen.
- Befestigen Sie zwei flexible Halterungen aus Feder-Messingblech (0,2 mm Dicke) an der Außenfläche der Nadel, um den Schneider an der unteren Kammershälfte zu befestigen.
- Erzeugen Sie einen dreieckigen Einschnitt in der Dichtung der unteren Kammer, um das Einführen der Klinge ohne Kontakt mit der Blattoberfläche zu ermöglichen.
- Versiegeln Sie die Einführstelle mit einer emissionsarmen Dichtmasse, um Gasaustritt zu verhindern.
HINWEIS: Überprüfen Sie vor Fortsetzung, ob die Installation des Schneiders die Kammerabdichtung beeinträchtigt hat. Stellen Sie sicher, dass die Kammer vollständig schließt, dass das Thermoelement weiterhin Kontakt mit der Blattoberfläche hat und dass das Gasaustauschsystem einen stabilen Luftstrom ohne Hinweise auf Leckagen anzeigt. Setzen Sie den Vorgang erst fort, nachdem stabile Kammerbedingungen bestätigt wurden. Wählen Sie die Klingenlänge so, dass ein Schnitt von etwa 10 mm Länge entsteht. Der integrierte Schneidemechanismus und seine Position innerhalb der Blattkammer sind in Abbildung 1B dargestellt.
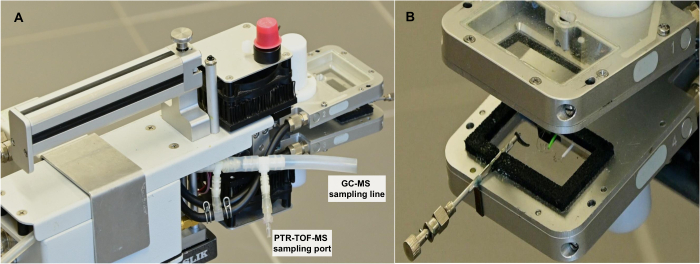
Abbildung 1: Modifiziertes Gasaustausch-System mit integrierter In-situ-Blatt-Schneidvorrichtung und Leitungen zur flüchtigen Stoffe-Probenahme. (A) Übersicht über das modifizierte Gasaustausch-System mit dem PTR-TOF-MS-Probenahmeanschluss und der GC–MS-Probenahmeleitung in der Nähe des Kammereffluents zur Sammlung flüchtiger Verbindungen. (B) Vergrößerter Blick auf die geöffnete Kammer mit der integrierten Schneidemechanik und dem Bereich, in dem das Blatt während der Verletzung positioniert wird. Die Schneidvorrichtung ist hermetisch in die Kammer integriert, sodass das Blatt verletzt werden kann, ohne die Abschirmung während der Messung zu öffnen. Diese Konfiguration ermöglicht die Echtzeitüberwachung von Emissionen flüchtiger Substanzen sowie des Gasaustauschs unter kontrollierten Umweltbedingungen. Klicken Sie hier, um eine vergrößerte Darstellung dieser Abbildung anzusehen.
2. Konfiguration der flüchtigen Probenahmewege
- Bauen Sie ein Teflon-T-Stück (1/16″ oder 1/8″ Innendurchmesser) direkt neben dem Kammerauslass ein (Abbildung 1A), um die Schlauchlänge zwischen der Kammer und dem flüchtigen Analysegerät zu minimieren.
- Verbinden Sie den Auslass mit dem VOC-Sammlungssystem unter Verwendung von inertem Schlauchmaterial (z. B. FEP oder PTFE; 1,6 mm Innendurchmesser). Bringen Sie das T-Stück unmittelbar neben dem Kammerauslass an, um die Schlauchlänge zwischen der Kammer und dem Analysator für flüchtige Stoffe so kurz wie möglich zu halten, wodurch das Innenvolumen, die Verweilzeit und Adsorptionsverluste minimiert werden.
- Halten Sie den Luftstrom in der Kammer bei 750 µmol s-1.
HINWEIS: Kurze, inerte Schläuche verringern Adsorption und Verweilzeit für reaktive Verbindungen.
3. Vorbereitung des Pflanzenmaterials
- Züchten Sie Quercus rubra, Acer platanoides und Gossypium hirsutum in einer Klimakammer bei 25 °C Tag / 20 °C Nacht, 60 % relativer Luftfeuchtigkeit, einer Lichtintensität von 1000 µmol m-2 s-1 und einem 16 h / 8 h Licht-Dunkel-Wechsel über einen Zeitraum von 4 Monaten.
- Halten Sie die Pflanzen während des gesamten Experiments bei einer atmosphärischen CO2-Konzentration unter Umgebungsbedingungen (~430 ppm).
- Bewässern Sie alle Pflanzen alle zwei Tage, bis der Boden die Feldkapazität erreicht hat.
- Wählen Sie vollständig entfaltete, nicht seneszente Blätter vergleichbaren Entwicklungsstadiums für die Experimente aus.
4. Blattverletzungs- und VOC-Sammelversuche
- Blatt einschließen und Umweltbedingungen einstellen
- Schließen Sie ein vollständig entfaltetes, am Pflanzenstamm befestigtes Blatt in der Messkammer mit integriertem Schneidemechanismus ein.
- Stellen Sie die Blocktemperatur auf 25 °C, die relative Luftfeuchtigkeit auf 60 %, die Intensität des Aktinischen Lichts auf 1000 µmol m-2 s-1 (90 % rot, 10 % blau) und die Luftströmungsrate auf 750 µmol s-1 ein.
- Lassen Sie das Blatt unter den gewählten Umweltbedingungen akklimatisieren, bis sich stabile Werte der netto CO2-Assimilation, der Sperrzellenleitfähigkeit und der Grundlinien-VOC-Signale eingestellt haben, was typischerweise innerhalb von 20–30 Minuten nach dem Einschließen des Blattes der Fall ist.
- Gaswechsel, Fluoreszenz und VOC-Überwachung durchführen
- Beginnen Sie gleichzeitige Messungen von Gaswechsel und VOCs mit einer Auflösung von 1 Hz.
- Nach Abschluss der Gaswechselmessungen erfassen Sie die Fluoreszenzausbeute im stationären Zustand (Fs) und geben Sie anschließend einen sättigenden Lichtpuls (8000 µmol m-2 s-1, 0,6 s) über das Kammer-Fluorimeter (3055-FL) ab, um die maximale Fluoreszenzausbeute (Fm′) in lichtadaptierten Blättern zu bestimmen.
- Schalten Sie das Aktinische Licht aus und dunkeladaptieren Sie das Blatt für 20 Minuten.
- Erfassen Sie die Dunkelatmung des Blattes.
- Messen Sie die initiale Fluoreszenz (F₀) mit schwach moduliertem Messlicht (0,03 µmol m-2 s-1), gefolgt von einem sättigenden Puls, um die maximale Fluoreszenz in dunkeladaptierten Blättern (Fm) zu ermitteln.
- Schalten Sie das Aktinische Licht wieder ein.
- Setzen Sie die VOC- und Gaswechselmessungen unter denselben Umweltbedingungen fort, bis die Vorverletzungs-Grundlinie stabil ist.
HINWEIS: Vor der Verletzung bestätigen Sie, dass die gewählten Umweltbedingungen stabil bleiben und dass die Werte der netto CO₂-Assimilation, der Transpiration und der Grundlinien-VOC-Signale stationär sind. Setzen Sie den Versuch erst fort, wenn diese Bedingungen unter den gewählten Messparametern konstant aufrechterhalten wurden.
- Blattverletzung und VOC-Sammlung
- Setzen Sie die erste VOC-Kartusche in die Auslassleitung ein und verbinden Sie sie mit einer tragbaren Luftprobepumpe mit konstanter Durchflussrate. Leiten Sie die Kammerluft mit einer konstanten Durchflussrate von 200 mL min-1 durch die Kartusche. Verwenden Sie eine Mehrbett-Kartusche aus rostfreiem Stahl (10,5 cm Länge, 3 mm Innendurchmesser), geeignet für die Erfassung flüchtiger Verbindungen im C3–C17-Bereich, gefüllt mit Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) und Carbotrap X 20/40 mesh (0,1 g), angeordnet von schwächster zu stärkster Adsorptionskraft in Strömungsrichtung.
HINWEIS: Konditionieren Sie die Kartuschen vor der Probenahme, indem Sie hochreines Helium 3 Stunden lang bei 250 °C mit 200 mL min-1 durch die Kartusche leiten. Die Kartuschensammlung ermöglicht anschließend eine Offline-GC-MS-Analyse zur Identifizierung der Verbindungen, falls dies durch die experimentellen Zielsetzungen erforderlich ist. Obwohl die Kartuschensammlung Teil des hier beschriebenen Arbeitsablaufs ist, basieren die repräsentativen Ergebnisse dieser Studie auf kontinuierlichen PTR-TOF-MS-Messungen. Wählen Sie die Adsorbentien entsprechend dem Flüchtigkeitsbereich und der Polarität der Ziel-VOCs sowie den Probennahmebedingungen aus. - Sammeln Sie VOCs vor der Verletzung 15 Minuten lang bei 200 mL min-1.
- Ersetzen Sie die Kartusche und sammeln Sie VOCs 2 Minuten lang.
- Drehen Sie den internen Schneidemechanismus um 360°, um das Blatt zu verletzen, ohne die Kammer zu öffnen, und bringen Sie die Klinge in ihre Ausgangsposition zurück.
HINWEIS: Positionieren Sie das Blatt in der Kammer so, dass der Schnitt im eingeschlossenen Blattflächenbereich erfolgt, während die Kammer vollständig abgedichtet bleibt. Vermeiden Sie nach Möglichkeit das Durchtrennen der Hauptblattader, und halten Sie die Schnittstelle zwischen den Proben so konsistent wie möglich. Da Schäden an größeren Adern die flüchtigen Emissionen nach Verletzung erheblich verstärken können, verbessert eine konsistente Platzierung der Verletzung die experimentelle Reproduzierbarkeit5.
ACHTUNG: Stellen Sie sicher, dass die Kammer vor dem Schneiden vollständig abgedichtet ist. - Setzen Sie die VOC-Sammlung mit derselben Kartusche weitere 13 Minuten lang fort.
- Setzen Sie eine dritte Kartusche ein und sammeln Sie VOCs 15 Minuten lang.
- Betreiben Sie das PTR-TOF-MS während aller Phasen kontinuierlich zur Echtzeitdetektion.
HINWEIS: Vor und nach jeder Pflanzenmessung sammeln Sie eine Hintergrundprobe aus der leeren Kammer unter denselben Umweltbedingungen. Verwenden Sie diese Hintergrundmessungen zur Korrektur der VOC-Emissionsdaten während der Datenanalyse.
- Setzen Sie die erste VOC-Kartusche in die Auslassleitung ein und verbinden Sie sie mit einer tragbaren Luftprobepumpe mit konstanter Durchflussrate. Leiten Sie die Kammerluft mit einer konstanten Durchflussrate von 200 mL min-1 durch die Kartusche. Verwenden Sie eine Mehrbett-Kartusche aus rostfreiem Stahl (10,5 cm Länge, 3 mm Innendurchmesser), geeignet für die Erfassung flüchtiger Verbindungen im C3–C17-Bereich, gefüllt mit Carbotrap C 20/40 mesh (0,2 g), Carbopack B 40/60 mesh (0,1 g) und Carbotrap X 20/40 mesh (0,1 g), angeordnet von schwächster zu stärkster Adsorptionskraft in Strömungsrichtung.
5. Nachweis flüchtiger Stoffe und Gerätebedienung
- Stellen Sie die Einlass- und Driftröhrchentemperaturen des PTR-TOF-MS auf 80 °C ein, den Einlassfluss auf 100 mL min-1, den Wasserdampfstrom auf 4,0 mL min-1, den Ionenstrom auf 4,0 mA, den Druck in der Driftkammer auf 2,1 mbar, das Verhältnis von elektrischem Feld zu Gasdichte im Driftröhrchen auf 115 Td und den Druck im TOF-MS-Modul auf 1,2 × 10⁻⁷ mbar.
- Aufzeichnung der flüchtigen Signale mit einer zeitlichen Auflösung von 1 Hz und einem Abtastintervall von 400 ps.
- Kalibrieren Sie das PTR-TOF-MS vor jedem Experiment unter Verwendung eines zertifizierten Gasstandardgemischs, das repräsentative VOCs aus den wichtigsten Klassen pflanzlicher flüchtiger Verbindungen enthält. Verarbeiten Sie die Kalibrierdaten und berechnen Sie die VOC-Konzentrationen mit der Software PTR-MS Viewer gemäß den beschriebenen Verfahren13,16.
6. Offline-Analyse von Kartuschenproben mittels GC-MS
HINWEIS: Das folgende Verfahren beschreibt die Offline-Analyse von Kartuschenproben, die während des oben dargestellten Arbeitsablaufs gesammelt wurden. Die GC-MS-Analyse ermöglicht eine ergänzende Identifizierung der Verbindungen, während die repräsentativen Ergebnisse dieser Studie auf kontinuierlichen PTR-TOF-MS-Messungen basieren.
- Desorbieren Sie die Kartuschen thermisch mithilfe einer automatisierten thermischen Desorptionsanlage, die an ein GC-MS-System gekoppelt ist, gemäß dem von Kännaste et al.20 beschriebenen Verfahren.
- Identifizieren Sie die Verbindungen durch Vergleich mit echten Referenzstandards und der NIST-Massenspektrenbibliothek. Führen Sie die massenspektrometrische Detektion mittels Elektronenstoßionisation (70 eV) durch und bestätigen Sie die Identität der Verbindungen, indem Sie sowohl die Retentionszeiten als auch die Massenspektren mit echten Referenzstandards abgleichen, falls verfügbar.
HINWEIS: Die Kartuschenprobennahme folgt dem modifizierten Protokoll von Kännaste et al.20 zur Erfassung flüchtiger C3–C17-Verbindungen.
7. Datenanalyse
- Subtrahieren Sie den Hintergrund des leeren Kammerraums von allen Emissionssignalen vor der Analyse. Definieren Sie die Vorverletzungs-Basislinie für jede überwachte Masse als den mittleren Signalwert während eines festen Zeitintervalls unmittelbar vor dem Schneiden.
- Verwenden Sie den Zeitpunkt des Schneidens als gemeinsamen Bezugspunkt für alle überwachten Massen. Bestimmen Sie den Emissionsbeginn als den ersten nachweisbaren Anstieg des basislinienkorrigierten VOC-Signals nach dem Blattschnitt.
HINWEIS: Der Emissionsbeginn wurde als der erste aufeinanderfolgende Anstieg oberhalb der Vorverletzungs-Basislinie definiert, der in die Aufwärtsphase des Emissionsausbruchs überging, wodurch isolierte Schwankungen aufgrund von instrumentellem Rauschen ausgeschlossen wurden. - Berechnen Sie die Zeit bis zum Maximum als das Intervall zwischen dem Schneidzeitpunkt und dem maximalen Emissionssignal. Berechnen Sie die maximale Steigung des Emissionsausbruchs aus der ersten Ableitung des basislinienkorrigierten Signals unter Verwendung des Mittelwerts der Vorwärts- und Rückwärtssteigungen zwischen benachbarten Datenpunkten13. Definieren Sie die Peakhöhe als den maximal beobachteten Emissionswert während des Ausbruchs.
Ergebnisse
Um zu bewerten, ob die Position der flüchtigen Stoffe-Probenahme die Signalerfassung beeinflusst, verglichen wir zwei Konfigurationen mit kontrollierten Gaseinspritzungen in die Blattkammer. Bei einem Aufbau wurden die flüchtigen Stoffe direkt am Ausgang der modifizierten Gaswechselkammer abgenommen (Abbildung 1). Im Gegensatz dazu strömte die Luft bei der anderen Konfiguration durch die Schläuche des Gaswechsel-Analysators, bevor sie den Detektor erreichte. Die gleichzeitige Aufzeichnung beider Signale ermöglichte einen direkten Vergleich ihrer zeitlichen Dynamik.
Die Injektion reiner flüchtiger Verbindungen führte zu schnellen Detektorantworten mit charakteristischen Emissionspeaks (Abbildung 2). Bei direkter Probenahme am Kammernausgang stiegen die Signale unmittelbar nach der Injektion an, erreichten scharfe Maxima und nahmen rasch ab. Bei Probenahme nach der Analysierleitung zeigten dieselben Verbindungen verzögerte und abgeschwächte Antworten.
Bei Isopren (m/z 69) war die zeitliche Verzögerung zwischen den Probenahmepositionen minimal, und die Peakhöhen blieben ähnlich (Abbildung 2A). Bei Z-3-Hexen-1-ol (m/z 83) verringerte der Durchgang durch das Rohr die Peakhöhe und verbreiterte die Abklingkurve im Vergleich zur direkten Probenahme (Abbildung 2B). Dieser Effekt war am stärksten bei α-Pinen (m/z 137), wo der Durchgang durch das Rohr den Peak im Vergleich zum direkt am Kammerauslass gemessenen Signal stark abschwächte (Abbildung 2C).
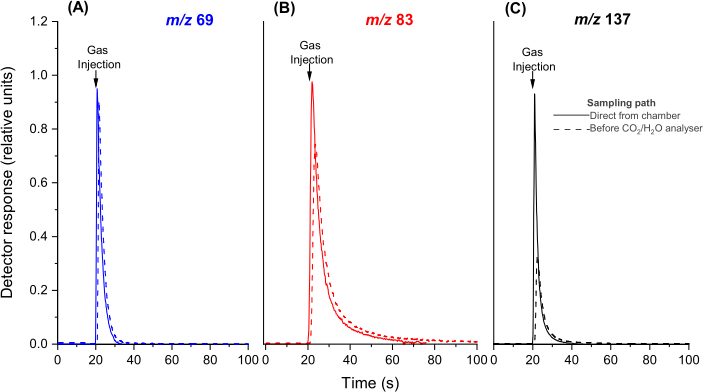
Abbildung 2: Einfluss der Probenahmeposition auf die zeitliche Antwort der flüchtigen Stoffe-Detektion. Die Antworten auf die Injektion von reinem (A) Isopren (m/z 69), (B) Z-3-Hexen-1-ol, hauptsächlich detektiert als Fragmention m/z 83, und (C) α-Pinen (m/z 137) wurden an zwei Probenahmepositionen aufgezeichnet. Durchgezogene Linien zeigen die Probenahme unmittelbar nach dem Kammereingang, während gestrichelte Linien die Standardprobenahmeposition vor den CO₂/H₂O-Analysatoren darstellen, nachdem die Gase das Gaswechselsystem durchlaufen haben. Pfeile markieren die Zeitpunkte der Gasinjektion. Die Signale wurden auf das maximale Signal normalisiert, das vom PTR-QMS direkt neben der Kammer gemessen wurde. Zur besseren Veranschaulichung der Unterschiede in der Antwortform wurden die Zeitverläufe der Standardprobenahme um 0,9 s gegenüber der direkten Probenahme verschoben. Diese Abbildung wurde modifiziert nach Rasulov et al.16. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Das Schneiden von Blättern löste bei allen Arten (Quercus rubra, Acer platanoides und Gossypium hirsutum) schnelle, substancespezifische Emissionen flüchtiger Verbindungen aus, die das System innerhalb von Sekunden erfasste. Da die Versuchsanordnung innerhalb der Kammer den Beginn und den Zeitpunkt des Maximums der Emissionen direkt auflöste, ermöglichte sie die Quantifizierung der substancespezifischen Kinetik, ohne die Messung zu unterbrechen.
Bei allen Arten wurde das dominante, durch Verletzung induzierte PTR-TOF-MS-Signal bei m/z 99 detektiert, das auf Grundlage früherer PTR-TOF-MS-Studien vorläufig LOX-abgeleiteten Hexenal-typischen Verbindungen zugeordnet wurde (Abbildung 3, Abbildung 4 und Abbildung 5). Die Spitzenemissionen lagen zwischen 24 und 300 nmol m-2 s-1 über die drei Arten hinweg, was die Fähigkeit des Protokolls veranschaulicht, die durch Verletzung induzierte Dynamik flüchtiger organischer Verbindungen über einen weiten Bereich von Emissionsstärken aufzulösen (Abbildung 3, Abbildung 4 und Abbildung 5). In allen Fällen stieg m/z 99 innerhalb von Sekunden nach dem Schneiden an, erreichte innerhalb von etwa 39–57 s ein Maximum und wies den steilsten Anstieg unter den überwachten Massen auf (Tabelle 1), wodurch es als dominante akute Komponente des Verletzungsstoßes identifiziert wurde.
Die Masse 69 blieb vor dem Einschneiden bei A. platanoides (Abbildung 4B) und G. hirsutum (Abbildung 5B) vernachlässigbar gering und stieg nach der Verletzung nur geringfügig an. Im Gegensatz dazu wies Q. rubra bereits vor dem Einschneiden beträchtliche Grundemissionen auf, gefolgt von einem moderaten, vorübergehenden Anstieg und anschließender Stabilisierung, was einer konstitutiven Isopren-Freisetzung entspricht, die sich der Wundreaktion überlagert (Abbildung 3B).
Andere überwachte Massen zeigten nach dem Schneiden eine klare zeitliche Abfolge. Über verschiedene Arten hinweg charakterisierten m/z 43, 57, 69 und 99 die frühe Phase des Ausbruchs, während m/z 45 und 83 später ihr Maximum erreichten (Abbildung 3, Abbildung 4 und Abbildung 5; Tabelle 1). Dieses Muster war am ausgeprägtesten bei A. platanoides, wo m/z 45 unmittelbar nach dem Schneiden anzusteigen begann, aber erst nach etwa 155 s sein Maximum erreichte, was auf eine langsamere und verlängerte Reaktion im Vergleich zu den frühen LOX-bezogenen Fragmenten hindeutet (Abbildung 4A; Tabelle 1). Ebenso erreichte m/z 83 in allen Arten später sein Maximum als die frühen Fragmente und war besonders verzögert bei G. hirsutum, wo es erst nach etwa 223 s seinen Höhepunkt erreichte (Abbildung 5A; Tabelle 1).
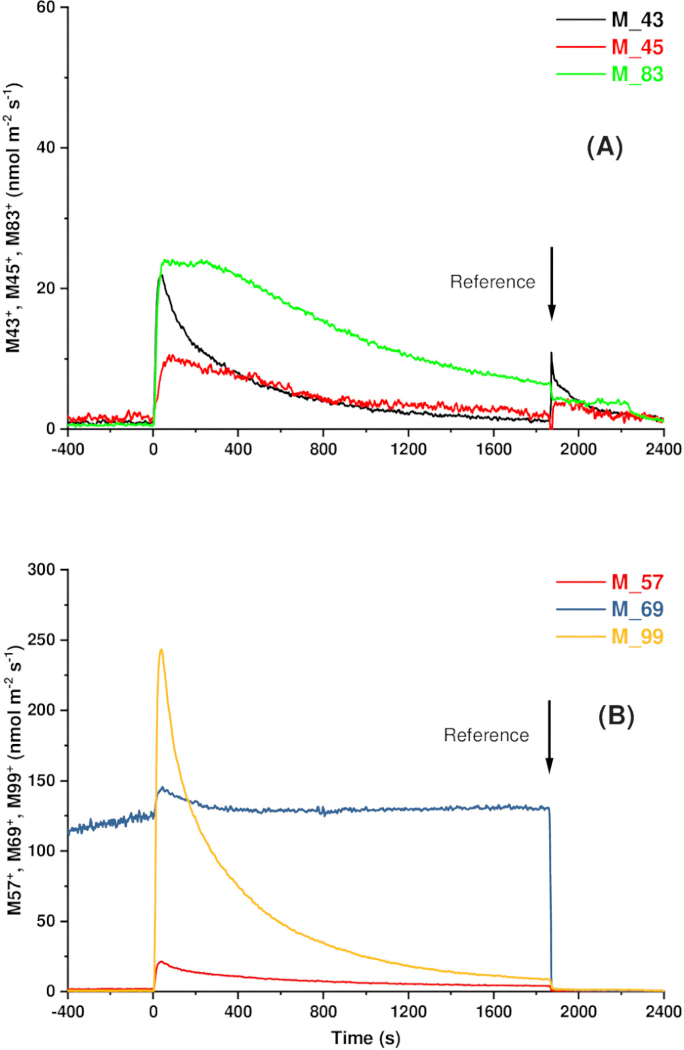
Abbildung 3: Zeitlich aufgelöste, wundinduzierte volatile Emissionen in einem repräsentativen Blatt von Quercus rubra. (A) m/z 43, 45 und 83. (B) m/z 57, 69 und 99. Zum Zeitpunkt t = 0 wurde das Blatt mit einem im Kammersystem befindlichen Blattschneider, wie in Abbildung 1 gezeigt, eingeschnitten, wodurch eine 10 mm lange Inzision entstand. Die flüchtigen Emissionen wurden kontinuierlich mittels eines Protonen-Transfer-Reaktions-Time-of-Flight-Massenspektrometers (PTR-TOF-MS) überwacht, und die Gasaustauschraten wurden mit einem Walz GFS-3000-System gemessen. Die Signale sind als repräsentative, baselinekorrigierte Emissionsprofile dargestellt, die die mit dem Protokoll erreichbare zeitliche Auflösung veranschaulichen. Siehe Tabelle 1 für repräsentative kinetische Parameter, die aus diesen Emissionsprofilen extrahiert wurden. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Trotz dieser gemeinsamen Merkmale zeigen die repräsentativen Messungen, dass Emissionsverläufe zwischen Arten variieren können. Bei Q. rubra stiegen m/z 43 und 57 schnell an, wichen jedoch während der Abklingphase voneinander ab, wobei m/z 57 langsamer abnahm als m/z 43 (Abbildung 3A,B). Bei A. platanoides war dieses Muster umgekehrt, wobei m/z 43 einen langsameren Rückgang in der späten Phase aufwies (Abbildung 4A). Bei G. hirsutum waren alle Signale in ihrer Intensität geringer, und die Emissionsprofile wiesen schnelle Anfangsspitzen in Kombination mit einem allmählicheren Abklingen auf. Auffällig war, dass m/z 45 während der Abklingphase einen kleinen sekundären Anstieg zeigte (Abbildung 5A).
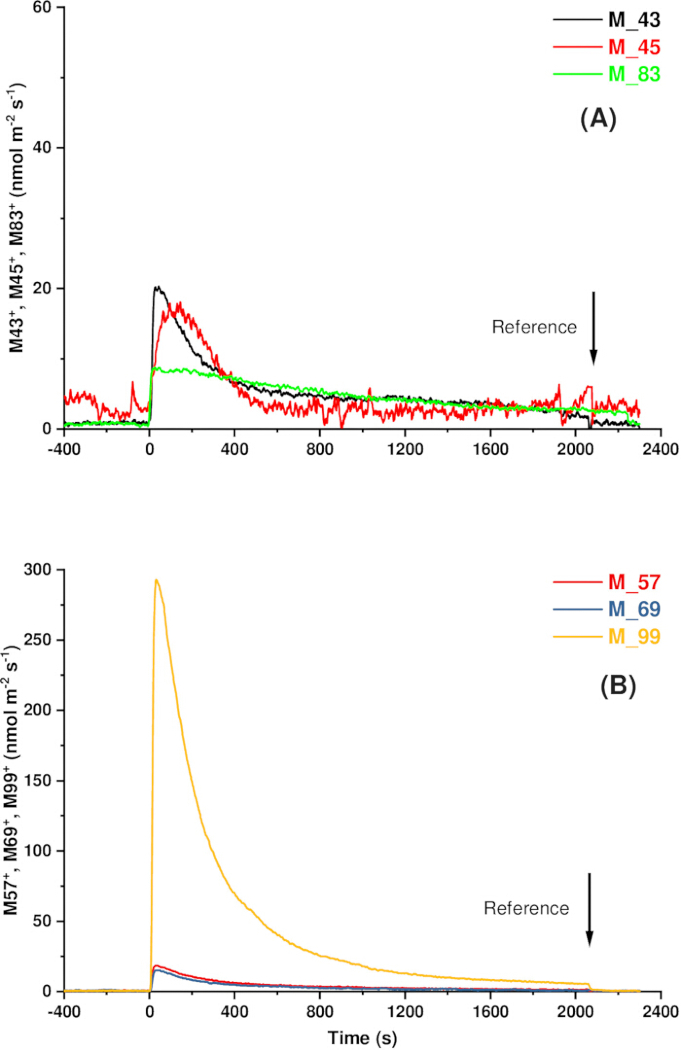
Abbildung 4: Zeitaufgelöste, wundinduzierte flüchtige Emissionen in einem repräsentativen Blatt von Acer platanoides. (A) m/z 43, 45 und 83. (B) m/z 57, 69 und 99. Das Blatt wurde zum Zeitpunkt t = 0 mit einem innerhalb der Kammer befindlichen Schneidewerkzeug getrennt (Abbildung 1; 10-mm-Schnitt). Flüchtige Emissionen wurden kontinuierlich mittels eines Protonentransfer-Reaktions-Time-of-Flight-Massenspektrometers (PTR-TOF-MS) gemessen, und der Gasaustausch wurde mit einem Walz GFS-3000-System erfasst. Die Signale sind als repräsentative, baselinekorrigierte Emissionsprofile dargestellt, die die mit dem Protokoll erreichbare zeitliche Auflösung veranschaulichen. Siehe Tabelle 1 für repräsentative kinetische Deskriptoren, die aus diesen Emissionsprofilen extrahiert wurden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Zusammen zeigen diese Muster, dass wundinduzierte Emissionen einer stoffspezifischen Kaskade folgen statt einem einzigen synchronen Ausbruch, mit scharfen frühen Komponenten, denen breitere, verzögerte Reaktionen folgen.
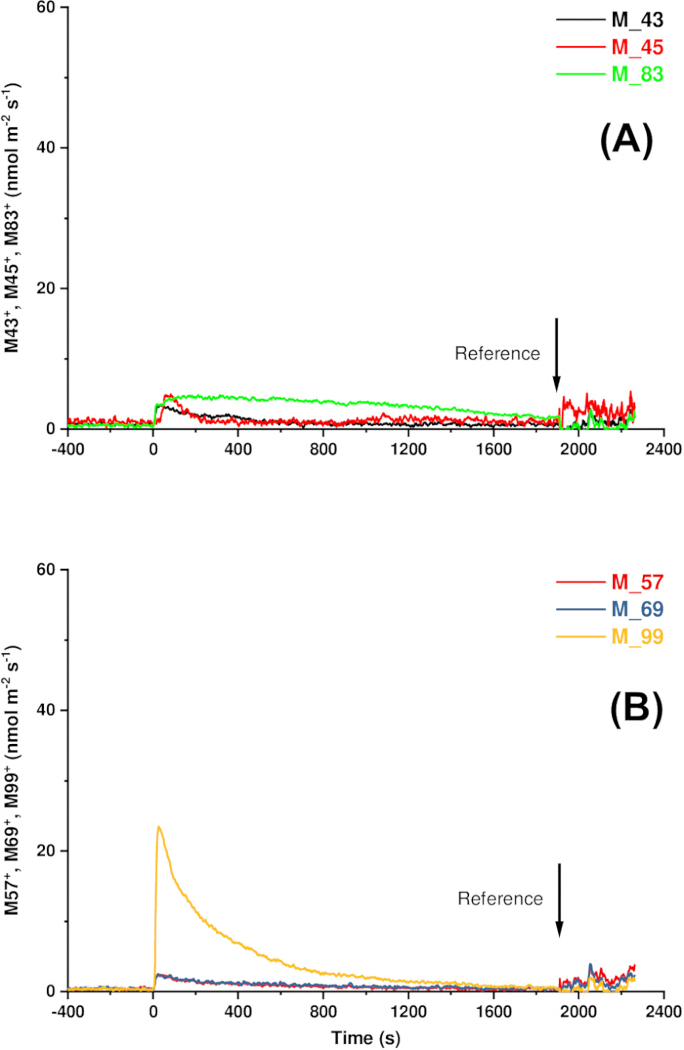
Abbildung 5: Zeitlich aufgelöste, wundinduzierte flüchtige Emissionen in einem repräsentativen Blatt von Gossypium hirsutum. (A) m/z 43, 45 und 83. (B) m/z 57, 69 und 99. Das Blatt wurde zum Zeitpunkt t = 0 mit einem innerhalb der Kammer befindlichen Schneidwerkzeug (Abbildung 1; 10-mm-Schnitt) durchtrennt. Die flüchtigen Emissionen wurden kontinuierlich mittels eines Protonen-Transfer-Reaktions-Time-of-Flight-Massenspektrometers (PTR-TOF-MS) gemessen, und der Gasaustausch wurde mit einem Walz GFS-3000-System erfasst. Die Signale sind als repräsentative, baselinekorrigierte Emissionsprofile dargestellt, die die mit diesem Protokoll erreichbare zeitliche Auflösung veranschaulichen. Siehe Tabelle 1 für repräsentative kinetische Parameter, die aus diesen Emissionsprofilen extrahiert wurden. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Diskussion
Das hier vorgestellte Protokoll ermöglicht eine Analyse der wundinduzierten Freisetzung flüchtiger Stoffe mit hoher zeitlicher Auflösung unter kontrollierten experimentellen Bedingungen. Durch die direkte Integration des Schneidevorgangs in die Blattkammer und die kontinuierliche Überwachung flüchtiger Signale (Abbildung 1) erfasst das System die Emissionsantwort, ohne dass Verzerrungen durch verzögerte Probenahme, Öffnen der Kammer oder Handhabung des Blatts außerhalb der Messanordnung entstehen. Solche Störungen können sowohl die scheinbare zeitliche Abfolge als auch die Höhe von Emissionspeaks bei messraumbasierten Verfahren verändern3,6,13,17. Da Verletzung und Messung in derselben Kammer erfolgen, bleibt die zeitliche Abfolge der Emission erhalten, und es wird eine zuverlässige, zeitlich aufgelöste Quantifizierung stressinduzierter, flüchtiger Reaktionen ermöglicht.
| Arten | Protonierte molekulare Masse | Spitzenamplitude (nmol m-2 s-1) | Beginn nach Schnitt(en) | Zeit des Maximums (s) | Maximale Steigung (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
Tabelle 1: Vertretende Werte der Peakhöhe, Emissionsbeginn, Zeit bis zum Peak und maximalen Steigung, extrahiert aus kontinuierlichen PTR-TOF-MS-Messungen nach Blattverletzung. Die Werte umfassen die Peakhöhe, den Emissionsbeginn, die Zeit bis zum Peak und die maximale Steigung. Diese Werte veranschaulichen die Art der kinetischen Kenngrößen, die mittels des Protokolls erzeugt werden, und dienen als Beispiele zum Nachweis der Machbarkeit, nicht als statistischer Vergleich zwischen Arten. Der Emissionsbeginn wurde definiert als der erste nachweisbare Anstieg über die Vorverletzungs-Basislinie nach dem Schneiden, die Zeit bis zum Peak als das Intervall zwischen dem Schneiden und dem maximalen Signal, und die maximale Steigung als die maximale erste Ableitung des basislinienkorrigierten Signals.
Der Vergleich der Probenahmepositionen zeigte, dass die Probenahmekonfiguration das aufgezeichnete Signal deutlich beeinflusste (Abbildung 2). Die direkte Probenahme am Kammereinlass bewahrte die schnelle Peakbildung, während die Probenahme nach der Analysierleitung die Peakbildung verzögerte und die Signalintensität abschwächte. Dieser Effekt war für Isopren (m/z 69) vernachlässigbar, für m/z 83 moderat und am stärksten für α-Pinen (m/z 137), was mit zunehmender, transportbedingter Verzerrung für schwerere oder reaktivere Verbindungen übereinstimmt10,21. Adsorption an den Rohroberflächen, verzögerter Transport durch die Probenahmeleitung sowie chemische Wechselwirkungen während des Transports können Emissionspeaks verbreitern oder abschwächen und dadurch die Interpretation der flüchtigen Kinetik verändern9,12,21.
Ein zentraler Vorteil des vorliegenden Protokolls liegt in seiner Fähigkeit, die früheste Phase der wundinduzierten Freisetzung flüchtiger Stoffe aufzulösen. Bei allen Arten trat diese frühe Phase innerhalb von Sekunden nach dem Schneiden auf und wurde von einem Ausbruch bei m/z 99 dominiert, der sowohl die höchste Peakamplitude als auch die steilste maximale Steigung aufwies (Abbildung 3, Abbildung 4 und Abbildung 5; Tabelle 1). Die Peakmaxima traten etwa 40–57 s nach dem Schneiden auf, deutlich früher als die in früheren Studien typischerweise berichteten 100–280 s13,19,22. Diese Verschiebung spiegelt wahrscheinlich die Synchronisation von Verletzung und Detektion innerhalb der Kammer wider, wodurch Verzögerungen durch das Handhaben von Blättern und den Transport über die Probenahmeleitung minimiert werden.
Durch die Synchronisation von Verletzung und Detektion in derselben Umgebung konnte das Protokoll außerdem eine fragmentebene Kaskade aufklären, bei der m/z 43 und 57 unmittelbar nach dem Schneiden anstiegen, während m/z 45 später ein Maximum zeigte und breitere Abklingdynamik aufwies (Abbildung 3, Abbildung 4 und Abbildung 5; Tabelle 1). Diese Reihenfolge stimmt mit früheren, auf PTR basierenden Studien überein, obwohl im Vergleich zu GC-MS keine trennscharfe Auflösung auf Verbindungsebene erfolgt, bei der frühe Emissionen hauptsächlich von lipooxygenase-abgeleiteten C6-Aldehyden dominiert werden, gefolgt von nachgeschalteten Alkoholen und verwandten Produkten19,22. Im Einklang mit früheren PTR-TOF-MS-Studien entspricht das dominante Signal bei m/z 99 hexenalartigen Verbindungen, deren Dehydratationsfragment bei m/z 81 als wichtiges frühes Signal identifiziert wurde, während m/z 83 Beiträge von Hexenolen und Hexanal widerspiegelt22. Diese Abfolge stützt weiterhin eine größen- und pfadabhängige Hierarchie, bei der kleinere, schnell gebildete sauerstoffhaltige Verbindungen früher freigesetzt werden als größere oder komplexere Moleküle13,23.
Neben lipoxygenase-abgeleiteten Fragmenten zeigte das Signal bei m/z 69, das vorläufig Isopren zugeordnet wurde, unterschiedliche Emissionsverläufe zwischen den repräsentativen Beispielen (Abbildung 3, Abbildung 4und Abbildung 5). Q. rubra zeigten erhebliche Basisemissionen, während A. platanoides und G. hirsutum produzierten nur Spuren, was mit ihren bekannten Emissionseigenschaften übereinstimmt24,25. Über verschiedene Arten hinweg reagierte Isopren nur schwach auf Verletzungen, was mit seinen de novo Synthese über der MEP-Weg, der auf dem photosynthetischen Stoffwechsel beruht und daher nur indirekt durch mechanische Verletzungen beeinflusst wird15.
Diese schnellen Dynamiken spiegeln gut etablierte biochemische Reaktionen der Blätter auf mechanische Schädigungen wider. Mechanische Verletzungen aktivieren rasch den Lipoxygenase-Weg, der transiente Pulse von C6-Volatilen und verwandten oxygenierten Verbindungen durch Oxidation von Membranlipiden erzeugt5,7,17,22,23. Diese Emissionen weisen stark asymmetrische Dynamiken auf, mit einem schnellen Anstieg nach der Gewebezerstörung, gefolgt von einer langsameren Abklingphase16. Dieses asymmetrische Muster entfaltet sich im vorliegenden System auf einer Zeitskala von Sekunden bis Minuten, wie durch die repräsentativen kinetischen Kenngrößen veranschaulicht, die in Tabelle 1 zusammengefasst sind, während Studien, bei denen Blätter außerhalb der Kammer verletzt wurden, verzögerte Maxima berichten13. Diese frühere zeitliche Auflösung erfasst das Signal ab seinem Beginn, verringert zeitliche Verschmierung und ermöglicht eine direkte Quantifizierung sowohl der Anstiegs- als auch der Abklingphase. Diese kinetischen Merkmale definieren gemeinsam die vollständige Emissionskurve, die von diskreten oder verzögert abgetasteten Methoden oft unterschätzt wird5,15.
Die Standardisierung des Schneidevorgangs innerhalb der Kammer verbessert die experimentelle Reproduzierbarkeit weiter, indem eine konsistente Wundgeometrie und -schwere sichergestellt wird, die beide von der Einschnittlänge bestimmt werden und die VOC-Emission direkt beeinflussen5,18,22. Da sich die Schneidklinge jedoch an einer festen Position innerhalb der Kammer befindet, wird die Platzierung des Einschnitts durch die Blattgröße, -morphologie und die Notwendigkeit beeinflusst, eine luftdichte Abdichtung aufrechtzuerhalten. Wenn immer möglich, sollte der Einschnitt im intervenösen Blattgewebe angebracht werden, wobei die Mittelrippe und andere größere Blattadern vermieden werden sollten. Eine vollständige Vermeidung größerer Adern kann jedoch nicht immer gewährleistet werden, insbesondere bei schmalen oder kleinen Blättern. Da eine Beschädigung größerer Adern die wundinduzierten VOC-Emissionen erheblich verändern kann5, sollte die Einschnittposition innerhalb desselben Experiments zwischen den Proben so konsistent wie möglich gehalten werden.
Die Aufrechterhaltung stabiler Umweltbedingungen ist ebenso wichtig, um reproduzierbare, wundinduzierte VOC-Messungen zu erhalten. Da die VOC-Produktion, -Freisetzung und -Transport durch Umweltbedingungen beeinflusst werden, wurden Kammer-Temperatur, Luftfeuchtigkeit, Bestrahlungsstärke, CO2-Konzentration und Luftstrom während aller Messungen konstant gehalten. Die Standardisierung dieser Variablen verringert die experimentelle Variabilität weiter und verbessert die Reproduzierbarkeit der kinetischen Abläufe bei wundinduzierter VOC-Freisetzung. Außerdem, da das Protokoll vollständig mit simultanen Gaswechselmessungen kompatibel ist, könnten zukünftige Anwendungen die Dynamik der VOC-Emission direkt mit Veränderungen der Photosynthese und Transpiration unter identischen experimentellen Bedingungen verknüpfen26. Solche Messungen könnten dabei helfen, die biochemische Regulation der VOC-Produktion von physikalischen Prozessen, die die Freisetzung flüchtiger Stoffe beeinflussen, zu unterscheiden, einschließlich der verstärkten Verdunstung wasserlöslicher, sauerstoffhaltiger Verbindungen aus verletztem Gewebe16. Entsprechend sollten Unterschiede zwischen Behandlungen oder Arten nur dann interpretiert werden, wenn Umweltbedingungen, Wundgeometrie und Pflanzenmaterial, einschließlich des Entwicklungsstadiums der Blätter, während des gesamten Experiments standardisiert sind12.
Obwohl frühere Ansätze mit Kammerinnenaufbauten die Durchführbarkeit von Echtzeit-Messungen wundinduzierter VOCs demonstrieren, zeigten sie auch wichtige technische Einschränkungen auf. Unregelmäßige Schnitte, inkonsistente Wundgrößen und Störungen der Kammerabdichtung führten zu einer Variabilität zwischen den Messungen18,19. Zudem stützten sich diese Ansätze oft auf vergleichsweise große Kammervolumina, was den Luftaustausch verlangsamte, die Bildung von Spitzen verzögerte und die Profile der flüchtigen Signale verbreiterte22,27. Solche Effekte werden bei weniger flüchtigen Verbindungen stärker ausgeprägt und können je nach Temperatur variieren21. Im Gegensatz dazu verringert die im vorliegenden Protokoll verwendete kleinere Kammer (~8 mL Innenvolumen) die Verweilzeit der Luft und trägt so zu dem schärferen Anstieg bei, der in unseren Messungen beobachtet wurde (Abbildung 1).
Das Protokoll wurde für kontrollierte physiologische Experimente entwickelt und nicht für die direkte in situ-Überwachung von Waldekosystemen. Die Messungen werden an angehefteten Blättern unter gut definierten Umweltbedingungen durchgeführt, wodurch die experimentelle Variabilität minimiert und eine präzise Charakterisierung der wundinduzierten VOC-Kinetik ermöglicht wird. Feldanwendungen hängen von der Verfügbarkeit tragbarer Gasaustausch- und VOC-Detektionssysteme ab. Dennoch sollte der Ansatz, da der integrierte Schneidemechanismus mit nur geringen Modifikationen an verschiedene Kammerkonfigurationen angepasst werden kann, leicht auf tragbare Gasaustauschplattformen und andere experimentelle Plattformen übertragbar sein, sobald diese Technologien verfügbar sind. Diese Flexibilität erweitert die Möglichkeiten, schnelle Pflanzenstressreaktionen zu untersuchen, und bewahrt gleichzeitig die zeitliche Auflösung, die für eine genaue Charakterisierung der VOC-Emissionsdynamik erforderlich ist, wodurch mechanistische Studien der frühesten physiologischen und biochemischen Reaktionen auf Blattschäden erleichtert werden.
Offenlegungen
Die Autoren geben keine Interessenkonflikte an.
Danksagungen
Wir danken für die Förderung durch den Estnischen Forschungsrat (PRG2207) und das estnische Ministerium für Bildung und Forschung (Exzellenzzentrum Agro-CropFuture, „Agroökologie und neue Kulturen in zukünftigen Klimazonen“, TK200U1).
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| GC-MS-System mit TD-20-Thermodesorber | Shimadzu | GCMS-QP2010 Plus; TD-20 | GC-MS-System mit TD-20-Thermodesorber. www.shimadzu.com |
| GFS-3000-Gaswechsel-System | Walz GmbH | GFS-3000 | Messung des Blattgaswechsels. www.walz.com |
| Helium in hoher Reinheit (99,999 %) | Lokaler Lieferant | N/V | Verwendet zur Konditionierung der Adsorptionskartuschen und für die thermische Desorption in der GC-MS. www.airliquide.com (oder gleichwertiger Lieferant). |
| Isopren-Kalibrierstandard | Sigma-Aldrich Chemie GmbH | Individuell | Individueller Isopren-Kalibrierstandard (3,43 ppm). www.sigmaaldrich.com |
| Dichtungskitt mit niedriger Emission | Lokaler Lieferant | N/V | Wird verwendet, um die Einführstelle des Schneiders in der Kammer abzudichten. |
| Mehrschichtige Adsorptionskartusche aus Edelstahl | Supelco | Individuell | 10,5 cm Länge × 3 mm Innendurchmesser; befüllt mit Carbotrap C (0,2 g, 20–40 mesh), Carbopack B (0,1 g, 40–60 mesh) und Carbotrap X (0,1 g, 20–40 mesh). Wird für die optionale Offline-GC-MS-Identifizierung flüchtiger organischer Verbindungen (VOCs) verwendet. www.sigmaaldrich.com |
| Tragbarer Luftprobennahmepumpe mit konstantem Durchfluss | SKC Inc. | 210-1003MTX | Tragbare Luftprobennahmepumpe mit konstantem Durchfluss. |
| PTR-TOF 8000 Massenspektrometer | Ionicon Analytik GmbH | PTR-TOF 8000 | Detektion flüchtiger organischer Verbindungen (VOCs). www.ionicon.com |
| Silberlötdraht | Lokaler Lieferant | N/V | Wird verwendet, um eine Rasierklinge an einem Edelstahlstab zu befestigen. |
| Federblech aus Messing (0,2 mm Dicke) | Lokaler Lieferant | N/V | Flexible Halterungen zur Befestigung des Schneiders. |
| Edelstahlstab (1 mm Durchmesser) | Lokaler Lieferant | N/V | Trägerstab für den Schneider. |
| Edelstahlspritzenkanüle (1,6 mm Außendurchmesser) | Lokaler Lieferant | N/V | Gehäuse für eine rotierende Schneidklinge. |
| Teflonstopfen | Lokaler Lieferant | N/V | Wird verwendet, um das Schneidgehäuse abzudichten, während eine Drehung möglich bleibt. |
| Teflon-T-Stück-Verbinder | Lokaler Lieferant | N/V | In der Nähe des Kammernausgangs installiert, um die Schlauchlänge zu verkürzen. |
| Teflonschlauch (FEP oder PTFE) | Lokaler Lieferant | N/V | Probenahmeleitung für flüchtige organische Verbindungen (VOCs) zwischen Kammer und Detektoren. |
| Kalibriergasgemisch für flüchtige organische Verbindungen (VOCs) | Ionimed GmbH | Individuell | 1 ppm jeder Verbindung in N2; verwendet zur Kalibrierung des PTR-TOF-MS. www.ionimed.com |
Referenzen
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar