Dieses Protokoll beschreibt die CRISPR-Cas9-vermittelte Störung des nodC-Lokus in Mesorhizobium ciceri unter Verwendung der homologiegerichteten Reparatur und einer auf GFP basierenden Selektion, um symbiose-defekte Mutanten für funktionelle Genomikstudien in mit Kichererbsen assoziierten Rhizobien zu erzeugen.
Methodenartikel
CRISPR-Cas9-Genomeditierung in Mesorhizobium ciceri durch Unterbrechung von nodC für Untersuchungen zur Kichererbsen-Symbiose
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Mesorhizobium ciceri, ein stickstofffixierender Symbiont der Kichererbse (Cicer arietinum), ist genetisch schwer veränderbar, wenn herkömmliche Ansätze zur homologen Rekombination verwendet werden, die zeitaufwendig sind und oft unerwünschte Selektionsmarker hinterlassen. In diesem Protokoll beschreiben wir eine optimierte Strategie zur Genom-Editierung unter Verwendung eines breitwirksamen, auf dem Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-assoziierten Protein 9 (Cas9) basierenden Systems, das für M. ciceri angepasst wurde. Wir zeigen die Wirksamkeit dieser Methode am Beispiel des Gens nodC, das die N-Acetylglucosamintransferase kodiert, die für die Synthese des Chitin-Rückgrats in Nod-Faktoren erforderlich ist, den primären Signalmolekülen der symbiotischen molekularen Kommunikation. Dieses Protokoll beschreibt detailliert die systematische Konstruktion von single-guide RNAs (sgRNAs) und die Herstellung einer Vorlage für die reziproke homologe Reparatur (HDR). Die HDR-Vorlage wurde so entworfen, dass die ortsspezifische Integration eines grün fluoreszierenden Proteins (GFP) als Reportergen an der nodC-Spaltstelle ermöglicht wird. Nach der Übertragung des Cas9/sgRNA/HDR-Konstrukts mittels biparentaler Konjugation wurden mutmaßliche Mutanten mithilfe eines fluoreszenzbasierten Screenings identifiziert. Die erfolgreiche Unterbrechung des 1,3 kb großen nodC-Lokus innerhalb des Nodulations- (nod-) Kassettenabschnitts wurde zunächst durch die Visualisierung der GFP-Expression in mutierten Kolonien mittels Fluoreszenzmikroskopie überprüft. Die Unterbrechung wurde anschließend durch Restriktionsverdau, Amplifikation der integrierten Kassette aus genomischer DNA und Sanger-Sequenzierung bestätigt. Die GFP-Expression wurde zusätzlich durch reverse Transkript-quantitative Polymerase-Kettenreaktion quantifiziert. Um die funktionelle Auswirkung der Mutation zu überprüfen, wurden Infektionsversuche mit Kichererbsen durchgeführt, die eine beeinträchtigte Knöllchenbildung bei Pflanzen zeigten, die mit ΔnodC M. ciceri im Vergleich zum Wildtyp-Stamm inoculiert worden waren. Insgesamt bietet dieses Protokoll einen effizienten und reproduzierbaren Rahmen für präzise Genunterbrechungen und funktionelle Genomik-Studien in Mesorhizobium.
Einleitung
Das aus dem prokaryotischen adaptiven Immunsystem stammende System aus „Clustered Regularly Interspaced Short Palindromic Repeats“ (CRISPR) und dem assoziierten Protein 9 (Cas9), eine Nuklease, wurde zu einem effektiven und zuverlässigen Werkzeug für die Genomeditierung weiterentwickelt1,2. Das System verwendet eine synthetische Führungs-RNA (sgRNA), um Ziel-DNA-Sequenzen mittels Watson-Crick-Basenpaarung zu erkennen. Die sgRNA besteht aus 20 Nukleotiden, die komplementär zu der genomischen Region neben dem Protospacer-angrenzenden Motiv (PAM) der Sequenz NGG sind. Cas9 erzeugt einen doppelsträngigen Bruch (DSB) an einer definierten Stelle innerhalb der Zielsequenz, in der Regel 3 Basenpaare (bp) upstream der PAM-Stelle1. Die entstandenen DSBs können entweder durch nicht-homologe Endverknüpfung oder durch homologieabhängige Reparatur (HDR) unter Verwendung einer Donorvorlage repariert werden3,4. Diese Strategie wurde bereits umfassend für Gen-Disruption, Knock-in- und Knock-out-Ansätze in Bakterien angewandt5,6,7,8. Das Hauptziel dieses Protokolls ist die Entwicklung einer effizienten Methode zur Genomeditierung von Mesorhizobium ciceri unter Verwendung eines breitwirksamen CRISPR-Cas9-Systems.
M. ciceri ist ein gramnegatives Bodenbakterium, das als essentieller stickstofffixierender Endosymbiont der Kichererbse (Cicer arietinum) fungiert9. Ein Stamm, M. ciceri CC1192, weist eine hohe Knöllcheneffizienz auf, und sein Genom wurde sequenziert10. Trotz seiner landwirtschaftlichen Bedeutung bleibt die genetische Manipulation von Mesorhizobium-Arten begrenzt. CRISPR-basierte Systeme wurden bereits in anderen Rhizobien implementiert, darunter CRISPR-Interferenz (CRISPRi) in Rhizobium etli11, Genomeditierung in Sinorhizobium meliloti12 und Baseneditierung in S. meliloti13. Ein robustes Genomeditierungsverfahren für M. ciceri wurde jedoch bisher nicht beschrieben. Herkömmliche Ansätze beruhen auf homologer Rekombination, die durch Suizidplasmide vermittelt wird, was zeitaufwendig ist, mehrfache Selektionsschritte erfordert und häufig antibiotikaresistente Marker als genomische Narben hinterlässt14.
Um diese Einschränkungen zu überwinden, wurde das ursprünglich für Paenibacillus polymyxa entwickelte pCasPP-Vektorsystem für den Einsatz in M. ciceri15 angepasst. Der pCasPP-Rahmen verwendet ein für Aktinomyceten mit hohem GC-Gehalt codonoptimiertes Streptococcus pyogenes-Cas9 und enthält eine lacZ-Kassette für die Blau-Weiß-Screening von sgRNA-Klonierungen unter dem konstitutiven gapdh-Promotor8. Eine biparentale Kopplung wurde zwischen dem donorgebenden Escherichia coli-Stamm und dem empfängenden Mesorhizobium-Stamm durchgeführt, um den Editierungsvektor zu übertragen16. Zur Verbesserung der Screening-Effizienz wurde die grün fluoreszierende Proteinvariante bjGFP, die ursprünglich für Bradyrhizobium diazoefficiens codonoptimiert wurde, in die HDR-Donorvorlage eingefügt16. Diese auf Fluoreszenz basierende Screening-Strategie wurde angewandt, um den essentiellen nodC-Locus gezielt anzusteuern, der für die frühen Stadien der symbiotischen Signalübertragung zwischen dem Bakterium und der Kichererbse erforderlich ist17,18.
Dieses Protokoll bietet eine präzise und effiziente Alternative zu zufälligen chemischen oder ultravioletten (UV) Mutagenese-Methoden. In Validierungsexperimenten zeigten über 80 % der gewonnenen Kolonien GFP-Fluoreszenz, und repräsentative editierte Kolonien wurden zusätzlich durch die Polymerase-Kettenreaktion (PCR) und Sanger-Sequenzierung bestätigt. Die resultierenden ΔnodC M. ciceri-Mutanten stellen eine nützliche Ressource zur Untersuchung symbiotischer Signalwege und Wirt-Mikrobe-Interaktionen dar. Insgesamt bietet dieser Ansatz der Rhizobien-Forschungsgemeinschaft eine effiziente und skalierbare Methode für funktionelle Genomik-Studien in Mesorhizobium.
Protokoll
Alle experimentellen Protokolle, die das Pflanzenwachstum, die mikrobielle Inokulation und den Umgang mit genetisch veränderten Bakterien betrafen, wurden gemäß den institutionellen Richtlinien und Vorschriften durchgeführt. Die Pflanzenkultivierung und bakteriellen Inokulationen wurden unter kontrollierten Bedingungen in Wachstumskammern durchgeführt. Der in dieser Studie verwendete M. ciceri-Stamm wird als Mikroorganismus der Bio-Sicherheitsstufe 1 (BSL-1) eingestuft. Da alle Experimente unter kontrollierten Laborbedingungen ohne Freisetzung in die Umwelt durchgeführt wurden, war gemäß den institutionellen Bio-Sicherheitsrichtlinien keine formelle institutionelle Genehmigung erforderlich. Alle während der Studie anfallenden biologischen Abfälle wurden vor der Entsorgung autoklaviert.
1. Herstellung kompetenter Zellen
Chemisch kompetente E. coli DH5α- und E. coli S17-1λpir-Zellen wurden gemäß dem in Zusatzdatei 1 beschriebenen Verfahren hergestellt und validiert.
2. Entwurf der Leit-RNA
- Entwurf von Leit-RNAs
- Öffnen Sie die Benchling-Plattform (https://benchling.com/). Melden Sie sich bei einem bestehenden Benchling-Konto an oder erstellen Sie ein neues Konto.
- Erstellen Sie ein neues Projekt und öffnen Sie das CRISPR-Leit-RNA-Design-Tool.
- Laden Sie die vollständige Ziel-DNA-Sequenz für den Leit-RNA-Entwurf hoch oder fügen Sie sie ein. Wählen Sie die Entwurfsoption „Einzelne Leit-RNA“ und stellen Sie die Leit-RNA-Länge auf 20 bp ein.
- Wählen Sie das Genom-Referenzmaterial aus den verfügbaren Optionen. Für den Leit-RNA-Entwurf, der auf M. ciceri abzielt, wählen Sie Bradyrhizobium diazoefficiens USDA 110 als Referenzgenom. Verwenden Sie NGG als Protospacer-angrenzendes Motiv (PAM), das für die Aktivität von Streptococcus pyogenes Cas9 (SpCas9) erforderlich ist.
- Verwenden Sie den Algorithmus von Hsu et al.19, um die vorhergesagten Off-Target-Schneidhäufigkeiten zu berechnen. Halten Sie einen Schwellenwert von ≥50 ein, um unspezifische Spaltung im Hintergrund des Referenzgenoms zu minimieren.
- Verwenden Sie den Doench-Root-Algorithmus20, um die vorhergesagten On-Target-Effizienzwerte zu berechnen. Legen Sie einen Auswahl-Schwellenwert von ≥60 fest, um Leit-RNAs mit günstiger vorhergesagter Cas9-Spaltungseffizienz an der Zielstelle zu identifizieren.
- Klicken Sie auf „Fertig“, um die Liste der in Frage kommenden Leit-RNAs zu generieren.
- Auswahl der Leit-RNAs
- Öffnen Sie das Ausgabefenster für Leit-RNAs.
- Bevorzugen Sie in Frage kommende sgRNAs, die voraussichtlich einen Doppelstrangbruch innerhalb von 100 bp zum Translationsstartcodon (ATG) erzeugen, um die Wahrscheinlichkeit eines nicht funktionsfähigen Proteins zu erhöhen.
- Prüfen Sie die Off-Target- und On-Target-Werte. Bevorzugen Sie einen höheren Off-Target-Wert gegenüber einem leicht höheren On-Target-Wert, um das Risiko unbeabsichtigter Off-Target-Spaltung zu verringern.
- Wählen Sie eine oder zwei in Frage kommende Einzel-Leit-RNAs (sgRNAs) aus, die alle Auswahlkriterien erfüllen.
- Vorbereitung der gRNA-Oligonukleotide
- Generieren Sie die komplementäre Sequenz der ausgewählten Leit-RNA.
- Fügen Sie die Sequenz 5′-ACGC am 5′-Ende der Leit-RNA und die Sequenz 5′-AAAC am 5′-Ende der komplementären Sequenz hinzu.
- Bestellen Sie beide Oligonukleotide mit 5′-Phosphorylierung und PAGE-Reinigung in einer Synthesemenge von 25 nmol.
- Hybridisierung der gRNA-Oligonukleotide
- Stellen Sie einen 30 mM HEPES-Puffer her, indem Sie 7,15 g HEPES-Freisäure in etwa 800 mL destilliertem Wasser lösen. Stellen Sie den pH-Wert mit Natriumhydroxid auf 7,8 ein und ergänzen Sie das Endvolumen auf 1 L.
- Lösen Sie jedes phosphorylierte Oligonukleotid in nukleasefreiem Wasser auf eine Endkonzentration von 100 µM auf. Mischen Sie jeweils 5 µL jedes Oligonukleotids mit 90 µL 30 mM HEPES-Puffer in einem sterilen Mikrozentrifugenröhrchen.
- Vortexen Sie kurz und zentrifugieren Sie, um die Flüssigkeit zu sammeln. Hybridisieren Sie die Oligonukleotide in einem Thermocycler durch 5-minütige Inkubation bei 95°C und anschließendes Abkühlen auf 4°C mit einer Abkühlrate von 0,1°C/s.
- Verdünnen Sie die hybridisierten Oligonukleotide 10-fach mit nukleasefreiem Wasser.
- Einbau der gRNA in den pCasPP-Vektor
- Verwenden Sie den zuvor von Rütering et al.15 beschriebenen pCasPP-Vektor.
- Die Plasmidsequenz wurde von Jochen Schmid zur Verfügung gestellt, und der in dieser Studie verwendete Konstrukt wurde über Dr. Syed Shams Yazdani (ICGEB) bezogen.
- Stellen Sie eine Golden-Gate-Reaktion her, die 100 ng pCasPP-Vektor, 0,3 µL hybridisiertes Oligonukleotid-Insert, 2 µL 10× T4-DNA-Ligase-Puffer, 1 µL T4-DNA-Ligase, 1 µL BbsI-Restriktionsenzym und nukleasefreies Wasser auf ein Endvolumen von 20 µL enthält.
- Stellen Sie eine Negativkontrollreaktion her, indem Sie das Insert durch nukleasefreies Wasser ersetzen.
- Mischen Sie die Reaktionen vorsichtig und zentrifugieren Sie kurz.
- Golden-Gate-Assemblierungszyklusbedingungen
- Platzieren Sie die Reaktionsröhrchen in einem Thermocycler. Führen Sie neun Zyklen durch, bestehend aus 10 Minuten bei 37°C gefolgt von 10 Minuten bei 16°C.
- Inkubieren Sie die Reaktionen 5 Minuten bei 50°C und anschließend 20 Minuten bei 65°C. Halten Sie die Reaktionen anschließend bei 4°C bis zur Verwendung.
- Transformation der Assemblierungsreaktionen
- Tauen Sie 50 µL kompetente Escherichia coli DH5α-Zellen 10–15 Minuten auf Eis auf.
- Fügen Sie jeweils 3 µL jeder Golden-Gate-Assemblierungsreaktion den kompetenten Zellen hinzu. Führen Sie die Negativkontrollreaktion parallel durch. Inkubieren Sie die Mischungen 30 Minuten auf Eis.
- Führen Sie einen Hitzeschock bei 42°C für 45 Sekunden durch und stellen Sie die Röhrchen anschließend sofort 2 Minuten auf Eis. Fügen Sie 950 µL Super Optimal Broth mit Catabolit-Repression (SOC-Medium) hinzu.
- Stellen Sie SOC-Medium her, das 0,5 % Hefeextrakt, 2 % Tryptone, 10 mM NaCl, 2,5 mM KCl, 10 mM MgCl₂, 10 mM MgSO₄ und 20 mM Glukose enthält. Sterilisieren Sie das Medium unter aseptischen Bedingungen durch Filtration mit einem 0,4 µm-Spritzenfilter.
- Inkubieren Sie die Kulturen 1 Stunde bei 37°C und 180 rpm.
- Auswahl positiver Transformanten
- Stellen Sie LB-Agarplatten her, die mit 50 µg/mL Neomycin, 0,2 mM Isopropyl β-D-1-thiogalactopyranosid (IPTG) und 32 mg/L 5-Bromo-4-chloro-3-indolyl β-D-galactopyranosid (X-gal) ergänzt sind. Pipettieren Sie 100 µL der Rekultivierungskultur auf die selektiven Platten. Inkubieren Sie die Platten 12–16 Stunden bei 37°C.
- Wählen Sie weiße Kolonien aus und verwerfen Sie blaue Kolonien. Stellen Sie sicher, dass die Negativkontrollplatte weniger als fünf Kolonien enthält.
- Screening und Auszucht positiver Klone
- Übertragen Sie drei bis vier unabhängige weiße Kolonien auf frische selektive LB-Agarplatten.
- Inkubieren Sie die Platten 12–16 Stunden bei 37°C. Inokulieren Sie einzelne Kolonien in 10 mL LB-Medium, ergänzt mit 50 µg/mL Neomycin.
- Verarbeiten Sie jeden Leit-RNA-Konstrukt unabhängig im weiteren Arbeitsablauf.
- Validierung der pCasPP-gRNA-Konstrukte
- Ernten Sie die Bakterienkulturen durch Zentrifugation. Isolieren Sie die Plasmid-DNA mithilfe eines Silica-Säulen-Plasmidreinigungs-Kits.
- Verdauen Sie die isolierte Plasmid-DNA mit XbaI und EcoRI im geeigneten Reaktionspuffer 1 Stunde bei 37°C.
- Trennen Sie die Verdauungsprodukte in einem 1 %igen Agarosegel, das in 1× Tris-Acetat-EDTA (TAE)-Puffer mit Ethidiumbromid (Endkonzentration 0,5 µg/mL) hergestellt wurde.
- Führen Sie das Gel bei 90–110 V, bis sich die Farbstofffront über etwa 70–80 % der Gellänge bewegt hat. Visualisieren Sie die DNA-Fragmente mittels UV-Transillumination.
- Bestätigen Sie positive Klone durch Nachweis eines 1.280 bp großen Fragments und identifizieren Sie leere Vektor-Kontrollen durch ein 1.630 bp großes Fragment. Der leere pCasPP-Vektor ist etwa 9.663 bp groß und enthält ein lacZ-Gen; die Insertion des 24 bp langen gRNA-Oligonukleotids entfernt das lacZ-Fragment und erzeugt einen kleineren, gRNA-haltigen pCasPP-Konstrukt. Die XbaI- und EcoRI-Restriktionsstellen, die den lacZ-Bereich flankieren, dienen der diagnostischen Bestätigung des gRNA-Klonierungs.
- Vorbereitung von Glycerinlagerkulturen
- Züchten Sie einen bestätigten positiven Klon in selektivem LB-Medium.
- Stellen Sie eine Glycerinlagerkultur her, indem Sie 700 µL Kultur in logarithmischer Wachstumsphase mit 300 µL sterilem 50 %igem Glycerin mischen. Überführen Sie die Mischung in sterile Cryoröhrchen. Lagern Sie die Glycerinlagerkulturen bei −80°C.
HINWEIS: Vermeiden Sie wiederholte Einfrier- und Auftauzyklen. Bereiten Sie mehrere Aliquots vor, um die Plasmidstabilität und die Bakterienvitalität zu erhalten. Die fertige Golden-Gate-Assemblierungsreaktion kann vor der Transformation über Nacht bei 4°C oder 1–2 Wochen bei −20°C gelagert werden.
3. Zusammenbau der homologiegerichteten Reparaturvorlage
- Vorbereitung des grün fluoreszierenden Proteins (GFP)-Einfügestücks
- Beziehen Sie das Plasmid pRJPaph-bjGFP, das die fluoreszierende Reporterkassette enthält16 (Tabelle 1)10,15,16,21,22,23. Das Plasmid wurde von Prof. Hans-Martin Fischer (ETH Zürich, Schweiz) zur Verfügung gestellt und ist über Addgene erhältlich (Plasmid #67032).
- Schneiden Sie die gfp-Kassette aus pRJPaph-bjGFP mittels Restriktionsverdau mit SacI und KpnI wie in ergänzender Datei 2 (Schritt 3.1) beschrieben aus. Die gfp-Sequenz in pRJPaph-bjGFP ist ein synthetisches, für Bradyrhizobium diazoefficiens kodonoptimiertes bjGFP-Gen.
- Reinigen Sie das erwartete 1081 bp lange gfp-Fragment.
- Konstruktion von pUC18-gfp
- Beziehen Sie das pUC18-Grundgerüst (Addgene-Plasmid #50004)21.
- Linearisieren Sie pUC18 mit SacI und KpnI wie in ergänzender Datei 2 (Schritt 3.2) beschrieben.
- Ligieren Sie das gereinigte gfp-Fragment in den linearisierten pUC18-Vektor wie in ergänzender Datei 2 (Schritt 3.2) beschrieben.
- Transformieren Sie kompetente E. coli-DH5α-Zellen mithilfe des Transformationsverfahrens aus Schritt 2.7, wobei die aus Schritt 3.2.3 erzeugte Ligationsmischung anstelle der Golden-Gate-Assemblierungsreaktion verwendet wird.
- Selektieren Sie positive Transformanten und überprüfen Sie die gfp-Einfügung mittels Kolonie-Polymerase-Kettenreaktion (PCR) wie in ergänzender Datei 2 (Schritt 3.2) beschrieben.
- Amplifikation der Homologiearme
- Entwerfen Sie Primer zur Amplifikation der upstream (UHA) und downstream (DHA) gelegenen Homologiearme von etwa 400–500 bp aus der genomischen DNA von M. ciceri (Tabelle 2).
- Integrieren Sie Restriktionsstellen für SacI/EcoRI in die UHA-Primer und für XbaI/KpnI in die DHA-Primer. Verwenden Sie die Primer F_nodC_Up_EcoRI und R_nodC_Up_SacI zur Amplifikation des UHA sowie die Primer F_nodCdown_KpnI und R_nodCdown_XbaI zur Amplifikation des DHA (Tabelle 2).
- Isolieren Sie die genomische DNA von M. ciceri gemäß Weerakkody et al.25.
- Amplifizieren und reinigen Sie die UHA- und DHA-Fragmente wie in ergänzender Datei 2 (Schritt 3.3) beschrieben.
- Konstruktion von pUC18-UHA-gfp
- Klonieren Sie das UHA-Fragment in pUC18-gfp unter Verwendung von EcoRI und SacI wie in ergänzender Datei 2 (Schritt 3.4) beschrieben.
- Bestätigen Sie die korrekte Plasmidassemblierung durch Restriktionsverdau mit XbaI und KpnI. Eine erfolgreiche Assemblierung sollte Fragmente von etwa 500 bp und 3725 bp erzeugen.
- Arbeiten Sie mit einem verifizierten Klon weiter.
- Konstruktion von pUC18-UHA-gfp-DHA
- Klonieren Sie das DHA-Fragment in pUC18-UHA-gfp unter Verwendung von KpnI und XbaI wie in ergänzender Datei 2 (Schritt 3.5) beschrieben.
- Bestätigen Sie die korrekte Assemblierung durch Restriktionsverdau mit SacI und EcoRI. Eine erfolgreiche Assemblierung sollte Fragmente von etwa 400 bp und 4271 bp erzeugen.
- Verifizieren Sie 5–6 Kandidatenklone durch Sanger-Sequenzierung unter Verwendung der Primer F_nodC_Up_EcoRI, BjGFP_BP_F1 und R_nodCdown_XbaI (Tabelle 2), die zusammen den Großteil der Homologiegerichteten-Reparatur-(HDR-)Kassettensequenz abdecken.
- Amplifikation und Reinigung der endgültigen HDR-Vorlage
- Amplifizieren Sie die vollständige HDR-Kassette unter Verwendung der Primer F_FL_nodCgfp_XbaI und R_nodCdown_XbaI (Tabelle 2).
- Reinigen Sie das erwartete 2012 bp lange HDR-Fragment und verdauen Sie das gereinigte PCR-Produkt mit XbaI wie in ergänzender Datei 2 (Schritt 3.6) beschrieben.
- Vorbereitung der pCasPP-gRNA-Vektoren
- Rufen Sie die in Schritt 2 erzeugten Plasmide pCasPP-gRNA1 und pCasPP-gRNA2 ab.
- Linearisieren Sie die Plasmide mit XbaI und dephosphorylieren Sie das Vektorgrundgerüst wie in ergänzender Datei 2 (Schritt 3.7) beschrieben.
- Klonierung der HDR-Vorlage in pCasPP-gRNA-Vektoren
- Ligieren Sie die HDR-Kassette in XbaI-linearisiertes pCasPP-gRNA1 oder pCasPP-gRNA2 wie in ergänzender Datei 2 (Schritt 3.8) beschrieben.
- Transformieren Sie kompetente E. coli-DH5α-Zellen und selektieren Sie die Transformanten auf LB-Agar mit 50 µg/mL Neomycin.
- Screening von Klonen mit HDR
- Screenen Sie die Transformanten auf GFP-Fluoreszenz mithilfe eines Fluoreszenz-Stereomikroskops, das mit einem Standard-GFP-Filterset ausgestattet ist (Anregung 470–488 nm; Emission 507–510 nm).
- Klassifizieren Sie Kolonien als GFP-positiv, wenn eine deutliche, gleichmäßige grüne Fluoreszenz vorliegt, die die schwache Autofluoreszenz in nicht editierten negativen Kontrollkolonien eindeutig übersteigt.
- Vergrößern Sie GFP-positive Klone und isolieren Sie die Plasmid-DNA.
- Validierung der HDR-Vektorassemblierung
- Bestätigen Sie die HDR-Einfügung durch Restriktionsverdau mit XbaI.
- Überprüfen Sie die erfolgreiche Assemblierung durch Freisetzung des erwarteten 2012 bp langen HDR-Fragments zusammen mit einem etwa 9.300 bp großen pCasPP-gRNA-Vektorgrundgerüst.
HINWEIS: Nach der Hitzeinaktivierung der Restriktionsenzyme und der Phosphatase können die Reaktionsgemische über Nacht bei 4 °C oder bis zu einem Monat bei −20 °C gelagert werden. Lagern Sie bestätigte Plasmidkonstrukte zur Langzeitkonservierung bei −20 °C.
| Stamm oder Plasmid | Beschreibung | Referenz | ||||
| Mesorhizobium ciceri CC1192 | Empfängerstamm, verwendet für die CRISPR-Cas9-Genomeditierung und Kichererbsen-Wurzelknöllchen-Assays | Haskett et al.10 | ||||
| pCasPP | CRISPR-Cas9-Genomeditierungsvektor, verwendet zum Klonen der Leit-RNA und zur Bereitstellung der HDR-Vorlage | Rütering et al.15 | ||||
| pRJPaph-bjGFP | GFP-Reporterplasmid, verwendet als Quelle für das GFP-Kassettenfragment (Addgene Plasmid #67032) | Ledermann et al.16 | ||||
| pUC18 | Allgemeiner Klonierungsvektor, verwendet zur Zusammenstellung der HDR-Vorlage (Addgene Plasmid #50004) | Norrander et al.21 | ||||
| Escherichia coli S17-1λpir | Donorstamm, verwendet für die biparentale Konjugation | Simon et al.22 | ||||
| Escherichia coli DH5α | Klonierungswirt, verwendet zur Plasmidvermehrung | Hanahan et al.23 | ||||
Tabelle 1: In dieser Studie verwendete Bakterienstämme und Plasmide. Diese Tabelle listet die Bakterienstämme und Plasmide auf, die für die Plasmidvermehrung, die CRISPR-Cas9-vermittelte Genomeditierung, die Zusammenstellung von Vorlagen für die homologiegerichtete Reparatur (HDR), die biparentale Paarung und die fluoreszente Markierung von Mesorhizobium ciceri CC1192 verwendet wurden.
| Kategorie | Name | Sequenz (5′  3′) oder Beschreibung |
| Bakterieller Stamm | Escherichia coli DH5α | Klonierungs-Wirtsstamm |
| Bakterieller Stamm | Escherichia coli S17-1λpir | Donorstamm für biparentale Kopplung |
| Klonierungsvektor | pUC18 | Rückgratvektor für die Klonierung |
| CRISPR-Vektor | pCasPP | CRISPR-Cas9-Vektor mit breitem Wirtsspektrum |
| Reporterpflasmid | pRJPaph-bjGFP | GFP-Reporterpflasmid |
| Primer | F_guide1_BbsI | pACGCTGTTTACAGAGGCATGCAAG |
| Primer | R_guide1_BbsI | pAAACCTTGCATGCCTCTGTAAACA |
| Primer | F_guide2_BbsI | pACGCGCTTGTTCGGATCCGACCGT |
| Primer | R_guide2_BbsI | pAAACACGGTCGGATCCGAACAAGC |
| Primer | F_nodC_Up_EcoRI | AAAGAATTCCTCATTGCAAGCCAGCAGT |
| Primer | R_nodC_Up_SacI | AAAGAGCTCCGGAAAGCTTGTTTCGGATCC |
| Primer | F_nodCdown_KpnI | AAAGGTACCTCGAGAGCACCGCATAAGAC |
| Primer | R_nodCdown_XbaI | AATTCTAGATGGTTCGGTACTTTCGTGCA |
| Primer | F_FL_nodCgfp_XbaI | AAATTCTAGACTCATTGCAAGCCAGCCAGT |
| Primer | BjGFP_BP_F1 | GAAGTTCATCTGCACCACCG |
| Primer | BjGFP_BP_R1 | GTCCTTGAACGAGATGGTGC |
| Primer | BjGFP_BP_F2 | CCAACTTCAAGATCCGCCAC |
| Primer | GFP_R | CCAACTTCAAGATCCGCCAC |
| Primer | BjGFP_BP_R2 | CTTGTACAGCTCGTCCATGC |
| Primer | 16S_F1 | ATCCTGGCTCAGAACGAACG |
| Primer | 16S_R1 | ATTCCCACGCGTTACTCACC |
| Primer | 16S_F2 | AGTCCGAGAGGGTGAGTGG |
| Primer | 16S_R2 | GTCAGTACCGAGCCAGTGAG |
| Primer | F1_nodC | CGATTTCCAGAACCGTCGTC |
| Primer | nodC_R | CGATTTCCAGAACCGTCGTC |
| Primer | R1_nodC | TCCCCTGCTACAATGAGGAC |
| Primer | F2_nodC | AGTGACTCCGCAATTCCAGA |
| Primer | R2_nodC | TGTCGGTAAAAGTGTTTCCC |
| Primer | F1_nodB | TGGTTCGGTACTTTCGTGCA |
| Primer | R1_nodB | AGTCGCGTGGATCAATGGAC |
| Primer | F1_nodA | TGATCGTCGCTGAATTGGGC |
| Primer | R1_nodA | CAACTGATGGAGCACTGGGT |
| Primer | F1_nodD | TGGCCTTAAGAGACGTGTCG |
| Primer | R1_nodD | AAATGCCTGACCAGCCGTAA |
Tabelle 2: In dieser Studie verwendete Bakterienstämme, Plasmide und Oligonukleotidprimer. Diese Tabelle listet die Bakterienstämme, Plasmide und Oligonukleotidprimer auf, die für die Konstruktion einzelner Führungs-RNAs (sgRNA), die Assembly von Vorlagen für die homologiegerichtete Reparatur (HDR), diagnostische Polymerase-Kettenreaktion (PCR), Sanger-Sequenzierung und reverse Transkriptions-quantitative Polymerase-Kettenreaktion (RT-qPCR) verwendet wurden. Die Primersequenzen sind in 5′ 3′-Orientierung angegeben. Hinweis: BjGFP_BP_F2 und GFP_R bezeichnen dieselbe Oligonukleotidsequenz, sind jedoch unter verschiedenen Primerbezeichnungen aufgelistet, da sie in unterschiedlichen experimentellen Assays verwendet wurden.
4. Biparentale Kopulation zur Übertragung eines Plasmids in M. ciceri CC1192
- Transformation von Donor-E. coli-Zellen
- Transformieren Sie E. coli-S17-1λpir-Zellen mit den Konstrukten pCasPP-gRNA1-HDR oder pCasPP-gRNA2-HDR gemäß dem Verfahren, das in Ergänzende Datei 3 (Schritt 4.1) beschrieben ist.
- Selektieren Sie Transformanten auf LB-Agar, der 50 µg/mL Neomycin enthält.
- Prüfen Sie die Transformanten auf GFP-Fluoreszenz durch Anregung bei etwa 488 nm und Detektion der Emission bei etwa 510–520 nm.
- Klassifizieren Sie Kolonien als GFP-positiv, wenn sie eine gleichmäßige, deutliche grüne Fluoreszenz aufweisen, die bei nicht transformierten E. coli-S17-1λpir-Kontrollkolonien unter identischen Mikroskop-Einstellungen fehlt.
- Stellen Sie Glycerinlagerkulturen aus bestätigten GFP-positiven Donor-Klonen her.
- Herstellung von Saat- und Anzuchtkulturen
- Stellen Sie Anzuchtkulturen der Donor-E. coli-S17-1λpir- und der Rezeptor-M. ciceri-Stämme gemäß Ergänzende Datei 3 (Schritt 4.2) her.
- Verkultivieren Sie die Anzuchtkulturen bis zu einem OD₆₀₀ von 0,3–0,4, was einer geschätzten Zelldichte von etwa 1 × 10⁸ KBE/mL entspricht.
- Herstellung von Unterkeimkulturen für die biparentale Paarung
- Stellen Sie Donor- und Rezeptor-Unterkeimkulturen her und kultivieren Sie sie bis zur erforderlichen exponentiellen Wachstumsphase gemäß Ergänzende Datei 3 (Schritt 4.3).
- Messen Sie die optische Dichte bei 600 nm (OD600) mithilfe eines UV–Vis-Spektrophotometers gemäß dem in Ergänzende Datei 1 (Schritt 1.2.3) beschriebenen Verfahren zur optischen Dichtebestimmung.
- Verfahren zur biparentalen Paarung
- Führen Sie die membranfiltrationsbasierte biparentale Paarung gemäß Ergänzende Datei 3 (Schritt 4.4) durch.
- Tragen Sie vier Aliquots der Paarungssuspension auf einen sterilen 0,22 µm-Polyvinylidenfluorid-(PVDF)-Membranfilter (47 mm Durchmesser) auf, wobei ausreichend Abstand zwischen den Aufträgen eingehalten wird, um Vermischung zu vermeiden.
- Rekultivierung und Selektion von Transkonjuganten
- Rekultivieren Sie die Transkonjuganten und führen Sie eine Doppelantibiotikaselektion gemäß Ergänzende Datei 3 (Schritt 4.5) durch.
- Passagieren Sie die Transkonjuganten wiederholt auf Medium mit Carbenicillin allein, um verbliebene Plasmide zu eliminieren.
- Bestätigen Sie das Ausheilen der Plasmide durch das Fehlen von Wachstum auf Neomycin-haltigem Medium und durch diagnostische PCR, die das Fehlen des pCasPP-Rückgrats bei gleichzeitigem Vorhandensein des chromosomal integrierten HDR-Kassetten zeigt.
HINWEIS: Zur Bestätigung der Stabilität der integrierten Modifikation und zur Eliminierung verbliebener episomaler Plasmide ist eine mehrfache Passagierung erforderlich.
- Auswahl GFP-positiver Kolonien
- Prüfen Sie gereinigte Transkonjuganten auf GFP-Fluoreszenz und vergleichen Sie sie mit Wildtyp-M. ciceri-Kontrollen gemäß Ergänzende Datei 3 (Schritt 4.6).
- Wählen Sie fluoreszierende Kolonien als putative HDR-positive Stämme aus.
- Klassifizieren Sie Kolonien als GFP-positiv, wenn sie unter identischen Mikroskop-Einstellungen und Belichtungsbedingungen eine gleichmäßige, deutliche grüne Fluoreszenz zeigen, die bei Wildtyp-M. ciceri-Kolonien fehlt.
- Bestätigen Sie GFP-positive Kolonien durch diagnostische PCR, bevor Sie mit der weiteren Validierung fortfahren.
- Lagern Sie bestätigte Kolonien kurzfristig auf Hefe-Mannit-(YM)-Agar bei 4 °C oder langfristig als Glycerinlagerkulturen mit 20–25 % Glycerin bei −80 °C.
5. Validierung von nodC-Mutanten
- Validierung der GFP-Integration an der nodC-Lokusstelle
- Inokulieren Sie eine einzelne GFP-exprimierende M. ciceri Kolonie in 10 mL Hefe-Mannit-Bouillon (YMB) ergänzt mit 100 µg/mL Carbenicillin24. Inkubieren Sie die Kultur bei 28°C unter Schütteln bei 180 U/min für 20–24 h.
- Bakterielle Zellen durch Zentrifugation bei 8.000 × g für 10 min bei 25°CSammeln Sie das Zellpellet und isolieren Sie die genomische DNA gemäß Weerakkody et al.25.
- Führen Sie eine diagnostische PCR unter Verwendung genomischer DNA als Vorlage durch (Tabelle 2). Bereiten Sie eine vor 10 µL PCR-Reaktion, die enthält 5 µL 2× PCR-Master-Mix, 0.2 µM F1_nodB- und nodC_R-Primer oder F1_nodB- und gfp_R-Primer sowie 50 ng genomische DNA.
- Programmieren Sie den Thermocycler für eine initiale Denaturierung bei 95°C 5 min, gefolgt von 35 Zyklen von 95°C für 1 min, 62°C für 30 s und 72°C für 45 s mit einer abschließenden Verlängerung bei 72°C für 5 min.
- Trennen Sie die PCR-Produkte wie zuvor beschrieben auf einem 1%igen (w/v) Agarosegel auf. Bestätigen Sie die GFP-Integration, indem Sie mit F1_nodB/nodC_R ein Produkt von etwa 430 bp im Wildtyp (WT) und ein Produkt von etwa 1500 bp im disruptierten Mutanten sowie mit F1_nodB/gfp_R ein Produkt von etwa 1000 bp im Mutanten (kein Produkt im WT) nachweisen.
- Verwenden Sie geeignete Kontrollen während der PCR-Validierung. Nutzen Sie als positive Kontrolle Plasmid-DNA, die die Zielsequenz enthält, und als negative Kontrolle eine Probe ohne Templat (NTC) mit nukleasefreiem Wasser.
- Quantifizierung der GFP-Expression mittels reverser Transkription und quantitativer Polymerase-Kettenreaktion (RT-qPCR)
- Isolieren Sie die gesamte RNA aus WT und Mutante M. ciceri Kulturen unter Verwendung von TRIzol-Reagenz gemäß den Herstelleranweisungen
- Behandeln Sie die RNA gemäß den Anweisungen des Herstellers mit DNase I, um kontaminierende genomische DNA zu entfernen. Überprüfen Sie die vollständige Entfernung der DNA unter Verwendung einer No-Reverse-Transkriptase-(−RT)-Kontrolle während der qPCR.
- Synthetisieren Sie die cDNA der ersten Stranges aus 1 µg Gesamt-RNA unter Verwendung eines kommerziell erhältlichen Kits zur Synthese der ersten cDNA-Stranges gemäß den Herstelleranweisungen. Bereiten Sie eine vor 20 µL Reaktion mit RNA, Oligo(dT)-Primern, dNTPs, Reaktionspuffer, RNase-Inhibitor und reverser Transkriptase.
- Inkubieren Sie die cDNA-Synthese-Reaktion bei 42°C 60 min, gefolgt von einer Hitzeinaktivierung bei 70°C 5 min. cDNA bei −20 °C lagern20°C bis zur Verwendung
- RT-qPCR-Ansätze in technischer Triplikat herstellen. Zusammenstellen 10 µL Reaktionen, die enthalten 5 µL 2× SYBR Green Master Mix, 0.2 µM BjGFP_BP_F1- und BjGFP_BP_R1-Primer zur Amplifikation von GFP oder 16S_F1- und 16S_R1-Primer zur Amplifikation des Referenzgens (Tabelle 2), 2 µL cDNA-Vorlage (ca. 20 ng) und nukleasefreies Wasser.
- Führen Sie die RT-qPCR mit den folgenden Zyklenbedingungen durch: anfängliche Denaturierung bei 95°C für 2 min, gefolgt von 40 Zyklen von 95°C für 15 s und 58°C für 45 s, gefolgt von einer Schmelzkurvenanalyse von 65°C zu 95°C.
- Führen Sie eine qRT-PCR mit einem Bio-Rad CFX96 Echtzeit-PCR-Detektionssystem durch. Analysieren Sie die Amplifikationskurven, Ct Werte und Schmelzkurven mit der Bio-Rad CFX Manager-Software.
- Berechnen Sie die relative Genexpression unter Verwendung des 2−ΔΔCt Methode. Normalisieren Sie die Expression auf das Referenzgen 16S rRNA und verwenden Sie den WT M. ciceri Stamm als Kalibratorprobe. Analysieren Sie drei biologische Replikate, jedes in technischer Triplikat.
- Beurteilung des Knöllchenbildungsvermögens
- Herstellung des bakteriellen Inokulums
- Inokulieren Sie einzelne Kolonien von WT- und Mutantenstämmen in selektives YMB, das enthält 100 µg/mL Carbenicillin. Inkubieren Sie die Kulturen bei 28°C unter Schütteln bei 180 U/min für 30–36 h.
- Kulturen 1:100 in frisches selektives YMB verdünnen und Wachstum durch Messung der OD überwachen600 mit einem UV-VIS-Spektrophotometer. Nullen Sie das Gerät mit uninokuliertem YMB und setzen Sie die Inkubation fort, bis die Kulturen einen OD600 von 0,3–0,4 erreichen, was ungefähr 1 entspricht × 108 KBE/mL
- Verwenden Sie 3 mL der standardisierten Bakteriensuspension zur Inokulation jeder Pflanze.
- Infektionsassay an Kichererbsenpflanzen
- Erhalten Sie Samen von C. arietinum Kultivar BDG25618,24 vom ICAR–Indian Agricultural Research Institute (IARI), Neu-Delhi, Indien
- Sämtliche Samen gründlich mit fließendem Leitungswasser und anschließend mit Milli-Q-reinigtem Wasser waschen. Die Samen unter Rühren 5 Minuten lang in 1 % Natriumhypochlorit oberflächensterilisieren und danach fünfmal mit steriler, gereinigter Wasserlösung spülen.
- Behandeln Sie die Samen mit 0,1 % Bavistin-Fungizid (50 % carbendazim haltiges, wasserunlösliches Pulver) für 2–3 h bei Raumtemperatur. Waschen Sie die behandelten Samen zweimal mit steriler, gereinigter Wasser.
- Legen Sie die Samen auf feuchtes, steriles Filterpapier in sterilen Petrischalen (110 mm × 40 mm), mit Parafilm verschließen und im Dunkeln bei 28°C ± 2°C für 3 Tage.
- Gepflanzte Sämlinge einzeln in sterile Sand verpflanzen. Sand sterilisieren bei 121°C und 15 psi für 20 min vor Gebrauch.
- Bereiten Sie die stickstofffreie Nährlösung nach McKnight zu, indem Sie 6,0 g CaSO₄₄, 1,0 g MgSO₄₄·7H₂O, 1,0 g KH₂PO₄, 1,5 g KCl, 14,3 mg H₃BO₃, 0,4 mg CuSO₄₄·5H₂O, 0,08 mg MnSO₄₄·4H₂O, 0,45 mg H₂MoO₄und 1,1 mg ZnSO₄₄·7H₂O in sterilem destilliertem Wasser auf ein Endvolumen von 5 L.
- Kultivieren Sie Sämlinge in Töpfen mit einem Durchmesser von 10 cm, die sterilem Sand enthalten, und halten Sie jeweils vier Pflanzen pro Topf. Bewässern Sie jeden Topf zweimal wöchentlich mit 20 mL stickstofffreier McKnight-Lösung.
- Pflanzen unter kontrollierten Bedingungen aufbewahren 22°C ± 2°C (Tag), 18°C ± 2°C (Nacht), 55–60 % relative Luftfeuchtigkeit, ein 16-Stunden-Licht-8-Stunden-Dunkel-Photoperiode und eine Lichtintensität von 200 µmol Photonen m⁻2 s⁻1. Sämlinge 6–7 Tage vor der Inokulation kultivieren.
- Geben Sie 3 mL Bakteriensuspension direkt auf jedes Keimling. Führen Sie unbehandelte Kontrollen durch Applikation von 3 mL steriler YMB durch. Verwenden Sie 16 biologische Wiederholungen pro Behandlungsgruppe.
- Wurzeln und Triebe 20 Tage nach der Inokulation ernten. Knötchen manuell zählen und die Frischmasse unmittelbar nach der Ernte erfassen.
- Trockene Gewebe bei 65°C bis ein konstantes Gewicht erreicht ist. Definieren Sie konstantes Gewicht als zwei aufeinanderfolgende Messungen, die nach 24-stündigen Trocknungsintervallen durchgeführt wurden und sich um weniger als <0,01 g, dann trockene Biomasse bestimmen.
- Geben Sie die Ergebnisse als Mittelwert an ± Standardfehler (SE). Durchführung einer einfaktoriellen ANOVA, gefolgt von Tukeys Test für multiple Vergleiche mit GraphPad Prism Version 10.0, wobei ein P-Wert von < 0,05 als statistisch signifikant angesehen wurde. < 0,05 statistisch signifikant.
HINWEIS: Während der Samensterilisation, Keimung, Inokulation und Pflanzenaufzucht sterile Bedingungen aufrechterhalten.
ACHTUNG: Natriumhypochlorit- und Fungizidlösungen stets unter Verwendung geeigneter persönlicher Schutzausrüstung, einschließlich Handschuhe und Augenschutz, handhaben.
- Herstellung des bakteriellen Inokulums
Ergebnisse
In diesem Protokoll wurde die CRISPR-Cas9-Genomeditierung für M. ciceri CC1192 angepasst, indem der nodC-Locus gezielt angegriffen wurde. Um einen Funktionsverlust zu fördern, wurden sgRNAs so entworfen, dass sie die 5′-proximale Region der nodC-Kodierungssequenz targetieren, wodurch ein Doppelstrangbruch (DSB) im initialen kodierenden Bereich eingeführt wird, um die Translation des kodierten Proteins zu stören (Abbildung 1A).
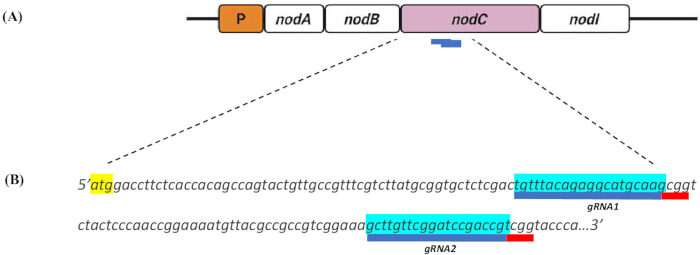
Abbildung 1. Gestaltung von einzelsträngigen Leit-RNAs (sgRNAs), die auf das nodC-Lokus in Mesorhizobium ciceri abzielen. (A) Schematische Darstellung des M. ciceri nodC-Lokus mit den Positionen der beiden 20 bp langen sgRNAs, die für die CRISPR-Cas9-vermittelte Targeting konzipiert wurden. Die sgRNA-Targetsequenzen sind blau dargestellt. (B) Nukleotidsequenzen von sgRNA1 und sgRNA2, die auf das nodC-Lokus abzielen. Das benachbarte Protospacer-Motiv (PAM; 5′-NGG-3′) ist rot markiert, und der Startcodon (ATG) der nodC-Translation ist gelb hervorgehoben. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Zwei 20 bp lange Zielsequenzen wurden unmittelbar upstream einer 5′-NGG-3′-PAM-Sequenz identifiziert (Abbildung 1B). Eine In-silico-Analyse dieser in Frage kommenden sgRNAs mithilfe des Algorithmus von Hsu et al.19 ergab Spezifitätsbewertungen von 100, was auf eine hohe vorhergesagte Zielgenauigkeit hinweist, wobei keine signifikante Komplementarität an Off-Target-Stellen im Genom von M. ciceri nachgewiesen wurde. Geringfügige Unterschiede zeigten sich bei den vorhergesagten On-Target-Effizienzbewertungen der ausgewählten sgRNAs (Tabelle 3), die die Auswahl der Guide-RNAs für die nachfolgende experimentelle Evaluierung beeinflussten.
| Targetposition (bp) | Strang | sgRNA-Sequenz (5′ 3′) | PAM | Spezifitätsbewertung | Effizienzbewertung | |
| 77 | + | TGTTTACAGAGGCATGCAAG | CGG | 100 | 43,58 | |
| 139 | + | GCTTGTTCGGATCCGACCGT | TGG | 99,7 | 47,63 | |
Tabelle 3: Kandidaten für einzelne Leit-RNAs (sgRNAs), entworfen für die CRISPR-Cas9-vermittelte Bearbeitung des nodC-Gens in Mesorhizobium ciceri. Die Kandidaten-sgRNAs wurden mit dem Benchling CRISPR Guide Design Tool unter Verwendung von Bradyrhizobium diazoefficiens USDA 110 als Referenzgenom entworfen. Die Guides wurden nach vorhergesagter Spezifität und Effizienzwerten für den Zielort bewertet, und jene, die Sequenzen in der Nähe des nodC-Translationsstartcodons ansteuern und das erforderliche NGG-Protospacer-angrenzende Motiv (PAM) für Streptococcus pyogenes Cas9 (SpCas9) enthalten, wurden ausgewählt.
Um die HDR- und fluoreszenzbasierte Analyse von mutmaßlichen Mutanten zu erleichtern, wurde ein HDR-Kassette unter Verwendung des pUC18-Klonierungsvektors zusammengestellt (Abbildung 2). Die gfp-Reporterkassette wurde durch Restriktionsverdau mit SacI und KpnI aus pRJPaph-bjGFP ausgeschnitten und in das linearisierte pUC18-Grundgerüst ligiert (Abbildung 2A). Nach der Transformation in E. coli wurden mutmaßliche positive Klone mittels Blau-Weiß-Screening identifiziert. Die Integration des gfp-Einfügestücks in das pUC18-Grundgerüst wurde anschließend durch PCR-Amplifikation mit genspezifischen Primern bestätigt, wobei in positiven Klonen das erwartete 500 bp große Amplikon erzeugt wurde (Abbildung 2A).
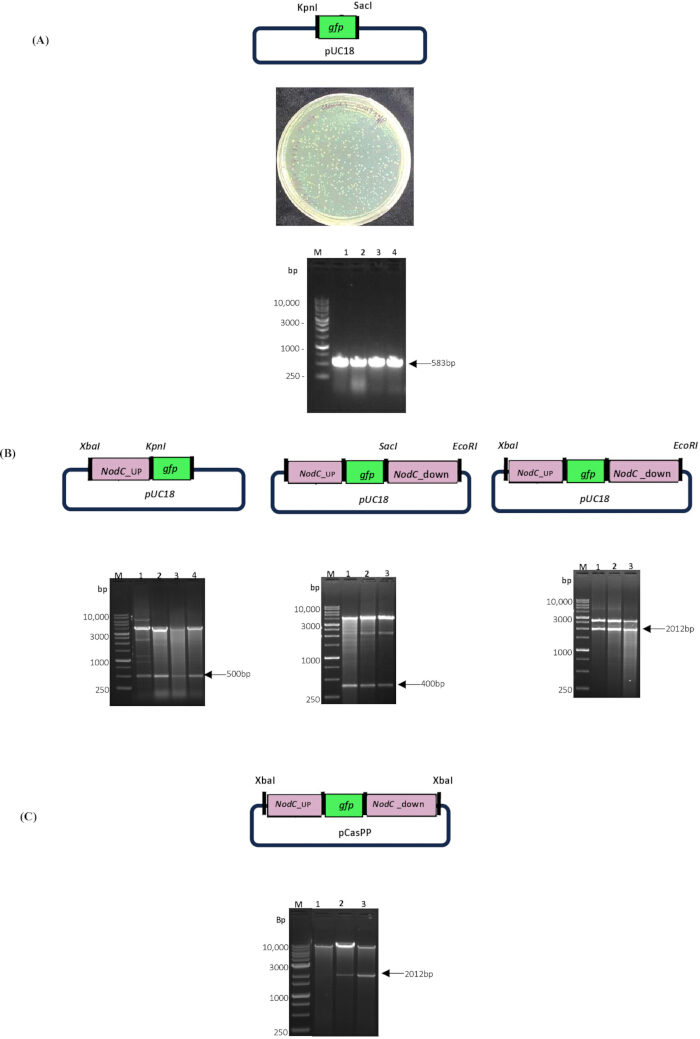
Abbildung 2. Konstruktion des CRISPR-Cas9-Homologie gerichteten Reparatur-(HDR-)Systems zur nodC-Disruption. (A) Konstruktion und Validierung des pUC18-gfp-Zwischenplasmids. Das obere Panel zeigt die Plasmidkarte von pUC18-gfp, die durch Einfügung der grün fluoreszierenden Protein-gfp-Kassette in das pUC18-Grundgerüst entstanden ist. Das mittlere Panel zeigt repräsentative Kolonien nach der Blau-Weiß-Screening-Methode. Das untere Panel zeigt die Validierung mittels Kolonie-Polymerase-Kettenreaktion (PCR) unter Verwendung des Primerpaares BjGFP_BP_F1 und BjGFP_BP_R2. (B) Sequenzielle Assemblierung der HDR-Vorlage im pUC18-Grundgerüst. Plasmidkarten und Restriktionsverdauungsanalysen bestätigen die Einfügung des upstream liegenden Homologiearms (UHA), des downstream liegenden Homologiearms (DHA) sowie der vollständigen UHA-gfp-DHA-HDR-Kassette. (C) Klonierung und Validierung der UHA-gfp-DHA-HDR-Kassette in den pCasPP-CRISPR-Cas9-Vektor. Das obere Panel zeigt die endgültige Plasmidkarte von pCasPP-HDR, das untere Panel zeigt die Restriktionsverdauung zur Bestätigung der Einfügung der HDR-Kassette. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Der HDR-Konstrukt wurde anschließend durch Einführung von nodC-Homologiem Armen, die die gfp-Kassette flankieren, zusammengesetzt. Ein 500 bp langer UHA und ein 400 bp langer DHA, die benachbart zur vorhergesagten Cas9-Schnittstelle positioniert waren, wurden nacheinander durch Restriktionsverdauung und Ligierung in den pUC18-gfp-Konstrukt kloniert (Abbildung 2B). Die Zusammensetzung der UHA-gfp-DHA-Kassette wurde durch Restriktionsverdauungsanalyse bestätigt, die das erwartete 2012 bp große Fragment ergab (Abbildung 2B). Die vollständige HDR-Kassette wurde anschließend in den breitwirksamen CRISPR-Vektor pCasPP subkloniert (Abbildung 2C). Die Restriktionsverdauungsanalyse bestätigte die Integrität des endgültigen Konstrukts und die erfolgreiche Zusammenstellung des Genom-Editierungs-Übertragungsvektors für M. ciceri (Abbildung 2C).
Die biparentale Paarung wurde zwischen dem Donor E. coli S17-1λpir und dem Rezipienten M. ciceri-Stamm durchgeführt, um den pCasPP-gRNA-HDR-Konstrukt in M. ciceri einzubringen (Abbildung 3A). Abbildung 3B veranschaulicht die Organisation des nod-Operons und den vorhergesagten Austausch des nodC-Locus durch die gfp-Kassette mittels homologer Rekombination unter Verwendung der HDR-Vorlage. Transkonjugante Kolonien wurden anfänglich durch GFP-Fluoreszenz-Screening nach der biparentalen Paarung identifiziert (Abbildung 3B und 3C). Mehr als 80 % der gewonnenen Kolonien zeigten GFP-Fluoreszenz mit gRNA2, und mehr als 65 % der Kolonien wiesen Fluoreszenz nach Einführung von gRNA1 auf (Abbildung 3C). Da das alleinige Fluoreszenz-Screening nicht zwischen plasmidvermittelter GFP-Expression und erfolgreicher genomischer Integration unterscheiden kann, wurde eine nachgeschaltete molekulare Validierung durchgeführt, um die lokspezifische Insertion der Reporterkassette zu bestätigen.
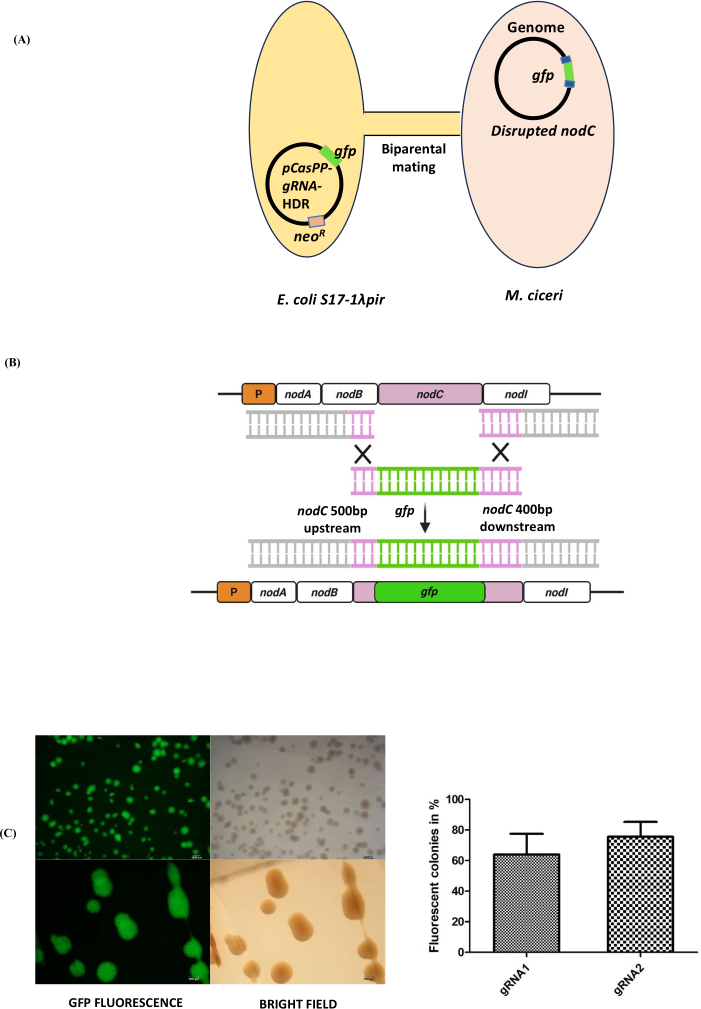
Abbildung 3. CRISPR-Cas9-vermittelte Störung des nodC-Lokus in Mesorhizobium ciceri. (A) Schematische Darstellung der biparentalen Kopplung, die verwendet wurde, um den pCasPP-gRNA-HDR-Konstrukt von Escherichia coli S17-1λpir Donorzellen in M. ciceri Empfängerzellen zu übertragen. (B) Diagramm, das die homologieabhängige Reparatur (HDR)-vermittelte Ersetzung des nodC-Lokus durch die gfp-Kassette nach CRISPR-Cas9-Spaltung veranschaulicht. Die HDR-Vorlage enthält etwa 500 bp upstream und 400 bp downstream liegende Homologiemotive, die die gfp-Kassette flankieren. (C) Fluoreszenzbasierte Screening-Untersuchung von transkonjugierten M. ciceri-Kolonien. Repräsentative Fluoreszenz- und Hellfeld-Stereomikroskopiebilder von GFP-positiven Kolonien werden zusammen mit dem Prozentsatz der gewonnenen fluoreszierenden Transkonjuganten nach biparentaler Kopplung unter Verwendung von Konstrukten, die sgRNA1 oder sgRNA2 enthalten, gezeigt. Fehlerbalken stellen die Standardabweichung dar. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Um die Integration der gfp-Kassette an der nodC-Locusstelle zu überprüfen, wurden repräsentative GFP-positive Kolonien einer PCR-Analyse unterzogen. Die Amplifikation des genomischen Bereichs, der nodB und nodC umfasst, ergab bei den bearbeiteten Klonen ein 1511 bp langes Fragment, was mit der Integration der Reporterkassette übereinstimmt, während der Wildtyp (WT)-Stamm ein 430 bp langes Amplikon erzeugte (Abbildung 4A). Die PCR-Amplifikation unter Verwendung gfp-spezifischer und nodC-flankierender Primer erzeugte bei den bearbeiteten Klonen ein charakteristisches 997 bp langes Fragment, während im WT-Kontrollstamm keine Amplifikation nachweisbar war, was für eine lokspezifische Insertion spricht. Die Orientierung der Reporterkassette wurde mittels Sanger-Sequenzierung bestätigt. Zusätzlich wurde die GFP-Expression in den bearbeiteten Stämmen mittels RT-qPCR analysiert, wobei eine erhöhte Anreicherung von GFP-Transkripten im Vergleich zum WT-Stamm festgestellt wurde (Abbildung 4B). Die Expressionswerte wurden nach der 2−ΔΔCt-Methode berechnet und auf das Referenzgen 16s normalisiert, wobei der WT-Stamm als Kontrolle diente. Die Daten zeigen den Mittelwert ± SD aus drei biologischen Wiederholungen (n = 3). Die statistische Signifikanz wurde mittels einfaktorieller ANOVA gefolgt von Dunnetts Test gegenüber der WT-Kontrolle ermittelt.
Die aktuelle Einschränkung der Studie ist das Fehlen eines Kontrollvektors, beispielsweise eines leeren gRNA-pCasPP-HDR, um den Basis-Rekombinationskoeffizienten zu bestimmen. Zukünftige Studien sollten einen solchen Kontrollvektor einbeziehen.
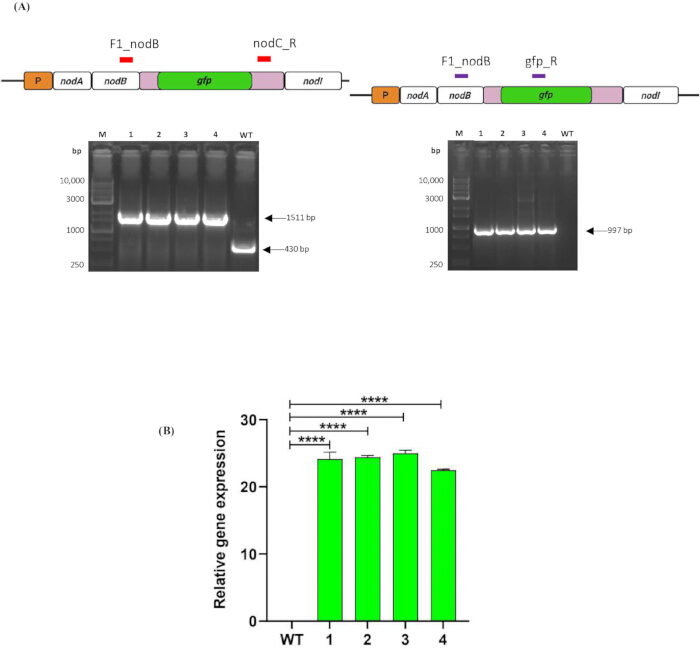
Abbildung 4. Molekulare Validierung von ΔnodC Mesorhizobium ciceri-Mutanten. (A) PCR-basierte Bestätigung der nodC-Unterbrechung. Das linke Panel zeigt die Amplifikation unter Verwendung des Primerpaares F1_nodB und nodC_R. Lane M, DNA-Ladder; Lanes 1–4, ΔnodC M. ciceri-Mutanten; Lane WT, Wildtyp M. ciceri. Das rechte Panel zeigt die Amplifikation unter Verwendung des Primerpaares F1_nodB und gfp_R. Lane M, DNA-Ladder; Lanes 1–4, ΔnodC M. ciceri-Mutanten; Lane WT, Wildtyp M. ciceri. Die erwarteten Amplikonlängen sind angegeben. (B) Relative Expression des grünen Fluoreszenzproteins (GFP) in ΔnodC M. ciceri-Mutanten, bestimmt mittels reverser Transkription und quantitativer Polymerase-Kettenreaktion (RT-qPCR). Die Genexpression wurde auf das Referenzgen 16S ribosomale RNA (16S rRNA) von M. ciceri normalisiert und relativ zur Wildtypkontrolle (WT) nach der 2^−ΔΔCt-Methode ausgedrückt. Die Fehlerbalken stellen die Standardabweichung dar. Die statistische Signifikanz wurde im Vergleich zur WT-Kontrolle ermittelt. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Die biologischen Auswirkungen der nodC-Störung wurden mittels Infektionsassays an Kichererbsen untersucht. Pflanzen, die mit dem Wildtyp (WT) von M. ciceri inokuliert wurden, bildeten sichtbare Wurzelknöllchen aus, während Pflanzen, die mit ΔnodC M. ciceri inokuliert wurden, eine deutliche Verminderung oder Abwesenheit von Knöllchen zeigten (Abbildung 5A). Die nicht-inokulierten Kontrollpflanzen blieben knöllchenfrei, was die Aufrechterhaltung steriler Versuchsbedingungen bestätigt (Abbildung 5A). Die quantitative Analyse pflanzlicher Wachstumsparameter zeigte weitere Unterschiede zwischen den mit WT- und ΔnodC M. ciceri inokulierten Pflanzen, einschließlich Wurzellänge, frische Wurzelmasse, trockene Wurzelmasse, Sprosslänge, frische Sprossmasse, trockene Sprossmasse und Knöllchenanzahl (Abbildung 5B). Die mit WT inokulierten Pflanzen wiesen eine höhere Knöllchenanzahl sowie verbesserte wachstumsassoziierte Parameter im Vergleich zu den mit ΔnodC M. ciceri inokulierten und den nicht-inokulierten Kontrollpflanzen auf. Diese Ergebnisse stimmen mit einer Störung der nodC-assoziierten Knöllchenbildungsfunktion überein und belegen die Anwendbarkeit dieses auf CRISPR-Cas9 basierenden Arbeitsablaufs für funktionelle Genomanalysen in M. ciceri. Quantitative Phänotypdaten der Pflanzen wurden ausgewertet, um Unterschiede zwischen den Behandlungsgruppen zu vergleichen. In die Analyse gingen insgesamt 90 biologische Wiederholungen ein (n = 30 Pflanzen pro Behandlungsgruppe). Die Daten werden als Mittelwert ± Standardabweichung (SD) dargestellt. Die statistische Signifikanz wurde mittels einfaktorieller Varianzanalyse (ANOVA) gefolgt von Tukeys post-hoc-Test für multiple Vergleiche bewertet. Unterschiede wurden als statistisch signifikant angesehen bei P < 0,05.
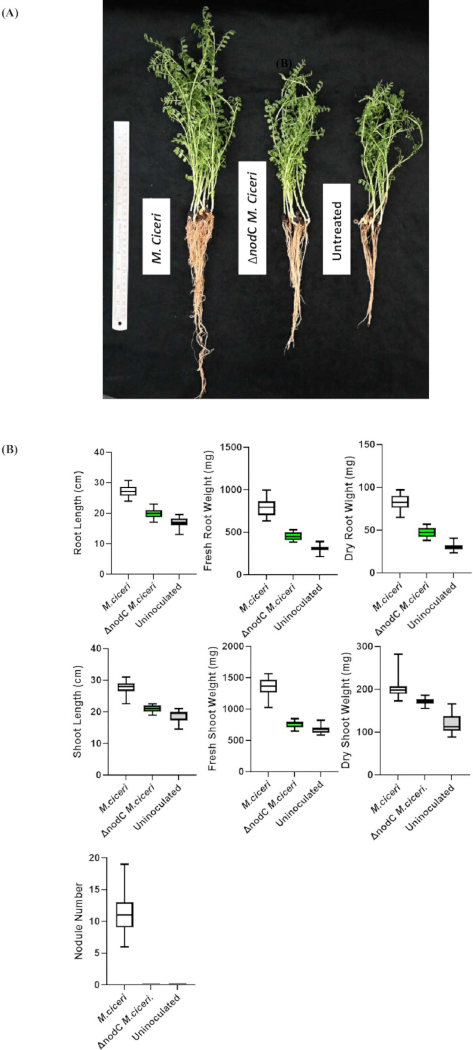
Abbildung 5. Funktionsüberprüfung von ΔnodC Mesorhizobium ciceri-Mutanten mittels einer Kichererbsen-Infektionsassay. (A) Vertretende Kichererbsen-(Cicer arietinum)-Pflanzen 20 Tage nach Inokulation mit dem Wildtyp M. ciceri, ΔnodC M. ciceri oder unbeimpften Kontrollen. (B) Quantitative Analyse von Pflanzenwachstums- und Knöllchenbildungsparametern, einschließlich Wurzellänge, frische Wurzelmasse, trockene Wurzelmasse, Sprosslänge, frische Sprossmasse, trockene Sprossmasse und Knöllchenanzahl. Die Daten werden für Pflanzen dargestellt, die mit dem Wildtyp M. ciceri, ΔnodC M. ciceri oder unbeimpften Kontrollen inokuliert wurden. Die Fehlerbalken zeigen die Standardabweichung an. Die statistische Signifikanz wurde mittels einfaktorieller Varianzanalyse (ANOVA) gefolgt von Tukeys Test für multiple Vergleiche bestimmt. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Zusatzdatei 1. Detailliertes Protokoll zur Herstellung und Validierung chemisch kompetenter Escherichia coli-Zellen. Diese Zusatzdatei enthält das vollständige Verfahren zur Herstellung und Validierung chemisch kompetenter Escherichia coli DH5α- und E. coli S17-1λpir-Zellen, einschließlich der Vorbereitung der Bakterienkultur, der Induktion der Kompetenz, der Zellernte, des Waschens mit CaCl₂–Glycerol-Puffer, der Aliquotierung, der Kryokonservierung und der Validierung durch Testung der Transformations-Effizienz. Ebenso enthalten sind kritische Qualitätskontrollmaßnahmen, Lagerungsempfehlungen und Akzeptanzkriterien für die Kompetenz. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 2. Detaillierte Anleitung zur Konstruktion von homologiegerichteten Reparatur-(HDR)-Vorlagen und zum Zusammenbau von CRISPR-Cas9-Genom-Editierungsvektoren. Diese Zusatzdatei enthält ausführliche Verfahren zur Entfernung der grün fluoreszierenden Protein-(GFP)-Kassette, zur Konstruktion des pUC18-gfp-Zwischenplasmids, zur Amplifikation und Klonierung der upstream- und downstreamliegenden Homologiemarker, zum Zusammenbau der vollständigen homologiegerichteten Reparatur-(HDR)-Vorlage, zur Herstellung von pCasPP-Führungs-RNA-(gRNA)-Vektoren, zum Einbau der HDR-Vorlagen in CRISPR-Cas9-Plasmide, zur fluoreszenzbasierten Klon-Screening sowie zur Validierung rekombinanter Plasmide mittels Restriktionsanalyse und Sanger-Sequenzierung. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 3. Detaillierte Anleitung zur biparentalen Paarung und Erzeugung von GFP-markierten Mesorhizobium ciceri-Transkonjuganten. Diese Zusatzdatei beschreibt die Vorbereitung der Donor- und Rezipientenstämme, die biparentale Paarung mittels Membranfilter, die Wiederherstellung und antibiotische Selektion der Transkonjuganten, Verfahren zur Plasmideliminierung, die fluoreszenzbasierte Screening-Methode für rekombinante Kolonien, die molekulare Bestätigung der genomeditierten Stämme sowie die kurz- und langfristige Lagerung der bestätigten GFP-positiven M. ciceri-Transkonjuganten. Detaillierte Kulturbedingungen, Paarungsparameter und Selektionsverfahren werden angegeben. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Die Etablierung eines CRISPR-Cas9-Genom-Editier-Systems in M. ciceri behebt eine wesentliche technische Einschränkung bei der genetischen Manipulation dieses für die Landwirtschaft wichtigen stickstofffixierenden Symbionten. Durch die Unterbrechung des nodC-Lokus unter Verwendung eines gfp-Reporters und HDR liefert dieser Arbeitsablauf einen fluoreszenzgestützten Rahmen für gezielte genomische Modifikationen in M. ciceri.
Herkömmliche Ansätze zur genetischen Manipulation bei Rhizobien stützten sich hauptsächlich auf Tn5-basierte zufällige Mutagenese oder sacB-vermittelten allelischen Austausch19,26,27. Obwohl diese Methoden weiterhin von Wert sind, sind sie arbeitsintensiv, erfordern oft mehrere Runden der Gegenselektion und können antibiotikaresistente Marker im Genom hinterlassen, was nachfolgende Bearbeitungsschritte erschwert. Im Gegensatz dazu bietet die CRISPR-Cas9-vermittelte Genomeditierung eine gezieltere und effizientere Alternative für die genomische Ingenieurtechnik. Kürzlich veröffentlichte Studien berichteten über CRISPR-vermittelte Baseneditierung und Cas12e-basierte Systeme in S. meliloti, um die mit Cas9 assoziierte Toxizität zu verringern12,13, während die dCas9-vermittelte transkriptionelle Repression in R. etli untersucht wurde11. Nach unserem Wissen stellt diese Studie eine der ersten Anwendungen der CRISPR-Cas9-vermittelten chromosomalen Disruption in M. ciceri dar. Das Protokoll beinhaltet die durch sgRNA gesteuerte gezielte Bearbeitung, die biparentale Plasmidübertragung und die HDR-vermittelte Rekombination für die lokusspezifische Editierung. Die Integration des gfp-Reporters in die HDR-Kassette ermöglicht zudem eine schnelle, fluoreszenzbasierte Auswahl mutmaßlich editierter Kolonien und reduziert so die Anzahl der Kolonien, die einer nachgeschalteten molekularen Validierung bedürfen.
Mehrere Faktoren waren wichtig für die erfolgreiche Implementierung des Workflows. Die Auswahl von sgRNAs mit hoher vorhergesagter Spezifität minimierte potenzielle Off-Target-Effekte innerhalb des M. ciceri-Genoms, während die Aufrechterhaltung der Integrität der Homologiemarker die Effizienz der HDR-vermittelten Rekombination unterstützte. Zudem verbesserte die Optimierung der Wachstumsbedingungen von Donator und Rezipient während der biparentalen Paarung die Isolierung der Transkonjuganten. Eine fluoreszenzbasierte Screening-Methode ermöglichte die schnelle Identifizierung von mutmaßlichen Mutanten; dennoch war eine molekulare Validierung mittels PCR und Sanger-Sequenzierung erforderlich, um die lokusspezifische Integration des Reporterkassetten zu bestätigen. Künftige Studien könnten einen leeren-gRNA-pCasPP-HDR-Vektor als Kontrolle nutzen, um den Basis-Rekombinationskoeffizienten zu quantifizieren.
Über methodische Fortschritte hinaus könnte diese Plattform zukünftige Untersuchungen zur symbiotischen Signalübertragung und funktionellen Genomik in mit Kichererbsen assoziierten Rhizobien unterstützen28. Die Kichererbse (Cicer arietinum L.) stellt eine weltweit bedeutende Leguminosenkultur und einen wichtigen Bestandteil nachhaltiger landwirtschaftlicher Systeme dar29,30. Der in dieser Studie erzeugte ΔnodC M. ciceri-Stamm bietet einen potenziell nützlichen genetischen Hintergrund für die Untersuchung der Wirt-Mikrobe-Verträglichkeit sowie der mit der Knöllchenbildung assoziierten Signalwege. Frühere Studien legen nahe, dass sRNAs als regulatorische Effektoren während der frühen Wurzelknöllchensymbiose fungieren31. Folglich könnte der hier beschriebene, knotenbildungsunfähige ΔnodC M. ciceri-Stamm zukünftige Forschungsarbeiten zu den molekularen Mechanismen der Rhizosphärenkommunikation und der stickstofffixierenden Symbiose erleichtern.
Offenlegungen
Die Autoren erklären, dass keine konkurrierenden finanziellen Interessen oder Interessenkonflikte bestehen.
Danksagungen
Diese Arbeit wird durch das Department of Biotechnology (DBT)-MK Bhan-Stipendium HRD-16016/15/2023-AFS-DBT für Dr. Nandita Pasari unterstützt. Diese Arbeit wird außerdem durch ein Grundlagenstipendium unterstützt, das Dr. Senjuti Sinharoy vom National Institute of Plant Genome Research, Neu-Delhi, Indien, gewährt wurde.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Agarose | Genetix | PG-40005 | Gelelektrophorese |
| Aluminiumfolie | Rolia’s | GF83048115 | Allgemeine Laboranwendung |
| Bakteriologisches Agar | HiMedia | GRM026 | Mediumzubereitung |
| Benchling CRISPR-Anleitungs-Design-Plattform | Benchling | N/V | gRNA-Design |
| Borsäure | HiMedia | PCT0102 | Zubereitung der McKnight’s-Lösung |
| Borosilikatglas-Konischkolben | Sigma | CLS5100500 | Kulturzubereitung |
| Borosilikatglas-Röhrchen | Sigma | DKW73500-1075 | Kulturzubereitung |
| Calciumchlorid-Dihydrat | HiMedia | MB034 | Zubereitung kompetenter Zellen |
| Calciumsulfat-Dihydrat | HiMedia | GRM328 | Zubereitung der McKnight’s-Lösung |
| Carbenicillin-Disodium | Duchefa Biochemie | DUC-C0109.005-18 | Verwendung bei 100 µg/mL |
| cDNA-Synthese-Kit | Thermo Fisher Scientific | AB1543A | cDNA-Synthese |
| Folie zum Abdecken | OA | 10954049 | Allgemeine Laboranwendung |
| Klonierungs-Kit/T4-DNA-Ligase | Thermo Fisher Scientific | K1422 | Ligationsreaktionen |
| Congo-Rot | HiMedia | 573-58-0 | Arbeiten mit mikrobiellen Kulturen |
| Kupfer(II)-sulfat-Pentahydrat | HiMedia | PCT0104 | Zubereitung der McKnight’s-Lösung |
| Kulturröhrchen | Borosil | 9800U08 | Kultivierung der primären Bakterienkultur; 15 cm × 2,5 cm |
| Digitaler pH-Meter | Eutech Instruments | EC PH TUTOR DS | pH-Einstellung |
| Dikaliumphosphat | HiMedia | TC596M | YMB-Zubereitung |
| DNA-Ladder | BIO-HELIX | DM015-R500 | Gelelektrophorese |
| DNase-Entfernungskit | Invitrogen | AM1907 | Entfernung von DNA aus isolierter RNA |
| dNTP-Mix | Thermo Scientific | R0181 | PCR-Amplifikation |
| Äthanol | Sigma-Aldrich | 1.00983.0511 | Verwendung bei 75 % |
| Äthidiumbromid | Sigma-Aldrich | E1510 | Färbung von DNA-Gele |
| FastAP thermosensitive alkalische Phosphatase | Thermo Fisher Scientific | EF0651 | Dephosphorylierung des Vektors während der Klonierung |
| FastDigest-Puffer | Thermo Fisher Scientific | B64 | Restriktionsverdau |
| Eisenchlorid, wasserfrei | HiMedia | TC583 | Zubereitung der McKnight’s-Lösung |
| Fluoreszenz-Stereomikroskop | Nikon | SMZ25 | GFP-Screening |
| Fungizid, Bavistin | Crystal Crop Protection | Bavistin Carbendazim 50% WP | Saatgutbehandlung |
| Gel-Extraktionskit | QIAGEN | 28704 | DNA-Reinigung |
| Glycerin | Thermo Fisher Scientific | Q24505 | Kompetente Zellen/Glycerin-Stämme |
| Wachstumsinkubator mit Orbitalschüttler | MRC | LOM-150 | Bakterienkultur |
| Handschuhe | Kimtech | 97612 | Persönliche Schutzausrüstung |
| HEPES | HiMedia | MB016 | Hybridisierung von Oligonukleotiden |
| IPTG | G Biosciences | RC1113D | Blau-Weiß-Screening |
| Laminar-Flow-Arbeitsplatz | Biolink | BL-H1300 | Sterile Handhabung |
| LB-Agar | HiMedia | M1151 | Bakterienkulturplatten |
| LB-Brühe | HiMedia | G1245 | Bakterienkultur |
| Magnesiumsulfat | HiMedia | GRM1281-500G | YMB-Zubereitung |
| Magnesiumsulfat-Heptahydrat | HiMedia | PCT0008 | Zubereitung der McKnight’s-Lösung |
| Mangan(II)-sulfat-Tetrahydrat | Sigma-Aldrich | M3634 | Zubereitung der McKnight’s-Lösung |
| Mannit | HiMedia | MB198 | YMB-Zubereitung |
| McKnight’s-Lösung | Im Labor hergestellt | N/V | Pflanzennährlösung |
| Mikrospitzen, 0,2–10 µL | Tarsons | 521000 | Flüssigkeitshandling |
| Mikrospitzen, 2–200 µL | Tarsons | 521010 | Flüssigkeitshandling |
| Mikrospitzen, 200–1000 µL | Tarsons | 521020X | Flüssigkeitshandling |
| Mikrozentrifugenröhrchen, 0,5 mL | Tarsons | 500000 | Probenhandhabung |
| Mikrozentrifugenröhrchen, 1,5 mL | Tarsons | 500010 | Probenhandhabung |
| Mikrozentrifugenröhrchen, 2,0 mL | Tarsons | 500020 | Probenhandhabung |
| Molybdänsäure | Sigma-Aldrich | 232084 | Zubereitung der McKnight’s-Lösung |
| NanoDrop-Spektrophotometer | Thermo Fisher Scientific | 13-400-519 | DNA/RNA-Quantifizierung |
| Neomycin | Duchefa Biochemie | M0135 | Verwendung bei 50 µg/mL |
| Nukleasefreies Wasser | HiMedia | ML064-100ML | Anwendung in der Molekularbiologie |
| PCR-Mastermix | Thermo Fisher Scientific | K0171 | 2×-Mastermix |
| PCR-Röhrchenstreifen, 0,2 mL | Tarsons | 610040 | PCR-Setup |
| Petri-Schalen, 90 mm | PSC | 2041 | Agarplatten |
| Pipette, 0,1–2,5 µL | Eppendorf | N10178M | Flüssigkeitshandling |
| Pipette, 0,5–10 µL | Eppendorf | H40069L | Flüssigkeitshandling |
| Pipette, 2–20 µL | Eppendorf | H30046M | Flüssigkeitshandling |
| Pipette, 10–100 µL | Eppendorf | I00395M | Flüssigkeitshandling |
| Pipette, 20–200 µL | Eppendorf | M38186M | Flüssigkeitshandling |
| Pipette, 100–1000 µL | Eppendorf | N20610M | Flüssigkeitshandling |
| Plasmid-DNA-Extraktionskit | QIAGEN | 12143 | Plasmidisolierung |
| Kaliumchlorid | HiMedia | TC010 | Zubereitung der McKnight’s-Lösung |
| Monokaliumphosphat, wasserfrei | HiMedia | TC011M | Zubereitung der McKnight’s-Lösung |
| PVDF-Membranfilter, 0,22 µm, 47 mm | MilliporeSigma | GVWP04700 | Biparentale Paarung |
| Quantitative Echtzeit-PCR-Maschine | Bio-Rad | CFX96 | RT-qPCR |
| Kühlbare Tischzentrifuge | Eppendorf | 04-987-373 | Zellernte |
| Restriktionsenzym, BbsI | Thermo Fisher Scientific | ER1011 | gRNA-Klonierung |
| Restriktionsenzym, EcoRI | Thermo Fisher Scientific | FD0274 | Klonierung |
| Restriktionsenzym, KpnI | Thermo Fisher Scientific | FD0524 | Klonierung |
| Restriktionsenzym, SacI | Thermo Fisher Scientific | FD1133 | Klonierung |
| Restriktionsenzym, XbaI | Thermo Fisher Scientific | FD0684 | Klonierung |
| RNase-freie DNase | QIAGEN | 79254 | RNA-Reinigung |
| Sand | Ram Surat | Sand | Wachstumssubstrat für Pflanzen |
| Sequenzierer | Applied Biosystems | ABI3730xl DNA Analyzer | Sanger-Sequenzierung |
| SOC-Medium | Im Labor hergestellt | N/V | Transformationsrückgewinnung |
| Natriumchlorid | HiMedia | TC046 | Mediumzubereitung |
| Natriumhydroxid | HiMedia | PCT1325 | HEPES-pH-Einstellung |
| Sterile chirurgische Klinge | Medicare Surgical | 16020 | Gel-Exzision/Gewebehandhabung |
| Sterile Spritze | HMD Dispovan | 10 ml Spritze ohne Nadel | Sterile Filtration |
| Steriler Spritzenfilter, 0,22 µm | Merck Millex Durapore | 12766842 | Filtration zur Sterilisation |
| SYBR Green Mastermix | New England Biolabs | M3003E | RT-qPCR |
| Tetracyclin | Duchefa Biochemie | T01050 | Verwendung bei 5 µg/mL |
| Thermocycler | Applied Biosystems | A24811 | PCR-Amplifikation |
| Papiertuch | Rolia’s | 07AAECR4885K1ZT | Allgemeine Laboranwendung |
| TRIzol-Reagenz | Invitrogen | 15596026 | RNA-Isolierung |
| UV-Durchlichtanalysator | Analytik Jena | TW-43 | Gelvisualisierung |
| UV-Vis-Spektrophotometer | Eppendorf | D30 | OD600-Messung |
| Sichtbare Küvetten | Eppendorf | 30079345 | OD600-Messung |
| Vortex-Mixer | Neuation | iSWIX-VT | Probenmischung |
| X-gal | G Biosciences | RC1233 | Blau-Weiß-Screening |
| Hefeextrakt | HiMedia | RM668-500G | Mediumzubereitung |
| Zinksulfat-Heptahydrat | Sigma-Aldrich | Z0251 | Zubereitung der McKnight’s-Lösung |
Referenzen
- Doudna JA, Charpentier E. The new frontier of genome engineering with CRISPR-Cas9. Science. 2014;346(6213):1258096.
- Jiang W, Bikard D, Cox D, Zhang F, Marraffini LA. RNA-guided editing of bacterial genomes using CRISPR-Cas systems. Nature biotechnology. 2013;31(3):233-9.
- Bertrand C, Thibessard A, Bruand C, Lecointe F, Leblond P. Bacterial NHEJ: a never ending story. Molecular microbiology. 2019;111(5):1139-51.
- Loureiro A, da Silva GJ. Crispr-cas: Converting a bacterial defence mechanism into a state-of-the-art genetic manipulation tool. Antibiotics. 2019;8(1):18.
- Altenbuchner J. Editing of the Bacillus subtilis genome by the CRISPR-Cas9 system. Applied and environmental microbiology. 2016;82(17):5421-7.
- Wang Y, et al. Bacterial genome editing with CRISPR-Cas9: deletion, integration, single nucleotide modification, and desirable “clean” mutant selection in Clostridium beijerinckii as an example. ACS synthetic biology. 2016;5(7):721-32.
- Oh J-H, van Pijkeren J-P. CRISPR–Cas9-assisted recombineering in Lactobacillus reuteri. Nucleic acids research. 2014;42(17):e131-e.
- Cobb RE, Wang Y, Zhao H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS synthetic biology. 2015;4(6):723-8.
- Wanjofu EI, et al. Nodulation and growth promotion of chickpea by Mesorhizobium isolates from diverse sources. Microorganisms. 2022;10(12):2467.
- Haskett T, et al. Complete genome sequence of Mesorhizobium ciceri strain CC1192, an efficient nitrogen-fixing microsymbiont of Cicer arietinum. Genome Announcements. 2016;4(3):10.1128/genomea. 00516-16.
- Bellahsen O, Díaz-Méndez R, Romero D. Genomic engineering in Rhizobium etli: implementation and evaluation of systems based on dCas9. Frontiers in Microbiology. 2025;16:1604430.
- Liu G, et al. An efficient CRISPR/Cas12e system for genome editing in Sinorhizobium meliloti. ACS Synthetic Biology. 2023;12(3):898-903.
- Wang L, Xiao Y, Wei X, Pan J, Duanmu D. Highly efficient CRISPR-mediated base editing in Sinorhizobium meliloti. Frontiers in Microbiology. 2021;12:686008.
- Schäfer A, et al. Small mobilizable multi-purpose cloning vectors derived from the Escherichia coli plasmids pK18 and pK19: selection of defined deletions in the chromosome of Corynebacterium glutamicum. Gene. 1994;145(1):69-73.
- Rütering M, et al. Tailor-made exopolysaccharides—CRISPR-Cas9 mediated genome editing in Paenibacillus polymyxa. Synthetic Biology. 2017;2(1):ysx007.
- Ledermann R, Bartsch I, Remus-Emsermann MN, Vorholt JA, Fischer H-M. Stable fluorescent and enzymatic tagging of Bradyrhizobium diazoefficiens to analyze host-plant infection and colonization. Molecular Plant-Microbe Interactions. 2015;28(9):959-67.
- Göttfert M. Regulation and function of rhizobial nodulation genes. FEMS microbiology reviews. 1993;10(1-2):39-63.
- Kant C, Pradhan S, Bhatia S. Dissecting the root nodule transcriptome of chickpea (Cicer arietinum L.). PLoS One. 2016;11(6):e0157908.
- Hsu PD, et al. DNA targeting specificity of RNA-guided Cas9 nucleases. Nature biotechnology. 2013;31(9):827-32.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nature biotechnology. 2016;34(2):184-91.
- Norrander J, Kempe T, Messing J. Construction of improved M13 vectors using oligodeoxynucleotide-directed mutagenesis. Gene. 1983;26(1):101-6.
- Simon R, Priefer U, Pühler A. A broad host range mobilization system for in vivo genetic engineering: transposon mutagenesis in gram negative bacteria. Bio/technology. 1983;1(9):784-91.
- Hanahan D, Jessee J, Bloom FR. [4] Plasmid transformation of Escherichia coli and other bacteria. Methods in enzymology. 1991;204:63-113.
- Alexandre A, et al. Natural populations of chickpea rhizobia evaluated by antibiotic resistance profiles and molecular methods. Microbial Ecology. 2006:128-36.
- Weerakkody LR, et al. A rapid, inexpensive and effective method for the efficient isolation of genomic DNA from Gram-negative bacteria. Molecular Genetics and Genomics. 2024;299(1):26.
- Selbitschka W, Niemann S, Pühler A. Construction of gene replacement vectors for Gram− bacteria using a genetically modified sacRB gene as a positve selection marker. Applied microbiology and biotechnology. 1993;38(5):615-8.
- Yadav A, Singh RP, Singh AL, Singh M. Identification of genes involved in phosphate solubilization and drought stress tolerance in chickpea symbiont Mesorhizobium ciceri Ca181. Archives of microbiology. 2021;203(3):1167-74.
- Dicenzo GC, et al. Multidisciplinary approaches for studying rhizobium–legume symbioses. Canadian Journal of Microbiology. 2019;65(1):1-33.
- Calia C, et al. A bibliometric analysis of chickpea agronomic practices in the world during 45 years of scientific research. Legume Science. 2024;6(1):e219.
- Sandhu J, Tripathi S, Chaturvedi S. Chickpea nutritional status and value chain for sustainable development. Sustainable food value chain development: Perspectives from developing and emerging economies: Springer; 2023. p. 175-83.
- Ren B, Wang X, Duan J, Ma J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 2019;365(6456):919-22.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar