Dieses Protokoll zielt darauf ab, die Entwicklung von Melanomen in Zebrafisch-Xenografts mittels in vivo elektronenparamagnetischer Resonanz (Spektroskopie zur Erkennung und Analyse von Melaninradikalen) zu bewerten und bietet einen neuartigen Ansatz für präklinische Melanomforschung und therapeutische Bewertung.
Methodenartikel
X-Band-Elektronen-Paramagnetische Resonanz zur Überwachung von melaninassoziierten radikalen Veränderungen bei Zebrafisch-Melanom-Xenografts in vivo
In diesem Artikel
Zusammenfassung
Zusammenfassung
Dieses Protokoll präsentiert eine neuartige In-vivo-Anwendung der X-Band-(9,5 GHz) Elektronenparamagnetresonanzspektroskopie zur Überwachung der melaninassoziierten radikalen Dynamik in Zebrafischen (Danio rerio) Melanom-Xenograft-Modellen. Ziel dieser Methode ist es, direkte, labelfreie und quantitative Bewertungen melaninassoziierter Redox-Veränderungen während der embryonalen Entwicklung sowie Tumor-Wirt-Interaktionen in einem physiologisch relevanten Wirbeltiermodell zu ermöglichen.
Durch die Nutzung der intrinsischen paramagnetischen Eigenschaften von Melanin liefert dieser Ansatz komplementäre biochemische Informationen, die mit herkömmlicher fluoreszenzbasierter Bildgebung allein nicht gewonnen werden können. Wichtig ist, dass das detektierte Elektronen-paramagnetische Resonanzsignal den redoxaktiven Anteil des Melaninpolymers widerspiegelt und daher als redoxempfindliche Anzeige dient und nicht als direktes Maß für die Gesamtpigmenthäufigkeit.
Die Methodenleistung wurde durch selektive Detektion von melaninassoziierten Radikalen in pigmentierten Wildtyp-Embryonen, das Fehlen von Signalen bei Albino-Kontrollen, statistisch signifikante Entwicklungsänderungen im normalisierten Elektronen-Paramagnetresonanzsignal über unabhängige biologische Replikate sowie vergleichbare Ergebnisse mit alternativen Probenhaltern und eingefrorenen Proben validiert.
Durch die Kombination von X-Band-Elektronen-Paramagnetresonanzspektroskopie mit Zebrafisch-Xenograft-Modellen bietet dieses Protokoll eine skalierbare, ethisch günstige und übertragbare Plattform für präklinische Melanomforschung, Redoxbiologie-Studien und die Bewertung melanogenesemodulierender Interventionen.
Einleitung
Das übergeordnete Ziel dieser Studie ist es, eine zuverlässige in vivo Methode zur Detektion und Quantifizierung von Melaninradikalen in Zebrafisch-Embryonen (Danio rerio) Xenograft-Modell in Kombination mit X-Band-(9,5 GHz) Elektronen-Pararesonanzspektroskopie zu entwickeln und zu validieren. Dieser Ansatz zielt darauf ab, eine direkte, quantitative Bewertung der melaninassoziierten Redoxprozesse während der Melanomentwicklung und als Reaktion auf pharmakologische Interventionen zu ermöglichen.
Melanin ist eine heterogene Gruppe von Biopolymeren, die für Pigmentierung in Haut, Haaren und Augen bei einer Vielzahl von Organismen verantwortlich ist. Unter seinen Formen spielen Eumelanin und Pheomelanin unterschiedliche Rollen in der Biologie. Eumelanin weist antioxidative und photoprotektive Eigenschaften auf, während Pheomelanin die Bildung reaktiver Sauerstoffspezies (ROS) fördern kann, insbesondere unter UV-Exposition 1,2,3. Sowohl antioxidative als auch prooxidative Wirkungen stehen im Zusammenhang mit der Bildung von Melaninradikalen. Auf molekularer Ebene ist Melanin ein heterogenes, redoxaktives Polymer, das aus indolo- und chinonhaltigen Untereinheiten besteht, die in mehreren physikochemischen Zuständen existieren können, darunter vollständig oxidiertes Chinon, teilweise reduziertes Semichinon und vollständig reduzierte Hydrochinonformen 4,5,6. Die relative Häufigkeit der Semichinon-Radikalspezies ist dynamisch und hängt von lokalen physikochemischen Bedingungen ab, darunter Sauerstoffverfügbarkeit, reaktive Sauerstoffspezies (ROS), Metallionenwechselwirkungen, pH-Wert, Polymerisationsgrad und Melanosomenreifung 7,8,9.
Daher werden Methoden benötigt, die eine quantitative Bewertung dieser Radikalkonzentrationen ermöglichen, um Veränderungen im Redoxzustand von Melanin besser zu verstehen. Beim Melanom trägt die Dysregulation der Melanogenese in Melanozyten zur Initiierung und Progression des Melanomens bei. Diese Dysregulation steht oft im Zusammenhang mit Verschiebungen des Redoxzustands, abhängig von lokalen mikro-umweltbedingten Bedingungen. Dies macht die Melanin-Redoxaktivität zu einem wichtigen Faktor in der Tumorbiologie10. Daher sind Methoden zur direkten Erfassung von Melaninradikalen unerlässlich, um die Pathogenese und die therapeutische Reaktion des Melanoms zu verstehen.
Zebrafisch-Embryonen stellen ein leistungsstarkes In-vivo-Modell zur Untersuchung von Pigmentierung und Melanomen dar. Bis zu 5 Tage nach der Befruchtung (120 Stunden nach der Befruchtung, HPF) werden sie nach der Richtlinie 2010/63/EU nicht als geschützte Tiere eingestuft, was Hochdurchsatz-Experimente ohne formale ethische Genehmigung erlaubt. Schnelle Entwicklung, optische Transparenz und etablierte Protokolle machen Zebrafische äußerst geeignet für toxikologische und pharmakologische Studien11,12. Wichtig ist, dass dieser Fisch bedeutende genetische und physiologische Ähnlichkeiten mit dem Menschen aufweist und wichtige an der Melanogenese beteiligte Signalwege erhaltensind. Während Wildtyp-Zebrafische überwiegend Eumelanin produzieren und als Modell für physiologische Pigmentierung dienen, ermöglichen Xenograft-Modelle – basierend auf der Implantation von Melanomzelllinien, die Eumelanin und Pheomelanin produzieren – die Untersuchung des Tumorprogressions und der Arzneimittelreaktionen bei Säugetieren in einer physiologisch relevanten Mikroumgebung14,15.
Derzeit ist fluoreszenzbasierte Bildgebung die Standardmethode bei Zebrafisch-Melanom-Xenograft-Studien. Dieser Ansatz ermöglicht eine Echtzeitvisualisierung des Tumorwachstums, der Migration und der Behandlungsansprache durch fluoreszierende Farbstoffe, z. B. Dichlordihydrofluoreszein-Diaacetat (DCFDA) oder transgene Linien (Grx1-roGFP2, HyPer)16,17. Fluoreszenztechniken liefern jedoch hauptsächlich morphologische und räumliche Informationen und sind in ihrer Fähigkeit, biochemische und redoxbezogene Prozesse zu erfassen, begrenzt. Zusätzlich können ihre Anzeigen durch Photobleaching, Farbstoffaustritt, Interferenzen durch fluoreszierende Arzneimittelverbindungen und mögliche Veränderungen der Zellphysiologie durch Markierung beeinflusst werden. Entscheidend ist, dass fluoreszenzbasierte Methoden keine direkten Informationen über Melaninradikale oder ihr dynamisches Redoxverhalten liefern.
Die Elektronenparamagnetische Resonanzspektroskopie bietet einen einzigartigen und leistungsstarken analytischen Ansatz, da sie den direkten Nachweis und die Quantifizierung paramagnetischer Spezies, einschließlich stabiler melaninassoziierter Radikale, ermöglicht. Sowohl Eumelanin als auch Pheomelanin enthalten Semichinon-Teile, die charakteristische elektronenparamagnetische Resonanzsignale erzeugen, und der relative Beitrag dieser Signale wurde als Biomarker für den Pigmentstatus und das Melanomprogressionuntersucht 18,19. Wichtig ist, dass nur der redoxaktive Semichinon-Anteil direkt zum detektierten Signal beiträgt, sodass die Elektronenparamagnetresonanzspektroskopie ergänzende Informationen zu herkömmlichen melanogenesebezogenen Assays liefert, wie etwa die Quantifizierung des Melaningehalts, die Tyrosinase-Aktivität oder die Pigmentanalyse. Dementsprechend sollte die Intensität des elektronenparamagnetischen Resonanzsignals als Redox-empfindliche Anzeige des Melanin-Funktionszustands interpretiert werden, beeinflusst von lokalen physikochemischen Bedingungen, und nicht als direktes Maß für die Gesamtpigmenthäufigkeit.
Während die meisten in vivo Elektronenpararesonanzstudien mit L-Band-Systemen durchgeführt wurden (eine Form der Elektronenparamagnetresonanzspektroskopie, die niederfrequente Mikrowellen (etwa 1–2 GHz) zur Untersuchung paramagnetischer Spezies verwendet, insbesondere in größeren Proben, bei denen eine tiefere Signaldurchdringung erforderlich ist), 20 – bietet die X-Band-Elektronenparamagnetresonanz eine höhere spektrale Auflösung und Empfindlichkeit für Proben mit kleinem Volumen, was sie besonders für Zebrafisch-Embryonen geeignet macht. Darüber hinaus verbessern neuere technische Entwicklungen, darunter multiharmonische Detektionssysteme, die Signalqualität erheblich und ermöglichen zuverlässige Messungen in anspruchsvollen (kleinen und stärker hydratisierten) biologischen Proben21,22. Die Größe des X-Band-Resonators entspricht der richtigen Größe für einige Zebrafischembryonen, was in Kombination mit einer höheren Auflösung als beim L-Band-System die Reduzierung der verwendeten Tiere ermöglicht. Das ist besonders wichtig bei der Arbeit mit Xenograft-Modellen.
Trotz dieser Vorteile ist die Anwendung der X-Band-Elektronenparamagnetresonanz auf lebende Zebrafischembryonen und Melanom-Xenografts in diesem Modell weitgehend unerforscht. In-vitro-Studien mit Melanomzelllinien wie B16F10 haben wertvolle Einblicke in die Eigenschaften von Melaninradikalen geliefert; Allerdings fehlt ihnen der komplexe physiologische Kontext eines lebenden Organismus23,24. Insbesondere führt die Mikroumgebung der Zebrafische kritische Faktoren ein – wie Sauerstoffgradienten, Zell-Cell-Interaktionen und dynamische Stoffwechselaktivität –, die das Verhalten von Melaninradikalen erheblich beeinflussen können25,26. Daher besteht ein klarer Bedarf, eine in vivo Methodik zu entwickeln und zu validieren, die eine direkte Messung von Melaninradikalen unter physiologisch relevanten Bedingungen ermöglicht.
In dieser Studie stellen wir ein detailliertes Protokoll zur Anwendung der X-Band-Elektronen-Paramagnetresonanzspektroskopie auf Zebrafischembryonen vor, einschließlich Xenograft-Modelle mit B16F10- und B16F1-Melanomzelllinien. Diese Methode bietet einen ergänzenden Ansatz zur fluoreszenzbasierten Bildgebung, indem sie eine quantitative Bewertung des Melaninradikalgehalts ermöglicht und so Einblicke in die Redoxdynamik ermittelt. Durch die Integration struktureller und räumlicher Informationen aus Fluoreszenztechniken mit biochemischen Erkenntnissen aus der elektronenparamagnetischen Resonanz erhöht diese kombinierte Strategie die analytische Leistungsfähigkeit von Zebrafischmodellen für präklinische Melanomforschungen. Wichtig ist, dass das in diesem Protokoll detektierte Elektronenresonanzsignal den redoxaktiven Anteil des Melaninpolymers widerspiegelt. Dementsprechend sollte die Signalintensität als Redox-empfindliche Anzeige interpretiert werden und nicht als direkte Messung des gesamten Melaningehalts und in Kombination mit dem Gesamtpigmentgehalt als Hinweis auf melaninassoziierte Redoxverschiebungen betrachtet werden. Aufgrund des gesamten Organismus-Messansatzes und der begrenzten Anzahl injizierter Melanomzellen stellt das detektierte Signal in erster Linie globale, melaninassoziierte radikale Veränderungen auf der Ebene des gesamten Zebrafischembryos/der Larve dar, anstatt eines melanomspezifischen Signals, das ausschließlich vom Xenotransplantat stammt. Diese Unterscheidung ist besonders relevant in dynamischen biologischen Systemen, wo Veränderungen im Melaninoxidationszustand unabhängig von Veränderungen der Gesamtpigmentmenge auftreten können.
Protokoll
Zebrafisch-Embryonen (Danio rerio) wurden in dieser Studie bis zu 5 Tage nach der Befruchtung (120 HPF) verwendet. In diesem Entwicklungsstadium gelten Embryonen nach der Richtlinie 2010/63/EU nicht als geschützte Tiere, weshalb Experimente keine formelle Genehmigung durch einen Ethikausschuss benötigen. Dennoch wurden alle Arbeiten gemäß guten Laborpraktiken und institutionellen Richtlinien für die Pflege und Verwendung von Zebrafischen durchgeführt.
1. Herstellung von Reagenzien und Pflege der B16F1- und B16F10-Mausmelanomzelllinien
- Herstellung des vollständigen Mediums
- Fügen Sie 50 ml fetales Rinderserum (FBS) und 5,5 ml Penicillin-Streptomycin-Lösung zu 500 ml Dulbeccos Modified Eagle Medium (DMEM) hinzu.
- Erwärmen Sie das gesamte Medium vor der Anwendung auf 37 °C.
HINWEIS: Verwenden Sie vorgewärmte Lösungen, um die thermische Belastung während der Zellhandhabung zu minimieren.
- Auftauen und Kultur aus gefrorenen Cellen
- Tauen Sie das gefrorene Fläschchen mit Zellen schnell in einem 37 °C Wasserbad auf (~1–2 Min).
- Desinfizieren Sie die Außenseite des Fläschchens mit 70 % Ethanol. Führen Sie alle folgenden Schritte unter aseptischen Bedingungen durch.
- Übertragen Sie die Zellsuspension auf ein 15 ml konisches Rohr mit 9 ml vorgewärmtem vollständigen Medium. Behalte einen kleinen Aliquot der ursprünglichen Suspension für Mycoplasma-Tests.
- Zentrifugiere Zellen in der Zentrifugenröhre bei 200 × g für 5 Minuten bei Raumtemperatur.
- Aspiratieren Sie das Supernatant, um das restliche Dimethylsulfoxid (DMSO; aus dem Gefriermedium) zu entfernen.
- Lassen Sie das Zellpellet in 10 ml frischem und vorgewärmtem Vollmedium wieder suspendieren.
- Zellen werden auf eine ⌀9 cm große Petrischale übertragen und sanft in einer Acht-Bewegung gewirbelt, um die Zellen gleichmäßig zu verteilen.
- Inkubiere Zellen über Nacht bei 37 °C, 5 % CO₂ und ≥95 % Luftfeuchtigkeit.
- Ersetzen Sie das Kulturmedium nach 16–24 Stunden durch frisches, vorgewärmtes, vollständiges Medium.
- Die Inkubation wird fortgesetzt, bis die Zellen >80 % Konfluenz erreichen. Fahren Sie mit der Subkultivierung fort (siehe Schritt 1.3).
HINWEIS: Alternativ zu Petrischalen können sterile Kulturgefäße (z. B. T-Flaschen) verwendet werden. Wenn kleinere Schalen oder Flaschen bevorzugt werden, teilen Sie die Zellen proportional, um die gleiche relative Kulturoberfläche zu erhalten.
- Subkultivierung von Zellen
- Entferne das Kulturmedium aus der Zellmonoschicht. Behalte einen kleinen Aliquot für Mycoplasma-Tests.
- Gib 10 ml phosphatgepufferte Kochsalzlösung (PBS) in die Kulturschale.
- Lassen Sie das PBS 3–5 Minuten bei Raumtemperatur auf den Zellen ruhen, um die vollständige Entfernung der Serumproteine zu ermöglichen.
- Aspirieren Sie das PBS vorsichtig und achten Sie darauf, die Zellen nicht zu lösen.
- Gib 1 ml Zelldissoziationsreagenz hinzu und inkubiere bei 37°C, bis die Zellen sich aufrunden und ablösen (nicht länger als 5 Minuten Inkubationszeit).
- Fügen Sie 1 ml vorgewärmtes vollständiges Medium hinzu, um die enzymatische Dissoziation zu stoppen.
- Pipettieren Sie die Zellsuspension vorsichtig mehrmals auf und ab, um eine Einzelzellsuspension zu erhalten.
- Die Zellen werden in eine neue Petrischale oder T-Kolben mit einem vorgewärmten, vollständigen Medium im Teilverhältnis von 1:4 bis 1:10 übertragen. Sanft in einer Acht-Bewegung kreisen, um die Zellen gleichmäßig zu verteilen.
- Inkubieren Sie die Zellen bei 37 °C, 5 % CO₂ und ≥95 % Luftfeuchtigkeit.
HINWEIS: Verwenden Sie vorgewärmte Lösungen (37 °C) und führen Sie alle Verfahren unter aseptischen Bedingungen in einem biologischen Sicherheitsschrank der Klasse II unter Verwendung geeigneter persönlicher Schutzausrüstung durch. Subkulturzellen alle 2–3 Tage oder bei 80–90 % Konfluenz. Verwenden Sie Niedrigpassagezellen (
- Kryokonservierung (Banking) von Zellen
- Verwenden Sie gesunde, exponentiell wachsende Zellen (~70%–80% Confluent).
- Entnehmen Sie die Zellen wie in den Schritten 1.3.1–1.3.7 beschrieben und übertragen Sie die Zellsuspension auf ein 15-mL konisches Rohr.
- Zentrifugiere die Zellen bei 300 × g für 2 Minuten.
- Entfernen Sie das Supernatant und suspendieren Sie die Zellen in einem Kryokonservierungsmedium bei 1–5 × 10⁶ Zellen /ml.
- Aliquot-Zellsuspension in beschriftete Kryoviale (Zelllinie, Durchgangsnummer, Datum).
- Fläschchen über Nacht bei -80°C mit einem kontrollierten Gefrierbehälter einfrieren.
- Alternativ verwenden Sie eine verschachtelte Isolierungsmethode: Die Phiolen werden in ein kleines Styroporgestell für 1,5/2,0 mL Röhren eingesetzt, das sich dann in einer größeren Polystyrolbox befindet.
HINWEIS: Diese Doppelschicht-Konfiguration ist darauf ausgelegt, die thermische Pufferung bereitzustellen, die für eine allmähliche Kühlgeschwindigkeit erforderlich ist, was für eine erfolgreiche Kryokonservierung entscheidend ist.
HINWEIS: Kryogene Materialien müssen mit isolierten Handschuhen und Gesichtschutz behandelt werden. Befolgen Sie institutionelle Richtlinien für die Behandlung von flüssigem Stickstoff und gefährlichen Abfällen.
- Alternativ verwenden Sie eine verschachtelte Isolierungsmethode: Die Phiolen werden in ein kleines Styroporgestell für 1,5/2,0 mL Röhren eingesetzt, das sich dann in einer größeren Polystyrolbox befindet.
- Nach der Übernachtung bei -80 °C werden die Phiolen in flüssigen Stickstoff umgewandelt, um sie langfristig zu lagern. Kryoviale können bei -80 °C zur kurzfristigen Lagerung gelagert werden.
- Mycoplasma-Tests
- Sammeln Sie während des Auftauens, Subkultivierens oder der Kryokonservierung ein kleines Aliquot von Kulturmedium oder Zellsuspension.
- Beurteilen Sie die Mykoplasma-Kontamination mit einem validierten PCR-basierten oder enzymatischen Mycoplasma-Detektionskit gemäß den Anweisungen des Herstellers.
- Verwenden Sie Mykoplasma-negative Kulturen für Experimente oder Zelllinienbanking.
- Erfassen Sie die Ergebnisse und entsorgen oder isolieren Sie alle kontaminierten Kulturen, bis sie freigegeben sind.
HINWEIS: Regelmäßig auf Mycoplasma-Kontamination testen.
2. Krebszelltransplantation in Zebrafischlarven
- Krebszellen für die Transplantation vorbereiten
- Zellen auf ~80 % Konfluenz wachsen lassen.
- Entnehmen Sie die Zellen wie in den Schritten 1.3.1–1.3.7 beschrieben.
- Übertragen Sie die Zellsuspension in ein 2-mL-Mikrozentrifugenrohr.
- Zentrifugiere die Zellen bei 300 × g für 2 Minuten bei Raumtemperatur.
- Entfernen Sie das Supernatant und waschen Sie das Zellpellet mit 1 ml sterilem PBS.
- Wiederhole Schritt 2.1.4–2.1.5 und suspendiere die Zellen im übrig gebliebenen PBS erneut. Eine dichtere Suspension führt zu weniger Sedimentation.
- Pipettieren Sie die Suspension vorsichtig auf und ab, bis eine homogene Einzelzell-Suspension entsteht.
HINWEIS: Verwendung einer 200-μL-Pipettenspitze, vorbenetzt (geprimt) mit einer 45%igen Polyvinylpyrrolidon (PVP)-Lösung, da dies hilft, die Zellsedimentation innerhalb der Injektionsmikronadel zu verhindern. - Lassen Sie die Zellsuspension bis zur Injektion auf Eis.
HINWEIS: Wenn eine Zellklumpung auftritt, wird die Zellsuspension durch ein 35–40 μm Zellsieb gegeben und/oder die Zellen mit 0,01–0,05 mg/mL DNase I behandelt.
- Zebrafisch-Eiproduktion
- Am Abend vor der erwarteten Eierentnahme werden die erwachsenen Zebrafische in Brutbecken mit Systemwasser (zum Laichen vorbereitet) untergebracht.
- Die Panzer über Nacht in völliger Dunkelheit lassen; Dies stellt sicher, dass das Spawn am nächsten Morgen ausgelöst wird, wenn die Lichter eingeschaltet werden.
- Die Fische laichen nach dem Lichtanbruch am folgenden Tag. Sammeln Sie die Eier ein, indem Sie das Wasser aus dem Aquarium durch ein Teesieb gießen.
- Spülen Sie die Eier gründlich mit E3-Medium (5 mM NaCl, 0,17 mM KCl, 0,33 mM CaCl2, 0,33 mM MgSO4).
- Befruchtete Eier werden in 9 cm große Petrischalen mit 20–25 ml E3-Medium übertragen. Geben Sie nicht mehr als 50 Embryonen in jede Schale.
- Inkubieren Sie die Embryonen bei 28 °C bis zur weiteren Verwendung.
HINWEIS: Achten Sie darauf, die Eier jederzeit feucht zu halten.
- Zebrafischembryo-Präparation
- Entfernen Sie die Chorionen manuell aus den Embryonen bei etwa 36 HPF.
- Verwenden Sie zwei Paar ultra-feiner Schmuck Nr. 5 Pinzette. Mit einem Paar fest, aber sanft das Chorion zusammenkneifen, um das Ei zu stabilisieren. Verwenden Sie das zweite Paar Pinzette, um die Chorion in der Nähe des ersten Paares zu greifen.
- Ziehe die Pinzette vorsichtig in entgegengesetzte Richtungen, um einen kleinen Riss zu erzeugen. Weite die Öffnung vorsichtig, bis der Embryo herausrutscht.
- Betäuben Sie die dechorionierten Larven mit frisch zubereiteter Trikainlösung gemäß den etablierten Zebrafischprotokollen27.
HINWEIS: Embryonen ohne Chorionen sind zerbrechlich, klebrig und müssen vor Luftkontakt geschützt werden. Verwenden Sie Glaspipetten und mit Agarose überzogene Petrischalen, wenn Sie mit Zebrafischen <3 DPF arbeiten.
- Entfernen Sie die Chorionen manuell aus den Embryonen bei etwa 36 HPF.
- Mikroinjektionsnadeln bereiten
- Entziehe filamentfreie Glaskapillaren mit einem Zieher, dessen Parameter nach den Richtlinien des Herstellers festgelegt sind.
- Mit einer feinen Pinzette brechen Sie die Nadelspitze in zwei Schritten: Zuerst machen Sie einen kleinen Bruch an der feinen Nadelspitze. Dann machen Sie einen zweiten Bruch genau dort, wo die Zellen stecken bleiben. Dadurch entsteht eine optimale Öffnung, die gerade groß genug ist, damit die Zellen hindurchgehen können, dabei aber so klein wie möglich bleibt.
- Füllen Sie die Nadel mit der Zellsuspension mit einem langen Mikrolader – einer Spitze zum Befüllen von Glas-Mikrokapillaren – nach. Vermeiden Sie es, Luftblasen einzuführen.
- Verwenden Sie die höchstmögliche Zelldichte (maximale Konzentration) für die Suspension; Die spezifische Zelldosis wird über die Injektoreinstellungen gesteuert.
- Laden Sie die Nadel häufig mit kleinen Aliquoten, wobei die Aufhängungssäule innerhalb der Nadel auf eine maximale Höhe von 2 mm begrenzt wird. Dies minimiert die Zellsedimentation innerhalb der Nadel und sorgt für eine homogenere Verteilung und eine gleichmäßigere Abgabe während der Injektionen.
- Die geladene Nadel wird auf einen Halter des Mikroinjektionsapparats montiert.
- Passen Sie den Injektionsdruck und die Pulsdauer an, um die gewünschte Anzahl an Zellen pro Injektion zu liefern (das Gesamtvolumen der injizierten Zellsuspension darf die Größe des Auges des Zebrafisch-Embryos zum Zeitpunkt der Injektion nicht überschreiten).
HINWEIS: Detaillierte Beispiele der Zebrafisch-Xenograft-Mikroinjektionsmethodik wurden zuvor von anderen Autoren beschrieben28.
- Mikroinjektionsverfahren
- Injizieren Sie die Zellsuspension entweder in den Eigelbsack oder in die Zirkulation gemäß dem experimentellen Design.
- Mehr als 1000 Zellen pro Embryo unter kalibrierten Injektionsbedingungen abgeben.
HINWEIS: Phosphat-gepufferte Kochsalzlösung (PBS)-injizierte Embryonen als Kontrollgruppen einbeziehen.
- Post-Injektionshandhabung
- Halten Sie die injizierten Embryonen/Larven bei 28-32 °C
- Überwachen Sie das Überleben der Larve und den Entwicklungsfortschritt täglich unter einem Seztiermikroskop.
- Bewertung der Proliferation und Migration von Tumorzellen zu den ausgewählten experimentellen Zeitpunkten.
- Fahren Sie mit der Messung der Elektronenparamagnetischen Resonanz (EPR) wie in Abschnitt 3.1 beschrieben fort oder lagern Sie die Probe wie in Abschnitt 2.7 beschrieben
HINWEIS: Entsorgen Sie die Larven bei Injektionstrauma oder falscher Injektion. Befolgen Sie alle institutionellen Biosicherheits- und Tierpflegerichtlinien. Behandle Trikain und biologische Abfälle gemäß Sicherheitsprotokollen. Entsorgen Sie gefährliche Stoffe gemäß den Vorschriften.
- Probenentnahme zum Einfrieren
- Lassen Sie die Larven mindestens 3 Minuten durch Eintauchen in eine gekühlte Trikainlösung einschläfern.
- Gruppen von 10 Larven werden in 1,5 mL Mikrozentrifugenröhren übertragen. Entferne das überschüssige Medium aus jedem Schlauch.
- Lagern Sie die Proben bei -20 °C bis zur Analyse der elektronenparamagnetischen Resonanz.
3. Melaninradikaldetektion mittels Elektronen-Paramagnetresonanzspektroskopie
- Melaninradikal-Nachweis bei Zebrafischlarven in vivo
- Schalten Sie das X-Band-Elektronen-Pararesonanzspektrometer ein und lassen Sie das System gemäß den Anweisungen des Herstellers stabilisieren.
- Übertragen Sie 20–30 Zebrafischlarven (3–5 Tage nach der Befruchtung, DPF) in ein 1,5-mL Mikrozentrifugenröhrchen.
- Füllen Sie die flache Kapillare der Zebrafischlarven mit 100 μL E3-Medium.
- Versiegeln Sie ein Ende der Kapillare mit einer Kunststoffkappe und sorgen Sie dafür, dass die Flüssigkeitssäule in der flachen Kammer bleibt.
- Mehrere Larven zusammen mit einem kleinen Volumen E3-Medium in eine 100 μL Hämatokrit-Kapillare übertragen.
- Legen Sie vorsichtig Larven aus dem Hämatokritkapillaren oben auf dem flachen Teil ab.
HINWEIS: Achten Sie darauf, die Kontinuität der Lösung zu bewahren. Im flachen Bereich oder nahe der oberen Oberfläche sollten keine Luftblasen vorhanden sein. - Entfernen Sie überschüssige Flüssigkeit aus dem äußeren röhrenförmigen Abschnitt der Kapillare, während Sie kontinuierlichen Kontakt mit der Flüssigkeit innerhalb der flachen Kammer aufrechterhalten.
- Wiederholen Sie die Schritte 3.1.5–3.1.7, bis 20–30 Larven in die flache Kapillare geladen sind.
- Entfernen Sie die Restflüssigkeit aus den röhrenförmigen Bereichen der Kapillare.
- Führe die Kapillare in das Elektronen-Pararesonanzspektrometer ein und positioniere die Probe im Zentrum des Resonators.
- Stellen Sie die Erfassungsparameter in der Spektrometer-Software wie folgt ein: Mittelfeld = 335 mT; Sweep-Breite = 10 mT; Modulationsamplitude = 500 μT; Mikrowellenleistung = 1,6 mW; Anzahl der Scans = 32; Sweep-Zeit = 11 S; Zeitkonstante = 0.
- Erfassen Sie das paramagnetische Resonanzspektrum der Elektronen.
- Entfernen Sie die Kapillaren aus dem Resonator und lassen Sie die Larven in einem Petri-Medium in ein frisches E3-Medium frei.
HINWEIS: Vermeiden Sie das Einführen von Luftblasen während der Probenbeladung, da Unterbrechungen in der Flüssigkeitssäule die Signalreproduzierbarkeit verringern können. Wenn multiharmonische Detektion nicht verfügbar ist, wird die Modulationsamplitude reduziert und die Erfassungsparameter optimiert, um die Signalintensität ohne spektrale Verzerrung zu maximieren.
- Melanin-Radikalnachweis bei gefrorenen Zebrafischlarven
- Taue eine gefrorene Probe mit 10 eingeschläferten Zebrafischlarven bei Zimmertemperatur 5–10 Minuten auf.
- Gib 100 μL E3-Medium zur aufgetauten Probe hinzu.
- Übertragen Sie die Larven zusammen mit dem Medium in eine 100 μL Hämatokrit-Kapillare.
- Entferne überschüssige Flüssigkeit aus der Kapillare, bis die Probe nur noch das aktive Resonatorvolumen (etwa 1 cm Länge) einnimmt.
- Versiegeln Sie die Kapillare mit einer Dichtungsmasse.
- Führe die Kapillare in das Elektronen-Pararesonanzspektrometer ein und positioniere die Probe im Zentrum des Resonators.
- Stellen Sie die Erfassungsparameter in der Spektrometer-Software wie folgt ein: Mittelfeld = 335 mT; Sweep-Breite = 10 mT; Modulationsamplitude = 500 μT; Mikrowellenleistung = 1,6 mW; Anzahl der Scans = 32; Sweep-Zeit = 11 S; Zeitkonstante = 0.
- Erfassen und speichern Sie das paramagnetische Resonanzspektrum der Elektronen.
HINWEIS: Stellen Sie sicher, dass die obere Kante der Probe unterhalb der oberen Kante des Resonators bleibt, um Signalverzerrungen zu vermeiden. Wenn multiharmonische Detektion nicht verfügbar ist, wird die Modulationsamplitude reduziert und die Mikrowellenleistung optimiert, um die Signalintensität ohne spektrale Verzerrung zu maximieren.
- Extraktion von Elektronenparamagnetresonanzdaten aus Multiharmonic-Analyzer-Software und Nachbearbeitung von Spektren
- Öffnen Sie das aufgezeichnete Elektronen-Paramagnetresonanzspektrum in der Multiharmonischen Analyse-Software.
- Aktivieren Sie die Zweikanal-Signalverarbeitung, indem Sie zwei Kanäle verwenden.
- Stellen Sie die Anzahl der verarbeiteten Obertöne auf 30 ein.
- Anpassen Sie den Mikrowellenphasen-/Grad-Parameter , bis symmetrische Absorptions- und Dispersionskomponenten erhalten sind.
- Stellen Sie den Modulationsphasen-/Grad-Parameter an, bis Kanal 1 ein reines Absorptionssignal und Kanal 2 ein reines Dispersionssignal anzeigt.
- Anpassen Sie den Modulationsamplitude/G-Parameter , bis die schmalste unverzerrte Spektrallinie erreicht ist.
- Stellen Sie den Parameter Tiefpass/Hz ein, um hochfrequentes Rauschen zu reduzieren und gleichzeitig die Form der Spektrallinie zu erhalten.
- Wählen Sie den Reiter Rauschunterdrückung und klicken Sie auf Rauschunterdrückung aktivieren. Anpassung des Glättungsfaktors und der Verfeinerungsparameter der schmalen Linien , bis das Signal-Rausch-Verhältnis ohne sichtbare Verzerrung der Spektrallinie verbessert ist.
- Wählen Sie den Reiter Artefakte und aktivieren Sie Ausreißer- und Bandbreitenkorrektur.
- Speichern Sie Spektren in einem Format, das von der Datenanalysesoftware verwendet wird, um weitere Analysen zu ermöglichen.
- Berechnen Sie die doppelt integrierte Signalintensität mittels numerischer Integration in geeigneter Datenanalysesoftware.
HINWEIS: Bei der Arbeit mit hoch-Q-Resonatoren verbessert die Bandbreitenkorrektur die Rekonstruktion höherer harmonischer Komponenten. Multiharmonische Rekonstruktion ermöglicht die Rückgewinnung unverzerrter Spektren aus übermodulierten Rohdaten und verbessert das Signal-Rausch-Verhältnis in biologischen Proben mit niedriger Intensität.
Ergebnisse
Ein schematischer Überblick über den experimentellen Arbeitsablauf ist in Abbildung 1 dargestellt. Zebrafischembryonen wurden entnommen, mit B16F10-Melanomzellen transplantiert, unter kontrollierten Bedingungen inkubiert und vor der X-Band-Elektronen-Pararesonanzanalyse mittels Hellfeld- oder Fluoreszenzmikroskopie überwacht. Lebende Embryonen wurden anschließend in einen flachen Kapillar-/Probenhalter geladen, um die paramagnetische Resonanzmessung ganzer Organismus zu ermöglichen, was eine nicht-invasive Detektion melaninassoziierter Radikalsignale ermöglichte. Nach der paramagnetischen Elektronenresonanzaufnahme wurden Embryonen in frisches E3-Medium freigesetzt, was longitudinale Messungen in denselben biologischen Proben ermöglichte.
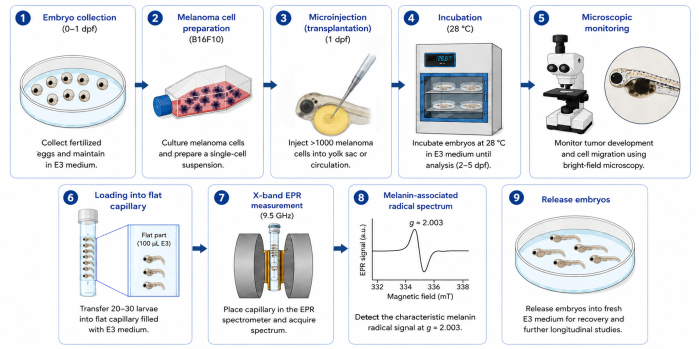
Abbildung 1: Grafischer Überblick über den experimentellen Arbeitsablauf für die in vivo Überwachung von melaninassoziierten Radikalen in Zebrafisch-melanom-Xenografts mittels X-Band-Elektronen-Paramagnetresonanzspektroskopie (EPR). Zebrafisch-Embryonen werden gesammelt, mit Melanomzellen transplantiert, inkubiert und mikroskopisch überwacht, bevor sie in eine maßgeschneiderte flache Kapillare für EPR-Messungen des gesamten Organismus geladen werden. Nach der Detektion des charakteristischen melaninassoziierten Radikalsignals (g ≈ 2.003) werden die Larven für längsführende Nachbeobachtungsmessungen freigesetzt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Um die Spezifität der Methode zu validieren, wurden Messungen an Wildtyp- (WT) und Albino-Zebrafischembryonen durchgeführt. WT-Embryonen beginnen, sichtbare Pigmentierung bei etwa 27 hpf zu entwickeln. Dementsprechend zeigen paramagnetische Elektronenresonanzspektren, die von WT-Embryonen gewonnen wurden, ein charakteristisches Einliniensignal mit Zentrie bei g ≈ 2,003, was mit Eumelanin-abgeleiteten Semichinonradikalen (z. B. DHI/DHICA) übereinstimmt. Im Gegensatz dazu zeigen Albino-Embryonen, denen keine funktionelle Melaninsynthese fehlt, selbst 5 Tage nach der Befruchtung (DPF) kein nachweisbares Elektronen-Paramagnetresonanzsignal im gleichen spektralen Bereich. Dies bestätigt, dass das beobachtete Signal speziell von Melaninradikalen stammt und stellt eine Selektivität der negativen Kontrollvalidierungsmethode dar (Abbildung 2).
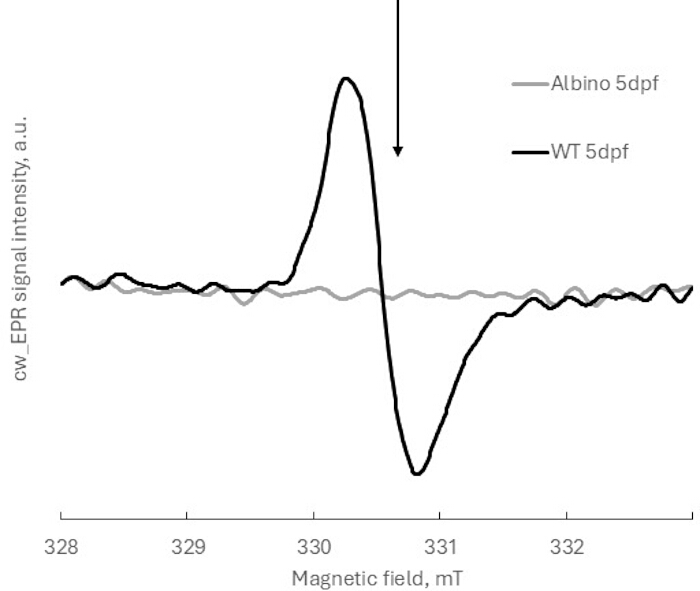
Abbildung 2: Repräsentative X-Band-Elektronen-Paramagnetresonanzspektren von Wildtyp- (WT) und Albino-Zebrafisch-Embryonen bei 5 dpf. Der Pfeil zeigt die Resonanzposition (g ≈ 2,003) des melaninassoziierten Radikalsignals von 5dpf WT-Zebrafischembryonen an. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Die Methode ermöglicht eine quantitative Überwachung der Melaninradikalbildung während der Entwicklung. Mit fortschreitender Pigmentierung wird eine deutliche Zunahme der Elektronen-paramagnetischen Resonanzsignalintensität beobachtet. Der Vergleich von WT-Embryonen von 2 bis 5 dpf zeigt einen erheblichen Anstieg des doppelt integrierten elektronenparamagnetischen Resonanzsignals, das pro Embryo normalisiert wird. Die Normalisierung erfolgte, indem die Intensitäten des Rohelektronen-Paramagnetresonanzsignals durch die Anzahl der Embryonen in der Probe geteilt wurden, bevor das Doppelintegral berechnet wurde (Abbildung 3A).
Die statistische Analyse erfolgte mit dem Kruskal–Wallis-Test, gefolgt vom Dunnschen Mehrfachvergleichstest. Die Analyse von sechs unabhängigen biologischen Replikaten (jeweils 7–10 Embryonen) zeigte statistisch signifikante Unterschiede im normalisierten elektronenparamagnetischen Resonanzsignal zwischen Entwicklungsstadien (p < 0,05) und bestätigte die Sensitivität der Methode.
Das Doppelintegral der paramagnetischen Elektronenresonanzspektren ist proportional zur Anzahl der ungepaarten Elektronenspins. Daher deutet sein Anstieg auf eine Zunahme der Population melaninassozoziierter Radikale während der Entwicklung hin. Wichtig ist, dass dieser Anstieg wahrscheinlich Veränderungen im Melanin-Redox-Gleichgewicht widerspiegelt, die mit progressiver Melanogenese verbunden sind, und nicht allein die Pigmentansammlung.
Die Reproduzierbarkeit des Protokolls wurde weiter bewertet, indem repräsentative paramagnetische Resonanzspektren von Proben mit unterschiedlicher Anzahl von Embryonen (7 versus 10) im gleichen Entwicklungsstadium (5 DPF) verglichen wurden. Wie erwartet zeigten rohe Spektren Unterschiede in der Signalamplitude, die proportional zur Stichprobengröße waren (Abbildung 3B). Nach der Normalisierung jedes Spektrums auf die Anzahl der Embryonen pro Probe überlappten sich die Spektren fast vollständig (Abbildung 3C), und die Variabilität zwischen den Chargen blieb unter 10 %. Diese Ergebnisse unterstreichen die Bedeutung der Normalisierung pro Embryo und bestätigen die Robustheit der Methode für vergleichende Studien.
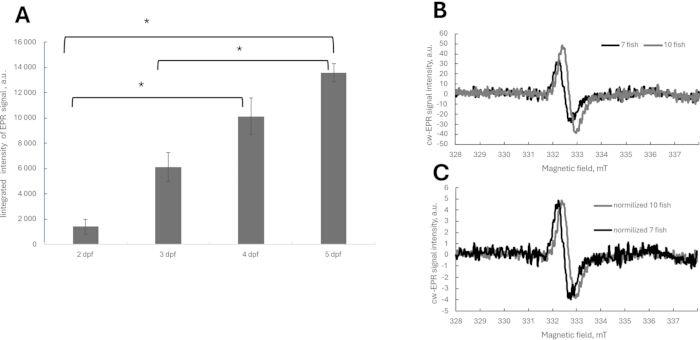
Abbildung 3: Quantitative Überwachung der entwicklungsbedingten melaninassoziierten Radikaldynamik und Normalisierung der paramagnetischen Resonanzspektren der Elektronen. (A) Doppelintegriertes X-Band-Elektronen-Paramagnetresonanzsignal, das von Wildtyp-(WT) Zebrafischembryonen 2, 3, 4 und 5 Tage nach der Befruchtung (DPF) erhalten wurde. Die Signalintensität wurde auf die Anzahl der Embryonen pro Probe normalisiert. Die Daten repräsentieren den Mittelwert ± SD von sechs unabhängigen biologischen Replikaten, die jeweils 7–10 Embryonen umfassen. Statistisch signifikante Unterschiede – *p < 0,05. (B) Repräsentative Rohelektronen-Paramagnetresonanzspektren, die von 5 dpf WT-Embryonen mit Proben von 7 und 10 Embryonen gewonnen wurden. Die Signalamplitude nimmt proportional mit der Anzahl der Embryonen in der Probe zu. (C) Die gleichen paramagnetischen Resonanzspektren wie im Panel B nach der Normalisierung gezeigt, d. h. die rohen spektralen Intensitäten werden durch die Anzahl der Embryonen in der Kapillare geteilt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Um zu bewerten, ob das Protokoll von der für in vivo verwendeten Messungen von Zebrafischen maßgeschneiderten flachen Kapillaren abhängt, wurde eine melaninassoziierte Radikaldetektion sowohl mit der maßgeschneiderten flachen Kapillare als auch mit einer kommerziell erhältlichen Standardkapillare für ex-vivo-Analyse durchgeführt. Repräsentative elektronenparamagnetische Resonanzspektren, die mit beiden Probenhaltern aufgenommen wurden, zeigten sehr vergleichbare Linienform und Resonanzposition (Abbildung 4A), was darauf hindeutet, dass eine zuverlässige Detektion melaninassoziierter Radikale nicht auf das maßgeschneiderte Kapillardesign beschränkt ist. Die Signale von den flachen Kapillaren waren nach der Normalisierung pro Embryo zweimal niedriger als die von der Standardkapillare neu berechneten Signale.
Um die Flexibilität der Probenhandhabung weiter zu bewerten, wurden Zebrafischembryonen unmittelbar nach der Entnahme und nach dem Einfrieren gemessen, gefolgt von einer Ex-vivo-Analyse mit Standardkapillaren. Es wurden keine statistisch signifikanten Unterschiede zwischen frischen und eingefrorenen Proben zwischen sechs unabhängigen biologischen Replikaten beobachtet (Abbildung 4B). Diese Ergebnisse zeigen, dass das Protokoll an allgemein verfügbare Elektronenpararesonanzprobenhalter angepasst werden kann und eine verzögerte ex-vivo-Analyse unterstützt, was die Zugänglichkeit, Flexibilität und Reproduzierbarkeit der Methode in verschiedenen Laboren mit verschiedenen Elektronen-Pararesonanzspektrometern erheblich erhöht.
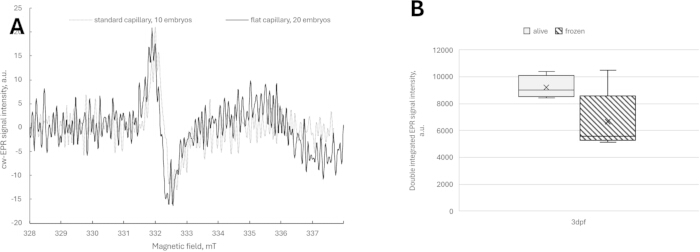
Abbildung 4: Kompatibilität des Protokolls. (A) Rohelektronen-paramagnetische Resonanzspektren, gemessen in Standard- und flachen Kapillaren von 2dpf WT-Zebrafischen. (B) Vergleich derselben biologischen Replikate (3 dpf WT-Zebrafische), die lebend und eingefroren in Standardkapillaren gemessen werden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Um festzustellen, ob das detektierte Elektronen-Paramagnetresonanzsignal direkt auf melanom-abgeleitete Melaninradikale zurückzuführen sein kann, wurden Albino-Zebrafischembryonen als melaninfreier Hintergrund verwendet und mit B16F10-Melanomzellen injiziert. Elektronenparamagnetische Resonanzmessungen wurden 4 Tage nach der Befruchtung (DPF) unter denselben Aufnahmebedingungen wie bei Wildtyp-Embryonen durchgeführt. Wie erwartet zeigten nicht injizierte Albino-Embryonen kein nachweisbares elektronenparamagnetisches Resonanzsignal im melaninspezifischen Spektralbereich. Wichtig ist, dass in Albino-Embryonen mit injizierten B16F10-Zellen kein nachweisbares melanin-assoziiertes Elektronenresonanzsignal beobachtet wurde (Abbildung 5A), obwohl eine erfolgreiche Zelltransplantation durch Hellmikroskopie bestätigt wurde (Abbildung 5B).
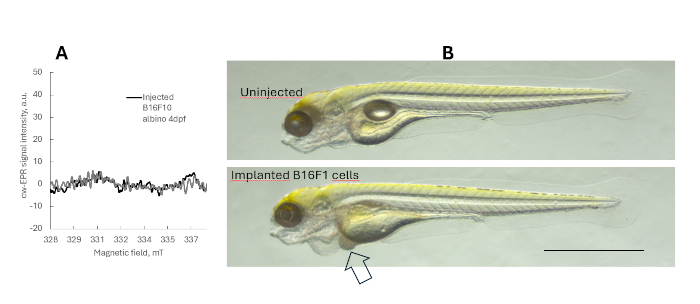
Abbildung 5: Bewertung der direkten, melanom-abgeleiteten Melanin-assoziierten Radikaldetektion bei Albino-Zebrafischen B16F10-Xenografts. (A) Melanin-assoziiertes elektronenparamagnetisches Resonanzsignal in 4df-Albino- und Albino-B16F10-Xenograft-Messungen, gemessen mit einem X-Band-Elektronen-Paramagnetresonanzspektrometer. Es wurden drei biologische Replikate von jeweils 10 Embryonen verwendet. (B) Hellfeldbild von 4 dpf Albino- und Albino-Xenografts mit B16F10 drei Tage nach der Krebszellimplantation. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Diese Ergebnisse zeigen, dass unter den aktuellen experimentellen Bedingungen die Anzahl der injizierten Melanomzellen unter der direkten Nachweisschwelle der X-Band-Elektronenparamagnetresonanz liegt. Daher spiegelt das melaninassoziierte Signal, das bei Messungen des gesamten Organismus festgestellt wurde, in erster Linie globale Veränderungen im Melanin-Redox-Status des Zebrafisch-Embryos/der Larve wider, und nicht ein melanomspezifisches Signal, das ausschließlich vom Xenograft stammt.
In Xenograft-Experimenten hing die Effizienz der Melanomzelltransplantation und des Wachstums stark von der Injektionsstelle ab. Die Injektion in den Kreislauf (Blutkreislauf) führte zu einer konsistenteren Tumorentwicklung und ermöglichte eine zuverlässige Erkennung von elektronenparamagnetischen Resonanzsignalen, die mit Melanomzellen verbunden sind. Im Gegensatz dazu führte die Injektion in den Eigelbsack zu einer Beeinträchtigung der Embryonalentwicklung und schlechtem Tumorwachstum, was zu schwachen oder inkonsistenten Signalen führte. Daher wird eine Blutkreislaufinjektion empfohlen, um robuste und interpretierbare Ergebnisse zu erzielen (Abbildung 6).
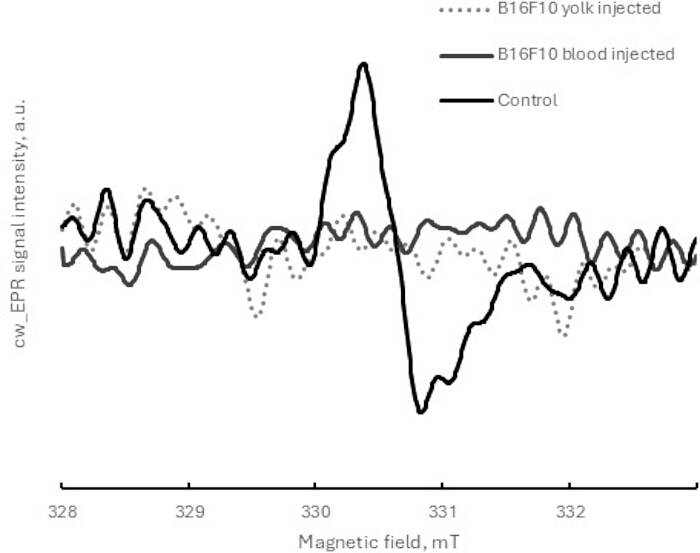
Abbildung 6: Auswirkung der Melanomzell-Injektionsstelle auf die Entwicklung von Zebrafischembryo und Xenograft in 2 DPF, gemessen mit X-Band-Elektronenparamagnetischer Resonanz. Repräsentative elektronenparamagnetische Resonanzspektren von Zebrafisch-Embryonen, die mit B16F10-Melanomzellen in den Eigelbsack oder den Kreislauf injiziert wurden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Um die Anwendbarkeit der Methode in Melanommodellen weiter zu demonstrieren, verglichen wir das von Wildtyp-(WT) Zebrafischembryonen erhaltene Elektronenpararesonanzsignale und WT-Embryonen, die mit B16F10-Melanomzellen über verschiedene Entwicklungszeitpunkte hinweg injiziert wurden.
In WT-Embryonen nahm das elektronenparamagnetische Resonanzsignal mit der Zeit schrittweise zu, was die natürliche Ansammlung von Eumelanin während der Entwicklung widerspiegelt. Im Gegensatz dazu zeigten Embryonen mit B16F10-Xenografts veränderte Signaldynamik, mit einem modifizierten elektronenparamagnetischen Resonanzsignal im Vergleich zu WT zu entsprechenden Zeitpunkten (Abbildung 7). Diese Unterschiede spiegeln wahrscheinlich eine tumorinduzierte Modulation der Melanogenese des Wirts und systemischer Redoxerkrankungen wider, statt auf den direkten Nachweis von Melanom-abgeleiteten Melaninradikalen allein. Da B16F10-Zellen hauptsächlich Eumelanin produzieren, wurde kein Pheomelanin-Signal nachgewiesen.
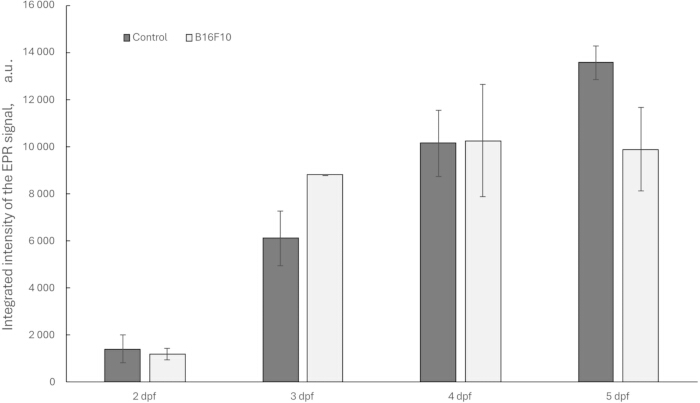
Abbildung 7: Repräsentativer Vergleich der EPR-Signaldynamik des gesamten Organismus in Kontroll-WT- und WT B16F10-tragenden Zebrafisch-Embryonen. Doppelt integriertes X-Band-Elektronen-Paramagnetresonanzsignal, das von Kontroll-Wildtyp-Zebrafischen (WT) und WT B16F10 Xenografts-Embryonen 2, 3, 4 und 5 Tage nach der Befruchtung (DPF) erhalten wird. Die Signalintensität wurde auf die Anzahl der Embryonen pro Probe normalisiert. Die Daten stellen den Mittelwert ± SD von sechs unabhängigen biologischen Replikaten (zur Kontrolle) und drei für B16F10-Xenografts dar, die jeweils 7–10 Embryonen umfassen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Insgesamt zeigt sich die erfolgreiche Umsetzung dieses Protokolls durch: (i) Nachweis eines klaren einlinienigen Elektronen-Paramagnetresonanzsignals bei g ≈ 2 in pigmentierten Embryonen, (ii) fehlendes Signal bei albino-Kontrollen, (iii) Zunahme der Signalintensität mit Entwicklungsstadium und (iv) Reproduzierbarkeit über biologische Replikate nach Normalisierung hinweg.
Diskussion
Diese Studie präsentiert ein robustes und sensibles Protokoll zur in-vivo-Detektion von melaninassoziierten Radikalen in Zebrafischembryonen mittels X-Band-Elektronen-Paramagnetresonanzspektroskopie. Die Methode ermöglicht eine nicht-invasive, etikettenfreie Überwachung melaninassoziierter Redoxveränderungen während physiologischer Melanogenese, der Entwicklung von Melanom-Xenografts und pharmakologischer Intervention. Durch die Kombination der hohen Empfindlichkeit der X-Band-Elektronen-Paramagnetresonanzspektroskopie mit der Zebrafisch-Xenograft-Plattform erweitert dieser Ansatz die analytischen Fähigkeiten aktueller Zebrafisch-Melanommodelle über konventionelle morphologische Bildgebung hinaus hin zur direkten biochemischen Charakterisierung redoxaktiver Melanin-Spezies. Im Gegensatz zur fluoreszenzbasierten Bildgebung, die hauptsächlich strukturelle und räumliche Informationen liefert, erkennt die Elektronen-Paramagnetresonanzspektroskopie stabile paramagnetische Semichinon-Radikale direkt und liefert komplementäre funktionale Einblicke in die Melanin-Redoxbiologie.
Der vorgestellte Arbeitsablauf ist breit anwendbar in der Pigment- und Melanomforschung. Mögliche Anwendungen umfassen die Bewertung von Anti-Melanom-Therapien, die Untersuchung medikamentinduzierter Veränderungen des Redox-Gleichgewichts, die Bewertung melanogenesemodulierender Verbindungen wie Depigmentierungs- oder UV-Reaktionsmittel sowie die Analyse von Tumor-Wirt-Interaktionen in vivo. Darüber hinaus kann die Integration mit Fluoreszenzbildgebung und anderen phänotypischen Assays eine multimodale Plattform bieten, die räumliche, morphologische und biochemische Informationen kombiniert und so den prädiktiven Wert von Zebrafischmodellen in der präklinischen Forschung und therapeutischen Entwicklung erhöht.
Mehrere experimentelle Parameter sind entscheidend, um zuverlässige Ergebnisse zu erzielen. In Xenograft-Experimenten ermöglichte die Injektion in den Kreislauf eine konsistentere Engraftment- und reproduzierbare Elektronen-Paramagnetresonanzmessung als die Injektion des Eigelbsacks, was mit früheren Studien29,30 übereinstimmt. Die Wahl der Inkubationstemperatur spielt eine wichtige Rolle. Während Zebrafisch-Xenografts typischerweise bei 32 °C gehalten werden, um die Zellkinetik der Säugetiere31 zu fördern, erscheinen die in dieser Studie verwendeten B16F10-Melanomlinien der Maus ausreichend aggressiv, um bei 28 °C robuste Proliferations- und Migrationsfähigkeiten zu zeigen. Da eine Umgebung von 32 °C die Entwicklung von Zebrafischen erheblich beschleunigen könnte – was möglicherweise zu einem unabhängigen Fressverhalten vor dem fünften Tag nach der Befruchtung führen könnte –, würde die Erhaltung der Larven bei 28 °C sicherstellen, dass die Organismen in nicht geschützten Entwicklungsstadien32 bleiben. Daher könnte diese Temperaturwahl eine erfolgreiche Beobachtung des Tumorfortschritts und der Metastasen ermöglichen, während gleichzeitig die Tierschutzvorschriften konform bleiben, die die Larven nach Erreichen der eigenständigen Fütterungsphase schützen. Ein weiterer entscheidender Punkt ist, dass eine genaue Normalisierung der Embryonenzahl und ein konsistentes Entwicklungsstadium unerlässlich sind, um die biologische Variabilität zu minimieren. Schwache oder inkonsistente Signale können durch unzureichende Pigmentierung, geringe Tumorlast, suboptimale Probenpositionierung im Resonator oder unvollständige Kapillarfüllung entstehen. In solchen Fällen kann eine Erhöhung der Anzahl der Embryonen pro Probe, die Optimierung der Transplantationseffizienz und die Überprüfung der Probenplatzierung im aktiven Resonatorvolumen die Signalerkennung verbessern. Für In-vivo-Messungen in einer flachen Kapillare sind höhere Embryonenzahlen erforderlich, bedingt durch Dielektrikverluste und einen reduzierten Füllfaktor, der mit Messungen des gesamten Organismus in wässrigen biologischen Proben verbunden ist. Dennoch könnte diese Methode mit Standardkapillaren ex vivo angewendet werden. Diese Ergebnisse zeigen, dass das Protokoll mit allgemein verfügbaren X-Band-Elektronen-paramagnetischen Resonanzspektroskopie-Konfigurationen kompatibel ist und eine verzögerte Ex-vivo-Analyse unterstützt, was die Zugänglichkeit und Reproduzierbarkeit in Laboren mit unterschiedlicher Instrumentierung erhöht.
Trotz ihrer Vorteile hat die Methode mehrere Einschränkungen. Eine wichtige biologische Überlegung ist, dass das detektierte Elektronen-Paramagnetresonanzsignal den redoxaktiven Anteil des Melaninpolymers widerspiegelt und nicht nur den Gesamtpigmentgehalt 15,21,33. Dementsprechend sollten Veränderungen der Intensität des elektronenparamagnetischen Resonanzsignals als Veränderungen des melaninassoziierten Redox-Gleichgewichts interpretiert werden und nicht als direkter Ersatz für Melaninhäufigkeit. Die Albino-Xenograft-Experimente zeigten außerdem, dass unter den aktuellen experimentellen Bedingungen die Anzahl der injizierten Melanomzellen unter der direkten Nachweisschwelle der X-Band-Elektronen-Paramagnetresonanzspektroskopie lag. Daher spiegelt das in xenograft-tragende Larven festgestellte Gesamt-Organismus-Signal in erster Linie globale Veränderungen des Melanin-assoziierten Redoxstatus des Wirts wider, die durch Tumor-Wirt-Interaktionen induziert werden, und nicht ein melanomspezifisches Signal, das ausschließlich vom Xenograft stammt. Wichtig ist, dass die Zebrafisch-Mikroumgebung dynamische Sauerstoffgradienten, metabolische Interaktionen und oxidative Stressbedingungen einführt, die zusätzlich Melaninradikalpopulationen in vivo modulieren können. In Xenograft-Anwendungen ist die Methode derzeit auf hochpigmentierte Melanommodelle beschränkt, da für eine zuverlässige Signalerkennung eine ausreichende Melaninkonzentration erforderlich ist. Amelanotische oder schwach pigmentierte Tumore erzeugen möglicherweise keine nachweisbarenSignale 27. Zusätzlich produzieren die in dieser Studie verwendeten Melanomzelllinien (B16F10) überwiegend Eumelanin, was zu einer einzelnen paramagnetischen Resonanzlinie führt. In Modellen mit signifikantem Pheomelaninbeitrag kann spektrale Überlappungauftreten 13. In solchen Fällen wäre eine fortgeschrittene spektrale Simulation und Dekonvolution erforderlich, um zwischen Eumelanin- und Pheomelanin-Signalen zu unterscheiden.
Dennoch bietet der vorgestellte Arbeitsablauf großes Potenzial zur Untersuchung der Melanombiologie, der medikamentinduzierten Modulation der Melanogenese, oxidativem Stress und Tumor-Wirt-Interaktionen in vivo. Die Integration der Elektronen-Paramagnetresonanzspektroskopie mit Fluoreszenzbildgebung, genetischen Reportern und anderen phänotypischen Assays kann den Prädiktionswert von Zebrafischmodellen in der präklinischen Melanomforschung und therapeutischen Entwicklung weiter steigern.
Offenlegungen
Der Autor Mikołaj Baranowski arbeitet bei Novilet, das Komponenten des in dieser Studie verwendeten Spektrometers (Multiharmonischen Analysator) herstellt. Die übrigen Autoren geben keine konkurrierenden Interessen an.
Danksagungen
Das Projekt "Eine neue Kapillare und eine Methode zur Bestimmung des Melaninradikals für den Einsatz in präklinischen Studien potenzieller Melanommedikamente im Danio-rerio Embryo-Modell" FENG.02.07-IP.05-0059/23 wurde im Rahmen des FENG POC-Programms der Stiftung für Polnische Wissenschaft durchgeführt, das von der Europäischen Union im Rahmen der Europäischen Fonds für die Smart Economy 2021–2027 (FENG) mitfinanziert wurde. Diese Forschung wurde von der Europäischen Union im Rahmen des Smart Growth Operation Program (Projektnummer POIR.01.02.00-00-0077/18) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 1.5 mL oder 0,5 mL Eppendorf-Röhrchen | Eppendorf | 0030120086, 0030121023 | Zum Übertragen von Zebrafisch-Larven in Kapillaren |
| 3 mL Einweg-Pasteur-Pipetten | Medlab Products | 76-1303-2 | Zum Sortieren und Übertragen von Embryonen und Larven |
| Tisch-X-Band-EPR-Spektrometer MiniScope MS200 | Magnettech | Bruker.com | EPR-Spektren-Registrierung |
| Calciumchlorid, Dihydrat | Chempur | 363-118748706 | Zur Herstellung von E3-Medium |
| Zellzählungs-Objektträger (z.B. EVE oder EVE PLUS) | Nanoentek Inc | NC2200445 | Für Zellzähler |
| CellTracker Green | Thermo Fisher | C2925 | Fluoreszierender Zellmarkierer, zur Zellmarkierung |
| CM-DiI | Thermo Fisher | C7000 | Fluoreszierender Zellmarkierer, zur Zellmarkierung |
| CO2 Inkubator ICO240med | Memmert | N/A | Für Zellhaltung, eingestellt auf 37°C, 5% CO2, ≥95% Luftfeuchtigkeit |
| Countess II Automatischer Zellzähler | Invitrogen | AMQAX1000 | Zum Zählen von Zellen und Zelldichte |
| Kryo-Aufbewahrungsboxen CryoKING | Biologix | BGX-ID81 | Zur Aufbewahrung von Zebrafischen mit Xenotransplantaten |
| Kryokonservierungsmedium CM-1 | Cytion | #800150 | Zum Einfrieren von Krebszellen |
| Dulbecco's Modifiziertes Eagle-Medium (DMEM), hohe Glukose, Glutamin, ohne Natriumpyruvat | Gibco | #11965-092 | Zur Zellkulturhaltung |
| E3 Medium | Eigenherstellung | N/A | Zur Haltung von Zebrafisch-Embryonen/-Larven, gemäß Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| Ei-Inkubator | Incubato | 10130024 | Zur Inkubation von Zebrafisch-Embryo/-Larve, eingestellt auf 28–32°C |
| eSpect+ Software | Novilet | https://novilet.eu/products/espect/ | Für Multiharmonic-Analysator |
| Fetales bovines Serum (FBS) | Gibco | A5256701 | Ergänzung für DMEM |
| Feinzange, keramisch beschichtet, Dumont #5, 11 cm | Dumont SA | 11252-50 | Zur Entdotterung von Zebrafisch-Embryonen |
| Flachglaskapillaren, speziell für Zebrafische (Anwendungs-Nr.: 21 736) | N/A | N/A | Für EPR-Messungen von Zebrafisch-Embryonen |
| Glaskapillarnadeln | Harvard Apparatus | GB100-10 | Fadenfrei, für Mikroinjektionen |
| Hämatokritkapillaren (BRAND Einweg-BLAUBRANDBlauen Mikropipetten), Volumen 50 und 100 μL | BRAND | 41121500 | Für EPR-Messungen oder zum Übertragen von Zebrafisch-Larven in flache Kapillaren |
| Magnesiumchlorid, Hexahydrat | Chempur | 363-116120500 | Zur Herstellung von E3-Medium |
| Mikroinjektionssystem mit Mikromanipulator FemtoJet | Eppendorf | EPE5252000021 | Zum Beladen von Zellen in Mikronadeln |
| Microloader-Pipettenspitzen für Nadelbeladung | Eppendorf | #5242956003 | Für Mikroinjektionssystem |
| Mausmelanom-Zelllinie B16-F1 | Cytion | CLS-400122 | Für Xenotransplantate |
| Mausmelanom-Zelllinie B16-F10 | Cytion | 305157 | Für Xenotransplantate |
| Multiharmonic-Analysator eSpect+ | Novilet | https://novilet.eu/products/espect/ | Für EPR-Spektrometer, zur Erhöhung der Empfindlichkeit |
| Penicillin-Streptomycin-Lösung | Sigma | P0781-50ml | Optional, Ergänzung für DMEM für Zellkultur |
| Petrischale, 55 mm | Medlab Products | 51-0056-0A-NX | Zur Inkubation von Zebrafisch-Eiern, Embryonen und Larven |
| Phosphat-gepufferte Saline (PBS), kalzium- und magnesiumfrei | Sigma | D8537-500ml | Zum Spülen von Zellen |
| Kaliumchlorid | Chempur | 363-117397402 | Zur Herstellung von E3-Medium |
| Dichtungskit für Hämatokritkapillaren - Critoseal | Noxygen | NOX-A.3-VPC | Für EPR-Messungen von Zebrafisch-Embryonen |
| Natriumchlorid | Chempur | 363-117941206 | Zur Herstellung von E3-Medium |
| Statischer Flüssigstickstoff-Lagerungsbehälter | Biobase | YDS-47-127-FS | Für die Lagerung von Zellkulturen |
| Stereomikroskop | Optatech | SK Series | Zur Beurteilung der Entwicklung von Zebrafisch-Embryonen |
| Sterile 15-ml-Falcon-Röhrchen | SPL Life Sciences | S50015 | Zur Zellgewinnung (Zentrifugieren) |
| Sterile 90-nm-Petrischalen | Googlab Scientific | GP508 | Zur Zellkultur |
| Sterile Kryovialbehälter: CryoPure Tube 1,0 ml | Sarstedt | 72.377 | Zum Einfrieren von Zellen |
| Sterile Pasteur-Pipetten für Gewebekulturen (Corning Falcon Serologische Pipetten), Volumen 5, 10, 25 ml | Corning | 357543, 356551, 356535 | Zur Zellkultur |
| Tricaine (MS-222) | Sigma | 886-86-2 | Frisch zubereitete 4 g/l-Lösung, zur Anästhesie und Euthanasie von Zebrafischen |
| TrypLE Express (1×) oder Trypsin-EDTA (0,05%) | Gibco | #12605-010 | Zum Zellablösen während des Übertragens |
| Wasserbad Precision GP 05 | Thermo Scientific |
Referenzen
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar