Mit einem ex-vivo-Explant-Modell werden kleine Stücke des rostralen Anteils des viszeralen weißen Fettgewebes von mageren Mäusen 7–10 Tage lang kultiviert, was die Induktion und Untersuchung der Entzündung von Fettgewebe während der fettreichen Ernährung ermöglicht.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
Ein ex vivo Mausmodell für fettreiche, diätähnliche Fettgewebeentzündung
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Dieses Protokoll beschreibt ein ex-vivo Mausmodell, das ausgewählte zelluläre und entzündliche Merkmale wiederholt, die im viszeralen Fettgewebe (VAT) nach einer fettreichen Ernährung (HFD) beobachtet wurden, ohne in vivo eine diätetische Intervention. Kleine VAT-Expflanzen aus mageren Mäusen werden 7–10 Tage lang kultiviert, während dieser Zeit entwickeln sie spontan einen entzündlichen Phänotyp, der dem von mit HFD gefütterten Tieren sehr ähnlich ist. Wichtig ist, dass das Modell die Fettgewebearchitektur (AT) bewahrt und so die Untersuchung von Entzündungsprozessen in einem physiologisch relevanten Kontext ermöglicht. Während der Kultur treten wichtige Merkmale der fettleibigkeitsbedingten Entzündung hervor, darunter die Bildung kronenähnlicher Strukturen (CLS), die Ansammlung metabolisch aktivierter Makrophagen (MMes) und die erhöhte entzündliche Zytokinproduktion. Trotz Adipozytentod können andere Treiber der fettleibigkeitsbedingten Entzündung, darunter metabolische Stressoren wie gesättigte Fettsäuren, veränderte Lipidbehandlung, Glukoseüberschuss, oxidativer Stress, Hypoxie, Adipokin-Ungleichgewicht und parakrine Adipozyten-Immunzell-Signalübertragung, teilweise im Modell dargestellt werden. Das System unterstützt eine breite Palette von nachgelagerten Anwendungen, darunter Live-Imaging, Durchflusszytometrie, quantitative PCR, ELISA, Immunfärbung sowie Bulk- oder Einzelzell-RNA-Sequenzierung. Darüber hinaus können pharmakologische und zytokinbasierte Behandlungen eingesetzt werden, um Signalwege und zelltypspezifische Reaktionen zu untersuchen. Dieses leicht anpassbare Modell entspricht den 3R-Prinzipien, indem es die Tierverwendung für In-vivo-Ernährungsstudien reduziert. Das Modell ist reproduzierbar, kosteneffizient und einfach umzusetzen und bietet eine vielseitige Plattform zur Untersuchung des Adipozytentodes, der Dynamik von Immunzellen und therapeutischen Strategien bei AT-Entzündungen.
Einleitung
Fettgewebe (AT) ist ein metabolisch aktivesOrgan, das zu etwa 20 % aus Adipozyten und einer heterogenen Mischung aus Immunzellen, Fibroblasten, Vorläuferzellen und Gefäßzellen beim Menschen besteht. AT wird in unilokuläres weißes Fettgewebe (WAT), multilokuläres braunes Fettgewebe (BAT) und intermediäres beiges Fettgewebe klassifiziert, was die Heterogenität in Zusammensetzung, Funktion und anatomischer Lage widerspiegelt. WAT ist in subkutanen (SCAT), viszeralen (VAT), perivaskulären und Knochenmarkfettdepots verteilt, die sich in Entwicklungsherkunft, Genexpressionsprofilen und metabolischer Funktion unterscheiden. Über seine Rolle bei der Lipidspeicherung hinaus fungiert AT als endokrines Organ, indem es Zytokine, Hormone und Adipokine absondert. Im Vergleich zu SCAT ist VAT metabolisch aktiver und angereichert in entzündlichen Zellen, was es besonders relevant für Studien zu AT-Entzündungen und Stoffwechselerkrankungen wie Typ-2-Diabetes 3,4,5 macht.
AT ist ein wichtiger Regulator der Stoffwechselgesundheit und spielt eine zentrale Rolle bei Fettleibigkeit, die mit zahlreichen Begleiterkrankungen verbunden ist. Fettleibigkeit fördert Adipozytenhypertrophie, Hyperplasie und Proliferation6, während AT-Expansion und Entzündung stark mit Hyperglykämie, Hyperinsulinämie, Hypertriglyzeridämie und beeinträchtigter Glukosetoleranzkorrelieren 3. Es wird angenommen, dass die AT-Expansion mit einem erhöhten Adipozytentod einhergeht, mit etwa 10 % Zellumsatz jährlich7, was die Makrophagenrekrutierung auslöst, die für die Gewebebeseitigung undRemodellierung unerlässlich ist. Da Adipozyten deutlich größer sind (100–200 μm) als Makrophagen, ist eine effiziente Phagozytose durch diese etwa fünfmal kleineren Zellen eine Herausforderung, was die Gewebehomöostase beeinträchtigt und die chronische AT-Entzündung9 fördert. Fettgewebemakrophagen (ATMs) vermitteln die Entfernung übergroßer, sterbender Adipozyten entweder durch Fusion in multinukleäre Riesenzellen (MGCs) oder durch die Bildung kronenähnlicher Strukturen (CLS) um tote Adipozyten und deren Abbau durch lysosomale Exozytose 10,11,12. Die Häufigkeit von CLS korreliert mit fettleibigkeitsassoziierter Entzündung11,13.
Bei gesunder ATM sind Geldautomaten überwiegend entzündungshemmende, M2-ähnliche Makrophagen, während Fettleibigkeit eine Verschiebung hin zu einem proinflammatorischen M1-ähnlichen Phänotyp14,15 fördert. Weitere mechanistisch unterschiedliche Makrophagen-Untergruppen entstehen, darunter metabolisch aktivierte Makrophagen (MMes) und lipidassoziierte Makrophagen (LAMs), die eine wichtige Rolle bei der Entfernung toter Adipozyten durch lysosomale Exozytosespielen.
Um die AT-Entzündung in einer physiologisch relevanten mehrzelligen Umgebung zu untersuchen, etablierte das Protokoll ein ex vivo Mausmodell basierend auf organotypischen Explantationskulturen von VAT, die von schlanken Mäusen abgeleitet wurden. Über 7–10 Tage kultivierte VAT-Explants entwickeln einen entzündlichen Phänotyp, der mit dem nach mindestens 12 Wochen fettreicher Ernährung (HFD) beobachtet wird, hinsichtlich CLS-Form, Makrophagenphänotyp und entzündlicher Zytokinproduktion 9,19 vergleichbar ist. Wichtig ist, dass dieser Ansatz die Nutzung von Tieren reduziert, die Notwendigkeit von Genehmigungen für diätäre Interventionen eliminiert und zu den 3R-Prinzipien beiträgt, indem er die Abhängigkeit von langfristigen Studien zur Ernährungsintervention verringert. Im Vergleich zu herkömmlichen zweidimensionalen (2D) Zellkultursystemen, wie Einzelzellkulturmodellen (z. B. 3T3-L1-Zellen oder primäre Adipozytenkulturen), erhält diese Methode die Gewebekomplexität und zelluläre Vielfalt und ermöglicht so die Untersuchung physiologischer Zell-Zell-Interaktionen, einschließlich jener zwischen Immunzellen und Adipozyten.
Kultivierte AT-Explants sind mit einer Vielzahl analytischer Ansätze kompatibel. Live-konfokale Bildgebung ermöglicht die Überwachung der ATM-Akkumulation, der CLS-Bildung und der MGC-Bildung 9,19. Die Kollagenase-Verdauung ermöglicht die Isolierung der stromalen Gefäßfraktion (SVF) für durchflusszytometrische Analysen, einschließlich Proliferationsassays und der Bestimmung von M1-, M2-ähnlichen oder MMe-Phänotypen12. Genexpressionsanalysen, einschließlich quantitativer PCR (qPCR) und RNA-Sequenzierung, können an ganzen Expflanzen, SVF-Zellen oder sortierten Makrophagendurchgeführt werden. Proteinexpression und enzymatische Aktivität können durch Western Blotting oder ELISA12,20,21 bewertet werden, während Gewebearchitektur und Markerexpression durch Whole-Mount-Färbung und Immunfluoreszenz 9,22 visualisiert werden können. Darüber hinaus sind pharmakologische und genetische Interventionen, einschließlich ATM-Depletion und Zytokinbehandlung, leicht machbar 21,23,24.
Zusammenfassend ermöglicht dieses ex vivo Mausmodell der HFD-ähnlichen AT-Entzündung die Untersuchung des Adipozytentodes, direkte in-situ-Beobachtung zellulären Verhaltens sowie pharmakologische oder genetische Manipulationen, die für die AT-Immunologie relevant sind (Abbildung 1).
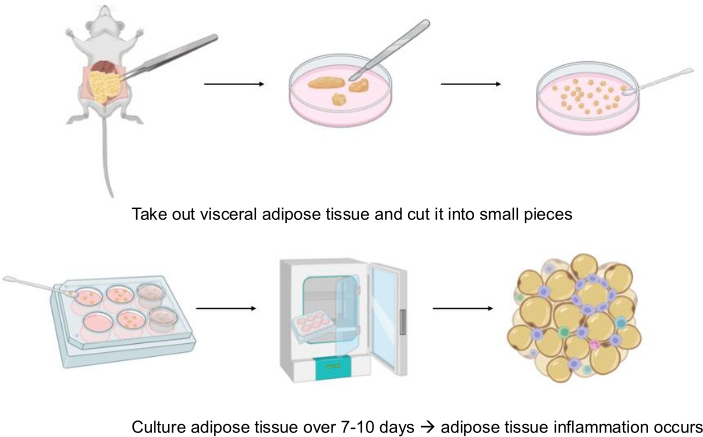
Abbildung 1: Grafische Zusammenfassung des Arbeitsablaufs. Das viszerale Fettgewebe (AT) wird aus Mäusen isoliert, in kleine Explants aufgeteilt und 7–10 Tage lang kultiviert. Während der Kulturphase entwickeln Explants einen entzündlichen Phänotyp, der die Untersuchung der Fettgewebeentzündung unter kontrollierten ex-vivo-Bedingungen ermöglicht. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
Tierversuche wurden gemäß institutionellen und nationalen Richtlinien durchgeführt und von den zuständigen Regulierungsbehörden genehmigt. Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomatenmäuse ("MacFat", RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549, Adipoq-iCreERT2: RRID:IMSR_JAX:025124, CAG-tdTomato: RRID:IMSR_JAX:007914)27,28 wurden für repräsentative Mikroskopieexperimente verwendet. Diese Reporterlinie ermöglicht die Visualisierung von Makrophagen durch GFP-Expression und Adipozyten durch tdTomato-Expression. Da die tdTomato-Expression nach dem Tod der Adipozyten verloren geht, kann die Lebensfähigkeit der Adipozyten während der Kultur überwacht werden. Csf1r-eGFP-Reportermäuse ("MacGreen", RRID:IMSR_JAX:018549)28 wurden für die Makrophagenvisualisierung und Flowzytometrieanalysen verwendet. C57BL/6J-Mäuse (RRID:IMSR_JAX:000664) wurden für nicht-bildgebende Experimente verwendet, einschließlich scRNA-seq und qPCR-Analysen. Alle transgenen Linien wurden als heterozygote Mäuse auf einem C57BL/6J-Hintergrund aufrechterhalten.
Tierversuche folgten den 'Prinzipien der Labortierpflege' (NIH-Publikation Nr. 85e23, überarbeitet 1985) und spezifischen nationalen Gesetzen und wurden von den Landesbehörden des Landes Sachsen: Landesdirektion in Leipzig, Deutschland, genehmigt (Tierversuchsantrag: TV11-21-MEZ). Laut örtlichen Behörden stellen die beschriebenen Versuche keine Tierversuche dar, da es heißt: "Wenn ein Wirbeltier ausschließlich zum Zweck der Nutzung seiner Organe oder Gewebe für wissenschaftliche Zwecke getötet wird, gilt dies nicht als Tierversuche nach § 7(2) des Tierschutzgesetzes (TierSchG), sondern als Tötung nach § 4(3) des Tierschutzgesetzes (TierSchG)." Die Tötung der Tiere muss in einem 'Tierbericht' gemeldet werden. Dieser Bericht ist in der Bewerbung für Tierversuche enthalten. Auch der Ethikausschuss der medizinischen Fakultät der Universität Leipzig hat die Forschungsprojekte genehmigt. Gemäß den Richtlinien der Tierversuchsanwendung TV11-21-MEZ werden die Mäuse durch eine Überdosis des Inhalationsanästhetikums Isofluran eingeschläfert. Eine effektive Gaskonzentration (5 % im O₂-Trägergas) wird über einen Isofluran-Verdampfer abgegeben. Das Euthanasieverfahren ist abgeschlossen, wenn ein endgültiger Kreislaufstillstand (Abwesenheit von Atemung [Federtest] und Herzschlag [Palpation]) bestätigt ist.
Die Mäuse wurden in einer temperaturkontrollierten (22 ± 2 °C), spezifisch pathogenfreien Einrichtung an der Universität Leipzig in Geschwistergruppen von 3–5 Tieren in einem 12-Stunden-Hell/Dunkel-Zyklus untergebracht. Tiere hatten ad libitum Zugang zu Wasser und eine Standard-Chow-Diät (9 % kcal Fett; Sniff GmbH, Deutschland). Repräsentative Experimente wurden mit männlichen und weiblichen Mäusen durchgeführt. Die im Protokoll verwendeten Reagenzien, Chemikalien und Kits sind in der Materialtabelle aufgeführt.
1. Vorbereitungen
- Reagenzien und Ausrüstung bereiten
- Bereiten Sie das Kulturmedium unter sterilen Bedingungen vor, indem Sie RPMI-1640 mit 10 % fetalem Rinderserum (FBS) und 1 % antibiotischer Lösung ergänzen.
- Erwärmen Sie das Kulturmedium und sterile PBS auf 37 °C.
- Reinigen Sie alle Geräte und den Arbeitsbereich im Inneren der Gewebekulturhaube mit 70 % Ethanol.
- Bereite die Tiere vor
- Opfere Mäuse gemäß den institutionellen Richtlinien. Wiegen Sie die Tiere optional.
- Setze die Tiere in einen Glasbecher, der 70 % Ethanol enthält.
- Wische die Außenseite des Glasbechers mit Ethanol ab und übertrage es in die Gewebekulturhaube.
2. Fettgewebeisolation (Abbildung 2)
- Bereite die Maus vor
- Legen Sie die Maus mit einer stumpfen Pinzette in Rückenlage in eine Glasschale oder befestigen Sie sie auf einer Sektionstafel.
- Gib eine dünne Schicht vorgewärmtes PBS in eine Petrischale.
- Wechsle zu einem frischen Paar Handschuhe.
- Heben Sie mit einer Pinzette die untere Bauchhaut an und machen Sie mit einer Schere einen kleinen horizontalen Schnitt, um die Bauchhöhle zu öffnen.
- Machen Sie einen vertikalen Schnitt (~2 cm vom Schwanz zum Rostralen), der vom ursprünglichen Schnitt ausgeht, um die inneren Organe freizulegen.
- Isoliere das Fettpolster
- Mit kleinen, scharfen Scheren und spitzen Pinzetten lokalisieren und entfernen Sie das weiße Fettgewebe. Verwenden Sie ein separates Set von Instrumenten, um Kontaminationen zu verhindern.
- Männliche Mäuse: Gonadales Fett ist nur an der Nebenhöhle und dem Hoden angesetzt. Heben Sie vorsichtig das Fettpolster an und schneiden Sie oberhalb der Nebenhoden ab, oder entfernen Sie die Nebenhoden und den Hoden zusammen mit dem Fett der Gonaden und entfernen Sie sie danach.
- Weibliche Mäuse: Gonadales Fett ist am Gebärmutterhorn und den Eierstöcken befestigt und ist ausgeprägter als bei Männchen. Heben Sie vorsichtig das Fettpolster an und entfernen Sie es entlang des Gebärmutterhorns und der Eierstöcke.
- Geben Sie die isolierten Fettpads in die mit PBS gefüllte Petrischale.
- Entfernen Sie die Restepididymis, Hoden, Eierstöcke oder Blutgefäße mit einer Rasierklinge.
- Fülle das gereinigte Fettpad in eine zweite Petrischale mit vorgewärmtem PBS. Wiegen Sie optional die Fettpads.
HINWEIS: Das Abwägen der Fettpads vor der Kultur ermöglicht eine Normalisierung der Gewebemasse zwischen experimentellen Bedingungen.
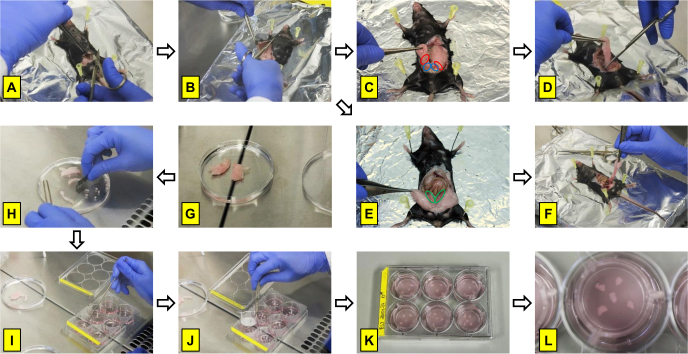
Abbildung 2: Isolierung und Kultivierung von viszeralen Fettgewebe-Explantierungen. (A,B) Öffnung der Bauchhöhle und Freilegung viszeraler Fettgewebe. (C, D) Isolierung von Epididymal-Fettgewebe aus männlichen Mäusen, Fett wird an die Nebenhoden (rote Kreise) und den Hoden (blaue Kreise) gebunden. (E, F) Isolierung des gonadalen Fettgewebes von weiblichen Mäusen, das Fett wird am Gebärmutterhorn (grüne Kreise) und an den Eierstöcken gebunden. (G, H) Vorbereitung und Kürzung von Fettgewebe-Explantationen. (I, J) Übertragung von Explants in Kulturbrunnen und Platzierung von Zellkultur-Einsätzen. (K, L) Repräsentative Bilder von Explants während der Kultur in 6-Well-Platten. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
3. Vorbereitung und Kultivierung des Explantings
- Bereite Explants vor
VORSICHT: Rasierklingen sind scharf und können Verletzungen verursachen. Führen Sie die Klingen sorgfältig und entsorgen Sie sie gemäß den institutionellen Sicherheitsvorschriften.- Schneiden Sie das Fettpad in Streifen und dann mit einer Rasierklinge in Würfel von etwa 10 mm3 (~10 mg pro Explant).
- Einrichtung von Explant-Kulturen
- Geben Sie 1–1,5 ml Kulturmedium zu jedem Brunnen einer 6-Well-Platte.
HINWEIS: Zur Normalisierung verwenden Sie etwa 50 mg Fettgewebe pro 1 ml Kulturmedium. - Übertragen Sie fünf Expflanzen mit einem sterilen Löffel oder Pfannenwender in jede Mulde.
- Ordne die Expflanzen gleichmäßig in einem kreisförmigen Muster an.
- Decken Sie die Explants mit einem Zellkultur-Einsatz mit steriler Pinzette ab.
HINWEIS: Vermeiden Sie es, Luftblasen einzuführen, wenn Sie die Einsätze positionieren, und stellen Sie sicher, dass die Explants mittig darin sind. - Inkubieren Sie die Explants bei 37 °C, 5 % CO₂ und 21 % O₂ für 7–10 Tage.
HINWEIS: Verwenden Sie vorgewärmtes PBS und Kulturmedium, um die Gewebelebensfähigkeit zu verbessern. Arbeiten Sie schnell, um die Zeit, in der die Fettpads außerhalb des Inkubators verbleiben, zu minimieren. Vermeiden Sie eine Kontamination mit Mäusefell. Wenn Haare am Gewebe haften, entferne sie und spüle das Gewebe mit warmem PBS ab.
- Geben Sie 1–1,5 ml Kulturmedium zu jedem Brunnen einer 6-Well-Platte.
4. Nachgelagerte Analysen
- Nach der 7–10-tägigen Kulturperiode werden Expflanzen, stromale Gefäßfraktionszellen oder Supernatanten für nachgelagerte Analysen gesammelt, einschließlich Mikroskopie, Durchflusszytometrie, qPCR, ELISA oder RNA-Sequenzierung, je nach Bedarf für den experimentellen Endpunkt.
5. Statistische Analyse
- Führen Sie statistische Analysen mit GraphPad Prism 10.2 durch. Screene Datensätze für Ausreißer mit dem ROU-Test (Q = 1 %) und beurteile die Normalität mit dem Shapiro–Wilk-Test (α = 0,05).
- Vergleichen Sie zwei Gruppen mit gepaarten Schüler-t-Tests oder Wilcoxon-Matched-Pairs-Tests, je nach Anwendung. Vergleichen Sie mehrere Gruppen mit Einweg-ANOVA und anschließend Dunnetts Post-hoc-Test. Betrachten Sie statistisch signifikante Unterschiede bei p < 0,05.
- Präsentieren Sie die Daten als Mittelwert ± SEM. Sofern nicht anders angegeben, definieren Sie n als Anzahl der biologischen Replikate (einzelne Mäuse).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Die allgemeine Gewebelebensfähigkeit wurde während der gesamten Kulturperiode aufrechterhalten und mit mehreren komplementären Ansätzen überwacht. Die Gewebelebensfähigkeit kann durch Konfokalmikroskopie mit Viabilitätsfarbemitteln wie Calcein25, Antikörperfärbung gegen Perilipin zur Bewertung der Integrität der Adipozytenmembran17,26 oder der Expression transgener Reporterproteine in Adipozyten bewertet w...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Angesichts der zunehmenden globalen Prävalenz von Stoffwechselerkrankungen und Diabetes bleibt das Verständnis der Mechanismen der Entzündung von Fettgewebe (AT) ein wichtiges Forschungsziel. Um diesem Bedarf gerecht zu werden, wurde ein ex-vivo-Explant-Kultursystem entwickelt, das die Einleitung und Analyse von AT-Entzündungen unter kontrollierten experimentellen Bedingungen ermöglicht.
Eine entscheidende Voraussetzung dieser Methode ist die Erhaltun...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren erklären keine konkurrierenden Interessen.
Danksagungen
Die Autoren danken Constance Hobusch und Florian Kirmse für hervorragende technische Unterstützung. Flowzytometrie-Analysen wurden an der Core Unit Fluorescence Technologies der Universität Leipzig mit technischer Unterstützung von Kathrin Jäger und Pia Glöckner durchgeführt. Diese Arbeit wurde von der Deutschen Forschungsgemeinschaft (DFG), Projektnummer 209933838 – SFB 1052 (Projekt B09), unterstützt.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
```html
```
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| BD OptEIA Mouse TNF ELISA Kit | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | Flow cytometry: 1:10000; Staining: 1:2000 | Invitrogen | D3835 |
| Bovine Serum Albumin | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | Staining: 1:100; Flow cytometry: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | Flow cytometry: 1:100 | BioLegend | 117334 |
| CD16/32 | Flow cytometry: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | Flow cytometry: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | Flow cytometry: 1:400 | BioLegend | 102606 |
| CD45 – PE | Flow cytometry: 1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry Assay Kit | EdU: 5 µM | Invitrogen | C10632 |
| Clodronat-Liposomen | 500 µg/ml Clodronat | Liposoma | |
| Collagenase Typ 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| CyQUANT LDH Cytotoxicity Assay Kit | Invitrogen | C20301 | |
| DAPI | Flow cytometry: 0,2 µg/ml | Thermo Fisher | 62248 |
| Ethanol | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | Flow cytometry: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | Flow cytometry: 1:200 | Invitrogen | 25-4801-82 |
| Fetal Calf Serum | 1,10 | Gibco | 10270106 |
| Fetal Calf Serum | 1,20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10.000 | Life Technologies | H3570 |
| LysoTracker – AF647 | Flow cytometry: 1:20000; Staining: 1:10000 | Invitrogen | H34477 |
| MAC-2 | Staining: 1:1000 | Cedarlane | CL8942AP |
| Millicell Zellkultur-Insert, 30 mm, hydrophil, PTFE, 0,4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicillin/Streptomycin (10.000 U/ml) | 0,111111111 | Gibco | 11548876 |
| Penicillin/Streptomycin (10.000 U/ml) | 0,111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxikon 5622 | 40 µM | Plexxikon Inc. | HY-114153 |
| RPMI-Medium 1640 | mit 11 mM Glucose | Sigma Aldrich | R8758 |
| RPMI-Medium 1640 | Sigma | R8758 | |
| TC-Insert für 6-Well-Platten | Sarstedt | 83.3930.040 | |
| TPP Tissuekultur-Testplatte 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| Zinkchlorid | 0,8 mM | Sigma | Z0152 |
| Zinkformalin | Polyscience | 21516-3.75 |
Referenzen
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
