Dieses Protokoll beschreibt schrittweise Verfahren zur Beurteilung der Widerstandsfähigkeit des gesamten Organismus gegenüber Hitzestress, oxidativem Stress, ER-Stress und mitochondrialem Stress. Es enthält außerdem Methoden, um zu bewerten, ob Neuronen eine Rolle bei der Stressresistenz spielen.
Methodenartikel
Methoden zur Messung der Resistenz gegenüber mehreren Stressfaktoren bei Caenorhabditis elegans
In diesem Artikel
Zusammenfassung
Zusammenfassung
Organismen sind im Laufe ihres Lebens einer Vielzahl von Umwelt- und zellulären Stressfaktoren ausgesetzt. Die Fähigkeit, verschiedenen Stressfaktoren zu widerstehen, korreliert eng mit der Gesundheits- und Lebensdauer der Organismen. Caenorhabditis elegans (C. elegans) ist ein ideales Modellorganismus zur Messung der Stressresistenz, um die Erforschung konservierter molekularer Mechanismen, die der Stressresistenz zugrunde liegen, zu erleichtern. C. elegans verfügt außerdem über ein vereinfachtes Nervensystem, das grundlegend für das Verständnis der neuronalen Grundlagen der Stressresistenz ist. Hier stellen wir Methoden zur Messung der Stressresistenz von C. elegans unter vier verschiedenen Stressbedingungen vor: Hitzestress, endoplasmatischer Retikulum-(ER-)Stress, mitochondrieller Stress und oxidativer Stress. Wurmgruppen werden auf festen Agarplatten platziert und entweder extremen Temperaturen für Hitzestress oder Agar mit unterschiedlichen Konzentrationen von Substanzen ausgesetzt, die ER-, mitochondriellen oder oxidativen Stress induzieren. Als Beispiel haben wir steigende Dosen jedes Stressfaktors eingesetzt und die optimale Dosis titriert, um Unterschiede in der Stressresistenz zwischen einem RIC-Neuron-ablatierten Stamm und dem Wildtyp-Stamm zu bestimmen. Unter Stressbedingungen wird das Überleben von C. elegans stündlich oder täglich überwacht, und Überlebenskurven werden erstellt und verglichen, um unterschiedliche Fähigkeiten zur Stressresistenz in verschiedenen C. elegans-Stämmen zu identifizieren. Diese Methoden bieten einen reproduzierbaren Ansatz zur Bewertung der Resistenz gegenüber mehreren Stressfaktoren über eine Bandbreite von Dosen und Zeitskalen hinweg bei C. elegans-Stämmen des Wildtyps, von Mutanten oder von Stämmen mit manipulierten Neuronen und tragen zudem dazu bei, die molekularen und neuronalen Mechanismen aufzudecken, die mehreren Stressfaktoren zugrunde liegen.
Einleitung
Organismen sind im Laufe ihres Lebens einer Vielzahl von Umweltbelastungen ausgesetzt. Die meisten Stressfaktoren, darunter Hitze, Hypoxie, Strahlung, oxidativer Stress, osmotischer Stress und pathogener Stress, verursachen zelluläre Funktionsstörungen und Störungen des Gleichgewichts, die intrazelluläre Stressreaktionen auslösen. Organismen haben hochkonservierte Signalwege zur Stressbewältigung entwickelt, um mit wechselnden Umweltbedingungen und Stressfaktoren umzugehen. Zu diesen konservierten Stressreaktionswegen gehören die Hitzeschockreaktion (HSR)1, die Antwort auf fehlgefaltete Proteine (UPR) im endoplasmatischen Retikulum (ER) und in den Mitochondrien2 sowie die Antwort auf oxidativen Stress3. Übergeordnete Regulatoren verschiedener Stressreaktionswege, meist Transkriptionsfaktoren, induzieren die Expression entsprechender Gene, um die Proteostase wiederherzustellen und das Überleben der Zellen zu fördern4. Zu diesen Reaktionen zählen die Synthese von Chaperonen, die fehlgefaltete Proteine neu falten, sowie der Abbau beschädigter Proteine durch Proteinverwertung4. Wenn die Aktivierung von Stressreaktionen versagt, sammeln sich beschädigte Proteine im Zytoplasma oder in Organellen an, was zu zellulären und Gewebestörungen führt. Ein Ungleichgewicht in der zellulären Stressreaktion wurde mit einer Vielzahl chronischer Erkrankungen in Verbindung gebracht, die von neurodegenerativen Erkrankungen bis zum metabolischen Syndrom reichen5,6. Im Gegensatz dazu führt eine angemessene Aktivierung der Stressreaktionswege zu einer Verbesserung der Gesundheitsspanne und einer erheblichen Verlängerung der Lebensdauer7. Daher ist es wichtig, die molekularen Mechanismen der Stressresistenz zu untersuchen, um die schützende Stressreaktion für die Verbesserung der Gesundheit nutzbar zu machen. Deshalb ist es notwendig, reproduzierbare Methoden und Techniken zu etablieren, um die Stressresistenz bei lebenden Tieren präzise zu quantifizieren.
Entdeckungen der letzten 15 Jahre haben gezeigt, dass neuronale Signalübertragung die Stressresistenz in mehreren Arten verbessert8. Erste Befunde zeigten, dass die HSR und die ER-UPR in Neuronen ausreichen, um die Stressantwort in nicht-neuronalen Geweben zu aktivieren, wodurch das Konzept der zellautonomen unabhängigen Regulation der Stressresistenz etabliert wurde8,9,10. Seit dieser ersten Entdeckung hat sich gezeigt, dass mehrere Signalwege der Stressresistenz auf Umweltreize reagieren und mithilfe neuronaler Signalübertragung die Stressresistenz fördern. Insbesondere die HSR10,11, die ER-UPR12,13, die mitochondriale unfolded protein response (UPRmt)14,15 und die oxidative Stressantwort3 fördern jeweils die Stressresistenz zellautonom unabhängig über Neuronen. Der Mechanismus der zellautonomen unabhängigen Regulation der Stressresistenz ist bei Organismen konserviert, darunter die Fruchtfliege D. melanogaster16,17,18,19 und Mäuse20,21.
Um die Erforschung der Rolle von Neuronen bei der Stressresistenz unter mehreren Stressfaktoren zu unterstützen, stellen wir hier ein systematisches Protokoll zur Untersuchung der Resistenz gegenüber vier neuronregulierten Stressfaktoren vor: Hitzestress, ER-Stress, mitochondriale Stressbelastung und oxidativer Stress. C. elegans, ein gut handhabbares Modellorganismus, wurde verwendet, um die Stressresistenz gegenüber diesen vier Stressfaktoren zu messen. Die Verwendung von C. elegans in Assays zur Stressresistenz ermöglicht nicht nur die Untersuchung der Aktivierung von Stressantworten auf zellulärer Ebene, sondern auch auf organismischer Ebene.
Die durch Hitzestress, ER-Stress, mitochondriale Stress und oxidativen Stress aktivierten Stressantwortwege sind bei Organismen einschließlich des Menschen konserviert und funktionell wichtig22,23,24,25. Hitzestress führt zur fehlerhaften Faltung und Aggregation von Proteinen und aktiviert die Hitzeschockantwort, die für die Aufrechterhaltung der Proteinhomöostase entscheidend ist26. Die physiologische Umgebungstemperatur von C. elegans beträgt 20 °C, wobei wärmere Temperaturen über 25 °C Hitzestress bei C. elegans induzieren27. Wir induzieren Hitzestress bei drei erhöhten Belastungstemperaturen: 30 °C, 35 °C und 37 °C.
Das ER ist der primäre Ort für die Proteinsynthese und -faltung28. Die Anhäufung ungefalteter oder falschgefalteter Proteine im ER-Lumen aktiviert die Antwort auf ungefaltete Proteine, um die Proteostase wiederherzustellen29. ER-Stress kann durch einen chemischen Stoff, Tunicamycin, induziert werden, der die N-gekoppelte Glykosylierung blockiert und zur Anhäufung falschgefalteter Proteine im ER-Lumen führt30. Eine erhöhte Resistenz gegenüber dem durch Proteinfehlfaltung verursachten Stress im ER-Lumen zeigt ein erhöhtes Überleben an12. Wir setzen Würmer verschiedenen Dosen Tunicamycin (25–200 µg/mL) aus und bewerten ihre Empfindlichkeit, indem wir ihr Überleben messen.
Mitochondrien sind das zelluläre Stoffwechselzentrum und die „Kraftwerke“ der Zelle. Reaktive Sauerstoffspezies (ROS) und entfaltete Proteine in den Mitochondrien lösen die mitochondriale Entfaltungsproteinantwort aus und induzieren mitochondrialen Stress31. Mitochondrialer Stress kann durch Antimycin A hervorgerufen werden, ein Inhibitor des mitochondrialen Komplexes III, der den Elektronentransfer blockiert und die Produktion von ROS verursacht32. Wir verwenden verschiedene Konzentrationen von Antimycin A (5–80 µg/mL), um eine optimale Dosis für den Assay zur Bestimmung der mitochondrialen Stressresistenz zu ermitteln.
Oxidativer Stress wird in der Regel durch Umweltgifte und vom Stoffwechsel erzeugte zelluläre freie Radikale hervorgerufen. Oxidativer Stress schädigt Proteine, Lipide und DNA in allen Organismen33. Paraquat, eine Herbizidchemikalie, die Elektronen auf Sauerstoff überträgt und übermäßige Mengen an Superoxid-Radikalen erzeugt, ist ein starker Auslöser oxidativen Stresses34. Wir wenden vier steigende Dosen Paraquat (2,5–20 mM) an und zeigen eine Spanne maximaler Überlebenszeiten zwischen 3 und 12 Tagen in C. elegans.
Diese vier Stressbedingungen sind einfach herzustellen und ermöglichen hochreproduzierbare Ergebnisse zur Stressresistenz in C. elegans. Methoden zur Bestimmung der Stressresistenz wurden bereits früher beschrieben35,36,37,38,39,40. Im Vergleich zu einer früher veröffentlichten Übersichtsarbeit, die verschiedene Stressoren und Überlebensanalysen zusammenfasst35, stellt dieser Artikel detaillierte, praktikable Schritt-für-Schritt-Anleitungen für reproduzierbare und konsistente Stresstests bereit. Mehrere früher veröffentlichte Protokolle konzentrieren sich auf einen spezifischen Stresstest, beispielsweise Hitzeschock36 oder oxidativen Stress38; dieses Protokoll hingegen beschreibt alle vier verschiedenen Stresstests: Wärme-, ER-, mitochondriale und oxidative Stressbelastung. In früheren Arbeiten beschriebene Protokolle für Stresstests verwenden zudem unterschiedliche Endpunktanalysen mit fluoreszierenden Reportern, wie beispielsweise wegsspezifische fluoreszierende transkriptionelle Reporter für ER-, mitochondriale und oxidative Stressbelastung40 oder Hitzeschockantwort39; im Gegensatz dazu verwendet dieses Protokoll Überlebensassays, um den allgemeinen Gesundheitszustand von C. elegans effektiv zu messen. Wichtig ist, dass dieses Protokoll eine Dosistitration für alle vier Assays enthält, um Referenzen für den wirksamen Dosisbereich bereitzustellen, aus dem geeignete Dosen für Stresstests ausgewählt werden können; außerdem wurde die zeitliche Skala (von Stunden bis Tagen) in den verschiedenen Stressassays optimiert; zusätzlich wird als Beispiel gezeigt, wie ein Neuron die Regulation mehrerer Stressantworten beeinflusst, um zu überprüfen, ob Neuronen die Stressresistenz steuern.
Die Entwicklung eines Stressresistenz-Assays erfordert die Auswahl eines geeigneten Stressors und einer zuverlässigen Bewertungsmetrik. C. elegans-Überlebensassays haben sich als leistungsfähige Werkzeuge zur Messung physiologischer Prozesse erwiesen, einschließlich Lebensdauer, Stressresistenz und pathologischer Infektionen. Ein entscheidender Vorteil bei der Verwendung von C. elegans für Überlebensassays liegt darin, dass synchronisierte Würmer gleichen Alters aufgrund der Selbstbefruchtung, der großen Nachkommenschaftsanzahl und des kurzen dreitägigen Entwicklungzyklus von der Ei- bis zur jungen Erwachsenenstufe einfach hergestellt und getestet werden können. Männliche Tiere kommen in natürlichen Populationen kultivierter C. elegans selten vor und werden daher im Allgemeinen nicht für Überlebensassays verwendet – auch nicht in diesem Protokoll – und dienen hauptsächlich genetischen Kreuzungen35. Im Vergleich zu anderen Endpunkt-Bewertungsmethoden (z. B. fluoreszierende Reporter, Anreicherung von Proteinen und Lipiden) eignen sich Überlebensassays gut zur Beurteilung der Gesamtgesundheit von C. elegans und sind relativ schnell abgeschlossen, typischerweise innerhalb von Stunden bis mehreren Wochen, abhängig von der Dosis der Stressoren. Wir verwenden Überlebensraten als primären Indikator für die Stressresistenz verschiedener C. elegans-Stämme. Das Überleben wird anhand der Beweglichkeit und der Reaktion auf sanfte mechanische Reize bestimmt; das Fehlen einer Reaktion auf Reizung gilt als Kriterium für den Tod in C. elegans-Stressassays. Überlebensassays an C. elegans können sowohl in festen als auch in flüssigen Medien mit bakterieller Nahrung durchgeführt werden35. Allerdings stellt das flüssige Medium nicht den natürlichen Lebensraum der Würmer dar, und die Würmer sind gezwungen, in der flüssigen Kultur ständig zu zappeln, was zu einer verkürzten Überlebenskurve führt41. Hier verwenden wir feste Medien, um die Auswirkungen unterschiedlicher Stressorkonzentrationen auf das Überleben von Wildtyp- und neuronablatierten Mutantenwürmern zu untersuchen. Diese konzentrationsabhängigen Daten können anderen Forschern als Orientierungshilfe bei der Durchführung vergleichbarer Stressresistenz-Assays dienen.
Protokoll
Experimente mit C. elegans wurden an der Kansas State University in Manhattan, KS, USA, gemäß den internen Biosicherheits- und Laborrichtlinien durchgeführt. Da C. elegans ein wirbelloser Modellorganismus ist, war für diese Studie keine Genehmigung durch einen Tierversuchsausschuss für Wirbeltiere erforderlich. Die Einzelheiten zu allen verwendeten Reagenzien, Geräten, Softwareprogrammen und Stämmen sind in der Tabelle der Materialien aufgeführt.
1. NGM-Platten (Nematoden-Wachstumsmedium) herstellen und Escherichia coli OP50 vorbereiten
- NGM-Platten herstellen
- Wiegen Sie 3 g NaCl, 17 g Agar (pulverisiert) und 2,5 g Pepton ab, geben Sie 900 mL ultrareines, deionisiertes (dd) H₂O hinzu2O und auf ein Endvolumen von 1 L auffüllen, anschließend sterilisieren durch Autoklavieren. Das Medium auf etwa 60 °C in einem 60 °C Wasserbad
- Geben Sie 1 mL 1 M CaCl₂ hinzu.2 (in ddH₂O hergestellt)2O und filtratsterilisiert), 1 mL Cholesterin 5 mg/mL (in Ethanol hergestellt und filtratsterilisiert), 1 mL MgSO4 1 M (in ddH₂O hergestellt und filtratsterilisiert)2O und filtriert sterilisiert) und 25 mL 1 M KP-Puffer.
Zur Herstellung von KP-Puffer 130 mL 1 M K2HPO4 mit 870 mL 1 M KH2PO4 in ddH₂O hergestellt2O. Nach gründlichem Mischen den pH-Wert auf 6,0 einstellen. Nach der Zubereitung liegt der gemessene pH-Wert typischerweise nahe bei 6,0, und eine weitere Anpassung ist nicht erforderlich. Der zulässige pH-Bereich für den KP-Puffer liegt zwischen 5,8 und 6,2, wobei ein Ziel-pH-Wert von 6,0 angestrebt wird. Überprüfen Sie vor der Verwendung, ob der endgültige pH-Wert etwa 6,0 beträgt. Falls erforderlich, mit 1 M K2HPO4 oder 1 M KH2PO4. - Gründlich mischen und das Medium (NGM) auf Petrischalen auftragen. Für 60-mm-Schalen je Schale 10 mL NGM-Medium verwenden; für 35-mm-Platten jeweils 3 mL NGM-Medium pro Platte geben. Die NGM-Agarplatten bei Raumtemperatur (22–25 °C) auf einer flachen Bank mindestens 24 Stunden vor der Aussaat der bakteriellen Nahrungsquelle
ACHTUNG: Verwenden Sie beim Zubereiten und Gießen von geschmolzenem NGM-Agar hitzebeständige Handschuhe und geeignete Labor-Schutzausrüstung, um Verbrennungen und eine Exposition gegenüber heißer Flüssigkeit zu vermeiden.
- Vorbereiten Escherichia coli OP50-Bakterien als Nahrung für Caenorhabditis elegans
- Strich Escherichia coli OP50-Bakterien auf eine Luria-Bertani- (LB-)Agarplatte und inkubieren bei 37 °C über Nacht (LB-Agarplatten: 1 g NaCl, 1 g Tryptone, 0,5 g Hefeextrakt und 1,5–2,0 g Agarpulver in 100 mL ddH₂O)2O, sterilisieren Sie 20 min im Autoklaven, abkühlen auf 50–60 °C und das Medium in die Platten geben. Auf einer sauberen, ebenen Fläche platzieren und trocknen lassen.
- Inokulieren Sie eine einzelne Kolonie in 100 mL flüssiges LB-Medium (LB-Medium: 1 g NaCl, 1 g Tryptone und 0,5 g Hefeextrakt in 100 mL ddH₂O).2O, sterilisieren Sie durch Autoklavieren für 20 min. Abkühlen lassen auf unterhalb 37 °C vor der Inokulation).
- Kultivieren Sie die Bakterien in einem 37 °C Schüttelinkubator, bis die bakterielle Suspension in einer 10-fachen Verdünnung eine optische Dichte bei 600 nm (OD600) von etwa 0,3 erreicht100 µL von Bakteriensuspension, gemischt mit 900 µL des LB-Mediums). Die Bakteriensuspension ernten und bei 4 °CDie bakterielle Nahrung kann bis zu einer Woche lang aufbewahrt werden, bevor sie auf eine NGM-Platte ausgestrichen wird.40.
- Verwenden Sie einen Repeat-Pipettor, um OP50-Bakterien auf die NGM-Platten auszusäen. Säen Sie 200 µL für 60-mm-Agarplatten und 100 µL für 35-mm-Agarplatten. Lagern Sie die beimpften NGM-Platten bei Raumtemperatur (~22–25 °C) auf einer flachen Unterlage mindestens 24 Stunden vor Gebrauch. Belassen Sie die Platten nicht länger als 48 Stunden bei Raumtemperatur. Stellen Sie die beimpften Platten in eine saubere Kunststoffbox und lagern Sie sie bei 4 °C.
HINWEIS: Bei Verwendung von nicht belüfteten Platten benötigt das ausgesäte OP50 möglicherweise länger zum Trocknen.
ACHTUNG: Handhaben Sie E. coli OP50-Kulturen unter Verwendung geeigneter mikrobiologischer Verfahren bearbeiten und Laborkittel, Handschuhe und Augenschutz tragen. Arbeitsflächen desinfizieren und bakterielle Abfälle gemäß den institutionellen Sicherheitsvorschriften für den Umgang mit biologischem Material entsorgen.
2. Haltung und Synchronisation von C. elegans
Der Arbeitsablauf dieses Abschnitts ist in Abbildung 1A zusammengefasst.
- Halten Sie die Würmer bei 20 °C auf NGM-Platten, die mit OP50 besiedelt wurden, indem Sie erwachsene Tiere zweimal wöchentlich auf neue, mit OP50 besiedelte NGM-Platten übertragen, um eine Verhungerung der Würmer zu vermeiden. Übertragen Sie 20–40 befruchtete erwachsene Würmer mit einem Platindraht auf eine frische, mit OP50 besiedelte NGM-Platte und entfernen Sie alle Larven und Eier, die zusammen mit den befruchteten erwachsenen Würmern von der ursprünglichen Platte übertragen wurden. Die Verwendung einer bekannten Anzahl befruchteter Würmer erleichtert eine genaue Dokumentation und gewährleistet deren vollständige Entfernung im späteren Schritt (Abschnitt 1.2).
HINWEIS: Eine Gesamtanzahl von 20–40 befruchteten Würmern reicht aus, um innerhalb von 2 Stunden 80–120 Eier zu produzieren, basierend auf den Eigenschaften eines Wildtyp-Stamms (N2). Die Eiablage befindet sich im optimalen Zeitfenster, wenn die befruchteten erwachsenen Tiere am ersten Tag (Tag 1) des Erwachsenenalters stehen. Für Stämme mit geringerer oder höherer Fruchtbarkeit sollte die Anzahl der befruchteten Würmer entsprechend angepasst werden. Ziel dieses Schritts ist es, ausreichend Eier zu erhalten, die sich zu synchronisierten Würmern entwickeln, die anschließend in Stressassays verwendet werden können. - Entfernen Sie nach etwa 2 Stunden die befruchteten Würmer von der Platte. Zählen Sie die Anzahl der in diesem Schritt entfernten befruchteten Würmer und vergewissern Sie sich, dass alle 20–40 befruchteten Würmer, die zuvor auf die Platte übertragen wurden, entfernt wurden.
- Inkubieren Sie die Platten mit den Eiern bei 20 °C, bis die Würmer das späte L4-Stadium für die Stressassays erreichen. Synchronisieren Sie die Würmer im L4-Stadium, um Variabilität, die durch Unterschiede im Erwachsenenalter und reproduktivem Status entsteht, zu minimieren12,35,37,38,40,42,43. Bei 20 °C erreichen die Würmer im Wildtyp-Stamm das einheitlich synchronisierte späte L4-Stadium etwa 54–58 Stunden nach der Ablage der Eier auf festen Agarplatten (eigene Beobachtung und 36,40).
HINWEIS: Bei Entwicklungsverzögerungen im Wachstum sollten die Synchronisationszeiten für das späte L4-Stadium entsprechend der spezifischen Entwicklungsrate des jeweiligen Stammes angepasst werden.
ACHTUNG: Behandeln Sie C. elegans unter Beachtung geeigneter mikrobiologischer Praktiken und tragen Sie einen Laborkittel sowie Handschuhe, um die Exposition gegenüber biologischem Material zu minimieren und Kontaminationen zu verhindern.
3. Stressbedingung und Datenerfassung
- Hitzebelastungstest
Ablauf dieses Abschnitts wird zusammengefasst in Abbildung 1B.- Synchronisieren Sie die Würmer auf das späte L4-Stadium (Abschnitt 2) und halten Sie sie bei 20 °C. Überführen Sie die synchronisierten Würmer im L4-Stadium auf 35-mm-NGM-Platten, die mit OP50 beimpft wurden (Abschnitt 1), wobei 4 Platten pro Gruppe als technische Wiederholungen verwendet werden und jeweils 30–35 Würmer pro Platte enthalten sind. Für den Aufbau biologischer Wiederholungen siehe Abschnitt 4.
- Stellen Sie die Platten mit den Würmern im späten L4-Stadium in ein 30, 35 oder 37 °C Inkubator. Stellen Sie sicher, dass der Inkubator die eingestellte Temperatur erreicht hat, bevor die Platten mit den untersuchten Würmern hineingelegt werden. Die mittlere Überlebensrate von Wildtyp-Würmern unter 30, 35 oder 37 °C reicht von etwa 4 h bis 3 Tage (Abbildung 2B–D) im Vergleich zu einer physiologisch nicht belasteten mittleren Überlebensdauer von etwa 20 Tagen (Abbildung 2A).
ENTSCHENDE SCHRITT: Legen Sie alle Testplatten mit der Agarseite nach unten als einzige Schicht in die 35 °C Brutkasten, um eine schnelle und gleichmäßige Temperaturangleichung zu ermöglichen.
HINWEIS: Während Hitzestress-Assays bei 30, 35 oder 37 °C, legen die meisten Würmer keine Eier ab. In den seltenen Fällen, in denen doch Eier abgelegt werden, wird beobachtet, dass keines der Eier schlüpft. Daher ist das Übertragen der Würmer auf frische Platten nicht erforderlich. - Bewerten Sie die Anzahl der toten Würmer zu jedem Zeitpunkt auf jeder technischen Wiederholungsplatte und notieren Sie die Anzahl auf einem Auswertungsdatenblatt. Das Überleben der Würmer wird stündlich unter 35 °C oder 37 °C Hitzestress und einmal täglich unter 30 °C Hitzestress. Die Auswertung erfolgt bei Raumtemperatur unter dem Stereomikroskop. Während der Auswertung sollte nur die gerade untersuchte Platte aus dem Inkubator entnommen werden; alle anderen Platten müssen zur Minimierung von Unterbrechungen der Hitzestress-Behandlung bei der vorgegebenen Hitzestress-Temperatur verbleiben. Diese Vorgehensweise trägt dazu bei, einheitliche experimentelle Bedingungen für alle Proben aufrechtzuerhalten.
ENTSCHENDE SCHRITT: Um Unterbrechungen der Hitzestress-Belastung zu minimieren, sollte jede Platte während jeder Auswertungssitzung nicht länger als 3 min außerhalb des Inkubators bleiben. Abhängig vom Überleben der Würmer zu verschiedenen Zeitpunkten während des Stressassays dauert die Auswertung einer Platte bei Raumtemperatur typischerweise etwa 30 s bis 3 min. Die Reihenfolge der Auswertung ist aufgrund der für die manuelle Auswertung benötigten Zeit von Bedeutung. Wir empfehlen, jeweils eine technische Replikatplatte aus jeder Bedingung nacheinander zu bearbeiten, bis alle technischen Replikate in allen Bedingungen ausgewertet sind. Beispielsweise bei drei Bedingungen/Gruppen (A, B und C) mit jeweils 4 technischen Replikatplatten sollte die Reihenfolge wie folgt angeordnet werden: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4 - Beurteilen Sie das Überleben der Würmer basierend auf ob eine Bewegungsreaktion auf leichte mechanische Reizung beobachtet werden kann. Würmer mit aktiver Fortbewegung werden als lebend gewertet, eine zusätzliche mechanische Reizung ist nicht erforderlich. Bei Würmern, die keine spontane Bewegung zeigen, erfolgt eine leichte Reizung durch zweimaliges Berühren des hinteren Körperteils mit einem Platindraht. Das Fehlen einer Bewegungsreaktion wird als Tod dokumentiert, und der tote Wurm wird nach der Erfassung von der Platte entfernt. Eine Beobachtungsdauer von etwa 2 s nach jeder Berührung genügt, um das Vorhandensein einer Bewegungsreaktion festzustellen. Zur Erfassung der Anzahl lebender und toter Würmer wird die Verwendung eines manuellen Zählgeräts empfohlen, um Zählfehler zu vermeiden. Um sicherzustellen, dass alle Würmer genau einmal gezählt werden, sollte eine durchsichtige Kunststofffolie mit eingezeichnetem Raster unter die Platte gelegt oder ein Raster auf den Boden der Platte gezeichnet werden, um die Platte in Zählabschnitte zu unterteilen.
HINWEIS: Die Platten nach der Auswertung unverzüglich in den Inkubator für die Wärmebehandlungsbedingung zurückstellen. - Überwachen Sie das Überleben der Würmer in regelmäßigen Abständen, bis alle Tiere verstorben oder gemäß der vorab festgelegten Kriterien zensiert sind. Sammeln Sie die erfassten Überlebensdaten und nutzen Sie diese zur Erstellung von Überlebenskurven für die anschließende Analyse.
- ER-Stress-Assay
Ablauf dieses Abschnitts wird zusammengefasst in Abbildung 1C.- Bereiten Sie ER-Stress-Assay-Mediumplatten vor. Geben Sie die Tunicamycin-Standardlösung (10 mg/mL in Dimethylsulfoxid (DMSO), bei –20 °C) in das flüssige NGM-Medium (aus Abschnitt 1.1.2) zu einer Endkonzentration von 25, 50, 100 oder 200 µg/mL. Zum Beispiel für 1 L ER-Stress-Assay-Medium 2,5, 5, 10 oder 20 mL Tunicamycin-Stocklösung (10 mg/mL in DMSO) hinzufügen, um eine Endkonzentration von 25, 50, 100 oder 200 µg/mL Tunicamycin in die Mediumplatten. Wenn eine unbehandelte Kontrolle in den Assay eingeschlossen wird, dieselbe Menge DMSO (2,5, 5, 10 oder 20 µL) zum entsprechenden Kontrollmedium hinzufügen.
KRITISCHER SCHRITT: Das sterilisierte NGM-Medium auf etwa 55 °C unter Rühren und Tunicamycin auf die gewünschte Endkonzentration zugeben. Gründlich mischen, bevor 3 mL des NGM-Mediums mit Tunicamycin in jede 35-mm-Platte gegeben werden. Jede 35-mm-Agarplatte mit 100 µL OP50-Bakterien (Abschnitt 1.2). Mit OP50 besiedelte NGM-Platten mit Tunicamycin können bei 4 °C bis zu einer Woche vor der Verwendung.
ACHTUNG: Tunicamycin ist gefährlich und muss in einem Abzug unter Verwendung eines Laborkittels, Handschuhen und Augenschutzes gehandhabt werden. Inhalation sowie Haut- und Augenkontakt sind zu vermeiden. - Synchronisieren Sie die Würmer auf das späte L4-Stadium (Abschnitt 2) und halten Sie sie bei 20 °C. Überführen Sie die synchronisierten Würmer im L4-Stadium auf 35-mm-NGM-Platten, die mit OP50 und Tunicamycin besiedelt sind, wobei 4 Platten pro Gruppe als technische Wiederholungen verwendet werden, mit jeweils 30–35 Würmern pro Platte. Für den Aufbau der biologischen Wiederholungen siehe Abschnitt 4.
- Inkubieren Sie alle Platten bei 20 °C. Notieren Sie die Anzahl der toten Würmer täglich. Die mittlere Überlebensdauer von Wildtyp-Würmern unter 25, 50, 100 oder 200 µg/mL Tunicamycin reicht von ungefähr 8 bis 11 Tagen (Abbildung 2E,) im Vergleich zu einer physiologisch nicht belasteten mittleren Überlebensdauer von etwa 20 Tagen (Abbildung 2A).
HINWEIS: Bei dem durch Tunicamycin induzierten ER-Stress-Assay werden Eier gelegt, diese schlüpfen jedoch nicht auf Agarplatten, die Tunicamycin enthalten. Daher ist es nicht notwendig, die Würmer auf frische Platten zu übertragen. - Bewerten Sie die Anzahl der toten Würmer auf jeder technischen Wiederholungsplatte täglich und notieren Sie die Zahl auf einem Erfassungsbogen. Die Bewertung erfolgt manuell unter einem Stereomikroskop am Laborarbeitsplatz bei Raumtemperatur. Würmer mit aktiver Fortbewegung gelten als lebendig; eine physische Stimulierung ist in diesen Fällen nicht erforderlich. Bei Würmern ohne spontane Bewegung erfolgt eine vorsichtige Reizung durch zweimaliges Berühren des hinteren Körperteils mit einem Platindraht. Fehlt eine Reaktion, wird der Wurm als tot gewertet und nach der Erfassung von der Platte entfernt. Zur genauen Zählung wird die Verwendung eines manuellen Zählergeräts empfohlen. Um sicherzustellen, dass jeder Wurm nur einmal gezählt wird, legen Sie eine durchsichtige Kunststofffolie mit eingezeichnetem Raster unter die Platte oder zeichnen Sie ein Raster auf den Boden der Platte, um diese in Zählabschnitte zu unterteilen.
HINWEIS: Die Platten nach der Auswertung unverzüglich in den Inkubator zurückstellen. Die Würmer vor der nächsten Auswertung etwa 24 Stunden im Inkubator belassen. - Überwachen Sie das Überleben der Würmer täglich, bis alle Tiere verendet sind oder gemäß der vorab festgelegten Kriterien zensiert werden. Sammeln Sie die erfassten Überlebensdaten und verwenden Sie sie zur Erstellung von Überlebenskurven für die anschließende Analyse.
- Bereiten Sie ER-Stress-Assay-Mediumplatten vor. Geben Sie die Tunicamycin-Standardlösung (10 mg/mL in Dimethylsulfoxid (DMSO), bei –20 °C) in das flüssige NGM-Medium (aus Abschnitt 1.1.2) zu einer Endkonzentration von 25, 50, 100 oder 200 µg/mL. Zum Beispiel für 1 L ER-Stress-Assay-Medium 2,5, 5, 10 oder 20 mL Tunicamycin-Stocklösung (10 mg/mL in DMSO) hinzufügen, um eine Endkonzentration von 25, 50, 100 oder 200 µg/mL Tunicamycin in die Mediumplatten. Wenn eine unbehandelte Kontrolle in den Assay eingeschlossen wird, dieselbe Menge DMSO (2,5, 5, 10 oder 20 µL) zum entsprechenden Kontrollmedium hinzufügen.
- Mitochondrieller Stress-Test
Ablauf dieses Abschnitts wird zusammengefasst in Abbildung 1D.- Stellen Sie Platten mit Medium für den mitochondriale Stress-Test her. Geben Sie Antimycin A-Stammlösung (5 mg/mL in DMSO, bei –20 °C) in das flüssige NGM-Medium (aus Abschnitt 1.1.2) zu einer Endkonzentration von 5, 10, 20, 40 oder 80 µg/mLZum Beispiel für 1 L mitochondriales Stress-Testmedium 1, 2, 4, 8 oder 16 mL Antimycin A-Stammlösung (5 mg/mL in DMSO) hinzufügen für eine Endkonzentration von 5, 10, 20, 40 oder 80 µg/mL Antimycin A in die Mediumplatten. Falls eine unbehandelte Kontrolle im Assay enthalten ist, die gleiche Menge DMSO (1, 2, 4, 8 oder 16 µL) zum entsprechenden Kontrollmedium hinzufügen.
ENTSCHLIEßENDER SCHRITT: Das autoklavierte NGM-Medium auf etwa 55 °C unter Rühren und Antimycin A bis zur gewünschten Endkonzentration zugeben. Vor dem Befüllen von jeweils 3 mL des NGM-Mediums mit Antimycin A in jede 35-mm-Platte gründlich mischen. Jede 35-mm-Agarplatte mit 100 µL OP50-Bakterien (Abschnitt 1.2). Mit OP50 besiedelte NGM-Platten mit Antimycin A können aufbewahrt werden bei 4 °C bis zu einer Woche vor der Verwendung.
ACHTUNG: Antimycin A ist gefährlich und muss in einer chemischen Abzugshaube unter Verwendung eines Laborkittels, geeigneter Handschuhe und Augenschutzes gehandhabt werden. Inhalation sowie Haut- und Augenkontakt sind zu vermeiden. - Synchronisieren Sie die Würmer auf das späte L4-Stadium (Abschnitt 2) und halten Sie sie bei 20 °C. Überführen Sie die synchronisierten Würmer im L4-Stadium auf 35-mm-NGM-Platten, die mit OP50 besät und mit Antimycin A versetzt sind, wobei 4 Platten pro Gruppe als technische Replikate verwendet werden und jeweils 30–35 Würmer pro Platte enthalten sind. Für den Aufbau biologischer Replikate siehe Abschnitt 4.
- Inkubieren Sie alle Platten bei 20 °C. Notieren Sie die Anzahl der toten Würmer täglich.
ENTSCHENDE SCHRITT: Aufgrund von Problemen mit der Eiablage und der Larvenentwicklung müssen Würmer während der ersten 10 Tage alle zwei Tage auf frische Platten übertragen werden. Die Übertragung ist einzustellen, sobald keine neuen Larven oder Eier mehr auf der Platte beobachtet werden. Alle technischen Replikate müssen die gleiche Anzahl von Übertragungen durchlaufen. Beispielsweise müssen, wenn nur eine Platte eine Übertragung erfordert, alle Platten dieses biologischen Replikats gleichzeitig übertragen werden. Die mittlere Überlebensdauer von Wildtyp-Würmern unter 5, 10, 20, 40 oder 80 µg/mL antimycin A reicht von etwa 1,5 bis 5 Tagen (Abbildung 2G, H) im Vergleich zu einer physiologisch nicht belasteten mittleren Überlebenszeit von etwa 20 Tagen (Abbildung 2A).
HINWEIS: Der Antimycin A-induzierte Mitochondriostress-Assay erfordert das Übertragen der Würmer alle zwei Tage auf frische Platten während der ersten 10 Tage. Das Übertragen dient dazu, Überbevölkerung und Verhungern zu verhindern sowie die experimentellen Würmer von ihrem Nachwuchs zu trennen. - Bewerten Sie die Anzahl der toten Würmer auf jeder technischen Wiederholungsplatte täglich und notieren Sie die Zahl auf einem Bewertungsdatenblatt. Die Bewertung erfolgt manuell unter einem Stereomikroskop am Arbeitsplatz bei Raumtemperatur. Würmer mit aktiver Bewegung gelten als lebendig, wobei keine physische Stimulation erforderlich ist. Bei Würmern, die keine spontane Bewegung zeigen, erfolgt eine vorsichtige Stimulation durch zweimaliges Berühren des hinteren Körperteils mit einem Platindraht. Fehlt die Reaktion, wird der Wurm als tot gewertet und nach der Erfassung von der Platte entfernt. Zur genauen Zählung wird die Verwendung eines manuellen Zählgeräts empfohlen. Um sicherzustellen, dass alle Würmer genau einmal gezählt werden, platzieren Sie eine durchsichtige Kunststofffolie mit eingezeichnetem Raster unter die Platte, oder zeichnen Sie ein Raster an der Unterseite der Platte, um die Platten in Gitterabschnitte zur Zählung einzuteilen.
HINWEIS: Die Würmer nach der Auswertung unverzüglich in den Inkubator zurückstellen. Die Würmer vor der nächsten Auswertung etwa 24 Stunden im Inkubator belassen. - Überwachen Sie täglich das Überleben der Würmer, bis alle Tiere verstorben sind oder gemäß der vorab festgelegten Kriterien zensiert werden. Erfassen Sie die dokumentierten Überlebensdaten und nutzen Sie diese zur Erstellung von Überlebenskurven für die anschließende Analyse.
- Stellen Sie Platten mit Medium für den mitochondriale Stress-Test her. Geben Sie Antimycin A-Stammlösung (5 mg/mL in DMSO, bei –20 °C) in das flüssige NGM-Medium (aus Abschnitt 1.1.2) zu einer Endkonzentration von 5, 10, 20, 40 oder 80 µg/mLZum Beispiel für 1 L mitochondriales Stress-Testmedium 1, 2, 4, 8 oder 16 mL Antimycin A-Stammlösung (5 mg/mL in DMSO) hinzufügen für eine Endkonzentration von 5, 10, 20, 40 oder 80 µg/mL Antimycin A in die Mediumplatten. Falls eine unbehandelte Kontrolle im Assay enthalten ist, die gleiche Menge DMSO (1, 2, 4, 8 oder 16 µL) zum entsprechenden Kontrollmedium hinzufügen.
- Test zum oxidativen Stress
Ablauf dieses Abschnitts wird zusammengefasst in Abbildung 1E.- Herstellung von Mediumplatten für den Oxidativstress-Assay. Paraquat-Stocklösung (0,5 M in ddH₂O) zugeben.2O, gelagert bei –20 °C) in das flüssige NGM-Medium (aus Abschnitt 1.1.2) zu einer Endkonzentration von 2,5, 5, 10 oder 20 mM.
ENTSCHIDENDER SCHRITT: Das sterilisierte NGM-Medium auf etwa 55 °C unter Rühren und Paraquat zur gewünschten Endkonzentration hinzufügen. Gründlich mischen, bevor 3 mL des NGM-Mediums mit Paraquat auf 35-mm-Platten gegeben werden. Jede 35-mm-Agarplatte mit 100 µL OP50-Bakterien (Abschnitt 1.2). Die OP50-Bakterien können 2–3 Tage vor der Assaydurchführung ausgesät werden. Mit OP50 besiedelte NGM-Platten mit Paraquat können aufbewahrt werden bei 4 °C bis zu einer Woche vor der Verwendung.
ACHTUNG: Paraquat ist hochgiftig und muss in einer chemischen Abzugsanlage unter Verwendung geeigneter Handschuhe, eines Laborkittels und Augenschutzes gehandhabt werden. Inhalation, Aufnahme über den Mund und Kontakt mit Haut oder Augen sind zu vermeiden. - Synchronisieren Sie die Würmer auf das späte L4-Stadium (Abschnitt 2) und halten Sie sie bei 20 °C. Überführen Sie die synchronisierten Würmer im L4-Stadium auf 35-mm-NGM-Platten, die mit OP50 und Paraquat beimpft sind, wobei 4 Platten pro Gruppe als technische Replikate verwendet werden, mit jeweils 30–35 Würmern pro Platte. Für den Aufbau der biologischen Replikate siehe Abschnitt 4.
- Inkubieren Sie alle Platten bei 20 °C. Notieren Sie die Anzahl der toten Würmer täglich. Die mittlere Überlebensdauer von Wildtyp-Würmern unter 2,5, 5, 10 oder 20 mM Paraquat liegt zwischen etwa 2,5 und 5 Tagen (Abbildung 2I, J) im Vergleich zu einer physiologisch nicht belasteten mittleren Überlebenszeit von etwa 20 Tagen (Abbildung 2A).
HINWEIS: Bei dem Assay zur paraquatinduzierten oxidativen Stressreaktion ist das Umpipettieren der Würmer auf frische Platten nicht erforderlich. Eine begrenzte Anzahl von Larven befindet sich auf den Paraquat-Platten und verharrt während des gesamten Assays im Entwicklungsstadium bis zum L2-Stadium oder davor. Diese stören weder die Identifizierung synchronisierter Kohorten noch verursachen sie Nahrungsmangel. Angesichts des möglichen physikalischen Stresses, der durch das Umpipettieren der Würmer entstehen könnte, wird davon abgeraten, die Würmer während des Assays zu transferieren. - Bewerten Sie die Anzahl der toten Würmer auf jeder technischen Wiederholungsplatte täglich und notieren Sie die Zahl auf einem Bewertungsdatenblatt. Die Bewertung erfolgt manuell unter einem Stereomikroskop am Laborpult bei Raumtemperatur. Aktiv bewegte Würmer gelten als lebendig, wobei keine physische Stimulation erforderlich ist. Bei Würmern, die keine spontane Bewegung zeigen, stimulieren Sie sie vorsichtig, indem Sie zweimal mit einem Platindrahtbesteck den hinteren Körperabschnitt berühren. Fehlende Reaktion wird als Tod gewertet, und der tote Wurm wird nach der Erfassung von der Platte entfernt. Zur genauen Zählung wird die Verwendung eines mechanischen Handzählers empfohlen. Um sicherzustellen, dass alle Würmer genau einmal gezählt werden, legen Sie eine durchsichtige Kunststofffolie mit eingezeichnetem Raster unter die Platte oder zeichnen Sie ein Raster auf den Boden der Platte, um diese in Rasterfelder zur Zählung einzuteilen.
HINWEIS: Die Würmer nach der Auswertung unverzüglich in den Inkubator zurückstellen. Die Würmer vor der nächsten Auswertung etwa 24 Stunden im Inkubator belassen. - Überwachen Sie das Überleben der Würmer täglich, bis alle Tiere verstorben sind oder gemäß der vorab festgelegten Kriterien zensiert werden. Sammeln Sie die erfassten Überlebensdaten und nutzen Sie diese zur Erstellung von Überlebenskurven für die anschließende Analyse.
- Herstellung von Mediumplatten für den Oxidativstress-Assay. Paraquat-Stocklösung (0,5 M in ddH₂O) zugeben.2O, gelagert bei –20 °C) in das flüssige NGM-Medium (aus Abschnitt 1.1.2) zu einer Endkonzentration von 2,5, 5, 10 oder 20 mM.
4. Datenanalyse
- Notieren Sie die Anzahl der toten Würmer auf jeder technischen Wiederholungsplatte zu jedem Zeitpunkt. Die Mortalitätsdaten werden in einem Erfassungsbogen dokumentiert, der nach Zeitpunkt (Stunden oder Tage nach Beginn der Stressbedingung), experimenteller Gruppe (verschiedene Stämme oder Behandlungsbedingungen) und technischer Wiederholung (Platte 1, 2, 3 oder 4) organisiert ist. Bei jeder Erfassung (stündlich oder täglich, je nach Assay) wird die Anzahl der toten Würmer für jede Platte separat erfasst, und die kumulative Mortalität wird bis zum Ende des Assays verfolgt.
- Geben Sie die Mortalitätsdaten jedes Erfassungszeitpunkts in OASIS 2 (Online Application for Survival Analysis 2)44 ein, um Kaplan-Meier-Überlebenskurven zu erstellen und eine log-rank-Statistikanalyse durchzuführen. Alternativ kann die Mortalität als Prozentsatz der toten Würmer zu einzelnen Zeitpunkten berechnet und zwischen den Gruppen mittels eines ungepaarten zweiseitigen Student's t-Tests (für zwei Gruppen) oder einer einfaktoriellen ANOVA mit anschließendem Tukey's Test für multiple Vergleiche (für drei oder mehr Gruppen) verglichen werden.
ANMERKUNG: Würmer mit Ruptur oder matrizidaler Embryonalentwicklung („bagging“) werden zum Zeitpunkt ihres Auftretens als tot gewertet, um die Gesamtüberlebensrate widerzuspiegeln. Rupturierte Würmer und „bagged“ Würmer wurden in die dargestellten Überlebenskurven in den repräsentativen Ergebnissen unten eingeschlossen. Die Anzahl der zensierten Würmer unter verschiedenen Bedingungen wurde in Ergänzende Tabelle 1 erfasst. Würmer, die die Versuchsplatte verlassen, an der Plattenwand austrocknen oder während der Erfassung fehlen, gelten als zensierte Beobachtungen und werden von der anschließenden Überlebensanalyse ausgeschlossen. Tiere mit eingeschränkter Beweglichkeit, die jedoch auf sanfte Berührung reagieren, werden als lebend gewertet. Würmer mit Eiablagestörungen vor Versuchsbeginn werden von der Überlebensanalyse ausgeschlossen. - Führen Sie alle Stressassays in mindestens drei unabhängigen biologischen Wiederholungen durch, die an verschiedenen Tagen durchgeführt werden. Jede biologische Wiederholung besteht aus vier technischen Wiederholungsplatten mit Würmern. Die Daten der technischen Wiederholungen innerhalb einer biologischen Wiederholung werden zusammengefasst, um eine einzelne Überlebenskurve zu generieren. Unabhängige biologische Wiederholungen werden separat analysiert und als eigenständige Datensätze dargestellt, nicht zusammengefasst. Jede biologische Wiederholung wird mit frisch hergestellten Medien und neuen Chargen der stressinduzierenden Substanzen durchgeführt. Die oben beschriebenen Protokolle stellen die Schritte zur Erzeugung einer biologischen Wiederholung für jeden Stressassay dar. Männliche Tiere werden ausgeschlossen; in diesem Protokoll werden ausschließlich Hermaphroditen eingeschlossen und analysiert.
ANMERKUNG: Die Luftfeuchtigkeit der Inkubatoren wird in diesem Protokoll nicht geregelt, während die Inkubatortemperatur streng auf die experimentelle Temperatur kontrolliert wird. Die hier beschriebenen Experimente wurden nicht unter verblindeten Bedingungen durchgeführt, und der Experimentator kannte während der Erfassung Genotyp und Behandlungsbedingungen. Es wird empfohlen, Genotyp und Behandlungsbedingungen, wenn möglich, zu verblinden, um potenzielle Erfassungsverzerrungen zu minimieren.
Ergebnisse
Mithilfe der oben beschriebenen Protokolle untersuchten wir zunächst die Überlebensfähigkeit von Wildtyp-(WT-)N2-Würmern unter einer Reihe steigender Dosen aller vier Stressfaktoren: Wärme-, ER-, mitochondriale und oxidativer Stress. Anschließend verwendeten wir einen Neuronen-Ablations-Stamm, um die Rolle des Interneurons RIC bei der Stressresistenz im Vergleich zu WT-Würmern zu testen.
Dosierung der Hitzestress-Behandlung und Vergleich der Hitzestress-Resistenz in der RIC-Ablationsstamm
Bei der physiologischen Temperatur von 20 °C leben WT-Würmer eine mittlere Lebensdauer von 20,67 Tagen (Abbildung 2A). Nach den in Abschnitt 3.1 beschriebenen Schritten des Hitzestress-Assays bestimmten wir das Überleben von WT-Würmern bei erhöhten Temperaturen von 30, 35 und 37 °C als steigende Dosen an Hitzestress. Die Daten zeigten, dass WT-Würmer bei 30 °C eine mittlere Lebensdauer von 3,11 Tagen erreichen (Abbildung 2B); bei 35 °C betrug die mittlere Überlebenszeit 5,36 h und bei 37 °C 4,89 h (Abbildung 2C). Diese Ergebnisse deuten auf eine signifikante Abnahme der Überlebensfähigkeit bei höheren Temperaturen hin. Die statistischen Analysen und P -Werte sind detailliert in Ergänzungstabelle 2 sowie in den Abbildungslegenden angegeben. Diese Daten liefern zuverlässige Informationen für Forscher, um eine optimale Stress-Temperatur und Zeitskala bei der Planung eines Hitzestress-Assays auszuwählen. Forscher können 30 °C verwenden, um das Überleben der Würmer über mehrere Tage zu untersuchen, während 35 °C oder 37 °C eine schnellere Beurteilung des Wurm-Überlebens innerhalb weniger Stunden ermöglichen.
Als Nächstes verwendeten wir 35 °C als Hitzestressbedingung, um den Effekt der Ablation von RIC-Neuronen auf das Überleben im Vergleich zu WT-Tieren zu bewerten. Diese Temperatur bewirkt einen mittleren Hitzestressgrad, der die extreme Schwere von 37 °C vermeidet, gleichzeitig aber eine stärkere Reaktion hervorruft als 30 °C, und führt innerhalb von etwa 12 Stunden zu einem vollständigen Überlebensassay.
RIC-Neuronen sind ein Paar oktopaminergen Interneuronen, die im Kopfbereich von C. elegans9,10 lokalisiert sind. Ein durch Ablation der RIC-Neuronen erzeugter Stamm wurde bereits früher beschrieben45 und durch Expression des Caspase-3-Gens unter Kontrolle des tbh-1-Genpromotors erzeugt. Kurz gesagt, wurde der tbh-1-Promotor in die Donor-Plasmide mec-18p::caspase-3 (p12)::nz und mec-18p cz::caspase-3 (p17) eingebaut, um so den mec-18-Promotor zu ersetzen. Drei Konstrukte – tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) und tbh-1p::GFP (20 ng/µL, als Marker für RIC-Neuronen, um die Ablation der RIC-Neuronen nachzuweisen) – wurden gemeinsam mit dem fluoreszierenden Cotransformationsmarker myo-3p::GFP (5 ng/µL) in den Wildtyp-Stamm N2 injiziert, um genetische RIC-Ablationsstämme zu erzeugen. Drei unabhängig injizierte Linien wurden als RIC-Neuron-Ablationsstämme erhalten. Transgene Linien wurden durch Selektion von Würmern mit dem fluoreszierenden myo-3p::GFP-Marker gepflegt. Die Ergebnisse jedes Stress-Assays wurden durch zwei oder drei unabhängige Linien validiert. Die erfolgreiche Ablation der RIC-Neuronen wurde durch das Fehlen der tbh-1p::GFP-Fluoreszenz im RIC-Neuron-ablatierten Stamm bestätigt, während die GFP-Expression in den RIC-Neuronen des tbh-1p::GFP-Reporter-Kontrollstamms nachweisbar war (Zusatzabbildung 1).
Mithilfe der in Abschnitt 3.1 beschriebenen Schritte des Hitzestress-Assays untersuchten wir das Überleben sowohl der WT- als auch der RIC-Neuron-ablatierten Stämme unter Hitzestress bei 35 °C (Abbildung 2D). Anhand der in den Abschnitten 4.1–4.3 beschriebenen Datenauswertungsschritte zeigten die Ergebnisse, dass unter Hitzestress bei 35 °C kein signifikanter Unterschied zwischen dem RIC-Neuron-ablatierten Stamm und der Wildtyp-N2-Kontrollgruppe festgestellt wurde (Abbildung 2D).
Alle repräsentativen Ergebnisse aus Hitzestress-Assays wurden mit drei unabhängigen biologischen Wiederholungen an verschiedenen Tagen durchgeführt (ergänzende Abbildung 2). Die Anzahl der Tiere (n-Wert, angegeben in den Bildlegenden), die zu der in den repräsentativen Ergebnissen und den ergänzenden Abbildungen gezeigten Überlebenskurve beigetragen hat, entspricht der zusammengefassten Anzahl aus den vier technischen Wiederholungen innerhalb einer einzelnen biologischen Wiederholung.
Titration der ER-Stressdosis und Vergleich der ER-Stressresistenz im RIC-Ablationsstamm
Mithilfe der im Abschnitt 3.2 beschriebenen ER-Stress-Assay-Schritte bestimmten wir die Überlebensrate von Wildtyp-Würmern unter 25, 50, 100 oder 200 µg/mL Tunicamycin als steigende Dosen von ER-Stress (Abbildung 2E). Im Vergleich zu einer physiologisch nicht belasteten mittleren Überlebensdauer von etwa 20 Tagen (Abbildung 2A) beträgt die mittlere Überlebensdauer von Wildtyp-Würmern 10,74 Tage bei 25 µg/mL, 9,13 Tage bei 50 µg/mL, 9,3 Tage bei 100 µg/mL und 8,93 Tage bei 200 µg/mL Tunicamycin (Abbildung 2E). Die Erhöhung der Tunicamycin-Dosis veränderte die Überlebensdauer unter diesen Dosen nicht signifikant. Die statistischen Analysen und die P -Werte sind detailliert in Ergänzungstabelle 2 und den Abbildungslegenden angegeben. Diese Daten liefern zuverlässige Informationen für Forscher, um eine optimale Tunicamycin-Dosis in einem ER-Stress-Assay auszuwählen.
Als Bedingung für ER-Stress verwendeten wir als nächstes 50 µg/mL Tunicamycin, eine mittlere Dosis im Vergleich zu den getesteten Konzentrationen, um den Effekt der Ablation von RIC-Neuronen auf das Überleben im Vergleich zu WT-Tieren zu bewerten. Mithilfe der im Abschnitt 3.2 beschriebenen Schritte des ER-Stress-Assays untersuchten wir das Überleben sowohl von WT- als auch von RIC-Neuron-ablatierten Stämmen unter ER-Stress, hervorgerufen durch 50 µg/mL Tunicamycin (Abbildung 2F). Anhand der in den Abschnitten 4.1–4.3 dargelegten Schritte der Datenanalyse zeigte die Überlebenskurve des RIC-Neuron-ablatierten Stammes im Vergleich zur WT-N2-Kontrolle eine signifikante Rechtsverschiebung, was auf ein verlängertes Überleben unter ER-Stress hinweist. Dieses Ergebnis legt nahe, dass die Ablation von RIC-Neuronen die Resistenz gegenüber ER-Stress erhöht (Abbildung 2F).
Alle repräsentativen Ergebnisse aus den ER-Stress-Assays wurden mit drei unabhängigen biologischen Wiederholungen an verschiedenen Tagen durchgeführt (ergänzende Abbildung 3). Die Anzahl der Tiere (n-Wert, angegeben in den Bildlegenden), die zur Überlebenskurve in den repräsentativen Ergebnissen und den ergänzenden Abbildungen beigetragen haben, entspricht der zusammengefassten Anzahl aus den vier technischen Wiederholungen innerhalb einer einzelnen biologischen Wiederholung.
Titration der mitochondrialen Stressdosis und Vergleich der mitochondrialen Stressresistenz im RIC-Ablationsstamm
Mithilfe der in Abschnitt 3.3 beschriebenen Schritte für den mitochondrialen Stress-Test bestimmten wir die Überlebensrate von WT-Würmern bei 5, 10, 20, 40 oder 80 µg/mL Antimycin A als steigende Dosen mitochondrialen Stresses (Abbildung 2G). Die Überlebenskurven der WT-Würmer zeigten signifikante, dosisabhängige Veränderungen. Im Vergleich zu einer physiologisch nicht belasteten mittleren Überlebensdauer von etwa 20 Tagen (Abbildung 2A) betrug die mittlere Überlebensdauer von Wildtyp-Würmern 4,96 Tage bei 5 µg/mL, 3,77 Tage bei 10 µg/mL, 2,68 Tage bei 20 µg/mL, 1,65 Tage bei 40 µg/mL und 1,4 Tage bei 80 µg/mL Antimycin A (Abbildung 2G). Die statistischen Analysen und P -Werte sind detailliert in Ergänzungstabelle 2 sowie in den Abbildungslegenden angegeben. Diese Daten liefern zuverlässige Informationen, um Forschern bei der Auswahl einer optimalen Antimycin-A-Dosis und eines geeigneten Zeitraums für die Planung eines mitochondrialen Stress-Tests zu helfen. Forscher können 5 µg/mL wählen, um die Überlebensrate der Würmer über einen Zeitraum von etwa 10 Tagen zu bewerten, oder höhere Konzentrationen von Antimycin A verwenden, um Ergebnisse innerhalb weniger Tage zu erhalten. Beachten Sie, dass höhere Konzentrationen die Mortalität beschleunigen, während niedrigere Konzentrationen einen schrittweisen Überlebensrückgang bewirken, wodurch feine Unterschiede zwischen Stämmen leichter erkennbar werden.
Wir verwendeten anschließend 5 µg/mL Antimycin A, das eine stärkere allmählicher Rückgang der Überlebensrate bei den getesteten Dosen, um den Effekt der RIC-Neuronen-Ablation auf das Überleben im Vergleich zu WT-Tieren unter mitochondrialer Stressbedingung zu evaluieren. Mithilfe der in Abschnitt 3.3 dargestellten Schritte des mitochondrialen Stress-Assays untersuchten wir die Überlebensraten sowohl von WT- als auch von RIC-ablierten Stämmen unter 5 µg/mL antimycin-A-induzierter mitochondrieller Stress (Abbildung 2H). Mithilfe der in den Abschnitten 4.1–4.3 dargestellten Schritte der Datenanalyse zeigte die Überlebenskurve des RIC-Neuron-ablatierten Stammes eine signifikante Rechtsverschiebung im Vergleich zur WT N2-Kontrolle, was auf ein verlängertes Überleben unter mitochondrialer Belastung hinweist. Dieses Ergebnis legt nahe, dass die Ablation der RIC-Neurone die mitochondriale Stressresistenz erhöht (Abbildung 2H).
Alle repräsentativen Ergebnisse aus Mitochondrien-Stress-Assays wurden mit drei unabhängigen biologischen Wiederholungen an verschiedenen Tagen durchgeführt (ergänzende Abbildung 4). Die Anzahl der Tiere (n-Wert, angegeben in den Bildlegenden), die zur Überlebenskurve in den repräsentativen Ergebnissen und den ergänzenden Abbildungen beigetragen haben , ergibt sich aus der Summe der vier technischen Wiederholungen innerhalb einer einzelnen biologischen Wiederholung.
Dosierung des oxidativen Stresses und Vergleich der Resistenz gegenüber oxidativem Stress im RIC-Ablationsstamm
Mithilfe der im Abschnitt 3.4 beschriebenen Schritte für den Test auf oxidativen Stress bestimmten wir die Überlebensrate von Wildtyp-Würmern unter Einwirkung von 2,5, 5, 10 oder 20 mM Paraquat als steigende Dosen oxidativen Stresses (Abbildung 2I). Die Überlebenskurven der Wildtyp-Würmer zeigten signifikante, dosisabhängige Veränderungen. Im Vergleich zur physiologisch nicht belasteten mittleren Überlebensdauer von etwa 20 Tagen (Abbildung 2A) betrug die mittlere Überlebensdauer von Wildtyp-Würmern 4,92 Tage bei 2,5 mM, 3,81 Tage bei 5 mM, 2,93 Tage bei 10 mM und 2,81 Tage bei 20 mM Paraquat (Abbildung 2I). Die statistischen Analysen und P -Werte sind detailliert in Ergänzungstabelle 2 sowie in den Abbildungslegenden aufgeführt. Diese Daten liefern zuverlässige Informationen, mit deren Hilfe Forschende eine optimale Paraquat-Dosis und Zeitskala für die Planung eines Tests auf oxidativen Stress auswählen können. Forschende können beispielsweise 2,5 mM wählen, um die Überlebensrate der Würmer über einen Zeitraum von etwa 10 Tagen zu bewerten, oder höhere Paraquat-Konzentrationen verwenden, um innerhalb weniger Tage Ergebnisse zur Überlebensrate zu erhalten. Es ist zu beachten, dass höhere Konzentrationen (10 mM und 20 mM) die Mortalität beschleunigen, während mittlere und niedrigere Konzentrationen (2,5 mM und 5 mM) einen graduelleren Überlebensrückgang bewirken, wodurch feine Unterschiede zwischen Stämmen leichter erkennbar sind.
Als nächstes verwendeten wir 5 mM Paraquat, eine mittlere Dosis im Vergleich zu den getesteten Dosen, als Bedingung für oxidativen Stress, um den Einfluss der Ablation von RIC-Neuronen auf das Überleben im Vergleich zu WT-Tieren zu bewerten. Mithilfe der im Abschnitt 3.4 beschriebenen Schritte des Oxidativen-Stress-Assays untersuchten wir das Überleben sowohl von WT- als auch von RIC-Neuron-ablatierten Stämmen unter oxidativem Stress, der durch 5 mM Paraquat induziert wurde (Abbildung 2J). Anhand der in den Abschnitten 4.1–4.3 beschriebenen Datenauswertungsschritte zeigten die Ergebnisse, dass unter oxidativem Stress, der durch 5 mM Paraquat induziert wurde, kein signifikanter Unterschied zwischen dem RIC-Neuron-ablatierten Stamm und der wildtypischen N2-Kontrollgruppe festgestellt wurde (Abbildung 2J).
Alle repräsentativen Ergebnisse aus Assays zum oxidativen Stress wurden mit drei unabhängigen biologischen Wiederholungen an verschiedenen Tagen durchgeführt (Ergänzende Abbildung 5). Die Anzahl der Tiere (n-Wert, angegeben in den Bildlegenden), die zur Überlebenskurve in den repräsentativen Ergebnissen und den ergänzenden Abbildungen beigetragen hat , ergibt sich aus der Summe der vier technischen Wiederholungen innerhalb einer einzelnen biologischen Wiederholung.
Fehlerbehebung
Ein wiederkehrendes Problem bei Assays zum paraquatinduzierten oxidativen Stress ist, dass die Würmer aus den Agarplatten entweichen, was zum Verlust von Tieren und einer geringeren Anzahl von Würmern für die Analyse führt. Eine Palmitinsäure Barriere oder eine andere Art „Zaun“ kann den Assayplatten hinzugefügt werden, um dieses Fluchtverhalten teilweise zu unterdrücken46,47, wobei die Verbesserung jedoch geringfügig ist und das Problem nicht vollständig beseitigt. Es wurde kein signifikanter Unterschied in der Gesundheit und Lebensdauer von C. elegans nach Behandlung mit Palmitinsäure beobachtet48. Die Palmitinsäurebarriere wirkt als abschreckender „Zaun“ auf NGM-Platten und verhindert, dass C. elegans aufgrund von Stress, Hunger oder Pathogenen fliehen. Um das Entweichen der Würmer zu minimieren, 30 µL einer 10 mg/mL Palmitinsäure Lösung in Ethanol (0,5 g Palmitinsäure in 50 mL 100 % EtOH geben) am Rand der 35-mm-Assayplatte auftragen und die Platte vorsichtig schwenken, um einen geschlossenen Ring zu bilden. Nachdem das Ethanol verdunstet ist, wirkt der Palmitinsäure Ring als physikalische und chemische Barriere, die das Entweichen der Würmer verringert. Würmer, die in Kontakt mit dem Palmitinsäure-Ring sterben, werden zensiert und von der Überlebensanalyse ausgeschlossen.
ACHTUNG: Palmitinsäure und ihre Lösung müssen unter Verwendung geeigneter Labor-Schutzausrüstung, einschließlich Handschuhe, Laborkittel und Augenschutz, gehandhabt werden, und es ist darauf zu achten, Haut- und Augenkontakt zu vermeiden.
VERFÜGBARKEIT VON DATEN
Die Überlebensdaten, die Abbildung 2 und die ergänzenden Abbildungen zugrunde liegen, einschließlich der Daten aller biologischen Wiederholungen und statistischen Ergebnisse, befinden sich in Supplementary Figure 1–5, Supplementary Table 1–2 und Supplementary File 1.
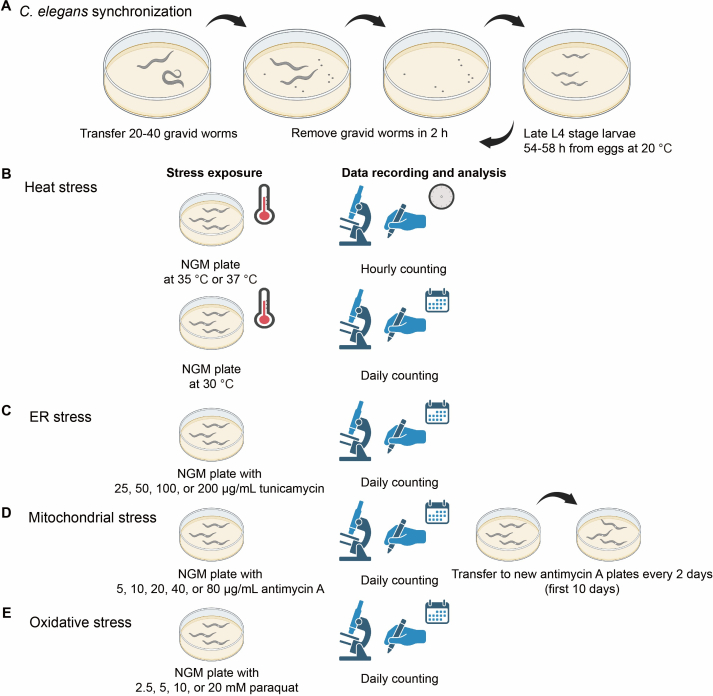
Abbildung 1: Ablaufplan der Stress-Assays. (A) Synchronisierte Würmer werden gewonnen, indem Eier, die innerhalb eines Zeitraums von 2 Stunden von befruchteten Würmern abgelegt wurden, gesammelt werden. Synchronisierte Würmer werden für alle Stress-Assays verwendet und nach 54–58 Stunden Entwicklung von den Eiern bei 20 °C im späten L4-Stadium auf Platten mit Stressbedingungen überführt. (B) Beim Hitzestress-Assay werden synchronisierte Würmer auf NGM-Platten in einem Inkubator bei 35 °C oder 37 °C überführt, und tote Würmer werden stündlich erfasst. Für den Hitzestress-Assay in einem Inkubator bei 30 °C werden tote Würmer täglich erfasst. (C) Beim ER-Stress-Assay werden synchronisierte Würmer auf NGM-Platten überführt, die 25, 50, 100 oder 200 µg/mL Tunicamycin enthalten. Tote Würmer werden täglich erfasst. (D) Beim mitochondriellen Stress-Assay werden synchronisierte Würmer auf NGM-Platten überführt, die 5, 10, 20, 40 oder 80 µg/mL Antimycin A enthalten, und die Überlebensrate wird durch tägliche Erfassung bestimmt. Um Störungen durch Nachkommen zu vermeiden, werden die Würmer während der ersten 10 Tage des Assays alle zwei Tage auf frische Platten mit Antimycin A überführt. (E) Beim oxidativen Stress-Assay werden synchronisierte Würmer auf NGM-Platten überführt, die 2,5, 5, 10 oder 20 mM Paraquat enthalten, und die Überlebensrate wird durch tägliche Erfassung bewertet. Die Stressresistenz wird durch den Vergleich der aus jedem Assay generierten Kaplan-Meier-Überlebenskurven bewertet. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
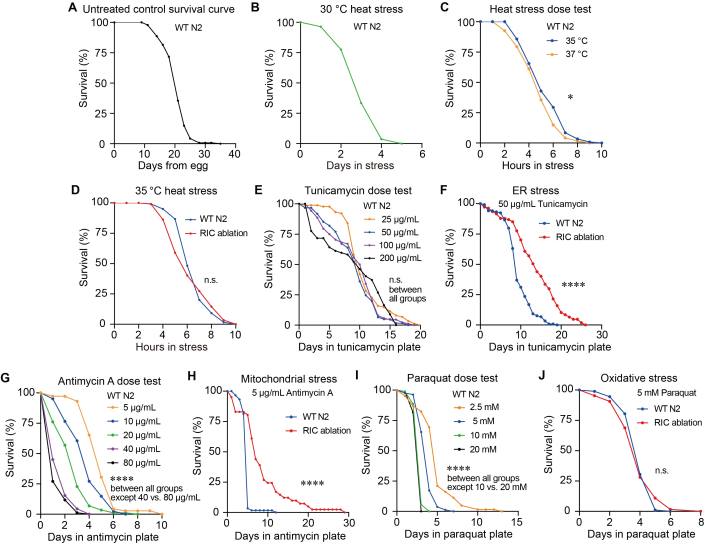
Abbildung 2: Dosierung von Hitzestress, ER-Stress, mitochondrialem Stress und oxidativem Stress sowie Vergleich der Stressresistenz in RIC-Neuron-ablatierten Tieren Stamm (A) Repräsentative Kaplan-Meier-Überlebenskurve des WT N2-Stamms unter Nicht-Stress-Bedingungen (n = 141, mittlere Lebensdauer = 20,67 Tage). (B) Repräsentativ Kaplan-Meier-Überlebenskurve des WT N2-Stamms unter 30 °C Hitzestress (n = 111, mittlere Überlebensdauer = 3,11 Tage). (C) Repräsentative Kaplan-Meier-Überlebenskurve des WT N2-Stamms unter 35 °C und 37 °C Hitzestress (n = 119, 121); Log-Rang-Test, P = 0,0244, * kennzeichnet P < 0.05. (D) Repräsentative Kaplan-Meier-Überlebenskurve von WT N2 und RIC-Neuron-ablatierten Stämmen unter 35 °C Hitzestress (n = 117, 120); Log-Rank-Test, P = 0,4972, n.s. weist auf keinen signifikanten Unterschied hin. WT N2 wurde als Kontrolle verwendet. (EDosis-Wirkungs-Kurven der Überlebensrate des WT N2-Stamms bei steigenden Konzentrationen der Behandlung mit Tunicamycin (n = 88, 61, 88, 67); Log-Rank-Test, P = 0.6472 (25 µg/mL v.s. 100 µg/mL), P = 0.1473 (25 µg/mL v.s. 50 µg/mL), P = 0.6581 (50 µg/mL gegenüber 200 µg/mL), P = 1 (25 µg/mL v.s. 200 µg/mL; 50 µg/mL gegenüber 100 µg/mL; 100 µg/mL gegenüber 200 µg/mL), n.s. weist auf keinen signifikanten Unterschied hin. (F) Repräsentative Kaplan-Meier-Überlebenskurve von WT N2 und RIC neuronausgeschalteter Stamm unter 50 µg/mL durch Tunicamycin induzierter ER-Stress (n = 119, 107); Log-Rank-Test, **** kennzeichnet P < 0.0001. (G) Repräsentative Kaplan-Meier-Überlebenskurven des WT N2-Stamms, behandelt mit steigenden Konzentrationen von Antimycin A (n = 72, 81, 88, 91, 85); Log-Rank-Test, P = 0.000038 (5 µg/mL gegenüber 10 µg/mL), P = 0.00002 (10 µg/mL v.s. 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL gegenüber 40 µg/mL), P < 0.0001 (5 µg/mL gegenüber 20 µg/mL; 5 µg/mL gegenüber 40 µg/mL; 5 µg/mL v.s. 80 µg/mL; 10 µg/mL v.s. 40 µg/mL; 10 µg/mL v.s. 80 µg/mL; oder 20 µg/mL v.s. 80 µg/mL), P = 0.189 (40 µg/mL gegenüber 80 µg/mL), **** zeigt an P < 0.0001. (H) Repräsentative Kaplan-Meier-Überlebenskurve von WT N2 und RIC-Neuron-ablatierten Stämmen unter 5 µg/mL antimycin A-induzierter mitochondrialer Stress (n = 59, 41); Log-Rank-Test, P = 3,2 × 10⁻9, **** zeigt an P < 0.0001. (I) Repräsentative Kaplan-Meier-Überlebenskurven des WT N2-Stamms unter verschiedenen Dosen von Paraquat (n = 62, 81, 88, 93); Log-Rank-Test, P = 1.80 × 10⁻7 (2,5 mM gegenüber 5 mM) P < 0,0001 (2,5 mM gegenüber 10 mM; 2,5 mM gegenüber 20 mM; 5 mM gegenüber 10 mM; 5 mM gegenüber 20 mM) P = 0,1445 (10 mM gegenüber 20 mM), **** zeigt an P < 0.0001. (JRepräsentative Kaplan-Meier-Überlebenskurven der WT N2- und RIC-Neuron-ablatierten Stämme unter oxidativem Stress durch 5 mM Paraquat (n = 92, 64); Log-Rank-Test, P = 0,9817, n.s. weist auf keinen signifikanten Unterschied hin. Alle Experimente wurden mit drei unabhängigen biologischen Wiederholungen durchgeführt. In dieser Abbildung sind repräsentative Ergebnisse einer biologischen Wiederholung dargestellt. Jedes biologische Replikat besteht aus vier technischen Replikatplatten mit Würmern. Anzahl der Tiere (n), die beitragen der Überlebenskurve in dieser Abbildung entspricht der gepoolte Wert aus den vier technischen Wiederholungen innerhalb einer biologischen Wiederholung. Unabhängige biologische Wiederholungen wurden separat und nicht gepoolt analysiert und als einzelne Datensätze in den Zusatzabbildungen 2–5 dargestellt. Die Signifikanz wurde mittels Log-Rang-Test zum Vergleich der Überlebensverteilungen bewertet. Detaillierte statistische P Werte, mittlere Überlebenszeit und Standardfehler unter technischen Replikaten sind in der ergänzenden Tabelle 2 enthalten. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Abbildung S1: Fehlen der tbh-1p::GFP-Fluoreszenz in der RIC-Neuron-ablatierten Stamm, während die GFP-Expression in den RIC-Neuronen des tbh-1p::GFP-Reporter-Kontrollstamms beobachtet wurde. (A) Fluoreszenzbilder des RIC-Neuron-ablatierten Stamms tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP und eines tbh-1p::GFP-Reporter-Kontrollstamms OH16150 tbh-1p::GFP; tdc-1p::mCherry. Würmer im späten L4-Stadium wurden mit 488 nm Anregung und einer Belichtungszeit von 800 ms für den GFP-Kanal sowie einer Belichtungszeit von 176 ms für den Hellfeld-Kanal abgebildet. Gelbe Pfeilspitzen markieren die Position der RIC-Neuronen im Kontrollstamm tbh-1p::GFP-Reporter oder die erwartete Position der RIC-Neuronen, die im RIC-Neuron-ablatierten Stamm fehlt. Das tbh-1p::GFP-Signal wurde an der Position der RIC-Neuronen im RIC-Neuron-ablatierten Stamm nicht nachgewiesen, während das tbh-1p::GFP-Signal in den RIC-Neuronen des tbh-1p::GFP-Reporter-Kontrollstamms OH16150 detektiert wurde. Die Fluoreszenz in der Körperwandmuskulatur im RIC-Neuron-ablatierten Stamm stammt von myo-3p::GFP, einem Co-Injektionsmarker. (A) n = 14 für OH16150; n = 20 für den RIC-Neuron-ablatierten Stamm. (B, C) Repräsentative Ergebnisse aus zwei weiteren biologischen Wiederholungen. Würmer im späten L4-Stadium wurden mit 488 nm Anregung und einer Belichtungszeit von 1007 ms (B) bzw. 1998 ms (C) für den GFP-Kanal sowie einer Belichtungszeit von 176 ms (B und C) für den Hellfeld-Kanal abgebildet. (B) n = 8 für OH16150; n = 17 für den RIC-Neuron-ablatierten Stamm. (C) n = 14 für OH16150; n = 13 für den RIC Neuron-ablatierten Stamm. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzabbildung 2: Biologische Wiederholungen von Überlebenskurven unter nicht belastenden Bedingungen oder Hitzestress. (A, B) Kaplan-Meier-Überlebenskurven aus zwei unabhängigen biologischen Wiederholungen unter nicht belastenden Bedingungen. (A) n = 123, mittleres Überleben = 20,52 Tage; (B) n = 130, mittleres Überleben = 22,74 Tage. (C, D) Kaplan-Meier-Überlebenskurven des WT N2-Stamms unter Hitzestress bei 30 °C. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (C) n = 130, mittleres Überleben = 3,72 Tage. (D) n = 98, mittleres Überleben = 3,77 Tage. (E, F) Kaplan-Meier-Überlebenskurven unter Hitzestress bei 35 °C oder 37 °C. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (E) n = 118, 121; Log-Rang-Test, P = 0,0409, * kennzeichnet P < 0,05; (F) n = 122, 120; Log-Rang-Test, P = 0,0251, * kennzeichnet P < 0,05. (G, H) Kaplan-Meier-Überlebenskurven von WT N2 und RIC-Neuron-ablatierten Stämmen unter Hitzestress bei 35 °C. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (G) n = 79, 76; Log-Rang-Test, P = 0,2217, n.s. kennzeichnet keinen signifikanten Unterschied. (H) n = 77, 81; Log-Rang-Test, P = 0,1881, n.s. kennzeichnet keinen signifikanten Unterschied. Die Signifikanz wurde mittels Log-Rang-Test zur Vergleichung der Überlebensverteilungen bewertet. Detaillierte statistische P-Werte, mittleres Überleben und S.E. zwischen technischen Wiederholungen sind in der ergänzenden Tabelle 2 enthalten. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Abbildung 3, Zusatzmaterial: Biologische Wiederholungen von Überlebenskurven unter Bedingungen des ER-Stresses. (A, B) Kaplan-Meier-Überlebenskurven des WT-N2-Stamms unter verschiedenen Konzentrationen von Tunicamycin-Behandlung. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Die statistischen P-Werte zwischen den verschiedenen Gruppen (A und B) sind in der ergänzenden Tabelle 2 angegeben. (C, D) Kaplan-Meier-Überlebenskurven des WT-N2- und des RIC-Neuron-ablatierten Stammes unter ER-Stress-Bedingungen, induziert durch 50 µg/mL Tunicamycin. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (C) n = 104, 55; Log-Rang-Test, P = 0,012, * kennzeichnet P < 0,05; (D) n = 85, 109; Log-Rang-Test, P = 0,0001, *** kennzeichnet P < 0,001. Die Signifikanz wurde mittels eines Log-Rang-Tests zur Vergleichung der Überlebensverteilungen bewertet. Detaillierte statistische P-Werte, mittleres Überleben und Standardfehler (S.E.) zwischen technischen Wiederholungen sind in der ergänzenden Tabelle 2 enthalten. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Abbildung 4, Zusatzmaterial: Biologische Wiederholungen von Überlebenskurven unter mitochondrialen Stressbedingungen. (A, B) Kaplan-Meier-Überlebenskurven des WT N2-Stamms unter verschiedenen Konzentrationen von Antimycin A. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (A) n = 71, 80, 81, 88, 90. (B) n = 71, 85, 83, 88, 87. Die statistischen P-Werte zwischen den verschiedenen Gruppen (A und B) sind in der ergänzenden Tabelle 2 angegeben. (C, D) Kaplan-Meier-Überlebenskurven des WT N2-Stamms und des RIC-Neuron-ablatierten Stamms unter antimycin-A-induziertem mitochondrialem Stress. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (C) n = 105, 78; Log-Rang-Test, P = 0,000004, **** kennzeichnet P < 0,0001. (D) n = 89, 73; Log-Rang-Test, **** kennzeichnet P < 0,0001. Die Signifikanz wurde mittels Log-Rang-Test zur Vergleichung der Überlebensverteilungen bewertet. Detaillierte statistische P-Werte, mittleres Überleben und Standardfehler (S.E.) zwischen technischen Wiederholungen sind in der ergänzenden Tabelle 2 enthalten. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Abbildung 5: Biologische Replikate von Überlebenskurven unter oxidativem Stress. (A, B) Kaplan-Meier-Überlebenskurven der WT-N2-Stamm unter verschiedenen Konzentrationen von Paraquat-Behandlung. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Statistisch P Werte zwischen verschiedenen Gruppen (A und B) sind in der ergänzenden Tabelle 2 angegeben. (C, D) Kaplan-Meier-Überlebenskurven der WT N2- und der RIC-Neuron-ablatierten Stämme unter oxidativem Stress, hervorgerufen durch 5 mM Paraquat. Die Daten stammen aus zwei unabhängigen biologischen Wiederholungen. (C) n = 87, 82; Log-Rang-Test, P = 0,2629, n.s. weist auf keinen signifikanten Unterschied hin. (D) n = 116, 118; Log-Rang-Test, P = 0,1184, n.s. weist auf keinen signifikanten Unterschied hin. Die Signifikanz wurde mittels eines Log-Rank-Tests zur Vergleichung der Überlebensverteilungen bewertet. Detaillierte statistische P Werte, mittlere Überlebenszeit und Standardfehler unter technischen Wiederholungen sind in der ergänzenden Tabelle 2 enthalten. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Erweiterte Tabelle 1: Zusammenfassung der Würmeranzahl, die in alle Überlebenskurven einbezogen wurde. Die Tabelle fasst die anfängliche Anzahl der Würmer sowie die Anzahlen der gerissenen, verpuppten und zensierten Würmer zusammen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatz-Tabelle 2: Detaillierte statistische Analysen aller Überlebenskurven, einschließlich P-Werte, mittleres Überleben und S. E. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 1: Daten zur Unterstützung der Ergebnisse dieser Studie.
Beinhaltet die Überprüfung der erfolgreichen Ablation der RIC-Neurone sowie die Ergebnisse aller biologischen Wiederholungen, die den in den Hauptabbildungen dargestellten Daten zugrunde liegen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Hier haben wir standardisierte Schritte für reproduzierbare Stress-Assays unter Hitzestress, ER-Stress, mitochondrialem und oxidativem Stress in C. elegans beschrieben (Abbildung 1). Wir untersuchten eine Reihe ansteigender Dosen aller vier Stressfaktoren hinsichtlich ihrer Auswirkungen auf das Überleben von WT-Würmern (Abbildung 2). Außerdem präsentierten wir ein Beispiel dafür, wie man die Rolle eines Interneurons in der Stressresistenz gegenüber allen vier Stressfaktoren mithilfe eines Neuron-Ablationsstamms untersuchen kann (Abbildung 2).
Um den hier vorgestellten Stress-Assay erfolgreich anzuwenden, sind mehrere wichtige Aspekte während des Verfahrens zu beachten. Aufgrund von Unterschieden zwischen verschiedenen Laboren – beispielsweise hinsichtlich Agarpulver, Medium, Umgebungstemperatur und Luftfeuchtigkeit – wird empfohlen, die Konzentrationen jedes Stresses oder stressinduzierenden Wirkstoffs gemäß der in den Abschnitten „Protokoll“ und „Ergebnisse“ beschriebenen Titration und Schritten anzupassen. Eine geeignete Stressbedingung sollte eine reproduzierbare, mittlere Überlebensrate bei Wildtyp-Kontrollwürmern hervorrufen, um einen ausreichenden dynamischen Bereich zu schaffen, der es ermöglicht, sowohl eine erhöhte als auch eine verminderte Stressresistenz nachzuweisen. Bedingungen, die nahezu vollständiges Überleben oder nahezu vollständige Letalität zur Folge haben, sollten vermieden werden. Als Nächstes ist es unerlässlich sicherzustellen, dass alle biologischen und technischen Wiederholungen auf denselben Entwicklungsstand synchronisiert sind. Die Synchronisation der Würmer kann mithilfe des in den Abschnitten 2.1–2.3 beschriebenen Verfahrens erreicht werden. Die Synchronisation im späten L4-Stadium wird empfohlen. Der Beginn von Stress-Assays im L4-Stadium ist in der Forschung zum Stressantwortverhalten von C. elegans etabliert, und zahlreiche Studien haben synchronisierte L4-Tiere für oxidative42-, Hitzestress40,43- und andere Stressresistenz-Assays35 verwendet. Der Start im L4-Stadium gewährleistet eine Entwicklungssynchronisation und minimiert gleichzeitig die Variabilität, die durch Unterschiede im Erwachsenenalter und im Fortpflanzungsstatus verursacht wird, einschließlich des Beginns der Eiablage und der Embryonenretention, die beide die Messung der Stressresistenz beeinflussen können12,37,38,40. Da alle experimentellen Gruppen in unserer Studie identisch synchronisiert und behandelt wurden, bietet dieser Ansatz eine konsistente und geeignete Grundlage für den Vergleich der Stressresistenz. Schließlich sollten die Nachkommen von Würmern, die vor Beginn des Assays verhungert oder gestresst wurden, über mehrere Generationen unter normaler Fütterung und ohne Stressbedingungen aufgezogen werden, bevor sie als trächtige Würmer zur Erzeugung synchronisierter Nachkommen für die Stress-Assays verwendet werden.
Unterschiede in der Plattenherstellung und Lagerung können zu variierenden Ergebnissen zwischen unabhängigen biologischen Wiederholungen führen, beispielsweise durch die Dauer der Lagerung von Platten mit stressinduzierenden Verbindungen bei 4 °C oder den Zeitpunkt der Besiedlung mit OP50-Bakterien. Um die Reproduzierbarkeit zwischen Experimenten an verschiedenen Tagen zu verbessern, sollten die entscheidenden Schritte der Plattenherstellung standardisiert werden, wie im beschriebenen Protokoll zur Herstellung von NGM-Platten in Abschnitt 1.1, Tunicamycin-induzierten ER-Stress-Platten in Abschnitt 3.2.1, Antimycin A-induzierten mitochondrialen Stress-Platten in Abschnitt 3.3.1 und Paraquat-induzierten oxidativen Stress-Platten in Abschnitt 3.4.1 beschrieben. Konkret sollten Agarplatten nach dem Gießen etwa 24 Stunden bei Raumtemperatur getrocknet und erst nach vollständiger Verfestigung des Agars mit OP50 besiedelt werden. Die mit OP50 besiedelten NGM-Platten sollten nach der Besiedlung weitere 24 Stunden bei Raumtemperatur trocknen, bevor sie bei 4 °C gelagert werden. Die optimale Trocknungszeit kann je nach Verwendung belüfteter oder nicht belüfteter Platten sowie lokaler Umweltbedingungen wie Temperatur und Luftfeuchtigkeit variieren. Daher sollte jedes Labor diesen Schritt unter eigenen Bedingungen optimieren und eine einheitliche Trocknungszeit für alle unabhängigen biologischen Wiederholungen beibehalten, um die Reproduzierbarkeit sicherzustellen. Stress-Assay-Platten sollten innerhalb einer Woche nach der Herstellung verwendet werden, um den Abbau der stressinduzierenden Verbindungen und übermäßiges Bakterienwachstum zu minimieren, da beides die Konsistenz des Assays beeinträchtigen könnte.
Dieses Protokoll zeigte außerdem ein Beispiel dafür, wie die Rolle einer Interneuron-Zelle bei der Stressreaktion auf alle vier Stressfaktoren mithilfe eines Neuronen-Ablationsstamms untersucht werden kann (Abbildung 2). Der Promotor eines Gens, das spezifisch in einem Neuron exprimiert wird, kann verwendet werden, um die Expression von Caspase-3 zu steuern und das Zielneuron abzulassen. Hier verwendeten wir den tbh-1-Promotor, der die Genexpression spezifisch in den RIC-Neuronen aktiviert, um eine Ablation der RIC-Neuronen durchzuführen. Der tbh-1-Promotor wurde bereits umfassend für genetische Eingriffe in RIC-Zellen validiert und wird routinemäßig für zell-spezifische Expression, Komplementierung, Kalzium-Bildgebung und neuronale Stummschaltung verwendet45,49,50. In Übereinstimmung mit bisherigen Beschreibungen von tbh-1 beobachteten wir eine auf die RIC-Neuronen beschränkte Expression von tbh-1p::GFP und konnten keine Fluoreszenz in anderen Geweben nachweisen (Ergänzende Abbildung 1). Wir untersuchten weder die Gelegegröße noch die Keimbahn-Morphologie im RIC-Neuron-ablatierten Stamm spezifisch; allerdings beobachteten wir keine offensichtlichen physiologischen Defekte in diesem Stamm. Es wurde berichtet, dass der tbh-1-Reporter zusätzliche Expression in somatischen Gonadenscheidezellen aufweist, die somatische Zellen des Fortpflanzungssystems sind51,52. Obwohl wir die Möglichkeit einer geringgradigen Expression außerhalb der RIC-Neuronen nicht vollständig ausschließen können, halten wir es für unwahrscheinlich, dass eine nicht-RIC-spezifische Expression von tbh-1 für die beobachtete erhöhte Stressresistenz in den Tieren mit ablatierten RIC-Neuronen verantwortlich ist. Obwohl diese Methode gut etabliert ist49,50, ist sie durch mögliche Expression in Zellen außerhalb des Zielneurons begrenzt. Andere Methoden zur Bestätigung der Rolle eines Neurons sind erforderlich, beispielsweise die Überwachung der neuronale Aktivität als Reaktion auf Stressfaktoren oder die Untersuchung der Rolle von Neurotransmittern, die von diesem Neuron freigesetzt werden, in Stressassays.
C. elegans-Überlebensassays sind leistungsstarke Werkzeuge zur Messung der Stressresistenz aufgrund der verhältnismäßig kurzen Lebensdauer der Würmer (etwa 20 bis 30 Tage, Abbildung 2) und der raschen Mortalität, die durch verschiedene Stressfaktoren innerhalb von Stunden bis Tagen hervorgerufen wird (Abbildung 2). Eine Einschränkung von Überlebensassays besteht jedoch darin, dass sie einen binären Endpunkt „lebend/ tot“ verwenden und somit den fortschreitenden physiologischen Funktionsverlust während der Stressexposition nicht erfassen. Ergänzende Assays, wie Bewegungsassays (Thrashing-Assays) oder automatisierte Messungen der Lokomotion (Geschwindigkeit), die zu mehreren Zeitpunkten durchgeführt werden, können zusätzliche Informationen über den schrittweisen Verlust neuromuskulärer Funktion während des Stresses liefern. Eine weitere Einschränkung liegt darin, dass der Tod durch das Fehlen einer Reaktion auf leichte mechanische Reize festgestellt wird, was die Lebensfähigkeit bei Tieren mit stark eingeschränkter Fortbewegung unterschätzen kann. Außerdem führt die manuelle Auswertung zu beobachterabhängiger Variabilität und potenziellem Bias. Um diese Effekte zu minimieren, sollte die gesamte Auswertung innerhalb eines unabhängigen biologischen Wiederholungsdurchlaufs stets durch denselben Forscher erfolgen, der gegenüber Genotyp und experimentellen Bedingungen verblindet sein sollte. Konsistente Auswertungsbedingungen, einschließlich der Verwendung derselben Mikroskopvergrößerung und Beleuchtungseinstellungen zu jedem Zeitpunkt, sind ebenfalls wichtig, um die Variabilität zwischen den Petrischalen und über verschiedene Experimente hinweg zu reduzieren. In den repräsentativen Ergebnissen zeigen wir ein Beispiel, bei dem ein Stamm mit ablatierten RIC-Neuronen eine erhöhte Resistenz gegenüber ER- und mitochondrialem Stress, jedoch nicht gegenüber Hitzestress und oxidativem Stress zeigte, verglichen mit Wildtyp-Würmern (Abbildung 2). Ein Unterschied im Überleben unter zwei von vier Stressfaktoren allein begründet noch keine spezifische Rolle des Neurons innerhalb eines Signalwegs; der biologische Schluss in dieser Arbeit wird als Demonstration der Methode und der Beobachtung präsentiert und nicht als mechanistische Aussage.
Neben den hier beschriebenen Stressresistenz-Assays wurden mehrere automatisierte Plattformen zur Messung der Überlebensfähigkeit von C. elegans entwickelt. Die automatisierte Auswertung erhöht den Durchsatz erheblich, ermöglicht eine kontinuierliche oder hochfrequente Überwachung und verringert die beobachterabhängige Verzerrung sowie den Arbeitsaufwand im Vergleich zur manuellen Auswertung53,54,55. Solche Systeme sind besonders vorteilhaft für genetische oder chemische Bildschirme im großen Maßstab. Die meisten automatisierten Methoden leiten den Tod jedoch aus der Bewegungslosigkeit ab, was je nach Bildverarbeitungsalgorithmus und Erkennungsschwelle zu einer Fehlklassifizierung von Würmern führen kann, die sich in Ruhephasen befinden oder unter Stress stark eingeschränkte Fortbewegung zeigen. Zudem können Umweltfaktoren wie Temperatur, Kondensation, Pilz- oder Bakterienkontamination sowie Variationen in den Kulturbedingungen die automatische Detektion beeinträchtigen und somit die Überlebensmessungen beeinflussen. Im Gegensatz dazu ermöglicht die manuelle Auswertung, dass der Experimentator abnorme Phänotypen wie „Bagging“, interne Eiablage oder rupturierte Tiere erkennt, die spezifische Kriterien für die Auswertung oder Ausschlussregeln erfordern können. Obwohl die manuelle Auswertung arbeitsintensiver ist und einer beobachterbedingten Variabilität unterliegt, können diese Einschränkungen durch verblindete Auswertung, standardisierte Kriterien und eine konsistente Bewertung durch dieselbe Person minimiert werden. Folglich weisen manuelle und automatisierte Überlebensassays jeweils spezifische Vor- und Nachteile auf, und die Wahl der Methode sollte sich nach den experimentellen Zielen, dem erforderlichen Durchsatz sowie der Art des Stressparadigmas richten.
Insgesamt bieten die hier beschriebenen Methoden einen standardisierten und reproduzierbaren Rahmen zur Bewertung der Reaktionen von C. elegans auf verschiedene Umweltstressfaktoren, einschließlich Hitzestress, mitochondrialem, ER- und oxidativem Stress. Die Beurteilung der Resistenz gegenüber unterschiedlichen Stressfaktoren ist entscheidend, da genetische oder physiologische Störungen die Resistenz gegenüber einer bestimmten Art von Stress erhöhen können, gleichzeitig aber die Anfälligkeit gegenüber einer anderen Art erhöhen, wodurch sowohl stressorspezifische als auch gemeinsame Mechanismen der Stressanpassung aufgedeckt werden. Diese Assays ermöglichen quantitative Vergleiche der Stressresistenz zwischen verschiedenen Genotypen und experimentellen Bedingungen und können leicht angewendet werden, um die Rollen von Genen, Neuronen und Stoffwechselwegen bei der Aufrechterhaltung der Stressresistenz und der physiologischen Homöostase zu untersuchen. Allgemeiner bieten diese Methoden eine robuste Grundlage zur Identifizierung von Mechanismen, die die Organismusgesundheit und das Überleben unter ungünstigen Umweltbedingungen fördern.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Die in dieser Veröffentlichung beschriebene Forschung wurde vom Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), dem Center of Biomedical Research Excellence (COBRE, P20 GM113109) und dem Johnson Cancer Research Center an der Kansas State University (Cancer Research Expansion Award) für S.H. finanziell unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Tunicamycin | Sigma-Aldrich | T7765 | ER-Stress-Induktor |
| Antimycin A | Sigma-Aldrich | A8674 | Induktor von mitochondrialem Stress |
| Methylviologendichlorid-Hydrat (Paraquat) | Sigma-Aldrich | 856177 | Oxidativer Stressinduktor |
| Palmitinsäure | MP Biomedicals, LLC | 100905 | Unterdrücken C. elegans Flucht Verhalten |
| Cholesterin | MP Biomedicals, LLC | 101382 | Für NGM |
| Calciumchlorid | Thermo Fisher Scientific Inc. | C79-500 | Für NGM |
| Magnesiumsulfat, wasserfrei | Mallinckrodt Pharmaceuticals plc | 6070 | Für NGM |
| Agar | Apex Chemicals Co., Ltd | 20-273 | Für NGM |
| Pepton | Apex Chemicals Co., Ltd | 20-260 | Für NGM |
| Kaliumdihydrogenphosphat | Thermo Fisher Scientific Inc. | P285-3 | Für NGM |
| Natriumchlorid | Thermo Fisher Scientific Inc. | S640-3 | Für NGM |
| Kaliumphosphat, zweibasisch | Allied Chemical, General Chemical Division | Code 2131 | Für NGM |
| Petrischalen (35 mm) | Genesee Scientific, LLC | 32-103 | Platten für Stress-Assays |
| Petrischalen (60 mm) | Genesee Scientific, LLC | 32-105 | Beibehalten C. elegans |
| mec-18p cz::Caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::Caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC gekühlter Inkubationsschüttler | Eppendorf / New Brunswick Scientific | C24KC | 37 °C Inkubator |
| DigiTherm® 38-Liter-Heiz-/Kühl-Inkubator | Tritech Research Inc. | DT2-MP-47L | 35 °C Inkubator |
| Fisher Scientific Isotemp Niedertemperatur-Inkubator | Fisher Scientific | 146E | 30 °C Inkubator |
| SHELab SRI20P gekühlter Inkubator | Sheldon Manufacturing Inc. | SRI20P | 20 °C Inkubator |
| Leica M165 FC Forschungs-Stereomikroskop | Leica Microsystems | M165 FC | Mikroskop zur Bildgebung |
| ACCU-SCOPE 3075-DIA Zoombinokulares Stereomikroskop | ACCU-SCOPE Inc. | 3075-DIA | Mikroskop zur Handhabung und Auswertung von Würmern |
| Microsoft Excel 2019 | Microsoft Corporation | Darstellung der Rohdaten | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Datenvisualisierung | |
| OASIS 2 | POSTECH, PMID: 27528229 | Statistische Analyse | |
| BioRender | Science Suite Inc. | Schematische Darstellung | |
| ImageJ | National Institutes of Health (NIH) | Bildverarbeitung | |
| Adobe Illustrator 2021 | Adobe Inc. | Zusammenstellung der Abbildung Layout | |
| Wildtyp | Caenorhabditis Genetics Center, CGC | N2 | |
| tbh-1p::Caspase-3(p12)::nz; tbh-1p::cz::Caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | hausgemacht | RIC-Ablation | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. RIC-Neuronen sind mit GFP und mCherry markiert | Caenorhabditis Genetics Center, CGC | OH16150 |
Referenzen
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar