Es werden zwei kontaktlose Co-Kultur-Ansätze zur qualitativen und quantitativen Beurteilung morphologischer Reaktionen von Pilzen während interartlicher Interaktionen beschrieben. Das Protokoll veranschaulicht, wie intrinsische Faktoren das Hyphenwachstum beeinflussen, am Beispiel eines interartlichen Candida-Assays. Diese Methoden lassen sich leicht anpassen, um die interartliche Kommunikation bei verschiedenen Mikroorganismen zu untersuchen.
Methodenartikel
Kontaktlose Co-Kultur-Assays für morphometrische Studien während interspezifischer Interaktionen bei Pilzen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Das zelluläre Verhalten und die Morphologie werden in einer mikrobiellen Gemeinschaft normalerweise durch verschiedene intra- und extrazelluläre Faktoren beeinflusst. Verschiedene verfügbare Ansätze zur Untersuchung der mikrobiellen Kommunikation können mühsam sein und/oder spezialisierte Einrichtungen und Fachkenntnisse erfordern. Hier werden zwei komplementäre kontaktlose Co-Kultur-Ansätze beschrieben, der Membran-Insert-Multiwellplatte-Co-Kultur-Assay und der auf zellfreien Überständen (CFS) basierende Assay, die beide auf morphologischen Übergängen als messbare Reaktion beruhen, um die Rolle verschiedener Faktoren in einer gegebenen Interaktion zwischen Arten zu untersuchen. Das Membran-Insert-Multiwellplattensystem ermöglicht, während es die Diffusion extrazellulärer Moleküle erlaubt, eine Echtzeit-Interaktion zwischen räumlich getrennten Arten. Im Vergleich dazu bietet der CFS-basierte Assay einen vereinfachten, skalierbaren Ansatz zur Bewertung von Reaktionen auf konditioniertes Medium. Der hier vorgestellte Protokollablauf umfasst standardisierte Verfahren zur Kulturpräparation, Erzeugung konditionierter Überstände, Assay-Setup, Mikroskopie, Bildaufnahme, quantitative morphometrische Analyse mittels Fiji sowie statistische Auswertung. Dies wurde anhand eines Beispiels der pilzlichen morphologischen Reaktion auf intrinsische und extrinsische Faktoren demonstriert. Die hier vorgestellten Methoden bieten zugängliche und anpassbare alternative Werkzeuge zur Untersuchung neuartiger mikrobieller Interaktionen in einer Gemeinschaft und könnten leicht erweiterbar sein, um Mechanismen zu erforschen, die dem Zusammenleben mehrerer Arten in einer Gemeinschaft zugrunde liegen.
Einleitung
In natürlichen und klinischen Ökosystemen leben Mikroorganismen typischerweise in strukturierten polymikrobiellen Gemeinschaften, die durch komplexe Netzwerke intra- und interspezifischer Kommunikation reguliert werden1. Diese Gemeinschaften nutzen vielfältige chemische Signale, darunter Quorum-Sensing-Moleküle, flüchtige organische Verbindungen sowie sekretorische Peptide und Proteine, um verhaltensmäßige Prozesse auf Populationsebene zu koordinieren2. Die Kartierung dieser Kommunikationsdynamiken ist entscheidend, da kooperative, konkurrierende oder räuberische Nischeninteraktionen den mikrobiellen Stoffwechsel, die räumliche Architektur und die Anpassung an Stressfaktoren erheblich verändern3. Klinisch zeigen diese polymikrobiellen Netzwerke (wie beispielsweise bakteriell-pilzliche Gemeinschaften aus zwei Arten oder interspezifische pilzliche Gemeinschaften) im Vergleich zu Reinkulturen häufig eine synergistische Virulenz, eine beschleunigte Besiedlung von Gewebe und eine erhöhte antimikrobielle Resistenz4,5. Die Aufklärung der molekularen Determinanten mikrobieller Kommunikation ist daher entscheidend, um traditionelle Modelle zu überwinden und innovative antiinfektiöse Strategien zur Störung der Stabilität solcher Gemeinschaften zu entwickeln6.
Um unterschiedliche Formen der mikrobiellen Kommunikation zu untersuchen, nutzen Forscher vielfältige experimentelle Ansätze, die hauptsächlich in der Zellbiologie von Säugetieren, der Immunologie und der Onkologie Anwendung finden7,8,9. Beispielsweise dienen Direktkontakt-Ko-Kultivierungsmodelle als Standard zur Untersuchung juxtakriner Signalwege und physischer Zell-zu-Zell-Interaktionen10. Ähnliche Aufbauten mit Modifikationen werden ebenfalls verwendet, um physikalische Wechselwirkungen zwischen Mikroben zu erforschen, insbesondere deren gegenseitige Hemmung oder Reaktion auf Wirkstoffe9,11,12. Allerdings ist es schwierig, die zugrundeliegenden Mechanismen voneinander abzugrenzen, da sowohl kontaktabhängige als auch diffusible Signale zur beobachteten Reaktion beitragen. Während herkömmliche kontaktbasierte Assays räumliche Einblicke ermöglichen, sind sie arbeitsintensiv und/oder erfordern spezifische Markierungen der Stämme, was bei Nicht-Modellorganismen mühsam sein kann. Umgekehrt kommen Transwell-(Membraninsert-Platten)Assays, vor allem in Studien an Säugetierzellen, zum Einsatz, um die Beiträge kontaktabhängiger und diffusibler Signale voneinander zu trennen13,14,15,16. Diese Methode ist besonders nützlich, wenn die zelluläre Kommunikation durch sezernierte Moleküle vermittelt wird, da sie eine Echtzeitanalyse der Signalübertragungsdynamik zwischen Zellpopulationen erlaubt17. Darüber hinaus bieten kontaktfreie Assays den Vorteil einer Membrantrennung, die auch die Integration von Experimenten mit computerbasierten Modellen ermöglicht, um so Mikroben dynamisch zu verfolgen, die mit herkömmlichen Methoden übersehen werden18. Dieser Ansatz wird gelegentlich genutzt, um gleichzeitig die Entwicklungskinetik verschiedener Bakterienspezies zu untersuchen19.
Eine kostengünstigere Hochdurchsatz-Alternative zum Membran-Einsatz-Well-Platten-Assay ist der zellfreie Überstand-(CFS-)basierte oder auf konditioniertem Medium basierende Assay. Dieser wird bekanntermaßen in der regenerativen Medizin und der Gefäßbiologie eingesetzt, um Sekretome zu isolieren, die für das Verständnis der stammzellvermittelten Gewebereparatur und/oder der tumorigenen Angiogenese erforderlich sind20. Ähnlich haben CFS-Systeme in mikrobiellen Studien zur Aufklärung der polymikrobiellen Konkurrenz beigetragen. Beispielsweise wurden bakterielle Filtrate (wie Pseudomonas aeruginosa Acyl-Homoserinlactone oder Lactobacillus Metaboliten) verwendet, um die Reifung von Pilz-Biofilmen zu modulieren21,22. In jüngerer Zeit haben mikrofluidische Plattformen durch Organ-auf-einem-Chip-Technologien eine hochpräzise physiologische Biomimetik ermöglicht23,24. Obwohl mikrofluidische Systeme zur gleichzeitigen Detektion der Reaktion der mikrobiellen Gemeinschaft auf deren Sekretome eingesetzt wurden, erfordern sie spezialisierte Instrumente und Expertise und sind möglicherweise nicht in allen Laboren leicht umsetzbar25,26,27. Daher versprechen Membran-Einsatz-Well-Platten- und CFS-basierte Assays, in den meisten Fällen die Methoden der Wahl zu sein. Die Wahl zwischen diesen beiden Assays hängt von der Art des sekretorischen Moleküls ab. Ist das sekretorische Molekül instabil, d. h. hat eine kurze Halbwertszeit und erfordert die Messung der Echtzeitaktivität, ist der Membran-Einsatz-Well-Platten-Assay besser geeignet. Ist das sekretorische Molekül dagegen stabil und ist das Experiment im großen Maßstab angelegt, wäre ein CFS-basierter Assay wirtschaftlicher.
Das Hauptziel dieses Protokolls besteht darin, eine schrittweise qualitative und quantitative Verfolgungsmethode zur Bewertung morphologischer Merkmale vorzustellen, wobei die Membran-Insert-Platte und CFS-Plattformen verwendet werden (Abbildung 1). Hier wurde dies am Beispiel der durch Sekretionsfaktoren vermittelten Kommunikation zwischen Candida albicans und Candida glabrata demonstriert. Darüber hinaus können mit diesen Werkzeugen auch die Auswirkungen intrinsischer genetischer Variablen (Ploidie und Zustand des Paarungsorts) auf die absolute geometrische Entwicklung (Länge, Volumen und Durchmesser) von C. albicans Hyphen quantifiziert werden, wenn sie sekretorischen Signalstoffen ausgesetzt sind. Dieses etablierte Protokoll bietet eine einfache und kostengünstige, berührungslose Plattform, die sich zur Untersuchung der Signalübertragungsdynamik zwischen Arten eignet.
Protokoll
Sowohl C. albicans als auch C. glabrata werden als humanpathogene opportunistische Erreger der Biosicherheitsstufe 2 (BSL-2) klassifiziert. Alle experimentellen Schritte müssen innerhalb zertifizierter Sicherheitswerkbänke unter strikter Einhaltung guter mikrobiologischer Praxis (GMP) und institutioneller Sicherheitsmaßnahmen durchgeführt werden. Persönliche Schutzausrüstung (PSA), einschließlich Laborkittel, doppelter Handschuhe und Schutzbrille, muss während des gesamten Arbeitsvorgangs getragen werden. Alle kontaminierten Verbrauchsmaterialien, Kunststoffgefäße und flüssigen Kulturen müssen vor der endgültigen Entsorgung einer validierten Autoklavierung (121 °C, 15 psi, 20 min) oder einer chemischen Desinfektion mit einer frisch zubereiteten 10%igen Natriumhypochlorit-Lösung unterzogen werden (Empfehlung: Leitfaden zur Abfallentsorgung der National Institutes of Health (NIH) 2022). Alle in dieser Methodik verwendeten Standardreagenzien, chemisch reinen Substanzen und Geräte sind in der Tabelle der Materialien beschrieben. Die Eigenschaften der Pilzstämme und deren genetische Hintergrundstämme sind in Tabelle 1 detailliert aufgeführt. Die Liste der in dieser Studie verwendeten Medien mit ihren Zusammensetzungen ist in Zusatzdatei 1 enthalten.
1. Herstellung des zellfreien Überstandes (CFS)
- Kultivierung und Inkubation
- Mit einem sterilen Plastik-Öse eine einzelne, isolierte Kolonie von C. glabrata CBS138 abnehmen, die frisch auf einer Glucose-haltigen Minimalmedium (GMM)-Agarplatte28 gewachsen ist. Die Kolonie in ein steriles Glasröhrchen mit 10 mL standardisiertem Yeast Peptone Dextrose (YPD)-Brühe (1 % w/v Hefeextrakt, 2 % w/v Pepton, 2 % w/v D-Glukose)29 impfen.
- Das Röhrchen im orbitalen Schüttelinkubator befestigen. Die Kultur bei konstanter Temperatur von 37 °C unter kontinuierlicher Schüttelung mit 200 rpm für 18 h inkubieren.
- Überprüfen, ob die Kultur einheitlich die späte stationäre Wachstumsphase erreicht hat, indem die optische Dichte (OD600) innerhalb eines stabilen Bereichs von 12,0 bis 14,0 liegt. Die Zellen mikroskopisch untersuchen, um sicherzustellen, dass sie in Hefeform vorliegen und frei von Kontamination sind. Dieser Entwicklungszeitraum ist erforderlich, um eine optimale Anreicherung stabiler extrazellulärer Sekretomkomponenten sicherzustellen.
- Zellseparation und Filtration
- Die 18-stündige flüssige C. glabrata-Kultur aseptisch in ein steriles kegelförmiges 15-mL-Polypropylen-Zentrifugenröhrchen überführen.
- Die Röhrchen ausbalancieren und die Kultur bei 5.000 x g exakt 5 min bei kontrollierter Raumtemperatur von 25 °C zentrifugieren, um die Biomasse zu einem kompakten Pellet zusammenzupressen.
- Den rohen flüssigen Überstand vorsichtig in eine saubere, sterile 20-mL-Kunststoffspritze dekanteren. Die Spritze vorsichtig mit einem sterilen 0,22-µm-Polyethersulfon-(PES)-Membranfilter mit geringer Proteinbindung verbinden.
- Kontinuierlichen mechanischen Druck ausüben, um die Flüssigkeit durch den PES-Filter in ein steriles 15-mL-Sammelröhrchen zu leiten, wodurch das verwendbare zellfreie Überstandsmaterial (CFS) entsteht. Falls beim Filtrieren ein Widerstand spürbar ist, keinen übermäßigen Druck ausüben, da dies zum Bruch der Membran führen könnte. In solchen Fällen einen neuen Membranfilter verwenden.
HINWEIS: Dem frisch gewonnenen CFS keine schnellen Gefrier-Tau-Zyklen oder Lagertemperaturen unter 4 °C aussetzen, bevor der Assay aufgesetzt wird, da Kältefällung proteinarme Faktoren destabilisieren kann. - Das komprimierte Zellpellet im ursprünglichen Sammelröhrchen belassen, falls direkt mit dem komplementären Co-Kultivierungsversuch in der Membran-Insert-Platte (Schritt 4) fortgefahren wird.
2. Herstellung des Inokulums von Candida albicans für Hypheninduktionsassays
- Vorbereitung und Pflege des Inokulums
- Entnehmen Sie die Zielstämme von C. albicans (siehe Tabelle 1 für Genotypen) direkt aus den langfristig bei -80 °C gelagerten Glycerin-Hauptstämmen. Stricheln Sie die Zellen auf feste GMM-Platten (0,67 % w/v Hefe-Stickstoffbase ohne Aminosäuren, 2 % w/v D-Glukose, 2 % w/v Agar), um Arbeitskolonien anzulegen.
- Für diploide Stämme (SC5314, RBY1132, RBY1133): Inokulieren Sie eine einzelne Kolonie in 5 mL flüssiges GMM. Inkubieren Sie das Reagenzglas 12 h bei 37 °C unter konstanter Schüttelung bei 200 rpm.
HINWEIS: Die Verwendung von Minimalmedium (GMM) zur Übernachtkultur diploider Zellen ist entscheidend, um eine spontane Auto-Filamentierung zu unterdrücken, die häufig in nährstoffreichen Medien auftritt. - Für haploide Stämme (GZY896, GZY803): Inokulieren Sie eine isolierte Kolonie in 5 mL flüssige YPD-Brühe, ergänzt mit 0,1 mg/mL Uridin (YPDU). Inkubieren Sie das Reagenzglas 12 h bei 37 °C bei kontinuierlicher Schüttelung mit 200 rpm.
- Um die morphologische Stabilität zu bewahren und Konsistenz sicherzustellen, beschränken Sie aufeinanderfolgende Subkulturen in Flüssigmedium auf maximal drei Passagen. Falls Auto-Filamentierung oder pseudohyphale Aggregation im Ausgangskontrollbestand mehr als 2 % übersteigt, entsorgen Sie den Stamm und reanimieren Sie frische Zellen aus den Hauptschutzkulturen.
- Normalisierung
- Geben Sie 1 mL der Übernachtkulturen in sterile Küvetten. Messen Sie die exakte Absorption bei 600 nm (OD600) mithilfe eines kalibrierten UV/VIS-Spektrophotometers, wobei frische GMM- oder YPDU-Brühe als Blindansatz dient.
HINWEIS: Die OD600 (Zelldichte) der flüssigen Übernachtkulturen, insbesondere der in YPDU gezüchteten, würde den Empfindlichkeitsbereich des Spektrophotometers überschreiten. In solchen Fällen verdünnen Sie die Kulturen entsprechend (10–20-fach), bevor Sie die Messung durchführen. - Berechnen Sie das Volumen der dichten Kultur, das zur Herstellung einer standardisierten Ziel-Suspension benötigt wird. Verdünnen Sie die Zellen in einem sterilen Reagenzglas mit vorgewärmtem (37 °C) flüssigem GMM, um eine 1-mL-Arbeitsinokulation mit einem endgültigen OD600 von genau 0,1 herzustellen.
- Geben Sie 1 mL der Übernachtkulturen in sterile Küvetten. Messen Sie die exakte Absorption bei 600 nm (OD600) mithilfe eines kalibrierten UV/VIS-Spektrophotometers, wobei frische GMM- oder YPDU-Brühe als Blindansatz dient.
3. CFS-basierter Hypheninduktionstest (Format mit 96-Loch-Platte)
- Assay-Setup
- Ein steriles, optisch klares, flachbodiges 96-Well-Polystyrol-Mikrotiterplättchen verwenden.
- Test-Well-Konfiguration: 45 µL des frisch filtrierten C. glabrata-CFS (aus Schritt 1.2.4) direkt in die vorgesehenen Test-Well geben. 45 µL sterilen GMM-Brühe hinzufügen (oder YPDU-Brühe, wenn haploide Zielstämme evaluiert werden).
- Negative Medium-Kontrollen: 90 µL GMM-Brühe in Kontroll-Wells geben. Zusätzlich in einem separaten Well 45 µL sterile GMM-Brühe mit 45 µL blanker, nicht-inokulierter YPD-Brühe mischen, um die Hintergrundkomponenten des Mediums zu überwachen.
- Positive Induktionskontrollen: 80 µL GMM-Brühe mit 10 µL Fötales Rinderserum (FBS; Endkonzentration 10 % v/v) kombinieren.
- Inokulation: Exakt 10 µL des normalisierten OD600 = 0,1 des C. albicans-Arbeitsinokulums (aus Schritt 2.2.2) in 90 µL geeignetem Medium in alle experimentellen und Kontroll-Wells geben.
- Inkubation und Datenerfassung
- Das 96-Well-Plättchen mit dem passenden Kunststoffdeckel abdecken, um Verdunstung zu minimieren. Das Plättchen für genau 3 h in einen statischen Inkubator bei 37 °C stellen. Während dieses Zeitraums das Plättchen nicht bewegen oder schütteln, um eine stabile Filamentierung zu ermöglichen.
- Nach der Inkubation das Mehrfach-Well-Plättchen aufrecht auf den Objekttisch eines invertierten Lichtmikroskops mit Hellfeldoptik und einem integrierten digitalen CCD-Kamera-Modul stellen.
- Systematisch automatisierte oder manuelle Bilder aus mindestens fünf verschiedenen Sichtfeldern pro Well aufnehmen.
- Diese Assay-Konfiguration mit klaren technischen Duplikaten pro Bedingung durchführen, jeweils über mindestens drei vollständig unabhängige biologische Wiederholungen, die an separaten Tagen vorbereitet wurden.
4. Membraninsert-Platten-Kokultursystem
- Abluminale (untere) Kompartimentvorbereitung
- Ein steriles 24-Loch-Gewebekulturträgerplättchen entnehmen.
- Genau 1,0 mL der normalisierten C. albicans-Zellsuspension mit einem OD600 = 0,1 (aus Schritt 2.2.2) in die unteren abluminalen Kammern pipettieren.
- Luminale (obere) Kompartimentvorbereitung
- Das während Schritt 1.2.5 beiseitegestellte C. glabrata-Zellpellet entnehmen. Das Pellet in 1 mL steriler GMM-Brühe resuspendieren, 3 min bei 5000 x g zentrifugieren und die Flüssigkeit abgießen. Diesen Waschschritt zweimal wiederholen, um verbleibende Nährstoffkomponenten oder alte Mediumbestandteile zu entfernen.
- Das endgültig gewaschene Pellet in frischer GMM-Brühe resuspendieren und die optische Dichte auf einen stark konzentrierten Wert von OD600 = 5,0 einstellen.
- Mit sterilen Pinzetten einen sterilen Membran-Einsatz mit einer track-geätzten Polycarbonatmembran mit 0,4 µm Porengröße aufnehmen. Den Einsatz vorsichtig in die besetzte Kammer der 24-Lochplatte einführen und die oberen Flansche in den mittleren Nutzpositionen fixieren.
- Genau 750 µL der konzentrierten C. glabrata-Kultur mit einem OD600 = 5,0 in die obere luminalen Einsatzkammer pipettieren.
HINWEIS: Die Aufrechterhaltung eines anfänglichen Zellverhältnisses von etwa 1:50 (C. albicans zu C. glabrata) über die Membranbarriere hinweg gewährleistet eine ausreichende Anreicherung von Signalliganden und verhindert gleichzeitig lokal begrenzte Rückkopplungsartefakte.
- Inkubation und Bildgebung
- Die zusammengestellte Membran-Einsatz-Plattenanordnung abdecken und 3 h lang statisch oder bei leichtem Rotationsschütteln (30 U/min) bei 37 °C inkubieren.
- Nach der Inkubation mit sterilen Pinzetten den oberen luminalen Einsatz vorsichtig anheben und aus jedem Loch entfernen. Die Einsätze in den Bioabfall entsorgen.
HINWEIS: Eine vollständige Entfernung der oberen Membraneinsätze vor der Bildgebung ist erforderlich, um Brechungsschatten, Streulichtmuster und Hintergrundrasterartefakte während der hochauflösenden mikroskopischen Analyse zu vermeiden. - Die 24-Lochplatte auf den Objekttisch des inversen Mikroskops zur morphologischen Auswertung positionieren. In dieser Studie wurde ein inverses Mikroskop mit einem 10x/0,30NA-, einem 20x/0,50NA- oder einem Objektiv mit extra langer Arbeitsdistanz (40x/0,60NA) sowie einem DIC-Filter verwendet.
5. Hochauflösende Mikroskopie und digitale Bildanalyse
- Digitale Bildaufnahme
- Scannen Sie die Bodenflächen der Vertiefungen mit einem 10x-Objektiv niedriger Vergrößerung, um eine gleichmäßige Zellverteilung zu überprüfen, und markieren Sie gegebenenfalls lokal begrenzte Verfolgungsfehler oder anomales Zellclustering.
- Erfassen Sie mindestens 10 verschiedene Gesichtsfelder mithilfe eines kalibrierten 20x-Objektivs. Diese Aufnahmen bilden den Kerndatensatz zur Verfolgung standardisierter Filamentzahlen und Populationsverteilungen.
- Für eine detaillierte phänotypische Analyse und genaue Messungen der Zellgrenzen Aufnahmen mittels eines 40x-Objektivs mit extra langer Arbeitsdistanz anfertigen. Alle Rohbilddateien speichern.
- Quantitative Phänotypisierungspipeline (Fiji)
- Starten Sie die Fiji (Version 1.54p oder höher) Verarbeitungssoftware. Öffnen Sie die Ziel-Mikrografie, indem Sie zu Datei > Öffnen oder durch Ziehen der Datei direkt in die Fiji Bedienfeld
- Verfolgung der Hyphenlänge (L): Rechtsklicken Sie auf das Linienselektions-Symbol in der Haupt- Fiji Symbolleiste und wählen Sie die Segmentiertes Linienwerkzeug aus dem Dropdown-Menü. Positionieren Sie den Cursor an der genauen Übergangsstelle, an der das sich bewegende Filament aus der Zellwandgrenze der mütterlichen Hefe-Zelle austritt.
- Linksklicken Sie kontinuierlich entlang der zentralen Längsachse der Hyphen, setzen Sie Ankerpunkte, um Kurven oder Biegungen anzupassen, und beenden Sie die Linie an der äußersten apikalen Spitze. Klicken Sie auf Messen um die Länge in Mikrometern zu erfassen (µm). Drücken Sie Strg+M (Windows) oder Cmd+M (Mac OS), um die Gesamtlänge (L) in Mikrometern (µm) zu erfassenµm) im Ergebnisfenster.
- Um Doppelmessungen desselben Filaments zu vermeiden, verwenden Sie das integrierte „Pinsel-Werkzeug“, um jede fertiggestellte Zelle hervorzuheben.
- Profilierung der Mutterhefezelle: Lokalisieren Sie den angehefteten Körper der Mutterhefezelle, der dem zuvor verfolgten Hyphenfilament entspricht. Verwenden Sie die Segmentiertes Linienwerkzeug eine gerade Linie entlang der maximalen Längsachse des Zellkörpers ziehen, um deren maximale Längsachse (Hauptachse, definiert als Variable „a“) zu messen, und die Messen Befehl.
- Ziehen Sie eine sekundäre Linie streng senkrecht zur Hauptachse über die breiteste transversale Ausdehnung des Zellkörpers, um die zugehörige senkrechte Querachse (Nebenachse, definiert als Variable „b“) zu messen, und führen Sie die Messen Befehl.
- Berechnen Sie das Gesamtvolumen der Mutterhefezelle (CV, ausgedrückt in Kubikmikrometern, µm3), indem das Standard-geometrische Modell für ein prolatoides Sphäroid unter Verwendung der logarithmierten Variablen für „a“ und „b“ angewendet wird: CV = 4/3 π ab2.
- Hyphale Strukturdicke (d): Wählen Sie die Segmentiertes Linienwerkzeug. Messen Sie den Außenwand-zu-Außenwand-Abstand d. h. Linie senkrecht zur Längsachse gezogen. Nehmen Sie diese Messungen an drei gleichmäßig verteilten Stellen entlang der Länge des Filaments vor, um natürliche strukturelle Variationen zu berücksichtigen, und dokumentieren Sie jede Messung. über der Messen Befehl.
- Berechnen Sie den arithmetischen Mittelwert dieser drei verschiedenen Datenpunkte, um einen genauen Durchschnittswert für die Dicke (d) zu ermitteln. Teilen Sie diesen berechneten mittleren Durchmesser durch zwei, um die strukturelle Variable Radius zu bestimmen (r = d/2).
- Berechnen Sie das Gesamtvolumen des Hyphenfilaments (HV, ausgedrückt in µm3) indem das Filament als unverzweigter, regelmäßiger geometrischer Zylinder betrachtet wird. Wenden Sie die verfolgte Filamentlänge (L) und den abgeleiteten strukturellen Radius (r) auf das folgende Berechnungsmodell an: HV = π r2 L.
6. Statistisches Design
- Biologische Replikate
- Führen Sie alle individuellen Testanordnungen in mindestens drei unabhängigen biologischen Durchläufen durch, wobei frische, separat hergestellte Startkulturen verwendet werden.
- Weisen Sie innerhalb jedes biologischen Durchlaufs pro Bedingung mindestens zwei identische technische Vertiefungen zu, um lokale Randeffekte der Vertiefungen oder Pipettierungsabweichungen zu berücksichtigen.
- Definition der experimentellen Einheit: Um statistische Gültigkeit sicherzustellen und Artefakte zu vermeiden, schließen Sie für jedes Experiment mindestens drei technische Wiederholungen ein. Einzeln gemessene Zellen innerhalb einer einzelnen Vertiefung stellen technische Teilproben dar; entsprechend würden drei solcher Vertiefungen drei technischen Replikaten entsprechen. Ebenso werden für jede Probe drei biologische Replikate (unabhängige Experimente) empfohlen (N = 3).
- Messen Sie für jede unterschiedliche Bedingung innerhalb eines biologischen Durchlaufs zufällig zwischen 50 und 100 einzelne Zellen über mehrere Blickfelder hinweg. Berechnen Sie für jedes biologische Replikat den Mittelwert oder Medianwert dieser Zellmessungen. Verwenden Sie diese Mittel- oder Medianwerte aus den biologischen Replikaten für alle nachfolgenden vergleichenden statistischen Tests.
- Verteilungsanalyse und Hypothesentests
- Unterziehen Sie die Datensätze der biologischen Replikate vor der Anwendung parametrischer Methoden (z. B. Vergleich von Mittelwerten) einer Normalverteilungsprüfung mithilfe des Shapiro-Wilk- oder D’Agostino-Pearson-Tests.
- Vergleich zweier Gruppen: Wenn eine einzelne Testgruppe direkt mit einem einzelnen Kontrollhintergrund verglichen wird (z. B. Wachstum von Wildtyp C. albicans in reinem Medium im Vergleich zum Wachstum in isoliertem C. glabrata-CFS), wenden Sie einen ungepaarten, zweiseitigen Student’s t-Test an, sofern die Daten einer Normalverteilung folgen.
- Weichen die Daten signifikant von einer Normalverteilung ab, wechseln Sie zu einem nichtparametrischen Alternativtest, wie beispielsweise dem Mann-Whitney-U-Test (Wilcoxon-Rangsummentest), der die Medianwerte ranggeordneter Daten vergleicht und nicht von den absoluten Datenwerten abhängt. Nichtparametrische Tests gelten außerdem als unverzerrt gegenüber Ausreißerwerten.
- Mehrfachgruppenvergleiche: Bei der gleichzeitigen Bewertung von drei oder mehr genetischen Linien oder Behandlungskombinationen (z. B. Verfolgung morphologischer Variationen über MATa/a-, MATα/α- und MATa/α-Stämme hinweg) führen Sie eine standardmäßige einfaktorielle Varianzanalyse (ANOVA) durch, gefolgt von Tukey’s post-hoc-Test für multiple paarweise Vergleiche. Falls die Normalverteilungsannahme verletzt ist, ersetzen Sie das parametrische Verfahren durch einen nichtparametrischen Kruskal-Wallis-Test, gefolgt von der post-hoc-Mehrfachvergleichsanalyse nach Dunn.
- Grafische Darstellung und Datenvisualisierung: Führen Sie alle statistischen Analysen und grafischen Darstellungen mithilfe statistischer und grafischer Software durch.
HINWEIS: Äquivalente Software kann zur Durchführung statistischer Analysen und Erstellung grafischer Darstellungen verwendet werden. Daten aus Membran-Insert-Mikrotiterplatten und CFS-Assays können mithilfe von Säulen-Streudiagrammen, Jitter-Violin-Plots oder Jitter-Box-Plots dargestellt werden, die den Median (zentrale Linie) und das 95 %-Konfidenzintervall (in dieser Studie verwendet) oder den Median (zentrale Linie) sowie das erste und dritte Quartil (jeweils obere und untere Linie) darstellen. - Legen Sie die Schwelle für formale statistische Signifikanz bei einem Alphawert von p < 0,05 fest. Verwenden Sie durchgängig die übliche Notationsweise in allen erstellten Datenabbildungen und Tabellen. Beispiel: ns: p > 0,05; *: p < 0,05; **: p < 0,01; ***: p < 0,001; ****: p < 0,0001.
Ergebnisse
Kontaktlose Kokultur-Assays zur Untersuchung von Interaktionen zwischen Arten
Lösliche, wenig abgegebene extrazelluläre Signalstoffe vermitteln häufig zentrale Kommunikationsereignisse während einer gemeinsamen Besiedlung durch verschiedene Mikroben. Solche Dynamiken wurden mithilfe zweier kontaktloser zellbasierter Aufbauten untersucht, die entwickelt wurden, um Interaktionsmuster zwischen C. albicans und C. glabrata zu analysieren, während direkter physischer Zell-zu-Zell-Kontakt verhindert wurde. Die erste Konfiguration verwendete ein integriertes Kultursystem mit Membran-Einschub-Well-Platte, bei dem die beiden Populationen durch eine inerte, poröse Polycarbonatmembran mit einer Porengröße von 0,4 µm physisch getrennt waren, wodurch eine ungehinderte bidirektionale Diffusion der sezernierten Moleküle über die Barriere ermöglicht wurde. Der zweite Aufbau überwachte das Wachstum von C. albicans-Hefezellen, die direkt in Mikrotiterplatten kultiviert wurden, die zellfreie Überstände enthielten, die aus stationären C. glabrata-Kulturen (CgCFS) gewonnen worden waren.
In Übereinstimmung mit den vorherigen Untersuchungen30 entwickelten heterozygote diploide Wildtyp-Zellen von C. albicans (SC5314) leicht echte Hyphen als Reaktion auf C. glabrata-Zellen, die durch die Membraninsert-Barriere getrennt waren, oder auf das gefilterte CgCFS. Dagegen blieben Zellen, die in reinem negativen Kontrollmedium (GMM oder YPD) kultiviert wurden, vorwiegend in der Hefeform mit Knospung und in pseudohyphaler Form (Abbildung 2A). Die vergleichenden Analysen zeigten eine Übereinstimmung zwischen den beiden Testaufbauten. Beide Assays ergaben vergleichbare Werte bei allen strukturellen Parametern, einschließlich Filamentlänge, -volumen und -dicke (Abbildung 2). Ein Unterschied in den morphologischen Parametern galt als signifikant, wenn der p-Wert aus den entsprechenden statistischen Tests, gefolgt von Post-hoc-Tests für multiple Vergleiche, das Signifikanzniveau von 0,05 erreichte. Diese Beobachtungen zeigten, dass bei C. albicans-Zellen kein signifikanter Unterschied in der Länge echter Hyphen bestand, die entweder im Membraninsert-Well-Platten-System durch C. glabrata-Zellen induziert wurden (39,66 µm ± 6,81 µm) oder bei Exposition gegenüber dem gefilterten CgCFS (37,13 µm ± 6,50 µm; Abbildung 2B). Ebenso unterschieden sich die Volumina dieser induzierten Filamente im Membraninsert-Well-Platten-System (112,10 µm3 ± 22,59 µm3) nicht signifikant von denen im CgCFS-konditionierten Medium (109,78 µm3 ± 34,69 µm3; Abbildung 2C). Außerdem bestätigten Durchmesser-Messungen der Filamente, dass die durchschnittliche Hyphendicke zwischen den beiden Aufbauten konsistent blieb, mit Werten von 1,89 ± 0,10 µm für die Membraninsert-Well-Platten-Konfiguration und 1,92 µm ± 0,23 µm für die CgCFS-Behandlung (Abbildung 2D).
Ploidiezustände und Konfigurationen des Kopplungstyps verändern die morphologischen Dimensionen in vitro
Die Rollen von Ploidieebenen und Mating-Locus-Architekturen bei der Steuerung dimorpher Übergänge wurden in verschiedenen pilzlichen Modellsystemen nachgewiesen. Hier wurde eine analytische Nachverfolgungspipeline angewandt, um Filamentierungsmetriken – insbesondere Hyphenlänge, strukturelles Volumen, Dicke sowie das entsprechende Volumen der Mutterhefezelle – in einer Reihe von haploiden (MATa oder MATα) und diploiden (MATa/a, MATα/α oder MATa/α) C. albicans-Stämmen zu quantifizieren.
Die strukturelle Profilierung zeigte, dass der homozygote diploide Alpha-Stamm (MATα/α) nach Exposition gegenüber entweder dem induktiven CgCFS-Sekretom oder der positiven Serumkontrolle Filamente mit signifikant längeren Achsen (45,56 µm ± 9,24 µm und 46,62 µm ± 9,07 µm) und größerem Volumen (125,24 µm3 ± 39,94 µm3 und 119,45 µm3 ± 37,32 µm3) bildete im Vergleich zum homozygoten diploiden MATa/a-Stamm (Abbildung 3A,C). Während standardmäßige klinische Isolate von C. albicans vorwiegend als heterozygote Diploide vorliegen, wies der Referenzstamm MATa/α nach Induktion (insbesondere mit Serum) längere Filamente und größere Volumina im Vergleich zum MATa/a-Stamm auf. Diese waren jedoch signifikant geringer als beim homozygoten MATα/α-Stamm (Abbildung 3B,D).
Gleichzeitig zeigten die haploiden Stämme ein umgekehrtes Muster, bei dem der haploide MATa-Stamm unter beiden Induktionsbedingungen eine signifikante Zunahme der Hyphenlänge im Vergleich zum haploiden MATα-Stamm aufwies (CgCFS: 22,06 µm ± 5,41 µm gegenüber 17,58 µm ± 4,12 µm; Serum: 23,71 µm ± 6,59 µm gegenüber 21,00 µm ± 5,29 µm; Abbildung 4A). Interessanterweise führte diese Längenzunahme im haploiden Hintergrund nur als Reaktion auf CgCFS zu einer Zunahme des Hyphenvolumens (38,84 µm3 ± 19,58 µm3 gegenüber 34,25 µm3 ± 19,62 µm3) (Abbildung 4B). Diese ersten in vitro-Messungen deuten auf eine komplexe Wechselwirkung zwischen Ploidiezuständen und Konfigurationen des Paarungstyp-Lokus hin und legen nahe, dass die MATa- und MATα-Loci vermutlich unterschiedlich zur Dynamik der Filamentbildung beitragen.
Um die statistischen Zusammenhänge zwischen diesen strukturellen Kenngrößen über die kombinierten Datensätze hinweg zu untersuchen, wurden eine Rangkorrelation nach Spearman (ρ) und eine lineare Regression nach Pearson (R2) durchgeführt, die alle getesteten Ploidie- und Kopplungstyp-Varianten umfassten. Positive Korrelationen wurden bei allen analysierten Paaren beobachtet: Hyphenlänge versus Hyphenvolumen, Hyphenlänge versus Hyphendicke, Hyphenlänge versus Mutterzellvolumen sowie gesamtes Hyphenvolumen versus Mutterhefezellvolumen (Abbildung 5, ergänzende Tabelle 1 und ergänzende Tabelle 2).
Der stärkste Zusammenhang wurde zwischen der Hyphenlänge und dem berechneten Hyphenvolumen beobachtet (ρ = 0.91; Abbildung 5A). Umgekehrt war die schwächste Korrelation zwischen dem Ausgangsvolumen der Mutterhefezelle und dem entstehenden Hyphenvolumen (ρ = 0.63; Abbildung 5C). Außerdem korrelierte die Hyphendicke nicht so stark mit der Hyphenlänge wie das Hyphenvolumen (Abbildung 5A,D). Das Volumen der Mutterzelle, die Hyphenlänge und die Hyphendicke wiesen keine statistisch signifikanten Unterschiede in ihren Korrelationen auf (Abbildung 5B,D). Diese geometrischen Verteilungen legen nahe, dass ein größeres initiales Volumen der Mutterhefezelle nicht zwangsläufig zu längeren Hyphen oder einem höheren Volumen führen muss.
Zusammenfassend zeigen diese Ergebnisse die Nützlichkeit sowohl der Membran-Insert-Well-Platte als auch der auf CFS basierenden Assays zur Visualisierung und Quantifizierung morphogenetischer Variationen in C. albicans ohne jeglichen physischen Kontakt. Die durch dieses Protokoll gewonnenen Daten offenbaren unterschiedliche morphologische Merkmale in verschiedenen Ploidie-Hintergründen und Konfigurationen des Kopplungstyps. Diese kontaktlosen Assay-Setups bieten eine flexible, skalierbare Methodik, die angepasst werden kann, um Signaldynamiken zwischen Arten in vielfältigen mikrobiellen Kombinationen zu untersuchen.
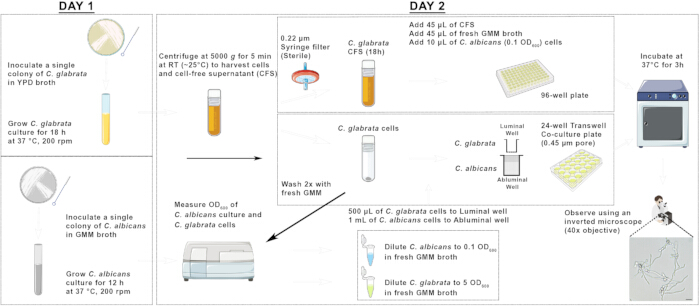
Abbildung 1: Eine schematische Darstellung der Kokultur in Mehrlochplatten mit Membraninserts und der Hypheninduktionsassays basierend auf CFS mit Candida-Arten. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
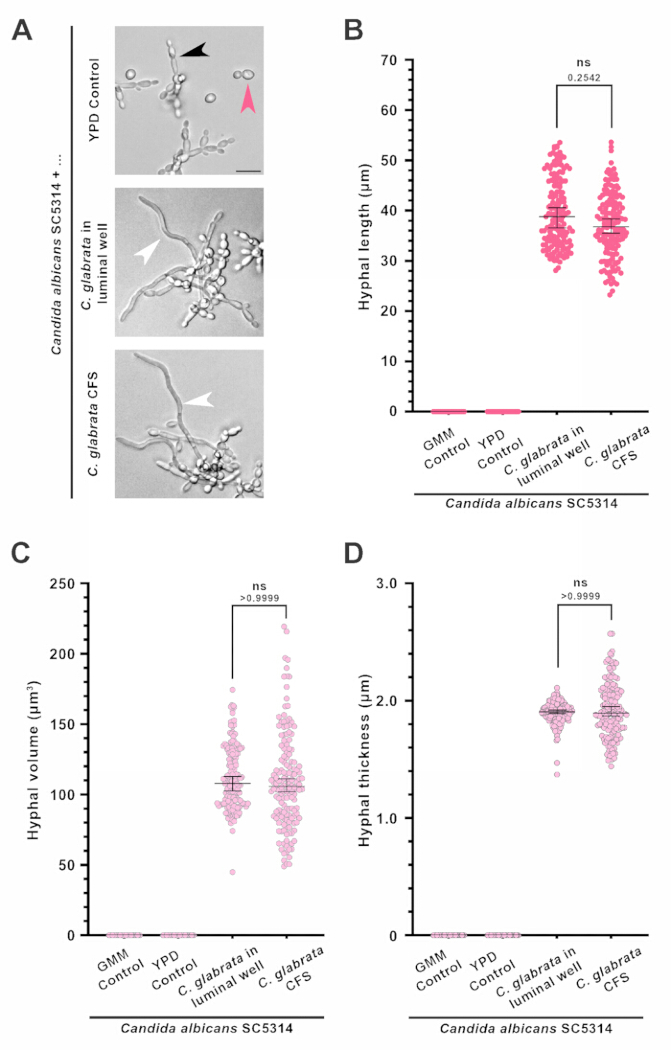
Abbildung 2: Vergleich der beobachteten Hyphenmorphismen zwischen der Membraninsert-Wellplatte und CFS-basierten kontaktlosen Assays. (A) Repräsentative Hellfeld-Mikroaufnahmen, die die morphologische Reaktion von C. albicans auf YPD (Kontrolle), C. glabrata in einer Membraninsert-Wellplattenanordnung oder auf das mit dem C. glabrata-zellfreien Überstand (CFS) konditionierte Medium zeigen. Rosa, schwarze und weiße Pfeilspitzen kennzeichnen Hefe-, Pseudohyphen- bzw. echte Hyphen. Maßstab: 10 µm. Hyphenlängen (B), Hyphenvolumina (C) und Hyphendicke (D) eines heterozygoten diploiden C. albicans-Stamms (SC5314), beobachtet als Reaktion auf C. glabrata-Zellen in einer Membraninsert-Wellplattenanordnung oder C. glabrata-CFS. Die Daten zeigen Median ± 95 % Konfidenzintervalle aus drei unabhängigen biologischen Experimenten mit n = 50 Zellen. ns, nicht signifikant: p > 0,05. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
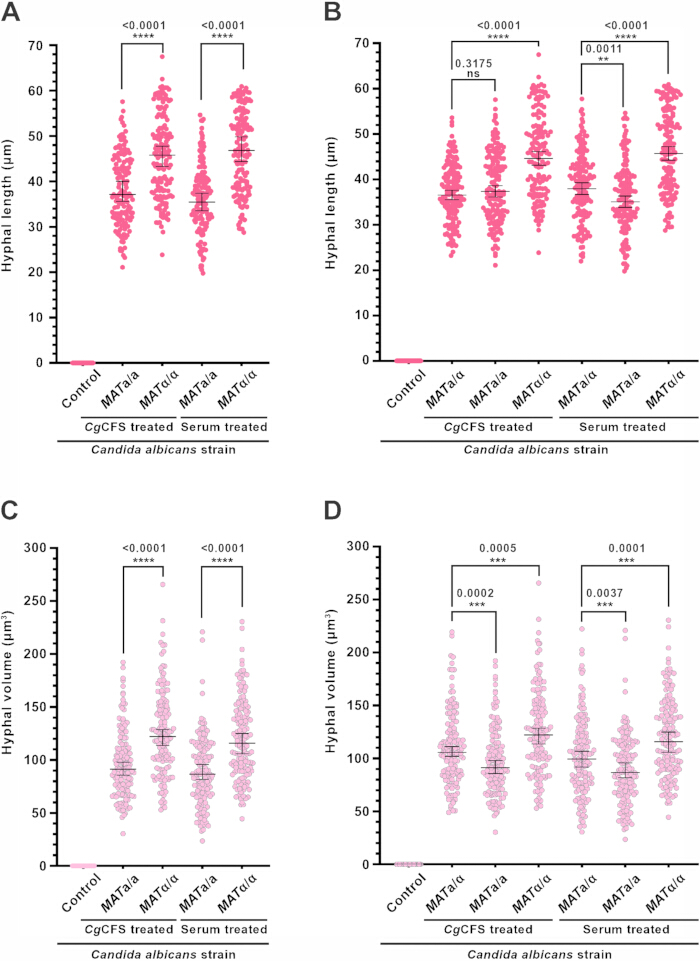
Abbildung 3: Der Mating-Typ und die Zygosität haben signifikante Auswirkungen auf die Hyphenmorphe in diploiden C. albicans. Diagramme, die vergleichende Hyphenlängen in Reaktion auf die angegebenen Induktormoleküle zwischen homozygoten Diploiden (A) und zwischen hetero- und homozygoten Diploiden (B) von C. albicans darstellen. Ebenso werden die vergleichenden Hyphenvolumina in Reaktion auf die genannten Induktormoleküle zwischen homozygoten Diploiden (C) und zwischen hetero- und homozygoten Diploiden (D) gezeigt. Kontrolle: YPD, das Medium, das keine Hyphenbildung induziert. Die Daten zeigen Median ± 95 % Konfidenzintervalle aus drei unabhängigen biologischen Experimenten mit n = 50 Zellen. Die oben im Diagramm angegebenen Zahlen sind p-Werte, ermittelt mittels Wilcoxon-Rangsummentest-Vergleichen. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, statistisch signifikant; ns, nicht signifikant: p > 0,05. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
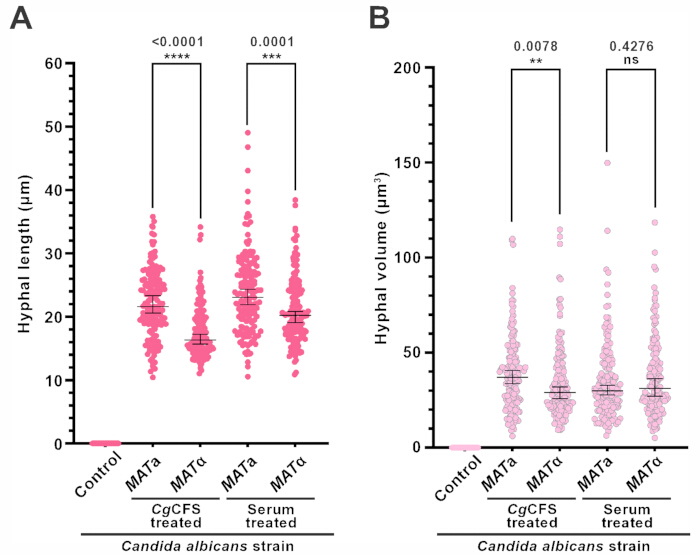
Abbildung 4: Hyphenmerkmale von haploiden C. albicans als Reaktion auf verschiedene molekulare Induktoren. Die Diagramme zeigen die Hyphenlängen (A) und Hyphenvolumina (B) von haploiden C. albicans-Stämmen als Reaktion auf die angegebenen Induktoren. Kontrolle: YPD, das Medium, das keine Hyphenbildung induziert. Die Daten stellen den Median ± 95 % Konfidenzintervall aus drei unabhängigen biologischen Experimenten mit jeweils n = 50 Zellen dar. Angegebene Zahlen bezeichnen p-Werte, berechnet mittels Wilcoxon-Rangsummentest. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, statistisch signifikant; ns, nicht signifikant: p > 0,05. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
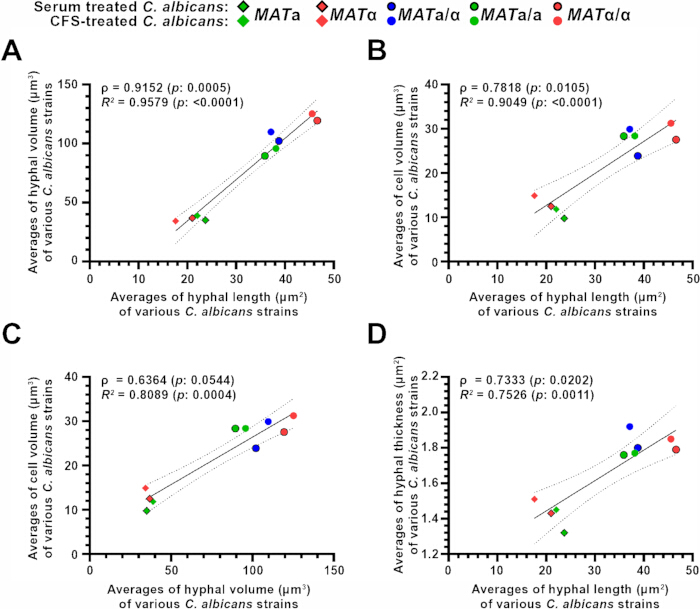
Abbildung 5: Korrelation zwischen den morphologischen Parametern in Beziehung zur Ploidie von C. albicans. Die Diagramme zeigen die Spearman-Korrelation und lineare Regression zwischen den in dieser Studie verwendeten morphologischen Parametern, nämlich Hyphen-Volumen und Hyphen-Länge (A), Zellvolumen und Hyphen-Länge (B), Zellvolumen und Hyphen-Volumen (C) sowie Hyphen-Dicke und Hyphen-Länge (D). ρ: Spearman-Korrelationskoeffizient; R2: Bestimmtheitsmaß aus der linearen Regressionsanalyse; p: p-Wert. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Stamm | Art | Ploidie | Genotyp | Quelle |
| CBS138 | Candida glabrata | Haploid (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploid (2n) | Heterozygot (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploid (2n) | Homozygot (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploid (2n) | Homozygot (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploid (1n) | Homozygot (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploid (1n) | Homozygot (MATα); his4 ura3Δ::HIS4 |
Tabelle 1: Stämme von Candida albicans und Candida glabrata, die in dieser Studie verwendet wurden. Die Tabelle fasst die Bezeichnungen, expliziten Genotypen, Ploidiezustände und die Zygosität des Kopplungstyps für die in den kontaktlosen Membraninsert-Platten-Kokulturen und den Analysen auf Basis von zellfreien Überständen (CFS) untersuchten Pilzstämme zusammen.
Erweiterte Tabelle 1: Daten statistischer Analysen, die an verschiedenen morphologischen Parametern von C. albicans durchgeführt wurden. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Erweiterte Tabelle 2: Rohwerte aller biologischen Wiederholungen verschiedener morphologischer Parameter von C. albicans, die in dieser Studie untersucht wurden.Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 1: Liste der in dieser Studie verwendeten Medien mit ihren Zusammensetzungen.Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Ein früherer Bericht, der eine Membran-Einlegeplatte und einen CFS-basierten Assay verwendete, zeigte, dass C. albicans Hyphen als Reaktion auf C. glabrata-Zellen oder deren CFS ausbildet. Diese Reaktion wurde jedoch nicht durch andere Hefen, wie beispielsweise Saccharomyces cerevisiae und Candida dubliniensis30, ausgelöst. Zudem war diese hyphale Reaktion nicht auf den Labormessstamm C. albicans SC5314 beschränkt, sondern trat auch in anderen genomischen Hintergründen auf, einschließlich des klinischen Isolats WUM5A30. In diesem Protokoll wurde anhand dieser Erkenntnisse ein standardisierter Arbeitsablauf entwickelt, um drei morphologische Parameter zu quantifizieren: Hyphenlänge, Hyphenvolumen und Hyphendicke. Darüber hinaus wurden diese morphologischen Faktoren verwendet, um zu bewerten, wie Variationen in Ploidie und dem Status des Paarungstyp-Lokus die morphologischen Eigenschaften von C. albicans als Reaktion auf ein sekretiertes Induktormolekül beeinflussen.
Die hier beschriebenen kontaktlosen Methoden bieten einen einfachen experimentellen Rahmen, um die morphometrischen Ergebnisse löslicher, überspezifischer Signalstoffe sichtbar zu machen und zu analysieren. Während die Membran-Insert-Kulturplatte eine bidirektionale Diffusion zwischen aktiven Kulturen ermöglicht, bietet der CFS-basierte Assay ein skalierbares Format, da die benötigten induktiven Komponenten unabhängig von der nachgeschalteten Zielkultur gewonnen werden. Um die Konsistenz des Assays sicherzustellen, ist es erforderlich, im Membran-Insert-Kulturplatten-Setup ein Verhältnis von etwa 1:50 (C. albicans zu C. glabrata) beizubehalten. Dieser Konzentrationsgradient gewährleistet einen ausreichenden Fluss der löslichen induktiven Moleküle durch die Membranbarriere, bleibt dabei jedoch unterhalb der Anreicherungsschwellen endogener Quorum-Sensing-Inhibitoren wie Farnesol, die die Filamentationskinetik von C. albicans hemmen können31,32. Ebenso ist ein kritischer Schritt im CFS-basierten Assay die 18-stündige Inkubationszeit, die erforderlich ist, damit die C. glabrata-Quellkultur einheitlich die späte stationäre Wachstumsphase erreicht. Falls die Inkubationszeit der C. glabrata-Kultur weniger als 12 Stunden oder mehr als 24 Stunden beträgt, ist die gewonnene CFS wahrscheinlich nicht optimal hinsichtlich der Konzentration des hier untersuchten spezifischen Induktormoleküls, was zu einer suboptimalen Hypheninduktion führt. Der geeignete Wachstumsstadium zum CFS-Gewinn oder das Verhältnis der Kulturen muss für jedes neue experimentelle Ziel und/oder neue Kombinationen mikrobieller Spezies standardisiert werden.
Um die Reproduzierbarkeit des Assays in verschiedenen Laborumgebungen zu maximieren, werden folgende wesentliche prozedurale Verbesserungen empfohlen. Es wird empfohlen, Glucose-Minimalmedium (GMM) für die Übernachtkultivierung aller diploiden C. albicans-Stämme zu verwenden. Die Verwendung von GMM unterdrückt die Hintergrund-Autofilamentierung, die häufig in nährstoffreichem YPD-Medium beobachtet wird. Eine solche Autofilamentierung wurde auch in anderen Studien beschrieben, obwohl der zugrundeliegende Mechanismus noch unklar ist33. Außerdem wird die vollständige physische Entfernung des Polycarbonatmembran-Einsatzes vor der Bildaufnahme empfohlen, um Lichtstreuung und optische Aberrationen zu eliminieren, die bei der Hellfeldmikroskopie mit hoher Vergrößerung stören können.
Während diese kontaktfreien Konfigurationen dabei helfen, die Rollen löslicher Signalstoffe voneinander zu trennen, bringen sie spezifische experimentelle Herausforderungen mit sich. Beispielsweise sind kontaktfreie Assays anfällig für geringfügige Risiken wie Membranrupturen aufgrund unsachgemäßer Handhabung und infolgedessen mikrobiellen Übergang. Daher sollte beim Positionieren der Pipettenspitzen besondere Sorgfalt darauf geachtet werden, dass die Spitzen die Kammerwände der Inserts berühren und nicht die Membran, während Proben entnommen werden. Zudem kann es aufgrund falscher (zu großer) Porengrößen zu physikalischer Kreuzkontamination zwischen den Kompartimenten kommen, was leicht vermieden werden kann, indem Inserts mit einer geeigneten Porengröße der Membran verwendet werden. Pilzüberwucherung oder umfangreiche Biofilmbildung können die poröse Membran bedecken. Dies wird vermieden, indem die anfängliche Inokulation auf einen OD600 = 0,1 begrenzt und die Inkubation nicht länger als 12 h durchgeführt wird. Außerdem können sich Mikroorganismen innerhalb der Geräte-Vertiefungen nicht homogen verteilen, sondern neigen dazu, sich in der Nähe der Membran zu sammeln oder anzulagern, was zu unerwarteten Verzerrungen bei der optischen Dichtemessung führen kann. Darüber hinaus können diese Systeme, da sie die beiden Populationen physisch voneinander trennen, keine Wechselwirkungen replizieren oder bewerten, die auf direktem, physischem Zell-zu-Zell-Kontakt beruhen. Beispielsweise die Reifung gemischtartiger Biofilme, mechanische Co-Aggregation oder Signalgebung durch an der Zellwand verankerte Adhäsine. Obwohl diese plattenbasierten Assays einen effektiven Endpunktschnappschuss der frühen Filamentationskinetik (nach 3 h) liefern, erfassen sie weder Langzeit-Wachstumsdynamiken noch räumliches Verhalten. Für Forschende, die eine kontinuierliche Echtzeitverfolgung über längere Zeiträume benötigen, könnten spezialisierte mikrofluidische Perfusionskanäle oder automatisierte Live-Cell-Imaging-Kammern eine besser geeignete Alternative darstellen.
Die zelluläre Geometrie ist grundlegend mit der metabolischen Effizienz verknüpft, wobei das Verhältnis von Oberfläche zu Volumen (SA/V) als entscheidender Faktor für die Nährstoffaufnahme und den intrazellulären Transport fungiert. Bei dimorphen und fadenförmigen Pilzen stellt der Übergang in eine langgestreckte Hyphen-Form eine strukturelle Anpassung dar, um ein optimiertes SA/V-Verhältnis aufrechtzuerhalten. Dies ermöglicht eine verteilte Nährstoffaufnahme entlang der verlängerten Filamentwand und gleichzeitig die Aufrechterhaltung stoffwechselaktiver Prozesse in Richtung der Hyphenspitze34,35,36,37. Unsere Studie zeigt jedoch, dass die morphometrische Skalierung nicht in gleichem Maße proportional über verschiedene Ploidiezustände und Konfigurationen des Paarungstyp-Lokus hinweg ist.
Die generierten morphometrischen Datensätze über Dieses Verfolgungsprotokoll zeigt klare strukturelle Skalierungstrends in Korrelation mit dem Ploidiegrad, wobei haploide Linien durchgängig niedrigere absolute Werte bei allen geometrischen Parametern aufweisen als die entsprechenden diploiden Stämme (Abbildung 5). Innerhalb des diploiden Hintergrunds das homozygote MATα/α Konfiguration zeigte im Vergleich eine verbesserte Filamentationskinetik (Länge und Volumen) MATa/a oder MATa/α Stämme unter diesen in vitro Bedingungen. Da eine verstärkte Filamentbildung häufig mit einer erhöhten Penetrationskapazität assoziiert ist, ist unklar, warum klinische Isolate von C. albicans werden vorwiegend als heterozygote Diploide isoliert (MATa/α). Es ist denkbar, dass der heterozygote Zustand innerhalb eines immunokompetenten Wirts einen breiteren Fitnessvorteil für eine langfristige kommensale Besiedlung bietet. Mit anderen Worten, die strukturellen Eigenschaften des MATa/α Morphotypen sind dahingehend optimiert, im Hinblick auf die Immunüberwachung des Wirts zu überleben. Zukünftige Untersuchungen sollten daher diese standardisierten Kokultursysteme nutzen, um die vergleichende Fitness unterschiedlicher mating-type-homozygoter Stämme unter variierenden selektiven Druckbedingungen systematisch zu bewerten.
Frühere Studien haben dokumentiert, dass die Vakuolenmorphismus, Fission-Fusionsdynamik und strukturelle Expansion eine wichtige Rolle bei der Regulation des inneren Volumens und des Turgordrucks wachsender filamentöser Pilze spielen. Beispielsweise sind bei dem Reisblast-Erreger Magnaporthe oryzae deutliche Übergänge zwischen schlanken vegetativen Hyphen und kugeligen invasiven Strukturen eng mit Veränderungen in der Vakuolenorganisation koordiniert38,39,40. Der vorliegende Protokollansatz überwachte jedoch nicht direkt die Vakuolendynamik während der Filamentierung von C. albicans; die Erfassung dieser inneren Organellenveränderungen in Bezug auf das gesamte strukturelle Volumen stellt jedoch einen aussagekräftigen Ansatz für zukünftige Untersuchungen dar. Zudem ist weiterführende Forschung erforderlich, um zu klären, warum bestimmte, von Pilzen stammende Sekretomkomponenten andere kinetische Muster der morphologischen Skalierung hervorrufen als vom Wirt stammende chemische Induktoren wie Serum.
Die in diesem Protokoll beschriebenen kontaktfreien Co-Kultur-Methoden können angepasst werden, um Interaktionen zwischen verschiedenen Arten und über Arten- oder Reichsgrenzen hinweg zu untersuchen, beispielsweise die Signalübertragungsdynamik zwischen opportunistischen Bakterienpopulationen und dimorphen Pilzen. Darüber hinaus kann diese quantitative Plattform aufgrund der Skalierbarkeit der 96-Well- und 24-Well-Formate für chemische Screens eingesetzt werden. Beispiele hierfür sind die Identifizierung von kleinen Molekülinhibitoren oder neuartigen antimykotischen Verbindungen, die gezielt durch das Sekretom angeregte Filamentierungswege stören, ohne die grundlegende Zellviabilität direkt zu beeinträchtigen.
Offenlegungen
Die Autoren geben an, keine konkurrierenden oder widersprüchlichen Interessen zu haben.
Danksagungen
Diese Arbeit wurde durch das DBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294) unterstützt, das RNP verliehen wurde. KBSS erhielt Unterstützung durch das Sonderforschungsstipendium der Ahmedabad University (AU/SRG/SAS/20-21/07_KS_03.25) und durch das SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27). Die in Abbildung 1 verwendeten Symbole wurden adaptiert von Servier Medical Art (https://smart.servier.com/), lizenziert unter CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), sowie von BioArt Source, NIAID, NIH.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 0.22 μm PES-Spritzenfilter | Millipore (Merck) | SLGPR33RS | |
| Agar-Agar | HiMedia | GRM666 | |
| Glukose | HiMedia | GRM016 | |
| Nunc 24-Well-Trägerplatte mit Zellkultur-Einlagen (0.4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96-Well-Multischale, zellkulturgeeignet, flacher Boden | Thermo Scientific | 130188 | |
| Proteose-Pepton | HiMedia | RM005 | |
| Uridin | Sigma | U6381 | |
| Hefeextrakt | HiMedia | RM027 | |
| Hefenitrogenbase, mit Ammoniumsulfat, ohne Aminosäuren | HiMedia | M878 |
Referenzen
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Nachdrucke und Genehmigungen
