Hier stellen wir ein Dissektionsprotokoll vor, das die Zirbeldrüse erhält, die häufig verloren geht, wenn das Gehirn aus der Schädelhöhle entfernt wird. Dieses Protokoll gewährleistet den Erhalt der Zirbeldrüse bei embryonalen und früh postnatalen Mausgehirnpräparationen für nachgeschaltete Anwendungen, einschließlich Immunhistochemie, in situ-Hybridisierung und räumlicher Transkriptomik.
Methodenartikel
Präparation und Erhalt der Zirbeldrüse in perinatalen Mäusehirnschnitten
116 Aufrufe
⸱
11. September 2026
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Zirbeldrüse, eine neuroendokrine Struktur, die Melatonin sezerniert, entsteht aus einem Anlagegebiet an der dorsalen Mittellinie des embryonalen Vorderhirns. Am embryonalen Tag (E) 14,5 der Maus ist ein zirbelförmiges Ausstülpung sichtbar, das sich aus dem Dach des Zwischenhirns zwischen den paarigen Telencephalonvesikeln herausbildet. Dieses Ausstülpung steht in engem Kontakt mit darüberliegendem Knorpel-, Meningen- und Gefäßgewebe. Es geht leicht verloren, wenn die Schädelkalotte geöffnet wird, um das Gehirn in späten embryonalen bzw. frühen postnatalen Stadien zu entnehmen. Trotz ihrer wichtigen neuroendokrinen Funktion ist die frühe Entwicklung der Zirbeldrüse sowie die Signalmechanismen, die diesen Prozess regulieren, noch wenig verstanden, was teilweise auf die Schwierigkeit zurückzuführen ist, diese Struktur während der embryonalen Phasen der Mausgehirnentwicklung intakt zu erhalten.
Dieser Artikel stellt ein innovatives Dissektionsverfahren vor, das die Zirbeldrüse erhält, während ihre strukturelle Integrität sowie ihre Verbindung zum Diencephalondach während der Gehirnisolierung von embryonalen Stadien bis zum postnatalen Tag (P) 7 bewahrt wird. Das Verfahren wird an einem Mausgehirn vom Embryonalstadium E18.5 demonstriert und eignet sich daher für nachgeschaltete Anwendungen, die die Erhaltung der Gewebearchitektur erfordern, einschließlich in situ-Hybridisierung, Immunhistochemie und räumlicher Transkriptomik. Das Protokoll kann auch zur Isolierung der sich entwickelnden Zirbeldrüse verwendet werden, wodurch die zirbeldrüsenspezifische Darstellung in transkriptomischen und proteomischen Analysen verbessert wird, was aufgrund ihrer geringen Größe andernfalls herausfordernd wäre.
Einleitung
Die Zirbeldrüse ist eine kleine neuroendokrine Struktur, die sich an der dorsalen Mittellinie des Wirbeltiergehirns befindet und durch die rhythmische Sekretion von Melatonin eine zentrale Rolle bei der Regulation der zirkadianen Physiologie spielt1,2. Während der embryonalen Entwicklung der Säugetiere entsteht die Zirbeldrüse aus der dorsalen Mittellinie des sich entwickelnden Vorderhirns. Bei Mäusen beginnt die Entwicklung der Zirbeldrüse, wenn sich ein spezialisierter Bereich des dorsalen diencephalen Neuroepithels zum Zirbelsack/Zirbelfortsatz formt, der sich anschließend ausstülpt und am embryonalen Tag (E) 14,5 das Zirbelfortsatzbläschen bildet3,4,5. Dieses Fortsatzbläschen ist an der Dachregion des Diencephalons befestigt und liegt zwischen den paarigen Telencephalonvesikeln. Im weiteren Verlauf der Entwicklung verbindet sich dieses Fortsatzbläschen eng mit den darüberliegenden Strukturen an der dorsalen Mittellinie des Gehirns, insbesondere mit dem oberen sagittalen Sinus (SSS) und dem Quersinus (TS), venösen Kanälen, die entlang der dorsalen Oberfläche des Vorderhirns verlaufen6. Die sich entwickelnde Zirbeldrüse liegt unmittelbar unterhalb der Kreuzung des SSS und des TS, und ihre zarte Verbindung zum dorsalen Diencephalon ist besonders anfällig für Schäden, wenn die überlagernden vaskulär-meningealen Strukturen entfernt werden, um das Gehirn aus der Schädelhöhle zu entnehmen7. Dadurch ist die Zirbeldrüse besonders verletzungsanfällig, da sie beim Öffnen der Schädelhöhle zur Entnahme des Gehirns abgerissen werden kann. Infolgedessen geht die Zirbeldrüse bei routinemäßigen Präparationen häufig verloren, was die Analyse ihrer Struktur und molekularen Zusammensetzung in intakten Präparaten einschränkt.
Hier beschreiben wir eine Schritt-für-Schritt-Anleitung zur Dissektion des Mausgehirns unter Erhaltung der Zirbeldrüse und ihrer Verbindung mit dem Dach des Diencephalons. Die Methode ist anwendbar auf embryonale Stadien ab E16.5 bis hin zu frühen postnatalen Stadien (P7) und eignet sich für Untersuchungen der Entwicklung der Zirbeldrüse mittels in situ-Hybridisierung, Immunhistochemie und räumlicher Transkriptomik. Als Beispiel für nachgeschaltete Anwendungen werden die in situ-Hybridisierung und Immunhistochemie für den zirbeldrüsenangereicherten Marker CRX vorgestellt.
Die entscheidende Neuerung dieser Methode besteht darin, dass die Belastung mittiger Strukturen minimiert wird, indem vorsichtig physische Verbindungen gelöst werden, die andernfalls die Zirbeldrüse abscheren würden, wenn das Gehirn aus der Schädelhöhle entfernt wird. Dies stellt eine Verbesserung gegenüber der Standardprozedur dar.
Diese Dissektionsmethode ist auf Stadien bis P7 begrenzt, da die fortschreitende Ossifikation des Schädelgewölbes während der frühen postnatalen Entwicklung die Steifheit des Schädels erhöht und die Verbindung mit meningealen und vaskulären Strukturen verstärkt. Während mehrere Studien Dissektionsverfahren der Zirbeldrüse bei erwachsenen Nagetieren beschrieben haben8, haben nur sehr wenige die Erhaltung der Zirbeldrüse während embryonaler und früher postnataler Stadien zum Gegenstand, in denen die Drüse besonders empfindlich und anfällig für Schäden während der Gehirnisolierung ist.
Protokoll
Alle Verfahren wurden genehmigt und in Übereinstimmung mit dem Institutionellen Tierversuchsausschuss des Tata Institute of Fundamental Research durchgeführt.
1. Materialvorbereitung
- Stellen Sie sicher, dass alle erforderlichen Instrumente für die Mikrodissektion (siehe Tabelle der Materialien) vor dem Eingriff vorbereitet sind. Sterilisieren Sie alle Instrumente mit 70 %igem Ethanol. Zum Sammeln von Präparationen für nachgeschaltete Anwendungen wie räumliche Transkriptomik/In-situ-Hybridisierung wischen Sie die Instrumente mit einer RNase-Entkontaminationslösung ab.
- Reinigen Sie den Objekttisch des Dissektionsmikroskops mit RNase-Entkontaminationslösung und halten Sie eine Flasche eiskaltes 1× PBS in der Nähe des Dissektionstischs bereit.
- Bereiten Sie vor Beginn des Verfahrens folgende Instrumente und Plastikwaren vor:
- Für die Vorbereitung des Tieres halten Sie Folgendes bereit: 2 Paar stumpfe Pinzetten, 1 Paar chirurgische Scheren, 2 Petrischalen (10 cm), mehrere Petrischalen (6 cm; nach Bedarf, eine für jeden Kopf).
- Für die Isolierung des Gehirns halten Sie Folgendes bereit: 1 Paar #5-Pinzetten, 1 Paar #55-Pinzetten, 1 Paar Mikrodissektions-Scheren sowie Sammelröhrchen/Schalen, die für die nachgeschaltete Anwendung geeignet sind.
- HINWEIS: Falls die nachgeschaltete Anwendung eine In-situ-Hybridisierung oder räumliche Transkriptomik beinhaltet, reinigen Sie die Dissektionsinstrumente vor der Verwendung mit RNase-Entkontaminationslösung.
2. Tierpräparation
- Befolgen Sie die Schritte (2.1.1–2.1.6) für Tiere im Alter von E14,5 bis P0
- Töten Sie die trächtige Stammutter gemäß den Richtlinien des Instituts für Tierethik. Im gezeigten Beispiel wurde die Stammutter durch Halswirbelbruch getötet.
- Führen Sie einen medianen Schnitt in der Bauchhöhle der trächtigen Stammutter durch, um die Gebärmutter freizulegen. Ziehen Sie mit stumpfen Pinzetten vorsichtig die Gebärmutterhörner heraus und legen Sie sie in eine sterile 10-cm-Schale, die eiskalte 1× PBS enthält.
- Isolieren Sie sorgfältig einzelne Föten, indem Sie sie von der umgebenden Fruchtblase und Plazenta trennen.
- Überführen Sie die Föten in eine frische 10-cm-Petri-Schale mit eiskalter 1× PBS und lagern Sie sie auf Eis, bis jeder einzelne zur Gehirnisolierung verwendet wird. Überführen Sie einen einzelnen Feten in eine 6-cm-Petri-Schale mit eiskalter PBS.
- Bei postnatalen Stadien bis P7 töten Sie das Jungtier gemäß den Richtlinien des Instituts für Tierethik. Fahren Sie anschließend ab Schritt 2.1.6 fort.
- Trennen Sie mithilfe einer chirurgischen Schere den Kopf vom Körper, sodass das Kleinhirn im Kopf verbleibt, um das Großhirn vor unbeabsichtigten Schäden zu schützen.
- Spülen Sie den Kopf mit kalter PBS, um Blut zu entfernen. Überführen Sie ihn in eine frische 6-cm-Petri-Schale mit eiskalter 1× PBS. Halten Sie den Kopf untergetaucht in der PBS, damit Blut und Ablagerungen während der anschließenden Präparationsschritte abgespült werden können.
3. Dissektionsverfahren zur Isolierung des Gehirns mit erhaltener Zirbeldrüse
HINWEIS: Alle unten aufgeführten Schritte sind unter einem Stereomikroskop durchzuführen. Die Vergrößerung ist auf mindestens 2× (oder entsprechend erforderlich) einzustellen, um das Gehirn und die umgebenden Strukturen während der gesamten Dissektion deutlich sichtbar zu machen. Der gesamte Dissektionsvorgang sollte in eiskaltem PBS durchgeführt werden, um den Abbau von RNA und Proteinen zu minimieren. Für die Schritte 3.1–3.10 verwenden Sie die nicht-dominante Hand, um den Kopf festzuhalten und während des gesamten Verfahrens gemäß den Anweisungen in Schritt 3.1 zu stabilisieren. Die Schritte 3.2–3.9 sind durchzuführen, während die nicht-dominante Hand den Kopf stabilisiert und die dominante Hand für die feinmotorischen Tätigkeiten verwendet wird; beginnen Sie mit einer #5-Pinzette und wechseln Sie dann zu einer #55-Pinzette oder Mikrodissektionsschere, wie für jeden Schritt angegeben.
- Verwenden Sie eine Pinzette Größe 5 in der nicht-dominanten Hand. Führen Sie die beiden Zinken mit einer kräftigen, nach unten gerichteten Bewegung in die Augenhöhlen ein. Halten Sie den nach unten gerichteten Druck aufrecht, um das Gehirn bis zum Abschluss von Schritt 3.9 an den Boden der Petrischale zu fixieren.
HINWEIS: Das Gehirn liegt oberhalb der Augenhöhlen und wird nicht beeinträchtigt, wenn die Pinzette in die Augenhöhlen eingeführt wird. Durch konstanten, nach unten gerichteten Druck bleibt das Gehirn während der gesamten Dissektion stabilisiert. - Mit der dominanten Hand die Haut, die den Kopf bedeckt, mit einer #5-Pinzette abklemmen und entfernen.
HINWEIS: In diesem Stadium ist das glatte Chondrocranium sichtbar, das das Gehirn bedeckt. - Entfernen Sie den Teil des Chondrokraniums, der das Mittelhirn-Rückenmark überlagert, wie folgt:
- Verwenden Sie die Pinzette Nr. 5, um zwei durchdringende Inzisionen im Chondrokranium auf beiden Seiten des Mittelhirns durchzuführen, genau dort, wo es auf das Telencephalon trifft.
- Schieben Sie eine Zange des #5-Pinzetts tangential unter das Chondrokranium entlang der imaginären Tangentenlinie, die das Telencephalon vom Mittelhirn trennt. Greifen Sie fest zu und reißen Sie das Chondrokranium auf.
- Setzen Sie die Entfernung des Chondrokraniums fort, sodass das Mittelhirn und das Nachhirn freigelegt werden.
- Wechseln Sie zu Pinzette #55. Führen Sie eine Zange gerade unterhalb des Randes des kaudalen Chondrokraniums ein, das über dem Telencephalon liegt. Lösen Sie das Chondrokranium vorsichtig, indem Sie alle Verbindungen zu Gefäß- und Meningealgewebe trennen.
- Mit einer Mikrodissektions-Schere entlang der dorsalen telencephalen Mittellinie in Richtung Riechkolben schneiden. Mit einer geschlossenen Pinzette Nr. 55 vorsichtig alle Verbindungen zwischen Chondrokranium und Gehirn lösen. Die beiden Hälften des Chondrokraniums, die die telencephalen Hemisphären bedecken, mit der Pinzette Nr. 5 voneinander trennen.
HINWEIS: Zu diesem Zeitpunkt erscheint die SSS als dunkelrote Vene entlang des oberen Randes des Chondrokraniums im Gehirn, und die TS verläuft orthogonal zur SSS. - Die Zirbeldrüse liegt direkt unterhalb des SSS. Führen Sie einen Schnitt am kaudalen Ende des SSS mit einer Mikrodissektions-Schere durch.
- Entfernen Sie mithilfe einer Pinzette Größe #55 den dorsalen Teil des Chondrokraniums vollständig von jeder Seite, um die Zirbeldrüse, den Sinus sagittalis superior (SSS) und den Tentoriumsino (TS) besser freizulegen.
- Führen Sie zwei Schnitte im TS auf beiden Seiten der Zirbeldrüse mit einer mikrochirurgischen Schere durch. Lösen Sie mit einer #55-Pinzette die seitlichen Anhänge des TS.
- Mit einer geschlossenen Pinzette Nr. 5 lösen Sie vorsichtig den rostralen Teil des Gehirns vom ventralen Schädelkasten. Führen Sie die geschlossene Pinzette unter die ventrale Seite des Gehirns und lösen Sie es vollständig.
- Bewahren Sie das Gehirn mit intakter Zirbeldrüse gemäß den Anforderungen weiterer nachgeschalteter Anwendungen auf.
4. Kritische Schritte im Protokoll
HINWEIS: Der Erfolg dieses Dissektionsprotokolls hängt von der sorgfältigen Handhabung der vaskulären Anhänge ab, die die Zirbeldrüse umgeben. Die folgenden Punkte sind entscheidend, um die Zirbeldrüse während des gesamten Dissektionsverfahrens intakt zu halten:
- Stabilisieren Sie den Kopf, indem Sie die Zinken einer #5-Pinzette in beide Augenhöhlen einführen und während der Schritte 3.1–3.9 einen festen Druck nach unten aufrechterhalten. Dies gewährleistet eine stabile Abstützung und vermeidet gleichzeitig direkten Druck auf das Gehirn.
- Vermeiden Sie beim Entfernen des Chondrocraniums (Schritt 3.3) übermäßiges Ziehen oder Schälen, da dies zur Ablösung der Zirbeldrüse vom dorsalen Diencephalon führen kann.
- Verwenden Sie beim Freilegen von meningealen und vaskulären Verbindungen (Schritt 3.4) und beim Öffnen des dorsalen telencephalen Chondrocraniums (Schritt 3.5) ausschließlich die Spitzen der #55-Pinzette. Eine tiefe Eindringung der Pinzette kann die Zirbeldrüse beschädigen, die direkt unterhalb des kaudalen Telencephalon-Daches liegt.
- Führen Sie den vollständigen Querschnitt des oberen sagittalen Sinus (Schritt 3.6) und den beidseitigen Querschnitt des transversen Sinus (Schritt 3.8) vor der Entnahme des Gehirns durch. Diese Schnitte verringern die Spannung im dorsalen venösen Netzwerk und verhindern eine Scherbelastung der Zirbeldrüse während der Gehirnentnahme.
- Lösen Sie im Schritt 3.9 das Gehirn vorsichtig mit geschlossener Pinzette, ohne die dorsale Mittellinie zu stören. Das Gehirn sollte sich frei von der Schädelhöhle lösen, sobald alle meningealen und vaskulären Verbindungen gelöst wurden.
Ergebnisse
Dieses Präparationsprotokoll ermöglicht die zuverlässige Isolierung von embryonalen und früh postnatalen Mausgehirnen von E16,5 bis P7, wobei die Zirbeldrüse in ihrer natürlichen anatomischen Position erhalten bleibt (Abbildung 1).
Das schrittweise Entfernen des Chondrokraniums in Kombination mit einer sorgfältigen Freilegung der meningealen und vaskulären Verbindungen verhindert unbeabsichtigte Scherkräfte auf die Zirbeldrüse. Zudem bewirkt das gezielte Durchtrennen des oberen sagittalen Sinus (SSS) an seinem rostralen Ende zusammen mit beidseitigen Schnitten im Quersinus (TS) eine wirksame Entlastung der dorsalen Gefäßnetzwerke. Dadurch wird die Zirbeldrüse während der anschließenden Gehirnentnahme vor dem Abreißen geschützt. Folglich bleibt die Zirbeldrüse nach der Isolierung des Gehirns aus der Schädelkalotte intakt und am diencephalen Mittellinienbereich angeheftet (Abbildung 2A).
Um die Integrität der konservierten Zirbeldrüse und ihre Eignung für nachgeschaltete Anwendungen zu überprüfen, wurde eine in situ-Hybridisierung für das Zirbeldrüsen-Marker-Gen Crx sowie eine Immunhistochemie für das CRX-Protein durchgeführt9,10 (Abbildung 2B–D). Dies bestätigte die Identität und strukturelle Integrität der Zirbeldrüse.
Das Dissektionsprotokoll wurde über mehrere Entwicklungsstadien hinweg validiert, und die Zirbeldrüse blieb in der überwiegenden Mehrheit der Versuche intakt: E16,5 (N = 10), E18,5 (N = 15), P0 (N = 10) und P7 (N = 6). Dies zeigt, dass die Methode robust und hochgradig reproduzierbar ist, um die Zirbeldrüse während der embryonalen und frühen postnatalen Gehirnisolierung zu erhalten (Abbildung 2E).
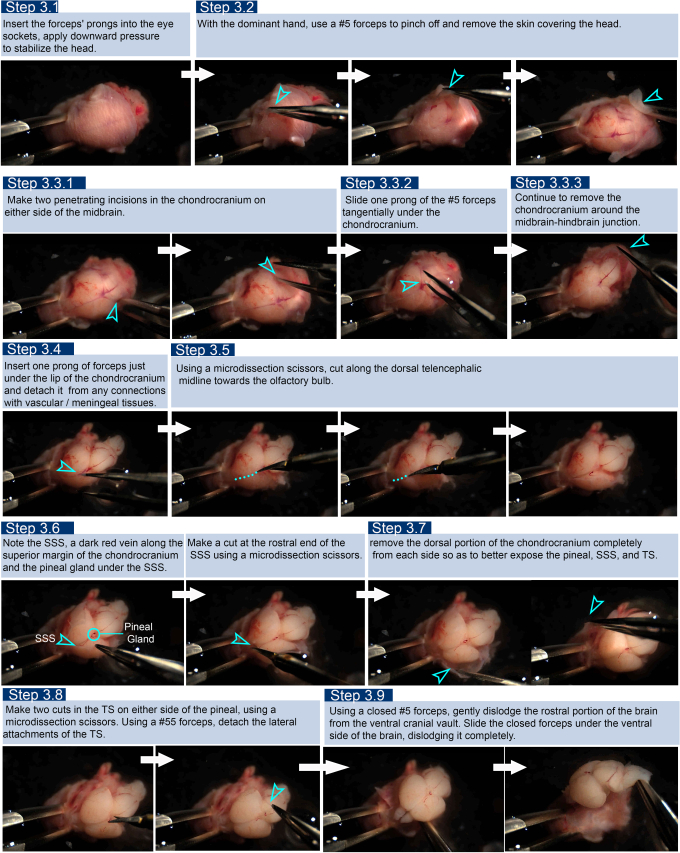
Abbildung 1: Standbilder aus dem Video, die das schrittweise Verfahren zur Isolierung eines E18,5-Mausgehirns unter Erhaltung der Zirbeldrüse zeigen. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
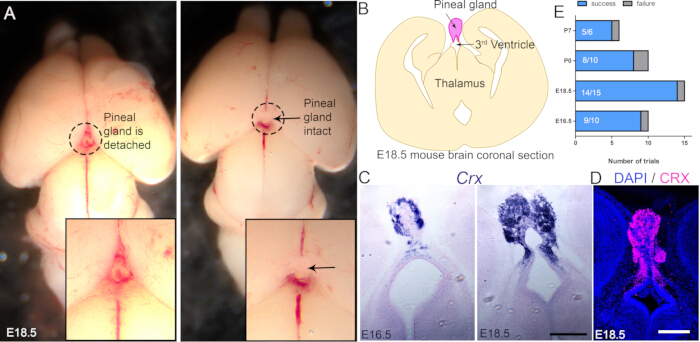
Abbildung 2: Repräsentative Ergebnisse. (A) Repräsentative Beispiele zweier E18.5-Mausgehirne, bei denen die Zirbeldrüse während des Standard-Präparationsverfahrens abgelöst wurde (links), im Vergleich zu einem Gehirn, bei dem die Zirbeldrüse mit der beschriebenen Methode intakt bleibt (rechts). (B) Schematische Darstellung eines E18.5-Querschnitts, wobei die Zirbeldrüse in Rosa hervorgehoben ist. (C) In-situ-Hybridisierung für Crx zu den Zeitpunkten E16.5 und E18.5, die eine zirbeldrüsenspezifische Expression zeigt. (D) Immunfärbung für CRX bei E18.5. (E) Balkendiagramm, das die Erfolgsraten (Gehirn isoliert mit intakter Zirbeldrüse) und Misserfolgsraten (Zirbeldrüse beschädigt oder verloren) des Protokolls in embryonalen (E16.5 und E18.5) und postnatalen (P0 und P7) Entwicklungsstadien darstellt. Maßstabsbalken: 100 µm. N = 6 biologische Wiederholungen für A, C und D. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Diskussion
Standardisierte Methoden zur Dissektion der Zirbeldrüse wurden für das menschliche Fetal- beziehungsweise Säuglingsgehirn entwickelt, um Rechtsmedizinern bei der Aufklärung der Ursache des plötzlichen Kindstods zu helfen11. Frühere Protokolle beschrieben die Entfernung der Zirbeldrüse zusammen mit der Oberflächenvaskularisation, den Hirnhäuten und dem Plexus choroideus12; Methoden, mit denen die Zirbeldrüse zuverlässig im Zusammenhang mit dem Diencephalondach während früher Entwicklungsstadien bei Mäusen oder anderen Nagetieren intakt erhalten werden kann, wurden jedoch bisher nicht beschrieben.
Ein Großteil der klassischen anatomischen und methodischen Literatur zur Pinealectomie und Analyse basiert auf Rattenmodellen13, bei denen die Drüse größer und leichter zu identifizieren ist. Im Gegensatz dazu ist die Zirbeldrüse der Maus deutlich kleiner und zerbrechlicher, wodurch sie bei routinemäßigen Gehirnentnahmeverfahren besonders anfällig für Verlust oder Beschädigung ist. Einige Studien haben versucht, dieses Problem zu lösen, indem das Gehirn im gesamten Kopf fixiert wurde. Dies führt jedoch zu zusätzlichen technischen Einschränkungen bei der Vorbereitung des Gewebes zum Schneiden. Beispielsweise kann während der Kryoschutzbehandlung in 30%iger Saccharose nach der Fixierung in 4% Paraformaldehyd der Schädelknochen Druck auf das darunterliegende Hirngewebe ausüben, was zu einer Kompression oder Verzerrung der dorsalen Vorderhirnstrukturen führen kann. Solche Artefakte können die Gehirnmorphologie beeinträchtigen und Analysen erschweren, die auf einer genauen anatomischen Organisation beruhen. Außerdem ist die Fixierung des Gewebes möglicherweise nicht für alle Anwendungen geeignet. Daher werden Methoden benötigt, die die Zirbeldrüse erhalten und ihre Verbindung zum Diencephalondach bewahren, ohne die Integrität des gesamten Gehirns zu beeinträchtigen, um entwicklungsgenetische und molekulare Untersuchungen der Zirbeldrüse bei der Maus zu ermöglichen.
Die zuverlässige Erhaltung der Zirbeldrüse in intakten Gehirnpräparaten ist für mehrere experimentelle Anwendungen wichtig. Histologische und molekulare Ansätze wie Immunhistochemie und in situ-Hybridisierung erfordern die Erhaltung der Geweearchitektur, um die Genexpression und zelluläre Organisation innerhalb der Drüse zu untersuchen. In jüngerer Zeit beruhen neuartige Technologien wie die räumliche Transkriptomik und andere räumlich aufgelöste molekulare Profilierungsmethoden ebenfalls auf intakter Gewebemorphologie, um die Genexpression in spezifischen anatomischen Kontexten abzubilden. Bisher wurde noch keine räumliche transkriptomische Karte der embryonalen Mauszirbeldrüse veröffentlicht. Dies könnte teilweise die technische Schwierigkeit widerspiegeln, die intakte Zirbeldrüse während einer konventionellen Gehirndissektion zu erhalten. Daher werden Methoden, die die Integrität der Zirbeldrüse zuverlässig bewahren, voraussichtlich die Anwendung neuartiger räumlicher transkriptomischer Ansätze in der Zirbeldrüsenbiologie erleichtern. Außerdem ermöglicht die Isolierung des Gehirns mit erhaltener Zirbeldrüse einen nachgeschalteten Zusatzschritt, bei dem die Zirbeldrüse gezielt gewonnen werden kann. Durch das Sammeln solcher Präparationen lässt sich die Repräsentanz zirbeldrüsenspezifischer Anteile in transkriptomischen und proteomischen Bulk-Analysen erheblich verbessern.
Es ist erforderlich, den Kopf mit einer #5-Pinzette in der nicht-dominanten Hand gut zu stabilisieren. Diese Stabilisierung muss während des gesamten Dissektionsvorgangs aufrechterhalten werden; daher muss die dominante Hand den Wechsel der Instrumente nach Bedarf vornehmen. Passe die Beleuchtung an, um die Verbindungen der Zirbeldrüse mit dem darüberliegenden vaskulomeningealen Gewebe, das entfernt werden muss, besser erkennen zu können.
Offenlegungen
Alle Autoren erklären, dass keine Wettbewerbsinteressen bestehen.
Danksagungen
Wir danken Dr. Shital Suryavanshi und dem Personal des Tierhaltungsbetriebs des Tata Institute of Fundamental Research für ihre hervorragende Unterstützung. Wir danken Dr. Sundar Naganathan dafür, dass er großzügig die Nutzung des Olympus MVX10 Stereomakro-Zoommikroskops in seinem Labor für die Aufnahme des Verfahrensvideos ermöglicht hat. Diese Arbeit wurde durch eine Förderung der Department of Atomic Energy (DAE), Regierung von Indien, Projektidentifikationsnummer RTI4003 und RTI4015 (ST); ICMR-DHR SUG-Förderung, GAP00303, ANRF PMECRG-Förderung GAP00313 (AP) finanziert.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Hellfeldmikroskop | Olympus | IX73 | Jedes Hellfeldmikroskop mit Farbkamera ist geeignet. |
| Konfokalmikroskop | Olympus | FV3000 | Jedes Konfokalmikroskop oder Epifluoreszenzmikroskop ist je nach erforderlicher Auflösung geeignet |
| CRX-Antikörper | Invitrogen | PA5-32182 | Immunfärbeprotokoll beschrieben in Parichha et al.9. |
| CRX-Sonde | Individuell hergestellt | Individuell hergestellt | In-situ-Hybridisierungsprotokoll Parichha et al.10. |
| Feine Pinzette # 5 | F.S.T | 11251-23 | Kann durch ähnliche Werkzeuge eines beliebigen Herstellers ersetzt werden. |
| Feine Pinzette # 55 | F.S.T | 11255-20 | Kann durch ähnliche Werkzeuge eines beliebigen Herstellers ersetzt werden. |
| PBS, pH 7,4 | Gibco | 10010023 | Kann durch ähnliche Produkte eines beliebigen Herstellers ersetzt werden. |
| Petri-Schale | Corning | CLS351029 | Kann durch ähnliche Artikel eines beliebigen Unternehmens ersetzt werden. |
| RNaseZap | Invitrogen | AM9782 | Die RNaseZap-RNase-Deskontaminationslösung ist eine Oberflächendeskontaminationslösung, die RNasen beim Kontakt zerstört |
| Federschere (Mikrodissektionsschere) | F.S.T | 15020-15 | Kann durch ähnliche Werkzeuge eines beliebigen Herstellers ersetzt werden. |
| Stereo-Zoom-Mikroskop | Nikon | SMZ745 | Jedes Dissektionsmikroskop ist geeignet |
Referenzen
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
Nachdrucke und Genehmigungen
