Diese Übersichtsarbeit fasst Erkenntnisse zur mitochondriellen Qualitätskontrolle (Biogenese, Dynamik und Mitophagie) über die verschiedenen Stadien der Spermatogenese zusammen, verknüpft metabolische Veränderungen und strukturelle Umbauprozesse mit männlicher Unfruchtbarkeit und identifiziert methodische Lücken, um zukünftige Forschungsarbeiten zu leiten.
Übersichtsartikel
Mitochondriale Qualitätskontrolle: Ein Gatekeeper der Spermatogenese
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die männliche Unfruchtbarkeit nimmt weltweit zu. Die Spermatogenese ist energetisch anspruchsvoll und eng mit der Kontrolle der mitochondrialen Qualität (MQC) verknüpft – einschließlich Biogenese, Fusion-Fission-Dynamik und Mitophagie. Hier fassen wir aktuelle Befunde über verschiedene Entwicklungsstadien der Keimzellen zusammen und beleuchten stadienspezifische Übergänge von der durch Glykolyse unterstützten ATP-Produktion hin zu einem von oxidativer Phosphorylierung (OXPHOS) dominierten Stoffwechsel sowie die Umgestaltung der mitochondrialen Architektur zur Mittelstückhülle. Wir geben einen Überblick über genetische und funktionelle Daten, die OPA1/MFN1-2 bei der Fusion der inneren/äußeren Membran, DRP1/FIS1/MFF bei der Fission und der Organisation der Hülle, sowie die Rolle der PINK1-Parkin-abhängigen und -unabhängigen Mitophagie bei der mitochondrialen Qualitätskontrolle belegen, und weisen gleichzeitig darauf hin, dass die Entfernung des Zytoplasmas und die Aufrechterhaltung des Akrosoms während der Spermiogenese möglicherweise allgemeine Autophagieprozesse und nicht spezifisch die Mitophagie involvieren. Mitochondriale Dysfunktion – übermäßige reaktive Sauerstoffspezies (ROS), Zusammenbruch des mitochondrialen Membranpotentials (MMP), gestörte Dynamik oder defekte Mitophagie – beeinträchtigt die Spermatogenese und die Spermienfunktion. Wir identifizieren zudem methodische Lücken, die die Übertragung der Ergebnisse begrenzen, insbesondere das Fehlen standardisierter Phänotypisierungen und genetischer Befunde beim Menschen. Die Klärung der kausalen Rolle und der therapeutischen Ansprechbarkeit der MQC könnte zukünftige diagnostische oder therapeutische Forschung zur männlichen Unfruchtbarkeit unterstützen.
Einleitung
Die Spermienqualität nimmt weltweit ab, und die Inzidenz männlicher Unfruchtbarkeit aufgrund abnormaler Spermienqualität steigt1. Eine aktuelle Metaanalyse zeigte, dass die Spermienkonzentrationen bei Männern aus Nordamerika, Europa, Australien und Neuseeland zwischen 1973 und 2011 um 50–60 % gesunken sind2, wobei dieser Rückgang sich seit 2000 beschleunigt hat3. Der beschleunigte Rückgang der Spermienqualität wurde weltweit berichtet2,3,4,5,6. Die Gründe für diesen Rückgang erfordern weitere Untersuchungen sowie gezielte Maßnahmen zum Schutz der männlichen Fruchtbarkeit.
Die Spermatogenese findet in den seminiferen Tubuli der Hoden statt. Es handelt sich um einen wellenförmigen Prozess, bei dem entlang der Längsachse der seminiferen Tubuli spezifische Kombinationen von Keimzellen auftreten, wodurch sich Spermatogonien-Stammzellen (SSCs) letztendlich vermehren und zu Spermatozoen differenzieren7. Die Spermatogenese bei Säugetieren ist einer der komplexesten und längsten Differenzierungsprozesse in der Biologie. Beim Menschen umfasst ein vollständiger spermatogener Zyklus 64–74 Tage, wobei jeder Zyklus des seminiferen Epithels 16 Tage dauert. Dieser komplexe Prozess beinhaltet erhebliche Veränderungen in Form, Anzahl und Verteilung der Mitochondrien8.
Die mitochondriale Qualitätskontrolle (MQC) – die koordinierten Prozesse der mitochondrialen Biogenese, Fusion, Fission und selektiven Mitophagie – erhält die Organellenintegrität unter wechselnden bioenergetischen Anforderungen8,9. Im Hoden ist die MQC stadienspezifisch und unterstützt den Übergang von proliferierenden Spermatogonien zur Meiose und Spermiogenese, was in der Bildung einer dicht gepackten mitochondrialen Hülle im Mittelstück des Spermiums gipfelt9. Abbildung 1 zeigt den Mechanismus der MQC während der Spermatogenese. Die Störung von MQC-Komponenten kann zu einer fehlerhaften Spermatogenese und verminderten Fertilität bei Modellorganismen und Menschen führen. Dieser Übersichtsartikel fasst aktuelle mechanistische Erkenntnisse zusammen und skizziert translationale Anwendungsmöglichkeiten.
Überprüfung und Perspektive
Spermatogenese und mitochondriale Energiestoffwechsel
Die Spermatogenese umfasst drei aufeinanderfolgende Stadien: die mitotische Proliferation, die Meiose und die Spermiogenese, bei denen die Proliferation der Spermatogonien, deren Differenzierung zu Spermatocyten, die meiotische Teilung, die Reifung der Spermatiden sowie die Spermiation in das tubuläre Lumen stattfinden. Spermatogonien werden in ruhende und erneuernde Typen unterteilt. Einige Spermatogonien verbleiben als Stammzellen, während andere durch Differenzierung an der Spermatogenese teilnehmen. Zusätzlich unterliegen einige von ihnen einem programmierten Zelltod, beispielsweise der Apoptose. Diploide primäre Spermatocyten durchlaufen zwei Runden der meiotischen Teilung, um sich in haploide Spermatiden zu differenzieren. Während der Spermiogenese teilen sich die runden Spermatiden nicht mehr und wandeln sich in stark verlängerte Spermatiden um, die schließlich zu reifen Spermatozoen heranreifen.
Die Spermatogenese erfordert koordinierte Wechselwirkungen zwischen Keimzellen (einschließlich Spermatogonien, Spermatocyten, Spermatiden und Spermatozoen) und unterstützenden Sertoli-Zellen sowie die Aufrechterhaltung der Integrität der Blut-Hoden-Schranke10,11. Die aus engen Zellverbindungen zwischen benachbarten Sertoli-Zellen gebildete Blut-Hoden-Schranke unterteilt das Keim epithel in eine basale und eine adluminale Kompartiment, wodurch ein spezialisierter Mikromilieu entsteht und aufrechterhalten wird, der für die Entwicklung der Keimzellen unerlässlich ist11,12. Folglich findet die Spermatogenese – von den spermatogonialen Stammzellen bis zu den reifen Spermatozoen – innerhalb dieses einzigartigen Hoden-Mikromilieus statt. Der Prozess der Spermienproduktion ist stark von der mitochondrialen Funktion abhängig13. Als Zentrum des Energiestoffwechsels in eukaryotischen Zellen gelten Mitochondrien als essentiell für die Spermienproduktion. Die Bildung von Spermien hängt in hohem Maße von der Energieversorgung und den Signalübertragungsfunktionen der Mitochondrien ab. In sich entwickelnden Keimzellen liefern Mitochondrien nicht nur essentielle ATP-Mengen für die Spermatogenese, sondern beeinflussen den Prozess auch durch Beteiligung an der intrazellulären Signalübertragung, der Regulation des Zellzyklus und dem programmierten Zelltod13. In Leydig-Zellen spielen Mitochondrien eine entscheidende Rolle bei der Produktion von Steroidhormonen, und die mitochondriale ATP-Synthese ist für die Testosteronproduktion in diesen interstitiellen Hodenzellen erforderlich14. Darüber hinaus steht die mitochondriale DNA, da es sich um das einzige Organell mit eigenständiger DNA handelt, in engem Zusammenhang mit der Spermienqualität. Daher ist das Verständnis des mitochondrialen Zustands und seiner regulatorischen Mechanismen wichtig, um den Prozess der Spermatogenese aufzuklären und die männliche Fertilität zu erhalten.
Der Energiestoffwechsel ist entscheidend für die Spermatogenese, die eine erhebliche Menge an ATP erfordert. Die beiden primären Stoffwechselwege zur ATP-Produktion sind die mitochondriale oxidative Phosphorylierung (OXPHOS) und die Glykolyse. Die ATP-Versorgung ist abhängig vom Entwicklungsstadium; während die OXPHOS während der Meiose und der Mittelstückbildung an Bedeutung gewinnt, leistet die Glykolyse insbesondere in reifen Spermatozoen einen erheblichen Beitrag zur ATP-Produktion. Außerdem unterstützt die Glykolyse die Spermienreifung, Motilität und den Durchtritt durch den weiblichen Fortpflanzungstrakt, indem sie eine flexible und schnelle Energieversorgung bereitstellt.
In Spermatogonien und frühen Spermatocyten sind die Mitochondrien jedoch relativ klein und weisen eine begrenzte OXPHOS-Aktivität auf. Im Verlauf der fortgeschrittenen Stadien der Spermatogenese, wie Spermatocyten, Spermatiden und Spermatozoen, durchlaufen die Mitochondrien eine Umgestaltung, wobei ihre OXPHOS-Aktivität räumlich stärker konzentriert und effizienter wird. Zudem variieren aufgrund der Blut-Hoden-Schranke die verfügbaren Substrate zwischen den einzelnen Stadien. Spermatogonien, die im basalen Kompartiment des Keimepithels liegen, können zirkulierende Glukose aufnehmen und Energie über die Glykolyse gewinnen. Im Gegensatz dazu sind Spermatocyten und Spermatiden im adluminalen Kompartiment durch die Blut-Hoden-Schranke vom Blut und Interstitium abgetrennt und sind darauf angewiesen, dass Sertoli-Zellen Glukose mittels Glukosetransportern (GLUTs) aufnehmen und über Glykolyse in Pyruvat umwandeln. Pyruvat wird anschließend durch Lactatdehydrogenase (LDH) in Lactat umgewandelt. Lactat wird über Monocarboxylat-Transporter (MCTs) zu den Spermatocyten transportiert, wo es durch LDH wieder in Pyruvat zurückverwandelt wird. Dieses kann dann durch Pyruvatdehydrogenase (PDH) in Acetyl-CoA umgewandelt werden, das in den Tricarbonsäurezyklus (TCA-Zyklus) eingeht. Schließlich wird Pyruvat über den mitochondrialen Pyruvat-Transporter in die Mitochondrien transportiert, um die OXPHOS zu fördern.
Störung der Spermatogenese durch mitochondriale Dysfunktion
Während der Spermiation werden reife Spermatozoen von Sertoli-Zellen in das Lumen der Samenkanälchen freigesetzt und anschließend zum Nebenhoden transportiert. Dieser Vorgang erfordert eine erhebliche Energiezufuhr durch Mitochondrien. Bei einer gestörten mitochondrialen Funktion wird die Spermatogenese beeinträchtigt. Wichtige Anzeichen für eine mitochondriale Dysfunktion sind die übermäßige Produktion reaktiver Sauerstoffspezies (ROS), Veränderungen im mitochondrialen Membranpotenzial (MMP), Störungen der Balance zwischen mitochondrialer Teilung und Fusion, beeinträchtigte mitochondriale Biogenese, defekte Mitophagie sowie eine gestörte Homöostase der Calciumionen.
Der Prozess, bei dem Mitochondrien durch OXPHOS ATP produzieren, geht ebenfalls mit der Produktion von ROS einher. Mitochondrien sind die Hauptquelle für ROS, die hauptsächlich an den Atmungskomplexen I und III der mitochondrialen Elektronentransportkette (ETC)15 gebildet werden. Unter normalen physiologischen Bedingungen sind angemessene ROS-Konzentrationen an Signalwegen beteiligt, die die Spermatogenese regulieren. Übermäßige ROS-Bildung kann jedoch zu einem Redox-Imbalance führen, oxidativen Stress verursachen und die Spermatogenese beeinträchtigen. Daher ist das Gleichgewicht zwischen dem mitochondrialen Energiestoffwechsel und der ROS-Produktion ein entscheidender Faktor für eine intakte Spermatogenese.
Ein effizienter mitochondrialer OXPHOS erfordert den Eintritt atemaktiver Kohlenstoffsubstrate (z. B. Pyruvat, Fettsäuren) durch die äußere mitochondriale Membran in den Intermembranraum. Diese Substrate werden anschließend über Transporter in der inneren mitochondrialen Membran in die Matrix befördert, wo sie am Zitronensäurezyklus (TCA-Zyklus) teilnehmen. Im TCA-Zyklus erfolgt der oxidative Abbau dieser Kohlenstoffsubstrate unter Bildung von Nicotinamidadenindinukleotid (NADH) und Flavinadenindinukleotid (FADH2). Diese Produkte übertragen Elektronen auf die Atmungskette (ETC) und treiben so den OXPHOS zur ATP-Synthese aus ADP und anorganischem Phosphat (Pi) an. Störungen im TCA-Zyklus oder in den Wegen der ETC können die Spermienproduktion beeinträchtigen16. Das mitochondriale Membranpotenzial (MMP), als Indikator für den zellulären Energiezustand und die mitochondriale Funktion, wurde mit der Spermienmotilität17 sowie der gesamten Befruchtungsfähigkeit18 assoziiert.
Unter mitochondrialem Stress kann die Fission beschädigte mitochondriale Abschnitte abtrennen, während die Fusion die Durchmischung von Inhalten und eine funktionelle Komplementierung fördern kann. Beschädigte oder überschüssige Mitochondrien können anschließend über die Mitophagie abgebaut und recycelt werden. Zusammen bilden die mitochondriale Biogenese, Fission, Fusion und Mitophagie die mitochondriale Qualitätskontrolle (MQC), die die mitochondriale Funktion und Umgestaltung unterstützt19.
Die Spermatogenese umfasst die Differenzierung von Spermatogonien in Spermatozoen, was nicht nur zu erheblichen Veränderungen der Zellmorphologie führt, sondern auch die Unterstützung und Regulation des Energiestoffwechsels erfordert. Als Kraftwerke der Zellen spielen Mitochondrien eine entscheidende Rolle bei zentralen Aspekten der Spermatogenese, einschließlich der Energieversorgung, der Signaltransduktion und des programmierten Zelltods. Während der Spermatogenese variieren die metabolischen Anforderungen der Keimzellen in den verschiedenen Entwicklungsstadien. Die Anzahl und Morphologie der Mitochondrien verändern sich im Verlauf der Spermatogenese erheblich. Bei der Spermienbildung werden viele Mitochondrien abgebaut, während die verbleibenden Mitochondrien im Mittelstück des Spermiums organisiert werden, um eine mitochondriale Hülle um das Axonem und die assoziierten Geißelstrukturen zu bilden. Daher durchlaufen Mitochondrien in den verschiedenen Hodenzellen während der Spermatogenese kontinuierlich Fusion und Fission und benötigen einen effizienten und präzisen MQC-Mechanismus, um ihre normale Funktion sicherzustellen und den hohen Energiebedarf der Spermatogenese zu decken. Während der Spermienproduktion verändern sich sowohl die Morphologie als auch die Anzahl der Mitochondrien signifikant, wobei MQC eine entscheidende Rolle in diesem Prozess spielt. Die wichtigsten Zielproteine, die an MQC beteiligt sind, sind in Tabelle 1 aufgelistet.
Spermiogenese und mitochondriale Dynamik
Mitochondrien sind hochdynamische Organellen, deren Morphologie, Größe und subzelluläre Verteilung sich kontinuierlich durch koordinierte Fusion und Teilung verändern – ein Prozess, der gemeinsam als mitochondriale Dynamik bezeichnet wird. Unter normalen physiologischen Bedingungen befinden sich Fusion und Teilung im dynamischen Gleichgewicht, wodurch die mitochondriale Homöostase aufrechterhalten, funktionelle Komplementierung ermöglicht und eine korrekte mitochondriale Vererbung während der Zellteilung sichergestellt wird. Eine Störung dieses Gleichgewichts – sei es durch genetische Ablation, Defekte in posttranslationalen Modifikationen oder pathologischen Stress – beeinträchtigt die mitochondriale Funktion, schmälert die Energieproduktion und behindert letztlich die Spermatogenese. Die exakte Regulation der mitochondrialen Dynamik ist besonders wichtig in Keimzellen, da die Spermatogenese dramatische metabolische Verschiebungen und umfangreiche morphologische Umbauprozesse beinhaltet, die eine stadienspezifische Anpassung der mitochondrialen Architektur und Aktivität erfordern.
Die mitochondriale Fusion wird durch MFN1 und MFN2 in der äußeren mitochondrialen Membran sowie durch OPA1 in der inneren Membran vermittelt und ermöglicht so das Mischen von Inhalten, funktionelle Komplementierung und die Aufrechterhaltung der Integrität der mitochondrialen DNA. Die Fusion ist nicht nur eine defensiv wirkende Antwort, sondern ein kontextabhängiger Mechanismus, der die mitochondriale Vererbung und metabolische Anpassung während der Keimzellen-Differenzierung unterstützt. Während der Differenzierung der Spermatogonien steigt die Expression von MFN an, und der Verlust entweder von MFN1 oder MFN2 führt zu DNA-Oxidation und Apoptose in Spermatogonien und Spermatocyten, was männliche Unfruchtbarkeit zur Folge hat20,21. MFN1-Mutationen verursachen bei Mäusen eine Hodenatrophie mit deutlicher Verminderung der Spermatocyten und einem Ausbleiben der Spermienproduktion, während undifferenzierte Spermatogonien unbeeinflusst bleiben, was darauf hindeutet, dass MFN1 für den Fortschritt der Meiose erforderlich ist20. MFN2 hingegen reguliert sowohl mitochondriale als auch endoplasmatische Funktionen und spielt damit eine eigenständige Rolle in der Spermatogenese21.
Die mitochondriale Teilung wird durch DRP1 gesteuert, das über Adapterproteine wie FIS1, MFF, MID49 und MID51 an die äußere mitochondriale Membran rekrutiert wird. Nach der Rekrutierung assembliert sich DRP1 zu ringförmigen Oligomeren, die die Mitochondrien in einer GTP-abhängigen Weise einschnüren und teilen. Der Prozess umfasst drei Hauptschritte: die Aktivierung von DRP1 durch Phosphorylierung, die Rekrutierung an die äußere Membran mittels Interaktionen mit FIS1, MFF, MID49 und MID51 sowie die Assemblierung zu einer Ringstruktur, die die Mitochondrien umschließt und einschnürt, wobei GTP verbraucht wird und zwei getrennte Organellen entstehen. Die mitochondriale Teilung ist nicht einfach nur ein Mechanismus zum Abbau depolarisierter Mitochondrien oder zur Deckung erhöhten Energiebedarfs; vielmehr handelt es sich um einen koordinierten Prozess, der die Verteilung der Mitochondrien, die Trennung geschädigter Bestandteile, die Vererbung während der Zellteilung sowie die Umgestaltung der mitochondrialen Architektur reguliert. Mäuse, die DRP1 fehlt, sterben embryonal22,23; MFF-defiziente Mäuse weisen eine verminderte Fruchtbarkeit und eine reduzierte Spermienanzahl auf und stellen somit ein wertvolles Modell zur Untersuchung der mitochondrialen Teilung in der Entwicklung männlicher Keimzellen dar24. Die mitochondriale Teilung ist essentiell für die korrekte Bildung der mitochondrialen Hülle während der Spermiogenese.
Die Spermatogenese ist energetisch aufwendig und stützt sich hauptsächlich auf die Glykolyse in den Spermatogonien sowie auf die OXPHOS in den Spermatocyten und Spermatiden. Die OXPHOS ist besonders während der Meiose von entscheidender Bedeutung, und ihre Effizienz hängt von intakten mitochondrialen Dynamiken ab25,26. Nach der Meiose regulieren MFF und andere Fissionsproteine die mitochondriale Teilung und sind an der Bildung der mitochondrialen Spermienhülle beteiligt24. Während der Spermiogenese werden einige Mitochondrien selektiv erhalten und zu der Hülle umgestaltet, während überschüssige Mitochondrien und zytoplasmatische Bestandteile über den Autophagieweg eliminiert werden27. Proteine wie OPA1, DRP1 und MFF könnten vielversprechende Forschungsziele zur Verbesserung der Spermienfunktion darstellen, doch ihre therapeutische Relevanz bedarf weiterer Validierung. Weitere Untersuchungen der MQC in der menschlichen Spermatogenese könnten zukünftige diagnostische oder therapeutische Forschungsansätze bei männlicher Unfruchtbarkeit erleichtern.
Spermatogenese und mitochondriale Autophagie
Die Mitophagie spielt eine entscheidende Rolle bei der Spermatogenese28. Die Mitophagie umfasst hauptsächlich die Einschließung geschädigter Mitochondrien durch Autophagosomen. Diese Autophagosomen, die geschädigte Mitochondrien enthalten, verschmelzen anschließend mit Lysosomen, und die Mitochondrien werden durch lysosomale Aktivität abgebaut, wodurch geschädigte Mitochondrien entfernt und eine Qualitätskontrolle erreicht wird. Der klassische Weg der mitochondrialen Autophagie ist der PINK1/Parkin-Weg; außerdem wurden PINK1/Parkin-unabhängige Wege beschrieben29.
Die Autophagie trägt zur Erhaltung der Akrosomintegrität, der Spermatidpolarisation und des Abbaus zytoplasmatischer Bestandteile während der Spermatogenese bei, wobei diese Prozesse jedoch allgemeine Autophagie widerspiegeln und nicht selektive Mitophagie, sofern nicht spezifisch der Nachweis für den Abbau von Mitochondrien erbracht wurde. Untersuchungen haben gezeigt, dass die Mitophagie eng mit der mitochondriellen Dynamik verknüpft ist und mitochondrielle Fission die Mitophagie unterstützen kann, um überschüssige oder beschädigte Mitochondrien zu entfernen30. FIS1 ist zwar ein mitochondriales Fissionsprotein, spielt aber ebenfalls eine Rolle bei der Mitophagie während der Spermatogenese31. RAB7A ist an der Bildung von Mitophagosomen und der Reifung von Autophagosomen beteiligt32. FIS1 interagiert mit dem mitochondrialen GTPase-aktivierenden Protein TBC1D1533,34. TBC1D15 reguliert die Aktivität von RAB7A, das an der Fusion von Vesikeln mit Lysosomen sowie an der Reifung von Autophagosomen beteiligt ist34,35. Wenn FIS1 inaktiviert ist, kann RAB7A auf der mitochondrialen Oberfläche aktiv bleiben, was zu einer dysregulierten Ausdehnung und Tubulation der Autophagosomenmembran führt; die Aggregation von LC3 ist mittels optischer Mikroskopie sichtbar35. Die Mitophagie kann auch unabhängig von DRP1-vermittelter mitochondrieller Fission stattfinden, weshalb die Fission nicht als zwingend notwendig für die Eliminierung von Mitochondrien betrachtet werden sollte35.
Während der Spermiogenese werden Spermatiden von überschüssigen zellulären Bestandteilen befreit, und Untersuchungen haben gezeigt, dass Autophagosomen in Spermatiden am häufigsten vorkommen36. Das zentrale Autophagie-Gen Atg7 ist mit der Polarisation der Spermatiden und der Entfernung des Zytoplasmas während der Spermatogenese verknüpft; in diesem Zusammenhang scheinen frühe Keimzelltypen jedoch weniger betroffen zu sein27,36. Außerdem ist die Mitophagie in geschädigten Hodenmodellen verstärkt, einschließlich Leydig-Zellen29, spermatogoniale Stammzellen/Progenitoren37,38, Sertoli-Zellen39 und unreife Rattenhoden, die Toxinen ausgesetzt waren40. In der Spermatogenese ist die mitochondriale Autophagie mit Apoptose und anderen Formen des programmierten Zelltods verknüpft, wodurch die Spermienproduktion im Hoden beeinflusst wird41,42.
Bibliometrischer Kontext
Eine fokussierte bibliometrische Analyse der Web of Science Core Collection von 1970 bis 2023 wurde unter Verwendung der Suchbegriffe „spermatogenesis“ und „MQC“ durchgeführt; Studien an Nicht-Säugetieren und irrelevante Einträge wurden ausgeschlossen, und zur Visualisierung wurde VOSviewer 1.6.20 verwendet43. Nach der Sichtung blieben 1.019 Artikel von 1.217 Institutionen aus 66 Ländern und 5.705 Autoren übrig. Die Anzahl der Publikationen stieg stetig an (Abbildung 2A). Die Vereinigten Staaten und China trugen die meisten Artikel bei (212 bzw. 196), wobei die Vereinigten Staaten die höchste Zitieranzahl aufwiesen (12.295; Abbildung 2B). Institutionelle und Autorennetzwerke sind in den Abbildungen 2C und 2D zusammengefasst.
Die Analyse der Schlüsselwort-Ko-Okkurrenz (Häufigkeit > 7) zeigte einen Schwerpunkt auf Spermienmotilität, oxidativem Stress, Apoptose/programmiertem Zelltod, DNA-Schäden, Lipidperoxidation und Spermienqualität (Abbildung 3). Diese bibliometrischen Muster unterstützen, ersetzen jedoch nicht die mechanistische Übersicht: Das Forschungsfeld konzentriert sich auf oxidative Schäden und Motilitätsparameter, während direkte humanmedizinische Belege, die stadienspezifische MQC-Wege mit Unfruchtbarkeit verknüpfen, weiterhin begrenzt sind.
Schlussfolgerungen
Mit dem Fortschritt der Biotechnologie hat sich die Forschung zur männlichen Fertilität von der beschreibenden Morphologie und Motilität hin zu den molekularen und zellulären Mechanismen der Spermatogenese verlagert. Die Mitochondrien sind zentral für diesen Prozess: Sie erzeugen ATP, unterstützen die Umgestaltung während der Meiose und Spermio-Genese und sind äußerst empfindlich gegenüber oxidativem und umweltbedingtem Stress44. Um unter solchem Stress ihre Funktionalität aufrechtzuerhalten, sind die Mitochondrien auf die mitochondriale Qualitätskontrolle (MQC) angewiesen, die Biogenese, Fusions- und Fissionsdynamik sowie Mitophagie integriert. Die Störung dieser Signalwege beeinträchtigt die Entwicklung der Keimzellen, die Architektur des Spermienmittelstücks und letztlich die Fertilität. Zusammenfassend lässt sich sagen, dass die vorliegenden Belege ein stadienspezifisches Modell stützen, bei dem mitochondriale Dynamik und Mitophagie dabei helfen, die Energieproduktion, die Umgestaltung von Organellen und die Entfernung beschädigter Bestandteile während der Spermatogenese zu koordinieren. Direkte Belege beim Menschen sowie standardisierte Phänotypisierung sind jedoch weiterhin begrenzt, sodass Proteine der MQC als kandidatenbasierte Forschungsziele betrachtet werden sollten, die einer weiteren Validierung bedürfen, anstatt als etablierte therapeutische Zielstrukturen.
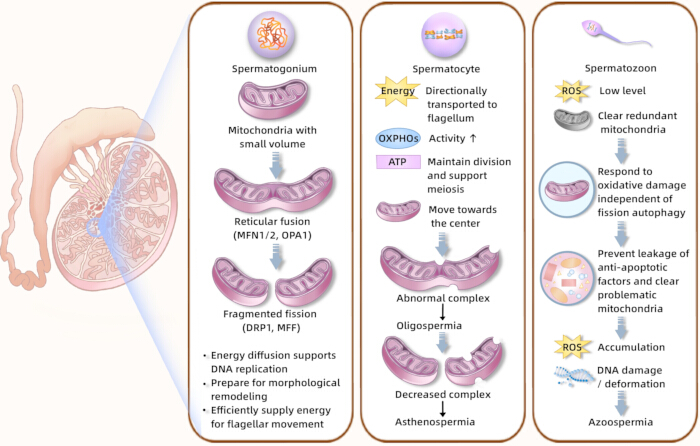
Abbildung 1. Der Mechanismus der mitochondriellen Qualitätskontrolle während der Spermatogenese. Stadienauflösende Energiestoffwechsel- und mitochondriale Umbauprozesse in der Spermatogenese. Das Schema zeigt die metabolische Kopplung zwischen Sertoli- und Keimzellen, Glucosetransporter, Monocarboxylattransporter, ATP-Produktion, den Übergang vom glykolyseunterstützten Stoffwechsel zur oxidativen Phosphorylierung während der Meiose und Spermiogenese sowie mitochondriale Schäden durch reaktive Sauerstoffspezies. Abkürzungen: ATP = Adenosintriphosphat; OXPHOS = oxidative Phosphorylierung; ROS = reaktive Sauerstoffspezies. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
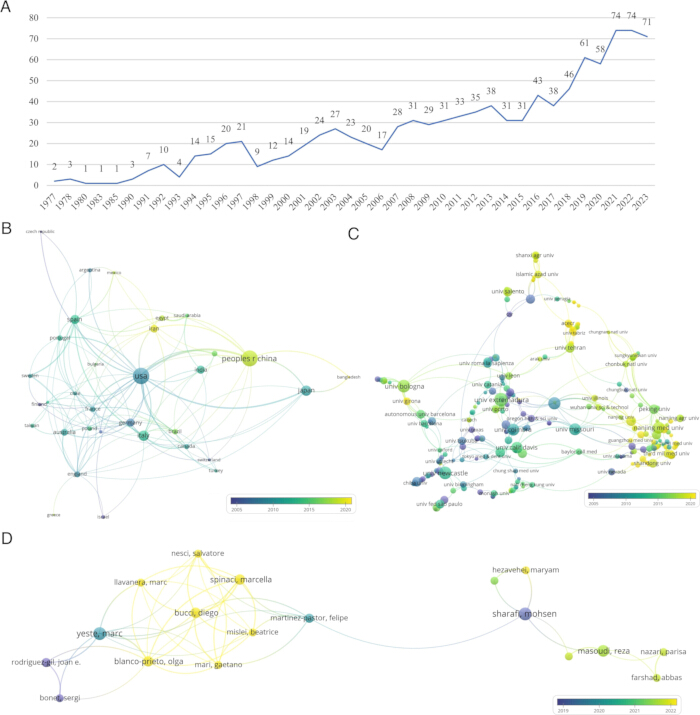
Abbildung 2. Nationale, institutionelle und Autoren-Publikationen sowie Analyse der Zusammenarbeit. (A) Jährliche Anzahl der Publikationen auf dem Gebiet der Spermatogenese und der MQC. (B) Zeitliche Verteilungskarte internationaler kollaborativer Publikationen auf dem Gebiet der Spermatogenese und der MQC. (C) Zeitliche Verteilungskarte institutioneller Zusammenarbeit auf dem Gebiet der Spermatogenese und der MQC. (D) Zeitliche Verteilungskarte der Publikationen von Autoren auf dem Gebiet der Spermatogenese und der MQC. Die Knoten zeigen die Anzahl der Publikationen an; die Farbe der Knoten gibt den Publikationszeitraum von früher bis aktueller an; die Linien stellen kollaborative Beziehungen dar, wobei dickere Linien eine engere Zusammenarbeit anzeigen. Abkürzung: MQC = mitochondriale Qualitätskontrolle. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
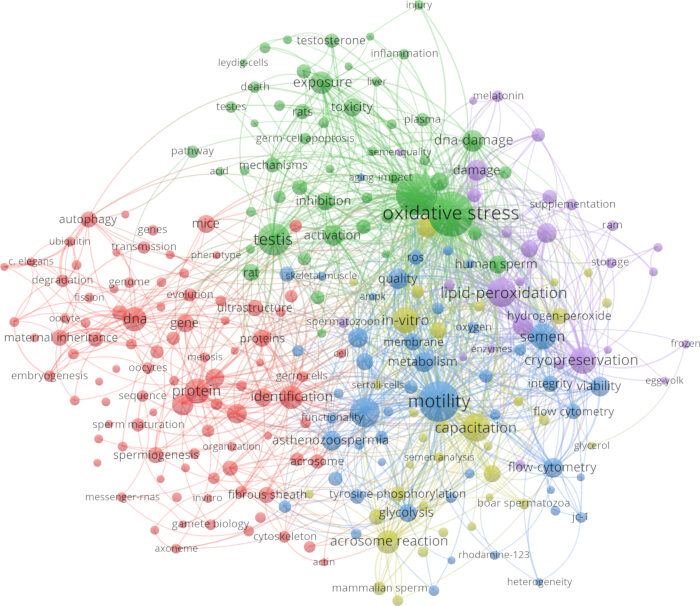
Abbildung 3. Diagramm zur häufigen Ko-Vorkommen von Schlüsselwörtern. Die Knoten stellen häufige Schlüsselwörter dar; die Knotengröße repräsentiert die Häufigkeit; die Knotenfarbe zeigt die Gruppierung an, wobei dieselbe Farbe enger verwandte Themenbereiche anzeigt; und Linien stellen Beziehungen zwischen Schlüsselwörtern dar, wobei dickere Linien engere Beziehungen anzeigen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
| MQC-Prozess | Zielprotein |
| Mitochondriale Fusion | Optic atrophy 1 (OPA1) |
| Mitofusin 1 (MFN1) | |
| Mitofusin 2 (MFN2) | |
| Mitochondriale Fission | Dynamin-related protein 1 (DRP1) |
| Mitochondriale Fission 1-Protein (FIS1) | |
| Mitochondriale Fission-Faktor (MFF) | |
| Mitophagie | PTEN-induzierte putative Kinase 1 (PINK1) |
| Ubiquitin-Protein-Ligase Parkin (E3-Ubiquitin-Protein-Ligase Parkin) |
Tabelle 1: Wichtige Zielproteine bei der Kontrolle der mitochondrialen Qualität. Die Tabelle listet repräsentative Proteine auf, die an der mitochondrialen Fusion, der mitochondrialen Fission und der Mitophagie während der Spermatogenese beteiligt sind.
Offenlegungen
Die Autoren haben keine Interessenkonflikte anzugeben.
Danksagungen
Diese Arbeit wurde unterstützt durch das Ningxia Natural Science Foundation Project (2025AAC030481, 2024AAC03715), die Nationale Naturwissenschaftliche Stiftung Chinas (82560939, 82505601), das Ningxia-Schlüsselprogramm für Forschung und Entwicklung (2025FRG05005, 2025BEG2008), die Pekinger Naturwissenschaftliche Stiftung (7254520), die China Postdoctoral Science Foundation (2025T181076), das Förderprogramm für junge Elite-Wissenschaftler der Chinesischen Vereinigung für Wissenschaft und Technologie (YESS20240193), das Förderprogramm für junge Talente der Chinesischen Vereinigung für Traditionelle Chinesische Medizin (CACM-2024-QNRC2-B17) sowie das Projekt zum Ausbau von Schlüsseldisziplinen auf hohem Niveau in der Traditionellen Chinesischen Medizin der Nationalen Verwaltung für Traditionelle Chinesische Medizin (zyyzdxk-2023238).
Referenzen
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.