Dieses Protokoll beschreibt die extrazelluläre elektrophysiologische Ableitung visuell ausgelöster Schwimmpazemaker-Signale aus dem isolierten Rhopalium der Quallenart Tripedalia cystophora und liefert eine quantitative Messgröße für das Verhalten zur Hindernisvermeidung, die eine präzise Untersuchung der visuellen Informationsverarbeitung und sensorimotorischen Integration ermöglicht.
Methodenartikel
Extrazelluläre elektrophysiologische Ableitung visuell evozierter Schwimm-Peacemaker-Signale aus dem isolierten Rhopalium von Tripedalia cystophora
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Quallenart Tripedalia cystophora kombiniert abbildende Linsenaugen und gut charakterisierte, visuell gesteuerte Verhaltensweisen mit einem überschaubaren rhopidialen Nervensystem von etwa 1000 Neuronen und eignet sich daher zunehmend als Modell für systemebenen Untersuchungen der visuellen Informationsverarbeitung und sensorimotorischen Integration. Schwimmpazemaker-Neurone erzeugen motorische Befehle, die direkt die Glockenkontraktionen steuern, und diese Signale können extrazellulär aus dem epidermalen Stielnerv eines isolierten Rhopals aufgezeichnet werden, wodurch eine quantitative Stellvertretung für visuell gesteuerte motorische Ausgabe bereitgestellt wird. Die Stärke der Pazemakerantwort, quantifiziert als standardisierte neuronale Aktivität, abgeleitet von der Anzahl der Pazemaker-Signale und der momentanen Frequenz, skaliert mit dem Reizkontrast oberhalb der Entscheidungsschwelle (DTT), wodurch eine gestufte Bewertung der visuell gesteuerten sensorimotorischen Integration ermöglicht wird. In diesem Protokoll behandeln wir die Herstellung von extrazellulären Saug-Elektroden, die Isolation der Rhopalien, die Konfiguration der Ableitungskammer, die visuelle Reizpräsentation am unteren Linsenauge, die Überprüfung der Reizzeitgebung auf Hardware-Ebene, die Platzierung der Elektrode am epidermalen Stielnerv sowie die synchronisierte Erfassung elektrophysiologischer und Reizdaten mithilfe gängiger Laborhardware.
Einleitung
Das Verständnis dafür, wie Nervensysteme sensorische Informationen verarbeiten und in anpassungsfähiges Verhalten umsetzen, stellt eine zentrale Herausforderung der Neurowissenschaften dar. Fortschritte wurden vor allem bei großen, komplexen Modellorganismen erzielt, wie beispielsweise Drosophila melanogaster, dessen Gehirn von etwa 200.000 Neuronen eine detaillierte Untersuchung der neuronalen Schaltkreisorganisation1 ermöglicht hat, sowie bei anderen genetisch gut zugänglichen Modellen mit hochentwickelten Bildgebungs- und Schaltkreisabbildungsmethoden. Die Komplexität dieser Systeme erschwert jedoch ein vollständiges, systemebenenübergreifendes Verständnis des Zusammenhangs zwischen sensorischem Input, neuronaler Verarbeitung und Verhaltensausgabe. Am anderen Ende des Komplexitätsspektrums bieten kleine, vollständig kartierte Systeme wie das von Caenorhabditis elegans mit 302 Neuronen2 – sowie andere Modelle mit minimaler Neuronenzahl – eine überschaubare Größe, verfügen jedoch über keine bildformenden Augen und die darauf basierenden visuell gesteuerten Verhaltensweisen.
Tripedalia cystophora, die karibische Quaderqualle (Abbildung 1A), etabliert sich als Modellsystem für die visuelle Informationsverarbeitung und sensorische Integration auf Systemebene und nimmt eine einzigartige Position zwischen diesen Extremen ein3. Das hier beschriebene Protokoll (Abbildung 1) soll das gesamte experimentelle Potenzial dieses Tieres der breiteren Neurowissenschafts-Community zugänglich machen.
T. cystophora verfügt über ein für ein Tier mit seiner neuronalen Komplexität bemerkenswert ausgeklügeltes Sehsystem. Jede der vier sensorischen Strukturen, die als Rhopalien bezeichnet werden, trägt sechs Augen, darunter zwei bildbildende Linsenaugen: das obere Linsenauge (ULE) und das untere Linsenauge (LLE)4 (Abbildung 1B). Dies sind keine einfachen lichtempfindlichen Organe – sie sind ausgestattet mit einer Linse mit gestuftem Brechungsindex vom Matthiessen-Typ, einer Linsenkonstruktion, die auch in den Augen von Wirbeltieren vorkommt, sowie einer evertierten Retina, in der etwa 600 Photorezeptoren im LLE und 400 im ULE direkt mit Neuronen zweiter Ordnung verbunden sind5,6,7. Die molekulare Zusammensetzung der lichtempfindlichen Apparatur, einschließlich der cnidops-Opsine, die homolog zu den c-Opsinen von Wirbeltieren sind, sowie der assoziierten Komponenten der Phototransduktion8,9,10, legt stark nahe, dass es sich hier um hyperpolarisierende Photorezeptoren handelt. Damit gehört das Sehsystem von T. cystophora trotz seiner unabhängigen evolutionären Herkunft derselben breiten funktionellen Kategorie an wie das Auge von Wirbeltieren.
Kritisch ist, dass diese optischen Anpassungen durch aufwändige, experimentell erfassbare, visuell gesteuerte Verhaltensweisen ergänzt werden. T. cystophora orientiert sich im optisch komplexen Mangrovenhabitat mithilfe von Langstreckennavigation und der Detektion von Lichtstrahlen, um seine Position innerhalb des Habitats zu halten11,12, sowie durch ein Verhalten zur Hindernisvermeidung, um untergetauchte Stützwurzeln zu umgehen12,13,14. Der neuroethologische Rahmen, der dieser Arbeit zugrunde liegt, besagt, dass Verhalten die einzige valide Messgröße für sensorische Verarbeitung bei nichtsprachlichen Tieren darstellt. Da wir Tiere nicht fragen können, was sie wahrnehmen, muss der experimentelle Aufbau an Reize angepasst werden, die das Tier erkennen und verstehen kann, sowie an Verhaltensweisen, die das Tier ausführen kann. Dies bedeutet, dass experimentelle Fragestellungen auf den Bedingungen des Tieres formuliert werden müssen, nicht auf denen des Forschers. Das Verhalten der Hindernisvermeidung bei T. cystophora veranschaulicht dieses Prinzip. Das Epidermis des Quallenwurms ist nur eine einzige Zellschicht dick, wodurch eine Kollision mit einer untergetauchten Stützwurzel aufgrund von Schäden an seinem empfindlichen Körper potenziell tödlich sein kann. Da die Integration zwischen den Rhopalien erst über den Ringnerv erfolgt15, erhält kein einzelnes rhopaliales Nervensystem (RNS) die überlappende binokulare Eingabe, die zur Berechnung von Tiefe aus stereoskopischer Diskrepanz erforderlich wäre. Stattdessen nutzt das Tier eine grundlegende Eigenschaft der Unterwasseroptik: Der Kontrast zwischen einem Objekt und dem umgebenden Wasser nimmt mit zunehmender Distanz rasch ab. Ein Hindernis mit hohem Kontrast ist daher ein nahes Hindernis, das eine unmittelbare Gefahr darstellt, während ein Hindernis mit geringem Kontrast weiter entfernt ist und noch keine Bedrohung darstellt. Das Tier verwendet Kontrast als Surrogat für Distanz16. Bei frei verhaltenden Tieren basiert das Verhalten der Hindernisvermeidung (OAB) auf einer Go/No-Go-Entscheidung; ein Ereignis wird ausgelöst, wenn das Tier ein untergetauchtes Hindernis detektiert, dessen Kontrast den Schwellenwert der Entscheidungsumkehr (DTT, decision transition threshold) überschreitet – also die Schwelle, oberhalb der das Hindernis nahe genug ist, um eine Bedrohung darzustellen –, und daraufhin die „Go“-Reaktion einleitet: 3–5 schnelle Glockenkontraktionen, eine Drehung um 120–180° und schnelles Schwimmen weg vom Hindernis14 (Abbildung 1C). Die gestufte Reaktion des Schrittmachers oberhalb des DTT spiegelt die gestufte Dringlichkeit der Bedrohung wider16. Das OAB bietet somit einen hervorragend zugänglichen Verhaltensassay zur Untersuchung der sensorimotorischen Integration: Ein einzelner, klar definierter visueller Parameter (Kontrast) steuert eine stereotypisierte, quantifizierbare motorische Ausgabe und stellt damit ein ideales System zur Erforschung der neuronalen Grundlagen visuell gesteuerter Entscheidungsfindung dar.
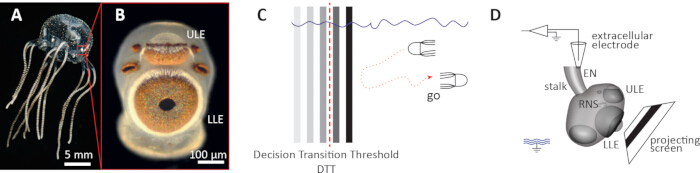
Abbildung 1: Übersicht über die isolierte Rhopalium-Präparation von Tripedalia cystophora zur extrazellulären elektrophysiologischen Ableitung. (A) Adulte Meduse von T. cystophora. Maßstabsbalken: 5 mm. Der rote Kasten zeigt die Position eines Rhopals am Glockenrand an. (B) Vergrößerung eines isolierten Rhopals. Das obere Linsenauge (ULE) und das untere Linsenauge (LLE) sind bildformende Augen. Maßstabsbalken: 100 µm. Bild von Dan-Eric Nilsson, mit Genehmigung reproduziert. (C) Schematische Darstellung des Hindernisvermeidungsverhaltens (OAB). Unterhalb der Entscheidungsschwellen-Transition (DTT, rote gestrichelte Linie) setzt das Tier das Schwimmen in Richtung Hindernis fort (kein Go). Oberhalb der DTT wird das Hindernisvermeidungsverhalten eingeleitet (Go). (D) Schematische Darstellung der elektrophysiologischen Präparation des isolierten Rhopals. Das Rhopal wird so positioniert, dass es auf den geneigten Projektionsbildschirm blickt. Die extrazelluläre Elektrode registriert die Schwimmpazemaker-Signale aus dem epidermalen Stielnerv (EN). RNS: rhopaliares Nervensystem; ULE: oberes Linsenauge; LLE: unteres Linsenauge; EN: epidermaler Stielnerv. Das Erdungssymbol kennzeichnet die Bad-Referenzelektrode. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Das neuronale Substrat, das diese visuelle Verarbeitung vermittelt, ist das RNS, das aus etwa 1000 Neuronen pro Rhopalium besteht17. Trotz dieser begrenzten Anzahl an Neuronen ist das RNS architektonisch hochentwickelt. Immunhistochemische Befunde deuten darauf hin, dass es in diskrete Neuronencluster organisiert ist, die jeweils unterschiedliche Neuropeptidprofile exprimieren18, was mit einer kompartimentalisierten Verarbeitungsarchitektur übereinstimmt. Es wird vermutet, dass visuelle Informationen über untergeordnete oszillatorische Cluster (subOCs) verarbeitet werden, von denen jedes mit einem bestimmten Auge des Rhopaliums assoziiert ist und die sich in einem terminalen oszillatorischen Cluster (trmOC) vereinigen – dieser wird als Population von Schrittmacherzellen angesehen, die das motorische Ausgangssignal erzeugt, das die Glockenkontraktionen steuert3. Wir schlagen vor, dass der trmOC die verarbeiteten sensorischen Informationen aus den subOCs integriert und das Schwimm-Schrittmachersignal erzeugt, das die motorische Verhaltensausgabe antreibt, und dass die Synchronisation zwischen den subOCs und dem trmOC der Transformation visueller Eingaben in die kontrollierte Verhaltensausgabe zugrunde liegt3 (Abbildung 2).
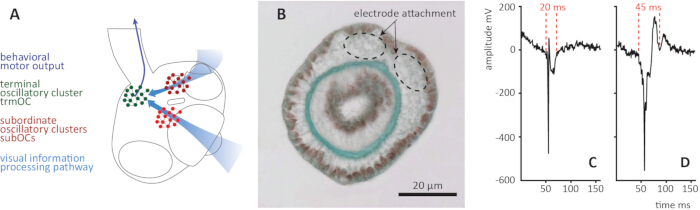
Abbildung 2: Ursprung des neuronalen Kreises und elektrophysiologische Identifizierung des Schwimmpazemaker-Signals in Tripedalia cystophora. (A) Schematische Darstellung des rhopialen Nervensystems. Visuelle Informationen werden über untergeordnete oszillatorische Cluster (subOCs, rot) verarbeitet, die mit den einzelnen Augen assoziiert sind, und münden in das terminale oszillatorische Cluster (trmOC, grün) ein. Es wird vermutet, dass das trmOC die verarbeiteten sensorischen Informationen aus den subOCs integriert und das Schwimmpazemaker-Signal erzeugt, das die motorische Verhaltensausgabe antreibt. Hellblaue Pfeile zeigen den Pfad der visuellen Informationsverarbeitung an; der dunkelblaue Pfeil zeigt die motorische Verhaltensausgabe an. (B) TEM-Mikrografie der durchtrennten epidermalen Stieloberfläche. Gestrichelte Kreise markieren die beiden Anheftungspunkte des gegabelten Nervs des epidermalen Stiels auf der adoralen Oberfläche des Stiels, die den Positionen der Ableitelektroden entsprechen. (C) Aktionspotential-ähnliches Signal. Die Wellenform zeichnet sich durch eine scharfe, schmale Ablenkung mit einer Dauer von etwa 20 ms aus (angegeben durch rote gestrichelte Linien). (D) Schwimmpazemaker-Signal, das vom trmOC ausgeht. Die Wellenform ist breiter, mit einer charakteristischen Dauer von etwa 45 ms (angegeben durch rote gestrichelte Linien), und weist eine zusammengesetzte Morphologie auf, die die summierte Aktivität mehrerer trmOC-Neurone widerspiegelt. Obwohl die Signalamplituden zwischen den beiden Signaltypen vergleichbar sind, sind die Dauer und Morphologie der Wellenform die zuverlässigen Unterscheidungskriterien für die nachgeschaltete Analyse. Alle elektrophysiologischen Werte liegen nach Verstärkung vor (×1000). Geändert mit Genehmigung von Bielecki et al.24. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Diese Architektur schafft eine außergewöhnliche experimentelle Gelegenheit. Das von dem trmOC erzeugte Schwimm-Peacemaker-Signal steuert die Glockenkontraktionen streng im Verhältnis eins zu eins19 und kann extrazellulär vom epidermalen Stielnerv eines isolierten Rhopals aufgezeichnet werden13,20. Dies bedeutet, dass visuell hervorgerufene motorische Befehle und damit auch visuell gesteuerte Verhaltensantworten mittels elektrophysiologischer Methoden an einem Präparat überwacht werden können, bei dem die motorischen Effektoren selbst vollständig entfernt wurden14. Das isolierte Rhopal nimmt somit eine methodische Mittelstellung ein, die bei anderen Systemen schwer zu erreichen ist: Es bietet die experimentelle Kontrolle eines reduzierten Präparats, einschließlich der präzisen Vorgabe räumlich-zeitlicher visueller Reize, und behält gleichzeitig eine direkte, quantitative Messung neuraler Ausgangssignale bei, die für das Verhalten relevant sind. Unter ungestörten Bedingungen treten Peacemaker-Signale mit einer Frequenz von 0,5–1 Hz auf; visuell hervorgerufene Ausweichreaktionen auf Hindernisse zeichnen sich durch Anstiege auf 2–3 Hz aus und bieten somit ein klares Signalfenster für die Analyse14 (Abbildung 1D).
Diese Kombination von Eigenschaften macht die isolierte Rhopalia-Präparation von T. cystophora besonders geeignet für die Untersuchung der visuellen Informationsverarbeitung und sensorisch-motorischen Integration auf Systemebene. Diese Präparation eignet sich für Forscher, die visuelle Verarbeitungsprozesse, sensorisch-motorische Integration oder oszillatorische Netzwerkdynamik in einem überschaubaren Nervensystem mit bildformenden Augen und gut charakterisierten visuell gesteuerten Verhaltensweisen untersuchen möchten4. Sie erfordert Standardausrüstung für Elektrophysiologie, einen modifizierten kommerziellen Projektor und ein Operationsmikroskop und kann in einem Labor ohne spezielle Infrastruktur eingerichtet werden. Das assoziative mechano-visuelle Lernparadigma – die assoziative Kombination simultaner visueller und mechanosensorischer Reize –, das zuvor für diese Präparation beschrieben wurde14, kann als Erweiterung des hier beschriebenen grundlegenden Aufzeichnungsprotokolls implementiert werden.
Protokoll
Für diese Studie war keine Genehmigung nach dem Tierschutzrecht erforderlich. Cnidaria, einschließlich Tripedalia cystophora, fallen nicht unter die Richtlinie 2010/63/EU zum Schutz von Tieren, die zu wissenschaftlichen Zwecken verwendet werden, die nur für Kopffüßer und Wirbeltiere gilt. Die in dieser Studie verwendeten Tiere wurden aus Mangrovenbächen vor La Parguera, Puerto Rico, USA, gesammelt, einem Gebiet, das nicht Vertragspartei des Nagoya-Protokolls über den Zugang zu genetischen Ressourcen und die ausgewogene und gerechte Aufteilung der Vorteile aus ihrer Nutzung ist; daher war keine vorherige informierte Zustimmung oder Vereinbarung über Zugang und Aufteilung der Vorteile erforderlich. Tripedalia cystophora ist weder als gefährdet noch als geschützt in CITES oder in sonstigen einschlägigen nationalen Naturschutzvorschriften aufgeführt.
1. Aufbau der Bühne und Signalkette
HINWEIS: Alle Hardware-Komponenten und deren Verbindungen sind in Abbildung 3 dargestellt. Beziehen Sie sich in diesem Abschnitt stets auf Abbildung 3. Alle Schritte in diesem Abschnitt müssen abgeschlossen sein, bevor das Tier in Kontakt gebracht wird. In diesem Stadium ist die Aufzeichnungskammer noch nicht mit Meerwasser gefüllt.
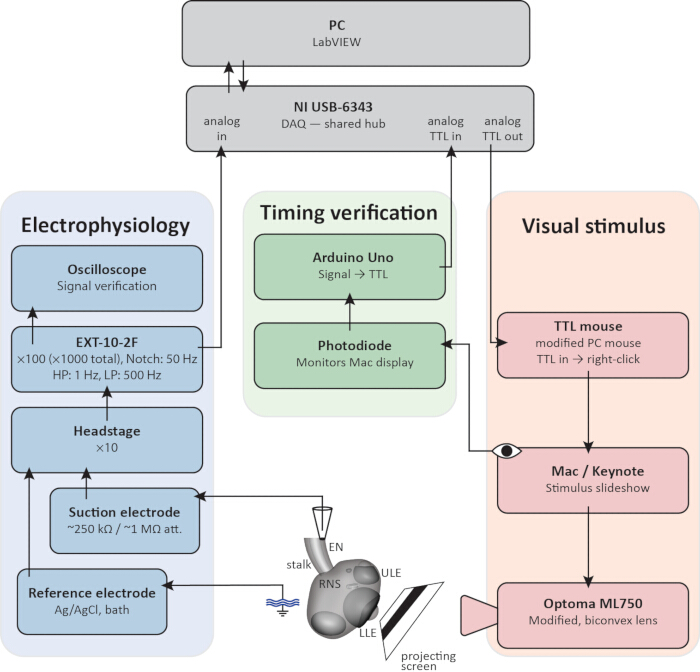
Abbildung 3: Anschlussdiagramm für die extrazelluläre Elektrophysiologie-Präparation am isolierten Rhopalium. Der PC mit VI und das DAQ (oben, grau) dienen als gemeinsame Schnittstelle für alle drei Signalwege. Elektrophysiologie-Weg (blau): Die Signale des Schwimm-Peacemakers werden über eine Saugnadelelektrode (~250 kΩ freie Spitze, ~1 MΩ angelegt) am epidermalen Stielnerv (EN) sowie eine im Bad platzierte Ag/AgCl-Referenzelektrodenpellet abgeleitet, durch den EXT-10-2F-Vorverstärker (×10) und den Hauptverstärker (×100, insgesamt ×1000) verstärkt, mit Bandpassfilterung (HP: 1 Hz, LP: 500 Hz) und 50/60-Hz-Notch-Filterung versehen, am Oszilloskop überwacht und über das DAQ aufgezeichnet. Visueller Reizweg (rot): Ein TTL-Impuls des DAQ schaltet die Reiz-Präsentation über eine modifizierte PC-Maus (TTL-Maus) weiter und steuert so den DLP-Projektor (modifiziert, bikonvexe Linse), der den Reiz auf die schräg angeordnete Bildwand der Aufnahmekammer vor dem unteren Linsenauge (LLE) projiziert. Zeitkontroll-Weg (grün): Eine Fotodiode überwacht das schwarze und weiße Indikatorfeld auf dem Computerbildschirm, das zu Beginn des Reizes von weiß auf schwarz wechselt und nach Ende wieder auf weiß zurückkehrt; ein Arduino Uno wandelt dieses Signal in einen TTL-Impuls um, der durch das DAQ als verifiziertes Reizfenster aufgezeichnet wird. RNS: rhopaliales Nervensystem; ULE: oberes Linsenauge; LLE: unteres Linsenauge; EN: epidermaler Stielnerv. Alle Amplitudenwerte beziehen sich auf die verstärkten Signale (×1000). Klicken Sie bitte hier, um eine vergrößerte Ansicht dieser Abbildung anzuzeigen.
- Aufbau der Ableitungskammer
- Konstruieren oder drucken Sie mittels 3D-Druck eine Ableitungskammer mit ausreichenden Innenabmessungen, um das Präparat, die Halte-Mikropipettenspitze und die Ableitungselektrodenspitze aufzunehmen.
HINWEIS: Die funktionell entscheidenden Konstruktionsmerkmale sind die Deckglasablage, die das Rhopalium 2 mm vom Projektionsbildschirm entfernt am Rand des Deckglases positioniert, sowie die Abmessungen des Bildschirms (16 mm × 12 mm, 60° geneigt), die gemeinsam den Winkelbereich des visuellen Reizes am unteren Linsenauge bestimmen. Die hier beschriebene Kammer hat eine Grundfläche von 30 mm × 30 mm und eine Wandstärke von etwa 5 mm. Technische Zeichnungen sind in Abbildung 4 dargestellt. - Platzieren Sie das Roth-Deckglas (20 mm × 26 mm) für das Hämozytometer auf den Deckglasablagen der Ableitungskammer. Das Deckglas bleibt durch negative Auftriebskraft an Ort und Stelle und benötigt keine Klebefixierung.
- Befestigen Sie die Ableitungskammer mit Hilfe der M6-Durchgangslöcher auf dem Mikroskoptisch. Ein x-y-z-Verfahrtisch wird empfohlen, da er die feine Ausrichtung des projizierten Bildes auf die Projektionswand der Ableitungskammer erleichtert.
- Verbinden Sie die Ein- und Auslassanschlüsse der Durchflusskanäle der Ableitungskammer (Abbildung 4A) mit einem temperaturgeregelten Wasserbad, das Wasser bei 28 °C zirkulieren lässt.
HINWEIS: Die Temperatur der Ableitungskammer sollte während des gesamten Experiments im Bereich von 28–30 °C gehalten werden.
- Konstruieren oder drucken Sie mittels 3D-Druck eine Ableitungskammer mit ausreichenden Innenabmessungen, um das Präparat, die Halte-Mikropipettenspitze und die Ableitungselektrodenspitze aufzunehmen.
- Optische Konfiguration (Abbildung 3, visuelle Reizkette)
ACHTUNG: Blicken Sie niemals direkt in die Projektorausgabe, insbesondere nicht, bevor Neutrale-Dichte-Filter installiert wurden (Abschnitt 4). Das Entfernen des Hersteller-Linsensystems beseitigt die integrierte Lichtdämpfung und kann Augenverletzungen verursachen.- Entfernen Sie das vom Hersteller vorgesehene Linsensystem aus dem Projektor.
- Montieren Sie eine einzelne bikonvexe Linse (f = 30 mm) vor der Ausgangsblende des Projektors, um das projizierte Bild auf die Projektionswand der Ableitungskammer zu fokussieren.
- Richten Sie den Projektor so aus, dass das projizierte Bild scharf auf der Projektionswand der Ableitungskammer abgebildet wird und die Bildschirmabmessungen (16 mm × 12 mm) vollständig ausfüllt.
HINWEIS: Zu diesem Zeitpunkt werden noch keine Neutrale-Dichte-Filter eingesetzt. Die geeignete Filterstärke wird empirisch während der biologischen Kalibrierung in Abschnitt 4 bestimmt.
- Aufbau der Signalverarbeitungskette (Abbildung 3, Elektrophysiologie- und Zeitverifikationskette)
- Verbinden Sie den Elektrodenhalter mit dem mit dem EXT-10-2F-Verstärker gelieferten Kopfverstärkerarm und befestigen Sie diesen Arm in einem MM33-Mikromanipulator.
- Verbinden Sie den Kopfverstärker mit dem Hauptverstärker. Die Verstärkung des Kopfverstärkers beträgt ×10. Stellen Sie die Verstärkung des Hauptverstärkers auf ×100 ein, was eine Gesamtverstärkung von ×1000 ergibt.
- Verbinden Sie den Ausgang des Verstärkers mit einem analogen Eingangskanal eines Analog-Digital-Wandlers (DAQ).
- Verbinden Sie das DAQ über USB mit dem PC, auf dem LabVIEW (Version 2018 oder vergleichbar) läuft.
- Verbinden Sie den TTL-Ausgang des Arduino Uno mit einem dedizierten analogen Eingangskanal des DAQ.
- Platzieren Sie die Fotodiode über dem schwarzen und weißen Indikatorfeld auf dem Computerbildschirm (Schritt 1.4.2). Verbinden Sie den positiven Anschluss der Fotodiode mit dem analogen Eingangspin A0 des Arduino Uno und den negativen Anschluss mit Masse. Der Arduino-Sketch, der die Überwachung der Fotodiode und die TTL-Ausgangsschwellenlogik implementiert, ist als Zusatzmaterial verfügbar (Zusatzdatei 1).
- Konstruktion der Reizgeometrie (Abbildung 3, visuelle Reizkette)
- Entwerfen Sie den visuellen Reiz in der Präsentationssoftware als sich bewegenden vertikalen grauen Balken auf weißem Hintergrund, um ein Hindernis in Form einer Mangrovenpropwurzel zu imitieren. Stellen Sie den Hintergrund auf maximale Helligkeit (Weiß) ein.
HINWEIS: Das Graustufenverhältnis des Balkens zum weißen Hintergrund bestimmt den Kontrast des Reizes und wird während der Bestrahlungscharakterisierung in Abschnitt 4 festgelegt. Der Balken sollte einen Sehwinkel von 30° am unteren Linsenauge (gemessen im Zentrum des Gesichtsfelds) einnehmen und sich mit einer Geschwindigkeit von 10° s-1 über die gesamte Breite des Gesichtsfelds bewegen, wobei er stets innerhalb des Gesichtsfelds bleibt. Der Sehwinkel eines projizierten Hindernisses kann berechnet werden mit:
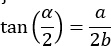
wobei α der Sehwinkel, a die Breite des Bildmerkmals und b der Abstand vom unteren Linsenauge zum Bildschirm ist. Die Bewegung des Balkens wird als kontinuierliche Objektanimation (z. B. „Bewegen“-Animation in Keynote) innerhalb einer einzigen Folie implementiert, nicht als Abfolge diskreter Folien. Eine repräsentative Reizdatei mit dieser Animation ist als Zusatzmaterial verfügbar (Zusatzdatei 2). Da Breite und Geschwindigkeit des Balkens in Sehwinkel und nicht in physikalischen Einheiten angegeben sind, müssen beide Größen vor der Eingabe als Objektgröße und Dauer der Animation in der Präsentationssoftware mithilfe der oben genannten Gleichung in Millimeter bzw. mm/s umgerechnet werden. - Fügen Sie eine kleine schwarze und weiße Indikatorfläche in eine Ecke der Folie ein, die mit Beginn der Balkenbewegung von Weiß auf Schwarz wechselt und beim Ende des Reizes wieder auf Weiß zurückkehrt. Überwachen Sie diese Fläche auf dem Computerbildschirm mithilfe der Fotodiode zur Verifizierung der Reizzeitpunkte in Schritt 3.3.
HINWEIS: Das schwarze und weiße Indikatorfeld erscheint notwendigerweise innerhalb des projizierten Bildes auf dem Bildschirm der Ableitungskammer, da es Bestandteil der Folie sein muss, um während der Präsentation auf dem Computerbildschirm sichtbar zu sein. Das Feld ist jedoch so dimensioniert, dass es nur den rezeptiven Bereich der Fotodiode auf dem Computerbildschirm ausfüllt. Wenn es auf die Kammerwand projiziert wird, ist es ausreichend klein, um vom unteren Linsenauge nicht als eigenständiges visuelles Merkmal wahrgenommen zu werden, und sein Beitrag zur Gesamthelligkeit des Bildschirms ist vernachlässigbar und löst keine Licht-AN/AUS-Antworten4,13,20 aus. - Blättern Sie die Folien der Präsentationssoftware entweder durch einen automatisierten oder manuellen Trigger weiter.
- Option A (automatisch): Konstruieren Sie eine Transistor-Transistor-Logik-(TTL-)Maus, indem Sie eine Standard-PC-Maus so modifizieren, dass ein kurzer 5-V-TTL-Impuls vom DAQ-Ausgang das Signal für einen Rechtsklick ersetzt. Schließen Sie die TTL-Maus über USB an den Präsentationscomputer an. Konfigurieren Sie die Präsentationssoftware so, dass die Folien bei einem Rechtsklick weitergeschaltet werden.
- Option B (manuell): Löst manuell den Folienwechsel zum geplanten Zeitpunkt des Reizbeginns aus. Da für die Analyse (Schritt 6.2.1) nicht das Auslösesignal selbst, sondern das vom Arduino verifizierte Reizfenster (Kanal 3) als endgültige Zeitreferenz verwendet wird, beeinträchtigt die manuelle Auslösung nicht die Zeitgenauigkeit, erfordert jedoch präzises Timing durch den Bediener während der Datenaufnahme und ist weniger komfortabel als die automatische Option.
- Entwerfen Sie den visuellen Reiz in der Präsentationssoftware als sich bewegenden vertikalen grauen Balken auf weißem Hintergrund, um ein Hindernis in Form einer Mangrovenpropwurzel zu imitieren. Stellen Sie den Hintergrund auf maximale Helligkeit (Weiß) ein.
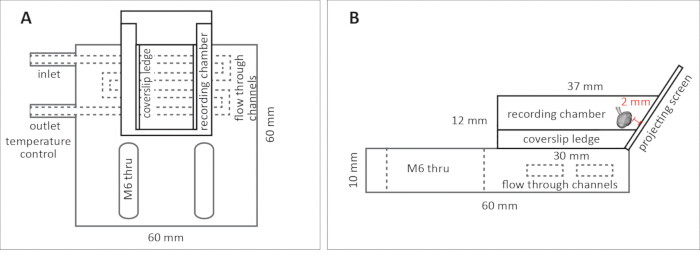
Abbildung 4: Aufnahmekammer für die isolierte Rhopalium-Präparation. (A) Schematische Draufsicht. Die Aufnahmekammer ist von Durchflusskanälen für die wassergekühlte Temperaturkontrolle flankiert, wobei Einlass- und Auslassöffnungen (Außendurchmesser 4,2 mm, Innendurchmesser 2,5 mm) angegeben sind. Die Deckglasstegen verlaufen längs entlang beider innerer Wände der Kammer und tragen das Hämacytometer-Deckglas in mittlerer Kammerhöhe. M6-Durchgangslöcher dienen als Befestigungspunkte, um die Kammer am Mikroskoptisch zu befestigen. Gesamtabmessungen: 60 mm × 60 mm. (B) Seitliche Ansicht mit Abmessungen. Die Aufnahmekammer hat eine innere Höhe von 12 mm und eine obere Breite von 37 mm. Eine Kammerwand bildet den Projektionsschirm, der um 60° relativ zur Vertikalen geneigt ist, um mit der optischen Achse des unteren Linsenauges ausgerichtet zu sein. Der Deckglassteg positioniert das Rhopalium am Rand des Deckglases, das dem Projektionsschirm zugewandt ist. Der angezeigte Arbeitsabstand von 2 mm bezieht sich auf die spezifische Konfiguration aus Kammer, Schirm und Projektor, wie in diesem Protokoll beschrieben; Leser, die dieses Design an andere Hardware anpassen, sollten den geeigneten Arbeitsabstand für ihre eigene Anordnung mithilfe der Gleichung in Schritt 1.4.1 neu berechnen. Durchflusskanäle zur Temperaturkontrolle verlaufen innerhalb der Basis der Aufnahmekammer und berühren die Präparation nicht. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
2. Herstellung der Elektroden
HINWEIS: Externe Absaugungselektroden bestehen aus Glas-Kapillarrohren mit konisch zulaufenden Spitzen, die so gezogen werden, dass eine Öffnung entsteht, die für die Absaugung und die Ableitung elektrischer Potentiale geeignet ist. Die Glas-Kapillare dient als elektrische Isolation und gewährleistet, dass nur Potentiale an der Spitze registriert werden. Ein in die Kapillare eingebrachter Silberdraht ist mit dem Verstärker verbunden. Diese Anordnung ermöglicht Mehrfacheinheiten-Ableitungen und erfasst elektrische Potentiale von Gruppen von Schrittmacherzellen an der Elektrodenspitze, gemessen gegen eine im Bad angebrachte Referenzelektrode. Die Elektroden sollten am Tag der Verwendung vor der Aufnahmesitzung hergestellt werden. Geschützte Elektroden neigen zur Verstopfung der Spitze, wodurch das Ansaugen von Meerwasser in die Kapillare verhindert wird und die Elektrode funktionsunfähig wird. Gefertigte Glas-Kapillaren weisen scharfe, zerbrechliche Spitzen auf. Während der Herstellung vorsichtig behandeln, um Verletzungen durch Einstich zu vermeiden, und gebrochene, aussortierte oder benutzte Kapillaren in einem dafür vorgesehenen Behälter für scharfe Gegenstände entsorgen.
- Ziehen der Glas-Kapillare
- Laden Sie eine Borosilikatglas-Kapillare (1,16 mm Innendurchmesser × 2,00 mm Außendurchmesser × 80 mm Länge) in den Mikropipettenzieher ein.
- Führen Sie das folgende Ziehprogramm aus: Zeile 1 (×1): Heizung 535, Zug 0, Geschwindigkeit 12, Zeit 200, Druck 600, Rampe 540. Zeilen 2–4 (×3): Heizung 532, Zug 0, Geschwindigkeit 12, Zeit 100.
HINWEIS: Diese Parameter sind spezifisch für das verwendete Gerät, die Glasart und die Heizwendel und müssen möglicherweise an einem anderen Gerät oder nach Abnutzung der Wendel angepasst werden; betrachten Sie sie als Ausgangspunkt und nicht als feste Vorgabe. - Entfernen Sie die gezogene Elektrode vorsichtig und lagern Sie sie mit der Spitze nach oben, um mechanische Beschädigungen zu vermeiden.
- Polieren der Elektrodenspitze
- Polieren Sie die Spitze, um eine glatte, senkrecht zur Kapillarachse stehende Oberfläche zu erzeugen, die eine Vakuumdichtung ermöglicht. Beachten Sie die beiden unten angegebenen Optionen; Option A (Mikroschweißgerät) wird empfohlen.
- Option A: Polieren mit einem Mikroschweißgerät (empfohlen)
- Montieren Sie die gezogene Elektrode in ein Mikroschweißgerät.
- Positionieren Sie unter 600-facher Vergrößerung (40× Objektiv, 15× Okular) die Spitze nahe der Heizwendel.
- Heizen und polieren Sie die Spitze, bis die Öffnung einen Widerstand von etwa 250 kΩ aufweist (entspricht ca. 1 MΩ im Kontakt mit Gewebe). Bei 600-facher Vergrößerung entspricht dies ungefähr drei Teilstrichen auf der Okular-Teilungsskala.
HINWEIS: Um den Elektrodenwiderstand zu messen, schließen Sie ein Multimeter zwischen den BNC-Innenleiter (verbunden mit dem Silberdraht der Elektrode) und die Bad-Referenzelektrode (Ag/AgCl-Pellet) an, sobald die Elektrode mit Meerwasser gefüllt wurde. Die Messung des elektrischen Widerstands ist für standardmäßige visuell evozierte Ableitungen nicht erforderlich, bei denen die Signalqualität das primäre Kriterium für die Eignung der Elektrode ist (Schritt 6.1.5); sie wird erst notwendig, wenn diese Präparation für ein assoziatives Lernparadigma verwendet wird, das eine berechnete Stromabgabe erfordert, was außerhalb des Geltungsbereichs dieses Protokolls liegt14. - Lassen Sie die Elektrode vollständig abkühlen, bevor Sie sie aus dem Mikroschweißgerät entfernen.
- Option B: Manuelles Polieren ohne Mikroschweißgerät
ACHTUNG: Bei diesem Schritt wird eine offene Flamme (Ethanolbrenner) verwendet. Halten Sie brennbare Materialien von der Flamme fern und befolgen Sie die üblichen Sicherheitsvorkehrungen für offene Flammen im Labor.- Halten Sie die gezogene Kapillarspitze kurz in die Flamme eines Ethanolbrenners, bis das Glas schmilzt und die Spitze als feine Tröpfchen verschließt.
- Lassen Sie die verschlossene Spitze vollständig abkühlen.
- Geben Sie einen Tropfen deionisiertes Wasser auf ein Blatt feines Schleifpapier (1200er Körnung) und halten Sie die Kapillare senkrecht zur Papieroberfläche.
- Schleifen Sie die Spitze mit kleinen kreisförmigen Bewegungen, wobei Sie zwischen rechts- und linksläufigen Drehungen wechseln.
- Setzen Sie das Schleifen vorsichtig fort, bis eine kleine Menge wasserhaltiger Glassplitter durch Kapillarwirkung in die Spitze gezogen wird.
- Befestigen Sie einen Gummischlauch am anderen Ende der Kapillare und verbinden Sie ihn mit einer Spritze.
- Üben Sie sanften Unterdruck aus, um deionisiertes Wasser durch die Spitze zu ziehen und so Glassplitter auszuspülen.
- Falls die Splitter nicht vollständig entfernt werden, schleifen Sie kurz erneut und wiederholen Sie den Spülvorgang.
HINWEIS: Die gewünschte Durchflussrate durch die fertige Spitze beträgt unter leichtem Unterdruck etwa 1 cm Wassersäule pro 10 s. Der Erfolg der Spitzenerstellung wird durch das Ableitungsergebnis (Signal mit geringem Rauschen und hoher Amplitude) definiert, nicht durch das äußere Erscheinungsbild der Spitze. Etwa 40–50 % der hergestellten Elektroden für jede Poliermethode erzielen solche Aufzeichnungen, wobei der limitierende Faktor zwischen den Methoden variiert. Bei der Polierung mit Mikroschweißgerät (Option A) resultiert das Versagen meist aus einer ungleichmäßigen Porengeometrie, die bereits beim Ziehen entsteht (Schritt 2.1) und durch nachfolgendes Wärme-Polieren nicht vollständig korrigiert werden kann. Bei der manuellen Polierung (Option B) hängt der Erfolg hauptsächlich von der Geschicklichkeit des Anwenders ab; das häufigste Versagen ist eine zu große Porenöffnung durch Übermäßiges Schleifen. Eine glatte, korrekt dimensionierte, runde Öffnung erhöht die Wahrscheinlichkeit einer qualitativ hochwertigen Aufzeichnung erheblich, garantiert sie aber nicht – letztlich ist das funktionelle Ergebnis das einzige ausschlaggebende Kriterium.
- Zusammenbau der Elektrode
- Setzen Sie die polierte Kapillare in den Elektrodenhalter ein, wobei sichergestellt werden muss, dass der Ag/AgCl-Draht (Silber/Silberchlorid) im Inneren der Glas-Kapillare gerade und ohne Knicke verläuft, und montieren Sie ihn in den Kopfverstärkerarm, der mit dem EXT-10-2F-Verstärker geliefert wird. Befestigen Sie den Kopfverstärkerarm im MM33-Mikromanipulator.
HINWEIS: Falls der Silberdraht nicht chloridiert ist, chloridieren Sie ihn elektrochemisch, indem Sie sowohl den Silberdraht der Elektrode als auch eine separate feste Silberelektrode in eine 2 M KCl-Lösung eintauchen und über isolierte Leitungen mit einer 12-V-Gleichspannungsquelle verbinden. Schalten Sie den Strom in Intervallen von etwa 2 Minuten ein und prüfen Sie den Draht visuell zwischen den Durchgängen; der Draht ist ausreichend chloridiert, sobald er sichtbar dunkler geworden ist, was gewöhnlich innerhalb von insgesamt 5 Minuten der Fall ist. Spülen Sie den Draht nach der Chloridierung gründlich mit deionisiertem Wasser ab. Ein nicht chloridierter Draht kann eine große und instabile Gleichstrom-Offsetspannung verursachen.
ACHTUNG: Die elektrolytische Chloridierung in KCl-Lösung erzeugt Chlorgas und Wasserstoffgas. Führen Sie die Prozedur in einem belüfteten Bereich durch. Entsorgen Sie die verwendete KCl-Chloridierungslösung gemäß den Richtlinien Ihrer Institution für gefährliche Abfälle. - Füllen Sie die Elektrode unmittelbar vor der Aufzeichnung, indem Sie Meerwasser direkt aus der gefüllten Ableitungskammer in die Kapillare saugen, bis die Innensubstanz bis zur halben Länge des Silberdrahts reicht. Siehe Schritt 3.1 für das Befüllverfahren.
HINWEIS: Haltende Mikropipetten erfordern nicht die optischen oder elektrischen Spezifikationen von Ableitelektroden. Elektroden, die während der Herstellung (Schritt 2.2) aufgrund eines zu großen Spitzendurchmessers (Widerstand unter 250 kΩ) oder einer exzentrischen Spitzengeometrie verworfen wurden, eignen sich für diesen Zweck und sollten aufbewahrt werden. Die Herstellung spezialisierter Halt-Mikropipetten ist nicht erforderlich.
- Setzen Sie die polierte Kapillare in den Elektrodenhalter ein, wobei sichergestellt werden muss, dass der Ag/AgCl-Draht (Silber/Silberchlorid) im Inneren der Glas-Kapillare gerade und ohne Knicke verläuft, und montieren Sie ihn in den Kopfverstärkerarm, der mit dem EXT-10-2F-Verstärker geliefert wird. Befestigen Sie den Kopfverstärkerarm im MM33-Mikromanipulator.
3. Systemvalidierung
Dieser Abschnitt überprüft, ob das vollständige Aufnahmesystem – Elektrode, Signalweg, Stimulationsabgabe und Zeitüberprüfung – ordnungsgemäß funktioniert, bevor die experimentelle Präparation eingeführt wird. Der vollständige Signalweg ist in Abbildung 3 dargestellt. Stellen Sie vor Fortsetzung sicher, dass alle Verbindungen korrekt hergestellt sind.
- Füllen der Kammer und Vorbereitung der Elektroden
- Füllen Sie die Aufnahmekammer mit 0,20 µm gefiltertem Meerwasser aus dem Kulturtank. Dies gewährleistet eine kontinuierliche chemische Zusammensetzung zwischen dem Kulturumfeld und der Aufnahmekammer und verhindert die Exposition des Rhopaliums gegenüber fremden Verbindungen oder Änderungen der Wasserchemie, die die Schrittmacheraktivität oder die Lebensfähigkeit des Präparats beeinträchtigen könnten.
- Füllen Sie die Aufnahmesaug-Elektrode, indem Sie Meerwasser direkt aus der Aufnahmekammer in die Kapillare saugen, bis die Innere Lösung die Hälfte der Silberdrahtlänge erreicht. Füllen Sie die Halte-Mikropipette mit ausreichend Meerwasser aus der Aufnahmekammer, um eine Saftadhäsion an dem Kristall zu ermöglichen.
- Platzieren Sie eine gesinterte Ag/AgCl (Silber/Silberchlorid)-Pellet-Elektrode im Aufnahmbad und verbinden Sie sie mit dem Referenzeingang der Kopfstufe.
- Erdung und Überprüfung der Störsignale
ACHTUNG: Bei diesem Aufbau werden elektrische Geräte in unmittelbarer Nähe von Meerwasser betrieben. Halten Sie alle elektrischen Verbindungen und Geräte von der Kammer und eventuellen Verschüttungen fern und befolgen Sie die elektrischen Sicherheitsvorschriften Ihrer Institution für Arbeiten in feuchter Umgebung.- Erdung Sie alle Geräte an einem einzigen gemeinsamen Erdungspunkt (Stern-Erdungskonfiguration), um Erdungsschleifen zu vermeiden.
- Überwachen Sie das Signal am Oszilloskop. Stellen Sie sicher, dass die Basislinie sauber und frei von Rauschen ist, bevor Sie fortfahren.
HINWEIS: In unserem Labor werden Faradaysche Käfige für extrazelluläre Ableitungen im Allgemeinen nicht verwendet, da eine sorgfältige Stern-Erdung sich als wirksamer bei der Beseitigung elektrischer (50/60 Hz)-Störungen erwiesen hat als physische Abschirmung.
- Überprüfung der Zeitablaufkette
- Führen Sie das LabVIEW-Virtuelle Instrument (VI) aus (als ergänzendes Material bereitgestellt, Ergänzende Datei 3). Führen Sie das VI während der Systemvalidierung aus. Dadurch wird der TTL-Impuls an die TTL-Maus gesendet, um den Stimulusaufbau auszulösen, und es wird eine .txt-Ausgabedatei erzeugt, die es ermöglicht zu überprüfen, ob alle Kanäle – elektrophysiologisches Signal, LabVIEW-TTL und Arduino-TTL – korrekt erfasst werden, bevor das experimentelle Präparat eingesetzt wird.
HINWEIS: Die Verzögerung zwischen dem im LabVIEW protokollierten TTL-Befehl und dem durch den Arduino bestätigten Stimulusbeginn variiert zwischen den Aufnahmen unvorhersehbar und wird in diesem Stadium nicht aufgelöst; stattdessen wird sie individuell für jede Aufnahme während der Analyse bestimmt und korrigiert (Schritt 7.2.1). - Stellen Sie sicher, dass der TTL-Impuls vom DAQ den Stimulusaufbau korrekt auslöst und der visuelle Reiz wie vorgesehen auf den Projektionsbildschirm übertragen wird.
- Überprüfen Sie, ob der Arduino Uno die Änderung im Schwarz-Weiß-Anzeigequadrat auf dem Computerbildschirm erkennt und einen TTL-Impuls an den DAQ sendet.
HINWEIS: Der Arduino Uno liest die Photodiodenspannung über analogRead(A0) aus. Wenn der gemessene Wert unter eine empirisch bestimmte Schwelle fällt (61 im Bereich von 0–1023 des analogRead in diesem Aufbau), wird der digitale Ausgangspin 5 auf 5 V (TTL high) gesetzt; wenn der Wert wieder über die Schwelle steigt, kehrt der Ausgang auf 0 V zurück. Diese Schwelle ist vom Aufbau abhängig und muss für jeden Bildschirm und jede Umgebungsbeleuchtung neu kalibriert werden. - Bestätigen Sie, dass der Stimulus-Fenster-TTL vom Arduino Uno korrekt in der vom LabVIEW-VI erzeugten .txt-Datei aufgezeichnet wird, zusammen mit dem elektrophysiologischen Kanal und dem digitalen TTL-Kanal des VI.
HINWEIS: Das Signal der Photodiode wird nicht direkt vom DAQ aufgezeichnet, da das rohe Ausgangssignal der Photodiode zu rauschbehaftet ist, um eine zuverlässige Stimulusdetektion am DAQ-Eingang zu gewährleisten. Die Umwandlung in einen sauberen TTL-Impuls durch den Arduino Uno stellt ein zuverlässiges, rauscharmes Zeitsignal sicher. Der Arduino-Sketch zur Überwachung der Photodiode und zur Erzeugung des TTL-Ausgangs ist als ergänzendes Material verfügbar (Ergänzende Datei 1). Die 1-kHz-Aktualisierungsrate des Arduino entspricht der Abtastrate des DAQ, sodass keine Zeitinformation verloren geht. - Nachdem alle Kanäle überprüft wurden, leeren Sie die Aufnahmekammer und entfernen Sie die Elektrode aus der Kammer, um für Abschnitt 4 vorzubereiten.
- Führen Sie das LabVIEW-Virtuelle Instrument (VI) aus (als ergänzendes Material bereitgestellt, Ergänzende Datei 3). Führen Sie das VI während der Systemvalidierung aus. Dadurch wird der TTL-Impuls an die TTL-Maus gesendet, um den Stimulusaufbau auszulösen, und es wird eine .txt-Ausgabedatei erzeugt, die es ermöglicht zu überprüfen, ob alle Kanäle – elektrophysiologisches Signal, LabVIEW-TTL und Arduino-TTL – korrekt erfasst werden, bevor das experimentelle Präparat eingesetzt wird.
4. Lichtkalibrierung und Kontrastbestimmung
HINWEIS: Dieser Abschnitt legt die korrekte optische Konfiguration zur visuellen Stimulation des unteren Linsenauges fest und bestimmt die Bestrahlungsstärken, die für die Kontrastberechnungen erforderlich sind. Ein Opferrhopalium wird für den biologischen Kalibrierungsschritt verwendet. Die Charakterisierung der Bestrahlungsstärke wird ohne jegliche Präparation in der Kammer durchgeführt. Dieser Abschnitt ist zeitaufwendig. Die biologische Kalibrierung, die Bestrahlungscharakterisierung über alle Graustufen hinweg sowie die Kontrastberechnungen können eine eigene Sitzung vor dem Aufnahmetag erfordern. Das für die biologische Kalibrierung verwendete Rhopalium muss nach diesem Abschnitt verworfen werden und kann nicht für die Aufnahmen verwendet werden.
- Biologische Kalibrierung
- Füllen Sie die Aufnahmekammer mit 0,20 µm gefiltertem Meerwasser aus dem Kulturbehälter.
- Isolieren Sie ein Rhopalium und überführen Sie es in die Aufnahmekammer gemäß dem Verfahren, das in Abschnitt 5 beschrieben ist.
- Positionieren Sie das Rhopalium mit der Haltemikropipette an der Kante des Deckglases, sodass es zur Projektionsfläche zeigt (Abbildung 1D).
HINWEIS: Die Positionierung des Rhopaliums an der Kante des Deckglases statt auf dessen Oberfläche erfüllt zwei Zwecke: Erstens kann die Kante des Deckglases in einem festen, reproduzierbaren Abstand zur Projektionsfläche platziert werden, wodurch eine konsistente Arbeitsdistanz über alle Aufnahmen hinweg gewährleistet wird; zweitens muss das untere linsenförmige Auge nicht durch das Glas des Deckglases hindurchsehen, um den Bildschirm wahrzunehmen, wodurch eine winkelbedingte Verzerrung des visuellen Reizes vermieden wird. Der Abstand zwischen der Kante des Deckglases und der Projektionsfläche bestimmt die Winkelgröße aller projizierten Reize am unteren linsenförmigen Auge und muss über alle Aufnahmen hinweg konstant gehalten werden. In der in diesem Protokoll beschriebenen Kammer beträgt dieser Abstand 2 mm. - Befestigen Sie die Aufnahmeelektrode am epidermalen Stielnerv gemäß dem in Schritt 6.1 beschriebenen Verfahren.
- Präsentieren Sie einen Reiz mit maximalem Kontrast (c ≈ 1,0, schwarzer Balken auf weißem Hintergrund), der über die gesamte Breite des Sichtfeldes wandert, und bewerten Sie die Antwort des Schrittmachersignals (Abbildung 1C; Abbildung 5).
HINWEIS: Photometrische Messungen bestätigten einen maximal erreichbaren Kontrast von c ≈ 0,99 zwischen den hellsten und dunkelsten Graustufen des verwendeten Projektionssystems, was auf eine verbleibende Leuchtdichte im Schwarzpunkt des Projektors zurückzuführen ist und keine Einschränkung des Stimulusdesigns darstellt; dies ist die Grundlage für die im gesamten Protokoll verwendete Näherung (c ≈ 1,0) bei Stimuli mit maximalem Kontrast.
HINWEIS: (KRITISCH) Eine zufriedenstellende Antwort besteht in einem deutlichen Anstieg der Frequenz des Schrittmachersignals über 2 Hz, der als kurze, zeitlich synchronisierte Burst-Aktivität auftritt, sobald die Vorderkante des Hindernisses die Mitte des Sichtfeldes erreicht, anstatt über die gesamte Dauer der Stimuluspräsentation anzuhalten, wobei ungefähr 5–15 Schrittmachersignale während dieses Bursts auftreten (Abbildung 5B). Die Stärke der Antwort, sowohl in Bezug auf Frequenz als auch auf Anzahl der Signale, steigt mit dem Stimuluskontrast; die Reaktion auf einen Stimulus mit maximalem Kontrast (c ≈ 1,0) sollte daher so stark wie möglich sein, da dies eine korrekte Ausrichtung des unteren linsenförmigen Auges, eine ordnungsgemäße Elektrodenanbringung und eine kalibrierte Projektion widerspiegelt und sicherstellt, dass ein ausreichender Dynamikbereich zur Unterscheidung von Reaktionen bei niedrigeren Kontraststufen vorhanden ist. Dies bestätigt, dass die Photorezeptoren innerhalb ihres Dynamikbereichs arbeiten und nicht durch übermäßige Bestrahlungsstärke gesättigt sind. Falls trotz einer gesunden Präparation mit spontaner Schrittmacheraktivität von 0,5–1 Hz keine Modulation der Schrittmacherfrequenz beobachtet wird, sollte eine Sättigung der Photorezeptoren durch übermäßige Bestrahlungsstärke vermutet werden. Setzen Sie einen Neutraldichtefilter (z. B. Thorlabs NE01A, optische Dichte = 0,1, je nach Bedarf) in die Linsenanordnung ein und wiederholen Sie die Kalibrierung. Erhöhen Sie die Abschwächung schrittweise, bis eine deutliche Frequenzantwort des Schrittmachers erzielt wird. Alle nachfolgenden Aufnahmen müssen mit dieser Filterkonfiguration durchgeführt werden. - Sobald eine zufriedenstellende biologische Antwort erzielt wurde, notieren Sie die verwendete Neutraldichtefilterkonfiguration. Diese Konfiguration bleibt für alle nachfolgenden Aufnahmen mit diesem optischen Aufbau unverändert.
- Entfernen Sie das Rhopalium aus der Aufnahmekammer und entsorgen Sie es. Das für die biologische Kalibrierung verwendete Rhopalium kann aufgrund der während des Kalibrierverfahrens verstrichenen Zeit nicht für weitere Aufnahmen verwendet werden.
- Charakterisierung der Bestrahlungsstärke
- Leeren Sie die Aufnahmekammer und stellen Sie sicher, dass die Oberfläche der Projektionsfläche trocken ist. Positionieren Sie die Spektrometerfaser direkt auf der Projektionsfläche und senkrecht zu ihr.
HINWEIS: Die meisten optischen Fasern von Spektrometern sind nicht wasserdicht. Die Kammer muss leer und die Oberfläche der Projektionsfläche trocken sein, bevor die Faser aufgesetzt wird. - Beleuchten Sie mit der Präsentationssoftware die Projektionsfläche für jede zu messende Graustufe gleichmäßig und nehmen Sie die Bestrahlungsstärke (350–700 nm) mit dem Spektrometer auf.
HINWEIS: Es wird empfohlen, von der maximalen zur minimalen Graustufe (von Weiß nach Schwarz) vorzugehen, da das Spektrometer bei hohen Bestrahlungsstärken am ehesten überbelichtet wird. An verschiedenen Stellen des Graustufenbereichs kann eine Neukalibrierung der Integrationszeit erforderlich sein, um sowohl Über- als auch Unterbelichtung zu vermeiden. Dieser Vorgang über alle Graustufen hinweg ist zeitaufwändig und sollte entsprechend geplant werden. - Korrigieren Sie jeden gemessenen Wert der Bestrahlungsstärke anhand des Absorptionsspektrums des T. cystophora-Opsins mit einer λmax von 500 nm, das im unteren linsenförmigen Auge vorhanden ist21,22.
HINWEIS: Die Opsinkorrektur erfolgt, indem die gemessene Bestrahlungsstärke bei jeder Wellenlänge mit dem entsprechenden Rezeptanzkoeffizienten aus der Govardovskii-Vorlage für visuelle Pigmente bei einer λmax von 500 nm multipliziert wird21, und anschließend über den gemessenen Wellenlängenbereich summiert wird, um einen einzelnen, opsinkorrigierten Bestrahlungsstärkewert zu erhalten. Diese Berechnung kann in jeder gängigen Tabellenkalkulationssoftware durchgeführt werden, sobald die rohen spektralen Bestrahlungsstärkedaten vorliegen. - Berechnen Sie den Kontrast jeder Graustufe anhand der korrigierten Bestrahlungsstärkewerte:

dabei ist Iw die opsinkorrigierte Bestrahlungsstärke des weißen Hintergrunds und Ig die opsinkorrigierte Bestrahlungsstärke des grauen oder schwarzen Balkens. Die Kontrastwerte reichen von 0 (Balken nicht vom Hintergrund zu unterscheiden) bis 1 (maximaler Kontrast, schwarzer Balken auf weißem Hintergrund). - Bestimmen Sie anhand der berechneten Kontrastwerte die Graustufen, die den für das experimentelle Protokoll erforderlichen Kontraststufen entsprechen. Aktualisieren Sie die Präsentationssoftware mit diesen Graustufen.
HINWEIS: Kontrast ist ein Verhältnis von Bestrahlungsstärkewerten und daher unempfindlich gegenüber gleichmäßigen Änderungen der absoluten Lampenleistung über alle Graustufen hinweg. Die Charakterisierung der Bestrahlungsstärke muss nicht zwischen den Aufnahmesitzungen wiederholt werden, solange die optische Konfiguration unverändert bleibt. Dennoch wird empfohlen, die Stabilität der Bestrahlungsstärke zu überprüfen, falls unerwartete Änderungen der Stimulusantwort über verschiedene Sitzungen hinweg beobachtet werden.
- Leeren Sie die Aufnahmekammer und stellen Sie sicher, dass die Oberfläche der Projektionsfläche trocken ist. Positionieren Sie die Spektrometerfaser direkt auf der Projektionsfläche und senkrecht zu ihr.
<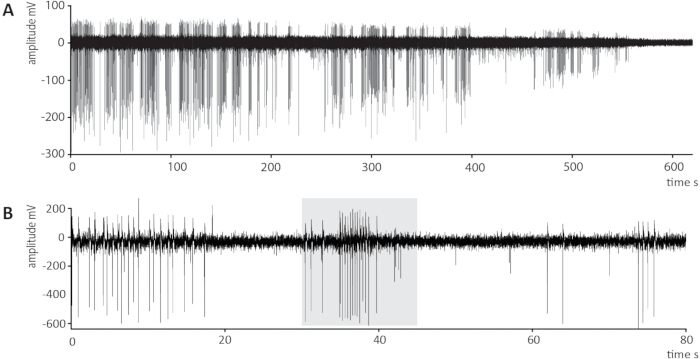
Abbildung 5: Repräsentative extrazelluläre Ableitungen von Schwimmpazemaker-Signalen aus dem isolierten Rhopalium von Tripedalia cystophora. (A) Beispiel für einen fortschreitenden Verlust der Elektrodenabdichtung während einer langen Ableitungsphase. Die Amplitude des Pazemaker-Signals beginnt etwa bei 200–250 s abzunehmen, was auf eine verschlechternde elektrische Kontaktierung zwischen Elektrodenspitze und Nerv des Epidermisstieles hinweist; das Signal geht bis etwa 580–600 s vollständig verloren. Sowohl die Signalamplitude als auch das Hintergrundrauschen nehmen parallel ab, was das charakteristische Muster eines Abdichtungsverlusts darstellt. (B) Repräsentative Aufzeichnung einer visuell hervorgerufenen Ausweichreaktion auf ein Hindernis oberhalb des DTT. Der grau schattierte Bereich markiert das Stimulationsfenster, definiert durch das TTL-Signal des Arduino, während dessen ein vertikaler Balken mit hohem Kontrast (c = 0,80) über die gesamte Breite des visuellen Feldes des unteren Linsenauges bewegt wurde. Die Frequenz des Pazemaker-Signals steigt während des Stimulationsfensters deutlich an, was mit einer visuell hervorgerufenen Ausweichreaktion auf ein Hindernis übereinstimmt, und kehrt nach Beendigung der Reizung zur Basisfrequenz zurück. Spontane Pazemaker-Signale außerhalb des Stimulationsfensters sind zu erwarten und stellen keine visuell hervorgerufenen Reaktionen dar. Beachten Sie, dass der Unterschied in der Skalierung der y-Achse zwischen den Teilabbildungen die unterschiedliche Qualität der Ableitungen widerspiegelt und keinen Rückschluss auf die Signalstärke zulässt; in der extrazellulären Elektrophysiologie hängt die Signalamplitude von der Qualität der Elektrodenabdichtung ab und nicht von der Größe der physiologischen Antwort. Alle Werte sind nach der Verstärkung (×1000). Bitte klicken Sie hier, um eine vergrößerte Darstellung dieser Abbildung anzusehen.
5. Isolation und Übertragung von Rhopalien
HINWEIS: Dieses Verfahren wird jedes Mal durchgeführt, wenn ein Rhopalium benötigt wird: einmal mit einem opferbereiten Rhopalium für die biologische Kalibrierung in Abschnitt 4 und anschließend für jedes experimentelle Rhopalium, das in Abschnitt 6 verwendet wird. Bei jeder Durchführung müssen alle Geräte vollständig zusammengebaut und überprüft werden, bevor das Tier manipuliert wird. Die Anzahl der experimentellen Rhopalien ergibt sich aus dem experimentellen Design.
- Überführen Sie mithilfe einer Einweg-Plastik-Transferpipette, deren Spitze so abgeschnitten wurde, dass eine Öffnung von etwa 8 mm Durchmesser entsteht, ein einzelnes Tier aus dem Kulturgefäß in eine 35 mm große Petrischale, die 0,20 µm gefiltertes Meerwasser aus dem Kulturgefäß enthält.
- Entfernen Sie überschüssiges Meerwasser, bis das Tier flach an die Schale angepresst und unbeweglich ist, jedoch nicht austrocknet.
- Durchtrennen Sie mit feinen Scheren (Vannas-Scheren, Klinge 0,025 mm × 0,015 mm) den Stiel, der das Rhopalium mit der Glocke verbindet, etwa zwei Drittel der Stiellänge ausgehend vom Ansatzpunkt des Rhopals (d. h. distal zum Rhopalium). Unmittelbar nach der Durchtrennung füllen Sie die Petrischale mit 0,20 µm gefiltertem Meerwasser aus dem Kulturgefäß wieder auf.
ACHTUNG: Vannas-Scheren sind äußerst scharf. Gehen Sie während der Dissektion vorsichtig damit um, um Verletzungen zu vermeiden.
HINWEIS: Nach der Durchtrennung kann es vorkommen, dass sich das Rhopalium in die Rhopaliernische zurückzieht. Durch das Auffüllen der Petrischale mit gefiltertem Meerwasser löst sich das Rhopalium in den meisten Fällen. Falls nicht, spülen Sie es vorsichtig mit einer Pasteurpipette heraus.
Überführen Sie das isolierte Rhopalium mithilfe einer Pasteurpipette (150 mm) in die Ableitungskammer für die Elektrophysiologie, die auf dem Mikroskoptisch positioniert ist. (ENTSCHIEDEN WICHTIG) Stellen Sie sicher, dass das Rhopalium während und nach der Übertragung stets vollständig mit Meerwasser bedeckt bleibt. Eine Luftexposition schädigt das Präparat irreversibel. - Bringen Sie das Tier mithilfe einer Transferpipette zurück in das Kulturgefäß.
HINWEIS: Der Verlust eines einzelnen Rhopals beeinträchtigt das normale Verhalten der Quallen nicht signifikant; Tiere, die nur noch ein einziges Rhopal besitzen, zeigen weiterhin normales Fressverhalten und Reaktionen auf Lichtstrahlen. Die Rhopalien regenerieren zudem vollständig, einschließlich Wiederherstellung der Schrittmachersignale und normaler photorezeptiver Antworten, innerhalb von zwei Wochen nach der Entfernung23. Das Tier kann in nachfolgenden Sitzungen erneut verwendet werden, bis keine Rhopalien mehr vorhanden sind. Sobald alle vier Rhopalien entfernt wurden, ist das Tier nicht mehr in der Lage, Schwimm-Schrittmachersignale oder Glockenkontraktionen zu erzeugen, und wird auf humane Weise über die standardmäßige Entsorgung im Laborabfluss entsorgt, analog zur Entsorgung von Rhopaliengewebe (Schritt 6.2.5).
6. Aufnahme
- Positionierung des Rhopaliums und Anbringung der Elektrode
- Füllen Sie die Aufnahmesaugpipette, indem Sie direkt aus der Aufnahmekammer Meerwasser in die Kapillare ziehen, bis die innere Lösung die Hälfte des Silberdrahts erreicht. Füllen Sie die Halte-Mikropipette mit ausreichend Meerwasser aus der Aufnahmekammer, um eine Saftadhäsion an dem Kristall zu ermöglichen.
- Befestigen Sie die Halte-Mikropipette in einem Mikromanipulator. Verbinden Sie die Spitze der Halte-Mikropipette mit dem Calciumsulfat-Kristall (CaSO₄) am distalen Ende des Rhopaliums, indem Sie vorsichtig Saugdruck über eine angeschlossene Luer-Lock-Spritze aufbringen. Der Kristall bietet einen stabilen mechanischen Verankerungspunkt, ohne das Nervengewebe zu beschädigen.
- Positionieren Sie mit Hilfe der Halte-Mikropipette das Rhopalium an der Kante der Deckglasplatte, sodass es auf den Projektionsbildschirm gerichtet ist (Abbildung 1D).
HINWEIS: (KRITISCH) Der Abstand zwischen dem unteren linsenartigen Auge und dem Projektorbildschirm muss gemessen und dokumentiert werden, da er zur Berechnung des Winkelbereichs (Akzeptanzwinkel) projizierter Bildmerkmale am unteren linsenartigen Auge erforderlich ist, unter Verwendung der Formel:
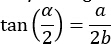
wobei α der Sehwinkel, a die Breite des Bildmerkmals und b der Abstand vom unteren linsenartigen Auge zum Bildschirm ist. Bei einer Arbeitsdistanz von 2 mm überdeckt ein projiziertes Bild von 16 mm × 12 mm (b × h) etwa 150° horizontal und 120° vertikal des 170°-runden Sichtfelds des unteren linsenartigen Auges. Die Arbeitsdistanz muss über alle Aufnahmen hinweg konstant gehalten werden, da jede Abweichung die Winkelberechnungen für die dargebotenen Reize ungültig macht und einen direkten Vergleich zwischen den Aufnahmen verhindert. - Während Sie die Position des Rhopaliums mit der Halte-Mikropipette beibehalten, führen Sie die Aufnahmeelektrode mit einem zweiten Mikromanipulator zur durchtrennten Oberfläche des Stiels hin.
HINWEIS: Der epidermale Stiernerv verläuft entlang der gesamten Länge des Stiels vom Anheftungspunkt des Rhopaliums bis zum Ringnerv15. Auf der durchtrennten Oberfläche sind die Nervenenden des geteilten epidermalen Stiernervs exponiert und auf der adoralen Seite des Stiels – der Seite, die den linsenartigen Augen zugewandt ist – für den Kontakt mit der Elektrode zugänglich (Abbildung 2B). - Wenden Sie vorsichtigen Saugdruck über die Luer-Lock-Spritze an, bis ein stabiles Signal erzielt wird.
HINWEIS: Die Nervenenden sind auf der durchtrennten Oberfläche nicht immer visuell erkennbar. Positionieren Sie die Elektrodenspitze über dem Bereich, in dem der epidermale Stiernerv basierend auf anatomischen Markern erwartet wird, und wenden Sie vorsichtig Saugdruck an. Eine ausreichende Elektrodenanbindung zeigt sich durch das Auftreten großer, klar abgegrenzter Schrittmachersignale mit konsistenter Wellenform bei der erwarteten Frequenz von 0,5–1 Hz (Abbildung 5). Schrittmachersignale unterscheiden sich von aktionspotentialähnlichen Signalen hinsichtlich Dauer und Morphologie der Wellenform (Abbildung 2C,D)13,20,24. Das Auftreten stabiler Schrittmachersignale ist das entscheidende Kriterium für die korrekte Platzierung der Elektrode, nicht die visuelle Bestätigung des Nervenkontakts. Falls kein Signal erfasst wird, lösen Sie den Saugdruck, verschieben die Elektrodenspitze leicht auf der durchtrennten Oberfläche und wenden erneut Saugdruck an. Übermäßiger Saugdruck kann die Spitze mit Gewebetrümmern verstopfen oder das Nervenende mechanisch beschädigen. Ein fortschreitender Verlust der Signalamplitude und zunehmendes Hintergrundrauschen während der Aufnahme deuten auf einen Verlust der Elektrodenabdichtung hin (Abbildung 5A). - Lassen Sie das Präparat nach der Elektrodenanbindung mindestens 10 Minuten akklimatisieren, bevor Sie mit den Aufnahmen beginnen. Während dieser Zeit sollte der Projektorbildschirm mit weißem Hintergrund beleuchtet bleiben und der graue Balken stationär außerhalb des Zentrums, an einer Seite des Sichtfelds, positioniert sein.
HINWEIS: Vor Beginn der Akklimatisation bestätigen Sie die Reaktionsfähigkeit des Präparats durch Darbietung eines einzelnen Reizes mit maximaler Kontraststärke (c ≈ 1,0); Rhopalien, die nicht reagieren, werden aus dem Datensatz ausgeschlossen. Die Akklimatisationsphase ermöglicht es dem Präparat, sich nach der mechanischen Störung durch die Elektrodenanbindung zu stabilisieren. Die Beibehaltung des weißen Bildschirms mit einem stationären Balken stellt sicher, dass die Photorezeptoren an die Grundzustandsbedingungen adaptiert sind, die während der visuellen Reizung vorherrschen werden, und dass die anfängliche Grundfrequenz des Schrittmachers stabil ist, bevor der erste Reiz präsentiert wird. Dies ist ein weiterer praktischer Vorteil der Verwendung von Präsentationssoftware zur Steuerung der Reize. Der Bildschirminhalt während der Akklimatisation und zwischen den Aufnahmen ist direkt sichtbar und vollständig steuerbar, ohne zusätzliche Programmierung. - Sobald ein stabiles Schrittmachersignal erzielt ist, optimieren Sie die Bandpassfiltereinstellungen am extrazellulären Verstärker, um das Signal-Rausch-Verhältnis zu maximieren und die Signalamplitude sowie die Wellenformmorphologie zu erhalten, wobei Sie die Auswirkungen auf der Oszilloskopanzeige überwachen. Verwenden Sie folgende Starteinstellungen: Hochpass 1 Hz und Tiefpass 500 Hz; aktivieren Sie den 50/60 Hz-Notch-Filter (EXT-10-2F integriertes Zusatzmodul). Passen Sie die Einstellungen je nach beobachtetem Signal an.
HINWEIS: Eine Erhöhung der Hochpass-Grenzfrequenz über 1 Hz führt schrittweise zu einer Dämpfung der niederfrequenten Anteile des Schrittmachersignals, wodurch die Amplitude abnimmt und die Signalidentifikation möglicherweise beeinträchtigt wird. Die Zielamplitude des verstärkten Signals für saubere, leicht identifizierbare Schrittmachersignale liegt bei 400–600 mV, maximal etwa 1 V.
- Datenaufnahme
- Konfigurieren Sie die VI (als ergänzendes Material bereitgestellt, Ergänzende Datei 3), um die folgenden Kanäle gleichzeitig über die DAQ mit einer Abtastrate von 1 kHz aufzuzeichnen:
Kanal 1: Elektrophysiologisches Signal (verstärktes und gefiltertes Schrittmachersignal vom EXT-10-2F)
Kanal 2: Vom LabVIEW erzeugtes analoges TTL-Ausgangssignal an die TTL-Maus
Kanal 3: Analoges TTL-Zeitstempel-Signal des Arduino Uno (zeichnet das verifizierte Stimulusfenster auf – Beginn definiert durch Anstieg des TTL-Signals, Ende definiert durch Rückkehr auf niedrig –, wie es durch die Fotodiode erfasst wird, die das schwarze und weiße Indikatorquadrat auf dem Computerbildschirm überwacht).
HINWEIS: Kanal 2 zeichnet den geplanten Zeitpunkt der Reizdarbietung auf, Kanal 3 das verifizierte tatsächliche Stimulusfenster. Kanal 3 sollte für alle Analysen als maßgebliche Aufzeichnung der Stimuluszeitpunkte verwendet werden. - Legen Sie die Aufnahmedauer gemäß dem experimentellen Protokoll fest. Für eine Standardsequenz der Reizdarbietung, bestehend aus einer 30 s dauernden prästimulatorischen Grundlinie, etwa 15 s visueller Stimulation und einer 35 s dauernden poststimulatorischen Phase, setzen Sie die Gesamtaufnahmedauer auf 80 s.
HINWEIS: Dieses Protokoll verwendet typischerweise 10 biologische Wiederholungen (Rhopalien), vorzugsweise aus 10 verschiedenen Tieren, um die Reaktionsstärke zu bewerten, im Einklang mit Bielecki et al. (2023)14. Innerhalb eines einzelnen Präparats erhält das isolierte Rhopalium die gesamte visuelle Reizsequenz, sequenziell von niedrigstem zu höchstem Kontrast; diese Reihenfolge verhindert, dass das Tier sich an das Fehlen einer aversiven Konsequenz bei hohem Kontrast gewöhnt, was sonst die Reaktionsfähigkeit auf anschließend präsentierte Reize mit niedrigerem Kontrast verringern könnte. Aufeinanderfolgende Aufnahmen werden in festen Abständen von 2 Minuten gestartet, was einem Intervall von 105 s zwischen dem Ende einer Stimulusphase und dem Beginn der nächsten entspricht (ausreichend, damit die Schrittmacherfrequenz vor dem nächsten Reiz wieder auf den Grundzustand zurückkehrt). Es werden keine technischen Wiederholungen durchgeführt; jedes Rhopalium erhält innerhalb seiner Stimulussequenz eine einzige Präsentation pro Kontraststufe. - Die LabVIEW-VI (als ergänzendes Material bereitgestellt, Ergänzende Datei 3) gibt automatisch einen TTL-Impuls von der DAQ an die TTL-Maus zum entsprechenden Zeitpunkt innerhalb der Aufnahmesequenz aus, wodurch die Folie weitergeschaltet und der visuelle Reiz gestartet wird. Speichern Sie die erfassten Daten als tabulatorgetrennte .txt-Datei. Bei Verwendung der bereitgestellten VI werden die Aufnahmemetadaten manuell im Dateinamen beim Speichern kodiert.
HINWEIS: Die Nutzer sollten vor Beginn der Aufnahmen eine konsistente Benennungskonvention für Dateien festlegen. Ein Präparat-Identifikator ist ein eindeutiger Code (z. B. eine Tier- oder Sitzungsnummer), der es ermöglicht, eine bestimmte Aufnahme auf das entsprechende Rhopalium und die experimentelle Sitzung zurückzuverfolgen. Das genaue Namensschema bleibt der Entscheidung des Forschers überlassen, solange es systematisch ist und eine eindeutige Rückverfolgung jeder Aufnahme zu ihrem jeweiligen Präparat ermöglicht – beispielsweise könnte ein Dateiname das Aufnahmedatum und -uhrzeit mit den relevanten Stimulusparametern kombinieren (z. B. Kontraststufe, Balkenabmessungen und Geschwindigkeit). - Nach Abschluss aller Aufnahmen für ein bestimmtes Rhopalium entsorgen Sie das Rhopalium-Gewebe über die standardmäßige Laborabflussentsorgung.
HINWEIS: Die Nutzer sollten vor Beginn der Aufnahmen eine konsistente Benennungskonvention für Dateien festlegen. Ein systematischer Dateiname, der Datum, Präparat-Identifikator und Stimulusbedingung enthält, reicht für die nachfolgende Analyse aus. Präsentationssoftware wird gegenüber von LabVIEW erzeugten visuellen Reizen aus zwei praktischen Gründen bevorzugt: Erstens wird dadurch sichergestellt, dass das auf das untere linsenartige Auge projizierte Bild jederzeit bekannt und kontrolliert ist, wodurch unbeabsichtigte visuelle Reize durch Softwareoberflächen oder Systembildschirme vermieden werden; zweitens wird das Risiko von Bildschirmabblenden zwischen den Aufnahmesitzungen eliminiert, was eine Licht-AUS-Reaktion in den Photorezeptoren auslösen und irreführende Schrittmakeraktivität in die nachfolgende Grundlinienphase einführen würde. Die wahrgenommene Winkelgröße und Geschwindigkeit des Balkens variiert aufgrund der Geometrie des linsenartigen Auges nichtlinear über das Sichtfeld. Diese Nichtlinearität wird aus zwei Gründen nicht korrigiert: Erstens nähern sich frei schwimmende Tiere Hindernissen nicht mit konstanter Geschwindigkeit oder Richtung, wodurch eine Winkelkorrektur nur begrenzte natürliche Relevanz hätte; zweitens würde eine Korrektur der Winkelgröße Änderungen der Gesamtbildschirmhelligkeit erfordern, was die Licht-EIN/AUS-Reaktion aktivieren würde, die an der Erkennung von Mangroven-Lichtstrahlen beteiligt ist.
- Konfigurieren Sie die VI (als ergänzendes Material bereitgestellt, Ergänzende Datei 3), um die folgenden Kanäle gleichzeitig über die DAQ mit einer Abtastrate von 1 kHz aufzuzeichnen:
7. Datenauswertung
- Unterscheidung von Schrittmachersignalen in Igor Pro
ANMERKUNG: Schrittmachersignale für das Schwimmen werden von aktionspotenzialähnlichen Signalen in der rohen elektrophysiologischen Spur vor der Frequenzanalyse unterschieden. Beide Signalarten können während der Aufzeichnung gleichzeitig auftreten und müssen vor der Extraktion der Schrittmacher-Timing-Daten voneinander getrennt werden. Repräsentative Beispiele beider Signalarten sowie ihrer charakteristischen Wellenformmerkmale sind in Abbildung 2C,D dargestellt.- Importieren Sie die .txt-Datendatei mithilfe des Neuromatic-Plugins (Version 2.00) in Igor Pro (Version 6.37 oder höher).
- Unterscheiden Sie Schrittmachersignale für das Schwimmen von aktionspotenzialähnlichen Signalen anhand der Signaldauer und der Wellenform-Morphologie.
ANMERKUNG: Schrittmachersignale für das Schwimmen weisen eine charakteristische Dauer von etwa 45 ms sowie eine zusammengesetzte Wellenform auf, die die summierte Aktivität mehrerer Schrittmacherneurone widerspiegelt. Aktionspotenzialähnliche Signale haben eine kürzere Dauer von etwa 10 ms und eine schärfere, einteilige Wellenform. Die Signalamplitude allein ist kein zuverlässiges Unterscheidungskriterium, da beide Signalarten vergleichbare Amplituden erreichen können24 (Abbildung 2C,D). Eine repräsentative Abbildung, die die charakteristischen Wellenformmerkmale von Schrittmachersignalen für das Schwimmen und aktionspotenzialähnlichen Signalen veranschaulicht, ist beigefügt (Abbildung 2C,D). Die Nutzer sollten sich vor der Analyse mit beiden Signalarten vertraut machen, da eine falsche Identifizierung zu Fehlern bei der Schätzung der Schrittmacherfrequenz führen würde. Die Wellenformmerkmale sind innerhalb eines bestimmten Präparats konsistent, können jedoch zwischen verschiedenen Präparaten leicht variieren. Die Unterscheidungskriterien sollten daher für jedes Präparat individuell anhand der oben beschriebenen Wellenformmerkmale als allgemeine Orientierungshilfe – nicht als feste universelle Schwellenwerte – bewertet werden. Bei unklaren oder intermediären Wellenformen, die nicht eindeutig klassifiziert werden können, sollte die Unsicherheit in die dem erwarteten oder hypothetisierten Ergebnis entgegengesetzte Richtung aufgelöst werden – beispielsweise sollte ein unklarer Ereignis ausgeschlossen werden, wenn eine höhere Signalanzahl die getestete Hypothese stützen würde, oder eingeschlossen werden, wenn eine niedrigere Anzahl sie stützen würde – um eine Überschätzung der Ergebnisstärke zu vermeiden. - Extrahieren Sie den Zeitstempel jedes identifizierten Schrittmachersignals für das Schwimmen, um eine Zeitreihe der Schrittmacherereignisse für jede Aufzeichnung zu erhalten, und exportieren Sie diese Zeitstempel (z. B. in eine Tabellenkalkulation oder .csv-Datei) für die nachfolgende statistische Analyse.
- Frequenzanalyse
- Berechnen Sie die Frequenz des Schrittmachersignals als den Kehrwert des Intervalls zwischen aufeinanderfolgenden Signalen über die gesamte Aufzeichnung.
- Beurteilen Sie die Wirkung des visuellen Reizes, indem Sie die Schrittmacherfrequenz während der vorangestellten Basislinienphase (vor dem Reiz), der Stimulusphase und der nachfolgenden Phase (nach dem Reiz) vergleichen. Verwenden Sie dabei die Zeitstempel der Schrittmakersignale, die um die Verzögerung zwischen dem über LabVIEW protokollierten TTL-Befehl (Kanal 2) und dem durch Arduino verifizierten Stimulusbeginn (Kanal 3) korrigiert wurden.
ANMERKUNG: Das untere Linsenauge reagiert auf den Reiz zum Zeitpunkt des verifizierten TTL-Signals, nicht zum Zeitpunkt des softwarebasierten Befehls. Daher wird für jede Aufzeichnung die verifizierte Startzeit zusammen mit den rohen Schrittmacher- und TTL-Zeitstempeln in eine Tabellenkalkulation exportiert (Ergänzende Tabelle 1) und direkt vom SAS-Analyse-Skript verwendet, um jedes Schrittmakersignal in das jeweilige Zeitfenster vor dem Reiz, während des Reizes oder nach dem Reiz einzusortieren (Abbildung 6). Keine Zeitstempelwerte werden in der Tabellenkalkulation verändert. Unter ungestörten Basislinienbedingungen beträgt die Frequenz des Schrittmakersignals 0,5–1 Hz. Visuell ausgelöste Ausweichreaktionen bei Hindernissen oberhalb der DTT zeichnen sich durch eine Erhöhung der Schrittmakerfrequenz auf 2–3 Hz aus. Das physiologische Maximum liegt bei etwa 4 Hz, was einem minimalen Intervall zwischen Signalen von 250–280 ms entspricht25. Da die Basislinienfrequenz des Schrittmakers zwischen verschiedenen Präparaten variiert, werden die Frequenzwerte jeder Aufzeichnung relativ zur eigenen mittleren Frequenz dieses Präparats standardisiert, die aus den Phasen vor und nach dem Stimulus (ohne die Stimulusphase selbst) berechnet wird. Diese Normalisierung ermöglicht es, die Reaktionsstärke unabhängig von Unterschieden in der Basislinienfrequenz des Schrittmakers zwischen verschiedenen Präparaten zu vergleichen. Die vollständigen statistischen Verfahren zur Beurteilung der Signifikanz der Reaktion, einschließlich des nichtlinearen Modells zur Vergleich der Basislinien-, Stimulus- und Nachstimulusphasen, sind bei Bielecki et al. (2023)14 beschrieben; der entsprechende SAS-Analysecode ist verfügbar unter doi: 10.17632/csgymw8kjk.1. Ein repräsentativer Analyseworkflow – von dem Rohsignal über die Signalunterscheidung, Frequenzberechnung und Standardisierung bis hin zur endgültigen Reaktionsmetrik – ist in Abbildung 7 dargestellt.
- Beurteilen Sie die Wirkung des visuellen Reizes, indem Sie die Schrittmacherfrequenz während der vorangestellten Basislinienphase (vor dem Reiz), der Stimulusphase und der nachfolgenden Phase (nach dem Reiz) vergleichen. Verwenden Sie dabei die Zeitstempel der Schrittmakersignale, die um die Verzögerung zwischen dem über LabVIEW protokollierten TTL-Befehl (Kanal 2) und dem durch Arduino verifizierten Stimulusbeginn (Kanal 3) korrigiert wurden.
- Berechnen Sie die Frequenz des Schrittmachersignals als den Kehrwert des Intervalls zwischen aufeinanderfolgenden Signalen über die gesamte Aufzeichnung.
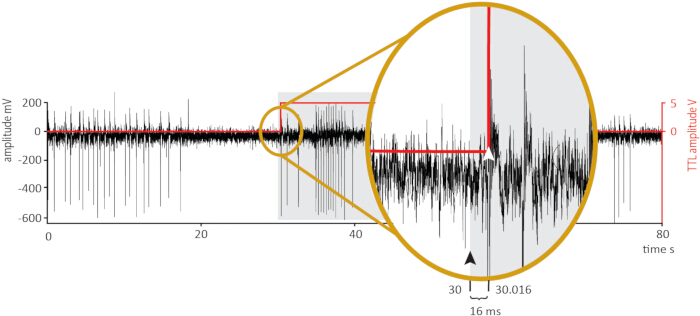
Abbildung 6: Repräsentative Demonstration der Korrektur von Schrittmacher-Zeitstempeln für stimulierte Zeitpunkte. Beispielhafte Aufzeichnung, die die Verzögerung zwischen dem über die VI-Protokollierung erfassten TTL-Befehl und dem über den Arduino verifizierten Stimulusbeginn zeigt, individuell für jede Aufzeichnung über die Arduino/Photodiode-Zeitkette verifiziert und in eine Tabellenkalkulation (Ergänzende Tabelle 1) exportiert, um vom SAS-Analyse-Skript direkt zur Klassifizierung jedes Schrittmacher-Zeitstempels in den prästimulatorischen, stimulatorischen oder poststimulatorischen Zeitraum verwendet zu werden. Schwarze Kurve (linke y-Achse): elektrophysiologisches Signal (mV). Rote Kurve (rechte y-Achse): TTL-Amplitude (V). Der grau schattierte Bereich markiert das nominale Stimulationsfenster, wie es durch den softwarebasierten TTL-Befehl zeitgestempelt wurde. Einlage: vergrößerter Ausschnitt des TTL-Beginns. Die schwarze Pfeilspitze markiert die von LabVIEW protokollierte Zeit des TTL-Versands (t = 30,000 s, Kanal 2); die weiße Pfeilspitze markiert den über die Arduino/Photodiode-Kette detektierten, verifizierten Stimulusbeginn (t = 30,016 s, Kanal 3). Das dargestellte Intervall von 16 ms ist ein repräsentatives Beispiel aus dem im Ergebnisteil angegebenen Bereich von <20 ms für die automatisierte TTL-Maus-Auslösung. Da diese Verzögerung innerhalb einer gegebenen Aufzeichnung konstant ist, wird der entsprechende Offset-Übergang nicht separat dargestellt. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
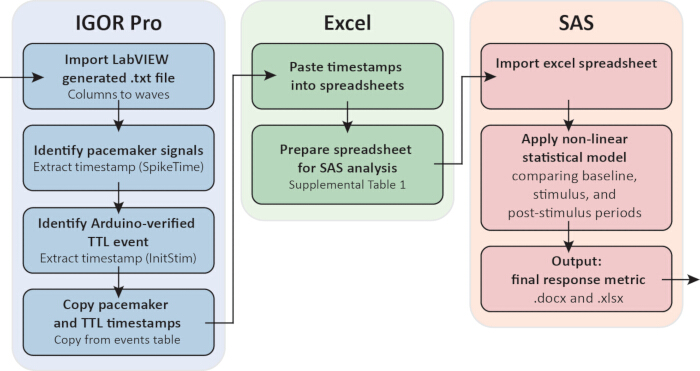
Abbildung 7: Repräsentativer Analyseablauf, von der Rohaufzeichnung bis zur endgültigen Antwortmetrik. Das Pacemaker-Signal und die TTL-Zeitstempel werden aus der Ereignistabelle von Igor Pro/Neuromatic extrahiert: Pacemaker-Signale werden anhand ihrer Dauer und der Wellenform-Morphologie identifiziert (Schritt 7.1.2), und der Arduino-verifizierte Stimulusbeginn (InitStim, Kanal 3) wird für jede Aufzeichnung als absoluter Zeitstempel – nicht als berechnete Verzögerung – extrahiert. Diese Zeitstempel werden in eine Tabellenkalkulation übertragen (Ergänzende Tabelle 1), die für die SAS-Analyse vorbereitet wird, indem für jedes Pacemaker-Signalevent das Zwischen-Spikes-Intervall (Intval) und der mittlere Zeitstempel (MidTime) berechnet werden. SAS importiert die vorbereitete Tabelle und wendet ein nichtlineares statistisches Modell (Bielecki et al., 202314) an, um die Pacemaker-Frequenz in den Phasen vor dem Reiz, während des Reizes und nach dem Reiz miteinander zu vergleichen, klassifiziert relativ zum verifizierten Stimulusbeginn jeder Aufzeichnung, um die endgültige Antwortmetrik auszugeben (.docx-Zusammenfassung, .xlsx-Datentabellen). Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Ergebnisse
Signalqualität und spontane Schrittmacheraktivität
Nach erfolgreicher Befestigung der Elektrode am durchtrennten epidermalen Stielnerv sollten spontane Schrittmachersignale unmittelbar auf dem Oszilloskop sichtbar sein. Eine qualitativ hochwertige Aufzeichnung zeichnet sich durch große, klar aufgelöste Schrittmachersignale mit einer Amplitude von 400–600 mV nach Verstärkung aus, die mit einer stabilen, spontanen Frequenz von 0,5–1 Hz auftreten, bei einer rauscharmen Grundlinie (etwa 10–15 mV Spitzenabweichung auf beiden Seiten von null, was einem Signal-Rausch-Verhältnis von ungefähr 27–40:1 im Zielamplitudenbereich entspricht) (Abbildung 5B). Aufzeichnungen mit Signalamplituden von bis zu 100 mV können analysiert werden, verlängern jedoch die Signaltrennzeit in Igor Pro erheblich und werden insbesondere für unerfahrene Bediener nicht empfohlen. Die zusammengesetzte Wellenform-Morphologie des Schrittmachersignals, die die summierte Aktivität mehrerer trmOC-Neurone widerspiegelt, unterscheidet es von kürzeren, schärferen, aktionspotenzialähnlichen Signalen, die ebenfalls in der Aufzeichnung vorhanden sein können24 (Abbildung 2C,D). Wie in Schritt 7.1 beschrieben, müssen diese beiden Signalarten vor der Analyse anhand der Signaldauer (~45 ms für Schrittmachersignale gegenüber ~10 ms für aktionspotenzialähnliche Signale) und der Wellenform-Morphologie unterschieden werden. Die Amplitude allein ist kein zuverlässiges Unterscheidungskriterium. Die Signalunterscheidung in diesem Protokoll wurde von einer einzigen erfahrenen Person durchgeführt; formale Statistiken zur interraterlichen Zuverlässigkeit wurden daher nicht berechnet (siehe Diskussion, Grenzen).
Visuell hervorgerufene Schrittmacherreaktion
Bei einer gesunden, ansprechenden Präparation erzeugt die Darbietung eines sich bewegenden vertikalen Balkenreizes oberhalb der DTT auf das untere Linsenauge eine klare, zeitlich verriegelte Schrittmacherantwort. Die Frequenz des Schrittmachersignals steigt auf 2–3 Hz an, was mit dem Durchgang der vorderen Kante des Hindernisses über die Mitte des Sichtfeldes zusammenfällt, und kehrt nach Beendigung des Reizes zur Basisfrequenz zurück14 (Abbildung 5B). Die Zeitpunkte des Reizbeginns wurden mithilfe der Arduino/Photodiode-Zeitkette (Schritt 3.3) überprüft, anstatt sich auf den von LabVIEW gemeldeten Zeitstempel zu verlassen. Bei Verwendung der TTL-Maus zur Weiterleitung der Präsentationssoftware beträgt der überprüfte Bereich <20 ms; bei manueller Auslösung (ein Bediener klickt eine unveränderte Maus zum gewünschten Zeitpunkt des Beginns) liegt der überprüfte Bereich bei 100–150 ms. Da die Antwortanalyse den überprüften Beginn (Kanal 3) und nicht den vom Software gemeldeten Trigger (Kanal 2) verwendet, beeinflusst dieser Bereich die Quantifizierung der Antwort unabhängig von der Auslösemethode nicht. Dieser Frequenzanstieg stellt das elektrophysiologische Korrelat des Hindernisvermeidungsverhaltens dar, das bei frei schwimmenden Tieren beobachtet wird, und dessen Vorhandensein bestätigt sowohl die Lebensfähigkeit der Präparation als auch die korrekte optische Ausrichtung des unteren Linsenauges relativ zum Projektionsbildschirm.
Die Amplitude der Schrittmacherantwort wird anhand der momentanen Signalfrequenz bewertet, die als Kehrwert des Zeitintervalls zwischen aufeinanderfolgenden Schrittmacherereignissen berechnet wird. Dieser Ansatz erfordert mindestens zwei aufeinanderfolgende Schrittmachersignale, um einen Frequenzwert zu bestimmen, und bietet somit einen inhärenten Schutz gegen falsch-positive Erkennung einzelner isolierter Signale.
Der Kontrast des bewegten Balkenreizes bestimmt die Größe der hervorgerufenen Antwort. In Bielecki et al. (2023)14 wurden drei Kontraststufen verwendet (c = 0,20, 0,40 und 0,80), die jeweils um eine Blendenzahl voneinander entfernt liegen. Diese spezifischen Kontrastwerte wurden gewählt, um die gesamte Dauer des Protokolls innerhalb des praktikablen Aufzeichnungszeitraums von etwa 1 h zu halten. Forschende, die die Kontrastempfindlichkeitsgrenzen des unteren Linsenauges oder andere spezifische Eigenschaften der visuellen Antwort untersuchen, sollten Kontraststufen wählen, die ihrer experimentellen Fragestellung angemessen sind, anstatt diese Werte verbindlich zu übernehmen.
Suboptimale Aufzeichnungen und Fehlerarten
In der Praxis führen ungefähr 90 % (9 von 10) der Präparationen, die das Akklimatisierungs-Vitalitätskriterium erfüllen (Schritt 6.1.6), zu stabiler spontaner Aktivität und einer messbaren visuell evozierten Antwort; dieser Anteil hängt stark von der Erfahrung des Versuchsleiters ab. Die verbleibenden Präparationen scheitern meist aus einem der folgenden Gründe: Der häufigste Fehler ist der fortschreitende Verlust der Elektrodenabdichtung während der Aufzeichnungssitzung. Dies äußert sich in einer allmählichen Abnahme sowohl der Amplitude des Schrittmachersignals als auch des Hintergrundrauschens, was auf einen sich verschlechternden elektrischen Kontakt zwischen der Elektrodenpitze und dem Nervenende hinweist (Abbildung 5A). Wenn dieses Muster beobachtet wird, sollte der Unterdruck gelöst und nach leichter Neupositionierung der Elektrodenpitze auf der durchtrennten Stielfläche erneut angewendet werden. Wenn sich die Signalamplitude nicht erholt, sollte die Vitalität der Präparation durch Überprüfung der spontanen Schrittmacheraktivität beurteilt werden. Das vollständige Fehlen eines Signals nach erneuten Anheftungsversuchen bei einer Präparation, die bereits über eine Stunde isoliert ist, deutet höchstwahrscheinlich auf eine Verschlechterung der Präparation und nicht auf einen Elektrodenfehler hin, und es sollte eine frische Präparation verwendet werden.
Ein zweiter Fehlermodus ist das Fehlen einer visuell evozierten Antwort trotz stabiler spontaner Schrittmacheraktivität. In diesem Fall sollte die optische Konfiguration überprüft werden, bevor geschlossen wird, dass das Präparat nicht anspricht. Die häufigsten Ursachen sind eine Fehlausrichtung des Auges mit der unteren Linse relativ zum Projektionsschirm und eine Sättigung der Photorezeptoren durch übermäßige Bestrahlungsstärke. Das in Schritt 4.1.5 beschriebene biologische Kalibrierungsverfahren sollte wiederholt werden, gegebenenfalls mit erhöhter Abschwächung durch Neutrale-Dichte-Filter. Es sollte außerdem sichergestellt werden, dass der bewegte Balkenreiz während seiner gesamten Bewegung innerhalb des Sichtfeldes bleibt, da das Verlassen des Reizes aus dem Sichtfeld eine Licht-AUS-Antwort auslösen und irreführende Schrittmacheraktivität in die Aufzeichnung einspeisen würde.
Ein drittes Muster – ein hohes Hintergrundrauschen, das die Schrittmachersignale überlagert – spiegelt am häufigsten ein Erdungsproblem oder Netzstörungen wider. Die in Schritt 3.2.1 beschriebene Stern-Erdungskonfiguration sollte überprüft und der 50/60 Hz-Notch-Filter auf Aktivierung hin kontrolliert werden.
Zusatzdatei 1: Arduino-Skizze. Implementiert die Stimulus-Onset-Erkennung basierend auf einer Fotodiode: Das Arduino Uno liest die Fotodiode aus, überwacht das Schwarz-Weiß-Anzeigefeld auf dem Darstellungsdisplay (Schritt 1.4.2) mit einer Frequenz von 1 kHz, wandelt das rohe analoge Signal durch Schwellwertvergleich in einen sauberen digitalen TTL-Impuls um und gibt diesen Impuls als verifiziertes Stimulus-Timing-Signal aus (Kanal 3, Schritt 6.2.1).Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 2: Beispielhafte Stimulusdatei. Beispielhafte Datei einer Präsentationssoftware (Keynote), die den visuellen Bewegungsstreifen-Stimulus als Animation eines einzigen kontinuierlichen Objekts sowie das schwarz-weiße Zeitüberprüfungs-Anzeigequadrat implementiert (Schritt 1.4). Leser, die ihre eigenen Stimulussequenzen entwerfen, sollten sicherstellen, dass die Darstellung vor jedem Stimulusbeginn über einen ausreichenden Akkommodationszeitraum stabil bleibt; die Rückkopplungsschleife aus Fotodiode und Arduino (Schritt 3.3) überprüft unabhängig von der verwendeten Präsentationssoftware oder Folienstruktur die tatsächliche Stimuluszeit.Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 3: LabVIEW-Virtuelles Instrument (VI). Konfigurieren Sie die NI USB-6343 DAQ mit zwei analogen Eingangskanälen – AI0 (elektrophysiologisches Signal vom Verstärker) und AI1 (Arduino-bestätigtes Stimulus-Onset-TTL, das Photodioden-Rückmeldesignal) – sowie einem analogen Ausgangskanal AO0, der zum programmierten Stimuluszeitpunkt einen TTL-Impuls an die TTL-Maus sendet, um die Präsentationssoftware um eine Folie voranzubringen. Die resultierende .txt-Ausgabedatei enthält drei Spalten: das elektrophysiologische Signal (AI0), den von LabVIEW protokollierten Zeitstempel des AO0-Triggerbefehls (eine Software-Aufzeichnung, kein erneut erfasstes Signal) und das Arduino-bestätigte TTL-Signal (AI1).Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatz-Tabelle 1: SAS-Eingabedateiformat. Spaltendefinitionen und ein ausgearbeitetes Beispiel für die Tabellenkalkulation, die zur statistischen Analyse in SAS hochgeladen wird (Schritt 7.2.1). Vier aufeinanderfolgende Zeitstempel von Reizsignalen aus einer repräsentativen Aufzeichnung veranschaulichen die Berechnung des Zwischenimpulsintervalls (Intval) und des mittleren Zeitstempels (MidTime), die für die Frequenzberechnung verwendet werden; das zuletzt aufgeführte Ereignis weist keinen Intval-/MidTime-Wert auf, da kein nachfolgender Zeitstempel vorhanden ist, um das Intervall abzuschließen.Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Mehrere Schritte in diesem Protokoll sind entscheidend, um zuverlässige Aufnahmen zu erhalten. Am bedeutendsten ist die Herstellung und Vorbereitung der Saugelektrode. Obwohl jede Elektrode, die das Signal-Rausch-Verhältnis optimiert, für standardmäßige visuell evozierte Schrittmacheraufnahmen geeignet ist, wird ein angehefteter Widerstand von etwa 1 MΩ besonders kritisch, wenn die Präparation zur Anlieferung eines elektrischen unkonditionierten Reizes verwendet wird, da er zur Berechnung des applizierten Stroms erforderlich ist14. Für reine Aufzeichnungszwecke ist das primäre Kriterium die Signalqualität und nicht ein bestimmter Widerstandswert.
Ebenso entscheidend ist die biologische Kalibrierung des optischen Systems vor Beginn der Aufnahmen (Schritt 4.1.5). Da die Projektorleistung, die Linsenkonfiguration und die Bildschirmreflexion zusammen die effektive Bestrahlungsstärke am unteren Objektivauge bestimmen, kann kein universell anwendbarer Wert für die Bestrahlungsstärke angegeben werden. Die biologische Kalibrierung (unter Verwendung der Frequenzantwort des Taktgebers auf einen Stimulus mit maximalem Kontrast als Kriterium für den dynamischen Bereich der Photorezeptoren) liefert eine sich selbst validierende, hardwareunabhängige Methode zur Festlegung der geeigneten Stimulusintensität. Dieser Schritt sollte nicht weggelassen werden, da eine Sättigung der Photorezeptoren durch übermäßige Bestrahlungsstärke die visuell hervorgerufenen Taktgeberantworten abschwächen oder unterdrücken kann und fälschlicherweise als nicht ansprechende Präparation interpretiert werden könnte.
Die vollständige Benetzung des Rhopaliums während der Isolierung und des Transfers ist entscheidend. Das rhopaliale Nervensystem ist äußerst empfindlich gegenüber Austrocknung, und bereits eine kurze Luftexposition kann die Probe irreversibel schädigen. Alle Transferschritte sollten stets in Gegenwart von Meerwasser durchgeführt werden, und die Ableitungskammer sollte vor dem Einbringen des Rhopaliums mit 0,20 µm gefiltertem Meerwasser aus dem Kultivierungsbehälter gefüllt sein.
Schließlich erfordert die Platzierung der Elektroden auf der durchtrennten Stieloberfläche Geduld. Die epidermalen Nervenenden des Stiels sind nicht immer visuell erkennbar, und die korrekte Platzierung muss durch das Auftreten spontaner Schrittmachersignale auf dem Oszilloskop bestätigt werden.
Die häufigste Ursache für eine fehlgeschlagene Aufzeichnung ist der Verlust der Elektrodenabdichtung während der Sitzung. Um dieses Risiko zu minimieren, sollten alle Protokolle innerhalb einer Stunde nach der Isolierung des Rhopaliums abgeschlossen sein. Die hier empfohlene einstündige Grenze ist eine konservative, praktische Entscheidung, die der allgemeinen Erwartung Rechnung trägt, dass ein isoliertes neuronales Präparat, das von den übrigen Körperteilen getrennt ist, nicht als unbegrenzt repräsentativ für die intakte physiologische Funktion angesehen werden kann, selbst wenn die Schrittmacheraktivität anhält. Isolierte Rhopalien bleiben in dem Sinne lebensfähig, dass sie nachweisbare Schrittmachersignale erzeugen, deutlich länger als das in diesem Protokoll verwendete Aufzeichnungsfenster, bis zu etwa 5 h nach der Isolierung; es wurde jedoch nicht systematisch untersucht, ob die Antworten, die am Ende dieses Zeitfensters aufgezeichnet werden, weiterhin vollständig repräsentativ für ein intaktes Präparat sind, und die Grenze von 1 h dient daher als konservative Sicherheitsmarge statt als exakt definierter Schwellenwert. Der schrittweise Verlust der Elektrodenabdichtung ist ein separater, leicht erkennbarer technischer Fehlermodus und die häufigste Ursache für den Signalverlust innerhalb einer einzelnen Aufzeichnungssitzung (siehe unten), doch dies schließt nicht aus, dass der Zustand des Präparats zu subtileren zeitabhängigen Veränderungen der Reaktionsfähigkeit beiträgt. Falls ein Abdichtungsverlust während einer Aufzeichnung auftritt, kann der Unterdruck abgeschaltet, die Elektrode auf der durchtrennten Stieloberfläche neu positioniert und der Unterdruck erneut angewendet werden. Wenn das Präparat jedoch bereits länger als eine Stunde isoliert ist, ist es ratsam, ein neues Präparat anzufertigen, anstatt Zeit in die Fehlersuche an einem sich verschlechternden Präparat zu investieren.
Die Filtereinstellungen sollten als Ausgangspunkte und nicht als feste Parameter betrachtet werden. Die in diesem Protokoll angegebenen Bandpassfilterwerte (Tiefpass 1 Hz, Hochpass 500 Hz, 50/60-Hz-Notchfilter) sind diejenigen, die das Signal-Rausch-Verhältnis im Aufnahmeumfeld der Autoren optimieren. Labore mit unterschiedlichen Störpegeln durch elektrische Interferenzen oder mit anderen Verstärkermodellen müssen diese Einstellungen möglicherweise empirisch an den Verstärkereinstellungen vornehmen, während sie zu Beginn jeder Sitzung das Signal auf dem Oszilloskop-Display überwachen.
Wenn nach dem Anbringen der Elektrode keine spontane Schrittmacheraktivität vorliegt, sollte das Präparat beurteilt werden, bevor die Elektrode als Fehlerquelle untersucht wird. Ein gesundes isoliertes Rhopalium zeigt innerhalb weniger Minuten nach dem Anbringen der Elektrode spontane Schrittmachersignale bei 0,5–1 Hz. Das Fehlen spontaner Aktivität spiegelt meist eine Schädigung des Präparats während der Isolation oder des Transfers wider und nicht einen Ausfall der Elektrode. Umgekehrt sollte, falls spontane Aktivität vorhanden ist, aber keine visuell evozierte Antwort erzielt wird, die optische Kalibrierung wiederholt werden, bevor man schlussfolgert, dass das Präparat nicht anspricht.
Für Labore, die dieses Protokoll an andere Hardware anpassen, kann die in Schritt 3.3 beschriebene TTL-Maus- und Arduino Uno-Zeitüberprüfungskette durch jedes System ersetzt werden, das eine hardwarebasierte, softwareunabhängige Aufzeichnung des Stimulationszeitfensters synchron mit der elektrophysiologischen Spur bereitstellt. Die hier beschriebene konkrete Implementierung wurde entwickelt, um die LabVIEW-Aufnahmeeinheit auf einem PC mit der Präsentationssoftware auf einem separaten Computer zu verbinden, und stellt eine praktische ingenieurtechnische Lösung für eine häufig auftretende Herausforderung bei der Integration über Plattformen hinweg dar. Das zugrundeliegende Prinzip, dass Software-Trigger allein für eine präzise Analyse der Stimulus-Reaktions-Zeitpunkte unzureichend sind, gilt unabhängig von der verwendeten spezifischen Hardwareplattform.
Die Hauptbeschränkung der isolierten Rhopalienpräparation besteht darin, dass sie die Aktivität eines einzelnen Rhopaliums in Isolation erfasst. Beim intakten Tier sind die vier Rhopalien über den Ringnerv15 miteinander verbunden, und ihre Ausgangssignale werden integriert, um koordiniertes Schwimmverhalten zu erzeugen. Die Kommunikation zwischen den Rhopalien ist bei dieser Präparation nicht zugänglich. Für die Untersuchung der visuellen Informationsverarbeitung innerhalb eines einzelnen rhopalialen Nervensystems ist diese Isolation jedoch eher ein Vorteil denn ein Nachteil. Sie eliminiert störende Einflüsse von anderen Rhopalien und ermöglicht es, die visuellen Reaktionseigenschaften eines einzelnen RNS vollständig zu charakterisieren.
Die Isolierung des Rhopals schließt auch multimodale sensorische Kontexte außerhalb des Rhopals selbst aus; die anatomisch beschriebenen putativen Chemorezeptoren auf seiner Oberfläche17 wurden bisher nicht funktionell mit der Schrittmacherreaktion verknüpft, sodass das Signal vernünftigerweise als Messgröße für eine weitgehend von nicht-visuellen Eingaben unbeeinträchtigte visuelle Verarbeitung interpretiert werden kann. Eine grundlegendere Einschränkung besteht darin, dass die extrazelluläre Ableitung über den Stielnerv lediglich das integrierte trmOC-Motorausgangssignal erfasst. Einzelne Beiträge der subOC zur visuellen Verarbeitung können elektrophysiologisch nicht aufgelöst werden; hierzu sind räumlich aufgelöste in vivo-Bildgebungsverfahren erforderlich. Die hier beschriebene elektrophysiologische Methode stellt daher eine Messung des endgültig integrierten motorischen Befehls dar, nicht jedoch der Zwischenschritte der Verarbeitung innerhalb des RNS.
Dies hat eine wichtige praktische Konsequenz: Das Protokoll zur Elektrophysiologie isolierter Rhopalien ist keine eigenständige Methode. Es ist unerlässlich, vor der Planung von Experimenten an isolierten Rhopalien eine Verhaltensanalyse am gesamten Tier durchzuführen, um festzustellen, welche visuellen Reize Verhaltensweisen hervorrufen, die die Frequenz der Glockenkontraktion verändern. Verhaltensweisen, die keine Änderung der Schrittmacher-Signalfrequenz bewirken, können mit diesem Ansatz nicht untersucht werden. Der elektrophysiologische Messwert ist spezifisch ein Maß für die Schwimm-Motorik-Ausgabe, und experimentelle Ansätze müssen auf vorherigen verhaltensbezogenen Charakterisierungen basieren, um sicherzustellen, dass die gewählten Reize diese Ausgabe aktivieren.
Erfolg der Aufzeichnung und Signalklassifizierung hängen beide von der Erfahrung des Bedieners ab. Etwa 90 % der Präparationen, die das Kriterium für die Akklimatisierungsüberlebensfähigkeit erfüllen (Schritt 6.1.6), zeigen stabile spontane Aktivität und eine messbare visuell evozierte Antwort, wenn sie von einem erfahrenen Bediener durchgeführt werden; dieser Anteil wird in den frühen Phasen der Lernkurve voraussichtlich niedriger sein. Die Unterscheidung der Signale zwischen Schrittmacher- und Aktionspotential-ähnlichen Signalformen (Schritt 7.1.2) wurde in dieser Studie von einem einzigen erfahrenen Bediener vorgenommen; da eine formale Testung der Interrater-Reliabilität mehrere unabhängige Beobachter erfordert, war es nicht möglich, eine Statistik zur Interrater-Übereinstimmung zu berechnen. Stattdessen wurde die innere Konsistenz dadurch gewahrt, dass zweifelhafte Signalformen mit einem Signal bekannter Identität innerhalb derselben Aufzeichnung verglichen wurden, typischerweise einer evozierten Antwort bei maximaler Kontrastdarbietung.
Die Wahl der Hardware und Software in diesem Protokoll – ein modifiziertes Projektorobjektiv, eine benutzerdefinierte TTL-Maus, die Arduino-Taktkette sowie LabVIEW/Igor Pro/SAS – spiegelt die in den Laboren der Autoren bereits vorhandene Ausrüstung und Expertise wider und stellt keine Voraussetzung der Methode dar. Das Projektorobjektiv wurde modifiziert, da die Standardkonfiguration nicht den Anforderungen des Aufbaus genügte. Die TTL-Maus verbindet den Stimulationsrechner mit dem Erfassungsrechner: LabVIEW sendet einen TTL-Impuls an die Maus und protokolliert die Sendezeit (Kanal 2), und der Mausklick löst über USB den Aufbau des Stimulus aus. Da die Verzögerung zwischen diesem protokollierten Trigger und der tatsächlichen Bildschirmänderung variabel ist, überprüft eine unabhängige Fotodiode/Arduino-Kette den tatsächlichen Stimulusbeginn und leitet einen zweiten TTL-Impuls an das DAQ zurück (Kanal 3); eine kommerzielle Alternative zur Maus könnte existieren, ist den Autoren jedoch nicht bekannt. Für diese Hardware sind weder spezialisierte Fertigungskompetenzen noch hohe Kosten erforderlich, und jedes Ersatzsystem für die Datenerfassung muss lediglich die gleiche Anforderung an synchronisierte Mehrkanal-Sampling mit 1 kHz erfüllen sowie die damit verbundenen elektronischen oder Programmierkenntnisse bereitstellen. Mit einer Ausnahme: Die Anpassung eines geeigneten analogen Verstärkers erfordert Fachkenntnisse in der Konstruktion von geräuscharmen Schaltungen, die nicht als bekannt vorausgesetzt werden.
T. cystophora verbindet die visuelle Komplexität genetisch zugänglicher Systeme wie Drosophila und Zebrafisch mit der Schaltkreis-Ebene Zugänglichkeit numerisch einfacher Systeme wie C. elegans: Das Rhopaliar-Nervensystem umfasst etwa 1000 Neuronen, verglichen mit etwa 200.000 im Drosophila-Gehirn1 und 302 im gesamten Nervensystem von C. elegans2. Ein weiterer Vorteil dieses Systems ist seine sensorische Hierarchie: T. cystophora verfügt über mehrere Sinnesmodalitäten, darunter Mechanorezeption (funktionell in assoziativen Lernprozessen impliziert14) und vermutete Chemorezeption (anatomisch beschrieben, aber nicht funktional nachgewiesen17), zusätzlich zur Sehfunktion. In der isolierten Rhopalium-Präparation wurde jedoch bisher nur die Sehfunktion funktional als Auslöser der durch dieses Protokoll gemessenen Schrittmacherantwort nachgewiesen, wodurch das Signal als vergleichsweise unverfälschter Indikator visueller Informationsverarbeitung interpretiert werden kann, ohne die Interpretationsschwierigkeiten, die entstehen, wenn mehrere gleichzeitig aktive Sinne gemeinsam eine Verhaltensantwort beeinflussen. Visuelle Reize können präzise in Raum, Zeit und Kontrast definiert werden, während das Schrittmachersignal als quantitativer Ersatzwert für die visuell gesteuerte motorische Ausgabe genutzt werden kann, die für das Verhalten des gesamten Organismus relevant ist14.
Neben der visuellen Elektrophysiologie wurde die isolierte Rhopalienpräparation erfolgreich für pharmakologische Untersuchungen des RNS mittels badapplizierter Neurotransmitter- und Neuromodulator-Assays eingesetzt, wodurch die Identifizierung der Transmittersysteme ermöglicht wurde, die die Schrittmacheraktivität modulieren24. Die Präparation eignet sich zudem für Calcium- und Spannungsabbildungsmethoden. Vorläufige, bisher unveröffentlichte Arbeiten im Labor der Autoren unter Verwendung eines zellgängigen Calciumindikators belegen die Durchführbarkeit der Calciumabbildung in dieser Präparation; die Spannungsabbildung wurde bisher nicht getestet. Solche Methoden könnten die Architektur des subOC–trmOC-Netzwerks selbst direkt überprüfen, die derzeit noch ein funktionales Modell darstellt, und würden die räumliche Auflösung bieten, die erforderlich ist, um die Aktivität von subOC und trmOC unabhängig voneinander während visueller Reize zu untersuchen – eine Fähigkeit, die alleinige extrazelluläre Ableitungen nicht bieten können. Zusammen positionieren diese komplementären Ansätze das isolierte Rhopalium von T. cystophora als äußerst gut handhabbare Präparation für systemebenen Untersuchungen der visuellen Informationsverarbeitung und sensorimotorischen Integration in einem Nervensystem definierter und begrenzter Komplexität.
Offenlegungen
Die Autoren geben keine Wettbewerbsinteressen an.
Danksagungen
Die Autoren danken Dan-eric Nilsson für die Nutzung des Rhopalienbildes (Abbildung 1B), der technischen Unterstützung durch Mathias Hoppe, Ingo Klein, Olaf Wendt und Holger Voigt (Christian-Albrechts-Universität zu Kiel) sowie den Mitgliedern der Forschungsgruppe Sensorische Biologie (Universität Kopenhagen) für die Hilfe bei der Pflege der Kulturen. Gefördert durch die Deutsche Forschungsgemeinschaft (DFG, German Research Foundation) – Projekt-ID 567357102 (J.B.)
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 35-mm-Petri-Schale | Nunc | 153066 | Jede äquivalente Petri-Schale geeignet |
| Arduino Uno | Arduino | — | Wandelt Photodiodensignal in TTL für die Überprüfung der Stimulus-Timing; 1-kHz-Aktualisierungsrate |
| Bikonvexlinse f = 30 mm | Linos | G063-022-000 | Ersetzt Herstellerlinse; fokussiert das Bild auf die Projektionswand der Aufnahmekammer |
| Borosilikatglas-Kapillarrohr, 1,16 mm Innendurchmesser × 2,00 mm Außendurchmesser × 80 mm Länge | Science Products | GB200-8P | Zur Herstellung von Saug-Elektroden |
| Einweg-Transferpipette | Sarstedt | 86.1171 | Spitze auf ca. 8 mm Öffnung abgeschnitten für Tiertransfer |
| Elektrodenhalter PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | BNC-Halter mit Sauganschluss; wird mit ca. 0,25 mm dickem Silberdraht geliefert |
| EXT-10-2F Extrazellulärverstärker | NPI Electronic | — | Differenzieller, AC-gekoppelter Verstärker; Kopfverstärker ×10, Hauptverstärker ×100, Gesamtverstärkung ×1000; integrierter Bandpassfilter: Hochpass 1 Hz, Tiefpass 500 Hz; 50/60-Hz-Notchfilter aktiviert; wird mit Kopfverstärkerarm geliefert |
| Deckglas für Hämozytometer 20 mm × 26 mm | Carl Roth | L 189 | Liegt durch negative Auftriebskraft auf den Deckglasstegen; robuster als Standard-Deckgläser |
| Igor Pro 6.37 | WaveMetrics Inc. | Version 6.37 | Lake Oswego, OR, USA; zur Analyse von Schrittmachersignalen |
| LabVIEW 2016 | National Instruments | Version 2016 | Software zur Datenerfassung und Stimulussteuerung; VI als ergänzendes Material beigefügt |
| Luer-Lock-Spritze | — | — | Generisch; jede Standard-Labor-Luer-Lock-Spritze geeignet |
| Mikroförmige MF-2 | Narishige | — | Zum Polieren der Elektrodenspitze (Option A) |
| Mikromanipulator MM33 | Märzhäuser Wetzlar | 00-42-101-0000 (rechts) / 00-42-102-0000 (links) | Manueller Dreiaxen-Manipulator; zwei benötigt (für Haltepipette und Aufnahmeelektrode) |
| Mikropipettenzieher, Flaming/Brown P-1000 | Sutter Instrument | P-1000 | Ziehprogramm: Linie 1×1: Heizung 535, Zug 0, Geschwindigkeit 12, Zeit 200, Druck 600, Rampe 540; Linien 2–4 × 3: Heizung 532, Zug 0, Geschwindigkeit 12, Zeit 100 |
| Neuromatic-Plugin v2.00 | — | Version 2.00 | Für Igor Pro; zur Unterscheidung von Schrittmachersignalen und Extraktion von Zeitstempeln |
| Neutraldichtefilter | Thorlabs | NE10A | 10 % Transmission; Abschwächung muss empirisch durch biologische Kalibrierung überprüft werden (Schritt 4.1) |
| NI USB-6343 DAQ | National Instruments | 781438-01 | 16-Bit-Multifunktions-DAQ; Elektrophysiologie-Aufnahme, TTL-Maus-Stimulusabgabe, Arduino-TTL-Eingang; Abtastrate 1 kHz |
| Optoma ML750 DLP-Projektor | Optoma | ML750 | Herstellersystem der Linse entfernt; durch einzelne bikonvexe Linse f = 30 mm ersetzt |
| Oszilloskop DS1102E | Rigol | DS1102E | Zur Echtzeit-Signalüberwachung während der Elektrodenplatzierung und Filteroptimierung |
| Pasteur-Pipette 150 mm | Carl Roth | 4518 | Für den Transfer von Rhopalien |
| Photodiode BRW21 | OSRAM | BRW21 | Silizium-Photodiode; überwacht schwarzes und weißes Indikatorfeld auf dem Computerbildschirm |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, NC, USA; statistische Analyse der Schrittmacherreaktion; Code verfügbar unter doi: 10.17632/csgymw8kjk.1 |
| Silikon-Schlauch | Erich Eydam KG | 9205000 | Für die Saugverbindung zwischen Elektrodenhalter und Spritze |
| Spritzenfilter Filtropur S, 0,20 µm PES | Sarstedt | 83.1826.001 | Zum Filtrieren von Meerwasser aus dem Kulturgefäß für die Aufnahmekammer und Vorbereitungsschalen |
| Vannas-Scheren | World Precision Instruments | 500086 | 0,025 mm × 0,015 mm Klinge; zur Durchtrennung des Rhopalienstieles |
| WTE var 3185 | Assistent | — | Wasserbad-Temperaturregler |
Referenzen
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.