Integrierte bioinformatische und experimentelle Analysen identifizierten LINC01871 als potenziellen Prädiktor für die Empfindlichkeit gegenüber Cyclin-abhängigen Kinasen 4/6-Inhibitoren und zeigten, dass die Überexpression von LINC01871 die Proliferation von Brustkrebs hemmt und mit einer verminderten NF-κB-Signalübertragung assoziiert ist.
Forschungsartikel
LINC01871-vermittelte Sensitivität gegenüber Cyclin-abhängigen Kinase-4/6-Inhibitoren in menschlichem Brustkrebs
In diesem Artikel
Zusammenfassung
Zusammenfassung
Brustkrebs bleibt die am häufigsten diagnostizierte maligne Erkrankung bei Frauen, und die Resistenz gegenüber Inhibitoren der zyklusabhängigen Kinasen 4 und 6 (CDK4/6) begrenzt die Langzeitwirksamkeit der Therapie. Diese Studie hatte das Ziel, lange nicht-kodierende RNAs (lncRNAs) zu identifizieren, die mit einer vorhergesagten Empfindlichkeit gegenüber CDK4/6-Inhibitoren assoziiert sind, und ihre biologischen Funktionen beim Brustkrebs zu untersuchen. Transkriptomische Daten aus dem Cancer Genome Atlas (TCGA) und Daten zur Arzneimittelempfindlichkeit aus der Genomics of Drug Sensitivity in Cancer 2 (GDSC2)-Datenbank wurden integriert, und die Arzneimittelempfindlichkeit wurde mithilfe des oncoPredict-Algorithmus vorhergesagt. Kandidaten-lncRNAs wurden durch differentielle Expressionsanalyse, gewichtete Gen-ko-Expressionsnetzwerkanalyse, prognostische Analyse und maschinelles Lernen identifiziert. Die biologischen Funktionen von LINC01871 wurden anschließend mittels in-vitro- und in-vivo-Experimenten evaluiert. Es wurden 62 lncRNAs identifiziert, die mit der vorhergesagten Empfindlichkeit gegenüber Ribociclib und Palbociclib assoziiert sind, und sechs zentrale lncRNAs wurden ausgewählt. LINC01871 wies die höchste diskriminierende Leistung für die vorhergesagte Arzneimittelempfindlichkeit auf. Eine Überexpression von LINC01871 war mit einer erhöhten Empfindlichkeit von Brustkrebszellen gegenüber Ribociclib und Palbociclib, einer Hemmung der Zellproliferation, einer Förderung der Apoptose und einer Unterdrückung des NF-κB-Signalwegs (nuclear factor kappa B) assoziiert. Die Einzelzell-Transkriptom-Analyse zeigte einen hohen LINC01871-Expressionsspiegel in T-Zellen und natürlichen Killerzellen (NK-Zellen), während transkriptom-basierte Analysen der Immuninfiltration ergaben, dass ein hoher LINC01871-Expressionsspiegel mit einer verstärkten Immuninfiltration assoziiert ist. Diese Ergebnisse identifizieren LINC01871 als potenziellen Biomarker für die Empfindlichkeit gegenüber CDK4/6-Inhibitoren und belegen seine tumorsuppressiven Effekte beim Brustkrebs. Weitere klinische und mechanistische Studien sind erforderlich, um seinen prädiktiven Wert und therapeutischen Nutzen zu validieren.
Einleitung
Brustkrebs bleibt weltweit eine der Hauptursachen für krebsbedingte Sterblichkeit bei Frauen, trotz kontinuierlicher Fortschritte in der klinischen Behandlung1,2. Die Therapie hat sich schrittweise von der endokrinen Therapie und Chemotherapie hin zu molekular gezielten Ansätzen erweitert3. Unter diesen haben Inhibitoren der cyclinabhängigen Kinasen 4 und 6 (CDK4/6), wie Ribociclib, Palbociclib und Abemaciclib, bei östrogenrezeptor- und/oder progesteronrezeptorpositivem Brustkrebs erhebliche klinische Vorteile gezeigt4,5,6. Dennoch kann eine langfristige Behandlung mit erworbener Resistenz einhergehen, wodurch die Dauer des therapeutischen Nutzens begrenzt wird7.
Die Hemmung von CDK4/6 wirkt hauptsächlich über die Rb–E2F-Zellzyklus-regulatorische Achse. Die Hemmung der CDK4/6–Cyclin-D-Aktivität verringert die Phosphorylierung des Retinoblastom-(Rb)-Proteins, wodurch hypophosphoryliertes Rb die E2F-abhängige Transkription unterdrücken und somit eine Arrestierung in der G1-Phase sowie eine Begrenzung der Tumorzellproliferation fördern kann8. Obwohl mehrere Mechanismen, die zur Resistenz gegen CDK4/6-Hemmer beitragen, bereits charakterisiert wurden, erklären diese die Unterschiede in der Behandlungsreaktion nicht vollständig. Zu diesen Mechanismen zählen die fehlerhafte Aktivierung des Phosphatidylinositol-3-Kinase/Protein-Kinase-B/mammal target of rapamycin-(PI3K/AKT/mTOR)-Signalwegs und eine erhöhte Expression von Cyclin–CDK-Komplexen9,10. Bemerkenswerterweise stellen Komponenten des PI3K/AKT/mTOR-Signalwegs selbst therapeutische Zielstrukturen bei fortgeschrittener Erkrankung dar11. Insgesamt zeigen diese Beobachtungen, dass zusätzliche molekulare Determinanten der Empfindlichkeit gegenüber und der Resistenz gegen CDK4/6-Hemmer noch identifiziert werden müssen. Die klinische Relevanz prädiktiver Biomarker wird durch neuartige, biomarkergeführte Strategien bei HR-positivem metastasiertem Brustkrebs veranschaulicht. Die serielle Analyse zirkulierender Tumor-DNA (ctDNA) kann beispielsweise das Auftreten von ESR1-Mutationen während einer CDK4/6-Hemmer-basierten Therapie nachweisen. Die Studien PADA-1 und SERENA-6 zeigten, dass ein solcher molekularer Nachweis eine frühzeitige Umstellung der endokrinen Therapie ermöglichen kann, während die CDK4/6-Hemmung aufrechterhalten wird12,13. ESR1-Mutationen stellen jedoch nur einen Faktor der therapeutischen Reaktion dar und können nicht alle Fälle von Empfindlichkeit oder Resistenz erklären. Diese Einschränkung gewinnt an klinischer Bedeutung, da Patienten mit HR-positivem/HER2-negativem metastasiertem Brustkrebs, die während einer CDK4/6-Hemmer-basierten Therapie progredient verlaufen, mittlerweile über mehrere nachfolgende therapeutische Optionen verfügen, darunter orale selektive Östrogenrezeptor-Degradierer, PI3K/AKT-Signalweg-Hemmer und Antikörper-Wirkstoff-Konjugate. Die Identifizierung weiterer potenzieller Biomarker, die mit unterschiedlicher Empfindlichkeit gegenüber CDK4/6-Hemmern assoziiert sind, könnte daher helfen, Patienten, die wahrscheinlich von diesen Therapien profitieren, von solchen zu unterscheiden, die möglicherweise eine frühzeitige Anpassung der Behandlung benötigen.
Lange nicht-kodierende RNAs (lncRNAs) sind Transkripte ohne Protein-kodierende Kapazität, die an der Regulation zahlreicher biologischer Prozesse beteiligt sind. Mehrere lncRNAs wurden in Verbindung mit der Krebsprogression und der Behandlungsreaktion gebracht. Bei oralem Plattenepithelkarzinom wurde berichtet, dass LOC100506114 die Proliferation und Migration durch Interaktion mit dem Transkriptionsfaktor RUNX und die anschließende Regulation der Expression downstreamer Gene fördert14. Bei Brustkrebs ist HISLA mit erhöhter Glykolyse und verbesserter Resistenz gegen Apoptose assoziiert15, während LINC02568 durch Regulation von ESR1 und CA12 zur endokrinen Resistenz beiträgt16. Obwohl die Beteiligung von lncRNAs an der Krebsbiologie anerkannt ist, bleibt ihre Beziehung zur CDK4/6-Inhibitor-Resistenz unzureichend charakterisiert. In dieser Studie wurde eine integrierte Strategie aus Multi-Omics- und Machine-Learning-Ansätzen verwendet, um lncRNAs zu identifizieren, die mit der vorhergesagten Empfindlichkeit gegenüber Ribociclib und Palbociclib assoziiert sind, wobei sich LINC01871 als Kandidat herausstellte. Anschließend untersuchten wir die Assoziation von LINC01871 mit der Empfindlichkeit gegenüber beiden Wirkstoffen und bewerteten dessen Auswirkungen auf die Proliferation von Brustkrebszellen mittels in-vitro- und in-vivo-Experimenten.
Protokoll
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Ergebnisse
LINC01871 ist eng mit der Empfindlichkeit gegenüber Ribociclib und Palbociclib assoziiert
Vorhergesagte IC50 -Werte für Ribociclib und Palbociclib wurden für Patienten der TCGA-BRCA-Kohorte anhand von GDSC2-Daten geschätzt und in aufsteigender Reihenfolge angeordnet. Patienten im niedrigsten Quartil der vorhergesagten IC50-Werte wurden der empfindlichen Gruppe zugeordnet, während jene im höchsten Quartil der resistenten Gruppe zugeordnet wurden (Abbildung 1A,B). Der Vergleich dieser Gruppen identifizierte differenziell exprimierte lncRNAs für jedes Medikament (Ergänzende Abbildung 1A,B). Die WGCNA identifizierte zudem lncRNA-Module, die signifikant mit der vorhergesagten Empfindlichkeit gegenüber Ribociclib und Palbociclib assoziiert waren (Abbildung 1C,D; Ergänzende Abbildung 1C,D). Die Integration der vier resultierenden Gen-Sets ergab 62 gemeinsame lncRNAs (Abbildung 1E), von denen 18 in sowohl univariater Cox-Regression als auch Kaplan-Meier-Überlebensanalysen signifikant mit der Prognose assoziiert waren. Anschließend wurde eine LASSO-Regression angewandt, um diesen Satz weiter einzugrenzen, was sechs prognostisch relevante lncRNAs ergab: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 und LINC01871 (Abbildung 1F,G; Ergänzende Abbildung 2A). Ihre Fähigkeit, vorhergesagte Medikamentenresistenz zu unterscheiden, wurde anschließend mittels AUC-Analyse verglichen. Unter den sechs Kandidaten ergab LINC01871 die höchste durchschnittliche AUC für Ribociclib und Palbociclib (Abbildung 1H–J; Ergänzende Abbildung 2B,C).
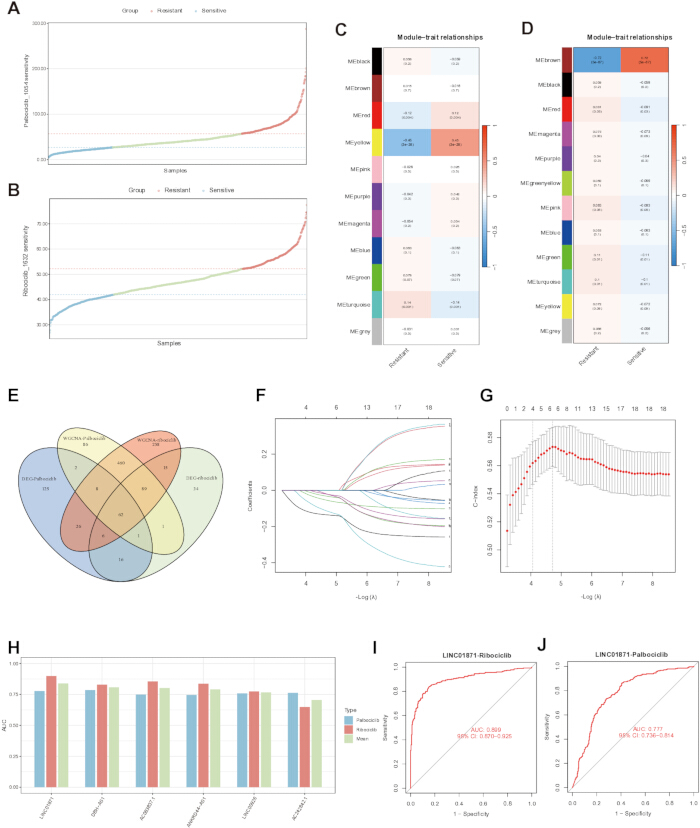
Abbildung 1. Identifizierung langer nicht-kodierender RNAs, die mit der vorhergesagten Empfindlichkeit gegenüber Ribociclib und Palbociclib assoziiert sind.
(A,B) Verteilung der vorhergesagten Werte der halbmaximalen Hemmkonzentration (IC50) für Palbociclib (A) und Ribociclib (B) in der Kohorte des Cancer Genome Atlas für invasives Mammakarzinom (TCGA-BRCA), geschätzt anhand des Datensatzes Genomics of Drug Sensitivity in Cancer 2 (GDSC2). (C,D) Gewichtete Gen-ko-Expressionsnetzwerkanalyse (WGCNA), die Modul-Merkmal-Assoziationen für Palbociclib (C) und Ribociclib (D) zeigt. (E) Venn-Diagramm, das Gene darstellt, die zwischen den differentiell exprimierten Gen-Sätzen und den aus der WGCNA abgeleiteten Gen-Sätzen im Zusammenhang mit den beiden Wirkstoffen gemeinsam sind. (F,G) Regression mit der Least Absolute Shrinkage and Selection Operator-Methode (LASSO) zur Auswahl prognostisch relevanter langer nicht-kodierender RNAs (lncRNAs). (H) Vergleich der Flächen unter der Kurve des Receiver-Operating-Characteristic-Verfahrens (AUC) für die sechs durch LASSO ausgewählten lncRNAs. (I,J) Receiver-Operating-Characteristic-(ROC)-Kurven zur Beurteilung der Fähigkeit von LINC01871, die vorhergesagte Empfindlichkeit gegenüber Ribociclib (I) und Palbociclib (J) zu unterscheiden. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Überexpression von LINC01871 erhöhte die Arzneimittelsensitivität in Brustkrebszellen
In der TCGA-BRCA-Kohorte war eine höhere Expression von LINC01871 mit niedrigeren vorhergesagten IC50-Werten sowohl für Ribociclib als auch für Palbociclib assoziiert (Abbildung 2A,B). Diese Beziehung wurde weiterhin in der klinisch relevanten Untergruppe der hormonrezeptorpositiven und HER2-negativen Patienten (n = 599) untersucht. In dieser Untergruppe waren die vorhergesagten IC50-Werte für beide Wirkstoffe bei Patienten mit hoher LINC01871-Expression signifikant niedriger als bei Patienten mit niedriger Expression. Zudem zeigte die Expression von LINC01871 eine inverse Korrelation zu den vorhergesagten IC50-Werten von Ribociclib und Palbociclib (Ergänzende Abbildung 3A,B). Die computergestützte Assoziation wurde anschließend experimentell überprüft. Zytotoxizitätsassays zeigten eine erhöhte Empfindlichkeit gegenüber beiden Wirkstoffen in Brustkrebszellen mit LINC01871-Überexpression im Vergleich zu Vektor-Kontrollzellen (Abbildung 2C,D). Die Durchflusszytometrie ergab nach Überexpression von LINC01871 einen höheren Anteil an Zellen in der G1-Phase und einen geringeren Anteil in der S-Phase, was mit einer verstärkten Arrestierung in der G1-Phase übereinstimmt (Abbildung 2E). In Koloniebildungsassays reduzierte eine steigende Konzentration entweder von Ribociclib oder Palbociclib die Koloniebildung progressiv (Abbildung 2F,G). Bei äquivalenten Arzneimittelkonzentrationen war die koloniebildende Kapazität in Zellen mit LINC01871-Überexpression signifikant geringer als in Vektor-Kontrollzellen. Die Western-Blot-Analyse zeigte zudem niedrigere Spiegel von CDK4, CDK6 und Cyclin D1 sowie eine verminderte Phosphorylierung von RB in Zellen mit LINC01871-Überexpression (Abbildung 2H). Diese molekularen Veränderungen entsprachen der stärkeren G1-Phasenarrestierung, die nach LINC01871-Überexpression beobachtet wurde.
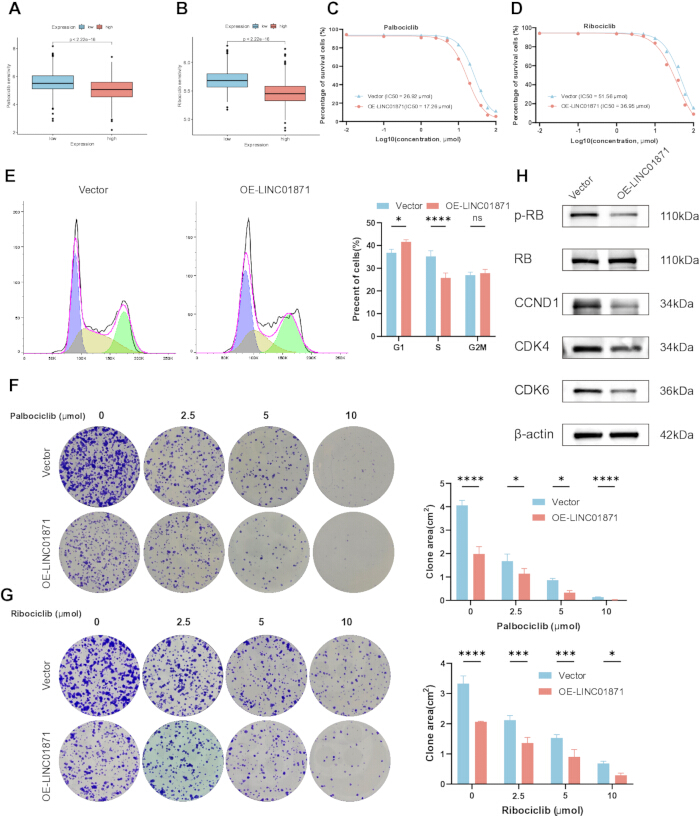
Abbildung 2. Assoziation der Überexpression von LINC01871 mit der Empfindlichkeit gegenüber Inhibitoren der cyclinabhängigen Kinase 4/6 in Brustkrebszellen. (A,B) Vorhergesagte Empfindlichkeit gegenüber Palbociclib (A) und Ribociclib (B) bei niedriger oder hoher Expression von LINC01871. (C,D) Dosis-Wirkungs-Kurven für Palbociclib (C) und Ribociclib (D) in Vektor-Kontrollzellen und LINC01871-überexprimierenden Zellen, wobei die entsprechenden halbmaximalen Hemmkonzentrationen (IC50) in jedem Diagramm angegeben sind. (E) Durchflusszytometrische Analyse der Zellzyklusverteilung in Vektor-Kontrollzellen und LINC01871-überexprimierenden Zellen. (F,G) Koloniebildung nach Behandlung mit steigenden Konzentrationen von Palbociclib (F) und Ribociclib (G). (H) Western-Blot-Analyse der cyclinabhängigen Kinase 4 (CDK4), cyclinabhängigen Kinase 6 (CDK6), Cyclin D1 (CCND1), Retinoblastom-Protein (RB) und phosphoryliertes RB (p-RB), wobei β-Aktin als Ladekontrolle diente. OE-LINC01871, Überexpression von LINC01871; ns, nicht signifikant. Alle Experimente wurden unabhängig jeweils dreifach durchgeführt. Die Daten sind als Mittelwert ± SD dargestellt. Die IC50-Werte wurden mittels nichtlinearer Regression bestimmt. Die Daten zur Zellzyklusverteilung und Koloniebildung wurden mit der zweifaktoriellen ANOVA analysiert. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; ns, nicht signifikant. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Patienten mit hoher LINC01871-Expression wiesen tendenziell günstigere klinische Ergebnisse auf
Die prognostische Assoziation von LINC01871 wurde weiterhin in der TCGA-BRCA-Kohorte untersucht. Kaplan-Meier-Analysen zeigten, dass eine höhere LINC01871-Expression im Allgemeinen mit einer längeren Gesamtüberlebenszeit und einem längeren progressionsfreien Intervall assoziiert war (Abbildung 3A; Ergänzende Abbildung 3C). Der Vergleich von gepaarten und ungepaarten Proben ergab zudem eine signifikant niedrigere LINC01871-Expression in Tumorgeweben im Vergleich zu normalem Gewebe (Abbildung 3B,C). Anschließend untersuchten wir den Zusammenhang zwischen der LINC01871-Expression und klinisch-pathologischen Merkmalen. Eine niedrigere LINC01871-Expression war tendenziell mit einer größeren Tumorausdehnung assoziiert und wurde bei Patienten beobachtet, die als verstorben registriert waren, im Vergleich zu solchen, die als lebend registriert waren (Abbildung 3D,E). Bei Patienten, die eine Strahlentherapie erhalten hatten, zeigte die Subgruppenanalyse zudem signifikant günstigere Überlebensergebnisse bei Personen mit hoher LINC01871-Expression (Ergänzende Abbildung 3D). Anschließend wurde ein prognostischer Nomogramm entwickelt, das die LINC01871-Expression zusammen mit mehreren klinischen Merkmalen berücksichtigt (Ergänzende Abbildung 3E). Die Kalibrationsanalyse zeigte eine enge Übereinstimmung zwischen den vom Nomogramm geschätzten Überlebenswahrscheinlichkeiten und den beobachteten Ergebnissen (Ergänzende Abbildung 3F).
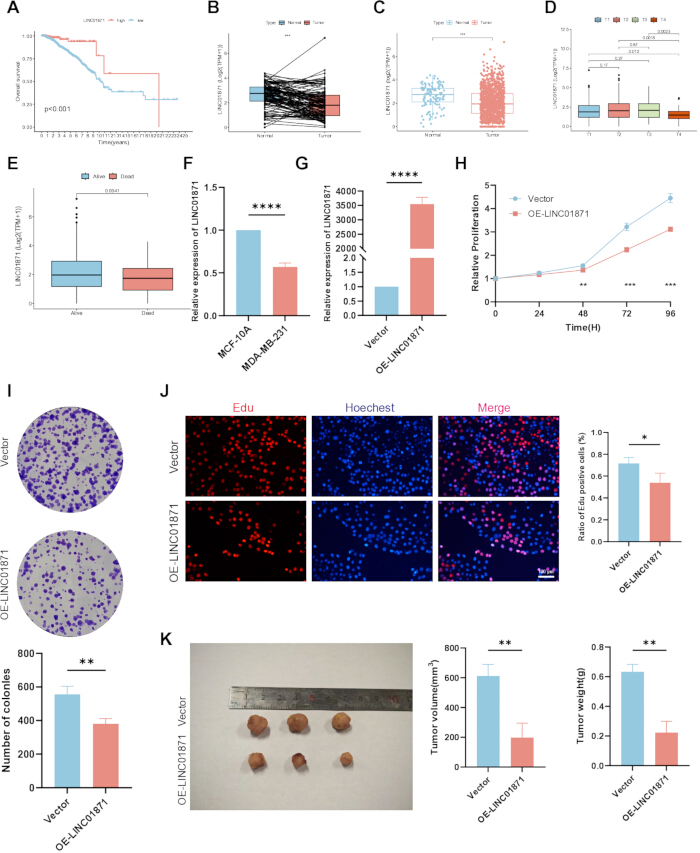
Abbildung 3. LINC01871-Expression, prognostische Assoziationen und Hemmung der Proliferation von Brustkrebs.
(A) Kaplan-Meier-Analyse des Gesamtüberlebens, stratifiziert nach LINC01871-Expression. (B,C) Gepaarte (B) und ungepaarte (C) Analysen zum Vergleich der LINC01871-Expression zwischen normalem und Tumorgewebe. (D,E) LINC01871-Expression in Bezug auf die Tumor-T-Kategorie (D) und den Überlebensstatus (E). (F) Vergleich der relativen LINC01871-Expression zwischen MCF-10A- und MDA-MB-231-Zellen. (G) Bestätigung der LINC01871-Überexpression in MDA-MB-231-Zellen mittels quantitativer reverser Transkriptions-Polymerase-Kettenreaktion. (H–J) Bewertung der Zellproliferation mittels Cell-Counting-Kit-8-(CCK-8)-Assay (H), Koloniebildungsassay (I) und 5-Ethinyl-2′-desoxyuridin-(EdU)-Inkorporationsassay (J). Die Maßstabsleiste im Panel J entspricht 100 μm. (K) Erscheinungsbild, Volumen und Gewicht von Xenotransplantat-Tumoren in der Vektor-Kontrollgruppe und der LINC01871-Überexpressionsgruppe. TPM, Transkripte pro Million; OE-LINC01871, LINC01871-Überexpression. Das Gesamtüberleben wurde mittels Kaplan-Meier-Analyse mit dem Log-Rang-Test bewertet. Gepaarte Vergleiche zwischen Tumor- und Normalgewebe wurden mit dem Wilcoxon-Vorzeichen-Rang-Test durchgeführt. Für die übrigen zweigruppigen Vergleiche wurde nach Prüfung der Normalverteilung mittels Shapiro-Wilk-Test ein ungepaarter t-Test nach Student oder der Mann-Whitney-U-Test ausgewählt. Die CCK-8-Messungen wurden mittels zweifaktorieller Varianzanalyse ausgewertet. Die In-vitro-Experimente umfassten drei unabhängige biologische Wiederholungen, während die Xenotransplantat-Experimente jeweils drei Mäuse pro Gruppe enthielten. Die Daten werden als Mittelwert ± Standardabweichung dargestellt. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; ns, nicht signifikant. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Die Überexpression von LINC01871 unterdrückt die Proliferation von Tumorzellen und ist mit einer verminderten NF-κB-Signalübertragung assoziiert
Die hemmende Wirkung von LINC01871 auf die Proliferation von Tumorzellen wurde weiterhin unter Verwendung von In-vitro- und In-vivo-Modellen untersucht. Die Expression von LINC01871 war in der normalen Brustepithelzelllinie signifikant höher als in der Brustkrebszelllinie (Abbildung 3F). Die erfolgreiche Erstellung des LINC01871-Überexpressionsmodells wurde mittels RT-qPCR bestätigt, das eine deutlich erhöhte Expression von LINC01871 im Vergleich zur Vektor-Kontrollgruppe zeigte (Abbildung 3G). CCK-8-Assays zeigten anschließend eine signifikant verminderte Proliferationskapazität in Zellen mit LINC01871-Überexpression (Abbildung 3H). In Übereinstimmung mit diesem Befund verringerte die Überexpression von LINC01871 die koloniebildende Fähigkeit (Abbildung 3I) und reduzierte den Anteil an EdU-positiven Zellen (Abbildung 3J). Im Xenotransplantatmodell waren Tumore, die aus LINC01871-überexprimierenden Zellen hervorgingen, signifikant kleiner als jene aus Vektor-Kontrollzellen (Abbildung 3K).
Um mögliche Mechanismen, die diesen Effekten zugrunde liegen, zu untersuchen, wurden funktionelle Anreicherungsanalysen mit zwei Gen-Sets durchgeführt: Gene, die sich differentiell zwischen den Gruppen mit hoher und niedriger LINC01871-Expression ausprägten, sowie Gene, die mittels Pearson-Korrelationsanalyse als koexprimiert mit LINC01871 identifiziert wurden. Die GO-Analyse dieser Gen-Sets ergab Assoziationen mit mehreren immunbezogenen Funktionen, darunter T-Zell-Rezeptor-Bindung, Bindung an den Komplex des major histocompatibility complex (MHC)-Proteins, positive Regulation der Leukozytenaktivierung und Aktivität von Immunrezeptoren (Abbildung 4A,C). Ähnlich identifizierte die KEGG-Analyse immunassoziierte Signalwege, darunter die Signalübertragung über den T-Zell-Rezeptor sowie den Signalweg der programmierten Todesliganden-1 (PD-L1)-Expression und des programmierten Zelltodproteins 1 (PD-1)-Checkpoint bei Krebs. Eine Anreicherung zeigte sich zudem für die Janus-Kinase/Signalüberträger und Aktivator der Transkription (JAK-STAT)- und NF-κB-Signalwege (Abbildung 4B,D). Da die NF-κB-Signalübertragung in beiden Anreicherungsanalysen identifiziert wurde, wurde ihre Aktivität mittels Western Blot genauer untersucht. Die Phosphorylierung von P65 war in Zellen mit LINC01871-Überexpression deutlich geringer als in der Kontrollgruppe (Abbildung 4E), ein Befund, der mit einer verminderten Aktivierung des NF-κB-Signalwegs übereinstimmt. Auch der Zusammenhang zwischen LINC01871-Überexpression und Apoptose wurde untersucht. Western Blot-Analysen zeigten eine erhöhte Expression des pro-apoptotischen Proteins Bax und eine verminderte Expression des anti-apoptotischen Proteins Bcl-2 nach LINC01871-Überexpression (Abbildung 4F). Durchflusszytometrie ergab zudem einen signifikant höheren Anteil apoptotischer Zellen in der Gruppe mit LINC01871-Überexpression im Vergleich zur Vektor-Kontrollgruppe (Abbildung 4G).
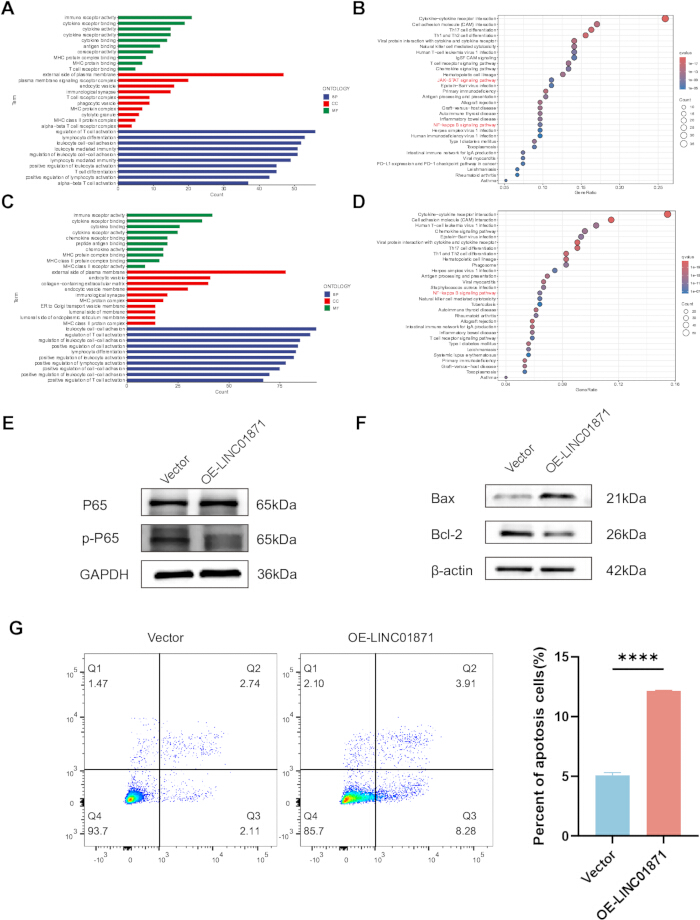
Abbildung 4. Assoziation von LINC01871 mit dem Signalweg des nukleären Faktors kappa B und der Apoptose.
(A,B) Ergebnisse der Anreicherungsanalysen nach Gene Ontology (GO) (A) und der Kyoto Encyclopedia of Genes and Genomes (KEGG) (B) für Gene mit differenzieller Expression zwischen Gruppen mit hoher und niedriger LINC01871-Expression. (C,D) GO (C) und KEGG (D) Anreicherungsanalysen für Gene, die koexprimiert mit LINC01871 sind. (E) Western-Blot-Analyse der Proteine P65 und phosphoryliertes P65 (p-P65) des nukleären Faktors kappa B (NF-κB)-Signalwegs, wobei Glyceraldehyd-3-phosphat-Dehydrogenase (GAPDH) als Ladekontrolle diente. (F) Western-Blot-Analyse der apoptoserelevanten Proteine B-Zell-Lymphom-2 (Bcl-2) und Bcl-2-assoziiertes X-Protein (Bax) unter Verwendung von β-Aktin als Ladekontrolle. (G) Durchflusszytometrische Analyse und Quantifizierung der Apoptose in Vektor-Kontrollzellen und Zellen mit überexprimiertem LINC01871. Alle In-vitro-Experimente umfassten drei unabhängige biologische Wiederholungen. Die gezeigten Western-Blot-Bilder sind repräsentativ für drei unabhängige biologische Experimente. Die Daten werden als Mittelwert ± Standardabweichung (SD) dargestellt. Der Vergleich zwischen Vektor-Kontroll- und LINC01871-überexprimierenden Zellen erfolgte mittels ungepaarten Student’s t-Test oder Mann-Whitney-U-Test nach Prüfung der Normalverteilung mit dem Shapiro-Wilk-Test. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; ns, nicht signifikant. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Pan-Krebs-Analyse von LINC01871
Angesichts der tumorsuppressiven Eigenschaften, die mit LINC01871 beim Brustkrebs assoziiert sind, erweiterten wir die Analyse auf mehrere Krebsarten, um seine Expression und prognostischen Zusammenhänge zu charakterisieren. Eine differentielle Expression von LINC01871 wurde bei mehreren weiteren Malignitäten neben dem Brustkrebs beobachtet (Abbildung 5A). Bei Kolonadenokarzinom (COAD), Nierenzellkarzinom des klaren Zelltyps (KIRC), papillärem Nierenzellkarzinom (KIRP), Plattenepithelkarzinom der Lunge (LUSC) und Schilddrüsenkarzinom (THCA) wurden signifikante Unterschiede zwischen Tumor- und Normalgewebe sowohl bei gepaarten als auch ungepaarten Vergleichen nachgewiesen (Abbildung 5B). Überlebensanalysen identifizierten zudem signifikante prognostische Assoziationen für LINC01871 beim Plattenepithelkarzinom von Kopf und Hals (HNSC), KIRC, niedriggradigem Gliom des Gehirns (LGG), Rektumadenokarzinom (READ), kutanem Melanom der Haut (SKCM), Karzinom des Uteruskörpers (UCEC), Harnblasen-Urothelkarzinom (BLCA), hepatozellulärem Karzinom der Leber (LIHC) und Prostataadenokarzinom (PRAD) (Abbildung 5C–E).
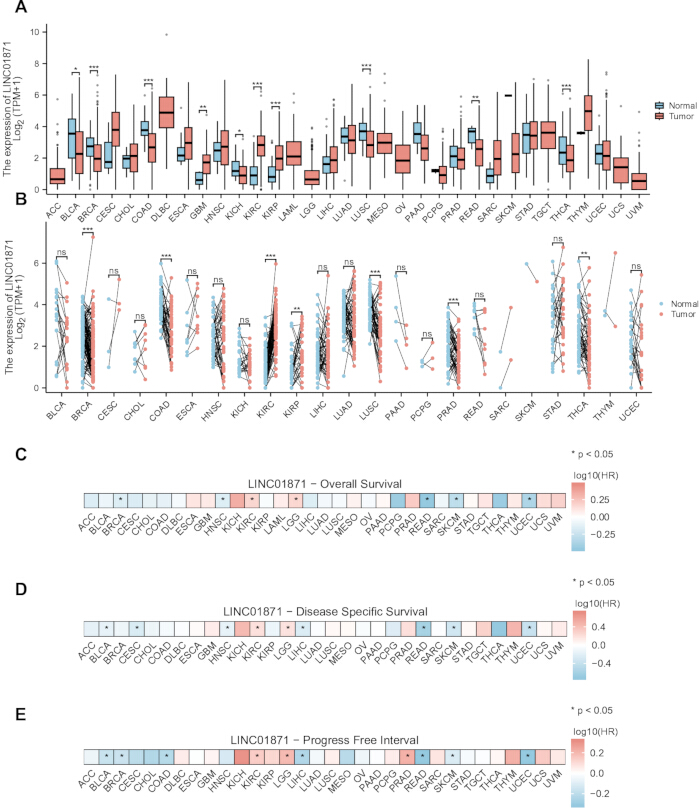
Abbildung 5. Pan-karzinom Expression und prognostische Analysen von LINC01871.
(A,B) Vergleich der LINC01871-Expression zwischen Tumor- und Normalgewebe über mehrere Krebsarten hinweg mittels ungepaarter (A) und gepaarter (B) Analysen. (C–E) Prognostische Assoziationen von LINC01871, dargestellt als logarithmisch transformierte Hazard-Ratios für das Gesamtüberleben (C), das krankheitsspezifische Überleben (D) und das progressionsfreie Intervall (E). HR, Hazard-Ratio; TPM, Transkripte pro Million; ns, nicht signifikant. Die Abkürzungen der Krebsarten basieren auf der Nomenklatur des Cancer Genome Atlas. Ungepaarte Tumor-Normal-Daten wurden mit dem Mann-Whitney-U-Test ausgewertet (A), während gepaarte Tumor-Normal-Daten mit dem Wilcoxon-Test für verbundene Stichproben analysiert wurden (B). Assoziationen mit dem Gesamtüberleben, dem krankheitsspezifischen Überleben und dem progressionsfreien Intervall wurden mittels univariater Cox-Regression mit proportionalen Hazards untersucht (C–E). *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; ns, nicht signifikant. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Korrelation zwischen der Expression von LINC01871 und der Infiltration von Immunzellen
Als Nächstes charakterisierten wir die zelluläre Verteilung von LINC01871 anhand von Einzelzell-RNA-Sequenzierungsdaten aus Brustkrebsproben (GSE161529). Nach der Qualitätskontrolle, Korrektur von Batch-Effekten, Clusterbildung und Zelltyp-Annotierung umfassten die identifizierten Populationen Epithelzellen, CD8⁺-T-Zellen, T-Zellen, Makrophagen, Fibroblasten, natürliche Killerzellen (NK-Zellen) und B-Zellen (Abbildung 6A). Unter diesen Populationen war die Expression von LINC01871 am stärksten in T-Zellen und NK-Zellen ausgeprägt (Abbildung 6B,C). Daher untersuchten wir den Zusammenhang zwischen LINC01871 und der immunologischen Mikroumgebung genauer mithilfe von auf Transkriptomdaten basierenden Infiltrationsschätzungen. Die CIBERSORT-Analyse ergab, dass die Gruppe mit hoher LINC01871-Expression höhere geschätzte Anteile mehrerer Immunpopulationen aufwies, darunter CD8⁺-T-Zellen, NK-Zellen und M1-Makrophagen, sowie niedrigere geschätzte Anteile regulatorischer T-Zellen (Tregs) und M2-Makrophagen (Abbildung 6D). Ebenso waren die nach ESTIMATE berechneten Immunscores bei Proben mit hoher LINC01871-Expression höher (Abbildung 6E). Die Analyse mittels ssGSEA unter Verwendung zuvor publizierter Marker-Gene für Immunzellen zeigte weitgehend übereinstimmende Muster (Abbildung 6F). Die Erweiterung dieser Analyse auf verschiedene Krebstypen zeigte signifikante Korrelationen zwischen der Expression von LINC01871 und der geschätzten Häufigkeit mehrerer Immunzellpopulationen (Abbildung 6G).
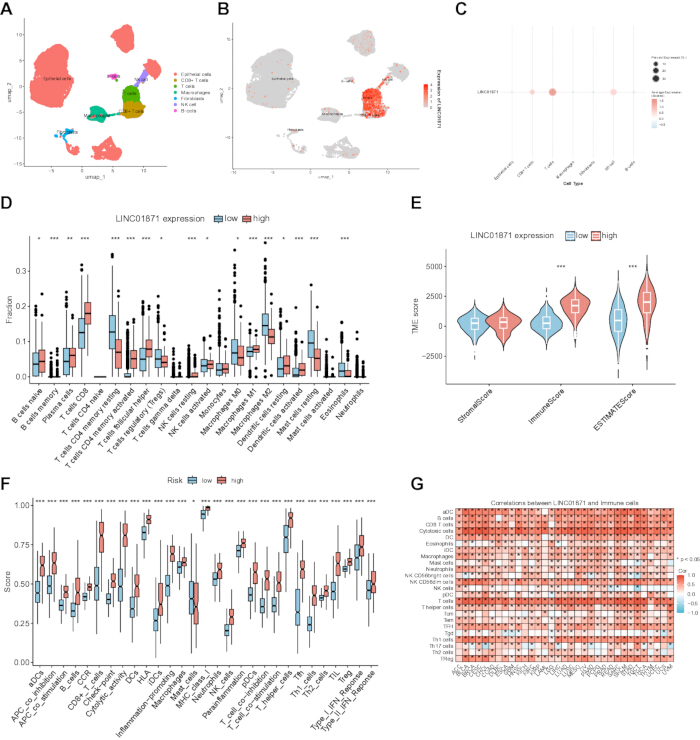
Abbildung 6. Einzelzell-Expressions- und Immuninfiltrationsanalysen von LINC01871.
(A) Uniforme Manifold-Approximation und Projektion (UMAP) zur Darstellung annotierter Zellpopulationen, identifiziert aus Einzelzell-RNA-Sequenzierungsdaten. (B) UMAP-Feature-Plot zur Veranschaulichung der Verteilung der LINC01871-Expression unter den annotierten Zellpopulationen. (C) Punktdiagramm zur Darstellung des Anteils LINC01871-exprimierender Zellen und des skalierten mittleren Expressionswerts für jeden Zelltyp. (D) Relative Anteile von 22 Immunzellpopulationen in den Gruppen mit niedriger und hoher LINC01871-Expression, geschätzt mittels Cell-type Identification by Estimating Relative Subsets of RNA Transcripts (CIBERSORT). (E) Stromale, immunologische und Tumormikroumgebungs-Scores, abgeleitet mittels Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data (ESTIMATE). (F) Immunbezogene Scores, ermittelt durch single-sample Gene Set Enrichment Analysis (ssGSEA) in den Gruppen mit niedriger und hoher LINC01871-Expression. (G) Pan-karzinomatische Assoziationen zwischen LINC01871-Expression und Immunzellinfiltration, geschätzt mittels ssGSEA. NK, natürliche Killerzellen; TME, Tumormikroumgebung. Die Abkürzungen für Krebsarten basieren auf der Nomenklatur des Cancer Genome Atlas. Unterschiede zwischen den Gruppen mit niedriger und hoher LINC01871-Expression wurden mittels Mann-Whitney-U-Test (D–F) bewertet. Pan-karzinomatische Assoziationen zwischen LINC01871-Expression und Immunzellinfiltration wurden mittels Spearman-Korrelationsanalyse (G) bewertet. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; ns, nicht signifikant. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Datenverfügbarkeit:
Die in dieser Studie analysierten Datensätze sind öffentlich über The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) und das Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/) zugänglich. Zu den verwendeten Datensätzen gehören die TCGA-BRCA-Kohorte und GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Abbildung 1–3, Zusatzmaterial enthalten zusätzliche bioinformatische und prognostische Analysen. Tabelle 1, Zusatzmaterial listet die für die quantitative reverse Transkriptions-Polymerase-Kettenreaktion (RT-qPCR) verwendeten Primersequenzen auf, und Tabelle 2, Zusatzmaterial listet die für die Western-Blot-Analyse verwendeten primären und sekundären Antikörper auf. Die für die bioinformatischen und statistischen Analysen verwendeten R-Skripte sind als Zusatzdatei 1 beigefügt.
Abbildung 1 (Zusatzmaterial). Identifizierung differentiell exprimierter Gene und gewichteter Gen-ko-Expressionsnetzwerk-Module, die mit der vorhergesagten Empfindlichkeit gegenüber CDK4/6-Hemmern assoziiert sind.
(A,B) Volcano-Diagramme, die die differentiell exprimierten Gene zwischen der Gruppe mit vorhergesagter Resistenz und der Gruppe mit vorhergesagter Empfindlichkeit für Ribociclib (A) und Palbociclib (B) zeigen. (C,D) Cluster-Dendrogramme, die mittels WGCNA erstellt wurden und die Gen-Clustering- und Modulzuordnung für Ribociclib (C) und Palbociclib (D) darstellen. Differentiell exprimierte Gene wurden als solche definiert, die eine absolute log2-Faltungsänderung von ≥0,5 und einen adjustierten P-Wert von <0,05 aufwiesen. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Abbildung 2 im Zusatzmaterial. Prognostische und prädiktive Leistung von fünf weiteren Kandidaten-lncRNAs.
(A) Kaplan-Meier-Überlebensanalysen von fünf weiteren Kandidaten-lncRNAs, die mittels LASSO-Regression identifiziert wurden. (B,C) ROC-Kurvenanalysen (Receiver Operating Characteristic), die die diagnostische Leistung dieser fünf lncRNAs bei der Vorhersage der Resistenz gegenüber Ribociclib (B) und Palbociclib (C) zeigen. Die entsprechenden Analysen von LINC01871 sind in den Abbildungen 1 und 3 dargestellt. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Abbildung 3. Prognostische Bewertung von LINC01871 beim Mammakarzinom.
(A) Vorhergesagte Werte der halbmaximalen Hemmkonzentration (IC50) für Ribociclib und Palbociclib in den Gruppen mit hoher bzw. niedriger LINC01871-Expression innerhalb der Untergruppe mit hormonrezeptorpositivem/HER2-negativem (HR-positiv/HER2-negativ) Phänotyp. (B) Spearman-Korrelationsanalysen zwischen der Expression von LINC01871 und den vorhergesagten IC50-Werten für Ribociclib und Palbociclib in der HR-positiv/HER2-negativ-Untergruppe. (C) Kaplan-Meier-Überlebensanalyse des progressionsfreien Intervalls (PFI) in Abhängigkeit von der LINC01871-Expression. (D) Kaplan-Meier-Überlebensanalyse von Patientinnen, die eine Strahlentherapie erhalten hatten, stratifiziert nach LINC01871-Expression. (E) Nomogramm zur Integration der LINC01871-Expression und klinisch-pathologischer Merkmale zur Vorhersage des Gesamtüberlebens in der gesamten TCGA-BRCA-Kohorte. (F) Kalibrierungskurven zur Bewertung der Übereinstimmung zwischen vorhergesagten und beobachteten Überlebenswahrscheinlichkeiten des Nomogramms nach 1, 3 und 5 Jahren. Die Vergleiche in Panel A wurden mittels des Mann-Whitney-U-Tests analysiert, und die Korrelationen in Panel B wurden mit der Spearman-Korrelationsanalyse bewertet. IC50, halbmaximale Hemmkonzentration; PFI, progressionsfreies Intervall; HR, Hormonrezeptor; HER2, humaner epidermaler Wachstumsfaktor-Rezeptor 2. *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001; ns, nicht signifikant. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatz-Tabelle 1. Primersequenzen für die quantitative reverse Transkription-PCR (RT-qPCR).
Verwendete Vorwärts- und Rückwärts-Primersequenzen (5′→3′) für die RT-qPCR-Analyse von LINC01871 und des endogenen Referenzgens GAPDH. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzungstabelle 2. Primär- und Sekundärantikörper, die für die Western-Blot-Analyse verwendet wurden.
Primär- und Sekundärantikörper, die für die Western-Blot-Analyse verwendet wurden, einschließlich des Zielproteins oder der Antikörperspezifität, des Anbieters, der Katalognummer, der Wirtsspezies, der Arbeitsverdünnung und des Research Resource Identifier (RRID). Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 1. R-Skripte für bioinformatische und statistische Analysen.
Diese Zusatzdatei enthält die R-Skripte, die zur Erstellung der in dieser Studie präsentierten bioinformatischen Analysen und Abbildungen verwendet wurden, einschließlich der transkriptomischen Analyse, differentiellen Expressionsanalyse, gewichteten Gen-ko-Expressionsnetzwerkanalyse (WGCNA), Regressionsanalyse mit dem Verfahren der kleinsten absoluten Schrumpfung und Auswahl (LASSO), Überlebensanalyse, ROC-Analyse (Receiver Operating Characteristic), Funktionsanreicherungsanalyse, Analyse der Immuninfiltration, Einzelzell-RNA-Sequenzierungsanalyse sowie der Erstellung der Abbildungen. Die einzelnen Skripte entsprechen den Haupt- und Zusatzabbildungen der Publikation. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Das wachsende Verständnis der Krebsbiologie hat zur Identifizierung neuer therapeutischer Zielstrukturen geführt und gezielte Therapien als wichtigen Bestandteil der Krebsbehandlung etabliert17. Die Entwicklung von Behandlungsresistenzen begrenzt jedoch weiterhin ihre langfristige Wirksamkeit. In dieser Studie ermöglichte die Integration von Multi-Omics-Analysen mit maschinellen Lernverfahren die Identifizierung von LINC01871 als Kandidat, der mit einer vorhergesagten Empfindlichkeit gegenüber Ribociclib und Palbociclib assoziiert ist. Experimentelle Analysen zeigten zudem, dass die Überexpression von LINC01871 die Empfindlichkeit gegenüber beiden Wirkstoffen in vitro erhöhte und die Proliferation von Brustkrebszellen in zellbasierten und Xenotransplantat-Modellen hemmte. Diese Effekte gingen mit einer verminderten Aktivität des NF-κB-Signalwegs einher, was auf eine mögliche Beziehung zwischen LINC01871 und diesem Signalweg hindeutet. Diese Beobachtungen könnten für die zunehmende Verwendung von Biomarkern zur Unterstützung therapeutischer Entscheidungen während einer CDK4/6-Inhibitor-basierten Therapie relevant sein. Die Evidenz für LINC01871 unterscheidet sich jedoch erheblich von der für etablierte, biomarkergeführte Ansätze. Beispielsweise wurde die Überwachung von ESR1-Mutationen in zirkulierender Tumor-DNA prospektiv als Strategie zur Anpassung der endokrinen Therapie evaluiert. LINC01871 hingegen bleibt ein Kandidatenbiomarker und sollte bisher nicht als geeignet für klinische Entscheidungsfindung betrachtet werden. Diese Unterscheidung ist besonders wichtig, da die Behandlungsoptionen nach Progress unter einer CDK4/6-Inhibitor-basierten Therapie bei HR-positivem/HER2-negativem metastasiertem Brustkrebs mittlerweile orale selektive Östrogenrezeptor-Degradierer, Inhibitoren des PI3K/AKT-Signalwegs und Antikörper-Wirkstoff-Konjugate umfassen18,19. In diesem sich wandelnden therapeutischen Umfeld könnten Biomarker, die Unterschiede in der Empfindlichkeit gegenüber CDK4/6-Inhibitoren erkennen lassen, potenziell die therapeutische Stratifikation unterstützen. Obwohl unsere Ergebnisse eine Assoziation zwischen LINC01871 und der Empfindlichkeit gegenüber Ribociclib und Palbociclib stützen, basiert die aktuelle Evidenz auf computergestützten Schätzungen der Medikamentenempfindlichkeit sowie auf In-vitro-Experimenten. Daher werden prospektive Kohorten mit dokumentierter Exposition gegenüber CDK4/6-Inhibitoren und klinischen Ergebnissen erforderlich sein, um zu bestimmen, ob LINC01871 einen prädiktiven Wert bei Patienten besitzt.
Der therapeutische Nutzen von CDK4/6-Hemmstoffen bei östrogenrezeptor- und/oder progesteronrezeptorpositivem Brustkrebs wurde in mehreren klinischen Studien nachgewiesen4,5,6. Auch ihre mögliche Anwendung bei triple-negativem Brustkrebs wurde bereits untersucht20,21. So zeigten Yang et al., dass die gleichzeitige Hemmung von CDK4/6 und CDK7 die Proliferation von triple-negativen Brustkrebszellen inhibiert22. Andere Studien identifizierten molekulare Veränderungen, die die Empfindlichkeit gegenüber CDK4/6-Hemmung beeinflussen könnten. Es wurde berichtet, dass die Hemmung von GPX4 die Empfindlichkeit gegenüber Palbociclib sowohl bei östrogenrezeptorpositivem als auch bei triple-negativem Brustkrebs erhöht23, während C9orf142 mit Resistenz gegenüber CDK4/6-Hemmstoffen beim triple-negativen Brustkrebs assoziiert wurde20. Umgekehrt wurde beobachtet, dass die Hemmung von ACAA1 die Empfindlichkeit von Brustkrebszellen gegenüber CDK4/6-Hemmstoffen verstärkt24. Die bisherigen Arbeiten zu molekularen Determinanten der Reaktion auf CDK4/6-Hemmung konzentrierten sich weitgehend auf protein-kodierende Gene, wodurch der Beitrag von lncRNAs weniger gut charakterisiert blieb. Unsere Ergebnisse erweitern diesen Bereich, indem sie LINC01871 als potenzielle nicht-kodierende RNA identifizieren, die mit der Reaktion auf CDK4/6-Hemmstoffe assoziiert ist. Zytotoxizitäts- und Koloniebildungsassays sowie Durchflusszytometrie und Analyse zellzyklusbezogener Proteine zeigten durchgängig, dass die Überexpression von LINC01871 mit einer erhöhten Empfindlichkeit gegenüber Ribociclib und Palbociclib einhergeht. Unabhängige Proliferationsassays und das Xenotransplantatmodell bestätigten zudem eine inhibitorische Wirkung der LINC01871-Überexpression auf das Wachstum von Brustkrebs.
Um Mechanismen zu untersuchen, die diesen Beobachtungen zugrunde liegen könnten, analysierten wir die funktionellen Profile von Genen, die zwischen den Gruppen mit hohem und niedrigem LINC01871 unterschiedlich exprimiert wurden, sowie von Genen, die koexprimiert mit LINC01871 sind. GO- und KEGG-Analysen stellten beide Genmengen in Verbindung mit immunbezogenen Prozessen und der NF-κB-Signalübertragung. Dieser Befund ist im Hinblick auf die Zellzyklusregulation relevant, da bereits berichtet wurde, dass die NF-κB-Signalübertragung die Expression von Cyclin D erhöht und somit die Zellzyklusprogression fördert25,26. Zhou et al. zeigten zudem, dass NF-κB mit dem CDK6-Promotor interagieren und die Transkription von CDK6 anregen kann27. Es wurde ebenfalls über eine Wechselwirkung zwischen NF-κB und dem PI3K/AKT/mTOR-Weg berichtet28, und letzterer ist an der Resistenz gegenüber CDK4/6-Inhibitoren beteiligt11. Insgesamt liefern diese Beobachtungen eine Begründung dafür, die NF-κB-Aktivität im Zusammenhang mit LINC01871 zu untersuchen. In Übereinstimmung mit den Ergebnissen der Anreicherungsanalyse wiesen Zellen mit LINC01871-Überexpression eine geringere Phosphorylierung von P65 auf. Dennoch belegen diese Daten lediglich eine Assoziation und keinen direkten regulatorischen Mechanismus, und es bleibt unklar, wie LINC01871 die NF-κB-Signalübertragung beeinflusst.
Das immunologische Mikromilieu stellt einen weiteren möglichen Faktor für die Reaktion auf CDK4/6-Inhibitoren dar. γδ-T-Zellen beispielsweise wurden beschrieben, die Resistenz über durch CX3CR1⁺ Makrophagen vermittelte Effekte zu fördern29. Luo et al. beobachteten eine stärkere Infiltration durch CD8⁺ T-Zellen und NK-Zellen in Tumoren von Patienten, die zu einem späteren Zeitpunkt eine Resistenz gegen CDK4/6-Inhibitoren entwickelten30. Unsere Einzelzellanalyse zeigte, dass die Expression von LINC01871 in T-Zellen und NK-Zellen stärker ausgeprägt war als in epithelialen Zellen. Komplementäre, transkriptom-basierte Analysen assoziierten eine höhere LINC01871-Expression mit einer stärkeren geschätzten Infiltration von CD8⁺ T-Zellen, M1-Makrophagen und NK-Zellen sowie mit einer geringeren geschätzten Infiltration von M2-Makrophagen und Tregs. CD8⁺ T-Zellen, M1-Makrophagen und NK-Zellen wurden mit antitumoraler Immunaktivität in Verbindung gebracht, während M2-Makrophagen mit tumorfördernden Funktionen assoziiert wurden31,32,33,34. Insgesamt deuten unsere Ergebnisse darauf hin, dass eine höhere LINC01871-Expression mit einem immunaktiveren Tumormikromilieu assoziiert sein könnte. Diese Interpretation bleibt jedoch vorläufig, da die Schätzungen der Immunzellen aus transkriptomischen Profilen abgeleitet und nicht direkt gemessen wurden, und funktionelle Studien erforderlich sein werden, um zu klären, ob LINC01871 eine Rolle bei der Gestaltung des immunologischen Mikromilieus spielt.
Mehrere Einschränkungen sollten bei der Interpretation dieser Ergebnisse berücksichtigt werden. Erstens wurde LINC01871 durch eine integrative Multi-Omics-Analyse identifiziert, bei der die Arzneimittelwirkung rechnerisch abgeleitet und nicht aus Daten von Patienten gewonnen wurde, die CDK4/6-Hemmer erhielten. Obwohl direkte In-vitro-Experimente eine höhere Empfindlichkeit gegenüber Palbociclib und Ribociclib nach Überexpression von LINC01871 zeigten, belegen diese Ergebnisse nicht dessen Vorhersagewert bei Patienten. Unabhängige Kohorten mit dokumentierter Exposition gegenüber CDK4/6-Hemmern und klinischen Ansprechdaten sind daher erforderlich, um LINC01871 als prädiktiven Biomarker zu bewerten. Zweitens wurde die Entdeckungsanalyse ursprünglich an der gesamten TCGA-BRCA-Kohorte durchgeführt, die klinisch heterogene Brustkrebs-Subtypen umfasst. Der Zusammenhang zwischen LINC01871 und vorhergesagter Arzneimittelempfindlichkeit wurde ebenfalls in der Untergruppe der hormonrezeptorpositiven/HER2-negativen Tumoren beobachtet; eine Bestätigung in klinisch behandelten Populationen mit diesem Subtyp bleibt jedoch erforderlich. Drittens beschränkten sich unsere Arzneimittelwirkungsanalysen auf Palbociclib und Ribociclib, da entsprechende Abemaciclib-Wirkungsdaten im für diese Studie verwendeten GDSC2-Datensatz nicht verfügbar waren. Ob die beobachtete Assoziation auch für Abemaciclib gilt, bleibt daher unbekannt. Viertens wurden trotz der tumorunterdrückenden Effekte, die in den zellbasierten und Xenotransplantat-Experimenten beobachtet wurden, die molekulare Verbindung zwischen LINC01871 und NF-κB-Signalgebung noch nicht nachgewiesen. Eine verminderte Phosphorylierung von P65 ging mit der Überexpression von LINC01871 einher, doch der Mechanismus, der für diesen Zusammenhang verantwortlich ist, bedarf weiterer Untersuchung. Ebenso stammen die Beobachtungen im Immunbereich hauptsächlich aus transkriptom-basierten rechnerischen Analysen und sollten als Assoziationen interpretiert werden, nicht als Beleg dafür, dass LINC01871 die tumorassoziierte Immunmikroumgebung direkt reguliert. Schließlich umfasst die Resistenz gegen CDK4/6-Hemmer mehrere biologische Prozesse, und LINC01871 wird kaum die gesamte Komplexität der Behandlungsreaktion erklären können. Weitere Untersuchungen sollten daher kohortenbasierte Analysen nach Subtypen, die Bewertung von Abemaciclib, die experimentelle Validierung der immunbezogenen Assoziationen, mechanistische Studien zum Verhältnis zwischen LINC01871 und NF-κB-Signalgebung sowie eine prospektive klinische Evaluation einbeziehen, um zu klären, ob LINC01871 als prädiktiver Biomarker nützlich ist.
Offenlegungen
Interessenkonflikt:
Die Autoren erklären, dass sie keine konkurrierenden Interessen haben.
Danksagungen
Diese Forschung wurde von der Natural Science Foundation der Provinz Fujian (Zuschussnummer 2022J011056) unterstützt. Die Autoren danken dem Cancer Genome Atlas (TCGA) und dem Gene Expression Omnibus (GEO) für die Bereitstellung der öffentlich zugänglichen Datensätze, die in dieser Studie verwendet wurden.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Einweg-Spritzenkanülen, 25 G | Beyotime | FS802-30pcs | Einweg-Spritzenkanülen zur Verwendung als Mundrettraktor und optional zur Vorlockerung des parodontalen Ligaments |
| 4%ige Paraformaldehydlösung | Solarbio | P1110 | 4%ige Paraformaldehydlösung zur Probeneinbettung |
| 75%iger Ethanol | Ouse Medical Devices Store | N/A | 75%iger medizinischer Ethanol zur Oberflächendesinfektion |
| C57BL/6-Mäuse | Charles River | 213 | Männliche C57BL/6-Mäuse im Alter von 8 Wochen mit einem Gewicht von 22–29 g |
| Carprofen | Solarbio | C5350 | Postoperatives Analgetikum, subkutan in einer Dosis von 5 mg/kg verabreicht |
| Baumwollbäusche | Ouning Medical Devices | N/A | Sterile Baumwollbäusche zur oralen Reinigung und Blutstillung |
| CTAn v1.18.4.0+ | SkyScan | N/A | Software zur Analyse von μCT-Bildern |
| DataViewer v1.5.6.2 | SkyScan | N/A | Software zum Betrachten und Exportieren rekonstruierter μCT-Bilder |
| Fingerschutz | LeSu Office | MEKU-1/2/3B | Fingerschutz zur Daumensicherung während der Extraktion |
| Schaumstoffplatte | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Schaumstoffplatte als Operations- und Fixierungsunterlage |
| Gelpelletfutter | ReadyDietech | J10001 | Postoperatives Futter, das bei Bedarf drei Tage lang auf dem Käfigboden bereitgestellt wird |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Software zur statistischen Analyse und Erstellung von Diagrammen |
| Kopflampe | Bazhou Pengen Protective Equipment Factory | N/A | Kopflampe zur Beleuchtung des Operationsfeldes |
| Wärmematte | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Wärmematte, vorher auf etwa 38 °C vorgewärmt, für die postoperative Erholung |
| Hydroxylapatit-Phantom | QRM | QRM-70127 | Kalibrierphantom zur Umrechnung von CT-Dämpfungswerten in Knochendichte |
| Vergrößerungsgerät | Olympus Corporation | SZX10 | Gerät zur Untersuchung der gezahnten Pinzettenspitzen und des Extraktionssockels unter Vergrößerung |
| OP-Maske | Senlun Medical Devices Specialty Store | N/A | Chirurgische Maske |
| Mikrocomputertomographie-Scanner | Bruker SkyScan | SkyScan 1276 | μCT-Scanner, betrieben bei 80 kV, 500 μA und einer Voxelauflösung von 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Software zur dreidimensionalen Rekonstruktion |
| Natriumpentobarbital | Sigma-Aldrich | P3761 | Natriumpentobarbital als 1%ige anästhetische Lösung |
| Phosphatgepufferte Kochsalzlösung | Solarbio | P1010 | 0,01 M Pulver für phosphatgepufferte Kochsalzlösung, pH 7,2–7,4 |
| PVP-Jod-Lösung (Antiseptikum) | Belkon Pharmacy Flagship Store | N/A | PVP-Jod-Lösung zur Desinfektion des Bauchraums |
| Gummibänder | Foshan Puli Rubber Products Factory | N/A | Gummibänder zur Montage des Mundrettraktors |
| Kochsalzlösung | Thermo Fisher | BR0053G | Kochsalztabletten zur Herstellung der Lösung für die orale Reinigung |
| Standardpelletfutter | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Standardfutter für die Routinehaltung, weichgestellt für die postoperative Fütterung |
| Dampfsterilisator | Institutionelle Einrichtung | N/A | Gerät zur Sterilisation der gezahnten Pinzetten und der Kochsalzlösung |
| Sterile Wattestäbchen | Kangbailai Medical Devices Store | N/A | Einzeln verpackte sterile Wattestäbchen |
| Sterile Handschuhe | Senlun Medical Devices Specialty Store | N/A | Sterile Latexhandschuhe |
| Sterile Vliesstoffe | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Sterile Vliesstoffe zur Abdeckung der Operationsfläche und der Wärmematte |
| Sterile OP-Haube | Senlun Medical Devices Specialty Store | N/A | Sterile chirurgische Haube |
| OP-Kleidung | Senlun Medical Devices Specialty Store | N/A | Reinige OP-Kleidung, die während des Eingriffs getragen wird |
| Klebeband | Thermo Fisher | 15947 | Klebeband zur Fixierung der Mausgliedmaßen |
| Gezahnte ophthalmologische Pinzette | Beyotime | FS229 | Gezahnte ophthalmologische Pinzette als Zahnzange verwendet |
| Veterinär-Ophtalmologische Salbe | Dechra Veterinary Products | 143-16 | Augensalbe, nach der Anästhesie aufgetragen, um eine Austrocknung der Hornhaut zu verhindern |
Referenzen
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.