Dieses Protokoll beschreibt ein Mausmodell für eine durch das Coronavirus-bedingte Lungenschädigung 2019, die durch die kombinierte intranasale Verabreichung von schwerem akutem respiratorischem Syndrom-Coronavirus 2 und Lipopolysaccharid induziert wird. Das Modell ermöglicht die Untersuchung pulmonaler entzündlicher Reaktionen, beeinträchtigter Typ-I-Interferon-Antworten sowie potenzieller therapeutischer Interventionen.
Methodenartikel
Ein Mausmodell der durch das schwere akute respiratorische Syndrom-Coronavirus 2 und Lipopolysaccharid induzierten, mit der Coronavirus-Krankheit 2019 assoziierten Lungenschädigung
33 Aufrufe
⸱
11. September 2026
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Trotz der weiten Verbreitung von Impfungen und antiviralen Therapien verursacht die SARS-CoV-2-Infektion weiterhin erhebliche Morbidität und Mortalität in anfälligen Bevölkerungsgruppen, was die dringende Notwendigkeit zuverlässiger experimenteller Modelle unterstreicht, um die Pathogenese von COVID-19 zu untersuchen, die Wirkmechanismen von Arzneimitteln aufzuklären und potenzielle therapeutische Strategien zu bewerten. Die SARS-CoV-2-Infektion kann schwere Lungenverletzungen hervorrufen, die durch übermäßige entzündliche Reaktionen und beeinträchtigte antivirale Immunität, vermittelt durch Typ-I-Interferone (IFN-I), gekennzeichnet sind; gegenwärtige Tiermodelle sind jedoch begrenzt, was die Nachbildung der dysregulierten immun-entzündlichen Reaktionen betrifft, die mit COVID-19 assoziiert sind. Ein Mausmodell der COVID-19-assoziierten Lungenverletzung, induziert durch SARS-CoV-2 und LPS, wurde entwickelt, um zentrale immunopathologische Merkmale von COVID-19 nachzubilden. Dieses Modell induziert ausgeprägte pathologische Veränderungen im Lungengewebe, einschließlich Infiltration entzündlicher Zellen, Zerstörung der alveolären Struktur und erhöhte Expression proinflammatorischer Zytokine, begleitet von beeinträchtigten IFN-I-Antworten. Diese Studie liefert eine detaillierte Beschreibung der Verfahren, die zur Etablierung des SARS-CoV-2- und LPS-induzierten Mausmodells der Lungenverletzung verwendet wurden, und charakterisiert das Modell systematisch durch Analysen histopathologischer Veränderungen in der Lunge, Viruslast, entzündlicher Zytokine und IFN-I-Spiegel. Dieses Modell bietet eine experimentelle Plattform, um die immun-entzündlichen Mechanismen zu erforschen, die der COVID-19-assoziierten Lungenverletzung zugrunde liegen, sowie die Prozesse, die an der Reparatur des Lungengewebes beteiligt sind, und schafft gleichzeitig eine Grundlage zur Bewertung therapeutischer Strategien, die darauf abzielen, die immun-entzündliche Dysregulation zu mildern und die Wiederherstellung der Lungenfunktion zu fördern.
Einleitung
Seit seinem Auftreten Ende 2019 hat SARS-CoV-2 eine globale Herausforderung für die öffentliche Gesundheit verursacht, und die andauernde virale Evolution stellt weiterhin eine Herausforderung für bestehende Impfstoffe und therapeutische Strategien dar1,2,3. Daher ist eine weitere Untersuchung der mit COVID-19 assoziierten Lungenschädigung unerlässlich, um Krankheitsmechanismen aufzuklären und therapeutische Ansätze voranzubringen.
Eine SARS-CoV-2-Infektion kann schwere Lungenverletzungen verursachen und sich möglicherweise sogar zu einem akuten Atemnotsyndrom (ARDS) und einem Multiorganversagenssyndrom entwickeln4,5. Eine zunehmende Zahl von Belegen deutet darauf hin, dass die Pathogenese der mit COVID-19 assoziierten Lungenverletzung äußerst komplex ist, wobei ein zentrales Merkmal die Fehlregulation der Immun- und Entzündungsreaktionen darstellt6,7,8,9. Einerseits kann die SARS-CoV-2-Infektion eine übermäßige Entzündungsreaktion hervorrufen, die zur massiven Freisetzung proinflammatorischer Zytokine wie Interleukin-6 (IL-6), Interleukin-1β (IL-1β) und Tumornekrosefaktor-α (TNF-α) führt und dadurch einen sogenannten „Zytokinsturm“ auslöst10,11, der als wesentlicher Treiber von Lungenverletzungen und Krankheitsprogression gilt. Andererseits kann SARS-CoV-2 im frühen Stadium der Infektion die Wirt-Antwort durch Typ-I-Interferone (IFN-I) über mehrere Mechanismen unterdrücken, was zu einer beeinträchtigten, durch IFN-I vermittelten antiviralen Immunität führt12,13,14. Demnach wird eine verzögerte Interferonantwort, begleitet von erhöhten Spiegeln proinflammatorischer Zytokine, als charakteristisches Merkmal von COVID-19 angesehen6,15.
Die derzeit verfügbaren Tiermodelle für COVID-19 beruhen weitgehend auf hACE2-transgenen Mäusen, auf Mäusen angepassten Virusstämmen oder anderen Spezies wie Frettchen und nichtmenschlichen Primaten16,17. Konventionelle SARS-CoV-2-Infektionsmodelle bei Mäusen können jedoch häufig die hyperinflammatorischen Merkmale von COVID-19 nicht vollständig nachbilden18,19,20. LPS, ein TLR4-Agonist, löst starke entzündliche Reaktionen aus und wird häufig in Modellen der akuten Lungenschädigung eingesetzt21. Daher wurde das in dieser Studie beschriebene SARS-CoV-2- und LPS-induzierte Modell für Untersuchungen entwickelt, die sich auf die lungenspezifischen Schäden bei COVID-19 konzentrieren, insbesondere auf die Mechanismen, die einer übermäßigen Entzündungsaktivierung und gestörten antiviralen Immunantwort zugrunde liegen. Im Vergleich zu Modellen, die ausschließlich auf SARS-CoV-2 basieren, hebt dieser Ansatz die immuninflammatorischen Merkmale hervor, behält dabei aber den Kontext der Virusinfektion bei. Dieses Modell bietet ein erhebliches Potenzial für die Erforschung immuninflammatorischer Mechanismen, ohne die virale Übertragung oder den vollständigen natürlichen Verlauf der SARS-CoV-2-Infektion abzubilden.
Dieses Protokoll beschreibt die methodische Erstellung eines auf SARS-CoV-2 und LPS basierenden Mausmodells für eine mit COVID-19 assoziierte Lungenverletzung. Angesichts der Einschränkungen bestehender Modelle bei der Nachbildung der mit COVID-19 assoziierten immuninflammatorischen Dysregulation bietet dieser Ansatz eine praktische Plattform zur Untersuchung von Krankheitsmechanismen und zur Bewertung potenzieller therapeutischer Strategien. Das Modell wurde systematisch mittels Lungenhistopathologie, Viruslast, entzündlichen Zytokinen und IFN-I-Antworten evaluiert.
Protokoll
Diese Studie etablierte ein Mausmodell für eine mit COVID-19 assoziierte Lungenschädigung mittels intranasaler Applikation von SARS-CoV-2 und LPS und bietet damit eine stabile und kostengünstige Alternative zu transgenen Mausmodellen. Das experimentelle Protokoll wurde vom Sichuan Center for Disease Control and Prevention genehmigt und erhielt die Tierversuchsethik-Genehmigung [Sichuan CDC (Animal Ethics) Approval No. 005 (2025)]. Alle Verfahren wurden streng gemäß den entsprechenden Leitlinien und Biosicherheitsvorschriften durchgeführt.
Detaillierte Informationen zu den primären Reagenzien und Geräten sind in der Tabelle der Materialien enthalten.
1. Studienprotokoll-Design
- Weisen Sie Mäuse der Stammeslinie BALB/c zufällig der Kontrollgruppe oder der Modellgruppe zu.
- Verabreichen Sie SARS-CoV-2 am Tag 0 intranasal an die Mäuse der Modellgruppe.
- Verabreichen Sie LPS am Tag 2 intranasal an die Mäuse der Modellgruppe.
- Verabreichen Sie ein gleiches Volumen an physiologischer Kochsalzlösung zu den entsprechenden Zeitpunkten intranasal an die Kontrollmäuse.
- Töten Sie alle Mäuse am Tag 3 nach der SARS-CoV-2-Infektion und entnehmen Sie das Lungengewebe zur Validierung des Modells.
HINWEIS: Der experimentelle Arbeitsablauf ist in Abbildung 1A dargestellt.
2. Vorbereitung
- Tierpräparation
- Verwenden Sie spezifisch pathogenfreie (SPF) weibliche BALB/c-Mäuse im Alter von 6–8 Monaten mit einem Gewicht von etwa 25–30 g.
- Weisen Sie die Mäuse mithilfe einer Zufallszahltabelle zufällig einer Kontrollgruppe oder einer Modellgruppe zu, wobei jeweils vier Tiere pro Gruppe verwendet werden.
- Halten Sie die Mäuse unter standardisierten Laborbedingungen mit freiem Zugang zu Futter und Wasser.
HINWEIS: Frühere Studien haben gezeigt, dass ältere Mäuse anfälliger für eine intranasale SARS-CoV-2-Infektion sind als jüngere Mäuse18,22. Daher wurden in dieser Studie ältere BALB/c-Mäuse ausgewählt, um die Erstellung eines SARS-CoV-2-assoziierten Lungenverletzungsmodells zu erleichtern. - Inokulieren Sie jedes Maus intranasal mit 100 µL viraler Suspension, was einer endgültigen infektiösen Dosis von 4,5 × 10⁵ TCID₅₀ pro Maus entspricht.
HINWEIS: SARS-CoV-2 wurde vom Sichuan Center for Disease Control and Prevention bereitgestellt. Der in dieser Studie verwendete Stamm war die SARS-CoV-2-Omicron-Variante mit einer Virusstammtiter von 4,5 × 10⁶ TCID₅₀/mL.
ACHTUNG: Da SARS-CoV-2 ein hochpathogenes Mikroorganismus ist, müssen alle virusbezogenen Arbeiten in einer Einrichtung der tierischen Biosicherheitsstufe 3 (ABSL-3) durchgeführt werden. Optimieren Sie die infektiöse Dosis anhand vorläufiger Experimente, wenn unterschiedliche Virusvarianten oder Tiermodelle verwendet werden.
- Herstellung der Arbeitslösung
- Herstellung der LPS-Stammlösung: Wiegen Sie 3 mg LPS-Pulver ab und lösen Sie es in 1 mL physiologischer Kochsalzlösung auf. Mischen Sie vorsichtig oder setzen Sie einen kontinuierlichen Vortex ein, bis die Substanz vollständig gelöst ist, um eine Stammlösung mit einer Konzentration von 3 mg/mL zu erhalten. Verdünnen Sie die Stammlösung vor der Applikation entsprechend dem Körpergewicht der Mäuse mit physiologischer Kochsalzlösung auf die gewünschte Arbeitskonzentration.
- Herstellung der Anästhetikalösung: Lösen Sie das Pulver mit dem im Zoletil-Set enthaltenen sterilen Wasser für die Injektion auf, um eine Lösung im erforderlichen Massen-Volumen-Verhältnis für die spätere Verwendung herzustellen.
- Herstellung der viralen Arbeitslösung: Tauchen Sie 1 mL SARS-CoV-2-Virussuspension vor der Verwendung langsam im Eis in einem Sicherheitswerkbank auf.
HINWEIS: Befolgen Sie die jeweiligen Herstelleranweisungen bei der Herstellung und Anwendung aller Arbeitslösungen.
3. Intranasale Verabreichung bei Mäusen
- Wiegen Sie jede Maus vor der Verabreichung und notieren Sie das Körpergewicht.
- Berechnen Sie die Dosen von Zoletil und LPS basierend auf dem Körpergewicht jeder Maus.
- Bereiten Sie die entsprechenden Arbeitslösungen vor und entnehmen Sie die erforderlichen Volumina mit einer geeigneten Spritze für die anschließende Verabreichung.
- Fixierung der Maus: Fassen Sie die Maus vorsichtig am Nackenfell mit Daumen und Zeigefinger der linken Hand, wobei Sie die Haut hinter den Ohren und am Hals halten.
- Legen Sie das Tier in die Handfläche und sichern Sie Rücken und Schwanz mit Ringfinger und kleinem Finger. Positionieren Sie die Maus in Rückenlage, sodass der Bauch vollständig freiliegt und der Körper stabilisiert ist.
- Desinfektion: Desinfizieren Sie die Injektionsstelle am Bauch mit 75 %igem Ethanol unter Verwendung eines sterilen Tupfers.
- Anästhesie: Führen Sie die Nadel der Spritze, die Zoletil (25 mg/kg) enthält, etwa 0,5 cm seitlich zur Mittellinie im unteren Bauchbereich ein. Stossen Sie die Nadel in einem Winkel von 45° etwa 2–3 mm tief in die Bauchhöhle vor, nachdem die Haut durchdrungen wurde. Ziehen Sie leicht an, um Blutungen auszuschließen, und verabreichen Sie dann das Anästhetikum langsam.
ANMERKUNG: Optimieren Sie die Dosis des Anästhetikums anhand von Vorversuchen, um eine ausreichende Anästhesie sicherzustellen und die Sterblichkeit zu minimieren. Vermeiden Sie wiederholte Einstiche, um Gewebeschäden zu reduzieren. - Bestätigung der Anästhesie: Überprüfen Sie den anästhesierten Zustand durch Beobachtung einer stabilen und regelmäßigen Atmung ohne Anzeichen von Atemnot oder respiratorischer Belastung.
- Intranasale Applikation von SARS-CoV-2 (Tag 0): Verabreichen Sie 100 µL virale Suspension von SARS-CoV-2 (50 µL pro Nasenloch) langsam tropfenweise auf die äußeren Nasenöffnungen mittels einer Mikropipette oder Spritze während eines gleichmäßigen Atemzyklus und zu Beginn der Einatmung.
- Wechseln Sie zwischen den Nasenlöchern, um eine gleichmäßige Inhalation zu fördern. Behandeln Sie Kontrollmäuse mit einem gleichen Volumen an physiologischer Kochsalzlösung nach demselben Verfahren.
ANMERKUNG: Verabreichen Sie die Lösung tropfenweise, wobei sichergestellt werden muss, dass jeder Tropfen vor der Applikation des nächsten in die Nasenhöhle eingeatmet wurde, bis das Zielvolumen erreicht ist. - Nachbehandlung nach der Verabreichung: Halten Sie den Kopf der Maus nach der intranasalen Applikation etwa 30–60 s leicht erhöht, um den Transport der Lösung in die unteren Atemwege zu unterstützen. Bringen Sie die Mäuse zurück in ihre Käfige, sobald Anzeichen der Erholung von der Anästhesie sichtbar sind, und beobachten Sie sie, bis volles Bewusstsein wiederhergestellt ist.
- Dokumentation und Überwachung: Notieren Sie das verabreichte Volumen und die Identifikationsnummer jeder Maus. Überwachen Sie die Tiere während des gesamten Versuchszeitraums kontinuierlich hinsichtlich Überleben und allgemeinem physiologischem Zustand.
- Intranasale Applikation von LPS (Tag 2): Verabreichen Sie LPS am Tag 2 nach SARS-CoV-2-Infektion. Führen Sie die intranasale Applikation von LPS (5 mg/kg) nach demselben Protokoll wie bei der SARS-CoV-2-Verabreichung durch. Verabreichen Sie Kontrollmäusen ein gleiches Volumen an physiologischer Kochsalzlösung nach demselben Verfahren.
ANMERKUNG: In diesem Schritt wurden LPS und physiologische Kochsalzlösung nach demselben Verfahren wie bei der SARS-CoV-2-Inokulation verabreicht, einschließlich Anästhesie und intranasaler Applikation.
4. Maussektion und Gewebesammlung der Lunge
- Töten Sie die Mäuse am 3. Tag nach SARS-CoV-2-Infektion zur Gewebesammlung. Betäuben Sie die Tiere zuerst und töten Sie sie anschließend durch Halsbruch. Verarbeiten Sie Kontrollmäuse mit dem gleichen Verfahren.
ANMERKUNG: Detaillierte Verfahren zum Halsbruch finden Sie in Supplementary File 1. - Fixieren Sie die euthanasierten Mäuse in Rückenlage auf einem Präparationsbrett, wobei Bauch- und Brustbereich vollständig freigelegt sind. Befeuchten Sie das Bauchfell mit 75 %igem Ethanol, um Kontaminationen zu minimieren.
- Verwenden Sie sterile Scheren, um das Brustbein entlang der bilateralen Rippenränder vorsichtig zu durchtrennen und die Brusthöhle schrittweise zu öffnen. Ziehen Sie mit einer Pinzette das Gewebe vorsichtig zur Seite und dissezieren Sie die Lungen schrittweise von den umgebenden thorakalen Strukturen ab, wobei mechanische Schädigungen des Lungengewebes vermieden werden sollen.
ANMERKUNG: Achten Sie sorgfältig auf die Ausrichtung der Scherenspitzen während des Schneidens, um Schäden am Herzen, an den Lungen und an größeren Gefäßstrukturen zu vermeiden. - Legen Sie das entnommene Lungengewebe unverzüglich in vorab gekühltes PBS oder physiologische Kochsalzlösung und spülen Sie es vorsichtig 2–3 Mal aus, um verbliebenes Blut und Gewebereste zu entfernen. Tupfen Sie überschüssige Flüssigkeit behutsam mit fusselfreiem Filterpapier ab und vermeiden Sie Druck, um strukturelle Schäden am Gewebe zu verhindern.
- Wiegen Sie das verarbeitete Lungengewebe umgehend mit einer elektronischen Waage und notieren Sie die Messwerte.
- Entfernen Sie das rechte kaudale Lappenstück und fixieren Sie es unverzüglich in 4 % Paraformaldehyd in einem Volumen, das das Zehnfache des Gewebes beträgt, für die anschließende histopathologische Analyse.
ACHTUNG: Paraformaldehyd ist toxisch; handhaben Sie es gemäß den Sicherheitsrichtlinien der Institution. - Sammeln Sie das verbleibende Lungengewebe, portionieren Sie es in Kryoröhrchen, gefrieren Sie es rasch in flüssigem Stickstoff und lagern Sie es bei −80 °C zur Konservierung. Verwenden Sie den rechten kranialen Lappen, den rechten mittleren Lappen und den Accessoriuslappen zur Bestimmung der SARS-CoV-2-Viruslast und proinflammatorischer Zytokine, und behalten Sie die linke Lunge für die ELISA-Analyse zurück.
ACHTUNG: Flüssiger Stickstoff ist extrem kalt; tragen Sie geeignete kryogene Handschuhe und Schutzbrille, um Kälteverbrennungen oder Erfrierungen zu vermeiden. - Reinigen und sterilisieren Sie alle Instrumente nach Abschluss der Sektion gründlich gemäß den Standardverfahren. Entsorgen Sie Tierkadaver und biologische Abfälle gemäß den institutionellen und behördlichen Richtlinien für Tierversuche.
5. Hämatoxylin-Eosin (HE)-Färbung23
- Frisches Lungengewebe 24 h lang bei Raumtemperatur in 4 % Paraformaldehyd fixieren.
ANMERKUNG: Die Fixierdauer sorgfältig kontrollieren. Unzureichende Fixierung vermeiden, da diese zu einer unvollständigen Gewebeerhaltung führen kann, sowie eine zu lange Fixierung, die eine übermäßige Proteinkreuzvernetzung verursachen und die Färbungsqualität beeinträchtigen könnte. - Die fixierten Gewebeproben mit einem automatisierten Gewebeprozessor für eine gestufte Dehydrierung, Klärung und Paraffindurchtränkung aufarbeiten.
ANMERKUNG: Das Protokoll für den automatisierten Gewebeprozessor ist in Supplementary File 2 enthalten. - Die paraffindurchtränkten Gewebeproben in Einbettungsschalen platzieren. Geschmolzenes Paraffin hinzufügen und die Gewebeproben sorgfältig ausrichten.
- Die Schalen auf eine Kühlplatte zur Verfestigung übertragen. Die Paraffinblöcke nach vollständiger Aushärtung aus den Schalen entfernen.
- Die Paraffinblöcke am Mikrotom befestigen und die Schneidefläche parallel zur Klinge ausrichten. Serienschnitte mit einer Dicke von etwa 3–5 µm anfertigen.
- Die Schnitte unverzüglich in ein Wasserbad von etwa 45 °C überführen, um das vollständige Aufschwimmen und Entfalten zu ermöglichen.
- Die Schnitte mithilfe von Objektträgern aufnehmen, indem man ein Ende des Objektträgers vertikal ins Wasser eintaucht, und mit einer Pinzette die korrekte Anheftung der Schnitte an der Trägeroberfläche unterstützen.
- Die Objektträger etwa 1 h lang in einen bei 65 °C beheizten Trockner stellen, um die Gewebehaftung zu verbessern.
ANMERKUNG: Die Trocknungszeit entsprechend der Gewebetypen, Schnittdicke und Gerätebedingungen anpassen. Überhitzung vermeiden, um Gewebeschäden zu verhindern. - Die getrockneten Schnitte mit einem automatisierten Färbeapparat mit H&E färben.
ANMERKUNG: Das Protokoll für den automatisierten Färbeapparat ist in Supplementary File 3 enthalten. - Die gefärbten Schnitte entnehmen und an der Luft trocknen lassen. Einen Tropfen neutralen Eindeckmittel auftragen und die Objektträger abdecken. Die Schnitte nach dem Aushärten des Eindeckmittels unter dem Lichtmikroskop untersuchen.
6. Expression der viralen Last von SARS-CoV-2 und proinflammatorischer Zytokine im Lungengewebe
- Homogenisierung von Lungengewebe
- Bereiten Sie RNase-freie Homogenisierungsgefäße vor, indem Sie 4–5 Edelstahlkugeln (3 mm Durchmesser) und 900 µL vorgekühlten Lysepuffer als Homogenisierungsmedium hinzufügen.
HINWEIS: Passen Sie das Volumen des Lysepuffers entsprechend dem Gewebegewicht an, typischerweise im Verhältnis von etwa 9 mL pro 1 g Gewebe. - Wiegen Sie etwa 50 mg Lungengewebe ab, zerkleinern es fein und überführen es in das Homogenisierungsgefäß.
- Homogenisieren Sie das Gewebe mit einem Gewebemühle (60 Hz, 60 s, 2–3 Zyklen mit 10 s Intervallen zwischen den Zyklen).
HINWEIS: Optimieren Sie die Homogenisierungsparameter je nach Gerät und Gewebetyp. - Überprüfen Sie die Probe nach der Homogenisierung, um eine vollständige Zerstörung sicherzustellen. Wiederholen Sie den Homogenisierungsschritt, falls sichtbare Gewebefragmente verbleiben, bis ein homogener Lysat erhalten ist.
- Bereiten Sie RNase-freie Homogenisierungsgefäße vor, indem Sie 4–5 Edelstahlkugeln (3 mm Durchmesser) und 900 µL vorgekühlten Lysepuffer als Homogenisierungsmedium hinzufügen.
- Säulengestützte Extraktion der gesamten RNA aus Lungengewebe
HINWEIS: Extrahieren Sie die gesamte RNA aus Lungengewebe mithilfe eines säulengestützten Reinigungsverfahrens gemäß den Herstelleranweisungen. Führen Sie alternative RNA-Extraktionsmethoden nach den entsprechenden Produktanleitungen durch, wenn zutreffend.- Überführen Sie den Homogenat in ein neues, RNase-freies Mikrozentrifugenröhrchen (2 mL). Geben Sie 100 µL gDNA-Eliminator-Lösung hinzu. Verschließen Sie das Röhrchen und schütteln Sie es kräftig für 15–20 s.
- Öffnen Sie den Verschluss kurz, geben Sie 180 µL Chloroform hinzu und wirbeln Sie gründlich für 15 s.
ACHTUNG: Chloroform ist flüchtig und toxisch; handhaben Sie es in einem gut belüfteten Bereich oder unter einem Abzug und tragen Sie geeignete persönliche Schutzausrüstung, um Inhalation und Hautkontakt zu vermeiden. - Inkubieren Sie die Probe bei Raumtemperatur für 2 min und zentrifugieren Sie anschließend bei 12.000 x g für 15 min bei 4 °C.
- Überführen Sie vorsichtig die obere wässrige Phase in ein neues Röhrchen. Geben Sie ein gleiches Volumen an 70 %igem Ethanol hinzu und mischen Sie gründlich durch Wirbeln.
HINWEIS: Vermeiden Sie es, die Zwischenphase und die organische Schicht zu stören, wenn Sie die wässrige Phase abnehmen, um die RNA-Reinheit sicherzustellen. Fahren Sie direkt nach Zugabe des 70 %igen Ethanol mit dem nächsten Schritt fort, ohne zu zentrifugieren. - Überführen Sie die Mischung in eine Säule und zentrifugieren Sie bei 8.000 x g für 15 s. Entsorgen Sie den Durchlauf.
- Geben Sie 700 µL Waschpuffer auf die Säule und zentrifugieren Sie bei 8.000 x g für 15 s. Entsorgen Sie den Durchlauf.
- Geben Sie 500 µL Waschpuffer auf die Säule und zentrifugieren Sie bei 8.000 x g für 15 s. Wiederholen Sie diesen Waschschritt einmal.
- Überführen Sie die Säule in ein neues Sammelröhrchen und zentrifugieren Sie bei 12.000 x g für 1 min, um restlichen Waschpuffer zu entfernen.
- Setzen Sie die Säule in ein neues, RNase-freies Mikrozentrifugenröhrchen (1,5 mL). Geben Sie 30 µL RNase-freies Wasser direkt in die Mitte der Membran und zentrifugieren Sie bei 8.000 x g für 1 min, um die RNA zu eluieren.
HINWEIS: Passen Sie das Volumen des RNase-freien Wassers je nach nachgeschalteter Anwendung zwischen 30–50 µL an. Verwenden Sie ein geringeres Elutionsvolumen, wenn eine höhere RNA-Konzentration erforderlich ist.
- Nachweis der SARS-CoV-2-Viruslast mittels reverser Transkription digitaler PCR (RT-dPCR)
HINWEIS: Für die absolute Quantifizierung der SARS-CoV-2-RNA wurde ein One-Step-RT-dPCR-Assay verwendet. Spezifische Primer-Sonden-Sets, die das Nukleokapsid-(N)-Gen targeten, wurden zur Bestimmung der Kopienzahl der viralen RNA eingesetzt.- Tauen Sie die RNA-Proben und Reagenzien auf Eis auf.
- Bereiten Sie das RT-dPCR-Reaktionsgemisch gemäß den Herstelleranweisungen vor.
- Mischen Sie 20 µL RT-dPCR-Reaktionsgemisch mit 20 µL RNA-Vorlage. Wirbeln Sie das Gemisch kurz, zentrifugieren Sie es kurz und lagern Sie es auf Eis.
- Füllen Sie das 40 µL große Reaktionsgemisch in die Vertiefungen des digitalen PCR-Chips und versiegeln Sie den Chip gemäß den Instrumentenanweisungen.
- Führen Sie die Amplifikation unter folgenden thermischen Zyklenbedingungen durch: 50 °C für 40 min (1 Zyklus), 95 °C für 2 min (1 Zyklus), gefolgt von 40 Zyklen mit 95 °C für 15 s und 57 °C für 60 s. Stellen Sie die Detektionskanäle auf GRÜN (250 ms) und ROT (150 ms) ein.
- Nachweis der Expression entzündungsfördernder Zytokine mittels reverser Transkription quantitativer PCR (RT-qPCR)
- Bestimmen Sie die RNA-Konzentration und -reinheit mithilfe eines UV-Spektrophotometers.
- Verwenden Sie 1.000 ng Gesamt-RNA pro Reaktion für die reverse Transkription zur Synthese komplementärer DNA (cDNA) gemäß den Herstelleranweisungen.
- Führen Sie die RT-qPCR mit 100 ng cDNA pro Reaktion als Vorlage unter Verwendung eines SYBR-Green-PCR-Mastermixes und genspezifischer Primer durch. Verwenden Sie folgende Zyklenbedingungen: 95 °C für 2 min, gefolgt von 40 Zyklen mit 95 °C für 5 s und 60 °C für 10 s. Die Primersequenzen sind in Tabelle 1 aufgeführt.
HINWEIS: Optimieren Sie die Reaktionsbedingungen je nach verwendeten Reagenzien und Geräten und befolgen Sie die entsprechenden Herstelleranweisungen. - Verwenden Sie GAPDH als internes Referenzgen und berechnen Sie die relativen Genexpressionsniveaus nach der 2−ΔΔCt-Methode.
7. Nachweis proinflammatorischer Zytokine im Lungengewebe mittels Enzyme-Linked Immunosorbent Assay (ELISA)24
HINWEIS: ELISA-Kits gemäß der spezifischen Protokolle verwenden, die von verschiedenen Herstellern bereitgestellt werden. Die Anweisungen des entsprechenden Herstellers strikt befolgen, wenn Kits von alternativen Anbietern verwendet werden.
- Homogenisieren Sie das Lungengewebe wie oben beschrieben. Verwenden Sie PBS oder einen ELISA-spezifischen Puffer zur Gewebelyse als Homogenisierungsmedium.
- Zentrifugieren Sie die homogenisierten Proben (z. B. 12.000 × g, 4 °C, 10 min) und sammeln Sie den Überstand für die anschließende Analyse.
- Stellen Sie das ELISA-Kit vor der Verwendung 30 min lang auf Raumtemperatur ein. Entnehmen Sie die erforderlichen Mikroplatten-Streifen aus der Aluminiumfolienverpackung.
- Bereiten Sie die Standard-, Proben- und Leerproben-Vertiefungen gemäß den Herstelleranweisungen vor. Geben Sie 50 µL der Standardlösungen in die Standard-Vertiefungen und 10 µL Probe plus 40 µL Probenverdünnungspuffer in die Proben-Vertiefungen. Führen Sie für jeden Standard und jede Probe zwei technische Wiederholungen durch.
- Geben Sie 100 µL der mit Horseradish-Peroxidase (HRP) konjugierten Detektionsantikörperlösung in jede Standard- und Proben-Vertiefung, ausgenommen die Leerproben-Vertiefungen. Versiegeln Sie die Platte mit einem Klebefolie und inkubieren Sie sie 60 min bei 37 °C.
- Entfernen Sie nach der Inkubation die Flüssigkeit aus jeder Vertiefung und klopfen Sie die Platte vorsichtig auf saugendem Papier ab, um restliche Flüssigkeit zu entfernen.
- Füllen Sie jede Vertiefung mit Waschpuffer, lassen Sie ihn 1 min lang stehen und entsorgen Sie anschließend den Puffer. Trocknen Sie die Platte durch vorsichtiges Abklopfen. Wiederholen Sie diesen Waschschritt insgesamt fünfmal.
- Geben Sie nacheinander jeweils 50 µL Substratlösung A und 50 µL Substratlösung B in jede Vertiefung. Mischen Sie die Platte vorsichtig und inkubieren Sie sie 15 min bei 37 °C im Dunkeln, um die Farbreaktion zu entwickeln.
- Beenden Sie die Reaktion, indem Sie 50 µL Stopplösung in jede Vertiefung geben. Messen Sie die optische Dichte (OD) innerhalb von 10 min bei 450 nm mit einem Mikroplatten-Reader.
- Erstellen Sie eine Standardkurve, indem Sie die Standardkonzentrationen (x-Achse) gegen die OD-Werte (y-Achse) auftragen und die Kurve anpassen. Berechnen Sie die Konzentrationen der Zielzytokine in den Proben, indem Sie die OD-Werte in die Gleichung der Standardkurve einsetzen und mit den entsprechenden Verdünnungsfaktoren multiplizieren.
- Bestimmen Sie die Gesamtprotein-Konzentration im Lungengewebe mithilfe eines BCA-Protein-Assay-Kits. Normalisieren Sie die endgültigen Zytokinspiegel auf den Gesamtproteingehalt und geben Sie die Ergebnisse als Menge des Zielzytokins pro Milligramm Gesamtprotein an (z. B. pg/mg Protein).
Ergebnisse
Die Modellvalidierung erfolgte durch die Beurteilung pulmonaler histopathologischer Veränderungen, der SARS-CoV-2-Viruslast sowie der Spiegel proinflammatorischer Zytokine und Interferone vom Typ I sowohl in der Kontroll- als auch in der Modelgruppe.
Statistische Analyse
Die Daten werden als Mittelwert ± Standardfehler (SE) angegeben. Zum Vergleich zwischen Modell- und Kontrollgruppe wurde ein ungepaarter Student-t-Test verwendet. Dieser Test wurde gewählt, da er geeignet ist, um die Mittelwerte stetiger Variablen zwischen zwei unabhängigen Gruppen zu vergleichen. In dieser Studie wurden die Mäuse unabhängig und zufällig den beiden Gruppen zugewiesen, wodurch die Annahme der Unabhängigkeit der Stichproben erfüllt war. Ein p-Wert < 0,05 wurde als statistisch signifikant angesehen.
Veränderungen des Körpergewichts und des Lungenindex von Mäusen
Wie in Abbildung 1B gezeigt, war das Körpergewicht der Mäuse in der Modellgruppe im Vergleich zu den Ausgangswerten vor der Modellierung nach der Infektion signifikant verringert, mit einem statistisch signifikanten Unterschied (p < 0,05). Wie in Abbildung 1C dargestellt, war der Lungengewichtsindex der Mäuse in der Modellgruppe im Vergleich zur Kontrollgruppe signifikant erhöht (p < 0,01), was mit charakteristischen Merkmalen einer Lungenschädigung übereinstimmt. Während des experimentellen Zeitraums wurde kein Todesfall beobachtet, und alle Mäuse überlebten bis zum Versuchsende.
Histopathologische Veränderungen im Lungengewebe und SARS-CoV-2-Viruslast von Mäusen
Abbildung 2 zeigt die histopathologischen Veränderungen und die Viruslast in den Lungengeweben von Mäusen beider Gruppen. Die HE-Färbung zeigte, dass die Kontrollgruppe eine intakte Lungenarchitektur aufwies, während die Modellgruppe erhebliche pulmonale pathologische Veränderungen zeigte, darunter Verdickung der alveolären Septen, Infiltration von Entzündungszellen und Störung der alveolären Struktur (Abbildung 2A). Die quantitative Analyse bestätigte zudem, dass sowohl der Lungenverletzungsscore als auch der Score für alveoläre Entzündung in der Modellgruppe im Vergleich zur Kontrollgruppe signifikant erhöht waren (p < 0,001), was die erfolgreiche Induktion von Lungenverletzung und entzündlichen Reaktionen belegt (Abbildung 2B,C).
Zusätzlich wurde ein erheblicher Grad an SARS-CoV-2-RNA-Expression in Lungengeweben der Modellgruppe nachgewiesen. Am dritten Tag nach der Infektion erreichte die durchschnittliche Viruslast im Lungengewebe 5,5 × 10⁸ Kopien/g (Abbildung 2D), was auf eine erfolgreiche virale Replikation und eine anhaltend hohe Konzentration im Lungengewebe hinweist.
Veränderungen proinflammatorischer Zytokine und des Typ-I-Interferons in der Lungengewebe von Mäusen
Abbildung 3 veranschaulicht die Veränderungen entzündlicher Zytokine und des Typ-I-Interferons (IFN-I) im Lungengewebe von Mäusen. Die Ergebnisse zeigten, dass im Vergleich zur Kontrollgruppe die mRNA-Expression sowie die Proteinspiegel von IL-6, IL-1β und TNF-α im Lungengewebe der Modellgruppe signifikant erhöht waren (p < 0,05) (Abbildung 3A–F), was auf eine deutliche Aktivierung der entzündlichen Reaktion hindeutet. Im Gegensatz dazu zeigten ELISA-Ergebnisse, dass die Spiegel von IFN-α und IFN-β im Lungengewebe der Modellgruppe im Vergleich zur Kontrollgruppe signifikant vermindert waren (p < 0,001) (Abbildung 3G,H), was auf eine Unterdrückung der antiviralen Immunantwort schließen lässt.
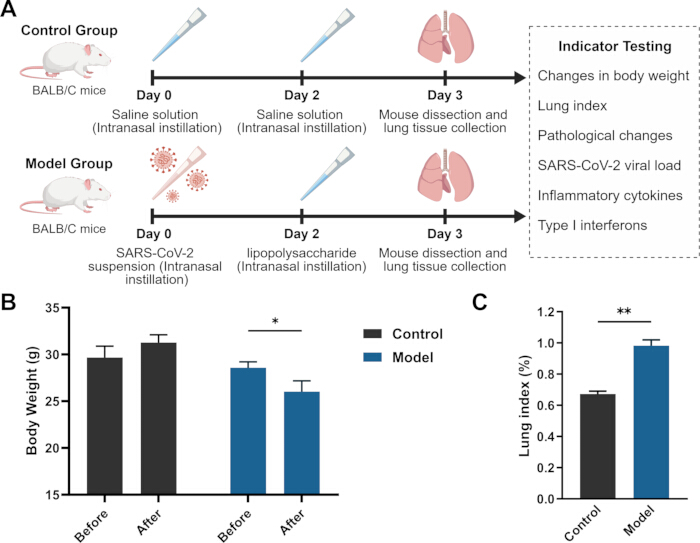
Abbildung 1: Experimenteller Ablaufplan und Veränderungen von Körpergewicht und Lungenindex der Mäuse. (A) Experimenteller Ablaufplan. (B) Veränderungen des Körpergewichts der Mäuse. (C) Veränderungen des Lungenindex der Mäuse. Die Daten sind als Mittelwert ± SE für jede Gruppe dargestellt. Der Student’sche t-Test wurde verwendet, um die statistischen Unterschiede zwischen den Gruppen zu bewerten. *p < 0,05; **p < 0,01; ***p < 0,001. Abbildung 1A wurde mit BioGDP.com25 erstellt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
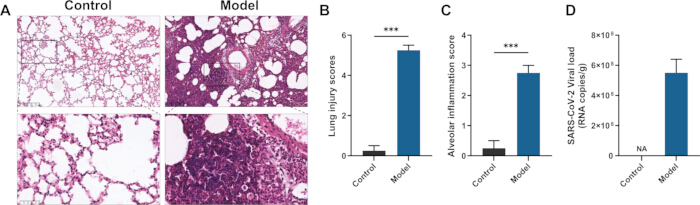
Abbildung 2: Histopathologische Veränderungen und SARS-CoV-2-Viruslast in Mäuselungengewebe. (A) HE-Färbung von Mäuselungengewebe. (B) Lungenverletzungsscore (Smith-Score). (C) Alveolarentzündungsscore (Szapiel-Score). (D) SARS-CoV-2-Viruslast im Lungengewebe. Die Daten sind als Mittelwert ± SE für jede Gruppe dargestellt. Der Student’sche t-Test wurde verwendet, um die statistischen Unterschiede zwischen den Gruppen zu bewerten. *p < 0,05; **p < 0,01; ***p < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
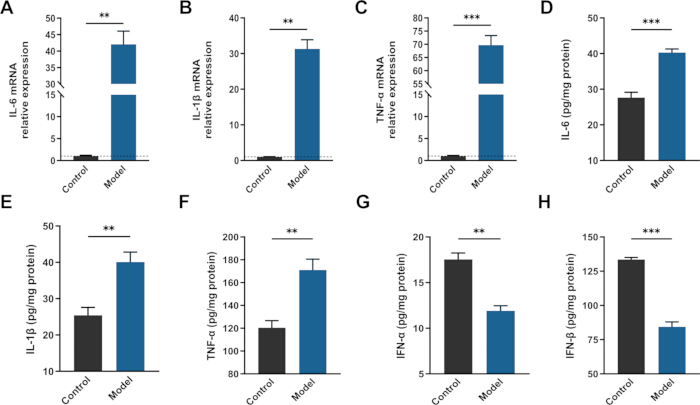
Abbildung 3: Veränderungen proinflammatorischer Zytokine und IFN-I in der Maus-Lungenentnahme. (A–C) Relative mRNA-Expression der proinflammatorischen Zytokine IL-6, IL-1β und TNF-α in der Maus-Lungenentnahme. (D–F) Proteinspiegel von IL-6, IL-1β und TNF-α in der Maus-Lungenentnahme. (G–H) Spiegel von IFN-α und IFN-β in der Maus-Lungenentnahme. Die Daten sind als Mittelwert ± SE für jede Gruppe dargestellt. Der Student’sche t-Test wurde verwendet, um statistische Unterschiede zwischen den Gruppen zu bewerten. *p < 0,05; **p < 0,01; ***p < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Primer | Vorwärtssequenz (5’ zu 3’) | Rückwärtssequenz (5’ zu 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tabelle 1: Primersequenzen, die in dieser Studie verwendet wurden. Hier sind die Vorwärts- und Rückwärts-Primersequenzen (5′ zu 3′) für die Ziel- und internen Referenzgene aufgeführt.
Zusatzdatei 1 Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 2 Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 3 Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Diese Studie etablierte ein murines Modell einer mit COVID-19 assoziierten Lungenverletzung mittels intranasaler Applikation von SARS-CoV-2 und LPS. Die Ergebnisse zeigten, dass die intranasale Kombinationsgabe von SARS-CoV-2 und LPS eine starke Entzündungsreaktion hervorruft, die mit einer Unterdrückung der IFN-I-Signalübertragung einhergeht. Mäuse der Modellgruppe wiesen einen signifikanten Gewichtsverlust sowie einen erhöhten Lungenindex auf, was auf systemische Abmagerung und eine verstärkte pulmonale Schädigung hinweist. Die HE-Färbung bestätigte zudem, dass die Modellgruppe typische diffuse Lungenverletzungen aufwies, gekennzeichnet durch eine Zerstörung der alveolären Architektur und eine umfangreiche Infiltration entzündlicher Zellen. Außerdem zeigten Lungengewebe der Modellgruppe im Vergleich zur Kontrollgruppe eine signifikant erhöhte Expression wichtiger proinflammatorischer Zytokine wie IL-6, IL-1β und TNF-α, während die Spiegel von IFN-α und IFN-β deutlich vermindert waren. Diese Befunde deuten auf einen Zustand immunologischer Dysbalance hin, der durch eine übermäßige Aktivierung proinflammatorischer Reaktionen bei gleichzeitig unterdrückter antiviraler Immunität gekennzeichnet ist, und unterstreichen damit den potenziellen Wert dieses Modells für die Nachbildung der immunopathologischen Merkmale der Erkrankung.
Die SARS-CoV-2-Infektion gilt als zentraler Auslöser für die Entwicklung von COVID-19-assoziierten Organschäden26,27. In dieser Studie wurde eine hohe Viruslast in den Lungengeweben von Modellmäusen nachgewiesen, begleitet von ausgeprägten diffusen Lungenverletzungen und einer Infiltration entzündlicher Zellen, was darauf hindeutet, dass die Virusinfektion einen entscheidenden Auslöser für die pulmonale Entzündungsreaktion darstellen könnte. Übereinstimmend mit früheren Berichten kann die SARS-CoV-2-Infektion pulmonale pathologische Veränderungen und eine Immunaktivierung induzieren28; herkömmliche SARS-CoV-2-Infektionsmodelle bei Mäusen zeigen jedoch oft nur begrenzte entzündliche Reaktionen und reproduzieren möglicherweise nicht vollständig das Hyperinflammations-Phänomen, das bei COVID-19-Patienten beobachtet wird18,19,20. Daher könnte eine zusätzliche Stimulation des angeborenen Immunsystems erforderlich sein, um die Mechanismen der immun-entzündlichen Regulationsstörungen im Zusammenhang mit der Erkrankung besser untersuchen zu können. LPS, ein prototypischer Aktivator des angeborenen Immunsystems, bindet an den Toll-ähnlichen Rezeptor 4 (TLR4) und aktiviert sowohl MyD88-abhängige als auch TRIF-abhängige Signalwege, wodurch wichtige entzündliche transkriptionelle Programme wie NF-κB aktiviert und die Expression mehrerer proinflammatorischer Zytokine induziert wird29. Frühere Studien haben außerdem gezeigt, dass eine LPS-Stimulation – allein oder in Kombination mit SARS-CoV-2-assoziierten Komponenten – entzündliche Reaktionen verstärken und zu akuten Lungenverletzungs-ähnlichen Phänotypen beitragen kann, was die Begründung dafür stützt, LPS als entzündlichen Stimulus in der COVID-19-Forschung einzubeziehen30,31,32. In der vorliegenden Studie wurden signifikant erhöhte Konzentrationen von IL-6, IL-1β und TNF-α in den Lungengeweben der Modellgruppe beobachtet, was darauf hindeutet, dass LPS im Kontext einer SARS-CoV-2-Infektion als entzündlicher Verstärker fungiert und nicht einfach nur eine bakterielle Ko-Infektion repräsentiert. Im Vergleich zu reinen LPS-basierten Entzündungsmodellen, die den Hintergrund einer Virusinfektion fehlt, kombiniert das in dieser Studie etablierte Modell die durch SARS-CoV-2 hervorgerufenen immunologischen Veränderungen mit der LPS-vermittelten entzündlichen Aktivierung und bietet somit eine umfassendere Plattform zur Untersuchung der COVID-19-assoziierten Lungenverletzung.
IFN-I sind Schlüsseleffektor-Moleküle der antiviralen Immunität des Wirts und entfalten breite antivirale Funktionen durch die Induktion einer Vielzahl interferonstimulierter Gene (ISGs)33. SARS-CoV-2 wurde jedoch als Antagonist der IFN-I-Signalübertragung durch mehrere Mechanismen nachgewiesen, einschließlich der Störung der durch Erkennungsrezeptoren für pathogentypische Strukturen (PRR) vermittelten Signaltransduktion, der Unterdrückung der Aktivierung interferonregulierender Faktoren (IRF) sowie der Blockade der nachgeschalteten JAK-STAT-Signalübertragung, wodurch die antiviralen Abwehrmechanismen des Wirts beeinträchtigt werden14,34. In dieser Studie wurden signifikant reduzierte Konzentrationen von IFN-α und IFN-β in den Lungengeweben der Modellgruppe beobachtet, was darauf hinweist, dass unter dem synergistischen Einfluss einer Virusinfektion und LPS-Stimulation der Wirtsorganismus nicht nur eine übermäßige inflammatorische Aktivierung aufwies, sondern gleichzeitig auch eine Unterdrückung der antiviralen Immunität. Eine solche Immunstörung gilt als eines der zentralen immunologischen Merkmale bei der Entstehung und Progression von COVID-198. Das vorliegende Modell bildet daher teilweise diesen komplexen pathologischen Prozess ab und stellt ein wertvolles experimentelles Werkzeug für die weitere Untersuchung der mit COVID-19 assoziierten Immunstörungen sowie für die Entwicklung entsprechender therapeutischer Maßnahmen dar.
Das in dieser Studie etablierte Mausmodell für COVID-19, das auf der kombinierten Verabreichung von SARS-CoV-2 und LPS basiert, kann zentrale Merkmale der Krankheitspathologie nachahmen, einschließlich erhöhter proinflammatorischer Zytokine und einer Unterdrückung der IFN-I-Signalübertragung, wodurch teilweise das bei der mit COVID-19 assoziierten Lungenschädigung beobachtete Immunungleichgewicht nachgebildet wird. Im Vergleich zu Modellen mit alleiniger Virusinfektion berücksichtigt dieser kombinierte Ansatz einen exogenen Reiz des angeborenen Immunsystems, um krankheitsrelevante entzündliche Reaktionen zu verstärken, wodurch die Untersuchung von pathologischen Prozessen im Zusammenhang mit übermäßiger Entzündung und beeinträchtigter antiviraler Immunität ermöglicht wird. Demnach könnte dieses Modell für die Evaluierung von in-vivo-Kandidaten antiinflammatorischer, immunmodulatorischer und Lungenreparatur-strategien nützlich sein, insbesondere solcher, die auf die Immunstörung und nicht allein auf die Virusreplikation abzielen.
Es sollten jedoch mehrere Einschränkungen dieser Studie berücksichtigt werden. Erstens löst LPS Entzündungen hauptsächlich über die Aktivierung von TLR4 aus, was die komplexen Virus-Wirt-Interaktionen bei klinischem COVID-19 nicht vollständig widerspiegelt und die entzündliche Reaktion verändern könnte. Zweitens wurden zwar vergleichende Experimente mit ausschließlich SARS-CoV-2 und ausschließlich LPS während der vorläufigen Optimierungsphase durchgeführt, diese Daten sind jedoch nicht in der Manuskriptversion enthalten. Künftige Studien werden die individuellen und kombinierten Effekte von SARS-CoV-2 und LPS weiter untersuchen, um den Beitrag der einzelnen Komponenten besser zu definieren. Drittens zielt dieses Modell darauf ab, wichtige immunopathologische Merkmale der COVID-19-assoziierten Lungenschädigung, insbesondere die immun-entzündliche Dysregulation, nachzubilden, und nicht den vollständigen natürlichen Verlauf einer SARS-CoV-2-Infektion. Schließlich könnten, obwohl die SARS-CoV-2-Dosis und die LPS-Konzentration auf Grundlage vorläufiger Optimierungsexperimente festgelegt wurden, Variationen in Mausstämmen, Virusvarianten, Testmethoden und experimentellen Bedingungen die Reproduzierbarkeit des Modells beeinträchtigen und eine weitere Validierung in verschiedenen Forschungsumgebungen erfordern. Unter den in diesem Protokoll beschriebenen optimierten Bedingungen betrug die Gesamterfolgsrate bei der Modellerstellung etwa 90 %; diese Rate kann jedoch je nach experimentellem Setting variieren. Zukünftige Studien könnten dieses Modell weiter optimieren, indem sie verschiedene SARS-CoV-2-Varianten, genetisch modifizierte Mausstämme oder fortschrittliche Ansätze zur Immunprofilerstellung, wie beispielsweise die Transkriptom-Analyse auf Einzelzell-Ebene, einbeziehen, um die Virus-Wirt-Interaktionen besser zu charakterisieren und therapeutische Zielstrukturen zu identifizieren. Solche Maßnahmen könnten die translationale Relevanz dieses Modells für die COVID-19-Forschung weiter verbessern.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Diese Forschung wurde unterstützt durch die Nationale Naturwissenschaftliche Stiftung Chinas (82374291); das Programm für Wissenschaft und Technologie von Sichuan (2024NSFJQ0059); das Sonderthema für wissenschaftliche Forschung der Verwaltung für Traditionelle Chinesische Medizin von Sichuan (2024zd005); das Projekt „Tianfu Qingcheng Plan“ 2022 für führende wissenschaftliche und technologische Talente (Chuan Qingcheng Nr. 1090); den gemeinsamen Innovationsfonds der Gesundheitskommission von Chengdu und der Universität für Traditionelle Chinesische Medizin Chengdu (WXLH202403091).
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Automatischer Gewebeprozessor | Dakewe Biotech Co., Ltd. | HP300 | Wird zur Gewebedehydrierung verwendet. |
| Autofärber | Leica Biosystems | LEICA ST5010 | Wird zur HE-Färbung verwendet. |
| Zentrifuge | DLAB Scientific | D3024R | Wird zum Zentrifugieren von Proben oder Reagenzien verwendet. |
| Wasserbad mit konstanter Temperatur | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Wird für Wasserbäder bei konstanter Temperatur verwendet. |
| Digital-PCR-System | QIAGEN | QIAcuity One | Wird für RT-dPCR verwendet. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix für qPCR (Ein-Schritt gDNA-Entfernung) | TransGen Biotech Co.,Ltd. | AT341 | Wird für die Reverse Transkription verwendet. |
| Eosin-Lösung | BASO | BA4024 | Wird für die histologische Färbung verwendet. |
| Fluoreszenz-basiertes quantitatives PCR-System | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Wird für RT-qPCR verwendet. |
| Hämatoxylin-Lösung | BASO | BA4041 | Wird für die histologische Färbung verwendet. |
| IBM SPSS Statistics Software | IBM Corp., Armonk, NY, USA | Version 22.0 | Wird für die statistische Analyse verwendet. |
| Lipopolysaccharide aus Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Wird für die Maus-Modellierung verwendet. |
| Mikroplattenreader | Molecular Devices | SpectraMax Plus 384 | Wird für ELISA verwendet. |
| Maus IFN-α-ELISA-Kit | ZCIBIO Technology Co., Ltd. | ZC-37863W | Wird zum Nachweis von IFN-α-Spiegeln im Lungengewebe von Mäusen verwendet. |
| Maus IFN-β-ELISA-Kit | ZCIBIO Technology Co., Ltd. | ZC-37887W | Wird zum Nachweis von IFN-β-Spiegeln im Lungengewebe von Mäusen verwendet. |
| Maus IL-1β-ELISA-Kit | ZCIBIO Technology Co., Ltd. | ZC-37974W | Wird zum Nachweis von IL-1β-Spiegeln im Lungengewebe von Mäusen verwendet. |
| Maus IL-6-ELISA-Kit | ZCIBIO Technology Co., Ltd. | ZC-37988W | Wird zum Nachweis von IL-6-Spiegeln im Lungengewebe von Mäusen verwendet. |
| Maus TNF-α-ELISA-Kit | ZCIBIO Technology Co., Ltd. | ZC-39024W | Wird zum Nachweis von TNF-α-Spiegeln im Lungengewebe von Mäusen verwendet. |
| One-Step RT-PCR-Kit für Digital-PCR | QIAGEN | 4829104 | Wird für die Digital-PCR verwendet. |
| Paraffineinbettungsgerät | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Wird zur Paraffineinbettung von Lungengewebe von Mäusen verwendet. |
| QuantiNova SYBR PCR Mix Kit | QIAGEN | 1129280 | Wird für RT-qPCR verwendet. |
| RNeasy Plus Universal Mini Kit | QIAGEN | 1062832 | Wird zur Gesamt-RNA-Extraktion verwendet. |
| Schneidgerät | Leica Biosystems | LEICA RM2235 | Wird für Paraffinschnitte verwendet. |
| Edelstahlkugeln für Gewebehomogenisator | Beyotime Biotechnology | F6621 | Wird zum Homogenisieren von Lungengewebe verwendet. |
| XG Primer Pool 1.0 für Digital-PCR | QIAGEN | 4828104 | Wird für die Digital-PCR verwendet. |
| Zoletil 50 | VIRBAC | BN9VS7A | Wird zur Anästhesie von Mäusen verwendet. |
Referenzen
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.