Dieses Protokoll zielt darauf ab, die anti-tumorale Wirksamkeit von Ruscogenin in nasopharyngealen Karzinomzellen zu bewerten. Es beschreibt umfassende Methoden – einschließlich Assays zur Zellviabilität, Migration, Apoptose und Ferroptose –, um systematisch aufzuklären, wie diese Verbindung eine doppelte Zelltodinduktion durch gezielte Hemmung und Downregulation von KDM1A auslöst.
Forschungsartikel
Ruscogenin unterdrückt die Progression des Nasopharynxkarzinoms durch die Herunterregulierung von KDM1A, um Ferroptose und Apoptose gemeinsam zu induzieren
In diesem Artikel
Zusammenfassung
Zusammenfassung
Das nasopharyngeale Karzinom (NPC) ist eine hochaggressive maligne Erkrankung. Die natürliche Verbindung Ruscogenin (Rus) zeigt anti-karzinomartige Wirkung. Diese Studie klärt den spezifischen Wirkmechanismus bei nasopharyngealem Karzinom (NPC) auf, indem die Effekte auf NPC-Zellen und den zugrundeliegenden molekularen Signalweg untersucht werden. Die humane nasopharyngeale Karzinom-(NPC-)Zelllinie C666-1 wurde mit verschiedenen Konzentrationen von Rus behandelt. Eine Reihe von in vitro-Assays wurde durchgeführt, um Zellviabilität, Proliferation, Migration, Invasion, Apoptose und Ferroptose zu bewerten. Die Rolle der lysinspezifischen Demethylase 1A (KDM1A) wurde mittels Western Blot und molekularem Docking untersucht, und ihre vermittelnde Funktion wurde durch Überexpression-Rettungsversuche bestätigt. Ruscogenin verringerte dosisabhängig die proliferativen, klonogenen, migratorischen und invasiven Kapazitäten der C666-1-Zellen. Mechanistisch induzierte die Rus-Behandlung sowohl Apoptose, belegt durch die Aktivierung der Exekutionscaspase-3 und eine Verschiebung hin zu pro-apoptotischem Signalweg über das Bax/Bcl-2-Gleichgewicht, als auch Ferroptose, gekennzeichnet durch erhöhte Lipidperoxidation und intrazelluläres Eisen. Diese anti-tumoralen Effekte korrelierten stark mit der Downregulation von KDM1A. Entscheidend war, dass die erzwungene Überexpression von KDM1A die Rus-induzierte Apoptose und Ferroptose signifikant abschwächte und die Unterdrückung maligner Phänotypen umkehrte, wodurch die zentrale vermittelnde Rolle von KDM1A bestätigt wurde. Ruscogenin hemmt die maligne Progression des nasopharyngealen Karzinoms durch Downregulation von KDM1A und fördert dadurch Apoptose und Ferroptose. Diese Ergebnisse identifizieren die Rus-KDM1A-Achse als vielversprechendes therapeutisches Ziel für die Behandlung von NPC.
Einleitung
Das nasopharyngeale Karzinom (NPC) ist eine Krebserkrankung, die durch das Zusammenwirken genetischer und umweltbedingter Faktoren verursacht wird1. Obwohl die Strahlentherapie bei der Behandlung bemerkenswerte Fortschritte erzielt hat, bleibt das Gesamtüberleben von NPC-Patienten unbefriedigend. Dies liegt wahrscheinlich daran, dass sich NPC-Zellen schnell vermehren können und eine hohe Neigung zur Metastasierung in regionale Lymphknoten und ferne Organe aufweisen2. Daher ist es entscheidend, die molekularen Mechanismen zu erforschen, die die Progression des NPC fördern. Kürzlich wurde Ferroptose, eine neue Form des Zelltods, die auf eisenabhängige Weise durch Fe2⁺ und Lipidperoxide reguliert wird, als entscheidend für die Entstehung und Entwicklung des NPC identifiziert3. Vorliegende Befunde zeigen, dass Ferroptose eine wichtige Rolle beim NPC spielt und dass ihre Induktion die Strahlentherapie bei Krebserkrankungen verbessern kann4,5.
Aufgrund der geringen Toxizität und weniger Nebenwirkungen werden chinesische Kräuterformeln seit Tausenden von Jahren zur Behandlung von Krebserkrankungen eingesetzt6,7. Als eine Art mehrkomponentige, mehrzielgerichtete Arzneimittel mit synergistischer Wirkung werden Rezepturen der traditionellen chinesischen Medizin (TCM) erfolgreich als komplementäre Therapie zur Vorbeugung und Behandlung von Krebs, einschließlich NPC8,9,10, eingesetzt. Radix ophiopogonis (RO), die Wurzel der ausdauernden krautigen Pflanze Ophiopogon japonicus, wurde als adjuvante Therapie zur wirksamen Linderung von NPC beschrieben11,12. Ruscogenin (Rus), die Hauptkomponente in RO, besitzt nachweislich starke anti-karzinogene Effekte13. In Mausmodellen des kolorektalen Karzinoms kann Rus Verletzungen der Tight Junctions verbessern und die Tumormigration hemmen14. Wichtig ist, dass Rus auch die Vitalität von Pankreaskrebszellen durch Induktion von Ferroptose verringern kann. Die Wirkung von Rus auf NPC ist jedoch bisher noch unklar.
Die Epigenetik ist das zentrale Forschungsgebiet zur Pathogenese von Krebserkrankungen und bietet zahlreiche wirksame Behandlungsansätze15. Als eine gut erforschte epigenetische Modifikation ist die Histonmethylierung an der Krebsentwicklung beteiligt und stellt zudem ein wichtiges Ziel in der Arzneimittelentwicklung dar16. Die dynamische Regulation der Histonmethylierung erfolgt durch Methyltransferasen und Demethylasen17. KDM1A ist eine Histon-Lysin-Demethylase, die aufgrund ihrer Rolle in der epigenetischen Modulation als entscheidend an der Karzinogenese beteiligt gilt18. Außerdem wurde festgestellt, dass KDM1A ein Onkoprotein ist, das in mehreren Krebsarten wie Lungen- und Pankreaskarzinom stark überexprimiert wird19. Guo et al. berichteten, dass eine Erhöhung von KDM1A die Expression von Phosphatase und Tensin-Homolog (PTEN) unterdrücken und die Proliferation und Migration von NPC-Zellen fördern kann, während die Apoptose gehemmt wird20. Gleichzeitig wurde auch beobachtet, dass eine Hochregulierung von KDM1A die Ferroptose bei Lungenkrebs hemmen kann21. Die Analyse mittels der Super-PRED-Datenbank zeigte, dass KDM1A ein potenzielles Zielmolekül von Rus darstellt.
Trotz des anerkannten antitumoralen Potenzials von Rus bei anderen Krebserkrankungen bleibt seine spezifische Rolle und molekulare Wirkungsweise beim nasopharyngealen Karzinom vollständig ungeklärt, was eine bedeutende Forschungslücke darstellt. Zudem wurde zwar in früheren Berichten separat ein Zusammenhang zwischen KDM1A und Tumorzellproliferation sowie Ferroptose-Resistenz beschrieben, jedoch wurde bisher nicht untersucht, ob die gezielte Beeinflussung von KDM1A in NPC gleichzeitig mehrere Zelltodwege auslösen kann. Daher liefert diese Studie eine fundierte Begründung für die Hypothese, dass Rus die maligne Progression von NPC-Zellen durch direkte Herabregulierung von KDM1A unterdrücken könnte.
Diese Studie hatte zum Ziel, diese Lücke zu schließen, indem systematisch der Einfluss von Rus auf die Proliferation, Migration und Invasion von NPC-Zellen evaluiert wurde. Die zentrale Neuheit dieser Forschung liegt in der Aufdeckung einer Doppelwirkmechanismus-Strategie. Der Fokus lag auf der Fähigkeit von Rus, gleichzeitig klassische Apoptose und eisenabhängige Ferroptose auszulösen. Durch die Validierung der neuartigen Rus-KDM1A-Signalachse trägt diese Studie erheblich zum aktuellen Wissensstand bei, indem sie zeigt, wie ein einziger natürlicher Wirkstoff Tumorresistenz durch gleichzeitige Blockade mehrerer Signalwege überwinden kann, was eine vielversprechende präklinische Grundlage für eine gezielte NPC-Therapie bietet.
Protokoll
Zellkultur, Behandlung und Transfektion
Die humane nasopharyngeale Karzinom-(NPC-)Zelllinie C666-1 (RRID: CVCL_M597) und die nicht maligne humane nasopharyngeale epitheliale Zelllinie NP69 (RRID: CVCL_F755) wurden von einem kommerziellen Anbieter bezogen. Beide Zelllinien wurden mittels Short-Tandem-Repeat-(STR-)Profilierung authentifiziert und vor der Verwendung auf Mykoplasmenkontamination getestet und als frei davon bestätigt. Zur routinemäßigen Kultur wurden C666-1-Zellen in RPMI-1640-Medium, ergänzt mit 10 % fetalem Kälberserum (FBS) und 1 % Penicillin-Streptomycin, kultiviert. NP69-Zellen wurden in keratinozytenfreiem Medium, ergänzt mit 10 % FBS, 10 ng/mL rekombinantem epidermalem Wachstumsfaktor und 1 % Penicillin-Streptomycin, kultiviert. Ruscogenin (Rus; Reinheit ≥ 98 %) wurde von einem kommerziellen Anbieter bezogen. Beide Zelllinien wurden in einem befeuchteten Inkubator bei 37 °C unter 5 % CO₂ gehalten. Für Behandlungen wurden die Zellen 24 h lang Ruscogenin (Rus) in variierenden Konzentrationen (10, 20, 50 µM) ausgesetzt22. Für die Transfektion wurden Plasmide, die die lysinspezifische Demethylase 1A für die Überexpression (oe-KDM1A) und einen entsprechenden negativen Kontroll-Vektor ohne Insert (oe-NC) enthielten und von einem kommerziellen Anbieter bezogen wurden, in C666-1-Zellen transfiziert, sobald die Zellkonfluenz 70–80 % erreicht hatte. Konkret wurden 2,5 µg Plasmid-DNA und 5 µL eines lipidbasierten Transfektionsreagenzes jeweils in 150 µL Medium mit reduziertem Serumanteil verdünnt, vorsichtig gemischt, 20 Minuten bei Raumtemperatur inkubiert und anschließend gemäß Herstellervorschrift jeder Vertiefung einer 6-Loch-Platte zugegeben. Die Zellen wurden 48 h bei 37 °C inkubiert, und die Transfektionseffizienz wurde anschließend überprüft.
Cell-Counting-Kit-8 (CCK-8)-Test
Die Zellviabilität nach Rus-Behandlung wurde mittels CCK-8-Assay quantifiziert. Hierzu wurden Zellen zunächst in 96-Well-Platten ausgesät und über Nacht kultiviert. Der Assay wurde durch Zugabe von 10 µL CCK-8-Lösung gestartet, und nach 2-stündiger Inkubation wurde die resultierende farbige Veränderung als optische Dichte (OD) bei 450 nm mithilfe eines Plattenlesegeräts gemessen.
Koloniebildungs-Assay
Zur Beurteilung der klonogenen Überlebensfähigkeit wurden C666-1-Zellen in 6-Loch-Platten ausgesät und 14 Tage lang kultiviert. Nach der Inkubationszeit wurden die entstandenen Kolonien 10 min mit 100 % Methanol fixiert und anschließend 30 min mit 0,5 % Kristallviolett angefärbt. Die Anzahl der gefärbten Kolonien wurde dann durch mikroskopische Bildaufnahme und Zählung quantifiziert.
Western Blot
Für die Western-Blot-Analyse wurde zunächst Gesamtprotein mit RIPA-Puffer aus Zellen extrahiert, und die resultierenden Lysate wurden zentrifugiert (12.000 × g), um den Überstand zu gewinnen. Zur Quantifizierung der Proteinkonzentration wurde ein BCA-Assay verwendet. Gleichmäßige Mengen an Gesamtprotein (30 µg pro Lane) wurden geladen und mittels 10%iger Natrium-Dodecylsulfat-Polyacrylamid-Gelelektrophorese (SDS-PAGE) getrennt. Nach der Trennung wurden die Proteine bei konstanter Spannung von 100 V für 90 min auf Eis auf Polyvinylidenfluorid- (PVDF-)Membranen übertragen. Die Membranen wurden anschließend 2 h bei Raumtemperatur in 5%iger Rinderserumalbumin (BSA) in Tris-gepufferter Salzlösung mit 0,1% Tween 20 (TBST) blockiert. Danach wurden die Membranen über Nacht bei 4 °C mit den folgenden primären Antikörpern im Blockierpuffer (alle 1:1000 verdünnt) inkubiert: Ki67, PCNA, MMP2, MMP9, Bcl-2, Bax, KDM1A, SLC7A11, GPX4, ACSL4, TFR1 und β-Aktin. Schließlich wurden nach einer 2-stündigen Inkubation mit HRP-konjugierten sekundären Antikörpern die immunreaktiven Banden mittels eines verbesserten Chemilumineszenz-(ECL-)Nachweismittels sichtbar gemacht, und eine dichtometrische Analyse wurde mit Bildanalyse-Software durchgeführt.
Wund-Scratch-Assay
Für den Wundheilungs-Assay wurden C666-1-Zellen in 6-Well-Platten bis zu einer Konfluenz von 80 % kultiviert. Eine einheitliche Wunde wurde durch Abkratzen mit einer 200-µL-Pipettenspitze in die Zellschicht eingeführt. Abgelöste Zellen wurden durch eine PBS-Waschung entfernt, anschließend wurde das Kulturmedium durch serumfreies Medium ersetzt und die Zellen 24 Stunden inkubiert. Bilder des Wundbereichs wurden mit einem Lichtmikroskop nach 0 h und 24 h aufgenommen, um die Zellmigration zu beurteilen.
Transwell-Assay
Die Zellinvasion wurde mithilfe von Transwell-Kammern (8-µm-Porengröße), die zuvor mit 50 µL Basalmembran-Matrix beschichtet worden waren, bewertet. Die invasive Kapazität von C666-1-Zellen wurde unter Verwendung von Transwell-Kammern untersucht. Die oberen Einsätze wurden mit in serumfreiem Medium suspendierten Zellen besiedelt, während die unteren Kammern DMEM mit 10 % FBS enthielten. Nach einer 24-stündigen Inkubation wurden die auf der apikalen Seite der Membran verbliebenen Zellen vorsichtig entfernt. Zur Quantifizierung wurden die Zellen auf der basolateralen Oberfläche mit Methanol fixiert, mit 0,1 % Kristallviolett angefärbt und anhand von Bildern, die per Lichtmikroskopie aufgenommen wurden, gezählt.
Durchflusszytometrie
Die Apoptose wurde mittels Durchflusszytometrie quantifiziert. Zur Probenvorbereitung wurden C666-1-Zellen gesammelt, mit eiskaltem PBS gewaschen und anschließend in 100 µL Bindungspuffer resuspendiert. Die Zellen wurden dann gleichzeitig mit Annexin-V-FITC (20 µg/mL) und Propidiumiodid (PI) gefärbt. Die Färbung erfolgte 15 Minuten lang auf Eis und lichtgeschützt. Unmittelbar danach wurden die Daten auf einem Durchflusszytometer erfasst, um den Prozentsatz apoptotischer Zellen zu bestimmen.
Nachweis der Caspase-3-Aktivität
Die Aktivität von Caspase-3 wurde mit einem kommerziellen Testkit gemäß den Herstelleranweisungen gemessen. Kurz gesagt, wurden C666-1-Zellen lysiert und die Überstände nach einer Zentrifugation bei 14.000 × g gesammelt. Nach einer zweistündigen Inkubation mit dem bereitgestellten Reagenz wurde die Absorption jedes Überstands bei 405 nm quantifiziert.
RT-qPCR
Gesamt-RNA wurde aus C666-1-Zellen unter Verwendung eines kommerziellen RNA-Extraktionsreagenz isoliert. Die erhaltene RNA wurde anschließend mit einem kommerziellen Kit gemäß Herstellervorschrift in cDNA erster Strang umgeschrieben. Die Genexpressionsanalyse erfolgte im Anschluss mittels quantitativer PCR (qPCR) an einem Echtzeit-PCR-System unter Verwendung einer auf SYBR Green basierenden Master-Mix-Lösung. Zur Bestimmung der relativen Transkriptmengen wurde die comparative-Ct-Methode (2⁻△△Ct) angewandt. Die für die Amplifikation verwendeten Primersequenzen lauteten: β-actin (Forward: 5'-CATGTACGTTGCTATCCAGGC-3'; Reverse: 5'-CTCCTTAATGTCACGCACGAT-3') und KDM1A (Forward: 5'-TGACCGGATGACTTCTCAAGA-3'; Reverse: 5'-GTTGGAGAGTAGCCTC AAATGTC-3').
Test auf thiobarbitursäurereaktive Substanzen (TBARS)
Zur Messung der Lipidperoxidation wurden zunächst Supernatanten aus C666-1-Zellen durch Präzipitation (15 % TCA, 500 mM BHA) und Zentrifugation für 10 min bei 10.000 × g gewonnen. Diese Supernatanten wurden anschließend mit 0,375 % Thiobarbitursäure umgesetzt und 10 min bei 100 °C erhitzt, um das MDA-TBA-Addukt zu bilden. Der Gehalt an diesem Addukt, ein Indikator für Lipidperoxidation, wurde durch Messung der Absorption bei 532 nm in einem Mikroplattenreader bestimmt23.
Nachweis von lipidreaktiven sauerstoffhaltigen Spezies (ROS)
Die Lipidperoxidation wurde mithilfe eines fluoreszierenden Probes für Lipidperoxidation nachgewiesen. C666-1-Zellen wurden in 6-Well-Platten ausgesät, über Nacht kultiviert und anschließend der fluoreszierenden Sonde (2 µM) ausgesetzt. Diese Sonde zeigt bei Oxidation eine Fluoreszenzverschiebung von rot nach grün. Das Verhältnis der grünen zu roten Fluoreszenz wurde mittels eines Laser-Scanning-Konfokalmikroskops und einer Bildanalyse-Software analysiert. Das dargestellte Verhältnis der grünen zu roten Fluoreszenz war deutlich definiert und diente als quantitativer Indikator für die Lipidperoxidationsniveaus24.
Nachweis von Fe2+
Der intrazelluläre Gehalt an zweiwertigem Eisen (Fe2⁺) wurde mithilfe eines fluoreszierenden intrazellulären Eisenprobes bestimmt. C666-1-Zellen wurden 10 Minuten lang mit einer 10 µM fluoreszierenden Probe inkubiert. Nach dem Waschen mit PBS zur Entfernung überschüssiger Probe wurden die Zellen mittels Fluoreszenzmikroskopie analysiert.
Molekulare Docking-Analyse
Das molekulare Docking ist eine entscheidende computergestützte Methode, die die Entwicklung neuer Wirkstoffe ermöglicht, indem sie die Bindungsaffinität und Wechselwirkung zwischen einem Liganden und seinem Zielprotein durch die Bewertung ihrer Bindungsmodi vorhersagt25. Über die RCSB PDB-Webseite (https://www.rcsb.org/) wurde die dreidimensionale Struktur von KDM1A (PDB-ID: 6NQU) bezogen. Zur Vorbereitung der KDM1A-Proteinstruktur wurden Wasser entfernt und irrelevante kleine Liganden beseitigt. Die molekulare Docking-Simulation wurde mithilfe von Docking-Software unter Anwendung des Lamarck’schen genetischen Algorithmus durchgeführt, und die Visualisierung erfolgte unter Nutzung von Molekülvisualisierungssoftware26.
Statistische Analyse
Alle Experimente wurden mit mindestens drei unabhängigen biologischen Wiederholungen durchgeführt, und die Ergebnisse werden als Mittelwert ± Standardabweichung (SD) dargestellt. Die statistische Analyse wurde mit statistischer Analyse-Software durchgeführt. Unterschiede zwischen mehreren Gruppen wurden mittels einfaktorieller Varianzanalyse (ANOVA) gefolgt von Tukeys Post-hoc-Test für multiple Vergleiche bewertet. Ein P-Wert von weniger als 0,05 wurde als Hinweis auf einen statistisch signifikanten Unterschied angesehen.
Ergebnisse
Ruscogenin hemmt selektiv die Vitalität und Proliferation von nasopharyngealen Karzinomzellen
Die Studie untersuchte zunächst den Einfluss von Ruscogenin (Rus) auf die Vitalität sowohl normaler nasopharyngealer Epithelzellen (NP69) als auch von nasopharyngealen Karzinomzellen (NPC) (C666-1). Wie mittels CCK-8-Assay bestimmt wurde, zeigte eine Behandlung mit Rus in Konzentrationen von 10, 20 und 50 µM keine signifikante Toxizität gegenüber den normalen NP69-Zellen. Im Gegensatz dazu beeinträchtigte Ruscogenin (Rus) die Überlebensfähigkeit der C666-1-Tumorzellen signifikant in einer sowohl konzentrations- als auch inkubationszeitabhängigen Weise. Die stärkste zytotoxische Wirkung wurde bei 50 µM beobachtet (p < 0,001) (Abbildung 1B-C). Anschließend wurde ein Koloniebildungs-Assay durchgeführt, um die klonogene Überlebensfähigkeit der C666-1-Zellen nach Rus-Behandlung zu bewerten. Die Ergebnisse zeigten, dass Rus die klonogene Überlebensfähigkeit der C666-1-Zellen in stark signifikanter, dosisabhängiger Weise hemmte (Abbildung 1D). Um diese Ergebnisse auf molekularer Ebene zu bestätigen, wurde die Expression der proliferationsbezogenen Proteine Ki67 und PCNA mittels Western Blot analysiert (Abbildung 1E). Diese Ergebnisse zeigen, dass Ruscogenin eine anti-proliferative Wirkung aufweist, die im Vergleich zu normalen nasopharyngealen Epithelzellen selektiv für NPC-Zellen ist. Diese Selektivität wurde durch die signifikante, dosisabhängige Abnahme der Proteinspiegel von Ki67 und PCNA in C666-1-Zellen weiter bestätigt (p < 0,001 bei 50 µM) (Abbildung 1E).
Ruscogenin hemmt die Migration und Invasion von C666-1-Zellen
Da Metastasierung ein Schlüsselmerkmal maligner Tumore darstellt, untersuchte die Studie anschließend den Einfluss von Rus auf die Migrations- und Invasionsfähigkeit von C666-1-Zellen. Der Wundheilungs-Test zeigte, dass die Behandlung mit Rus die Wundheilungsfähigkeit der C666-1-Zellen dosisabhängig signifikant hemmte (p < 0,001 für 50 µM), was auf eine verminderte Zellmigration hindeutet (Abbildung 2A). Ebenso ergab der Transwell-Test, dass die Anzahl invasiver Zellen nach Behandlung mit Rus deutlich abnahm, wobei der Effekt bei höheren Konzentrationen hochsignifikant war (p < 0,001 für 50 µM) (Abbildung 2B). Diese hemmende Wirkung wurde durch die Western-Blot-Analyse von Matrix-Metalloproteinasen (MMPs) weiter bestätigt. Ruscogenin regulierte dosisabhängig die Expression von MMP2 und MMP9 in C666-1-Zellen herab, wobei bei 50 µM eine hohe statistische Signifikanz erreicht wurde (p < 0,001) (Abbildung 2C). Diese Ergebnisse zeigen, dass Rus die Migration und Invasion von NPC-Zellen mit hoher statistischer Signifikanz wirksam unterdrückt.
Ruscogenin induziert Apoptose in C666-1-Zellen
Um zu bestimmen, ob die beobachtete Verringerung der Zellviabilität auf einen programmierten Zelltod zurückzuführen war, untersuchte die Studie das Ausmaß der Apoptose. Die Durchflusszytometrie bestätigte, dass Ruscogenin die Apoptose in C666-1-Zellen dosisabhängig stark förderte, wobei der Effekt bei 50 µM hochsignifikant war (p < 0,001) (Abbildung 3A). Dies ging einher mit einem entsprechenden und statistisch signifikanten Anstieg der Aktivität von Caspase-3, einem zentralen Effektorenenzym in der apoptotischen Kaskade (p < 0,001 für 50 µM) (Abbildung 3B). Um den apoptotischen Mechanismus weiter zu untersuchen, wurden Schlüsselregulationsproteine analysiert. Die Western-Blot-Analyse zeigte, dass die Behandlung mit Ruscogenin eine signifikante, dosisabhängige Verschiebung in Richtung eines pro-apoptotischen Zustands bewirkte, indem die Expression des anti-apoptotischen Proteins Bcl-2 signifikant verringert und die Expression des pro-apoptotischen Proteins Bax erhöht wurde (p < 0,001 bei 50 µM) (Abbildung 3C). Diese signifikanten Veränderungen in der Proteinexpression bestätigen weiterhin, dass Rus die Apoptose in C666-1-Zellen induziert.
Ruscogenin fördert die Ferroptose in C666-1-Zellen durch die Herabregulation von KDM1A
Anschließend untersuchte die Studie Ferroptose und ihren Zusammenhang mit dem Protein KDM1A. Zunächst wurde beobachtet, dass die Behandlung mit Rus dosisabhängig und signifikant die Expression von KDM1A in C666-1-Zellen verringerte (p < 0,001 für 50 µM) (Abbildung 4A), und eine molekulare Docking-Analyse sagte eine direkte Interaktion zwischen Rus und dem KDM1A-Protein voraus (Abbildung 4B). Um einen kausalen Zusammenhang herzustellen, wurden C666-1-Zellen transfiziert, um KDM1A signifikant zu überexprimieren (p < 0,001) (Abbildung 4C). Die Ergebnisse zeigten, dass die Behandlung mit Rus allein die Marker der Ferroptose signifikant erhöhte, einschließlich der Produktion von TBARS (p < 0,001), der Anreicherung von lipidem ROS (p < 0,001) und des Spiegels intrazellulären zweiwertigen Eisens (Fe2⁺). Entscheidend war, dass die Überexpression von KDM1A diese Effekte signifikant umkehrte und die Niveaus dieser Ferroptose-Marker in Rus-behandelten Zellen senkte (p < 0,001 für alle Vergleiche) (Abbildung 4D–F).
Darüber hinaus zeigte die Analyse wichtiger ferroptotisch verwandter Proteine, dass die Behandlung mit Rus die Spiegel von SLC7A11 und GPX4 signifikant verringerte, während die Spiegel von ACSL4 und TFR1 erhöht wurden (p < 0,001 für alle). Die Überexpression von KDM1A wirkte diesen Veränderungen signifikant entgegen (p < 0,001 für alle) und normalisierte die Expression dieser Proteine wieder in Richtung ihrer Ausgangswerte (Abbildung 4G). Diese Daten legen stark nahe, dass Rus die Ferroptose in NPC-Zellen durch die Herunterregulierung von KDM1A fördert.
Die Überexpression von KDM1A kehrt die hemmenden Wirkungen von Ruscogenin auf die Proliferation, Migration und Invasion von NPC-Zellen um
Um zu bestätigen, dass die Anti-Krebs-Effekte von Rus über KDM1A vermittelt werden, wurden Rescue-Experimente durchgeführt. Es wurde festgestellt, dass die Überexpression von KDM1A die anti-proliferativen Wirkungen von Ruscogenin in C666-1-Zellen signifikant abschwächt, wie durch Zellviabilitäts- und Koloniebildungs-Assays bestätigt wurde (Abbildung 5A–B). Ebenso wurde die signifikante, durch Rus hervorgerufene Abnahme der Ki67- und PCNA-Proteinspiegel durch die Überexpression von KDM1A teilweise, aber signifikant, wiederhergestellt (p < 0,001) (Abbildung 5C). Ähnlich wurden die starken anti-migratorischen und anti-invasiven Wirkungen von Ruscogenin (p < 0,001) durch die Überexpression von KDM1A aufgehoben. Sowohl der Wund-Heilungs-Test als auch der Transwell-Assay zeigten eine signifikante Wiederherstellung der migratorischen und invasiven Fähigkeiten in Zellen mit KDM1A-Überexpression (p < 0,001) (Abbildung 5D). Dies ging einher mit einer signifikanten Wiederherstellung der Proteinexpression von MMP2 und MMP9 (p < 0,001) (Abbildung 5E).
Die Überexpression von KDM1A vermindert die Ruscogenin-induzierte Apoptose in C666-1-Zellen
Abschließend untersuchte die Studie, ob KDM1A auch eine Rolle bei der Rus-induzierten Apoptose spielt. Die Durchflusszytometrie und Caspase-3-Aktivitätsanalysen zeigten, dass die Behandlung mit KDM1A die pro-apoptotische Wirkung von Rus signifikant abschwächte (p < 0,001), was zu einer geringeren Apoptoserate und reduzierten Caspase-3-Aktivität im Vergleich zu Zellen führte, die nur mit Rus behandelt wurden (Abbildung 6A–B). Dies wurde auch durch Western Blot bestätigt, bei dem die Überexpression von Rus die Expression von Bcl-2 und Bax in NPC-Zellen signifikant veränderte und die Überexpression von KDM1A die Rus-induzierten Veränderungen der Bcl-2- und Bax-Expression deutlich umkehrte (p < 0,001) (Abbildung 6C); dabei verschob sich das Gleichgewicht von Zellüberleben hin zu Zelltod (Abbildung 6C). Die Rescue-Experimente zeigten somit, dass Ruscogenin die Proliferation und Invasion hemmt sowie Apoptose und Ferroptose in nasopharyngealen Karzinomzellen induziert, und dass die ruscogeninvermittelten Effekte maßgeblich durch die Herunterregulation von KDM1A vermittelt werden.
VERFÜGBARKEIT DER DATEN:
Die Rohdaten, die die Schlussfolgerungen dieses Artikels unterstützen, sind im Zenodo-Repository unter https://doi.org/10.5281/zenodo.21852421 öffentlich zugänglich.
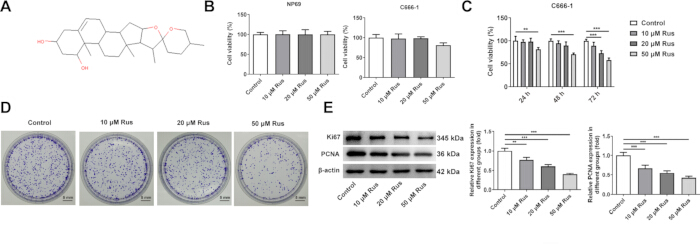
Abbildung 1: Ruscogenin hemmt selektiv die Viabilität und Proliferation von nasopharyngealen Karzinomzellen (n = 3). (A) Die chemische Struktur von Ruscogenin (Rus). (B) Ein Cell Counting Kit-8 (CCK-8)-Assay wurde verwendet, um die Viabilität normaler nasopharyngealer epithelialer NP69-Zellen nach einer 24-stündigen Behandlung mit verschiedenen Konzentrationen von Rus zu messen. (C) C666-1-NPC-Zellen wurden mit den angegebenen Konzentrationen von Rus für 24, 48 oder 72 h behandelt, und ihre Viabilität wurde anschließend mittels CCK-8-Assay bestimmt. (D) Klonogene Überlebensfähigkeit von C666-1-Zellen nach 14-tägiger Exposition gegenüber Rus. Das Panel zeigt repräsentative Bilder und die entsprechende Quantifizierung. (E) Die Expressionsniveaus der proliferationsassoziierten Proteine Ki67 und PCNA in C666-1-Zellen wurden nach einer 24-stündigen Rus-Behandlung mittels Western Blot analysiert, wobei unten die Quantifizierung dargestellt ist. Die Werte stellen den Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten dar. Die Daten sind als Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten angegeben (n = 3). Die statistische Signifikanz wurde mittels einfaktorieller ANOVA mit Tukey’s post-hoc-Test bestimmt. * p < 0,05, ** p < 0,01 und *** p < 0,001 zwischen den angegebenen Gruppen. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
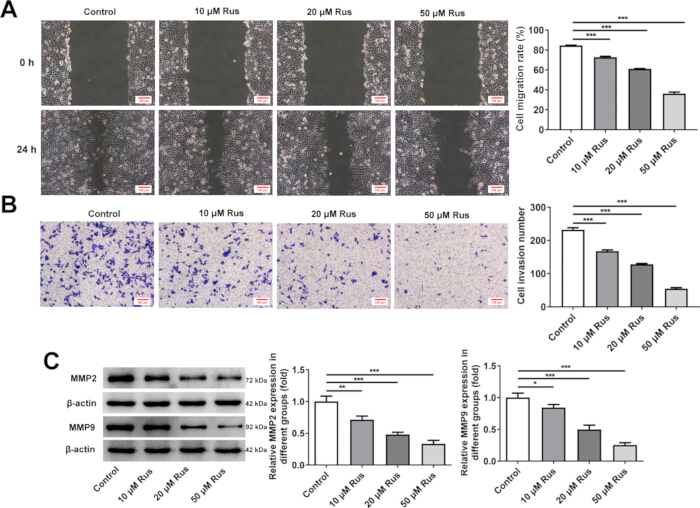
Abbildung 2: Ruscogenin hemmt die Migration und Invasion von C666-1-Zellen (n = 3). (A) Ein Wundheilungsassay wurde durchgeführt, um die Migrationsfähigkeit von C666-1-Zellen zu bewerten. Vertretende Bilder wurden 0 und 24 h nach Behandlung mit verschiedenen Konzentrationen von Rus aufgenommen. Das Diagramm zeigt die Quantifizierung der Zellwanderungsrate. (B) Ein Transwell-Assay wurde durchgeführt, um die invasive Fähigkeit von mit Rus behandelten C666-1-Zellen zu bewerten. Vertretende Bilder zeigen die gefärbten Zellen, die durch die mit Matrigel beschichtete Membran eingedrungen sind. Das Diagramm zeigt die Quantifizierung der eingedrungenen Zellen. (C) Western-Blot-Analyse und Quantifizierung der Migration und Invasion betreffenden Proteine Matrix-Metalloprotease 2 (MMP2) und Matrix-Metalloprotease 9 (MMP9) in C666-1-Zellen. Die Daten sind als Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten dargestellt (n = 3). Die statistische Signifikanz wurde mittels einfaktorieller ANOVA mit Tukey’s Post-hoc-Test bestimmt. * p < 0,05, ** p < 0,01 und *** p < 0,001 zwischen den angegebenen Gruppen. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
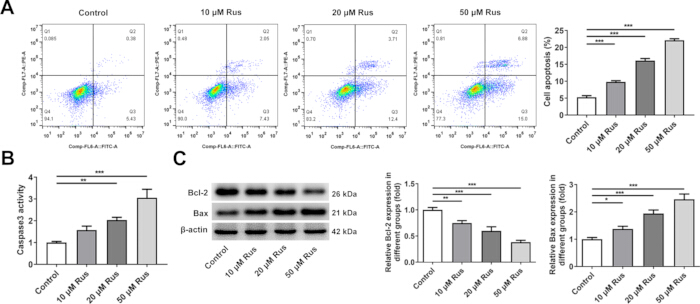
Abbildung 3: Ruscogenin induziert Apoptose in C666-1-Zellen (n = 3). (A) Die Apoptose in C666-1-Zellen, die mit verschiedenen Konzentrationen von Rus behandelt wurden, wurde mittels Durchflusszytometrie unter Verwendung einer Annexin-V-Fluorescein-Isothiocyanat/Propidiumiodid (Annexin-V-FITC/PI)-Färbung analysiert. Das Diagramm zeigt die Quantifizierung des prozentualen Anteils apoptotischer Zellen (die Gesamtapoptose wurde als Summe der frühen und späten apoptotischen Populationen, Q3 + Q2, berechnet). (B) Die Aktivität von Caspase-3, einer Effektorcaspase der Apoptose, wurde in Rus-behandelten C666-1-Zellen gemessen. (C) Western-Blot-Analyse und Quantifizierung des antiapoptotischen Proteins Bcl-2 und des proapoptotischen Proteins Bax. Die entgegengesetzten Veränderungen der Expressionsniveaus von Bax und Bcl-2 deuten auf einen proapoptotischen Effekt hin. Die Daten sind als Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten (n = 3) dargestellt. Die statistische Signifikanz wurde mittels einfaktorieller ANOVA mit Tukeys post-hoc-Test bestimmt. * p < 0,05, ** p < 0,01 und *** p < 0,001 zwischen den angegebenen Gruppen. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Abbildung 4Ruscogenin fördert die Ferroptose in C666-1-Zellen durch die Herunterregulation der lysinspezifischen Demethylase 1A (KDM1A) (n = 3). (A) Westernblot, der die dosisabhängige Herunterregulation des KDM1A-Proteins durch Rus zeigt. (BMolekulare Docking-Simulation, die die vorhergesagte Bindungsinteraktion zwischen Ruscogenin und KDM1A zeigt.C) Echtzeit-PCR nach reverser Transkription (RT-qPCR) und Western Blot-Analysen zur Überprüfung der Transfektionseffizienz des KDM1A-Überexpressionsplasmids (oe-KDM1A) auf mRNA- bzw. Proteinebene.D–G) C666-1-Zellen wurden mit Rus behandelt (50 µM) mit oder ohne KDM1A-Überexpression. (DQuantifizierung der Lipidperoxidation mittels Thiobarbitursäure-reaktiver Substanzen (TBARS)-Assay. (E) Nachweis der Lipidperoxidation unter Verwendung der BODIPY 581/591 C11-Sonde. Das dargestellte Verhältnis der grünen zu roten Fluoreszenz zeigt den Grad der Lipidperoxidation an.FNachweis von intrazellulärem Fe2⁺ unter Verwendung der Phen-Green-SK-Sonde. (G) Western-Blot-Analyse wichtiger eisenabhängigen Zelltod regulierender Proteine (SLC7A11, GPX4, ACSL4 und TFR1). Die Daten sind als Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten (n = 3) dargestellt. Die statistische Signifikanz wurde mittels einfaktorieller ANOVA mit Tukey’s post-hoc-Test bestimmt. * p < 0.05, ** p < 0,01 und *** p < 0,001 zwischen den angegebenen Gruppen.
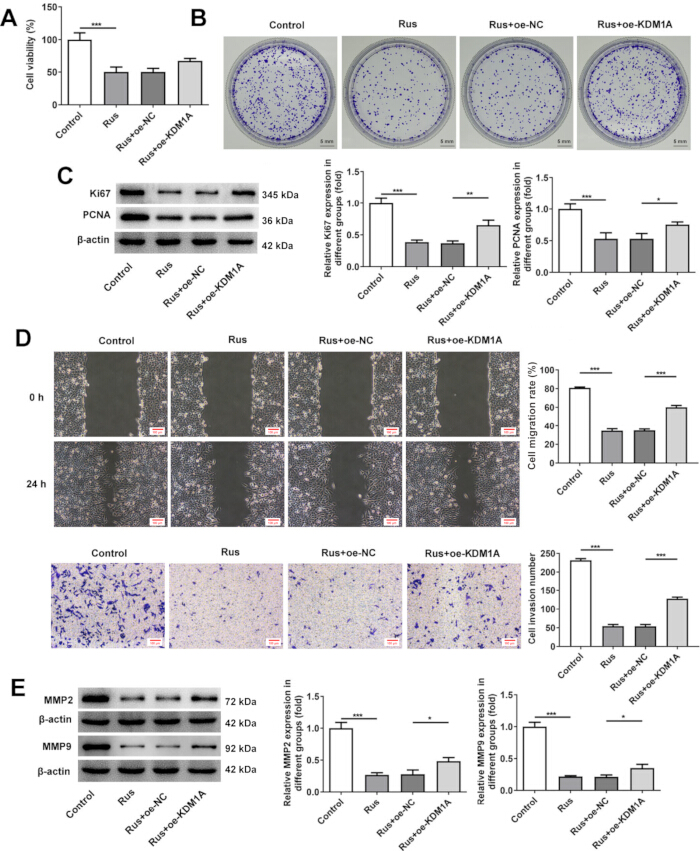
Abbildung 5: Die Überexpression von KDM1A kehrt die hemmende Wirkung von Ruscogenin auf die Proliferation, Migration und Invasion von nasopharyngealen Karzinom-(NPC-)Zellen um (n = 3). C666-1-Zellen wurden in vier Gruppen eingeteilt: Kontrolle, Rus (50 µM), Rus + oe-NC (leerer Vektor) und Rus + oe-KDM1A. (A) Die Zellviabilität wurde mittels CCK-8-Assay bestimmt. (B) Die proliferative Kapazität wurde mittels Koloniebildungs-Assay bewertet. (C) Western-Blot-Analyse von Proliferationsmarkern wie Ki-67 (Ki67) und proliferierendem Zellkernantigen (PCNA). (D) Zellmigration und -invasion wurden mittels Wundheilungs- und Transwell-Assays beurteilt. (E) Western-Blot-Analyse der migrationsbezogenen Proteine MMP2 und MMP9. Die Daten sind als Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten (n = 3) dargestellt. Die statistische Signifikanz wurde mittels einfaktorieller ANOVA mit Tukeys post-hoc-Test bestimmt. * p < 0,05, ** p < 0,01 und *** p < 0,001 zwischen den angegebenen Gruppen. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
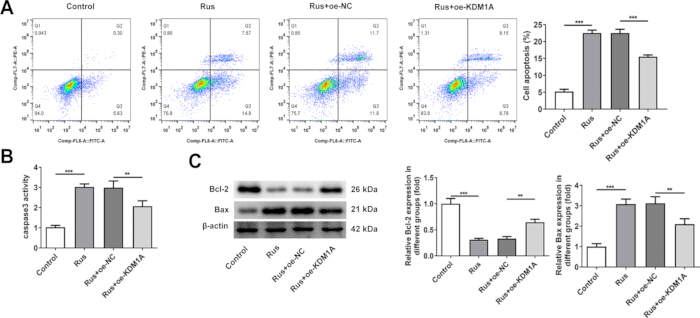
Abbildung 6: Die Überexpression von KDM1A vermindert die durch Ruscogenin induzierte Apoptose in C666-1-Zellen (n = 3). Die Zellen wurden wie in Abbildung 5 beschrieben behandelt. (A) Apoptotische Zellen wurden mittels Durchflusszytometrie nach Färbung mit Annexin-V/PI quantifiziert. Der prozentuale Anteil an apoptotischen Zellen wurde als Summe der frühen und späten apoptotischen Populationen (Q3 + Q2) berechnet. (B) Die Caspase-3-Aktivität wurde gemessen, um das Ausmaß der Apoptose-Durchführung zu bewerten. (C) Eine Western Blot-Analyse wurde durchgeführt, um die Expressionsniveaus der Apoptose-bezogenen Proteine Bcl-2 und Bax zu bestimmen. Die Daten sind als Mittelwert ± Standardabweichung (SD) aus drei unabhängigen Experimenten (n = 3) dargestellt. Die statistische Signifikanz wurde mittels einfaktorieller ANOVA mit Tukey’s post-hoc-Test ermittelt. * p < 0,05, ** p < 0,01 und *** p < 0,001 zwischen den angegebenen Gruppen. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Diskussion
Das nasopharyngeale Karzinom (NPC) ist eine schwere maligne Erkrankung mit hoher Metastasenprävalenz, was erklärt, warum dringend bessere therapeutische Maßnahmen erforderlich sind27. Hier wird gezeigt, dass Ruscogenin (Rus), ein Naturstoff, der als Derivat von Radix ophiopogonis gewonnen wird, starke antitumorale Wirkungen auf NPC-Zellen ausübt. Es wird außerdem gefolgert, dass Rus die Progression des NPC unterdrückt, indem es die Histon-Demethylase KDM1A hemmt, wodurch zwei verschiedene Arten des programmierten Zelltods – nämlich Apoptose und Ferroptose – gefördert werden. Diese Arbeit erläutert eine zuvor unbekannte Rus-KDM1A-Signalachse im NPC, einschließlich eines dualen Wirkmechanismus, der das therapeutische Potenzial verbessern kann.
Die Invasions- und Migrationsfähigkeiten von Krebszellen sind entscheidende Faktoren für die Tumormetastasierung. Die Migrations- und Invasionskapazität von Krebszellen gehören zu den Hauptursachen für Metastasen und sind eng mit ungünstigen klinischen Ergebnissen assoziiert. In den meisten Fällen wird dies durch proteolytische Enzyme wie die Matrix-Metalloproteinase 2 (MMP 2) und MMP 9 erleichtert, die in dieser Situation stark exprimiert sind28. Diese Ergebnisse stützen und erweitern frühere Studien zu den antitumoralen Eigenschaften von Ruscogenin. Übereinstimmend mit früheren Berichten, die anti-metastatische Wirkungen von Ruscogenin beim hepatozellulären Karzinom belegen22 und seine Fähigkeit, Ferroptose in Pankreaskrebs zu induzieren14, bestätigen diese Ergebnisse das breitgefächerte antikanzeröse Potenzial dieser natürlichen Verbindung. Allerdings erweitert diese Studie das derzeitige Wissen signifikant, indem sie einen einzigartigen Doppel-Tod-Mechanismus beim nasopharyngealen Karzinom (NPC) aufdeckt. Traditionelle Chemotherapien stoßen häufig auf klinische Engpässe aufgrund erworbener Resistenz der Tumorzellen gegenüber Apoptose. Indem Ruscogenin gleichzeitig sowohl die klassische Apoptose als auch die eisenabhängige Ferroptose – zwei unterschiedliche und sich nicht überlappende Zelltodmodalitäten – auslöst, umgeht es effektiv diese Resistenz. Dieser zweigleisige Angriff erzeugt eine starke synthetische Vulnerabilität in NPC-Zellen und liefert damit eine überzeugende translationsmedizinische Begründung für die Entwicklung von Ruscogenin als therapeutisches Mittel gegen therapieresistente oder chemoresistente Tumore. Mithilfe von Wund-Heilungs-Assay, Transwell-Assay und Western Blot zeigten die Daten, dass die Behandlung mit Ruscogenin (Rus) hemmende Effekte auf die Migrations- und Invasionsfähigkeit der C666-1-Zellen ausübte, verbunden mit verringerten Spiegeln von MMP2 und MMP9. Eine Störung des empfindlichen Gleichgewichts zwischen Zellproliferation und Apoptose ist ein zentraler Treiber der Tumorigenese.29Daher stellt die Induktion der Apoptose bei gleichzeitiger Hemmung der Proliferation eine zentrale therapeutische Strategie zur Hemmung der Tumorprogression dar³⁰. Bekanntermaßen unterdrückt das Bcl-2-Protein die zelluläre Apoptose, indem es die frühe Verknüpfung mit dem programmierten Zelltod unterbricht, während das Bax-Protein die zelluläre Apoptose beschleunigt, indem es ein Dimer mit dem Bcl-2-Protein bildet und dadurch Bcl-2 inaktiviert.31Ki67 und PCNA sind weit verbreitete Marker für die Proliferation von Krebszellen.32Es wurde gezeigt, dass Rus den Zellzyklus wirksam stoppt und Apoptose induziert, wie durch die Herabregulation der Proliferationsmarker Ki67 und PCNA, eine Verringerung des antiapoptotischen Proteins Bcl-2 und eine Zunahme des proapoptotischen Proteins Bax belegt wird. Diese Veränderung des Bax/Bcl-2-Verhältnisses, verbunden mit erhöhter Caspase-3-Aktivität, bestätigt, dass Rus das zelluläre Schicksal von NPC-Zellen in Richtung apoptotischen Zelltods lenkt, ein zentraler Mechanismus effektiver Krebstherapien.
Das zweite neuartige Element dieser Forschung ist der Beitrag von Rus bei der Induktion der Ferroptose. Die regulierte Zelltodform, einschließlich der Ferroptose, die eine besondere Art der Eisen- und Lipidperoxid-abhängigen Akkumulation darstellt, gilt mittlerweile als bedeutende therapeutische Schwachstelle, um das Fortschreiten von NPCs zu verhindern33. Diese Erkrankung kann daher durch die Induktion der Ferroptose behandelt werden, da dies nun als wirksame Behandlungsstrategie angesehen wird34. Eine Vielzahl zentraler Enzyme reguliert diesen Prozess streng. Besonders hervorzuheben ist GPX4 als zentraler antioxidativer Inhibitor, der die Bildung toxischer Lipidperoxide auf eisenabhängige Weise hemmt. Die Aktivität von GPX4 hängt außerdem von einem Cystin/Glutamat-Antiporter, dem System Xc⁻, ab, wobei SLC7A11 eine der wichtigsten Untereinheiten ist. SLC7A11 unterstützt die Aufnahme von Cystin zur Synthese von Glutathion, wodurch die Lipidoxidation vermindert und die Ferroptose gehemmt wird35. Die Daten zeigen, dass die Behandlung mit Rus die charakteristischen Symptome der Ferroptose hervorrief, darunter die Akkumulation von lipidem ROS, erhöhte intrazelluläre Fe2+-Spiegel und eine gesteigerte Produktion von TBARS. Intuitiv bewirkte Rus dies durch eine Umgestaltung der Expression zentraler ferroptotischer Regulatoren. Es unterdrückte die Untereinheit SLC7A11 des System Xc⁻-Antiporters sowie die Glutathionperoxidase GPX4, die primäre Abwehrmechanismen gegen die Lipidperoxidation darstellen. Gleichzeitig erhöhte Rus die Expression von ACSL4 und TFR1, die essentielle Proteine des Lipidstoffwechsels bzw. der Eisenabsorption sind, wodurch die Zellen anfälliger für ferroptotischen Zelltod werden. Dies unterstreicht erneut, dass Rus in der Lage ist, den Ferroptose-Weg effizient zu nutzen, und stellt einen vielversprechenden Ansatz zur Überwindung der Resistenz gegen herkömmliche, auf Apoptose basierende Therapien dar.
In dieser Studie fungiert KDM1A, eine Histon-Demethylase, als mechanistische Schlüsselkomponente der Wirkung von Rus. KDM1A, bekannt als Onkoprotein im nasopharyngealen Karzinom (NPC) und anderen Krebsarten, fördert die Zellproliferation und das Zellüberleben. Eine fehlerhafte KDM1A-Expression ist allgemein an der Entstehung verschiedener Malignome beteiligt, darunter Gliom, Endometriumadenokarzinom und NPC36. Darüber hinaus wurde KDM1A in zahlreiche biologische Prozesse involviert, die zur Krebsprogression beitragen, wie Multidrug-Resistenz, Proliferation und EMT37. Bemerkenswerterweise haben jüngste Studien berichtet, dass eine Überexpression von KDM1A die Ferroptose im Lungenkrebs unterdrückt21 und den Zellzyklus in Pankreaskrebs vorantreibt. Die Ergebnisse im NPC stimmen perfekt mit diesen bestehenden Studien überein und zeigen, dass eine gezielte Herabregulation von KDM1A ausreicht, um die Blockade der Ferroptose aufzuheben und die Proliferation zu stoppen. Noch wichtiger ist, dass neue biologische Belege geliefert werden, die zeigen, dass die pharmakologische Targeting eines einzelnen epigenetischen Regulators (KDM1A) durch Ruscogenin gleichzeitig die Apoptosevermeidung und die Ferroptose-Resistenz aufheben kann. Dies unterstreicht die tiefgreifende biologische Bedeutung einer epigenetischen Intervention und positioniert die KDM1A-Achse als zentrale Schaltstelle für das Schicksal von Krebszellen. Die molekulare Docking-Analyse zeigte eine mögliche direkte Interaktion zwischen Rus und KDM1A, was anschließend durch Experimente bestätigt wurde, in denen die Behandlung mit Rus die Produktion von KDM1A signifikant herunterregulierte. Die Rescue-Experimente belegten über jeden Zweifel hinaus die essentielle Rolle von KDM1A. Eine Überexpression von KDM1A kehrte außerdem Proliferation, Migration und Invasion signifikant um und neutralisierte die pro-ferroptotischen und pro-apoptotischen Effekte von Rus. Dies ist ein starker Hinweis darauf, dass KDM1A ein maßgeblicher downstream entzündlicher Effektor im Zentrum der antitumoralen Wirkung von Rus ist und somit die Rus-KDM1A-Achse einen dominanten therapeutischen Ansatzpunkt darstellt.
Trotz dieser vielversprechenden Ergebnisse weisen mehrere Limitationen der vorliegenden Studie wichtige zukünftige Forschungsrichtungen auf. Erstens basiert der gegenwärtige Evidenzbestand hauptsächlich auf einer einzigen NPC-Zelllinie (C666-1) und vollständig in vitro Experimente. Obwohl dies einen starken, grundlegenden mechanistischen Beweis des Prinzips liefert, erfordert die biologische Heterogenität des nasopharyngealen Karzinoms (NPC), dass zukünftige Studien die Rus-KDM1A-Achse in mehreren NPC-Zelllinien sowie in patientenabgeleiteten Organoidmodellen validieren. Zweitens sind, um diese vorläufigen therapeutischen Implikationen vollständig in klinisches Potenzial zu überführen, dringend umfassende In-vivo-Studien unter Verwendung muriner Xenotransplantatmodelle erforderlich. Solche Studien werden entscheidend sein, um die systemische Toxizität, die Pharmakokinetik sowie die tatsächliche antitumorale Wirksamkeit von Ruscogenin in einem komplexen, lebenden Tumormikroumfeld zu bewerten. Schließlich mag, trotz der Identifizierung von KDM1A als einem zentralen Mediator, Ruscogenin als natürlicher Wirkstoff auch weitere molekulare Zielstrukturen besitzen, die zu seiner umfassenden antikanzerösen Aktivität beitragen. Zukünftige Forschungsarbeiten, die proteomische oder transkriptomische Methoden einsetzen, können dazu genutzt werden, einen umfassenderen Wirkmechanismus abzugrenzen.
Abschließend zeigt diese Studie, dass Ruscogenin eine signifikante Wirksamkeit bei der Verhinderung der Malignität von nasopharyngealem Karzinom aufweist. Dies geschieht durch die Hemmung von KDM1A, wodurch eine doppelte Attacke auf die Krebszellen ausgelöst wird, die gleichzeitig Apoptose und Ferroptose induziert. Die Ergebnisse liefern nicht nur eine überzeugende Begründung für die Entwicklung von Ruscogenin als therapeutisches Mittel bei NPC, sondern stützen auch die Vorstellung, dass KDM1A ein wichtiger Zielpunkt ist und dass dieser Effekt mit geeigneten Arzneimitteln erzielt werden kann.
Die vorliegende Studie liefert Hinweise darauf, dass Ruscogenin ein potenzieller therapeutischer Kandidat zur Hemmung der malignen Transformation von Nasopharynxkarzinomen durch Unterdrückung der Zellproliferation, Migration und Invasion ist. Der Hauptmechanismus, über den diese antitumorale Wirkung vermittelt wird, ist die spezifische Hemmung der Histon-Demethylase KDM1A. Diese durch Ruscogenin verursachte KDM1A-Hemmung aktiviert einen zweigleisigen pro-apoptotischen Signalweg, der zur gleichzeitigen Induktion der klassischen Apoptose, gekennzeichnet durch die Aktivierung von Caspase-3, sowie der Eisen-abhängigen Ferroptose, gekennzeichnet durch lipidperoxidative Prozesse, führt. Rettestexperimente zeigten eindeutig, dass die Rus-KDM1A-Achse eine entscheidende Rolle spielt, da die Überexpression von KDM1A die antitumoralen Effekte von Ruscogenin aufhob. Die Ergebnisse dieser Studie sind zudem von Wert, da sie nicht nur einen neuartigen Wirkmechanismus von Ruscogenin erläutern, sondern auch einen möglichen Ansatz zur Überwindung therapeutischer Resistenz aufzeigen, indem zwei unterschiedliche Zelltodwege gleichzeitig aktiviert werden. Somit stellen diese Ergebnisse einen klaren Beleg für die fortgesetzte Entwicklung von Ruscogenin dar und bestätigen den KDM1A-Signalweg als neues therapeutisches Ziel beim Nasopharynxkarzinom.
Offenlegungen
Die Autoren erklären, dass keine konkurrierenden finanziellen Interessen bestehen. Die Autoren erklären, dass keine generativen KI-Tools bei der Konzeption der Studie, der Datenerhebung, der Datenanalyse oder der Erstellung von Abbildungen verwendet wurden. KI-gestützte Technologien kamen ausschließlich für geringfügige sprachliche Überarbeitungen und Grammatikkorrekturen während der Ausarbeitung dieses Manuskripts zum Einsatz. Die Autoren übernehmen die vollständige Verantwortung für Inhalt und Integrität der veröffentlichten Arbeit.
Danksagungen
Nicht zutreffend.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 7500 Fast Echtzeit-PCR-System | Applied Biosystems | 4351106 | RT-qPCR-Analyse |
| Annexin-V-FITC/PI-Apoptose-Kit | BD Biosciences | 556547 | Nachweis von Apoptose mittels Durchflusszytometrie |
| Antikörper gegen ACSL4 | Abcam | ab155282 | Primärantikörper für die Westernblot-Analyse |
| Anti-Bax-Antikörper | Cell Signaling Technology (CST) | 5023 | Primärantikörper für die Westernblot-Analyse |
| Anti-Bcl-2-Antikörper | Cell Signaling Technology (CST) | 15071 | Primärantikörper für die Westernblot-Analyse |
| Antikörper | |||
| Antikörper gegen GPX4 | Abcam | ab125066 | Primärantikörper für die Westernblot-Analyse |
| Anti-KDM1A (LSD1)-Antikörper | Cell Signaling Technology (CST) | 2139 | Primärantikörper für die Westernblot-Analyse |
| Antikörper gegen Ki67 | Abcam | ab16667 | Primärantikörper für die Westernblot-Analyse |
| Anti-MMP2-Antikörper | Abcam | ab92536 | Primärantikörper für die Westernblot-Analyse |
| Anti-MMP9-Antikörper | Abcam | ab76003 | Primärantikörper für die Westernblot-Analyse |
| Anti-PCNA-Antikörper | Cell Signaling Technology (CST) | 13110 | Primärantikörper für die Westernblot-Analyse |
| Anti-Kanin-IgG, HRP-gekoppelt | Cell Signaling Technology (CST) | 7074 | Sekundärantikörper |
| Anti-SLC7A11 (xCT)-Antikörper | Abcam | ab175186 | Primärantikörper für die Westernblot-Analyse |
| Anti-TFR1-Antikörper | Abcam | ab84036 | Primärantikörper für die Westernblot-Analyse |
| Anti-β-Actin-Antikörper | Cell Signaling Technology (CST) | 4970 | Primärantikörper für die Ladekontrolle |
| Assay-Kits | |||
| Autodock 4.2 | Scripps Research Institute | N/V | Molekulare Docking-Simulation |
| BCA-Protein-Assay-Kit | Beyotime Biotechnology | P0012 | Proteinquantifizierung |
| BODIPY 581/591 C11-Probe | Invitrogen (Thermo Fisher Scientific) | D3861 | Nachweis von lipidperoxidationsbedingten ROS (2 μM) |
| C666-1-Zelllinie | iCell Bioscience Inc. | iCell-h378 | Humanes nasopharyngeales Karzinomzellinie |
| Caspase-3-Aktivitäts-Assay-Kit | Beyotime Biotechnology | C1115 | Bewertung der Apoptose |
| CCK-8-Assay-Kit | Dojindo Molecular Technologies | CK04 | Messung der Zellviabilität |
| Chemikalien & Reagenzien | |||
| CytoFLEX-Durchflusszytometer | Beckman Coulter | CytoFLEX | Analyse der Apoptose |
| ECL-Detektionsreagenz | MilliporeSigma | WBKLS0500 | Western Blot-Visualisierung (Immobilon) |
| Ausrüstung | |||
| Fötales Kälberserum (FBS) | Gibco (Thermo Fisher Scientific) | 10099141 | Zellkulturzusatzstoff |
| GraphPad Prism 8.0 | GraphPad Software | N/V | Statistische Analyse und Visualisierung |
| ImageJ-Software | NIH | N/V | Analyse der Bild-Densitometrie |
| Keratinozyten-Serumfreies Medium | iCell Bioscience Inc. | iCell-019 | Für die Kultivierung von NP69-Zellen |
| Laser-Scanning-Konfokalmikroskop | Carl Zeiss | LSM 880 | BODIPY C11-Fluoreszenzbildgebung |
| Licht-/Fluoreszenzmikroskop | Olympus | IX73 | Wund-Scratch, Transwell & Fe2+-Abbildung |
| LightCycler 480 SYBR Green I Master | Roche Diagnostics | 4887352001 | Quantitative Echtzeit-PCR |
| Lipofectamine 2000 Reagenz | Invitrogen (Thermo Fisher Scientific) | 11668019 | Zelltransfektionsreagenz |
| Matrigel | Corning | 356234 | Basalmembran-Matrix für Invasionstest |
| Mikroplattenreader | Molecular Devices | SpectraMax M5 | Absorptionsmessung (405, 450, 532 nm) |
| NP69-Zelllinie | iCell Bioscience Inc. | iCell-h431 | Normale humane nasopharyngeale epitheliale Zelllinie |
| oe-KDM1A & oe-NC-Plasmide | Shanghai GenePharma Co., Ltd. | Maßgeschneiderte Synthese | Plasmide für die Überexpression von KDM1A |
| Phen Green SK (PGSK)-Sonde | Invitrogen (Thermo Fisher Scientific) | P14312 | Nachweis von intrazellulärem Fe2+ (10 μM) |
| Pymol 3.0 | Schrödinger | N/V | Molekulares Docking-Visualisierung |
| Reverse-Transkriptions-Kit | Roche Diagnostics | 4379012001 | Transcriptor First Strand cDNA Synthesis Kit |
| RIPA-Lysepuffer | Solarbio (Peking, China) | R0010 | Extraktion von Gesamtprotein |
| RPMI 1640-Medium | iCell Bioscience Inc. | iCell-0002 | Für die Kultivierung von C666-1-Zellen |
| Ruscogenin (Rus) | MedChemExpress (MCE) | HY-N0193 | Medikamentöse Behandlung, Reinheit ≥ 98% |
| Software | |||
| TBARS-Assay-Kit | Cayman Chemical | 10009055 | Messung der Lipidperoxidation |
| TRizol-Reagenz | Invitrogen (Thermo Fisher Scientific)* | 15596026 | Extraktion der gesamten RNA |
Referenzen
- Zhou R, Qiu L, Zhou L, Geng R, Yang S, Wu J. P4HA1 activates HMGCS1 to promote nasopharyngeal carcinoma ferroptosis resistance and progression. Cell Signal. 2023;105:110609.
- Cao JY, Liu L, Chen SP, Zhang X, Mi YJ, Liu ZG, et al. Prognostic significance and therapeutic implications of centromere protein F expression in human nasopharyngeal carcinoma. Mol Cancer. 2010;9:237.
- Dixon SJ, Lemberg KM, Lamprecht MR, Skouta R, Zaitsev EM, Gleason CE, et al. Ferroptosis: an iron-dependent form of nonapoptotic cell death. Cell. 2012;149(5):1060-72.
- Liu S, Zhang HL, Li J, Ye ZP, Du T, Li LC, et al. Tubastatin A potently inhibits GPX4 activity to potentiate cancer radiotherapy through boosting ferroptosis. Redox Biol. 2023;62:102677.
- Amos A, Jiang N, Zong D, Gu J, Zhou J, Yin L, et al. Depletion of SOD2 enhances nasopharyngeal carcinoma cell radiosensitivity via ferroptosis induction modulated by DHODH inhibition. BMC Cancer. 2023;23(1):117.
- Jiang H, Li M, Du K, Ma C, Cheng Y, Wang S, et al. Traditional Chinese medicine for adjuvant treatment of breast cancer: Taohong Siwu decoction. Chin Med. 2021;16(1):129.
- Shang L, Wang Y, Li J, Zhou F, Xiao K, Liu Y, et al. Mechanism of Sijunzi decoction in the treatment of colorectal cancer based on network pharmacology and experimental validation. J Ethnopharmacol. 2023;302(Pt A):115876.
- Yang CH, Tung KL, Wu YT, Liu C, Lin SC, Yang CC, et al. Qing Yan Li Ge Tang, a Chinese herbal formula, induces autophagic cell death through the PI3K/Akt/mTOR pathway in nasopharyngeal carcinoma cells in vitro. Evid Based Complement Alternat Med. 2021;2021:9925684.
- Ren T, Bai XY, Yang MZ, Xu N, Guo XZ, Qin LJ, et al. Gambogic acid suppresses nasopharyngeal carcinoma via rewiring the molecular network of cancer malignancy and immunosurveillance. Biomed Pharmacother. 2022;150:113012.
- Zhou T, Zhao S, Tang S, Wang Y, Wu R, Zeng X, et al. Guggulsterone promotes nasopharyngeal carcinoma cells' exosomal Circfip1L1 to mediate miR-125a-5p/VEGFA, affecting tumor angiogenesis. Curr Mol Pharmacol. 2023;16(8):870-80.
- Feng X, Shi H, Chao X, Zhao F, Song L, Wei M, et al. Deciphering the pharmacological mechanism of the herb Radix Ophiopogonis in the treatment of nasopharyngeal carcinoma by integrating iTRAQ-coupled 2-D LC-MS/MS analysis and network investigation. Front Pharmacol. 2019;10:253.
- Kim W, Lee WB, Lee J, Min BI, Lee H, Cho SH. Traditional herbal medicine as adjunctive therapy for nasopharyngeal cancer: a systematic review and meta-analysis. Integr Cancer Ther. 2015;14(3):212-20.
- Zhao J, He B, Seshadri VD, Xu S. Anticancer effect of ruscogenin in B(a)P-induced lung cancer in mice via modulation of proinflammatory cytokines and mitochondrial enzymes. Appl Biochem Biotechnol. 2022;194(12):5862-77.
- Rabitha R, Shivani S, Showket Y, Sudhandiran G. Ferroptosis regulates key signaling pathways in gastrointestinal tumors: underlying mechanisms and therapeutic strategies. World J Gastroenterol. 2023;29(16):2433-51.
- Feinberg AP, Koldobskiy MA, Göndör A. Epigenetic modulators, modifiers and mediators in cancer etiology and progression. Nat Rev Genet. 2016;17(5):284-99.
- Song Y, Wu F, Wu J. Targeting histone methylation for cancer therapy: enzymes, inhibitors, biological activity and perspectives. J Hematol Oncol. 2016;9(1):49.
- Zhang W, Ruan X, Li Y, Zhi J, Hu L, Hou X, et al. KDM1A promotes thyroid cancer progression and maintains stemness through the Wnt/β-catenin signaling pathway. Theranostics. 2022;12(4):1500-17.
- Ismail T, Lee HK, Kim C, Kwon T, Park TJ, Lee HS. KDM1A microenvironment, its oncogenic potential, and therapeutic significance. Epigenetics Chromatin. 2018;11(1):33.
- Hou X, Li Q, Yang L, Yang Z, He J, Li Q, et al. KDM1A and KDM3A promote tumor growth by upregulating cell cycle-associated genes in pancreatic cancer. Exp Biol Med (Maywood). 2021;246(17):1869-83.
- Guo D, Liu F, Zhang L, Bian N, Liu L, Kong L, et al. Long non-coding RNA AWPPH enhances malignant phenotypes in nasopharyngeal carcinoma via silencing PTEN through interacting with LSD1 and EZH2. Biochem Cell Biol. 2021;99(2):195-202.
- Lu C, Cai Y, Liu W, Peng B, Liang Q, Yan Y, et al. Aberrant expression of KDM1A inhibits ferroptosis of lung cancer cells through up-regulating c-Myc. Sci Rep. 2022;12(1):19168.
- Hua H, Zhu Y, Song YH. Ruscogenin suppressed the hepatocellular carcinoma metastasis via PI3K/Akt/mTOR signaling pathway. Biomed Pharmacother. 2018;101:115-22.
- Sun Q, Zhen P, Li D, Liu X, Ding X, Liu H. Amentoflavone promotes ferroptosis by regulating reactive oxygen species (ROS) /5'AMP-activated protein kinase (AMPK)/mammalian target of rapamycin (mTOR) to inhibit the malignant progression of endometrial carcinoma cells. Bioengineered. 2022;13(5):13269-79.
- Carlsen CU, Kurtmann L, Brüggemann DA, Hoff S, Risbo J, Skibsted LH. Investigation of oxidation in freeze-dried membranes using the fluorescent probe C11-BODIPY(581/591). Cryobiology. 2009;58(3):262-7.
- Liu J, Yuan S, Yao Y, Wang J, Scalabrino G, Jiang S, et al. Network pharmacology and molecular docking elucidate the underlying pharmacological mechanisms of Houttuynia cordata in treating SARS-CoV-2 pneumonia. Viruses. 2022;14(7).
- Zhu W, Li Y, Zhao J, Wang Y, Li Y, Wang Y. The mechanism of triptolide in the treatment of connective tissue disease-related interstitial lung disease based on network pharmacology and molecular docking. Ann Med. 2022;54(1):541-52.
- Lee AWM, Ng WT, Chan JYW, Corry J, Mäkitie A, Mendenhall WM, et al. Management of locally recurrent nasopharyngeal carcinoma. Cancer Treat Rev. 2019;79:101890.
- Li BH, Ma H, Zhu J, Chen J, Dai YQ, Zhang XJ, et al. Semisynthesis and anti-cancer properties of novel honokiol derivatives in human nasopharyngeal carcinoma CNE-2Z cells. J Enzyme Inhib Med Chem. 2023;38(1):2244694.
- Qiao H, Zhang W, Liu P, Zhu R, Zhang J, Gao J, et al. Ropivacaine inhibits proliferation and invasion and promotes apoptosis and autophagy in bladder cancer cells via inhibiting the PI3K/AKT pathway. J Biochem Mol Toxicol. 2023;37(1):e23233.
- Zhao L, Han S, Hou J, Shi W, Zhao Y, Chen Y. The local anesthetic ropivacaine suppresses the progression of breast cancer by regulating miR-27b-3p/YAP axis. Aging (Albany, NY). 2021;13(12):16341-52.
- Ghasemi A, Khanzadeh T, Zadi Heydarabad M, Khorrami A, Jahanban Esfahlan A, Ghavipanjeh S, et al. Evaluation of BAX and BCL-2 gene expression and apoptosis induction in acute lymphoblastic leukemia cell line CCRFCEM after high-dose prednisolone treatment. Asian Pac J Cancer Prev. 2018;19(8):2319-23.
- Wadey KS, Johnson JL, George SJ. Monitoring cellular proliferation and apoptosis in atherosclerotic plaques and intimal thickenings. Methods Mol Biol. 2022;2419:507-19.
- Chen P, Wang D, Xiao T, Gu W, Yang H, Yang M, et al. ACSL4 promotes ferroptosis and M1 macrophage polarization to regulate nasopharyngeal carcinoma tumorigenesis. Int Immunopharmacol. 2023;122:110629.
- Forcina GC, Dixon SJ. GPX4 at the crossroads of lipid homeostasis and ferroptosis. Proteomics. 2019;19(18):e1800311.
- Zhao Y, Li Y, Zhang R, Wang F, Wang T, Jiao Y. The role of erastin in ferroptosis and its prospects in cancer therapy. Onco Targets Ther. 2020;13:5429-41.
- Sareddy GR, Nair BC, Krishnan SK, Gonugunta VK, Zhang QG, Suzuki T, et al. KDM1 is a novel therapeutic target for glioma treatment. Oncotarget. 2013;4(1):18-28.
- Ferrari-Amorotti G, Fragliasso V, Esteki R, Prudente Z, Soliera AR, Cattelani S, et al. Inhibiting the interactions between the lysine demethylase LSD1 and snail/slug blocks cancer cell invasion. Cancer Res. 2013;73(1):235-45.