Hier beschreiben wir ein ausführliches Verfahren zur Bestimmung der sozialen Erkennung zwischen neuen, kurzfristigen und langfristigen Beziehungen mithilfe eines verhaltensbiologischen Experimentierparadigmas mit vier Bechern. Wir erläutern die Vorteile und möglichen Anwendungen dieses Paradigmas sowie wichtige Informationen zur korrekten Interpretation der Ergebnisse.
Methodenartikel
Paradigma zur sozialen Erkennung bei Mäusen zur Unterscheidung zwischen Kurz- und Langzeitbeziehungen
In diesem Artikel
Zusammenfassung
Zusammenfassung
Sozialgedächtnis ist die Fähigkeit, soziale Interaktionen zu speichern und wiederzuerkennen Artgenossen. Es ist ein grundlegender Aspekt des Säugetierverhaltens, der bei stark sozialen Säugetieren wie Mäusen und Menschen nachweisbare Überlebensvorteile bietet. Nager, insbesondere Mäuse, sind ein etabliertes Tiermodell, das umfassend zur Untersuchung des sozialen Gedächtnisses und seiner zugrundeliegenden Mechanismen eingesetzt wird. Die meisten bestehenden soziales Gedächtnis Paradigmen bewerten hauptsächlich die kurzfristige soziale Erkennung, wobei Dauer der Beziehung und Grad der Vertrautheit zwischen dem Probanden und einem Wirkstoff liegt zwischen 5 und 15 min. Daher bestehende Paradigmen und frühere Studien fassen keine sozialen Erinnerungen aus langfristigen Beziehungen und konzentrieren sich auf die Dichotomie von Neuheit versus kurzfristiger Vertrautheit wobei ein große Lücke in unserem mechanistischen Verständnis sozialer Erinnerungen. Um diese Lücke zu schließen, haben wir einen einfachen Test entwickelt, der die Reaktionen von Mäusen auf unterschiedliche Vertrautheitsgrade erfasst und komplexe Abrufprozesse sozialer Erinnerungen in einen beobachtbaren, quantifizierbaren Kontext stellt. Im Vier-Becher-Paradigma wird eine Versuchsmaus erkundet frei ein Arena enthaltend vier durchlöcherte Becher, die in jeder Ecke platziert sind. Diese Becher beherbergen drei Agent Mäuse mit unterschiedlichen Bekanntheitsgraden (soziale Reize): eine langfristig bekannte Maus (Cage-Mate; gemeinsame Unterbringung über 1 Monat), eine kurzfristig bekannte Maus (10-minütige vorherige Exposition), einen neuartigen Artgenossen und eine leere Tasse als Kontrolle. CD-1-Mäuse zeigen eine Präferenz dafür, die neuartige und die langfristig bekannte Maus zu untersuchen. im Vergleich zur Untersuchung kurzfristig vertrauter Mäuse in diesem Paradigma. Diese Aufgabe zeigt Erkennung des Bekanntheitsgrads und minimiert aggressive Verhaltensweisen, während gleichzeitig unter Kontrolle von Expositionsanamnese. Dieser neuartige Test bietet eine Plattform für den direkten Vergleich von die neuronalen Mechanismen des Sozialverhaltens Gedächtnis über langfristige, kurzfristige und neuartige Aufgaben hinweg Personen. Das Vier-Tassen-Paradigma dient als neuartiges Messung für langfristige Wiedererkennung von Vertrautheit, die bestehende Kurzzeit-Wiedererkennungs-Assays ergänzen wird.
Einleitung
Soziales Gedächtnis ist ein zentraler Bestandteil des sozialen Verhaltens bei Säugetieren und besonders gut ausgeprägt bei hochsozialen Arten wie Mäusen und Menschen. Bei Nagetieren Erkennen von anderen liegt den Verhaltensdynamiken zugrunde, die für das Überleben innerhalb von Familien- und Artgenossenschaften entscheidend sind, einschließlich Gruppenzusammenhalt, Dominanzhierarchien, Fortpflanzungsverhalten und elterliche Fürsorge1,2. Neben ihrer evolutionär vorteilhaften Rolle für das Überleben von Tieren ist die Störung des sozialen Gedächtnisses beim Menschen ein weit verbreitetes Kennzeichen mehrerer neuropsychiatrischer und neurologischer Erkrankungen, einschließlich Autismus-Spektrum-Störung, Schizophrenie und Alzheimer-Krankheit.3,4,5,6Da die soziale Erkennung für die tägliche Funktion sozialer Arten von grundlegender Bedeutung ist und klare klinische Relevanz besitzt, ist die Entwicklung Verhaltensassays, die ihre vielschichtige Natur und neuronale Grundlagen genau erfassen, von entscheidender Bedeutung. Während bestehende Paradigmen einige Aspekte der sozialen Erkennung bei Mäusen messen, sind die meisten Assays darauf ausgelegt, beurteilen Sie Neuigkeitspräferenzen durch den Vergleich von neuen gegenüber kurzfristigen Beziehungen innerhalb von Minuten oder Stunden gebildet werden, anstatt zu quantifizieren Erkennung von langfristige soziale Beziehungen
Bestehende Ansätze wie das Drei-Kammer-Paradigma oder die Habituation-Dishabituation-Paradigmen bewerten die Präferenz für Neuheit nur nach kurzer vorheriger Exposition, die oft auf 5–15 Minuten begrenzt ist7,8,9,10,11. Diese Methoden haben umfangreiche Einblicke in die neuralen Mechanismen von diesen kurzfristigen sozialen Erinnerungen bei Mäusen12,13 geliefert. Jedoch müssen natürliche soziale Erinnerungen und soziale Funktionen die unterschiedlichen Mechanismen berücksichtigen, die bei langfristigen Beziehungen eine Rolle spielen, die durch gemeinsame Unterbringung, langfristige soziale Hierarchien oder Fortpflanzungspartner entstehen. Zwar verwenden einige Studien das Drei-Kammer-Paradigma mit Wurfgenossen14 oder vertrauten Mäusen, die bis zu 72 Stunden mit dem Versuchstier zusammengehalten wurden15,16, doch liegt der primäre Fokus des Paradigmas weiterhin auf der einfachen Unterscheidung zwischen neu und vertraut. Dies begrenzt den Vergleich zwischen mehreren unterschiedlichen vertrauten Mäusen. Da etablierte Paradigmen zur sozialen Erkennung auf die Untersuchung kurzfristiger Beziehungen ausgerichtet sind, sehen wir eine klare Wissenslücke hinsichtlich der neuronalen Mechanismen, die der sozialen Erkennung langfristiger Beziehungen zugrunde liegen.
Um diese Einschränkung zu beheben, entwickelten wir das Vier-Becher-Paradigma: einen einfachen, flexiblen Test zur Unterscheidung der Erkennung mehrerer Stufen sozialer Vertrautheit innerhalb einer einzigen Testsession. In diesem Paradigma erkundet eine Versuchsmaus vier Ecken einer offenen Arena, jeweils mit einem perforierten Becher mit einer Artgenossin oder einem leeren Kontrollbecher. Die Becher enthalten eine langfristig vertraute Artgenossin (Cagemate), eine kurzfristig vertraute Artgenossin mit begrenzter Vorabbekanntschaft (10 min), eine neue Maus und einen leeren Kontrollbecher. Die Untersuchungsdauer dient als quantitativer Index für soziale Erkennung und soziale Präferenz. Diese Anordnung ermöglicht simultane Vergleiche zwischen verschiedenen Stufen der Vertrautheit, wobei direkte physische Interaktionen und potenzielle aggressive Begegnungen minimiert werden.
Protokoll
Alle Verfahren, an denen Tiere beteiligt sind, müssen durchgeführt werden entsprechend institutionellen Richtlinien und genehmigt durch die Institutional Review Board der University of Florida Tierversuchskommission (IACUC)
1. Tierpräparation und Haltung
- Verwenden Sie erwachsene gleichgeschlechtlich in Gruppen gehaltene Mäuse für alle Experimente. Mäuse mindestens 2 Tage lang handhaben, um sie an die Handhabung zu gewöhnen und die Angst vor der experimentellen Untersuchung zu verringern.
- Bewahren Sie die Mäuse in auf Standardlaborkäfige unter einem umgekehrten Hell-Dunkel-Wechsel mit freiem Zugang zu Nahrung und Wasser.
HINWEIS: Für repräsentative Experimente wurden erwachsene CD-1- und C57BL/6-Mäuse (3–4 Monate alt) verwendet. Die Mäuse wurden in Gruppen von 3–4 Tieren pro Käfig gehalten. Zu den repräsentativen Datensätzen gehörten 10 männliche CD-1-Mäuse, 12 weibliche CD-1-Mäuse und 31 männliche C57BL/6-Mäuse. Die Verhaltensversuche sollten in der aktiven Phase des Versuchstieres (Dunkelphase) durchgeführt werden. Die in dieser Studie verwendeten Mäuse wurden zwischen 9 und 18 Uhr getestet und befanden sich in einem umgekehrten Hell-Dunkel-Wechsel (Dunkelphase von 8 Uhr bis 20 Uhr). - Definieren Sie einen langfristig bekannten Agenten als einen Artgenosse und geschlechtsgleicher Käfiggenosse das mindestens so lange mit der Versuchsmaus im selben Käfig gehalten wurde 3–4 Wochen vor der Durchführung der Tests.
- Kurzzeitige Auswahl vertrauter und neuer Artgenossen Agenten von derselben Stamm- und Geschlechtskombination wie die Versuchsmaus.
- Stellen Sie sicher, dass die neuen Mäuse zuvor keiner physischen oder olfaktorischen Exposition gegenüber der Versuchsmaus ausgesetzt waren.
- Wählen Sie einen neuartigen Agenten und einen kurzzeitig bekannten Agenten aus verschiedenen Wohngemeinschaften aus, um ähnliche olfaktorische Reize bei diesen beiden Agenten zu vermeiden.
HINWEIS: Notieren Sie das ungefähre Alter aller verwendeten Tiere und minimieren Sie die mehrfache Wiederverwendung derselben neuen und kurzzeitigen Wirkstoffe innerhalb eines Tages. Falls die Wirkstoffe wiederverwendet werden sollen, geben Sie an >2-stündige Pause im Heimkäfig zwischen den Testdurchläufen, um gestresste Tiere zu vermeiden.
2. Aufbau der Versuchsanlage
- Platzieren Sie einen sauber, quadratische Open-Field-Arena (49,5 cm x 49,5 cm x 49,5 cm; Tabelle der Materialien) in einem ruhigen Verhaltensprüflabor.
- Beleuchten Sie den Bereich mit einer einzelnen hohen oder über Kopf angebrachten Lampe, die so eingestellt ist, dass sie ca. 8–20 Lux
- Platzieren Sie vier gleich schwere, durchlöcherte Plastikbecher in jeder Ecke des Versuchsbereichs (Abbildung 1A).
- Verwenden Sie nach Möglichkeit visuell identische Becher. Falls Becher unterschiedlicher Farbe verwendet werden, balancieren Sie die Zuordnung und Position der Becher über die Durchgänge hinweg aus.
- Drücken Sie zwei Seiten jedes Bechers zusammen spülen gegen die Beckenwände, um den Zugang einzuschränken, das Versteckverhalten zu minimieren und die Untersuchungswinkel zu standardisieren.
- Verwenden Sie Becher, die schwer genug sind, um ein Entkommen zu verhindern, und hoch genug, um das Hochklettern zu verhindern.
HINWEIS: In dieser Studie wurden die repräsentativen Datenbecher und die Position des Agenten über die Versuchspersonen hinweg pseudorandomisiert, indem die farbigen Plastikbecher im Uhrzeigersinn rotiert wurden, während der Agententyp gegen den Uhrzeigersinn über die Durchgänge verschoben wurde.
- Platzieren die Kamera hoch genug, dass die gesamter Assay Die Box befindet sich im Bildfeld, um blinde Flecken während der Verhaltenscodierung zu vermeiden. Gewährleisten Sie minimale Reflexionen und eine gleichmäßige Beleuchtung über den gesamten Boden der Box hinweg (Abbildung 1A).
- Reinigen Sie den Boden der Versuchsarena und die Becher zwischen den Durchgängen gründlich mit ein geeignetes Desinfektionsmittel, gefolgt von Wasser, um restliche Gerüche zu entfernen.
- Lassen Sie die Arena vollständig trocknen, bevor Sie sie erneut verwenden. Tiere
3. Gewöhnung an die Versuchsanlage am Tag 0
- Stellen Sie das Versuchstier zusammen mit seinen Käfiggenossen in die Versuchsanlage, die vier leere durchlöcherte Becher enthält, und lassen Sie freie Erkundung für 20 min zu.
ANMERKUNG: Gewöhnen Sie die Tiere einzeln an die Versuchsanlage, wenn sie später angebunden werden sollen. Weitere Gewöhnungssitzungen können erforderlich sein. Es wird empfohlen, mehrere Gewöhnungstage durchzuführen, falls die Mäuse nach einem Tag die gesamte Versuchsanlage noch nicht vollständig erkunden. - Entfernen Sie alle Mäuse aus der Versuchsanlage und bringen Sie sie in den Heimkäfig zurück.
- Stellen Sie alle sozialen Interaktionspartner unter Becher, um sie 10 min lang an die Fixierung zu gewöhnen. Gewöhnen Sie Tiere aus demselben Heimkäfig gleichzeitig an, jeweils eines pro Becher (Abbildung 1B).
- Reinigen Sie die Versuchsanlage und die Becher, bevor Mäuse aus einem neuen Heimkäfig eingeführt werden.
ANMERKUNG: Lassen Sie die Mäuse nach dem Transport in den Raum mindestens 15 min ruhen, bevor die Sitzung beginnt.
4. Grundlinie
- Richten Sie die Versuchsanlage ein gemäß Abschnitt 2. Beibehaltung der gleichen Versuchsanordnung über alle experimentellen Tage hinweg.
- Platzieren Sie das Versuchstier in der Versuchsanlage enthaltend vier leere Becher und ermöglichen eine freie Erkundung für 10 min.
HINWEIS: Unterbrechen Sie die Aufnahme zu keinem Zeitpunkt, sondern lassen Sie sie kontinuierlich während aller Phasen der Durchführung fortlaufend laufen. aktueller Studie
5. Kurzfristige Erfassung
- Verwenden Sie eine gewichtete perforierte Tasse, um das Versuchsobjekt einzuschränken, während Sie die vorgesehene "kurzfristige Gewöhnung" Wirkstoff Alternativ dem Tier den kurzzeitigen Wirkstoff in einem sauberen Käfig verabreichen.
- Falls die Arena-Exposition gewählt wird, einen dafür vorgesehenen kurzfristigen vertrauten Bereich abgrenzen Agent unter einer durchlöcherten Schale in der Arena, wobei die anderen drei Schalen frei bleiben leer.
- Freisetzung das Subjekt und 10 min lang freie Exploration ermöglichen (Abbildung 1B).
HINWEIS: Falls die Methode der Exposition gegenüber einem kurzzeitigen Agens in einer Arena verwendet wird, wechseln Sie die Ecke, in der das kurzzeitige vertraute Agenzium platziert wird, zwischen den Versuchspersonen ab, um räumliche Verzerrungen zu vermeiden.
6. Intertrialintervall (ITI)
- Holen Sie die kurzfristige Bekanntschaft Agent und zurück in seinen Heimkäfig. Lassen Sie die Versuchmaus allein im Versuchsareal verbleiben. und 10 min lang frei bewegen lassen.
- Sammeln Sie neuartig und langfristig vertraut Testtiere für den Test Phase
HINWEIS: Den kurzfristig vertrauten Reiz erneut in denselben Becher zurückgeben, der während der kurzfristigen Erwerbungsphase (Abschnitt 5) verwendet wurde. Dies wird empfohlen, um eine räumliche Neuheit zu vermeiden, falls die kurzfristige Erwerbung in einer Versuchsanlage durchgeführt wird.
7. Phase der sozialen Erkennung
- Platzieren Sie eine zusätzliche gewichtete perforierte Tasse auf die Versuchsmaus.
- Platzieren Sie eine Maus unter jedem der drei gewichteten perforierten Becher: ein langfristig bekanntes (Cagemate), ein kurzfristig bekanntes und ein neues Artgenosse Lassen Sie eine vorgesehene vierte Tasse als Kontrolle leer.
HINWEIS: Beschriften Sie die Becherdeckel, um die Positionen der Agentien während der Verhaltensauswertung zu identifizieren. - Entfernen Sie die perforierte Schale von der Versuchsmaus in der Mitte der Arena platzieren und 10 Minuten freie Erkundung ermöglichen (Abbildung 1A).
- Entfernen Sie alle Mäuse am Ende des 10 min Intervall und beenden der Aufnahme.
- Bringen Sie alle Mäuse in ihre Heimkäfige zurück.
- Reinigen Sie die Versuchsarena und die Becher gründlich vor dem nächsten Versuchsdurchlauf.
HINWEIS: Halten Sie Ersatzbecher für den Fall von Beschädigungen bereit.
8. Verhaltensauswertung
- Importieren Sie alle aufgezeichneten Videos in eine Verhaltensanalyse-Software, die manuelle Annotationen ermöglicht, wie beispielsweise die Behavioral Observation Research Interactive Software (BORIS).
HINWEIS: Die Verhaltensauswertung erfolgte nicht verblindet bezüglich der Käfigkameradenposition, da Kennschilder mit der Agenten-ID über jedem Becher angebracht waren und in den Videos sichtbar waren, und die Käfignummer rückgeschlossen werden konnte. Die Auswerter achteten jedoch nicht aktiv auf die sichtbaren Kennschilder und waren bezüglich der Identität des neuen und des kurzfristigen Agenten verblindet. Alle Auswerter folgten vorab festgelegten operationalen Definitionen für Untersuchungsverhalten und standardisierten Bewertungskriterien. - Definieren Sie die Verhaltensmatrix vor der Bewertung.
- Definieren Sie eine Untersuchungsphase als die Positionierung der Nase der Versuchsmaus innerhalb 1 cm einer Tasse, während zeigt auf anhaltende Untersuchungshaltung
HINWEIS: Einbeziehung von Kau- und Nageverhalten an der Schale als Untersuchungsphasen. - Manuell die gesamte Untersuchungsdauer für jede Tasse während der 10-minütigen Phase des sozialen Erkennungstests annotieren. Bewerten Sie die Baseline und den Erwerb nach Bedarf.
HINWEIS: Die automatisierte Positionsverfolgung kann mit einem halbkreisförmigen interessierten Bereich von 1 cm Durchmesser um jeden Becher herum verwendet werden. - Exportierte annotierte Daten für anschließend statistische Analyse
Ergebnisse
Gemäß dem Vier-Becher-Paradigma zeigten männliche CD-1-Mäuse über die Dauer vertraute (Cagemate), kurzfristig vertraute und neue Artgenossen hinweg unterschiedliches soziales Untersuchungsverhalten (Abbildung 2). Für jeden Artgenossen wurde ein Diskriminationsindex (DI) berechnet, basierend auf den Sekunden, die für die Untersuchung des jeweiligen Artgenossen im Vergleich zum leeren Becher aufgewendet wurden, berechnet als (Artgenosse − leer)/(Artgenosse + leer) während der 10-minütigen sozialen Erkennungsphase. Dieser Index war gemäß dem Shapiro-Wilk-Test normalverteilt; daher verwendeten wir statistische Tests, die eine Normalverteilung der Daten voraussetzen. Die Mäuse zeigten eine signifikant stärkere Diskriminierung gegenüber dem neuen Artgenossen im Vergleich zum kurzfristig vertrauten Artgenossen (Abbildung 2; neu gegenüber kurzfristig t(9) = 3,70, Bonferroni-Holm-korrigiertes p = 0,01). Das Paradigma zeigte außerdem, dass die Mäuse eine signifikant stärkere Diskriminierung gegenüber dem langfristig vertrauten Cagemate im Vergleich zum kurzfristig vertrauten Artgenossen zeigten (Abbildung 2; Cagemate gegenüber kurzfristig t(9) = 2,87, Bonferroni-Holm-korrigiertes p = 0,04). Es gab keinen signifikanten Unterschied in der Diskriminierung zwischen dem neuen Artgenossen und dem Cagemate (Abbildung 2; neu gegenüber Cagemate t(9) = -1,13, korrigiertes p = 0,29), was darauf hindeutet, dass die Mäuse sowohl neue als auch langfristig vertraute Artgenossen gegenüber dem kurzfristig vertrauten Artgenossen bevorzugt untersuchten. Die Untersuchungszeit an jeder Becherposition während der Basislinienmessung im leeren Versuchsaufbau unterschied sich nicht danach, welcher soziale Artgenosse später diese spezifische Becherposition einnehmen würde, was bestätigt, dass keine vorherige Becherpräferenz die Ergebnisse beeinflusst hat (neue Basislinie gegenüber Cagemate-Basislinie t(9) = -1,99, p = 0,23; neu gegenüber kurzfristig Basislinie t(9) = -1,97, p = 0,23; Cagemate gegenüber kurzfristig Basislinie t(9) = 0,54, p = 0,60).
Im Gegensatz dazu zeigten weibliche CD-1-Mäuse keine signifikanten Unterschiede im Diskriminierungsindex zwischen neuartigen, kurzfristig vertrauten und langfristig vertrauten Artgenossen (Abbildung 3). Es wurden keine signifikanten Unterschiede zwischen neuartigen und kurzfristig vertrauten Tieren (p = 0,35), neuartigen und Käfiggenossen (p = 0,69) oder kurzfristig vertrauten und Käfiggenossen (p = 0,70) beobachtet. Die weiblichen Mäuse untersuchten alle Tiere deutlich häufiger als den leeren Becher und zeigten dadurch ein anderes Verhaltensmuster in dieser Aufgabe, das möglicherweise auf eine stärkere Sozialveranlagung im Vergleich zu männlichen Mäusen hindeutet.
Ebenso zeigten männliche C57BL/6-Mäuse eine Tendenz in dieselbe Richtung mit einer stärkeren Unterscheidung gegenüber dem neuen Artgenossen im Vergleich zum kurzfristig vertrauten Artgenossen. Dieser Unterschied näherte sich an, erreichte aber nach der Bonferroni-Holm-Korrektur keine Signifikanz, was auf eine größere Varianz zwischen den Versuchstieren in diesem größeren C57BL/6-Kollektiv (n = 31) im Vergleich zu den CD-1-Männchen hindeutet (Abbildung 4; adjustiertes p = 0,055). Zwischen dem neuen und dem Käfiggenossen (p = 0,62) sowie zwischen dem kurzfristig vertrauten und dem Käfiggenossen (p = 0,62) wurden keine signifikanten Unterschiede beobachtet. Diese Ergebnisse legen nahe, dass das starke Untersuchungsverhalten von Käfiggenossen, das bei CD1-Männchen beobachtet wurde, je nach Stamm und Geschlecht variiert.
Um zu bestimmen, ob soziale Dominanz zur Untersuchung von Käfiggenossen beitrug, wurden die Urinmarkierungs-David-Scores mit dem Diskriminationsindex der Käfiggenossen korreliert. Weder bei CD-1-Männchen noch bei C57BL/6-Männchen wurde eine signifikante Korrelation beobachtet (Pearson's r = 0.28, p = 0.44 bzw. Pearson's r = 0.10, p = 0.57), was darauf hindeutet, dass die soziale Rangposition den Diskriminationsindex der Käfiggenossen nicht beeinflusste.
Zusammen zeigen diese Ergebnisse, dass das Vier-Becher-Paradigma eine differenzielle soziale Untersuchung erfassen kann, während gleichzeitig die langfristige und kurzfristige Vertrautheit sowie soziale Neuheit innerhalb einer einzigen Verhaltenssitzung bewertet werden. Wichtig ist, dass Geschlecht und Stamm das Verhalten in diesem Test beeinflussen können.
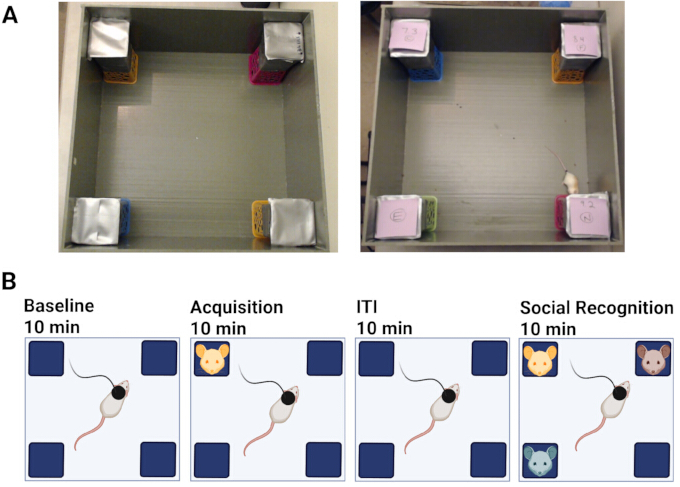
Abbildung 1: Aufbau und experimenteller Ablauf des Vier-Becher-Paradigmas. (A) Links: Die Versuchsbox des Vier-Becher-Paradigmas mit vier durchlöcherten leeren Bechern. Rechts: Versuchstier erkundet die Box mit vier durchlöcherten Bechern, in denen die sozialen Reize platziert sind. Beschriftungen zeigen die Identität der sozialen Reize an, um eine genaue Verhaltensauswertung zu ermöglichen. (B) Verhaltensschema für Tag 1 des Paradigmas. Die Farben der Mäuse kennzeichnen die Identität der Reize. Beachten Sie, dass die Aufnahmen mit Blitzlicht gemacht wurden, wodurch die Versuchsarena heller erscheint als unter der für die Experimente verwendeten Beleuchtung von 8–20 Lux. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
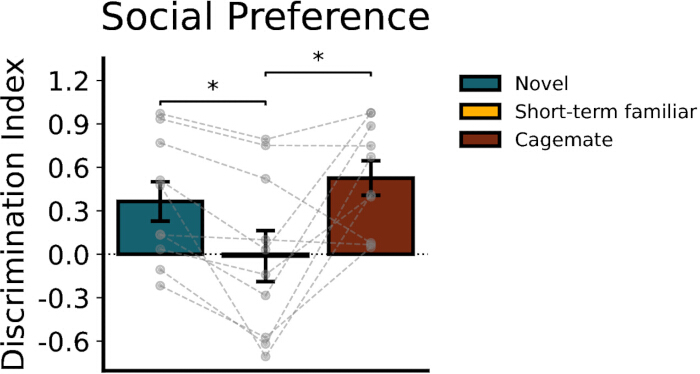
Abbildung 2: Sozialpräferenz im Vier-Becher-Paradigma bei männlichen CD-1-Mäusen. Diskriminationsindex (DI) für die Untersuchung neuartiger, kurzfristig vertrauter und langfristig vertrauter (Cagemate) Artgenossen während der 10-minütigen sozialen Erkennungsphase. Der DI wurde berechnet als (Agent – leer)/(Agent + leer). Die Mäuse zeigten eine signifikant stärkere Diskriminierung gegenüber neuartigen und Cagemate-Artgenossen im Vergleich zu kurzfristig vertrauten Artgenossen (p < 0,05), während zwischen der Diskriminierung neuartiger und von Cagemates kein signifikanter Unterschied festgestellt wurde. Die Daten werden als Mittelwert ± Standardfehler für 10 Mäuse dargestellt. Statistische Vergleiche wurden mittels gepaarter t-Tests mit Bonferroni-Holm-Korrektur für multiple Vergleiche durchgeführt. *p < 0,05. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
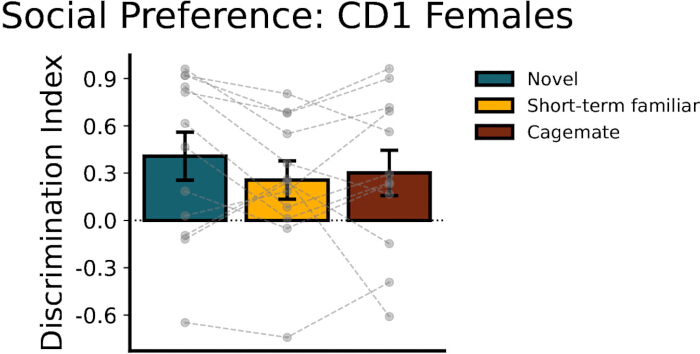
Abbildung 3: Soziale Präferenz im Vier-Becher-Paradigma bei CD-1-weiblichen Mäusen. Diskriminationsindex (DI) für die Untersuchung der neuen, kurzfristig vertrauten und langfristig vertrauten (Cagemate) Artgenossen während der 10-minütigen sozialen Erkennungsphase. Der DI wurde berechnet als (Agent – leer)/(Agent + leer). Es wurden keine signifikanten Unterschiede im Diskriminationsindex zwischen den drei sozialen Reizen beobachtet. Die Daten sind als Mittelwert ± Standardfehler des Mittelwerts über 12 Mäuse dargestellt. Statistische Vergleiche wurden mittels gepaarter t-Tests mit Bonferroni-Holm-Korrektur für multiple Vergleiche durchgeführt. *p < 0,05. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
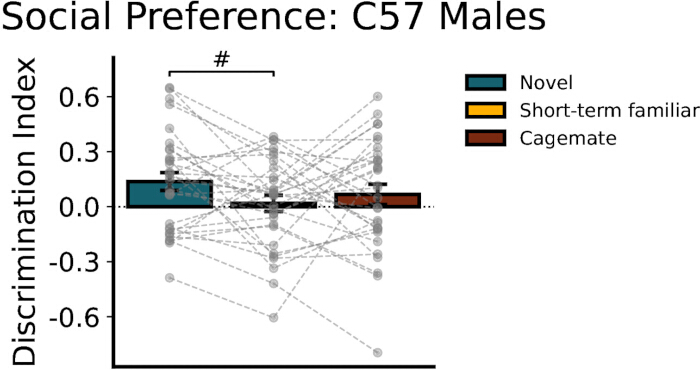
Abbildung 4: Soziale Präferenz im Vier-Becher-Paradigma bei männlichen C57BL/6-Mäusen. Diskriminationsindex (DI) für die Untersuchung der neuen, kurzfristig vertrauten und langfristig vertrauten (Käfigkamerad) Artgenossen während der 10-minütigen sozialen Erkennungsphase. Der DI wurde berechnet als (Agent − leer)/(Agent + leer). Ein Trend zu stärkerer Diskriminierung des neuen Artgenossen im Vergleich zum kurzfristig vertrauten Artgenossen war erkennbar, blieb jedoch nach Bonferroni-Holm-Korrektur nicht signifikant (p = 0,055). Zwischen neuem und Käfigkameraden-Individuum sowie zwischen kurzfristig vertrautem und Käfigkameraden-Individuum wurden keine signifikanten Unterschiede beobachtet. Die Daten sind als Mittelwert ± Standardfehler des Mittelwerts über 31 Mäuse dargestellt. Statistische Vergleiche wurden mittels gepaarter t-Tests unter Anwendung der Bonferroni-Holm-Korrektur für multiple Vergleiche durchgeführt. #p < 0,06. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Diskussion
Beim Anwenden des Vier-Tassen-Paradigmas zur effektiven und zuverlässigen Messung dieser sozialen Dynamiken in anderen Laborsituationen sind wichtige Aspekte zu berücksichtigen. Die Gewöhnung am Tag 0 verringert die nicht-soziale, durch Neuheit getriebene Erkundung der Versuchsanlage und der Tassen, die andernfalls die soziale Untersuchung während des Tests maskieren könnte7,8,9. Auch eine exakte Kontrolle der Dauer der kurzfristigen Bekanntmachung ist entscheidend, da geringfügige Unterschiede in der Expositionszeit die anschließenden Präferenzmuster erheblich verändern können8,9,10. Die Wahl einer 10-minütigen Bekanntmachungsphase diente dazu, eine robuste kurzfristige soziale Erinnerung aufzubauen und gleichzeitig mit zuvor beschriebenen sozialen Erkennungsparadigmen konsistent zu bleiben, die kurze Expositionszeiten nutzen, um vertraute von neuen Artgenossen zu unterscheiden7,8,10. Zusätzlich wurde eine Mitbewohnungsphase von 3–4 Wochen gewählt, um eine stabile langfristige soziale Vertrautheit durch längere Zusammenlebenszeit – und nicht durch wiederholte kurze Begegnungen – zu etablieren. Diese Dauer bietet ausreichend Gelegenheit für anhaltende soziale Interaktionen und die Ausbildung einer dauerhaften Vertrautheit zwischen Käfiggenossen10. Der Unterschied zwischen der 10-minütigen Bekanntmachungsphase und der 3–4-wöchigen Mitbewohnungsphase wurde bewusst gestaltet, um innerhalb einer einzigen Verhaltenssitzung zwei qualitativ unterschiedliche Vertrautheitsgrade (aktuell und langfristig) zu erzeugen. Während des Experiments ist es notwendig, die Identitäten der Agenten über die Tassenpositionen hinweg zwischen den Versuchsdurchgängen zu variieren, um räumliche Vorlieben der Mäuse auszuschließen7,8. Die wiederholte Verwendung von Agentenmäusen über mehrere Versuchsdurchgänge hinweg könnte den Stresslevel der Agenten beeinflussen und dadurch das Untersuchungsverhalten der Versuchstiere verändern. Um mögliche Störgrößen zu minimieren, wurden Agentenmäuse nach Möglichkeit nicht mehrfach an einem einzigen Testtag eingesetzt, und sowohl die Identität der Agenten als auch die Tassenposition wurden über die Versuchstiere hinweg variiert. Außerdem wurde, da soziale Dominanz die soziale Untersuchung beeinflussen könnte, die Dominanzhierarchie anhand territorialbasierter Dominanz und David-Scores bewertet. Es zeigte sich kein signifikanter Zusammenhang zwischen dem David-Score und dem Käfiggenossen-Diskriminationsindex bei männlichen CD-1-Mäusen und männlichen C57BL/6-Mäusen, was darauf hindeutet, dass die beobachtete Präferenz für langfristig vertraute Artgenossen nicht durch den Dominanzstatus erklärt werden kann. Bei der Analyse sind konsistente operationelle Definitionen der untersuchenden Verhaltensweisen, insbesondere der Untersuchungsdauer, erforderlich, um die Reproduzierbarkeit zwischen verschiedenen Auswerter*innen und experimentellen Kohorten sicherzustellen. Eine potenzielle Herausforderung, der alle auf Untersuchungsverhalten basierenden sozialen Paradigmen gegenüberstehen, sind „Floor-Effekte“ – nahezu null liegende Untersuchungszeiten, die Vergleiche unmöglich machen. Bei Mausstämmen, die geringe soziale Untersuchungstätigkeiten zeigen, könnte eine weitere Reduktion der sichtbaren Beleuchtung und die Verwendung von Infrarot-Videoverfolgung die Angst reduzieren und das Erkundungsverhalten steigern.
Das Protokoll erlaubt Flexibilität und Anpassungen je nach experimentellen Zielen, doch bestimmte Modifikationen erfordern sorgfältige Überlegungen. Das Material der Becher stellt eine zentrale Variable im Assay dar. Während dieses Protokoll perforierte Kunststoffbecher verwendet, können gewichtete Metallbecher mit kleineren Metallperforationen das Kauen und Fluchtversuche im Vergleich zu leichten Kunststoffbechern verringern. Die Verwendung von Kunststoffbechern kann Manipulationsverhalten wie Nagen oder Klettern verstärken, was während der Auswertung beobachtet und dokumentiert werden sollte. Ein alternativer Ansatz besteht darin, die perforierten Becher durch hohe, perforierte vertikale Trennwände zu ersetzen, die jede Ecke vom zentralen Bereich trennen, während olfaktorische und eingeschränkte visuelle Kommunikation erhalten bleiben. Obwohl diese Konstruktion das Kletterverhalten weiter reduzieren könnte, bieten entfernbar perforierte Becher den praktischen Vorteil, ein Standard-Open-Field-Arena schnell in das Vier-Becher-Paradigma umzuwandeln, ohne dauerhafte Veränderungen vornehmen zu müssen. Übermäßige Interaktion mit den Bechern kann durch Erhöhung des Bechergewichts, Anpassung der Perforationsgröße und beibehaltene Farbgestaltung verringert werden, um Quellen von Bias zu reduzieren. Außerdem sollten Versuchstiere balanciert eingesetzt und innerhalb eines Tests nicht erneut verwendet werden, um ungewollte Vertrautheitseffekte zu minimieren.
Mehrere Einschränkungen des Vier-Becher-Paradigmas sollten beachtet werden. Da die soziale Interaktion durch perforierte Barrieren eingeschränkt ist, bewertet der Test hauptsächlich vom Tier initiierte, nicht-reziproke Untersuchungshandlungen, die auf olfaktorischen und begrenzten visuellen Reizen basieren, anstelle von direktem physischem Kontakt8,9. Darüber hinaus führt die Verwendung von Bechern als physische und visuelle Barriere zu möglicher Unschärfe bei der Interpretation des Untersuchungsverhaltens. Wenn eine verstärkte Untersuchung von Käfiggenossen beobachtet wird – insbesondere bei CD-1-Mäusen –, bleibt unklar, ob dies lediglich soziale Erkennung widerspiegelt oder eine Kombination aus Untersuchung und zugehörigkeitsbezogener Motivation, einschließlich hilfrelevanten Verhaltens gegenüber einem bekannten Artgenossen (z. B. Versuche, dem Käfiggenossen durch Kauen am Kunststoffbecher zur Flucht zu verhelfen). Diese Aspekte unterstreichen die Bedeutung einer vorsichtigen Interpretation und, wenn immer möglich, die Anwendung ergänzender Verhaltensanalysen. Bestehende soziale Beziehungen zwischen Käfiggenossen, einschließlich Dominanzhierarchie, zugehörigkeitsbezogene Interaktionen und frühere soziale Erfahrungen, können ebenfalls die Untersuchungspräferenzen beeinflussen. Wir konnten jedoch keinen offensichtlichen Zusammenhang zwischen der Dominanzposition und dem Untersuchungsverhalten der Käfiggenossen feststellen. Dennoch können diese Faktoren je nach Mausstamm, Haltungsbedingungen und experimentellem Paradigma variieren und sollten bei der Interpretation von Präferenzen gegenüber langfristiger Vertrautheit berücksichtigt werden.
Im Vergleich zu bestehenden Verfahren zur sozialen Erkennung ermöglicht das Vier-Becher-Paradigma den simultanen Vergleich mehrerer sozialer Agenten – wie einem langfristig bekannten, kurzfristig bekannten und einem neuartigen Artgenossen – innerhalb einer einzigen Verhaltenssitzung. Herkömmliche Paradigmen wie der Drei-Kammer-Test und die Habituation–Dishabituation-Tests bewerten hauptsächlich die Präferenz für kurzfristige Neuheit nach kurzen Expositionsphasen7,8,9,10. Frühere Studien haben ebenfalls langfristige Käfiggenossen neben neuartigen Artgenossen eingeschlossen, darunter Paradigmen mit uneingeschränkter sozialer Interaktion und modifizierte Mehr-Kammer-Arenen, die darauf ausgelegt sind, die soziale Vertrautheit zu untersuchen17,18. Diese Ansätze vergleichen jedoch nicht gleichzeitig langfristig bekannte, kurzfristig bekannte und neuartige soziale Reize innerhalb desselben Tests. Durch die gleichzeitige Einbeziehung langfristiger Käfiggenossen und kurzfristig bekannter Agenten bietet das Vier-Becher-Paradigma eine Methode, um dauerhafte soziale Erinnerungen zu untersuchen, die aus einer längeren gemeinsamen Lebensphase resultieren. Repräsentative Daten sowohl von männlichen als auch weiblichen CD-1-Mäusen zeigen, dass das Vier-Becher-Paradigma erfolgreich über beide Geschlechter hinweg angewendet werden kann und geschlechtsspezifische Verhaltensmuster aufzeigt. Ebenso zeigen repräsentative Daten von CD-1- und C57BL/6-Mäusen, dass das Vier-Becher-Paradigma erfolgreich über mehrere gängige Labormausstämme hinweg implementiert werden kann. Obwohl die soziale Erkennung und die Präferenz für Neuheit oft zwischen verschiedenen Mausstämmen variieren7,19, legt das allgemeine Muster der Vertrautheitsdiskriminierung bei männlichen Tieren beider Stämme nahe, dass der Test breit anwendbar ist. Dennoch sollten Forschende den Test in dem jeweils für ihre Fragestellung relevanten Tiermodell validieren, da sich das Verhalten in der sozialen Erkennung je nach Stamm, Geschlecht, Alter und experimentellem Kontext unterscheiden kann. Außerdem, obwohl dieses Paradigma in einer 4-Arm- oder 4-Kammer-Arena angepasst werden könnte, ermöglicht die Durchführung in einer offenen Arena eine bessere Unterscheidung zwischen navigations- und raumbezogenem Gedächtnis sowie sozialem Gedächtnis. Die Belastung des räumlichen Gedächtnisses ist größer, wenn verschiedene Kammern oder Arme durchlaufen werden müssen; daher sollte das räumliche Gedächtnis bei der Untersuchung der Mechanismen des sozialen Gedächtnisses als wichtige Variable berücksichtigt werden. Netser et al. (2017) diskutieren diese Aspekte im Zusammenhang mit der typischen Drei-Kammer-Arena und schlagen eine analoge Zwei-Kammer-Arena als Alternative vor, die den Bedarf an räumlicher Navigation minimiert20. Diese Methode eignet sich besonders gut für Studien, die sich mit der neuronalen Repräsentation sozialer Vertrautheit, longitudinalen Veränderungen der sozialen Kognition sowie Bedingungen befassen, unter denen das langfristige soziale Gedächtnis selektiv beeinträchtigt sein könnte.
Offenlegungen
Die Autoren haben keine Offenlegungen vorzunehmen.
Danksagungen
Diese Arbeit wurde durch den McKnight Neuroscience Award und den Klingenstein Neuroscience Award an NPC unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Software zur Verhaltensbewertung | Behavioral Observation Research Interactive Software | Version 9.12.7 | Software zur manuellen Ereignisannotation |
| Open-Field-Arena | Rafferty Machine and Tool | Individuell angefertigt | Strukturelle FRP-Glasfaserschicht, quadratische Arena (49,5 cm × 49,5 cm × 49,5 cm); undurchsichtige Wände; falls die Arena durchsichtig ist, die Außenwände mit Papier abkleben, um Ablenkungen für das Tier zu minimieren |
| Kamera von oben | Logitech | Logitech C920x HD Pro PC Webcam | Kamera mit Fähigkeit zur kontinuierlichen Videoaufnahme; über der Mitte der Arena montiert |
| Perforierte Becher | Chinco Store | ONG-Chinco-0279 | Abmessungen der Becher: 4,01″ L × 4,01″ B × 4,52″ H; perforierte Kunststoff- oder Metallbecher, können quadratisch oder zylindrisch sein |
| Prism | Graph Pad | Version 10.6.0 | Software zur Datenanalyse; kann auch mit anderer Software durchgeführt werden |
Referenzen
- Wolff JO, Sherman PW, editors. Rodent societies: an ecological and evolutionary perspective. University of Chicago Press; Chicago; 2008.
- Thor DH, Holloway WR. Social memory of the male laboratory rat. J Comp Physiol Psychol. 1982;96(6):1000-1006.
- Theory of mind and autism: A review. International Review of Research in Mental Retardation. Academic Press; 2000.
- Bediou B, et al. Impaired social cognition in mild Alzheimer disease. J Geriatr Psychiatry Neurol. 2009;22(2):130-140.
- Green MF, Horan WP, Lee J. Social cognition in schizophrenia. Nat Rev Neurosci. 2015;16(10):620-631.
- Bäckman L, Herlitz A. The relationship between prior knowledge and face recognition memory in normal aging and Alzheimer's disease. J Gerontol. 1990;45(3):P94-P100.
- Moy SS, et al. Sociability and preference for social novelty in five inbred strains: An approach to assess autistic-like behavior in mice. Genes Brain Behav. 2004;3(5):287-302.
- Engelmann M, Hädicke J, Noack J. Testing declarative memory in laboratory rats and mice using the nonconditioned social discrimination procedure. Nat Protoc. 2011;6(8):1152-1162.
- van der Kooij MA, Sandi C. Social memories in rodents: Methods, mechanisms and modulation by stress. Neurosci Biobehav Rev. 2012;36(7):1763-1772.
- Cum M, et al. A systematic review and meta-analysis of how social memory is studied. Sci Rep. 2024;14(1):2221.
- Oliva A, Fernández-Ruiz A, Leroy F, Siegelbaum SA. Hippocampal CA2 sharp-wave ripples reactivate and promote social memory. Nature. 2020;587(7833):264-269.
- Oliva A. Neuronal ensemble dynamics in social memory. Curr Opin Neurobiol. 2023;78:102654.
- Okuyama T. Social memory engram in the hippocampus. Neurosci Res. 2018;129:17-23.
- Hitti FL, Siegelbaum SA. The hippocampal CA2 region is essential for social memory. Nature. 2014;508(7494):88-92.
- Dykstra B, Kim P, Lin A, Berman GJ, Murugan M. The intermediate CA1 and CA3 subfields of the hippocampus differentially encode social recognition. bioRxiv. 2025; doi.org/10.1101/2025.10.27.684580.
- Rashid M, et al. A ventral hippocampal-lateral septum pathway regulates social novelty preference. eLife. 2025;13:RP97259.
- Phillips ML, Robinson HA, Pozzo-Miller L. Ventral hippocampal projections to the medial prefrontal cortex regulate social memory. eLife. 2019;8:e44182.
- Medeiros D, Polepalli L, Li W, Pozzo-Miller L. Altered activity of mPFC pyramidal neurons and parvalbumin-expressing interneurons during social interactions in a Mecp2 mouse model for Rett syndrome. J Neurophysiol. 2025;134(6):2070-2085.
- Netser S, et al. Distinct dynamics of social motivation drive differential social behavior in laboratory rat and mouse strains. Nat Commun. 2020;11(1):5908.
- Netser S, Haskal S, Magalnik H, Wagner S. A novel system for tracking social preference dynamics in mice reveals sex- and strain-specific characteristics. Mol Autism. 2017;8:53.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar