Mausmodelle sind entscheidend für die Vertiefung unseres Verständnisses der embryonalen Entwicklung. Hier beschreiben wir ein Protokoll zur Färbung von Proteinen und Transkripten in ganz fixierten Mausembryonen sowie die quantitative dreidimensionale Analyse der resultierenden Färbung. Diese Techniken ermöglichen die Visualisierung und Analyse wichtiger entwicklungsbiologischer Zelltypen und Prozesse.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Methodenartikel
Optimierte Methoden zur Untersuchung der entwicklungsbedingten Protein- und Transkriptexpression in ganzen Mäuseembryonen
167 Aufrufe
⸱
11. September 2026
In diesem Artikel
Zusammenfassung
Zusammenfassung
Mausmodelle haben maßgeblich zur Vertiefung unseres Verständnisses der embryonalen Entwicklung beigetragen. Die Analyse der Expression und Lokalisation von Proteinen und Transkripten in Embryonen ist entscheidend, um die zellulären und molekularen Mechanismen, die der Entwicklung und Krankheit zugrunde liegen, aufzuklären. Herkömmliche Methoden zur Analyse von Transkripten und Proteinen in Mausembryonen weisen jedoch Grenzen auf. Die RNA-in-situ-Hybridisierung ermöglicht die Ganzpräparat-Färbung von Transkripten, bietet jedoch keine Multiplexing-Fähigkeit. Im Gegensatz dazu erlaubt das Einbetten und Schneiden von Embryonen eine multiplexe Zielstruktur-Färbung, allerdings nur in zwei Dimensionen (2D). In jüngerer Zeit wurden Techniken wie RNAscope und immunfluoreszenzbasierende Färbungen auf Ganzpräparate von Embryonen angewandt, wodurch eine Multiplex-Detektion von Zielstrukturen in drei Dimensionen (3D) möglich ist. Diese Methoden ermöglichen die Kartierung wesentlicher Interaktionen, Signalwege und Zelltypen, die für die embryonale Entwicklung notwendig sind, ohne die Einschränkungen herkömmlicher Techniken.
Hier beschreiben wir optimierte Methoden zur Ganzpräparat-Färbung fixierter Maus-Embryonen vom embryonalen Tag (E) 8,5 und E9,5 unter Verwendung von RNAscope oder Immunfluoreszenz. Beide Methoden ermöglichen die multiplexe Detektion von bis zu vier Zielstrukturen gleichzeitig in einem einzelnen Embryo. Wir stellen außerdem eine Methode vor, mit der die Immunfluoreszenz-Färbung mit RNAscope im selben Embryo kombiniert werden kann, um die Wechselwirkungen zwischen Proteinen und Transkripten während der Entwicklung sichtbar zu machen. Darüber hinaus beschreiben wir eine Pipeline zur konfokalen Bildgebung und 3D-Analyse der Zielexpression im gesamten Embryo sowie in definierten entwicklungsbedingten Zelltypen mithilfe der Zeiss Arivis Pro-Software. Zusammen ermöglichen diese Methoden eine umfassende Analyse multiplexer Protein- und Transkript-Zielstrukturen in 3D und stellen somit ein leistungsstarkes System zur Aufklärung zellulärer und molekularer Interaktionen in der frühen bis mittleren Embryogenese dar.
Einleitung
Mausmodelle haben wesentlich zum Fortschritt in der Entwicklungsbiologie beigetragen, da sie das Verständnis menschlich relevanter Entwicklungsprozesse in vivo ermöglichen, aufgrund der Homologie zwischen der Entwicklung von Maus und Mensch und der Möglichkeit, die Genexpression durch Schlüsseltechniken wie Cre-LoxP oder CRISPR/Cas9 zu modulieren1,2. Etwa 90 % der genomischen Regionen sind zwischen Mäusen und Menschen konserviert3, und Mäuse teilen viele Entwicklungsprozesse mit dem Menschen. Beispielsweise folgen sowohl Mäuse als auch Menschen einem ähnlichen Zeitplan der Embryogenese, einschließlich der Bildung einer Zygote, die sich zu einem Blastozysten entwickelt, gefolgt von Implantation und Gastrulation4. Darüber hinaus ist die Entwicklung der meisten Organe bei Mäusen und Menschen ähnlich. Beispielsweise durchlaufen sowohl das menschliche als auch das mausartige Herz eine ähnliche Abfolge von Herzschenkelung, Septierung der Vorhöfe und Ventrikel, Klappenbildung und Ausflusstraktbildung, um ein vierkammeriges Herz zu bilden5. Daher weisen sowohl das sich entwickelnde als auch das voll entwickelte Herz von Maus und Mensch eine erhebliche strukturelle Ähnlichkeit auf6,7.
Um die Vorgänge zu untersuchen, die bei der normalen und der pathologischen Entwicklung auftreten, wurden mehrere Techniken entwickelt, die eine räumliche Visualisierung wichtiger Proteine und Transkripte ermöglichen. Solche Techniken umfassen die Immunfluoreszenzfärbung und die RNA-in situ-Hybridisierung.
Die RNA-in-situ-Hybridisierung wurde erstmals 1969 von Gall und Pardue8 sowie John, Brinstall und Jones9 und 1970 von Buongiorno-Nardelli und Amaldi10 beschrieben. Sie dient der Untersuchung der Transkriptexpression in Geweben8. Kurz gesagt, werden Sonden ausgewählt, die eine komplementäre RNA-Sequenz zum gewünschten Ziel enthalten, und mit Markern zur Detektion versehen. Solche Marker umfassen radioaktive Markierungen, Biotin oder Digoxigenin. Fixierte Proben werden permeabilisiert, um das Eindringen der Sonde zu ermöglichen, anschließend hybridisiert man die Sonde an das Gewebe. Die Gewebe können dann entweder direkt abgebildet werden, falls sie radioaktiv markiert sind, oder die Marker mithilfe von Antikörpern, die mit alkalischer Phosphatase oder einem fluoreszierenden Farbstoff konjugiert sind, sichtbar gemacht werden. Die RNA-in-situ-Hybridisierung bietet den Vorteil, dass ganze Präparate für die 3D-Lokalisierung gefärbt werden können11. Allerdings ist sie in der Regel durch ihre begrenzte Multiplexfähigkeit auf mehr als zwei Ziele beschränkt, es sei denn, optimierte Techniken mit sehr spezifischen Anwendungen werden eingesetzt oder es wird auf die DNA-Hybridisierung zurückgegriffen, wie beispielsweise bei der M-FISH-Methode, die zur fluoreszenten Markierung von Chromosomen verwendet wird12,13.
Die Immunfluoreszenz, die erstmals 1941 von Coons et al.14,15 entwickelt wurde, ist eine Methode zum Nachweis von Zielproteinen in fixierten oder gefrorenen Proben. Kurz gesagt, werden Proben blockiert, um unspezifische Bindungen an nicht-zielgerichtete Gewebebereiche zu verringern. Anschließend werden die Proben mit einem primären Antikörper inkubiert, der spezifisch für ein Zielantigen ist. Primäre Antikörper können direkt mit einem fluoreszierenden Farbstoff oder Protein konjugiert sein oder mittels eines fluoreszenzmarkierten sekundären Antikörpers erfasst werden, der gegen die Art gerichtet ist, in der der primäre Antikörper hergestellt wurde. Der Vorteil der Verwendung sekundärer Antikörper gegenüber direkt konjugierten primären Antikörpern liegt in der Signalverstärkung, was zu einer höheren Empfindlichkeit führt. Mehrere primäre Antikörper, die in verschiedenen Arten hergestellt wurden, können zur multiplexen Detektion von Zielstrukturen eingesetzt werden, wobei direkt konjugierte oder sekundäre Antikörper verwendet werden, die an Fluorophore mit unterschiedlichen Absorptions- und Emissionsspektren gekoppelt sind.
Herkömmliche Techniken wie die RNA-in-situ-Hybridisierung und die Immunfluoreszenz weisen Einschränkungen auf. Typischerweise ermöglicht die RNA-in-situ-Hybridisierung lediglich den Nachweis eines einzelnen Zielmoleküls in einer Probe, wodurch die Untersuchung von Interaktionen zwischen verschiedenen Zelltypen und Signalwegen stark eingeschränkt ist. Außerdem wird die Immunfluoreszenz traditionell an Gewebeschnitten statt an Ganzpräparaten durchgeführt, was die räumliche Auflösung auf zwei Dimensionen begrenzt. Neuere Techniken konzentrieren sich auf die multiplexe Detektion von Zielstrukturen in dreidimensionalen Systemen. Die Optimierung von Immunfluoreszenz-Protokollen hat die Anwendung dieser Methode an Ganzpräparaten ermöglicht16. Darüber hinaus wurden Techniken entwickelt, die den multiplexen Nachweis von Transkripten unter Verwendung fluoreszenzmarkierter Sonden ähnlich der Immunfluoreszenz erlauben.
RNAscope wurde erstmals 2012 von Wang et al. beschrieben. Es basiert auf der RNA-in-situ-Hybridisierungstechnologie17, die eine räumliche Identifizierung von Transkripten in fixierten Proben ermöglicht. Kurz gesagt, werden fixierte Proben permeabilisiert, wodurch die Infiltration von Zielsonden ermöglicht wird, die an komplementäre Transkriptsequenzen binden. RNAscope-Sonden weisen eine „Doppel-Z-Struktur“ auf, die aus einem Bereich besteht, der spezifisch für eine 18–25 Basenpaare lange Region der Ziel-RNA ist, einem Schwanzbereich mit 14 Basenpaaren und einem Spacer-Bereich, der zwei „Z-Sonden“ miteinander verbindet. Beide Schwanzbereiche bilden gemeinsam eine 28 bp lange Region, die durch einen Präamplifikator gebunden wird. Gebundene Z-Sonden-Paare werden anschließend durch die Bindung einer Reihe von Amplifikatoren, die an Stellen auf dem Präamplifikator binden, amplifiziert. Die Amplifikatoren können gezielt mit markierten Sonden, die mit fluoreszierenden Markern oder Meerrettichperoxidase (HRP) versehen sind, angezeigt werden. Der Gedanke hinter der Doppel-Z-Struktur der Sonden besteht darin, die Amplifikation ungebundener Sonden zu verhindern und somit unspezifische Amplifikation zu reduzieren, während die Verwendung mehrerer Amplifikatoren die Empfindlichkeit erhöht. Der Vorteil von RNAscope gegenüber der RNA-in-situ-Hybridisierung liegt in der Möglichkeit, die Detektion von Transkripten in einer einzelnen Probe durch die Verwendung unterschiedlicher fluoreszierender Marker multiplexfähig zu gestalten. RNAscope wurde häufig in formalinfixierten, paraffineingebetteten Schnitten von Proben eingesetzt, wodurch die räumliche Detektion von Transkripten in 2D ermöglicht wurde18. Neuere Studien beschreiben die Ganzpräparat-Färbung mittels RNAscope in Maus-Embryonen, die eine 3D-Analyse wesentlicher Entwicklungsprozesse erlaubt19.
Hier beschreiben wir optimierte Methoden zur Ganzpräparat-Färbung fixierter E8.5- und E9.5-Maus-Embryonen mittels RNAscope-in situ-Hybridisierung und Immunfluoreszenz. Dieses Protokoll stellt eine überarbeitete Methode zur Kombination von Immunfluoreszenz und RNAscope vor, die erfolgreich für Ganzpräparate von E8.5/E9.5-Embryonen ist, die Hinzufügung eines weiteren Farbkanals zur Ganzpräparat-RNAscope-Färbung ermöglicht, indem eine vierte RNAscope-Sonde in Kombination mit dem Opal-780-Fluorophor verwendet wird, und eine breit anwendbare Methode zur Analyse gefärbter Embryonen detailliert beschreibt. Diese Methoden können genutzt werden, um das Verständnis zentraler Entwicklungsprozesse wie Zellmigration und Signalwege weiter voranzutreiben, indem eine multiplexe Visualisierung von bis zu vier Protein- und Transkript-Zielen durch Immunfluoreszenz-Färbung und RNAscope sowie eine quantitative 3D-Analyse in Ganzpräparaten von E8.5/E9.5-Maus-Embryonen während der Entwicklung ermöglicht wird.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
Alle Tierversuche wurden gemäß dem britischen Tierschutzgesetz (Scientific Procedures) von 1986 durchgeführt und von der Tierversuchskommission der University of Oxford sowie vom Innenministerium (Projektlizenz PP7967396) genehmigt.
1. Dissektion, Dehydrierung und Lagerung von E8,5- und E9,5-Maus-Embryonen
- Schwangeren Weibchen mit einer genehmigten Methode am Tag E8.5 oder E9.5 der Trächtigkeit entnehmen.
HINWEIS: Die Mäuse in dieser Studie wurden durch Halsbruch getötet, wobei der Tod durch Exsanguination bestätigt wurde. Die Exsanguination erfolgt durch einen Schnitt in die Ventrikel zur Förderung der Blutung. Andere Methoden, wie beispielsweise die Inhalation von CO2, können verwendet werden, wurden jedoch in diesem Protokoll nicht getestet. - Öffnen Sie zuerst den Bauch, indem Sie durch die Haut und anschließend durch die Bauchwand schneiden.
HINWEIS: Benetzen Sie die Mäuse mit 70 %igem Ethanol, um Schuppen und bakterielle Kontamination zu reduzieren. Beim Öffnen der Bauchdecke ist es wichtig, diese zunächst vom Abdomen wegzuziehen und dann eine kleine Inzision vorzunehmen. Schneiden Sie die Bauchdecke V-förmig ein und vermeiden Sie versehentliche Verletzungen der Gebärmutter. - Entfernen Sie die Gebärmutter, indem Sie dort schneiden, wo die Gebärmutter auf die Vagina trifft. Schneiden Sie bei beiden Uterushörnern die Gebärmutter vom Bauchfett ab und führen Sie kleine Einschnitte durch, bis Sie den Eierstock erreichen.
HINWEIS: Es ist empfehlenswert, die Position jedes Embryos innerhalb der Gebärmutter zu notieren. Isolieren Sie den Eierstock zusammen mit der Gebärmutter, um die Orientierung beizubehalten. - Schneiden Sie einzeln ein Embryo aus dem Uterushorn innerhalb des umgebenden Uterus aus und legen Sie es in eine Schale, die 1 enthält× Hanks’ Basissalzlösung mit 5 mM EDTA
- Mit feinen Pinzetten vorsichtig die Gebärmutter vom Embryo, Plazenta und dem die beiden umgebenden Decidua ablösen.
- Identifizieren Sie die Stelle, an der die Plazenta auf den Teil des mütterlichen Deciduagewebes trifft, das den Embryo umgibt; zwischen diesen beiden Abschnitten sollte ein geringer Farbunterschied bestehen. Trennen Sie den Embryo vorsichtig ab, indem Sie durch das mütterliche Deciduagewebe schneiden, um die Plazenta zu lösen und den Embryo freizulegen.
- Lösen Sie das Embryo vorsichtig innerhalb seines Dottersacks aus dem umgebenden Gewebe. Entfernen Sie mit feinen Pinzetten den Dottersack, der das Embryo umgibt. Entfernen Sie die Amnionhaut. Zählen Sie die Somiten, um das genaue embryonale Entwicklungsstadium zu bestimmen.
HINWEIS: Das Dottersack umgibt das Embryo und ist dicker sowie undurchsichtiger. Das Amnion ist dünn, durchsichtig und liegt eng am Embryo an. Es muss sorgfältig entfernt werden, um eine ausreichende Penetration von Sonden/Antikörpern in nachfolgenden Schritten zu gewährleisten. Bei älteren Embryonen kann mit feinen Pinzetten ein Loch im Kopfbereich erzeugt werden, um eine Ansammlung der Sonde in den sich entwickelnden Hirnventrikeln zu verhindern. An dieser Stelle ist es wichtig, so viel wie möglich vom Dottersack zu entfernen. Reste des Dottersacks zeigen eine starke Autofluoreszenz, wenn sekundäre Antikörper gegen Maus verwendet werden. - Optional: Den Dottersack zur Genotypisierung durch Waschen in 500 µL von PBS oder 70 % Ethanol, je nach downstream Genotypisierung, in einem 1,5-mL-Eppendorf-Röhrchen, um verunreinigendes Blut zu entfernen. Halten Sie den Dottersack mit feiner Pinzette in der PBS und bewegen Sie ihn manuell, um ihn zu schütteln. Nehmen Sie den gewaschenen Dottersack und geben Sie ihn in ein sauberes 1,5-mL-Eppendorf-Röhrchen oder eine Genotypisierungsplatte. Lagern Sie bis zu 4 Wochen bei -20 °C oder fortfahren mit der bevorzugten DNA-Extraktionsmethode.
- Unter Verwendung einer 2-mL-Niederdruck-Polyethylen-(LDPE-)Pasteurpipette das Embryo vorsichtig aufsaugen und in ein 2-mL-Rundboden-Eppendorf-Gefäß überführen, das 1 mL frisch hergestelltes oder gefrorenes Lagerbestand 4 % Paraformaldehyd (PFA) enthält, wobei darauf zu achten ist, so wenig Dissektionsmedium wie möglich dem PFA zuzusetzen.
HINWEIS: Beim Dissektieren von E9,5-Embryonen das Ende der Pasteurpipette schräg abschneiden, um die Öffnungsgröße zu vergrößern. Dies ist wichtig, um Schäden am Embryo während des Pipettierens zu vermeiden. Die Verwendung von rundbodigen 2-mL-Eppendorf-Röhrchen ist entscheidend, um zu verhindern, dass der Embryo am Röhrchenboden hängen bleibt, und um eine einfachere Rückgewinnung zu ermöglichen. Wiederholte Einfrier- und Auftauzyklen von PFA vermeiden.
ACHTUNG: PFA ist toxisch und krebserregend. Verwenden Sie geeignete persönliche Schutzausrüstung (PSA) und atmen Sie es nicht ein oder nehmen Sie es nicht auf. Pulverförmiges PFA ist bei Inhalation gefährlich; daher muss es in einem Abzug vorbereitet werden. - Inkubieren Sie das Embryo in 4 % PFA für 16–24 h bei 4 °C unter sanftem Schwenken, wobei die Röhrchen im rechten Winkel zur Schwenkrichtung stehen.
- Den Embryo durch Waschungen in einer Methanolreihe dehydrieren. Unter Verwendung von LDPE-Pasteurpipetten und darauf achten, den Embryo nicht aufzupipettieren, PFA abnehmen und 1 mL PBS hinzufügen. 10 min bei Raumtemperatur (RT) mit sanftem Schwenken waschen, wobei die Röhrchen in 90° zur Schwingebene. Wiederholen Sie dies für die Waschschritte mit 25 %, 50 %, 75 % und 2× 100 % Methanol in PBS
- Ersetzen Sie die letzte 100 % Methanol-Waschung durch 1,5 mL frisches 100 % Methanol und lagern Sie bei -20 °C.
HINWEIS: Proben können jahrelang bei -20 °CAchten Sie darauf, Verdunstung zu vermeiden.
ACHTUNG: Methanol ist entzündlich und toxisch. Tragen Sie geeignete persönliche Schutzausrüstung und lagern Sie es in einem Schrank für entzündliche Flüssigkeiten. Nicht einatmen oder verschlucken.
2. Färbung von Ganzpräparaten von E8,5- und E9,5-Embryonen für Proteine mittels Immunfluoreszenz
HINWEIS: Alle Waschschritte erfolgen mit einem Volumen von 1 mL in einem 2 mL Rundboden-Eppendorf-Gefäß. Führen Sie die 1-mL-Waschschritte mit sanftem Schwenken durch, wobei die Gefäße um 90° zur Schwenkebene geneigt sind. Entfernen und ersetzen Sie die Flüssigkeit mit einer 2-mL-LDPE-Pasteurpipette, wobei darauf geachtet werden muss, dass der Embryo nicht angesaugt wird. Bei Verwendung von E9,5-Embryonen sollte die Spitze der Pasteurpipette abgeschnitten werden, um Schäden am Embryo im Fall einer versehentlichen Aufnahme zu vermeiden. Verdünnen Sie Methanol in PBS. Die Embryonen können einzeln oder gemeinsam in einem Gefäß mit bis zu 12 gepoolten Embryonen gefärbt werden. Für E9,5-Embryonen: In einem einzigen Gefäß können bis zu zwei Bedingungen gefärbt werden. Werden mehrere Bedingungen verwendet, schneiden Sie den Schwanz einer der Gruppen ab, damit sie bei der Bildaufnahme unterschieden werden können.
- Holen Sie die Embryonen aus der Lagerung bei -20 °C und lassen Sie sie 10–20 min bei Raumtemperatur (RT) von 20–26 °C temperieren. Stellen Sie sicher, dass die Embryonen eine ähnliche Somitenanzahl aufweisen, um einen Vergleich ähnlicher Entwicklungsstadien zu gewährleisten.
- Bleichen und permeabilisieren Sie die Embryonen 2 h lang in einer Lösung aus 100 % Methanol:Dimethylsulfoxid (DMSO):30 % Wasserstoffperoxid im Verhältnis 4:1:1.
ACHTUNG: Wasserstoffperoxid ist ätzend und reizend. Es kann schwere Augenschäden verursachen und ist schädlich, wenn es verschluckt wird. Bei Kontakt mit den Augen spülen Sie mehrere Minuten lang mit Wasser nach. Wasserstoffperoxid stellt eine Gefahr für aquatische Organismen dar; entsorgen Sie es über eine zugelassene Entsorgungseinrichtung. Tragen Sie geeignete PSA, einschließlich Augenschutz. Nicht einnehmen. - Heizen Sie den Wärmeblock auf 98 °C vor und bereiten Sie den Citrat-Enthüllungspuffer durch Verdünnen von 100 µL Citrat-Enthüllungspuffer in 10,7 mL destilliertem Wasser vor.
- Rehydrieren Sie die Proben durch Spülen in 70 % Methanol, anschließendes Waschen in 50 % Methanol, 25 % Methanol und schließlich in PBS jeweils 10 min bei RT unter Schütteln.
- Heizen Sie den Citrat-Enthüllungspuffer mithilfe des vorgeheizten Wärmeblocks mindestens 20 Minuten lang auf 98 °C vor. Waschen Sie die Embryonen anschließend 3 × 10 min bei RT im Citrat-Enthüllungspuffer.
- Nach den Waschungen bei RT geben Sie den vorgeheizten Citrat-Enthüllungspuffer zu den Embryonen und erhitzen sie im Wärmeblock 10 min bei 98 °C. Entfernen Sie die Probe von der Hitzequelle und lassen Sie sie mindestens 40 min abkühlen.
HINWEIS: Verwenden Sie den Citrat-Enthüllungspuffer nicht zur Antigenfreisetzung bei E8.5-Embryonen, da dies zur Dissoziation der Embryonen führen kann. Embryonen können im Citrat-Enthüllungspuffer klebrig werden; halten Sie die Waschungen daher ruhig, um Schäden durch Verklumpung zu vermeiden. - Waschen Sie die Embryonen 3 × 10 min in PBS + 0,1 % Triton-X bei RT unter Schütteln. Blockieren Sie die Embryonen 16–24 h in mindestens 150 µL/Probe PBS + 0,1 % Triton-X + 10 % normales Eselserum bei 4 °C unter Schütteln.
- Bereiten Sie die primären Antikörper vor, indem Sie diese 1 h vor der Zugabe zu den Embryonen in den empfohlenen Konzentrationen in PBS + 0,1 % Triton-X + 10 % normales Eselserum verdünnen und bei 4 °C lagern.
- Entfernen Sie die Blockierungslösung von den Embryonen und geben Sie mindestens 150 µL/Probe der verdünnten Antikörperlösung hinzu. Inkubieren Sie 1–3 Tage bei 4 °C unter Schütteln.
HINWEIS: Primäre Antikörper können multiplex verwendet werden, solange jeder Antikörper in einer anderen Spezies hergestellt wurde. Die Verwendung von Antikörpern, die in Mäusen hergestellt wurden, und anschließender anti-maus sekundärer Antikörper kann zu intensiver unspezifischer Färbung führen. Alternativ können in einigen Fällen primäre Antikörper derselben Spezies multiplex eingesetzt werden, wenn die primären Antikörper unterschiedliche Isotypen aufweisen und mit isotypspezifischen sekundären Antikörpern kombiniert werden. - Spülen Sie die Embryonen in PBS + 0,1 % Triton-X und waschen Sie sie anschließend 6 × 30 min in PBS + 0,1 % Triton-X bei RT.
- Blockieren Sie den sekundären Antikörper, indem Sie die geeigneten fluoreszenzmarkierten sekundären Antikörper und DAPI (oder einen alternativen Kernmarker) 1 h vor der Zugabe zu den Embryonen in den empfohlenen Konzentrationen in 0,1 % Triton-X + 10 % normales Eselserum verdünnen und bei 4 °C im Dunkeln lagern.
- Entfernen Sie die Waschlösung, geben Sie die verdünnte Lösung des sekundären Antikörpers zu den Embryonen und inkubieren Sie 16–24 h bei 4 °C unter Schütteln im Dunkeln.
HINWEIS: Wir empfehlen die Verwendung fluoreszenzmarkierter sekundärer Antikörper vom F(ab)-Fragment-Typ anstelle ganzer Antikörper. F(ab)-Fragmente sind kleiner und weisen daher eine bessere Gewebedurchdringung auf; das Fehlen der Fc-Region trägt zudem zur Verringerung unspezifischer Hintergrundsignale bei. - Spülen Sie die Embryonen in PBS + 0,1 % Triton-X und waschen Sie sie anschließend 6 × 30 min in PBS + 0,1 % Triton-X bei RT unter Schütteln im Dunkeln. Lagern Sie sie bis zu 4 Wochen in PBS + 0,1 % Triton-X bei 4 °C im Dunkeln.
3. Färbung von Ganzpräparaten von E8,5- und E9,5-Embryonen für Transkripte mittels RNAscope
HINWEIS: Alle Waschschritte erfolgen mit einem Volumen von 1 mL in einer 2-mL-Eppendorf-Röhrchen. Führen Sie die 1-mL-Waschschritte mit sanftem Schwenken durch, wobei die Röhrchen um 90° zur Schwenkebene stehen. Entfernen und ersetzen Sie die Flüssigkeit mit einer 2-mL-LDPE-Pasteurpipette, wobei darauf geachtet werden muss, dass der Embryo nicht angesaugt wird. Bei Verwendung von E9,5-Embryonen sollte das Ende der Pasteurpipette abgeschnitten werden, um eine Beschädigung des Embryos im Falle eines versehentlichen Ansaugens zu vermeiden. Methanol sollte mit PBS verdünnt werden. Schalten Sie den Hybridisierungsofen vor Arbeitsbeginn auf 40 °C ein, und legen Sie feuchtes Gewebe auf den Boden. Die Embryonen können einzeln oder in einem Röhrchen mit bis zu 12 gepoolten Embryonen gefärbt werden. Bei E9,5-Embryonen: Bis zu 2 Bedingungen können in einem einzigen Röhrchen gefärbt werden. Falls mehrere Bedingungen verwendet werden, schneiden Sie den Schwanz einer der Gruppen ab, damit sie bei der Bildaufnahme unterschieden werden können.
- Bereiten Sie den Arbeitsplatz, die Pipetten und das Rack vor, indem Sie diese mit 70 %igem Ethanol und anschließend mit einer RNase-Entkontaminationslösung reinigen.
- Rehydrieren Sie die Embryonen durch eine abgestufte Methanolreihe, die in PBS mit 75 %, 50 %, 25 %, PBS und PBS + 0,1 % Tween 20 verdünnt ist, jeweils 5 Minuten pro Schritt mit sanftem Schwenken.
- Permeabilisieren Sie die Embryonen, indem Sie sie in etwa 75 µL (3 Tropfen) Protease III für 20 Minuten bei Raumtemperatur mit aufrechtem Schwenken inkubieren.
ANMERKUNG: Die Permeabilisierungszeit kann je nach embryonalem Stadium/Größe optimiert werden. 20 Minuten eignen sich gut für E8,5-/E9,5-Embryonen, aber längere Inkubationszeiten können erforderlich sein, um tiefere Strukturen in E9,5-Embryonen sichtbar zu machen. Zu lange Permeabilisierungsschritte können zur Dissoziation der Embryonen führen. - Waschen Sie die Embryonen 3 × 5 Minuten in PBS + 0,01 % Tween 20.
- Bereiten Sie die RNAscope-Sonden vor, indem Sie etwa 150 µL (ca. 6 Tropfen) pro Röhrchen C1-Sonden in ein Eppendorf-Röhrchen geben. Verdünnen Sie alle C2–C4-Sonden in der C1-Sonde im Verhältnis 1:50 und inkubieren Sie sie vor der Anwendung auf den Embryonen 10 Minuten bei 40 °C in einem Hybridisierungs-Ofen im aufrechten Zustand.
ANMERKUNG: Bei jedem Satz RNAscope-Sonden in einem Experiment steht „C“ für die Kanalzuordnung. Eine C1-Sonde ist erforderlich, da alle anderen Sonden in der C1-Sonde verdünnt werden. Stellen Sie sicher, dass pro Mischung nur eine Sonde pro Kanalbezeichnung verwendet wird. Sonde-Mischungen können mindestens einmal wiederverwendet werden, wenn sie bei 4 °C bis zu 6 Wochen gelagert werden. - Entfernen Sie die letzte Waschung und geben Sie 150 µL Sondenmischung zu jedem Röhrchen mit Embryonen hinzu. Inkubieren Sie 16–24 Stunden bei 40 °C im aufrechten Zustand im Hybridisierungs-Ofen.
- Entfernen Sie die Sondenmischung und waschen Sie in 0,2× Salin-Natrium-Citrat (SSC)-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Fixieren Sie die Embryonen nach der Inkubation in 4 % PFA bei Raumtemperatur mit sanftem Schwenken, wobei die Röhrchen im 90°-Winkel zur Schwingebene stehen.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Inkubieren Sie die Proben in etwa 150 µL (6 Tropfen)/Röhrchen Amp1-Reagenz für 30 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Inkubieren Sie die Proben in etwa 150 µL (6 Tropfen)/Röhrchen Amp2-Reagenz für 30 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Inkubieren Sie die Proben in etwa 150 µL (6 Tropfen)/Röhrchen Amp3-Reagenz für 15 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Inkubieren Sie in 150 µL (6 Tropfen) HRP-C1 für 15 Minuten bei 40 °C im aufrechten Zustand im Hybridisierungs-Ofen. Waschen Sie anschließend in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Inkubieren Sie die Proben mit einem in TSA-Puffer verdünnten Fluorophor für 30 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
ANMERKUNG: RNAscope-Fluorophore können mit verschiedenen Sonden verwendet werden. TSA-vivid 570 ist am hellsten, gefolgt von TSA-vivid 650 und dann TSA-vivid 520. Wählen Sie die Fluorophore basierend auf der erwarteten Sondenmenge aus. - Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Im Dunkeln inkubieren Sie die Proben in etwa 150 µL (6 Tropfen)/Röhrchen HRP-Blocker-Reagenz für 15 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
ANMERKUNG: Das Protokoll kann hier für 16–24 Stunden unterbrochen werden, indem die Embryonen bei Raumtemperatur in der letzten Waschung belassen werden. - Wiederholen Sie die Schritte 3.16–3.20 für jede der Sonden C2–C4, falls verwendet, wobei HRP-C1 je nach Bedarf durch HRP-C2/C3/C4 ersetzt wird. Verwenden Sie für jede einzelne Sonde einen anderen Fluorophor.
ANMERKUNG: Bei Verwendung von C4-Sonden ist das RNAscope 4-plex-Zusatzkit und der Opal 780-Fluorophor erforderlich. Opal 780 sollte nur bei Multiplexing mit vier Sonden verwendet werden und immer als letzter Fluorophor eingesetzt werden, da er anfällig für Abbau ist. Bei der Auswahl der Fluorophore ist es wichtig, die Fähigkeiten der verwendeten Mikroskopieplattform zu berücksichtigen. Stellen Sie immer sicher, dass das Bildgebungssystem geeignete Anregungswellenlängen, Emissionsfilter und Detektor-Empfindlichkeit für alle verwendeten Sonden aufweist. Bei Färbung mit Opal 780 ersetzen Sie die Schritte 3.17–3.19 durch folgende:- Inkubieren Sie die Proben in 150 µL/Röhrchen TSA-DIG (1:100 in TSA-Puffer verdünnt) für 30 Minuten bei Raumtemperatur mit sanftem Schwenken.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Im Dunkeln inkubieren Sie die Proben in etwa 150 µL (6 Tropfen)/Röhrchen HRP-Blocker-Reagenz für 15 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur.
- Inkubieren Sie die Proben in 150 µL/Röhrchen Opal Polaris 780, verdünnt in Antikörperverdünnungspuffer/Blocker, für 45 Minuten bei 40 °C im Hybridisierungs-Ofen, wobei die Röhrchen aufrecht gehalten werden.
- Im Dunkeln inkubieren Sie die Proben in etwa 150 µL DAPI, verdünnt in 0,2 × SSC-Puffer + 0,1 % Tween 20 (Arbeitskonzentration 1 µg/mL), für 16–24 Stunden bei 4 °C mit sanftem Schwenken, wobei die Röhrchen aufrecht gehalten werden.
- Waschen Sie in 0,2× SSC-Puffer + 0,1 % Tween 20 für 3 × 8 Minuten bei Raumtemperatur. Lagern Sie die Proben kurzfristig in PBS bei 4 °C.
4. Kombinierte RNAscope- und Immunfluoreszenz-Färbung in Ganzpräparaten von E8.5-Embryonen
- Folgen Sie den Schritten 3.1–3.21 des RNAscope-Protokolls.
HINWEIS: Eine Verkürzung der Dauer des Permeabilisierungsschritts im RNAscope-Protokoll kann die Leistung der Antikörper bei der Immunfluoreszenz verbessern. - Waschen Sie die Proben 16–24 h in 1 mL 0,2× SSC-Puffer + 0,1 % Tween 20 bei Raumtemperatur unter Schütteln.
- Folgen Sie den Schritten 2.7–2.12 des Immunfluoreszenz-Protokolls.
5. Vorbereitung von Ganzpräparaten von Embryonen zur Bildgebung mittels punktscannender oder Spinning-Disk-Konfokalmikroskopie
- Nach der Färbung das Embryo vorsichtig mit einer LDPE-Pasteurpipette aufnehmen und in eine Mehrkammer-Bildgebungsschiebe oder eine Hohlraumplatte überführen, wobei darauf geachtet werden muss, dass das Embryo nicht austrocknet. Bei Bedarf das Embryo gewünscht ausrichten, wobei darauf zu achten ist, die Probe nicht zu beschädigen.
HINWEIS: Hohlraumplatten sind vorteilhaft, um die Ausrichtung der Embryonen sicherzustellen, können jedoch zu einer Kompression der Embryonen und Gewebeschäden führen. Mehrkammer-Bildgebungsschieben schonen die Embryonen, können jedoch zu Variationen in der Bildgebungsausrichtung führen und Artefakte am Rand der Kammer verursachen. - Optional – Gewebeklärung: Klären Sie das Gewebe, indem Sie die letzte Waschung vorsichtig vom Embryo entfernen und bis zu 200 µL CUBIC-R-Lösung in die Bildgebungsschale bei Raumtemperatur hinzufügen. Belassen Sie das Embryo mindestens 40 Minuten lang in einer einzigen Inkubation mit CUBIC-R, bevor Sie die Bildgebung durchführen. Geklärte Proben sollten in derselben CUBIC-R-Lösung abgebildet werden, die für die Inkubation verwendet wurde.
ACHTUNG: CUBIC-R ist giftig bei Inhalation und kann Augen- und Hautreizungen verursachen. Vermeiden Sie Inhalation und tragen Sie geeignete PSA beim Umgang.
HINWEIS: Embryonen werden kurz nach Kontakt mit CUBIC-R vollständig transparent. Fügen Sie CUBIC-R erst nach der Ausrichtung direkt in die Bildgebungsschale hinzu, und achten Sie darauf, das Embryo nicht zu verlieren. Eine teilweise Umkehrung der Klärung tritt ein, wenn CUBIC-R vom Embryo entfernt und durch PBS ersetzt wird. - Falls keine Gewebeklärung durchgeführt wird, füllen Sie die Kammern mit PBS auf, um sicherzustellen, dass die Embryonen nicht zu trocken werden. Bei Verwendung einer Hohlraumplatte decken Sie die Probe mit einem #1,5-Deckglas ab. Setzen Sie einen Deckel auf die Mehrkammer-Bildgebungsschiebe.
HINWEIS: Embryonen können mit einer Vielzahl von Lichtmikroskopen abgebildet werden. Aufgrund der Probendicke ist es wichtig, ein Mikroskop auszuwählen, das in geeigneter Tiefe abbilden kann. Wählen Sie ein Objektiv, das für die gewünschte Struktur geeignet ist. Ein 10x-Objektiv mit niedriger numerischer Apertur liefert eine gute Übersicht über die gesamte Embryofärbung, aber ein Objektiv mit höherer Vergrößerung und numerischer Apertur kann erforderlich sein, um kleinere oder tiefere Strukturen hochauflösend darzustellen. Embryonen können sich manchmal in der Bildgebungsschale bewegen und dadurch Fehler verursachen, weshalb es wichtig ist, die Bildgebungsdauer soweit wie möglich zu verkürzen.
6. Analyse der Kerne hinsichtlich Anzahl und Signalintensität
HINWEIS: Dieses Protokoll beschreibt die Analyse von Kernen mithilfe von Zeiss Arivis Pro; ähnliche Analysen sind möglicherweise mit alternativen Bildanalyseprogrammen durchführbar. Es eignet sich am besten für Proben, die auf den Zellkern beschränkt sind, z. B. Transkripte oder nukleäre Proteine. Bei der Analyse nicht-nukleärer Proteine kann es sinnvoll sein, einen Farbstoff zur Visualisierung der Zellstruktur zu verwenden, z. B. CellMask, der Zellmembranen anfärbt, und die Expression von Markern innerhalb der gesamten Zelle zu untersuchen.
- Konvertieren Sie die Bilddateien mithilfe des Zeiss Arivis SIS-Konverters ins SIS-Format. Öffnen Sie den Konverter und wählen Sie „Dateien hinzufügen“, dann „Ordner durchsuchen“. Wählen Sie den Quellbildordner aus. Wählen Sie die 1-zu-1-Konvertierung. Geben Sie das Ausgabeverzeichnis an und klicken Sie auf „Konvertierung starten“.
- Importieren Sie SIS-Dateien in Zeiss Arivis Pro, indem Sie „Datei“, dann „Öffnen“ auswählen und anschließend die gewünschte SIS-Datei auswählen.
- Bereiten Sie die Daten für die Pipeline-Analyse vor, indem Sie die Bilder drehen. Wählen Sie dazu „Daten“ und dann „Transformationsgalerie“. Wählen Sie die Funktion „Drehung“ und drehen Sie das Embryo, sodass der Bereich von Interesse in eine starre rechteckige Box ausgerichtet werden kann.
- Bereiche von Interesse zuschneiden, indem Sie „Daten“ und dann „Transformationsgalerie“ auswählen und die Option „Zuschneiden“ wählen. Ziehen Sie die Ränder, um auf einen Bereich von Interesse zuzuschneiden, und klicken Sie auf „OK“.
HINWEIS: Bei der Kopfregion von E8,5-Embryonen den Bereich auf den Kopf zuschneiden, wobei das Bild an der Kerbe nahe der Ohrblase abgeschnitten wird. Bei der Herzregion von E8,5-Embryonen den Bereich von unterhalb der Kerbe nahe der Ohrblase bis zum unteren Ende des Herztubes zuschneiden. Bei der Beschneidung rotierter Bilder die schwarzen Bereiche, die als Artefakt der Rotation entstehen, ausschneiden. - Starten Sie eine neue Pipeline, indem Sie nacheinander „Analysis“ und „Analysis Panel“ auswählen. Wählen Sie anschließend „new pipeline“.
- Eingabe-ROI: ROI auf „aktueller Bildsatz“ setzen, Kanäle auf „Alle Kanäle“ und Skalierung auf „100 %“ festlegen. Sicherstellen, dass „Z einschließen“ ausgewählt ist.
HINWEIS: Bilder können verkleinert werden (z. B. auf 50 %), wenn sie zu groß sind oder die Verarbeitung zu langsam erfolgt; dies reduziert die Auflösung der Bilder. - Finden Sie die Kerne (Marker #1) mithilfe des Blob-Finder-Tools: Wählen Sie „Operation hinzufügen“ und anschließend „Blob finder“. Wählen Sie im Kanal den Kanal aus, der den Kernmarker enthält. Stellen Sie den Durchmesser ein auf 6 µm und optimieren Sie die Wahrscheinlichkeitsschwelle basierend auf der Färbungsintensität. Kerne in der Ebene sollten mit geeignetem Abstand zwischen den Kernen erkannt werden. Legen Sie die Teilungsempfindlichkeit fest. 55 % ist ein angemessener Wert für die meisten Proben. Stellen Sie „Normalisierung“ auf den ersten Zeitpunkt ein. Vergeben Sie einen Ausgabename, z. B. Blob Finder (Kerne). Erkannte Objekte können angezeigt werden, indem Sie das „Auge“-Symbol in der oberen Leiste der Operation auswählen.
- Finden Sie die Expression von Marker #2 mithilfe des Blob-Finder-Tools: Wählen Sie „Operation hinzufügen“ und anschließend „Blob finder“. Wählen Sie im Kanal den Kanal aus, der den Kernmarker enthält. Stellen Sie den Durchmesser ein auf 6 µm und optimieren Sie die Wahrscheinlichkeitsschwelle basierend auf der Färbungsintensität. „Blobs“, die für Marker #2 in der Ebene positiv sind, sollten mit geeigneter Trennung erkannt werden. Legen Sie die Teilungsempfindlichkeit fest. 55 % ist ein angemessener Wert für die meisten Proben. Stellen Sie „Normalisierung“ auf den ersten Zeitpunkt ein. Vergeben Sie einen Ausgabename, z. B. Blob Finder (Kanal 2). Erkannte Objekte können angezeigt werden, indem das „Auge“-Symbol in der oberen Leiste der Operation ausgewählt wird.
- Finden Sie die Expression von Marker #3 mithilfe des Blob-Finder-Tools: Wählen Sie „Operation hinzufügen“ und anschließend „Blob finder“. Wählen Sie im Kanal den Kanal aus, der den Kernmarker enthält. Stellen Sie den Durchmesser ein auf 6 µm und optimieren Sie die Wahrscheinlichkeitsschwelle basierend auf der Färbungsintensität. ‚Blobs‘, die für Marker #3 in der Ebene positiv sind, sollten mit geeigneter Trennung erkannt werden. Stellen Sie die Teilungsempfindlichkeit ein. 55 % ist ein angemessener Wert für die meisten Proben. Stellen Sie „Normalisierung“ auf µ first Zeitpunkt. Ausgabename festlegen, z. B. Blob Finder (Kanal 3). Die erkannten Objekte können visualisiert werden, indem das „Auge“-Symbol in der oberen Leiste der Operation ausgewählt wird.
- Optional: Volumenfilter – Wenn bei der Bildgebung viel Artefaktmaterial vorhanden ist, kann ein Volumenfilter zur Entfernung von Artefakten verwendet werden. Wählen Sie „Operation hinzufügen“ und anschließend „Objektmerkmalsfilter“. Setzen Sie die Eingabe auf „Blob finder (Kerne)“ (oder einen anderen Namen aus Schritt 6.7). Wählen Sie bei „ist Typ“ die Option „beliebig“. Wählen Sie im Dropdown-Menü „Volumen (volume)“ aus und stellen Sie den Wert ein auf > 6 µm3. Wählen Sie „Filter hinzufügen“. Wählen Sie im Dropdown-Menü Volumen (volume) aus und stellen Sie den Wert ein auf <3000 µm3Geben Sie einen Namen für die Ausgabe an, z. B. „nuclei“. Führen Sie die Pipeline bis zu dieser Stelle aus, indem Sie im Modul die Schaltfläche mit den drei Linien auswählen und auf „Pipeline bis hierher ausführen“ klicken.
HINWEIS: Volumenfilter können bei Bedarf auch für die anderen Kanäle verwendet werden. Optimieren Sie die „größer als“- und „kleiner als“-Werte, um sicherzustellen, dass alle positiven Objekte ausgewählt werden, jedoch Ausschuss ausgeschlossen bleibt. - Um Kerne zu identifizieren, die für einen weiteren Marker positiv sind, verwenden Sie das Schnittmengen-Werkzeug. Wählen Sie „Operation hinzufügen“ und suchen Sie das Werkzeug „Kompartimente“. Fügen Sie im ersten Dropdown-Feld die Kerne-Ausgabe ein (z. B. Blob Finder (Kerne) oder die volumenfilterten „Kerne“) und stellen Sie sicher, dass die Schaltfläche links neben dem Feld ausgewählt ist. Wählen Sie im eingeblendeten Dropdown-Feld den gewünschten Kanal aus (z. B. Blob Finder (Kanal 2)). Benennen Sie die Ausgabe, z. B. „Kerne mit Kanal 2“. Wiederholen Sie diesen Schritt für alle gewünschten Marker.
- Um Kerne zu finden, die für 2 oder mehrere andere Marker positiv sind, wählen Sie „Operation hinzufügen“ und suchen Sie das Werkzeug „Objektmerkmalsfilter“. Stellen Sie den Eingang auf den Kernmarker ein (z. B. „Kerne“, Typ = beliebig) und fügen Sie nach „Hat Kennzeichen“ die Filter aus dem vorherigen Schritt hinzu, z. B. „Kerne mit Kanal 2“ und „Kerne mit Kanal 3“. Benennen Sie die Ausgabe, z. B. „Kerne mit Kanal 2 und Kanal 3“. Führen Sie die Pipeline bis zu diesem Punkt aus.
- Erstellen Sie benutzerdefinierte Merkmale zur Zählung von Kernen, indem Sie das Tabellensymbol in der oberen Leiste auswählen, auf „erstellen“ klicken und dann „Objektanzahl“ wählen. Geben Sie dem Merkmal eine geeignete Bezeichnung (z. B. Kernanzahl) und wählen Sie im Tag-Menü die gewünschte Ausgabe zur Quantifizierung (z. B. Kerne). Wiederholen Sie diesen Schritt für jede zu quantifizierende Gruppe.
- Erstellen Sie Objektgruppen, indem Sie „Add operation“ und anschließend „Create object groups“ auswählen. Wählen Sie in den Eingaben jede der Gruppen aus, die in den Analysen verwendet werden sollen. Benennen Sie die Ausgaben als „Create object groups“. Führen Sie die Pipeline bis zu diesem Punkt aus.
- Zusammenfassende Zählungen exportieren, indem Sie „Operation hinzufügen“ und dann „Objektmerkmale exportieren“ auswählen. Wählen Sie unter Eingaben „Objektgruppen erstellen“. Wählen Sie ein Verzeichnis zum Speichern der Daten aus. Der Modus ist „Einzelne Tabelle“. Klicken Sie auf „Merkmale“ und wählen Sie die in Schritt 6.13 erstellten benutzerdefinierten Merkmale aus.
- Exportieren Sie die Kerndetails, indem Sie „Operation hinzufügen“ und anschließend „Objektmerkmale exportieren“ auswählen. Wählen Sie unter Eingaben die in Schritt 6.7 (bzw. 6.10, falls ein Volumenfilter verwendet wird) erstellte Kerndetektion aus. Wählen Sie ein Verzeichnis zum Speichern der Daten. Der Modus ist „Einzelne Tabelle“. Klicken Sie auf Merkmale und wählen Sie „Intensitäten“ für jeden Kanal (#1, #2, #3 usw.) sowie weitere gewünschte zu exportierende Merkmale aus, z. B. Volumen (volume).
- Speichern Sie Objekte, indem Sie die für die Visualisierung/Analyse benötigten Objekte im Feld „Objekte speichern“ auswählen.
- Speichern Sie die Pipeline, indem Sie alle Schritte rückgängig machen, die drei Zeilen oben rechts auswählen und auf „Export“ klicken. Wählen Sie „Ordner“, in dem die „Pipeline“ gespeichert werden soll, und speichern Sie.
- Um eine Pipeline im Batch-Modus auszuführen, laden Sie Arivis erneut. Wählen Sie in der oberen Leiste „Analyse“ und anschließend „Batch-Analyse“. Wählen Sie im Fenster die in Schritt 6.18 gespeicherte Pipeline aus. Unter „Dateien“ wählen Sie die für die Analyse vorgesehenen Dateien aus und bestätigen mit „OK“. Nach dem Laden können unerwünschte Ansichten gelöscht werden. Wählen Sie „OK“. Wählen Sie im nächsten Bildschirm das Verzeichnis zum Speichern der Daten aus. Klicken Sie auf „Ausführen“. Die Daten werden automatisch im ausgewählten Ausgabeverzeichnis gespeichert.
Ein Überblick über den Arbeitsablauf ist in Abbildung 1 dargestellt.
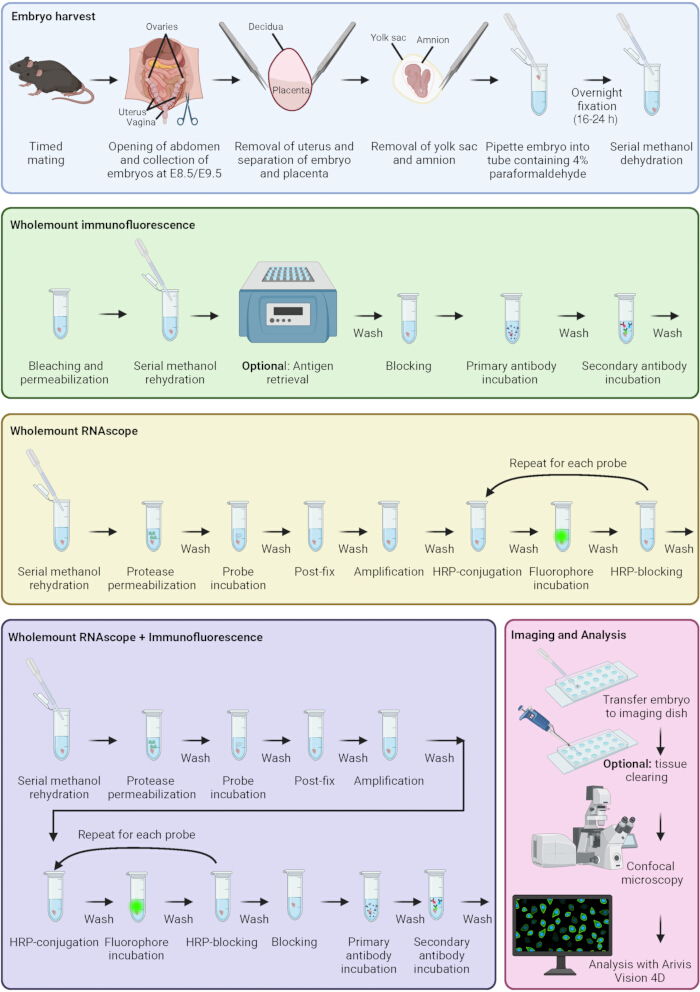
Abbildung 1: Protokoll für Immunfluoreszenz- und RNAscope-Färbung. Schematische Darstellung der Schlüsselphasen der Embryogewinnung, Immunfluoreszenz, RNAscope, kombinierten Immunfluoreszenz und RNAscope, Probenaufnahme und Analyse. Farbige Felder entsprechen verschiedenen Protokollstufen. Erstellt in BioRender. Sparrow, D. (2026) https://BioRender.com/q6rmax8 Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
E8,5-Embryonen wurden gemäß diesem Protokoll mittels Immunfluoreszenz gefärbt, um die Anzahl der wandernden Neuralleistenzellen in der G2/M-Phase des Zellzyklus zu analysieren. Die Proben wurden mit Antikörpern gegen PHH3 zur Visualisierung der G2/M-Phase des Zellzyklus und gegen SOX10 zur Visualisierung wandernder Neuralleistenzellen gefärbt. Anschließend wurden geeignete sekundäre Antikörper verwendet. Die Kerne wurden mit DAPI angefärbt. Die Aufnahmen der Proben erfolgten mit einem Olympus SpinSR Spinning-Disk-Konfoka...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Hier beschreiben wir eine optimierte Methode zur räumlichen Analyse der Gen- und Proteinexpression in Ganzpräparaten von E8.5- und E9.5-Embryonen. Diese Methoden weisen im Vergleich zu herkömmlichen Verfahren der RNA-in situ-Hybridisierung und der Immunfluoreszenz von Schnitten eine verbesserte räumliche Auflösung und Multiplexfähigkeit auf. Dieses Protokoll baut auf kürzlich veröffentlichten Protokollen zur Untersuchung von Entwicklungsprozessen in Mausembryonen auf. Ein kürzlich vorgestelltes Protokoll nutzte ...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren erklären, dass kein konkurrierendes finanzielles Interesse besteht.
Danksagungen
Die Autoren danken dem Team der Cellular Imaging Core-Einrichtung am Centre for Human Genetics der University of Oxford für die technische Unterstützung bei der Mikroskopie und Bildanalyse, die in dieser Arbeit enthalten sind. Die Autoren danken dem Personal der Biomedical Services der University of Oxford für die Unterstützung bei der Tierpflege sowie bei zeitlich gesteuerten Paarungen zur Erzeugung von Embryonen.
Diese Forschung wurde durch ein Senior-Stipendium der British Heart Foundation FS/SBSRF/22/31022 (DBS), den Additional Ventures Single Ventricle Fund (DBS), den John Fell Fund der Universität Oxford 0016065 (VSR) und den Medical Sciences Internal Fund der Universität Oxford 0016707 (VSR) finanziert.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Plastik- und Glaswaren | |||
| 3-ml-Pasteurpipetten aus Polyethylen niedriger Dichte (LDPE), skaliert | Wheaton | 711116 | |
| Eppendorf-Safe-Lock-Röhrchen, 1,5-ml-Mikroröhrchen | Eppendorf | 0030 120.086 | |
| Ibidi µ-Slide 18-Well | Ibidi | 81817 | #1.5H-Glasdeckgläschen, unbehandelt |
| Menzel X1000 Deckgläschen 22x50 mm #1.5 (0,16–0,19 mm) | Thermo Scientific | 17284904 | |
| Mikroskopobjektträger mit Vertiefungen | Marienfeld Superior | 1320000 | |
| Safe-Seal-Mikroröhrchen, 2 ml | Sarstedt | 72.695.500 | 2-ml-„Eppendorf“-Röhrchen, rundbodig |
| Lösungen/Puffer | |||
| 1x Antikörperverdünnungs-/Blockierungspuffer | Akoya Biosciences | ARD1001EA | |
| Ambion™ RnaseZap™ RNase-Deskontaminationslösung | Ambion | 9780.9782 | |
| Citrat-Entmaskierungspuffer | Vector Labs | H-3300 | Als Antigen-Entmaskierungslösung gekennzeichnet, zitronensäurebasiert |
| Dimethylsulfoxid (DMSO) | Merck (Sigma-Aldrich) | D8418 | |
| Hanks‘ Balanced Salt Solution 10x | Merck (Sigma-Aldrich) | H4641 | |
| Wasserstoffperoxidlösung | Merck (Sigma-Aldrich) | H1009 | 30 % (w/w) in H2O |
| Methanol | Merck (Sigma-Aldrich) | 32213-2.5L-M | |
| Normales Eselserum | Abcam | Ab7475 | 100 % Stammlösung, endgültige Konzentration 10 % |
| Paraformaldehyd (PFA)-Pulver | Merck (Sigma-Aldrich) | 158127-500g | Mit Wasser auf 4 % verdünnen. In der Abzugshaube ansetzen. Auf einem beheizten Block unter Zusatz einer geringen Menge NaOH unter Rühren auflösen. pH 7,2–7,6 |
| Phosphatgepufferte Kochsalzlösung (PBS) | Merck (Sigma-Aldrich) | P4417 | 1 Tablette pro 200 ml destilliertem Wasser |
| RNAscope 4-Plex-Zusatzkit für Multiplex-Fluoreszenz-Reagenzien-Kit v2 | ACD (Bio-Techne) | 323120 | Enthält HRP-C4 und HRP-Blocker |
| RNAscope™ Multiplex-Fluoreszenznachweis-Kit v2 | ACD (Bio-Techne) | 323110 | Enthält Protease Plus, Protease III, Protease IV, Wasserstoffperoxid, TSA-Puffer, Amp1/2/3, Hrp-C1/2/3, HRP-Blocker und DAPI |
| Saline-Sodium-Citrate-(SSC)-Puffer 20x-Lösung | Fisher Bioreagents | BP-1325-1 | Mit destilliertem Wasser auf 0,2x verdünnen |
| Gewebeklärungsreagenz Cubic-R+(M) [für Tiere] | Tokyo Chemical Industry | T3741 | |
| Triton™ X 100 | Merck (Sigma-Aldrich) | X100 | |
| Tween® 20 | Merck (Sigma-Aldrich) | P7949 | |
| Ultrapure™ 0,5 M EDTA, pH 8 | Invitrogen | 15575020 | |
| Primärantikörper | |||
| Endomucin-Antikörper (V.7C7) | Santa Cruz | SC-65495 | 1:50 Verdünnung verwenden. |
| Islet-1- und Islet-2-Antikörper | Developmental Studies Hybridoma Bank | 34.4DS-5 | Mit Glycerin 1:1 verdünnen. 1:50 Verdünnung verwenden. |
| PCNA (PC10) Maus-Monoklonaler Antikörper | Cell Signaling Technology | 2586S | 1:500 Verdünnung verwenden |
| P-Histon H3 (Ser10) (6G3) Maus-Monoklonaler Antikörper | Cell Signaling Technology | 9706S | 1:500 Verdünnung verwenden |
| P-Histon H3 (Ser10) (D7N8E) XP® Kaninchen-Monoklonaler Antikörper | Cell Signaling Technology | 53348S | 1:500 Verdünnung verwenden |
| Sox10 (E6B6I) XP® Kaninchen-Monoklonaler Antikörper | Cell Signaling Technology | 69661S | 1:500 Verdünnung verwenden |
| Sekundärantikörper/Kernfärbungen | |||
| AlexaFluor® 488-konjugiertes Affinipure® Esel-Anti-Maus-IgG (H+L) | Jackson Immunoresearch | 715-545-151 | 1:500 Verdünnung verwenden |
| AlexaFluor® 647-konjugiertes Affinipure® Esel-Anti-Ratte-IgG (H+L) | Jackson Immunoresearch | 712-605-153 | 1:500 Verdünnung verwenden |
| AlexaFluor® 647-konjugiertes Affinipure® F(ab')2-Fragment Esel-Anti-Maus-IgG (H+L) | Jackson Immunoresearch | 715-606-150 | 1:500 Verdünnung verwenden |
| Cy™3 Affinipure® Esel-Anti-Kaninchen-IgG (H+L) | Jackson Immunoresearch | 711-165-152 | 1:500 Verdünnung verwenden |
| DAPI | Merck (Sigma-Aldrich) | D9542 | Verwendet bei 1 µg/ml |
| RNAscope-Sonden | |||
| RNAscope®-Sonde - Mm Sp5-C4 | ACD (Bio-Techne) | 405681-C4 | C4-Sonde |
| RNAscope®-Sonde - Mm-Dlx2-C3 | ACD (Bio-Techne) | 555951-C3 | C3-Sonde |
| RNAscope®-Sonde - Mm-Msx1 | ACD (Bio-Techne) | 421841 | C1-Sonde |
| RNAscope®-Sonde - Mm-Sox10-C2 | ACD (Bio-Techne) | 435931-C2 | C2-Sonde |
| RNAscope-Fluorophore | |||
| Opal 780 Reagenzpackung | Akoya Biosciences | FP1501001KT | Enthält Opal-780-Reagenz, Opal-TSA-DIG, DMSO |
| TSA-vivid™ Fluorophor 520 | ACD (Bio-Techne) | 323271 | jetzt ClariTSA™ Fluorophor 520 |
| TSA-vivid™ Fluorophor 570 | ACD (Bio-Techne) | 323272 | jetzt ClariTSA™ Fluorophor 570 |
| TSA-vivid™ Fluorophor 650 | ACD (Bio-Techne) | 323273 | jetzt ClariTSA™ Fluorophor 650 |
| Geräte/Software | |||
| Fluoview FV4000 Laser-Scanning Mikroskop | Evident | fv4000 | Anregungslaser: 405/488/561/640/730 nm. Detektierte Wellenlängen (Abb. 3): 430–470, 500–540, 570–620, 650–710, 750–850 nm. Detektierte Wellenlängen (Abb. 4): 430–470, 500–531, 570–620 nm. |
| GraphPad Prism 10 | GraphPad | v10.6.1 | |
| Heizblock | Grant | QBT1 | |
| Hybrigene-Hybridisierungsöfen | Techne (Bibby Scientific) | FHB4DD | |
| Ixplore IX83 SpinSR Super-Resolution-Mikroskopsystem | Olympus | ixplore-ix83-spinsr | Anregungslaser: 405/488/561/640 nm. Emissionsfilter: 447/60, 525/50, 617/73, 685/40. |
| Zeiss Arivis Pro | Carl Zeiss Microscopy GmbH | v. 4.5 (früher Arivis Vision 4D) | |
| Zeiss Arivis SIS-Konverter | Carl Zeiss Microscopy GmbH | v. 4.3.0 |
Referenzen
- Bruter AV, Varlamova EA, Okulova YD, Tatarskiy VV, Silaeva YY, Filatov MA. Genetically modified mice as a tool for the study of human diseases. Mol Biol Rep. 2024;51(1):135.
- Rashbrook VS, Brash JT, Ruhrberg C. Cre toxicity in mouse models of cardiovascular physiology and disease. Nat Cardiovasc Res. 2022;1:806–16.
- Breschi A, Gingeras TR, Guigo R. Comparative transcriptomics in human and mouse. Nat Rev Genet. 2017;18(7):425–40.
- Mole MA, Weberling A, Zernicka-Goetz M. Comparative analysis of human and mouse development: From zygote to pre-gastrulation. Curr Top Dev Biol. 2020;136:113–38.
- Krishnan A, Samtani R, Dhanantwari P, Lee E, Yamada S, Shiota K, et al. A detailed comparison of mouse and human cardiac development. Pediatr Res. 2014;76(6):500–7.
- Anderson RH, Bamforth SD. Morphogenesis of the Mammalian Aortic Arch Arteries. Front Cell Dev Biol. 2022;10:892900.
- Wessels A, Sedmera D. Developmental anatomy of the heart: a tale of mice and man. Physiol Genomics. 2003;15(3):165–76.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378–83.
- John HA, Birnstiel ML, Jones KW. RNA-DNA hybrids at the cytological level. Nature. 1969;223(5206):582–7.
- Buongiorno-Nardelli M, Amaldi F. Autoradiographic detection of molecular hybrids between RNA and DNA in tissue sections. Nature. 1970;225(5236):946–8.
- Dakou E, Vanbekbergen N, Corradi S, Kemp CR, Willems E, Leyns L. Whole-mount in situ hybridization (WISH) optimized for gene expression analysis in mouse embryos and embryoid bodies. Methods Mol Biol. 2014;1211:27–40.
- Anderson R. Multiplex fluorescence in situ hybridization (M-FISH). Methods Mol Biol. 2010;659:83–97.
- Kearney L. Multiplex-FISH (M-FISH): technique, developments and applications. Cytogenet Genome Res. 2006;114(3-4):189–98.
- Burnett R, Guichard Y, Barale E. Immunohistochemistry for light microscopy in safety evaluation of therapeutic agents: an overview. Toxicology. 1997;119(1):83–93.
- Coons AH, Creech HJ, Jones RN. Immunological properties of an antibody containing a fluorescent group. P Soc Exp Biol Med. 1941;47(2):200–2.
- Bardot E, Tzavaras N, Benson DL, Dubois NC. Quantitative Whole-mount Immunofluorescence Analysis of Cardiac Progenitor Populations in Mouse Embryos. J Vis Exp. 2017(128).
- Wang F, Flanagan J, Su N, Wang LC, Bui S, Nielson A, et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. J Mol Diagn. 2012;14(1):22–9.
- Erben L, Buonanno A. Detection and Quantification of Multiple RNA Sequences Using Emerging Ultrasensitive Fluorescent In Situ Hybridization Techniques. Curr Protoc Neurosci. 2019;87(1):e63.
- De Bono C, Lescroart F, Zaffran S. How to Study Gene Expression and Gain of Function of Hoxb1 in Mouse Heart Development. Methods Mol Biol. 2025;2889:121–37.
- Zhao R, Moore EL, Gogol MM, Unruh JR, Yu Z, Scott AR, et al. Identification and characterization of intermediate states in mammalian neural crest cell epithelial to mesenchymal transition and delamination. Elife. 2024;13.
- Guijarro C, Kelly RG. On the involvement of the second heart field in congenital heart defects. C R Biol. 2024;347:9–18.
- Bradshaw L, Chaudhry B, Hildreth V, Webb S, Henderson DJ. Dual role for neural crest cells during outflow tract septation in the neural crest-deficient mutant Splotch(2H). J Anat. 2009;214(2):245–57.
- Zawada D, Kornherr J, Meier AB, Santamaria G, Dorn T, Nowak-Imialek M, et al. Retinoic acid signaling modulation guides in vitro specification of human heart field-specific progenitor pools. Nat Commun. 2023;14(1):1722.
- Rabadan MA, Herrera A, Fanlo L, Usieto S, Carmona-Fontaine C, Barriga EH, et al. Delamination of neural crest cells requires transient and reversible Wnt inhibition mediated by Dact1/2. Development. 2016;143(12):2194–205.
- Bhattacharya D, Rothstein M, Azambuja AP, Simoes-Costa M. Control of neural crest multipotency by Wnt signaling and the Lin28/let-7 axis. Elife. 2018;7.
- Kishimoto K, Furukawa KT, Luz-Madrigal A, Yamaoka A, Matsuoka C, Habu M, et al. Bidirectional Wnt signaling between endoderm and mesoderm confers tracheal identity in mouse and human cells. Nat Commun. 2020;11(1):4159.
- De Bono C, Liu Y, Ferrena A, Valentine A, Zheng D, Morrow BE. Single-cell transcriptomics uncovers a non-autonomous Tbx1-dependent genetic program controlling cardiac neural crest cell development. Nat Commun. 2023;14(1):1551.
- Hazra R, Spector DL. Simultaneous visualization of RNA transcripts and proteins in whole-mount mouse preimplantation embryos using single-molecule fluorescence in situ hybridization and immunofluorescence microscopy. Front Cell Dev Biol. 2022;10:986261.
- Kann AP, Krauss RS. Multiplexed RNAscope and immunofluorescence on whole-mount skeletal myofibers and their associated stem cells. Development. 2019;146(20).
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar