Diese Arbeit stellt ein Protokoll zur Gewinnung geklonter Embryonen einer gefährdeten Hirschart unter Verwendung entkernter Oozyten von Rindern vor. Hier beschreiben wir ausführlich die Methodik der interspezifischen somatischen Zellkernübertragung und den Einsatz von oozyten ohne Zona pellucida als Cytoplasmen. Zusätzlich werden die erzielten Ergebnisse detailliert diskutiert.
Methodenartikel
Interartliche somatische Zellkerntransfer-Technik unter Verwendung von zonapellucidafreien Eizellen des Rindes (Bos taurus) und Fibroblasten des Roten Brocket-Hirsches (Mazama americana)
In diesem Artikel
Zusammenfassung
Zusammenfassung
Fortpflanzungsbiotechnologien, die bei Tieren eingesetzt werden, ermöglichen es, Populationen mit hohem genetischem Wert zu vergrößern. Darüber hinaus tragen diese Technologien zur Erhaltung, Bewahrung und Verbreitung genetischen Materials von Individuen mit überlegenen Eigenschaften bei. Die genetische Rettung ausgewählter Individuen hat zu zahlreichen Studien an Haustierarten geführt, die darauf abzielen, die Ergebnisse auf andere Tierpopulationen oder spezifische Individuen zu übertragen. Ein solcher Ansatz ist die somatische Zellkerntransfer-Technik (SCNT), auch Klonen genannt, bei der Embryonen erzeugt werden, deren genetisches Material identisch mit dem eines vorhandenen Exemplars ist. Zu den Einschränkungen dieser Technik gehört die begrenzte Verfügbarkeit von Oozyten von Wildtieren. Als Alternative wurde daher der interspezifische somatische Zellkerntransfer (iSCNT) entwickelt, bei dem eine somatische Zelle (Karyoplast) der zu klonenden Art als nuklearer Spender verwendet und in ein enukleiertes Oozyt (Cytoplast) eingefügt wird, das von einer Art eines anderen Ordnungsrangs oder Taxons stammt. Dieser Ansatz ermöglicht die Gewinnung lebensfähiger geklonter Embryonen. In Brasilien gibt es neun Hirscharten, von denen viele aufgrund unkontrollierter Jagd, Lebensraumverlust und weiterer Ursachen bedroht sind. Der Rote Zwergbrocket (Mazama americana) gehört zu den von diesen Bedingungen betroffenen Arten. Daher stellt diese Arbeit eine Methodik zur Gewinnung geklonter Embryonen des Roten Zwergbrockets mittels der iSCNT-Technik vor, um eine Embryobank einzurichten, die eine spätere Übertragung auf Empfängerweibchen ermöglicht und so zum Überleben der Art beitragen soll.
Einleitung
Die Familie der Hirsche (Cervidae) umfasst derzeit 55 Arten von Huftieren mit echten Geweihen – knöcherne Strukturen, die am oberen Teil des Schädels von Männchen sichtbar sind, mit Ausnahme des Rentiers (Rangifer tarandus), bei dem beide Geschlechter über Geweihe verfügen1, und des chinesischen Wasserspringers (Hydropotes inermis), bei dem weder das männliche noch das weibliche Geschlecht Geweihe besitzt2. Hirsche gehören zur Ordnung der Cetartiodactyla, zu der auch die Familien der Gabelböcke, Wiederkäuer, Schweine, Schmalendachse, Kamele, Tangs, Giraffen und Flusspferde zählen. Im Allgemeinen sind Hirsche pflanzenfressende Wiederkäuer, die eine Vielzahl von Lebensräumen auf der ganzen Welt besiedeln, mit Ausnahme des antarktischen Kontinents3.
Neun Arten, die zur Familie der Cervidae gehören, werden derzeit in Brasilien anerkannt: Odocoileus virginianus (Weißwedelhirsch), Blastocerus dichotomus (Marschhirsch), Ozotoceros bezoarticus (Pampashirsch), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubiraund Passalites nemorivagus4.
Diese Taxonomie spiegelt aktuelle molekulare Studien wider, die zeigen, dass die Gattung Mazama polyphyletisch ist5, was zur Anerkennung von Subulo6 und Passalites7 als eigenständige, gültige Gattungen führte. Viele dieser neotropischen Hirsche sind zunehmend durch anthropogene Einflüsse bedroht, darunter Habitatverlust, Zerschneidung der Landschaft und die damit verbundene Abnahme der genetischen Vielfalt infolge der Isolation von Populationen8.
In den letzten 100 Jahren wurden assistierte Fortpflanzungstechniken zunächst bei Laborsäugern erfolgreich angewandt und werden schrittweise auf Wildarten mit hoher Erhaltungspriorität übertragen9. Folglich wurden die meisten Fortpflanzungsbiotechnologien anhand des Säugetiermodells weiterentwickelt, weshalb diese Tiergruppe den Großteil der Forschungsaufmerksamkeit erhalten hat. Mehrere Fortpflanzungstechnologien wurden bereits erfolgreich für Säugetiere angepasst, darunter künstliche Besamung, Embryotransfer, In-vitro-Fertilisation, Geschlechtsbestimmung von Gameten und Embryonen sowie die Kryokonservierung genetischer Ressourcen10. Eine Technik inbesondere, die somatische Zellkerntransfer (SCNT), hebt sich jedoch aufgrund ihrer Ergebnisse und ihres potenziellen Einflusses bei der Anwendung auf gefährdete Arten von den anderen ab11.
Unter den verfügbaren reproduktiven Biotechnologien ermöglicht das Klonen die Erzeugung von Individuen, die genetisch identisch mit dem Spendertier sind. Die somatische Zellkerntransfer-Technik (SCNT) ist die wichtigste Methode zum Klonen, bei der ein Kern aus einer somatischen Zelle in eine entkernte Oozyte eingebracht wird. Im Hinblick auf Wildtierarten ist ihre Anwendung jedoch häufig durch die Knappheit an Oozytspenderinnen und die mit der Oozytengewinnung verbundenen technischen Schwierigkeiten eingeschränkt12. Diese Einschränkungen haben zur Entwicklung des interspezifischen somatischen Zellkerntransfers (iSCNT) als ergänzende Strategie in Erhaltungszuchtprogrammen geführt, bei dem Oozyten domestizierter Tiere als Empfängerzytoplasma für Kerne gefährdeter Arten verwendet werden (Abbildung 1). Die Durchführbarkeit dieses Ansatzes wurde durch die erfolgreiche Erzeugung lebender Nachkommen mehrerer Wildtierarten mittels iSCNT nachgewiesen13,14,15.
Es wurden verschiedene Strategien zur Herstellung geklonter Embryonen vorgeschlagen, abhängig davon, wie Oozyten und Donorzellen manipuliert werden. Bei der herkömmlichen Methode werden Oozyten mit intakter Zona pellucida enukleiert, woraufhin die Donorzelle in den perivitellinen Raum eingebracht und mittels Elektrofusion fusioniert wird16. Eine weitere Möglichkeit besteht in der direkten Injektion des somatischen Zellkerns in eine von der Zona pellucida umschlossene Oozyte unter Verwendung von Mikromanipulationstechniken wie der Mikroinjektion17. Im Gegensatz dazu vereinfachen Systeme ohne Zona pellucida (ZP-frei) das Klonierungsverfahren, da mehrere Mikromanipulationsschritte entfallen; die Enukleation kann dabei mit einer stumpfen Pipette durchgeführt werden, ohne dass komplexe Geräte erforderlich sind18. In diesem Assay schlagen wir vor, ZP-freie Oozyten als Cytoplasmen während der iSCNT zu verwenden, um geklonte Embryonen unter Verwendung eines bovinen Cytoplasmas und eines Hirsch-Karyoplasmas zu erhalten.
Protokoll
Ein ausgewachsenes weibliches Rotbrockhirsch-Tier wurde von den Umweltbehörden in Guaramiranga, Ceará, Brasilien (4°13'53,0'' S, 38°56'42,6'' W) geborgen. Das Tier wurde tot im Laboratorium für den Erhalt neotropischer Hirschartigen (LACCERNE) der Staatsuniversität von Ceará (UECE), Fortaleza, Brasilien, eingeliefert. Die Obduktionsbefunde deuteten darauf hin, dass der Tod durch mehrfache schwere Verletzungen infolge eines Schusswaffengeschosses verursacht wurde, das durch die linke dorsolaterale Bauchregion eingedrungen war. Die Verwendung dieses Tieres wurde vom Ethikkomitee für Tierversuche der Staatsuniversität von Ceará (CEUA-UECE, Protokollnummer 450620/2022) sowie vom Brasilianischen Institut für Umwelt und erneuerbare natürliche Ressourcen (IBAMA, Protokollnummer 02027.014734/99-34) genehmigt. Zusätzlich wurde die Verwendung von bovinen Eierstöcken durch CEUA/UECE (Protokollnummer 31032.004671/2024-81) genehmigt. Die genauen Angaben zu allen verwendeten Reagenzien und Geräten sind in der Tabelle der Materialien aufgeführt. Die die Studie unterstützenden Daten sind über Zenodo unter der DOI-Nummer 10.5281/zenodo.22129414 verfügbar.
1. Lösungen und Kulturmedien
HINWEIS: Führen Sie alle Filtrationsvorgänge über einen sterilen 0,22 µm-Filter durch und lagern Sie das Filtrat bis zu einer Woche bei 4 °C. Lagern Sie die Stammlösung bei -20 °C.
- Transportmedium: 8,1 g NaCl und 0,045 g Pentabiotikum hinzufügen und mit destilliertem Wasser auf 900 mL auffüllen.
- Phosphatgepufferte Kochsalzlösung (PBS): 0,4 g NaCl, 0,01 g KCl, 0,077 g NaH2PO4 und 0,01 g KH2PO4 hinzufügen und mit ultrareinem Wasser auf 50 mL auffüllen.
- Zellkulturmedium: Dulbeccos modifiziertes Eagle-Medium (DMEM), ergänzt mit 10 % (v/v) fetalem Rinderserum (FBS) und 1,0 % (v/v) Penicillin-, Streptomycin- und Amphotericin B-Lösung (ATB).
- Kryokonservierungslösung für Fibroblasten: DMEM, ergänzt mit 10 % (v/v) FBS und 10 % (v/v) Dimethylsulfoxid (DMSO) sowie 2,0 % (v/v) ATB-Lösung.
- Trypsin-EDTA (0,25 %).
- Manipulationsmedium: HEPES-gepuffertes Tyrode-Medium mit Albumin, Lactat und Pyruvat (H-TALP). Dieses Medium für alle außerhalb des Inkubators durchgeführten Schritte verwenden. Für 1 L: 6,763 g NaCl, 0,239 g KCl, 0,294 g CaCl2·2H2O, 0,048 g MgCl2, 0,168 g NaHCO3 und 3,575 g HEPES in 981,86 mL steriles, embryo-geprüftes Wasser geben. Umrühren und 10 mL Antibiotikum-Antimykotikum, 1 mL Phenolrot, 1,44 mL Natriumlactat, 1 mL 100 mM Natriumpyruvat-Stammlösung und 3 g Rinderserumalbumin (BSA) hinzufügen. Die Osmolalität auf 280 mOsm und den pH-Wert auf einen Bereich von 7,2 bis 7,4 einstellen. In 50-mL-Aliquote aufteilen und bei 4 °C einen Monat lang lagern.
- Medium für die in-vitro-Maturation: Medium 199 (TCM-199), ergänzt mit 10 % (v/v) FBS, 10 ng/mL epidermalem Wachstumsfaktor (EGF), 1 mM Natriumpyruvat, 100 µM Cysteamin, 10 µg/mL follikelstimulierendem Hormon (FSH), 1 µg/mL Estradiol und 1 % (v/v) ATB. Den pH-Wert auf 7,2–7,4 einstellen.
- Hyaluronidase-Lösung (Endkonzentration: 1 mg/mL): 10 mg Hyaluronidase in 10 mL H-TALP auflösen. 200 µL Aliquote in 1,5-mL-Röhrchen vorbereiten, gebrauchsfertig.
- Pronase-Lösung (Endkonzentration: 1,5 mg/mL): 15 mg Pronase in 10 mL H-TALP auflösen. 200 µL Aliquote in 1,5-mL-Röhrchen vorbereiten, gebrauchsfertig.
- Demecolcin (Endkonzentration: 0,4 µg/mL): 5 mg Demecolcin (DMC) in 125 µL DMSO auflösen und 5 µL Aliquote (Stammlösung) herstellen. Die Aliquote bis zur Verwendung einfrieren. Zur Herstellung der Arbeitslösung 2 µL der Stammlösung mit 1998 µL TCM verdünnen. Vor der Anwendung 5 µL der Arbeitslösung zu 495 µL synthetischer Oviduktflüssigkeit (SOF) hinzufügen.
- Hoechst (Endkonzentration: 10 µg/mL): 1 mg/mL Hoechst 33342 in H-TALP auflösen. 5 µL Aliquote sowie 1:100-Verdünnungen im SOF-Kulturmedium herstellen.
ACHTUNG: Hoechst 33342, das zur Visualisierung nukleärer DNA unter UV-Licht verwendet wird, ist ein interkalierendes Agens und ein starkes Mutagen. Es ist mit geeigneter persönlicher Schutzausrüstung zu handhaben. - Phytohämaggglutinin (Endkonzentration: 1 mg/mL): 5 mg Phytohämaggglutinin (PHA) in 500 µL H-TALP auflösen. 10 µL Aliquote in 200 µL-Röhrchen vorbereiten. Zur Anwendung 90 µL H-TALP hinzufügen.
- Zellfusionsmedium: 0,3 M Mannitol, 0,1 mM MgSO4, 0,05 mM CaCl2, 0,5 mM HEPES und 1 mg/mL Polyvinylalkohol (PVA) in ultrareinem Wasser. Am Tag der Herstellung verwenden.
- Ionomycin (Endkonzentration: 5 µM): 1 mL DMSO zu dem Ionomycin-Fläschchen (1 mg/Fläschchen) hinzufügen. 1,67 mL TCM-199 hinzufügen. 10 µL Aliquote in 1,5-mL-Röhrchen bei -20 °C einfrieren. Zur Anwendung den Inhalt jedes 1,5-mL-Röhrchens mit 990 µL H-TALP versetzen. Vor Licht schützen.
- 6-Dimethylaminopurin (Endkonzentration: 2 mM): 10 mg 6-Dimethylaminopurin (6-DMAP) auflösen. 50 µL Aliquote in 1,5-mL-Röhrchen bei -20 °C einfrieren. Zur Anwendung den Inhalt jedes 1,5-mL-Röhrchens mit 950 µL SOF versetzen.
- Embryokulturmedium: 0,2 mM L-Glutamin, 0,2 mM Natriumpyruvat, 2 % essentielle Aminosäuren Basal Medium Eagle (BME), 1 % nicht-essentielle Aminosäuren MEM 100×, 1,0 % (v/v) ATB-Lösung, 2,77 mM myo-Inositol, 2,5 % (v/v) FBS, 10 µL/mL ITS (Mischung aus Insulin, humanem Transferrin und Natriumselenit) und 3 g/L BSA.
2. Sammlung und Bearbeitung der Spendergewebeprobe
- Waschen und rasieren Sie die Oberfläche des Ohres der spendenden weiblichen Maus mit Seife und Wasser; desinfizieren Sie anschließend die Region mit Alkohol (70 %).
- Entnehmen Sie eine kleine Ohrprobe (1 × 2 cm) mit einer Rasierklinge, legen Sie sie in eine PBS-Lösung mit 4 % ATB und transportieren Sie sie unter Kühlung bei 4 °C ins Labor.
- Schneiden Sie die Biopsieprobe mit einer Rasierklinge in kleine Stücke und geben Sie sie in eine 35-mm-Petri-Schale, die mit Kulturmedium bedeckt ist. Inkubieren Sie bei 38,5 °C unter gesättigter Luftfeuchtigkeit mit 5 % CO₂.
- Ersetzen Sie das Kulturmedium alle 48 Stunden, bis die Zellen konfluent sind, um Kontaminationen zu vermeiden.
- Entfernen Sie das Kulturmedium von der konfluenten Zellkultur und geben Sie 1 mL 0,25 %iges Trypsin-EDTA in die 35-mm-Petri-Schale für 2 Minuten.
- Zur Inaktivierung des Trypsins geben Sie 2 mL Zellkulturmedium hinzu. Überführen Sie die Zellsuspension in ein 15-mL-Röhrchen und zentrifugieren Sie 10 Minuten bei 200 x g bei Raumtemperatur (≈ 25 °C).
- Entfernen Sie den Überstand und resuspendieren Sie das Zellpellet in 10 mL Kulturmedium. Passagieren Sie die Fibroblastenkultur alle 5 Tage.
- Tiefgefrieren Sie die Fibroblasten, indem Sie das Zellpellet in 1 mL Kryokonservierungslösung resuspendieren. Überführen Sie die Zellsuspension in Kryoröhrchen, lagern Sie diese 18 Stunden bei -80 °C in einem kontrollierten Gefriermult, und bringen Sie sie danach in einen flüssigen Stickstofftank (-196 °C), bis sie verwendet werden. Nach der Kryokonservierung der Fibroblasten kann die Zellmanipulation unterbrochen und erst zum Zeitpunkt der Zellzyklus-Synchronisierung wieder aufgenommen werden.
- Tauen Sie die Fibroblasten 1–2 Wochen vor ihrer Verwendung für iSCNT auf und kultivieren Sie sie.
3. Zellzyklus-Synchronisierung
- Synchronisieren Sie den Zellzyklus durch Konfluenz in der G0/G1-Phase.
- Entfernen Sie das Kulturmedium von der konfluenten Platte und geben Sie 1 mL 0,25 %iger Trypsin-EDTA-Lösung in eine 35-mm-Petrischale, um 2 Minuten lang im CO₂-Inkubator bei 38,5 °C zu inkubieren. Geben Sie 2 mL Kulturmedium hinzu, um das Trypsin zu inaktivieren.
- Überführen Sie die Zellsuspension in ein 15-mL-Röhrchen und zentrifugieren Sie 10 Minuten bei 200 x g.
- Entfernen Sie das Überstand und resuspendieren Sie das Zellpellet in 1–3 mL Zellkulturmedium für die iSCNT.
4. Sammlung von Oozyten
- Sammeln Sie Rinderovarien von Rinderkuhen oder -kühen unmittelbar nach der Schlachtung und transportieren Sie sie in einer Thermosflasche mit Transportmedium zum Labor, wobei eine Temperatur von 25–30 °C eingehalten werden muss.
- Waschen Sie die Ovarien zweimal mit Kulturmedium und legen Sie sie in ein Becherglas, das sich in einem Wasserbad bei 38,5 °C befindet.
- Aspirieren Sie das Follikelfluid aus Follikeln mit einem Durchmesser von 2–8 mm mithilfe einer 18-Gauge-Nadel, die an eine 10-mL-Spritze mit H-TALP-Medium angeschlossen ist.
- Überführen Sie das aspirierte Follikelfluid in ein 50-mL-Konischgefäß und lassen Sie es mindestens 15 Minuten lang in einem Wasserbad bei 38,5 °C stehen.
5. Oozytenreifung und Enthüllung
- Nach 15 min überführen Sie das gesamte Pellet vorsichtig mit einer Plastik-Pasteurpipette in eine Petrischale (100 × 15 mm).
- Wählen Sie unter dem Stereomikroskop Cumulus-Oozyten-Komplexe (COCs) aus, die mindestens drei kompakte Schichten von Cumuluszellen aufweisen und den Qualitätsstufen I bis III entsprechen (Tabelle 1)19.
- Waschen Sie die COCs dreimal mit halber H-TALP-Lösung und anschließend zweimal mit In-vitro-Maturierungsmedium.
- Geben Sie 20–25 COCs in jeden 100-µL-Tropfen In-vitro-Maturierungsmedium, der mit Mineralöl bedeckt ist. Inkubieren Sie sie bei 38,5 °C in einer Atmosphäre mit 5 % CO₂ und gesättigter Luftfeuchtigkeit für 20–22 h.
- Entfernen Sie die Zellen aus dem COC-Verbund, indem Sie sie 2 min lang vorsichtig in 200 µL Hyaluronidaselösung auf- und abpipettieren.
- Waschen Sie die Oozyten in 2 mL H-TALP-Medium von den Cumuluszellen frei.
- Wählen Sie unter dem Stereomikroskop die Oozyten aus, die die Ausstülpung des ersten Polkörperchens zeigen (Metaphase II – MII), für die nachfolgenden Schritte aus.
6. Entfernung der Zona pellucida, Enukleation und Rekonstruktion von oocyten ohne Zona pellucida
- Die Oozyten im MII-Stadium für 1–2 min in einem 100-µL-Tropfen Pronaselösung bei 38,5 °C inkubieren. Unter einem Stereomikroskop beobachten, bis die Zona pellucida anfängt, sich zu verändern.
- Die Oozyten unverzüglich entnehmen und in Kulturmedium mit 20 % FBS überführen, um Pronase zu inaktivieren.
- Die Oozyten ohne Zona pellucida 20 min in SOF-Medium mit 0,4 µg/mL Demecolcin inkubieren, um einen cytoplasmatischen Auswuchs mit DNA zu induzieren, gefolgt von einer zweiten 20-minütigen Inkubation in demselben Medium, ergänzt mit 10 µg/mL Hoechst.
- Die Oozyten ohne Zona pellucida in Tropfen H-TALP überführen und die Enukleation mittels Mikromanipulatoren an einem inversen Mikroskop durchführen.
- Das Oozyt neben die Haltepipette platzieren.
- Das Oozyt drehen, bis der Auswuchs in der Drei-Uhr-Position steht, und den Auswuchs zusammen mit 5–10 % des Zytoplasmas mittels einer stumpfen Injektionspipette mit 25 µm Durchmesser aspirieren.
- Erfolgreiche Enukleation durch Betrachtung des aspirierten Zytoplasmas unter ultraviolettem Licht bestätigen (Abbildung 2).
ACHTUNG: Die Exposition der Oozyten gegenüber DNA-Färbemitteln und ultraviolettem Licht schädigt das genetische Material und induziert oxidativen Stress. Die Expositionszeit minimieren.
7. Zellfusion
- Bauen Sie die Fusionskammer unter einem Stereomikroskop zusammen und füllen Sie sie mit 2 mL Fusionsmedium bei einem pH-Wert von 7.
- Bereiten Sie in einer 60-mm-Petri-Schale fünf Tropfen zu je 100 µL und einen Tropfen zu 30 µL H-TALP vor und geben Sie 50 µL PHA hinzu.
- Geben Sie 5 µL Fibroblasten zum 30-µL-Tropfen H-TALP, wählen Sie die gleichmäßigen, lichtbrechenden Zellen aus und überführen Sie sie in einen 100-µL-Tropfen von H-TALP.
- Überführen Sie die enukleierten Oozyten in einen 100-µL-Tropfen von H-TALP.
- Exponieren Sie das Oozyt für 4 s dem PHA-Tropfen, platzieren Sie es auf einer Zelle und bestätigen Sie die Adhäsion beider. Überführen Sie anschließend den Komplex in einen TALP-H-Tropfen, der frei von jeglichen Inhalten ist.
- Nachdem Oozyt und Zelle adhäriert sind, überführen Sie sie in eine Platte mit 2 mL Fusionsmedium, um sie absetzen zu lassen. Platzieren Sie dann den Komplex in der Fusionskammer zwischen den Elektroden, wobei die Zelle in der Position sechs oder zwölf Uhr positioniert wird.
ACHTUNG: Die zur Elektrofusion verwendeten Aktivierungspuffer enthalten Ionomycin, das die zelluläre Kalziumhomöostase stört. Hochspannungselektrische Felder bergen die Gefahr eines elektrischen Schlags oder Lichtbogens, wenn die Ausrüstung nass ist oder unsachgemäß behandelt wird. - Führen Sie die Fusion mit einer Mikrofusionskammer mit einem Elektrodenabstand von 0,2 mm durch. Wenden Sie mithilfe eines Elektroporators eine einzelne Impulsfolge an, bestehend aus zwei unidirektionalen Gleichstromimpulsen bei 0,72 kV/cm, wobei jeder Impuls 30 µs dauert und ein Intervall von 0,1 s zwischen den Impulsen liegt.
- Überführen Sie nach dem Impuls jedes Oozyt-Zell-Paar einzeln in 5-µL-Mikrotropfen SOF, ergänzt mit 2,5 % FBS, und kultivieren Sie sie bei 38,5 °C in einer Atmosphäre mit 5 % CO₂.
- Beurteilen Sie die Fusion einzeln nach 30 Minuten unter einem Stereomikroskop.
- Unterziehen Sie nicht fusionierte Strukturen einer zweiten Fusionsrunde.
- Betrachten Sie die fusionierten Komplexe als rekonstituierte Embryonen ohne Zona pellucida und inkubieren Sie sie für 2 h bis zur Aktivierung (Reprogrammierungszeit).
8. Oozytenaktivierung und Embryokultur
- Die rekonstruierten Strukturen 4 min lang in 100 µL-Tropfen H-TALP-Medium, das 5 µM Ionomycin enthält, inkubieren.
- Die rekonstruierten Strukturen in vier Tropfen à 100 µL H-TALP-Medium waschen.
- Die rekonstruierten Strukturen 3 h lang in 100 µL-Tropfen SOF-Medium, das 2 mM 6-DMAP enthält, inkubieren.
- Die rekonstruierten Strukturen in vier Tropfen à 100 µL SOF-Medium waschen.
- Mikrobrunnenplatten herstellen, indem eine erhitzte Glaskapillare leicht auf den Boden einer 35 × 10 mm Petrischale gedrückt wird. Zwischen 20 und 25 Mikrobrunnen erzeugen, jeweils mit einem Durchmesser von 500 µm und einer Tiefe von 250 µm20.
- Die rekonstituierten Embryonen einzeln in modifizierte Mikroplattenbrunnen geben, mit jeweils 100 µL SOF-Medium bedecken und abschließend mit 3 mL Mineralöl überdecken. Die Mikroplatten für 7 Tage in einen Dreigas-Inkubator mit 5 % CO₂, 5 % O₂ und 90 % N₂ stellen.
Ergebnisse
Die Ergebnisse wurden mithilfe der R-Software (v.4.5.2) analysiert. Spaltungsraten und Blastozystenraten wurden zwischen den Paaren (Hirsch/Rind vs. Rind/Rind) mittels Fishers exaktem Test verglichen. Es wurden zehn Wiederholungen durchgeführt: vier mit dem Hirsch/Rind-Paar und sechs mit dem Rind/Rind-Paar. Zusätzlich wurde für alle Analysen das Signifikanzniveau bei 5 % festgelegt.
Während des Assays wurden 472 bovine Oozyten, die aus einem örtlichen Schlachthof stammten, als Cytoplastempfänger verwendet. Nach der in-vitro-Maturierung und anschließenden Elektrofusion konnten sich jedoch 73 Strukturen nicht vereinigen und wurden von weiteren Schritten ausgeschlossen, sodass 399 erfolgreich fusionierte Karyoplast/Cytoplast-Strukturen verblieben. Von dieser Gesamtzahl wurden die folgenden Paare (Karyoplast/Cytoplast) verwendet: vier Wiederholungen Hirsch/Rind (n = 175) und sechs Wiederholungen Rind/Rind (n = 224) (Tabelle 2).
Um die Auswirkungen von iSCNT zu bewerten, wurden rekonstruierte Embryonen ohne Zona pellucida bis zum Tag 7 in Mikrowellkulturen inkubiert. Repräsentative Mikrofotografien von Morula und Blastozyst ohne Zona pellucida sind in der Abbildung 3 dargestellt.
Tabelle 2 zeigt die Spaltungsraten und Blastozystenraten, die in diesem Experiment erzielt wurden. Die Spaltungsrate wies keine signifikanten Unterschiede (P = 0,74) zwischen den Gruppen (Hirsch/Rind und Rind/Rind) auf. Hinsichtlich der Blastozystenbildungsrate hingegen wurde ein statistischer Unterschied (P = 0,02) beobachtet, wobei die intraspezifische Klonierungsgruppe einen höheren Prozentsatz aufwies. Es ist jedoch wichtig, die begrenzte statistische Aussagekraft für diese Art von Experiment hervorzuheben, bei der die Anzahl an interspezifischen Klonen üblicherweise gering ist.
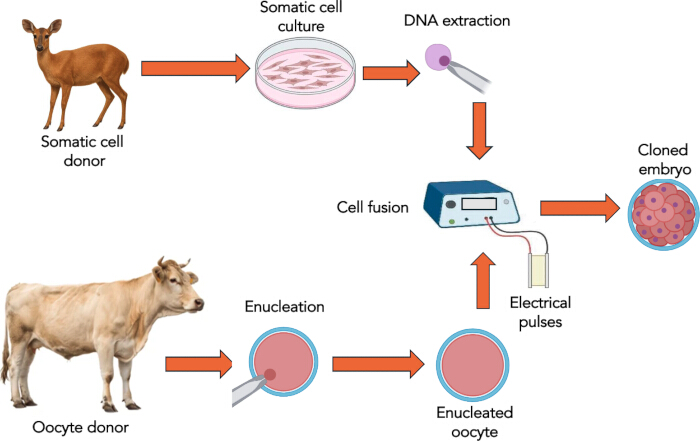
Abbildung 1: Schematische Stadien der interspezifischen somatischen Zellkerntransfer. Kühe werden als Cytoplastspenderinnen verwendet, während Hirsche als Karyoplastspender dienen. Nach der Gewinnung des geklonten Embryos kann dieser in Empfängerweibchen transferiert oder für eine spätere Übertragung kryokonserviert werden. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
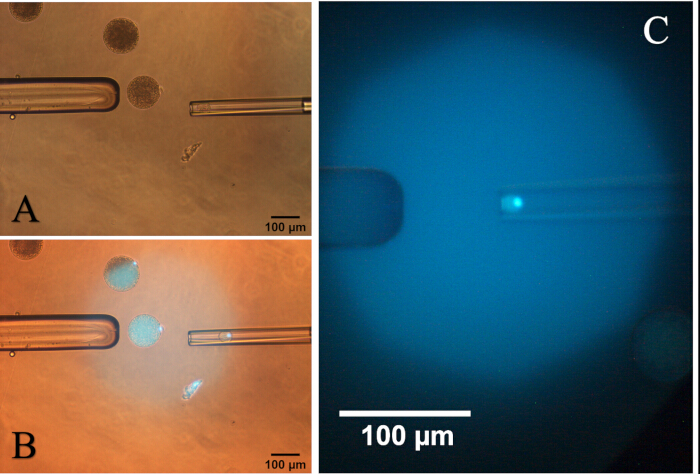
Abbildung 2: Photomikrografie einer aktivierten Oozyte mit einem Zytoplasmaprophylus. (A) Drehung der Oozyte, um den Prozess in die Drei-Uhr-Position zu bringen. (B) Aspiration des Prozesses mit 5–10 % des Zytoplasmas unter Belichtung mit ultraviolettem Licht. (C) Zytoplasma und sein Prozess in der Aspirationspipette unter ultraviolettem Licht. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
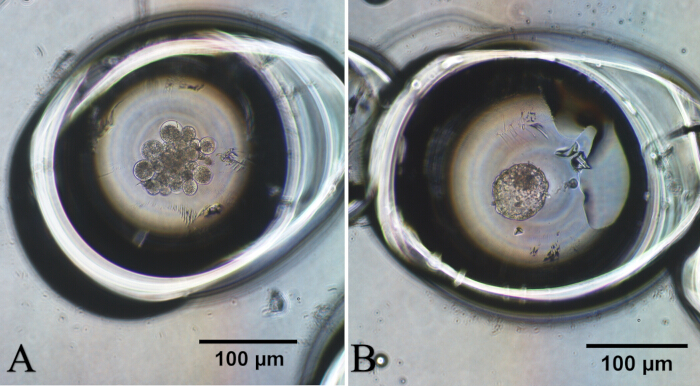
Abbildung 3: Photomikrografie von Hirschembryonen, die mittels interspezifischem somatischem Zellkerntransfer erzeugt wurden. (A) Klonierter Embryo im Morula-Stadium. (B) Klonierter Embryo im Blastozysten-Stadium. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Grad | Anzahl der Cumulus-Schichten | Ausdehnung des Cumulus |
| I | > 3 | Vollständige Cumulusbedeckung mit mehreren kompakten und leicht lockeren Zellschichten |
| II | 2 - 3 | Leichte Ausdehnung der äußeren Zellschichten |
| III | 1 | Teilweise Cumulusbedeckung und lockere Zellschichten |
| IV | 0 | Kein Cumulus |
Tabelle 1: Klassifizierung boviner Oozyten, die anschließend enukleiert und als Cytoplasmen bei der interspezifischen somatischen Zellkerntransferierung verwendet werden (nach Aguila et al.)19.
| Gruppen (Carioplast/Zytoplast) | Anzahl der Wiederholungen | Anzahl der rekonstruierten Embryonen | Anzahl der gespaltenen (%) | Anzahl der Blastozysten (%) |
| Hirsch/Rind | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Rind/Rind | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Unterschiedliche Buchstaben in derselben Spalte weisen auf einen statistischen Unterschied hin. | ||||
| Spaltungsraten: P = 0,74 | ||||
| Blastozystenrate: P = 0,02 | ||||
Tabelle 2: In-vitro-Entwicklung von klonierten Embryonen des Roten Brockethirsches unter Verwendung von bovinem Cytoplasma. Es wurden zehn Wiederholungen durchgeführt: vier mit Hirsch/Rind-Paarungen und sechs mit Rind/Rind-Paarungen. Die Teilungs- und Blastozystenraten wurden anhand der Anzahl rekonstruierter Embryonen als Bezugsgröße berechnet.
Diskussion
Es ist bereits gut dokumentiert, dass das Genom gefährdeter Arten mithilfe von Oozyten von Nutztieren, insbesondere Rindern und Schweinen, die die größte Quelle von Cytoplasmen darstellen, reprogrammiert werden kann21. Einer der größten Fortschritte, die mit der iSCNT erzielt wurden, war die Klonierung des Pyrenäenziegenbocks (Capra pyrenaica pyrenaica), einer Unterart, die nach dem Tod ihres letzten bekannten Individuums ausgestorben war. Die rekonstruierten Embryonen wurden durch Fusion von Epithelzellen des Ziegenbocks mit Oozyten der Hausziege (Capra hircus) gewonnen. Die Autoren erzielten die Geburt eines weiblichen Tieres ohne äußere morphologische Auffälligkeiten. Das Nachkommenexemplar wies jedoch einen schweren Atemstillstand auf und starb wenige Minuten nach der Geburt22.
Einer der aussichtsreichsten Kandidaten für eine „Wiederbelebung“ ist das Wollmammut (Mammuthus primigenius). Für eine Klonierung ist die Verfügbarkeit lebensfähigen Gewebes mit identifizierbaren Kernen entscheidend, was bei einer vor etwa 10.000 Jahren ausgestorbenen Art schwierig ist. Dennoch erfüllen die in der gefrorenen Erdschicht gefundenen Mammutkörper die Mindestanforderungen für die iSCNT23. Dennoch könnten gefährdete Arten die geeigneteren Kandidaten sein, um von der Anwendung dieser Technik zu profitieren.
Die in unserer Studie beobachtete Segmentationsrate zeigte, dass die Aktivierung und die erste embryonale Teilung durch die interartliche Kombination von Kern und Zytoplasma nicht beeinträchtigt wurden. Während der Rekonstruktionsphase erwies sich die Handhabung und Fusion der Strukturen (Karyoplast/Zytoplast) in beiden Gruppen als gleich technisch einfach, was auf eine strukturelle Verträglichkeit zwischen den Arten hindeutet. Bezüglich der Blastozystenrate legen die Ergebnisse nahe, dass, obwohl die Rekonstruktion und die frühe Aktivierung des iSCNT-Embryos kein limitierender Faktor sind, eine Kern-Zytoplasma-Inkompatibilität besteht, die sich in späteren Entwicklungsstadien manifestiert und wahrscheinlich mit einer unvollständigen epigenetischen Reprogrammierung oder dem Übergang von maternaler zu zygotischer Kontrolle zusammenhängt, wodurch die Fähigkeit des Hybridembryos, das Blastozystenstadium zu erreichen, beeinträchtigt wird24. Die Effizienz der iSCNT ist tendenziell höher, wenn Karyoplasten und Zytoplasten von phylogenetisch nahe verwandten Arten stammen, da die natürliche Bildung lebensfähiger hybrider Nachkommen ein gewisses Maß an Nukleozytoplasma-Verträglichkeit zwischen den beiden Arten anzeigt23. Daher konnte bereits gezeigt werden, dass die inter-subspezifische SCNT gesunde Nachkommen hervorbringen kann. Die Autoren verwendeten einen Hündinnen-Zytoplasten und einen Wolfs-Fibroblasten und transferierten die Embryonen in 12 Weibchen, was zur Geburt eines Nachkommens führte25.
Die Anwendung der iSKNT steht vor einer erheblichen „Leistungseinschränkung“ hinsichtlich ihrer biologischen und entwicklungsbedingten Effizienz, die stark abnimmt, je größer die evolutionäre Distanz zwischen dem Spenderkern und dem Empfänger-Oozyt ist. Während sie zwischen eng verwandten Arten (z. B. Hausrind und Gaur)26 erfolgreich ist, misslingt sie regelmäßig bei dem Versuch, lebensfähige Nachkommen oder stabile embryonale Zelllinien über weiter entfernte taxonomische Grenzen hinweg zu erzeugen.
Die Klonierung stellt ein wichtiges Werkzeug für Zuchtprogramme und den Artenschutz dar, da sie die Vermehrung genetisch überlegener Individuen ermöglicht, die Erzeugung transgener Tiere unterstützt und durch Genbanken zur langfristigen Erhaltung wertvoller genetischer Ressourcen beiträgt. Dennoch wird die Anwendung der Klonierung in der Nutztierzucht weiterhin durch die geringe Anzahl lebend geborener Tiere im Verhältnis zur Anzahl transferierter Embryonen eingeschränkt18. Aktuelle Ansätze zur Herstellung geklonter Embryonen werden im Allgemeinen in zwei Kategorien unterteilt: konventionelle Klonierung und zonapellizellfreie (ZP-freie) Klonierung. Bei der konventionellen Methode ist ein Mikromanipulator erforderlich, um den Oozytenkern zu entfernen und die donorale somatische Zelle in das empfängliche Cytoplasma einzubringen26. Im Gegensatz zur konventionellen Klonierung erfolgt die ZP-freie Methode ohne Mikromanipulation27. Die Ergebnisse unserer Studie ähnelten stark denjenigen, die mit iSCNT erzielt wurden, sowohl hinsichtlich der Teilungsrate als auch der Blastozystenbildung20,21.
Abschließend ist unter Berücksichtigung der verschiedenen Schritte dieses Verfahrens auf kritische Punkte und praktische Fehlerbehebungen hinzuweisen. Hinsichtlich der ZP-Entfernung bietet das zonafreie Klonen mehrere Vorteile, darunter einfache Handhabung, Kosteneffizienz und eine vergleichsweise verbesserte Geburtenrate pro transferiertem Embryo28. Die Bestätigung einer vollständigen Entfernung des Zellkerns (Enukleation), ohne dabei einen tödlichen Schaden des Cytoplasmas zu verursachen, entscheidet darüber, ob die rekonstruierte Struktur einen geklonten Embryo erfolgreich tragen kann. Obwohl bekannt ist, dass UV-Bestrahlung schädliche Wirkungen hat29, wird sie in der Mehrzahl der Klonierungslabore routinemäßig eingesetzt. Schließlich fehlt beim zonafreien Embryokultur die schützende äußere Glykoproteinhülle, was zu erheblichen Problemen wie hoher mechanischer Zerbrechlichkeit während der Handhabung und zur Dissoziation von Blastomeren führt30.
Zusammenfassend sollten die in unserer Studie erhaltenen Ergebnisse als vorläufiger Hinweis auf die technische Durchführbarkeit des iSCNT-Protokolls in der Kombination Hirsch/Rind verstanden werden, nicht jedoch als endgültiger Beweis für seine produktive Wirksamkeit. Daher sind weitere Studien mit einer größeren Anzahl von Wiederholungen erforderlich, um diese Befunde zu bestätigen.
Offenlegungen
Die Autoren haben keine Interessenkonflikte offenzulegen.
Danksagungen
Diese Arbeit wurde von der Cearense-Stiftung zur Förderung der wissenschaftlichen und technologischen Entwicklung (FUNCAP, Fortaleza, Brasilien, Förderkennzeichen 11212233/2022) und den Nationalen Instituten für Wissenschaft und Technologie (INCT/CNPq, Förderkennzeichen 406866/2022-8) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Aspirationsnadel (18G) | LABIMPORT | 353601 | Einwegnadel, kurz geschnitten |
| 6-Dimethylaminopurin (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibiotikum–Antimykotikum | Gibco, Thermo Fisher Scientific | 15240062 | |
| Rinderserumalbumin | Sigma-Aldrich | A9647 | |
| Calciumchloriddihydrat (CaCl2·2H2O) | Sigma-Aldrich | C7902 | |
| Zellkulturschale T-25 | Corning | 430639 | |
| CellTram-Mikroinjektor | Eppendorf | 5196 000.021 | |
| Zentrifuge | Eppendorf | 5702 | Wird zum Zentrifugieren von Zellen bei 200 × g für 10 Minuten verwendet, um Proben vor Kerntransferverfahren zu pelletieren und zu waschen. |
| Zentrifugenröhrchen (50 mL) | Corning | CLS430291 | |
| Kryoröhrchen (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Cysteamin | Sigma-Aldrich | M9768 | |
| Demecolcin | Sigma-Aldrich | D1925 | |
| Destilliertes Wasser. | _ | _ | |
| DMSO (Zellgefrierschutz) | Sigma-Aldrich | D2650 | 10 % Kryoprotektans für die Kryokonservierung von Donorzellen |
| Dulbeccos modifiziertes Eagle-Medium (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Enukleationspipette (20–25 µm Innendurchmesser) | Narishige | GD-1 | |
| Epidermaler Wachstumsfaktor (EGF) | Sigma-Aldrich | E4127 | |
| Essentielle Aminosäuren BME | Sigma-Aldrich | M5550 | |
| Östradiol | Sigma-Aldrich | E8875 | |
| EVE Inkubator (5 % O2, 5 % CO2, 90 % N2) | WTA medical | REF. 23578 | |
| Fötales Rinderserum (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Glaskapillare mit Filament | Narishige | GD-1 | Diese Glaskapillare wird verwendet, um Mikrowannen in der Petrischale herzustellen |
| Heizplatte | WTA medical | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (DNA-Färbemittel) | Sigma-Aldrich | B2261 | |
| Haltepipette (120 μm Außendurchmesser) | Narishige | GD-1 | |
| Hyaluronidase | Sigma-Aldrich | H4272 | |
| Invertiertes Mikroskop ECLIPSE | Nikon | TE2000-U | |
| Ionomycin (Calciumionophor A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Laminar-Flow-Kabine Isocide | Esco | 2120765 | Laminar-Flow-Kabine, die eine sterile Arbeitsumgebung für Embryo- und Zellkulturverfahren bereitstellt. |
| L-Glutamin | Sigma-Aldrich | G8540 | |
| Flüssigstickstoff-Lagerbehälter (Dewar) | Nitroagro | Varies | |
| Magnesiumsulfat (MgSO4) | Sigma-Aldrich | M2643 | |
| Mannit-Fusionsmedium (0,3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Mikroschleuder MF-900 | Narishige | MF-900 | |
| Mikromanipulationssystem | Narishige | MM-89 / TransferMan 4r | |
| Mikropipettenzieher | Narishige | Narishige PC-100 | |
| Mikropipetten (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Research Plus Series | |
| Mikrofusionskammer | Eppendorf | 12816532 | Ist ein spezielles Zubehör mit 0,2 mm Spalt, das für Elektroporationsanwendungen konzipiert ist |
| Mineralöl (embryotestet) | Sigma-Aldrich | M8410 | |
| Multiporator | Eppendorf | 4308 000.015 | |
| Myo-Inositol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Nicht-essentielle Aminosäuren MEM | Sigma-Aldrich | M7145 | |
| Pentabiotikum | Zoetis | 10005048 | 2.400.000 IE pro Fläschchen. |
| Petrischale 35 mm (embryotestet) | Corning | 430165 | |
| Petrischale 60 mm (embryotestet) | Corning | 430196 | |
| Phenolrot | Sigma-Aldrich | P0290 | |
| Pipettenspitzen 1000 µL | Eppendorf | 9401030 | |
| Pipettenspitzen 200 µL | Eppendorf | 94052300 | |
| Pipettenspitzen ohne Filter (0,5–10 µL) | Axygen | T-300 | |
| Poly(vinylalkohol) (PVA) | Sigma-Aldrich | P8136 | |
| Pronase (Protease aus S. griseus) | Sigma-Aldrich | P8811 | |
| Natriumlactat | Sigma-Aldrich | L7900 | |
| Natriumpyruvat | Sigma- Aldrich | P4562 | |
| Stereomikroskop | Nikon | SMZ800 | |
| Steriles, embryotestetes Wasser | Sigma-Aldrich | W3500 | |
| Steriler Filter (0,22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Tri-Gas-Inkubator (5 % O2, 5 % CO2, 90 % N2) | WTA medical | REF. 23578 | |
| Trypsin-EDTA (0,25 %) | Gibco / Thermo Fisher | 25200056 | |
| Ultrapure wáter | Sigma-Aldrich | W3500 | |
| UV-Lampe / Fluoreszenzmodul | Leica / Olympus | Varies | Kurze UV-Bestrahlung zur Überprüfung der Enukleation; Phototoxizität minimieren |
Referenzen
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Nachdrucke und Genehmigungen
Dieser Artikel wurde veröffentlicht
Video demnächst verfügbar