Diese Studie kombiniert Netzwerkpharmakologie, validierte molekulare Docking-Verfahren und in vitro-Experimente, um mögliche Verbindungs-Zielbeziehungen zwischen Inhaltsstoffen von Cordyceps sinensis und Prozessen im Zusammenhang mit chronischer Glomerulonephritis zu bewerten. β-Sitosterol wurde für die Validierung auf Verbindungsebene ausgewählt und erwies sich als wirksam bei der Abschwächung entzündlicher und profibrotischer Aktivierungen in Mesangialzellenmodellen.
Methodenartikel
Netzwerkgestützte Evaluierung von β-Sitosterol in entzündlichen und profibrotischen Mesangialzellmodellen mit Relevanz für die chronische Glomerulonephritis
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die chronische Glomerulonephritis (CGN) ist gekennzeichnet durch anhaltende entzündliche Schädigungen und fortschreitende fibrotische Umbildung, doch die Wirkstoff-Zielstrukturen-Beziehungen natürlicher Produkte sind bisher unvollständig definiert. Diese Studie kombinierte Netzwerkpharmakologie, validierte molekulare Docking-Verfahren und in vitro-Experimente, um Kandidatensubstanzen aus Cordyceps sinensis (C. sinensis) hinsichtlich ihrer Beteiligung an CGN-assoziierten pathologischen Prozessen zu bewerten. Kandidatensubstanzen von C. sinensis wurden identifiziert, und die aus der Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform abgeleiteten, verbindungsassoziierten Zielstrukturen wurden mit CGN-assoziierten Genen abgeglichen. Mithilfe funktioneller Anreicherungsanalysen und Protein-Protein-Interaktionsanalysen wurden biologische Prozesse und zentrale Zielstrukturen priorisiert. PTGS2 wurde als zentrale überlappende Zielstruktur identifiziert. Molekulares Docking wurde unter Verwendung einer mit Celecoxib gebundenen COX-2-Struktur durchgeführt. Die erneute Einlagerung des ko-kristallisierten Celecoxib-Liganden reproduzierte die kristallographische Pose mit einem RMSD von 0,876 Å und bestätigte damit das Docking-Protokoll. β-Sitosterol und Linoleylacetat zeigten eine vorhergesagte Kompatibilität mit der COX-2-Docking-Region mit Bindungsaffinitäten von −7,2 bzw. −7,5 kcal/mol. β-Sitosterol wurde für die Validierung auf Verbindungsebene in HBZY-1-Ratten-Glomerulamesangialzellen ausgewählt. Bei Konzentrationen von 0,5–10 µM verringerte β-Sitosterol die Zellviabilität nicht signifikant. In mit Lipopolysaccharid (LPS) stimulierten Zellen reduzierte β-Sitosterol die Expression von Tnf, Il6 und Ptgs2, verringerte die Produktion von Prostaglandin E2 (PGE2) und senkte die Proteinkonzentration von Cyclooxygenase-2 (COX-2). In mit Transforming Growth Factor β1 (TGF-β1) behandelten Zellen verringerte β-Sitosterol die Expression von Col1a1 und Acta2 sowie die Proteinkonzentration von alpha-glatter Muskelaktin (α-SMA). Diese Ergebnisse liefern hypothetische Hinweise darauf, dass β-Sitosterol entzündliche und profibrotische Aktivierungen in Mesangialzellmodellen moduliert, belegen jedoch weder eine direkte enzymatische Hemmung von COX-2 noch eine therapeutische Wirksamkeit bei CGN.
Einleitung
Die chronische Glomerulonephritis (CGN) umfasst eine heterogene Gruppe glomerulärer Erkrankungen, die zu chronischer Nierenerkrankung und terminalem Nierenversagen fortschreiten können1. Sie ist gekennzeichnet durch anhaltende glomeruläre Schädigung, entzündliche Aktivierung und fortschreitende fibrotische Umbildung2,3. Obwohl Kortikosteroide und immunsuppressive Wirkstoffe bei ausgewählten Patienten eingesetzt werden, bleibt eine langfristige Krankheitskontrolle in vielen Fällen schwierig, und therapiebedingte Nebenwirkungen sind häufig1,4,5. Die Progression der CGN beinhaltet miteinander verbundene pathologische Prozesse wie Immunaktivierung, endotheliale Dysfunktion, oxidativen Stress und Akkumulation der extrazellulären Matrix3,6,7. Daher könnte die Identifizierung molekularer Schnittstellen, die entzündliche und profibrotische Reaktionen verbinden, zur Erstellung überprüfbarer Hypothesen für krankheitsrelevante therapeutische Strategien beitragen.
Cordyceps sinensis (C. sinensis) wurde bereits in klinischen und experimentellen nephrologischen Kontexten eingesetzt und berichtetermaßen in mehreren Krankheitsmodellen entzündungshemmende, antiapoptotische und zytoprotektive Wirkungen entfaltet8,9,10. Die molekulare Grundlage, über die seine in Frage kommenden Inhaltsstoffe jedoch mit für Glomerulonephritis relevante Zielstrukturen interagieren könnten, ist bisher jedoch unzureichend geklärt11. Angesichts der Mehrkomponentennatur von C. sinensis und der mechanistischen Heterogenität der CGN bietet die Netzwerkpharmakologie ein nützliches Konzept zur Priorisierung von Verbindungen, Zielstrukturen und Signalwegen12,13.
In dieser Studie wurden Verbindungsscreening, Target-Identifizierung, Analyse der Überlappung zwischen Krankheits- und Genprofil, funktionelle Anreicherung, Analyse des Protein-Protein-Interaktionsnetzwerks, molekulares Docking und in vitro-Validierung kombiniert, um potenzielle molekulare Zusammenhänge zwischen den Kandidatbestandteilen von C. sinensis und CGN-relevanten pathologischen Prozessen zu untersuchen. Prostaglandin-Endoperoxid-Synthase 2 (PTGS2) wurde als zentrales Target aus dem Verbindung-Krankheit-Netzwerk herausgestellt und mittels molekularem Docking unter Verwendung einer mit Celecoxib gebundenen Cyclooxygenase-2 (COX-2)-Struktur sowie einer erneuten Docking-Validierung bewertet. Auf Grundlage der Netzwerkergebnisse, der Docking-Analyse und früherer Hinweise auf entzündungshemmende und antifibrotische Wirkungen wurde β-Sitosterol als repräsentativer Kandidatenwirkstoff für die nachgeschaltete Validierung ausgewählt14,15,16. Lipopolysaccharid (LPS)-stimulierte Mesangialzellen wurden verwendet, um die entzündliche Aktivierung und die COX-2/Prostaglandin E2 (PGE2)-assoziierte Reaktion zu untersuchen, während ein durch Transformierendes Wachstumsfaktor-β1 (TGF-β1) induziertes Modell zur Bewertung der Expression profibrotischer Marker eingeschlossen wurde.
Protokoll
Die Netzwerkpharmakologie- und Bioinformatikanalysen basierten auf öffentlich zugänglichen Datenbanken und beinhalteten keine menschlichen Probanden oder Tiere. Die in vitro-Experimente wurden unter Verwendung einer etablierten Zelllinie durchgeführt und erforderten gemäß den institutionellen Vorgaben keine Ethikgenehmigung.
Screening der Kandidatenbestandteile und Zielaufklärung
Kandidatenbestandteile und ihre entsprechenden Zielstrukturen wurden aus der Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP) mit dem Suchbegriff „dongchongxiacao“ am 13. Juli 2025 abgerufen. Verbindungen mit einer vorhergesagten oralen Bioverfügbarkeit von mindestens 30 % und einer drug-likeness von mindestens 0,18 wurden beibehalten. Sieben Kandidatenbestandteile erfüllten beide Screening-Kriterien. Molekulargewicht, orale Bioverfügbarkeit, drug-likeness und andere verfügbare pharmakokinetische Deskriptoren wurden aus der TCMSP für einen beschreibenden Vergleich erfasst.
Die den behaltenen Inhaltsstoffen zugeordneten Wirkstoff-Zielstrukturen wurden direkt aus TCMSP heruntergeladen. Doppelte Zielstruktureinträge wurden manuell entfernt, während die ursprünglichen Verbindungen zwischen Inhaltsstoffen und Zielstrukturen für den anschließenden Aufbau des Netzwerks beibehalten wurden. Da TCMSP die Namen der Zielstrukturen in ihrer vollständigen Schreibweise und nicht als standardisierte Gensymbole angab, wurde jede Zielstruktur in der UniProt-Datenbank (Zugriff am 14. Juli 2025) gesucht. Der entsprechende Eintrag für den Menschen wurde ausgewählt und der Name der Zielstruktur in das offizielle Gensymbol umgewandelt. Der standardisierte Datensatz aus Inhaltsstoffen und Zielstrukturen wurde für die Schnittstellenanalyse zwischen Krankheits- und Zielstrukturen sowie für die Analyse des Inhaltsstoff-Zielstruktur-Netzwerks verwendet.
Sammlung glomerulonephritissassoziierter Gene und Zielüberlappung
Krankheitsassoziierte Gene wurden am 14. Juli 2025 aus GeneCards, DisGeNET, PharmGKB und der Therapeutic Target Database mithilfe des Suchbegriffs „glomerulonephritis“ abgerufen. Bei GeneCards wurden Einträge mit Relevanzwerten über dem Medianwert von 10 berücksichtigt. Berechtigte Einträge aus den anderen Datenbanken wurden entsprechend ihren kuratierten Krankheits-Zielstrukturen-Anmerkungen einbezogen. Die Genbezeichnungen wurden auf offizielle humane Gensymbole standardisiert, und doppelte Einträge wurden entfernt. Dieses Vorgehen ergab 1.134 eindeutige, mit Glomerulonephritis assoziierte Gene. Da bei der Suche der umfassendere Begriff „glomerulonephritis“ verwendet wurde, wurde der resultierende Datensatz als relevant für molekulare Prozesse im Zusammenhang mit chronischer Glomerulonephritis angesehen, anstatt auf einen einzelnen histopathologischen Subtyp beschränkt zu sein.
Die aus TCMSP abgeleiteten, mit Verbindungen assoziierten Zielstrukturen wurden mithilfe von R mit dem satz krankheitsassoziierter Gene geschnitten. Es wurden 23 überlappende Zielstrukturen identifiziert. Venn-Diagramme wurden mit dem R-Paket venn erstellt, und das Netzwerk aus Verbindungen und überlappenden Zielstrukturen wurde mit Cytoscape konstruiert und visualisiert. Die Beziehungen zwischen den in Frage kommenden Inhaltsstoffen und den überlappenden Zielstrukturen sind in Tabelle 1 zusammengefasst.
Funktionelle Anreicherungs- und Protein-Protein-Interaktionsanalysen
Analysen zur Anreicherung von Gene Ontology (GO) und Kyoto Encyclopedia of Genes and Genomes (KEGG) wurden in R mit clusterProfiler und org.Hs.eg.db durchgeführt. Gene Ontology-Terme wurden in den Kategorien biologischer Prozess, zelluläre Komponente und molekulare Funktion analysiert. Die P-Werte wurden mittels der Benjamini-Hochberg-Methode auf Mehrfachvergleiche korrigiert, und Terme oder Signalwege mit korrigierten P-Werten unter 0,05 wurden beibehalten. Angereicherte Terme und Signalwege wurden mithilfe unabhängig erstellter Balken- und Punktdiagramme dargestellt.
Die 23 überlappenden Zielstrukturen wurden in STRING übermittelt, wobei Homo sapiens als Organismus ausgewählt wurde und ein minimaler Interaktionsscore von mehr als 0,4 festgelegt wurde. Das resultierende Protein-Protein-Interaktionsnetzwerk wurde in Cytoscape importiert. Die Netzwerktopologie wurde mittels CytoNCA basierend auf Grad, Zwischenzentralität, Nähezentralität, Eigenvektorzentralität, lokaler durchschnittlicher Verbindungsdichte und Netzwerkzentralität bewertet. Hub-Zielstrukturen wurden als Knoten definiert, bei denen die Werte für Grad, Zwischenzentralität, Nähezentralität, Eigenvektorzentralität, lokale durchschnittliche Verbindungsdichte und Netzwerkzentralität jeweils über den entsprechenden Medianwerten des Netzwerks lagen. Diese Analyse priorisierte neun Hub-Zielstrukturen für die anschließende Interpretation.
Molekulares Docking und Validierung des Redockings
Das molekulare Docking wurde unter Verwendung der mit Celecoxib gebundenen Cyclooxygenase-2-Struktur mit der PDB-ID 3LN1 durchgeführt. Kette A und ihre assoziierte Häm-Gruppe wurden als Rezeptor beibehalten, während kristallographische Wassermoleküle und der ko-kristallisierte Celecoxib-Ligand während der Rezeptorvorbereitung entfernt wurden. Die native Celecoxib-Konformation wurde separat aus Kette A zur erneuten Docking-Validierung extrahiert. Polare Wasserstoffatome und Gasteiger-Ladungen wurden mit AutoDockTools hinzugefügt, und der Rezeptor wurde im PDBQT-Format gespeichert. Die PDB-ID 3LN1 ist eine 2,40 Å-Struktur der murinen COX-2, die an Celecoxib gebunden ist. Die Strukturen von β-Sitosterol und Linoleylacetat wurden aus PubChem bezogen und mit Open Babel vorbereitet. Wasserstoffatome und Gasteiger-Teilladungen wurden hinzugefügt, rotierbare Bindungen wurden zugewiesen, und jeder Ligand wurde in das PDBQT-Format konvertiert. Celecoxib, β-Sitosterol und Linoleylacetat wurden mit AutoDock Vina unter Verwendung desselben Rezeptors und derselben Suchparameter gedockt.
Die Docking-Box wurde auf dem nativen Bindungsgebiet von Celecoxib mit den folgenden Koordinaten zentriert: center_x = 30,9886 center_y = -22,2836 center_z = -16,5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. Der Exhaustiveness-Wert wurde auf 16, die Anzahl der Ausgabemodi auf 10 und der Energiebereich auf 3 kcal/mol festgelegt. Die am höchsten bewertete Pose, basierend auf der niedrigsten vorhergesagten Bindungsenergie, wurde zur Visualisierung beibehalten. Zur Protokollvalidierung wurde natives Celecoxib unter denselben Bedingungen erneut gedockt, und die Root-Mean-Square-Abweichung der schweren Atome zwischen der kristallographischen und der erneut gedockten Pose wurde mit PyMOL berechnet. Eine Root-Mean-Square-Abweichung unterhalb von 2 Å galt als akzeptable Wiedergabe der Referenzpose. In PyMOL wurden die Reste identifiziert, die sich innerhalb von 4 Å zu jedem gedockten Liganden befanden. Die Docking-Scores und -Posen wurden als Schätzwerte für die strukturelle Verträglichkeit interpretiert und nicht als direkter Nachweis einer Zielbindungs- oder enzymatischen Hemmung.
Zellkultur und Verbindungsvorbereitung
HBZY-1-Ratten-Glomerulamesangialzellen wurden in einem Dulbecco’s modifizierten Eagle-Medium mit hohem Glucosespiegel kultiviert, das mit 10 % fetalem Rinderserum und 1 % Penicillin-Streptomycin bei 37 °C unter befeuchteten Bedingungen mit 5 % CO₂ ergänzt wurde. Für alle Experimente wurden Zellen der Passagen 2–7 verwendet, und der mykoplasmafreie Status wurde vor der Verwendung überprüft. β-Sitosterol und Celecoxib dienten als chemisch definierte Verbindungen. β-Sitosterol wurde in absolutem Ethanol gelöst, um eine Stammlösung von 10 mM (ca. 4,15 mg/mL) herzustellen. Gegebenenfalls wurden kurze Beschallung und Erwärmung auf 50–60 °C durchgeführt, um eine optisch klare Lösung zu erhalten. Celecoxib wurde in Dimethylsulfoxid gelöst, um eine Stammlösung von 10 mM (ca. 3,81 mg/mL) herzustellen. Die Stammlösungen wurden portioniert und bei −20 °C gelagert. Vor der Behandlung wurden die Stammlösungen direkt in vorgewärmtes Kulturmedium verdünnt und unmittelbar gemischt.
Die Fahrzeugkonzentrationen wurden innerhalb jedes Experiments angeglichen. Bei dem Zellviabilitätsassay wurde die endgültige Ethanol-Konzentration in allen Gruppen auf 0,2 % (V/V) eingestellt, da die höchste getestete β-Sitosterol-Konzentration 20 µM betrug. Bei dem LPS-induzierten entzündlichen Experiment wurden die endgültigen Konzentrationen von Ethanol und Dimethylsulfoxid in allen Gruppen jeweils auf 0,1 % und 0,01 % (V/V) eingestellt. Bei dem TGF-β1-induzierten profibrotischen Experiment wurde die endgültige Ethanol-Konzentration in allen Gruppen auf 0,1 % (V/V) eingestellt. Den Kontroll-, LPS- und TGF-β1-Gruppen wurden äquivalente Volumina der entsprechenden Fahrzeuge hinzugefügt.
Test zur Zellviabilität
Die Zellen wurden in 96-Well-Platten mit einer Dichte von 5 × 10³ Zellen pro Well in 100 µL komplettem Medium ausgesät und 24 h lang zum Anheften freigegeben. Um den Konzentrationsbereich von β-Sitosterol zu bewerten, wurden die Zellen 24 h lang mit 0,5, 1, 5, 10 oder 20 µM β-Sitosterol inkubiert. Für den LPS-bezogenen Zellviabilitätsassay wurden die Zellen vorab 2 h lang mit β-Sitosterol in Konzentrationen von 1, 5 oder 10 µM vorbehandelt und anschließend zusätzlich 24 h lang 1 µg/mL Lipopolysaccharid ausgesetzt.
Die Behandlungsgruppen waren Kontrolle, β-Sitosterol bei 0,5 µM, β-Sitosterol bei 1 µM, β-Sitosterol bei 5 µM, β-Sitosterol bei 10 µM, β-Sitosterol bei 20 µM, LPS, LPS plus β-Sitosterol bei 1 µM, LPS plus β-Sitosterol bei 5 µM und LPS plus β-Sitosterol bei 10 µM. Pro Mulde wurde 10 µL Cell Counting Kit-8-Reagenz zugegeben, und die Platten wurden 2 h inkubiert. Die Absorption wurde anschließend bei 450 nm gemessen. Die Zellviabilität wurde nach Subtraktion des zellfreien Leerwerts bestimmt und relativ zur Kontrollgruppe angegeben. Jede Bedingung umfasste sechs technische Mulden in jeweils sechs unabhängigen biologischen Experimenten. Die Werte der technischen Mulden jedes Experiments wurden gemittelt, um einen biologischen Replikatwert für die statistische Analyse zu erzeugen.
LPS-induzierte entzündliche Aktivierung
Für Experimente zur entzündlichen Aktivierung wurden HBZY-1-Zellen in 6-Loch-Platten mit einer Dichte von 2 × 10⁵ Zellen pro Loch ausgesät und nach Erreichen einer Konfluenz von etwa 70–80 % behandelt. Die Zellen wurden 12 Stunden vor der Behandlung in Medium mit 1 % fetalem Rinderserum kultiviert. β-Sitosterol oder Celecoxib wurden 2 Stunden vor der LPS-Stimulation verabreicht. Anschließend wurden die Zellen 24 Stunden lang 1 µg/mL LPS ausgesetzt.
Die experimentellen Gruppen waren Kontrolle, β-Sitosterol bei 10 µM, LPS, LPS plus β-Sitosterol bei 1 µM, LPS plus β-Sitosterol bei 5 µM, LPS plus β-Sitosterol bei 10 µM sowie LPS plus Celecoxib bei 1 µM. Celecoxib wurde als funktionelle positive Kontrolle zur Hemmung der COX-2-abhängigen Prostaglandinproduktion hinzugefügt. Am Ende der Behandlung wurden die Kulturüberstände zur Messung von PGE2 gesammelt. Die Zellen wurden separat gesammelt, um eine quantitative Echtzeit-PCR-Analyse von Tnf, Il6 und Ptgs2 sowie eine Western-Blot-Analyse von COX-2 durchzuführen.
Profibrotische Aktivierung durch TGF-β1
Ein separates, durch TGF-β1 induziertes Modell wurde verwendet, um die profibrotische Aktivierung zu bewerten. HBZY-1-Zellen wurden in 6-Loch-Platten mit einer Dichte von 2 × 10⁵ Zellen pro Loch ausgesät und 12 h vor der Behandlung in Medium mit 1 % fetalem Rinderserum kultiviert. Die Zellen wurden 2 h mit β-Sitosterol vorbehandelt und anschließend 48 h mit 10 ng/mL rekombinantem TGF-β1 stimuliert.
Die Behandlungsgruppen umfassten Kontrolle, β-Sitosterol (10 µM), TGF-β1, TGF-β1 + β-Sitosterol (5 µM) und TGF-β1 + β-Sitosterol (10 µM). Am Ende der Behandlungszeit wurden die Zellen zur quantitativen Echtzeit-PCR-Analyse von Col1a1 und Acta2 sowie zur Western-Blot-Analyse von Alpha-Smooth-Muscle-Aktin (α-SMA) gewonnen.
Quantitative Echtzeit-PCR
Gesamt-RNA wurde aus behandelten Zellen unter Verwendung eines auf Phenol-Guanidinium basierenden RNA-Extraktionsreagenz gemäß der Herstellerprotokoll isoliert. Die RNA-Konzentration und -reinheit wurden mittels eines Spektrophotometers bestimmt. Nur Proben mit einem A260/A280-Verhältnis von 1,8–2,0 wurden für die Reverse Transkription verwendet. Für jede Probe wurden 1 µg Gesamt-RNA in einer endgültigen Reaktionsvolumen von 20 µL in komplementäre DNA umgeschrieben. Die erhaltene komplementäre DNA wurde vor der quantitativen PCR fünfmal mit nukleasefreiem Wasser verdünnt. Die quantitative PCR wurde in einem Gesamtvolumen von 20 µL durchgeführt, das 10 µL 2× SYBR Green Mastermix, jeweils 0,4 µL 10 µM vorwärts- und rückwärtsgerichteter Primer, 2 µL verdünnter komplementärer DNA und 7,2 µL nukleasefreies Wasser enthielt. Die Amplifikationsbedingungen bestanden aus einer initialen Denaturierungsstufe bei 95 °C für 30 s, gefolgt von 40 Zyklen mit Denaturierung bei 95 °C für 5 s und Annealing-Extension bei 60 °C für 30 s. Anschließend wurde eine Schmelzkurvenanalyse von 65 °C bis 95 °C durchgeführt, um die Spezifität der Amplifikation zu überprüfen.
Die gemessenen Gene waren Tnf, Il6, Ptgs2, Col1a1, Acta2 und Gapdh. Gapdh diente als internes Referenzgen. Die relative Genexpression wurde mit der 2−ΔΔCt-Methode bestimmt, wobei die Kontrollgruppe als Kalibrator verwendet wurde. Die Primersequenzen sind in Supplementary Table 1 angegeben. Jede Probe wurde technisch im Dreifachansatz analysiert, und es wurden sechs unabhängige biologische Experimente durchgeführt. Die Werte der technischen Replikate wurden vor der statistischen Analyse gemittelt.
Bestimmung von PGE2 mittels enzymgekoppelter Immunadsorption
Kulturüberstände wurden 24 h nach LPS-Stimulation gesammelt und bei 4 °C 10 min bei 1.000 ×g zentrifugiert, um Zelltrümmer zu entfernen. Die PGE2-Konzentrationen wurden mithilfe eines kommerziell erhältlichen ELISA-Tests gemäß den Herstelleranweisungen bestimmt.
Standards und Proben wurden verdoppelt auf die Testplatte aufgetragen. Nach Abschluss der Antikörperbindungs- und Farbentwicklungs-Schritte wurde die Extinktion bei 450 nm mit einem Mikroplatten-Reader aufgezeichnet. Die PGE2-Konzentrationen wurden anhand einer vierparametrigen logistischen Standardkurve bestimmt und als pg/mL angegeben. Überstände aus sechs unabhängigen Zellversuchen wurden analysiert. Die Duplikat-Messungen jeder biologischen Probe wurden vor der statistischen Analyse gemittelt.
Immunoblot
Behandelte Zellen wurden in Radioimmunpräzipitationspuffer, ergänzt mit einer Proteaseinhibitormischung, lysiert. Die Lysate wurden 30 min auf Eis inkubiert und bei 4 °C 15 min bei 12.000 × g zentrifugiert. Die Protein-konzentrationen in den Überständen wurden mithilfe eines Bicinchoninsäure-Proteinassays bestimmt. Gleiche Proteinmengen (30 µg pro Lane) wurden mit Lade-puffer gemischt und 5 min bei 95 °C denaturiert. Proteine aus den LPS-Experimenten wurden auf 10 %igen Natriumdodecylsulfat-Polyacrylamidgelen aufgetrennt, während jene aus den TGF-β1-Experimenten auf 12 %igen Gelelektrophoresegelen aufgetrennt wurden. Die getrennten Proteine wurden anschließend auf Polyvinylidenfluoridmembranen übertragen.
Die Membranen wurden mit 5 % fettfreier Milch in Tris-gepufferter Salzlösung mit 0,1 % Tween 20 für 1 h bei Raumtemperatur blockiert und anschließend über Nacht bei 4 °C mit primären Antikörpern gegen COX-2 (1:1000), α-SMA (1:1000) und GAPDH (1:5000) inkubiert. COX-2 wurde in Proben aus dem LPS-Experiment analysiert, während α-SMA in Proben aus dem TGF-β1-Experiment analysiert wurde. Nach dem Waschen wurden die Membranen für 1 h bei Raumtemperatur mit mit Peroxidase konjugierten sekundären Antikörpern (1:5000) inkubiert. Proteinbande wurden mithilfe eines verbesserten chemilumineszenten Substrats sichtbar gemacht und mit einem Chemilumineszenz-Bildgebungssystem aufgezeichnet. Die Belichtungszeiten betrugen etwa 10 s für COX-2, 10 s für α-SMA und 2 s für GAPDH.
Die Bandenintensitäten wurden mit ImageJ quantifiziert. Die Signale von COX-2 und α-SMA wurden auf das entsprechende GAPDH-Signal normalisiert. Die Western-Blot-Analyse wurde mit Proteinen durchgeführt, die aus sechs unabhängigen Zellkultur- und Behandlungsversuchen gewonnen wurden.
Statistische Analyse
Die statistischen Analysen wurden mit GraphPad Prism durchgeführt. Die Daten werden als Mittelwert ± Standardabweichung dargestellt. Für jede quantitative Analyse wurden sechs unabhängige Zellkultur- und Behandlungsversuche durchgeführt, wobei jeder unabhängige Versuch eine biologische Wiederholung darstellt. Technische Wiederholungsmessungen, die aus demselben biologischen Versuch stammten, wurden vor der statistischen Analyse gemittelt und nicht als unabhängige Beobachtungen betrachtet.
Für den Zellviabilitätsassay umfasste jedes biologische Experiment sechs technische Ansätze pro Bedingung. Die quantitativen PCR-Reaktionen wurden für jede biologische Probe im technischen Triplikat durchgeführt, und die PGE2-Messungen wurden im Duplikat durchgeführt. Die Quantifizierung per Western Blot basierte auf sechs unabhängig hergestellten Proteinproben. Daher enthält jeder quantitative Balken sechs individuelle biologische Wiederholungswerte.
Unterschiede zwischen mehreren Gruppen wurden mittels einfaktorieller Varianzanalyse, gefolgt von Tukeys Test für multiple Vergleiche, analysiert. Ein zweiseitiger P-Wert < 0,05 wurde als statistisch signifikant angesehen. Die Werte einzelner biologischer Replikate wurden zusammen mit dem Mittelwert und der Standardabweichung dargestellt.
Ergebnisse
Screening der Kandidatenbestandteile, Abruf der Zielstrukturen und Schnittmenge der Zielstrukturen
Der Arbeitsablauf zur Identifizierung von potenziellen Überlappungszielen zwischen Verbindungen und Krankheiten ist in Abbildung 1A zusammengefasst. Sieben potenzielle Verbindungen von C. sinensis erfüllten die vorab festgelegten Screening-Kriterien von OB ≥30 % und DL ≥0,18, darunter Arachidonsäure, Linoleylacetat, β-Sitosterol, Peroxyergosterol, Cerevisterol, Cholesterinpalmitat und CLR (Tabelle 2). Parallel dazu wurden 1.134 mit Glomerulonephritis assoziierte Gene aus GeneCards, DisGeNET, PharmGKB und TTD abgerufen, und deren Verteilung über die vier Datenbanken hinweg ist in Abbildung 1B dargestellt. Eine Schnittmengenanalyse zwischen der menge der verbindungsassoziierten Ziele und der menge der krankheitsassoziierten Gene ergab 23 gemeinsame Ziele (Tabelle 1, Abbildung 1C). Das entsprechende Netzwerk aus Verbindungen und gemeinsamen Zielstrukturen ist in Abbildung 1D dargestellt und veranschaulicht die Beziehungen zwischen repräsentativen potenziellen Verbindungen, überlappenden Zielgenen und CGN. Zu diesen überlappenden Zielstrukturen gehörten mehrere Gene, die mit der Regulation von Entzündungen, Apoptose und vaskulären Signalwegen assoziiert sind, wie beispielsweise PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A und NOS3.
Funktionelle Anreicherung und Protein-Protein-Interaktionsanalysen
Um die biologische Bedeutung der 23 überlappenden Zielstrukturen zu untersuchen, wurden GO- und KEGG-Pfad-Anreicherungsanalysen durchgeführt. Die Ergebnisse zeigten, dass diese Zielstrukturen signifikant in mehreren entzündungs- und stoffwechselbezogenen Wegen angereichert sind.
Die GO-Analyse klassifizierte die Zielstrukturen in die Kategorien biologischer Prozess (BP), zelluläre Komponente (CC) und molekulare Funktion (MF). Zu den am stärksten angereicherten BP-Termen gehörten die Reaktion auf Lipopolysaccharid, die Reaktion auf Moleküle bakteriellen Ursprungs und die Regulation von Muskel-System-Prozessen. Auf zellulärer Ebene waren die Zielstrukturen in Membranrafts, Caveolen und alpha-Granula der Thrombozyten angereichert, während MF-Terme wie Oxidoreduktase-Aktivität und nukleare Rezeptorbindung weitere Hinweise auf Funktionen im oxidativen Stress und in der transkriptionellen Regulation lieferten (Abbildung 2A).
Die KEGG-Analyse ergab, dass der Stoffwechselweg für Lipide und Atherosklerose (hsa05417) am stärksten angereichert war (q-Wert <1 × 10⁻⁶), zusammen mit Wegen wie der AGE–RAGE-Signalübertragung bei diabetischen Komplikationen, der TNF-Signalübertragung, der IL-17-Signalübertragung und der HIF-1-Signalübertragung (Abbildung 2B). Bemerkenswerterweise waren im Stoffwechselweg für Lipide und Atherosklerose 10 der 23 Zielstrukturen beteiligt, darunter CASP3, MAPK1, PPARG, NOS3 und TNFRSF1A.
Insgesamt zeigen diese Anreicherungsergebnisse, dass die überlappenden Zielstrukturen funktionell mit entzündlichen, stressbedingten und endothelbezogenen biologischen Prozessen assoziiert sind, die für CGN von Relevanz sind.
Analysen von Protein-Protein-Interaktionsnetzwerken
Ein Protein-Protein-Interaktionsnetzwerk (PPI) für die 23 überlappenden Zielstrukturen wurde mittels STRING erstellt und ergab ein Netzwerk mit 23 Knoten und 102 Kanten (Abbildung 3A). Die topologische Analyse mit CytoNCA identifizierte neun stark vernetzte Hub-Zielstrukturen: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 und PRKCA (Abbildung 3B). Unter diesen Zielstrukturen wies PTGS2 eine hervorragende Netzwerkzentralität auf und wurde daher für die anschließende molekulare Docking-Analyse ausgewählt. Diese Ergebnisse unterstreichen eine Teilmenge netzwerkbasierter Kandidatenregulatoren, die möglicherweise für den Schnittbereich zwischen Verbindung und Krankheit relevant sind.
Molekulares Docking und Validierung des Redockings
Um die strukturelle Plausibilität der durch Netzwerkanalyse identifizierten PTGS2-assoziierten Kandidatenbeziehungen weiter zu bewerten, wurde eine molekulare Docking-Analyse unter Verwendung einer Celecoxib-gebundenen COX-2-Struktur durchgeführt. Die Kristallstruktur mit der PDB-ID 3LN1 wurde ausgewählt, da sie Celecoxib gebunden an die aktive Stelle von COX-2 enthält und somit eine experimentell definierte Liganden-Bindungsstelle für die Validierung des Docking-Verfahrens bereitstellt. Der ko-kristallisierte Celecoxib-Ligand wurde zunächst extrahiert und anschließend erneut in dieselbe Bindungsstelle gedockt. Die neu gedockte Celecoxib-Konformation reproduzierte die kristallographische Konformation sehr genau mit einer Wurzel-des-mittleren-quadratischen-Abweichung (RMSD) von 0,876 Å und einer vorhergesagten Bindungsaffinität von -12,3 kcal/mol (Abbildung 4A). Dieses Ergebnis zeigte, dass das Docking-Protokoll in der Lage war, die bekannte Liganden-Bindungskonformation unter den gewählten Docking-Bedingungen zu reproduzieren.
Unter Verwendung desselben Rezeptors, der Gitterbox und derselben Docking-Parameter wurde β-Sitosterol in die durch Celecoxib definierte COX-2-Bindungsregion eingedockt. β-Sitosterol zeigte eine vorhergesagte Bindungsaffinität von -7,2 kcal/mol (Abbildung 4B). Die eingedockte Pose befand sich innerhalb der vordefinierten COX-2-Docking-Region, und die Aminosäurereste, die die eingedockte β-Sitosterol-Pose umgaben, umfassten ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 und TYR341.
Linoleylacetat wurde ebenfalls als sekundärer rechnergestützter Kandidat bewertet, da es in der Liste der Kandidatenbestandteile enthalten war und in der Netzwerkanalyse mit PTGS2 verknüpft wurde. Unter denselben Docking-Bedingungen zeigte Linoleylacetat eine vorhergesagte Bindungsaffinität von -7,5 kcal/mol, was geringfügig günstiger war als die von β-Sitosterol (Abbildung 4C). Die vorhergesagte Bindungsposition lag nahe dem Referenzliganden Celecoxib innerhalb der Docking-Region. Zu den Aminosäureresten, die Linoleylacetat umgaben, gehörten ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 und VAL509.
Zellviabilität, entzündliche Aktivierung und profibrotische Aktivierung
β-Sitosterol wurde aufgrund der Identifizierung als PTGS2-assoziiierter Kandidat in der Netzwerkanalyse und aufgrund vorheriger experimenteller Hinweise für antiinflammatorische und antifibrotische Wirkungen für die Validierung auf Verbindungsebene ausgewählt. Zunächst wurde die Zellviabilität bestimmt, um den für nachfolgende Experimente geeigneten Konzentrationsbereich festzulegen. Die Behandlung mit β-Sitosterol bei 0,5, 1, 5 und 10 µM verringerte die Zellviabilität im Vergleich zur Kontrollgruppe nicht signifikant, während 20 µM β-Sitosterol eine leichte Abnahme verursachten. Die Exposition gegenüber LPS reduzierte die Zellviabilität, und eine gleichzeitige Behandlung mit β-Sitosterol verbesserte die Zellviabilität unter LPS-Stimulation teilweise, wobei der deutlichste Effekt bei 10 µM beobachtet wurde (Abbildung 5A). Basierend auf diesen Ergebnissen wurden 1, 5 und 10 µM β-Sitosterol in den folgenden Experimenten zur LPS-induzierten inflammatorischen Aktivierung verwendet.
Die LPS-Stimulation erhöhte die mRNA-Expression entzündlicher Gene in HBZY-1-Zellen deutlich. Im Vergleich zur Kontrollgruppe zeigte die LPS-Gruppe höhere Expressionsniveaus von Tnf, Il6 und Ptgs2 (Abbildung 5B-D). Die Behandlung mit β-Sitosterol verringerte die LPS-induzierte Hochregulation dieser Gene in konzentrationsabhängiger Weise. Der hemmende Trend war in der Gruppe mit LPS und 10 µM β-Sitosterol am deutlichsten ausgeprägt. Celecoxib, das als funktioneller COX-2-Hemmer-Kontrollstoff enthalten war, reduzierte die Expression entzündlicher Gene ebenfalls in gewissem Maße, obwohl seine Wirkung bei mehreren transkriptionellen Markern weniger ausgeprägt war als die von 10 µM β-Sitosterol (Abbildung 5B-D).
Da Ptgs2 COX-2 kodiert und PGE2 ein wichtiges downstream-Prostaglandinprodukt der COX-2-Aktivität ist, wurde die PGE2-Sekretion mittels ELISA gemessen. Die LPS-Behandlung erhöhte die PGE2-Konzentration im Kulturüberstand im Vergleich zur Kontrollgruppe. β-Sitosterol verringerte die LPS-induzierte PGE2-Produktion in konzentrationsabhängiger Weise. Celecoxib reduzierte ebenfalls die PGE2-Produktion und diente als positiver Kontrollwert für die funktionelle Hemmung der COX-2/PGE2-Achse (Abbildung 5E). Die Western-Blot-Analyse zeigte zudem, dass LPS die Menge des COX-2-Proteins erhöhte. Die Behandlung mit β-Sitosterol senkte die COX-2-Proteinmengen unter LPS-Stimulation, wobei eine stärkere Reduktion bei höherer Konzentration beobachtet wurde. Im Gegensatz dazu reduzierte Celecoxib die PGE2-Produktion, zeigte aber einen begrenzteren Effekt auf die COX-2-Proteinmenge (Abbildung 5F).
Um das durch LPS induzierte Entzündungsmodell zu ergänzen, wurde ein durch TGF-β1 induziertes profibrotisches Aktivierungsmodell verwendet, um zu prüfen, ob β-Sitosterol die Expression fibrotischer Marker in mesangialen Zellen beeinflusst. TGF-β1 erhöhte im Vergleich zur Kontrollgruppe deutlich die mRNA-Expression von Col1a1 und Acta2 (Abbildung 6A,B). β-Sitosterol verringerte den durch TGF-β1 hervorgerufenen Anstieg beider Marker, wobei die Reduktion bei 10 µM stärker ausgeprägt war als bei 5 µM (Abbildung 6A,B). Die Western-Blot-Analyse zeigte eine entsprechende Zunahme der α-SMA-Proteinexpression nach Stimulation mit TGF-β1, während die Behandlung mit β-Sitosterol die Menge des α-SMA-Proteins in TGF-β1-behandelten Zellen verringerte (Abbildung 6C).
VERFÜGBARKEIT VON DATEN:
Die Roh- und Verarbeitungsdaten, die diese Studie unterstützen, wurden in Zenodo unter der DOI: https://zenodo.org/records/21649482 hinterlegt. Die Vollbilddarstellungen der Western Blot sind als Zusatzdatei 1 verfügbar.
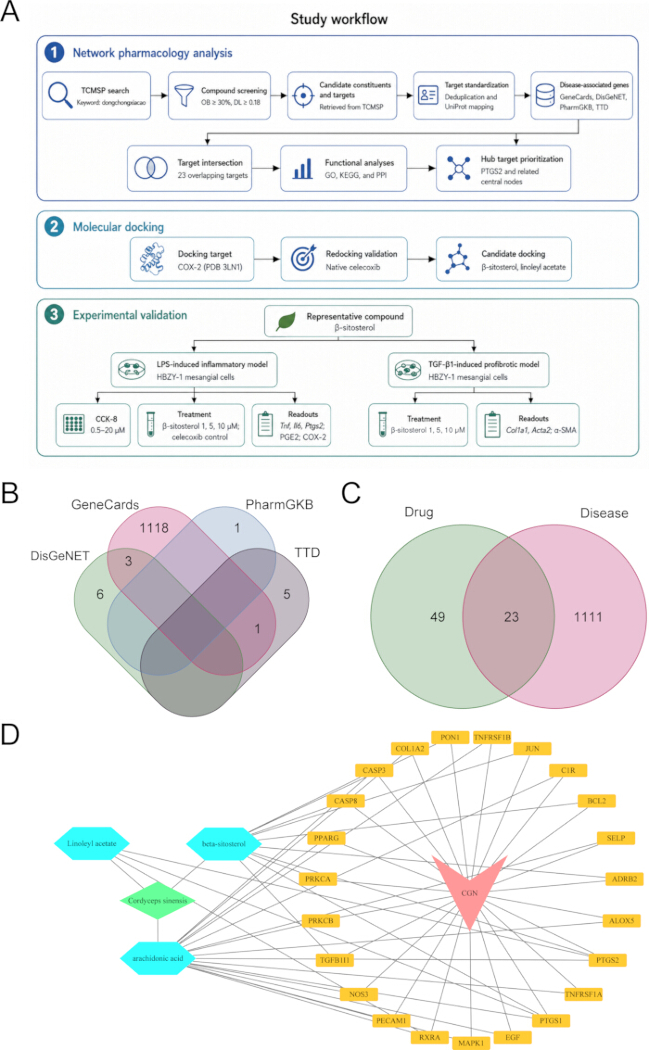
Abbildung 1. Arbeitsablauf und netzwerkbasierte Identifizierung von potenziellen Wirkstoff-Zielstruktur-Überschneidungen von C. sinensis bei Glomerulonephritis. (A) Schematischer Arbeitsablauf zur Identifizierung von Wirkstoffkandidaten, Abruf und Standardisierung von verknüpften Wirkstoffzielen, Abruf von mit Glomerulonephritis assoziierten Genen, Durchführung einer Schnittmengenanalyse und Erstellung des Wirkstoff-Überschneidungsziel-Netzwerks. (B) Venn-Diagramm zur Darstellung der Verteilung der aus GeneCards, DisGeNET, PharmGKB und TTD abgerufenen mit Glomerulonephritis assoziierten Gene. (C) Venn-Diagramm zur Veranschaulichung der Überschneidung zwischen aus TCMSP abgeleiteten, mit Wirkstoffen assoziierten Zielstrukturen und krankheitsassoziierten Genen, woraus sich 23 gemeinsame Zielstrukturen ergeben. (D) Wirkstoff-Überschneidungsziel-Netzwerk. Die grüne Raute steht für C. sinensis, blaue Sechsecke repräsentieren Wirkstoffkandidaten, gelbe Kreise zeigen die überschneidenden Zielstrukturen an und das rosa Dreieck repräsentiert CGN. Kanten veranschaulichen die entsprechenden Wirkstoff-Ziel oder Krankheit-Ziel-Beziehungen. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
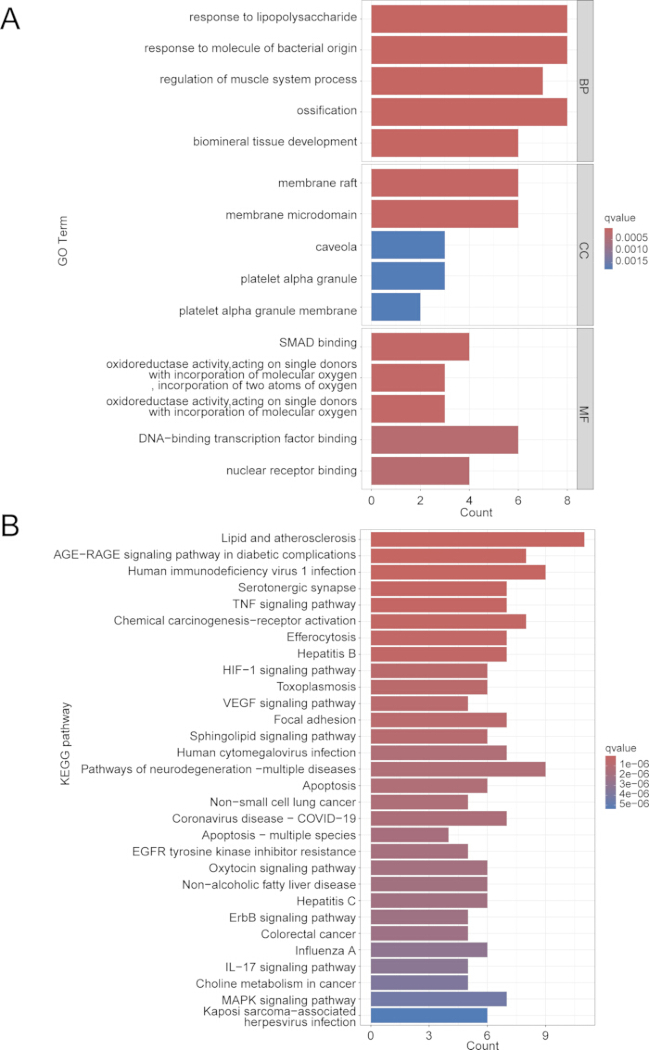
Abbildung 2. Funktionsanreicherungsanalyse der überlappenden Zielstrukturen. (A) GO-Anreicherungsanalyse der 23 überlappenden Zielstrukturen. Die oberen BP-, CC- und MF-Terme wurden identifiziert. Die Balkenlänge gibt die Genanzahl an; der Farbverlauf repräsentiert den q-Wert. (B) KEGG-Anreicherungsanalyse der 23 überlappenden Zielstrukturen. Die Signalwege sind nach Genanzahl und statistischer Signifikanz geordnet. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
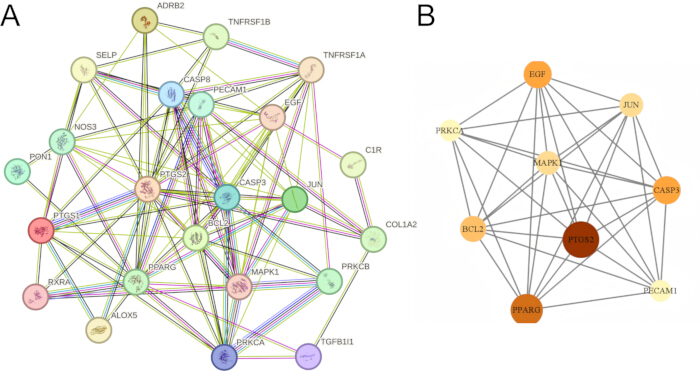
Abbildung 3. Protein-Protein-Interaktionsnetzwerk und HUB-Ziel-Priorisierung der überlappenden Ziele. (A) PPI-Netzwerk, konstruiert aus den 23 überlappenden Zielstrukturen mittels STRING mit einer Interaktionsscore-Schwelle >0,4. (B) Die neun wichtigsten HUB-Ziele wurden durch eine netzwerktopologische Analyse auf Basis von CytoNCA priorisiert. PTGS2 zeigte eine hervorragende Netzwerkzentralität und wurde für die anschließende molekulare Docking-Analyse ausgewählt. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
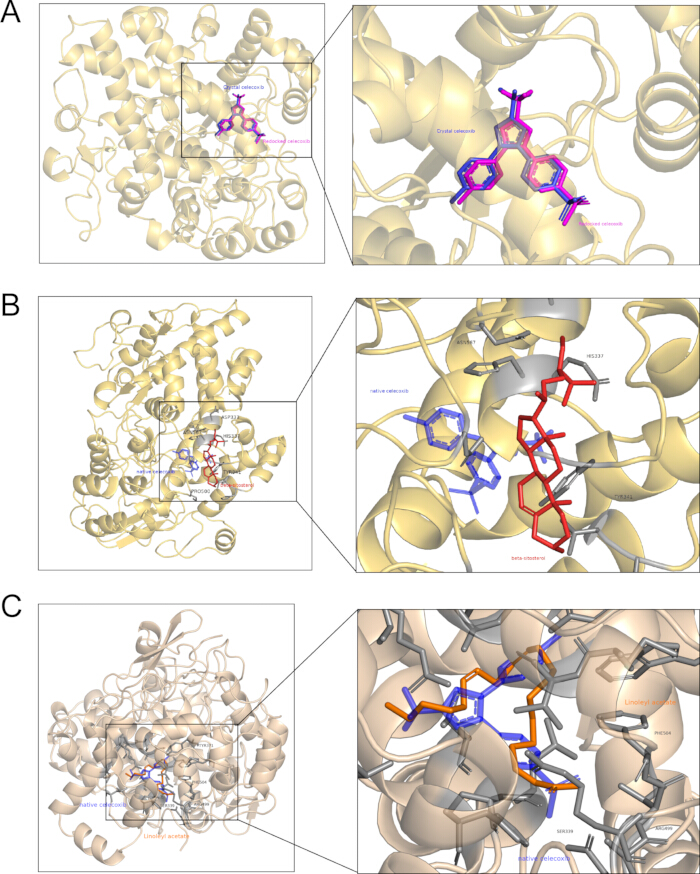
Abbildung 4. Molekulares Docking und Redocking-Validierung ausgewählter Kandidatenverbindungen mit COX-2. (A) Überlagerung der kristallographischen Celecoxib-Position und der am höchsten bewerteten redockierten Pose in der murinen COX-2-Struktur, die an Celecoxib gebunden ist (PDB-ID 3LN1). Das Redocking reproduzierte die experimentelle Bindungsorientierung. (B) Am höchsten bewertete Docking-Pose von β-Sitosterol innerhalb des durch Celecoxib definierten COX-2-Docking-Bereichs. Die kristallographische Celecoxib-Pose ist als räumliche Referenz enthalten. (C) Die am höchsten bewertete Docking-Pose von Linoleylacetat innerhalb desselben Docking-Bereichs. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
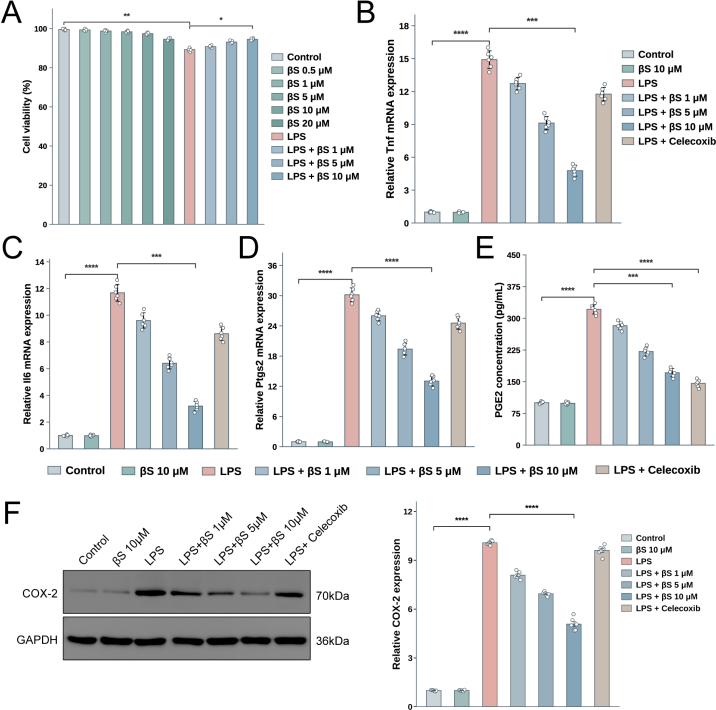
Abbildung 5. β-Sitosterol verringert die durch LPS induzierte entzündliche Aktivierung und die Produktion von PGE2 in mesangialen HBZY-1-Zellen. (A) Die Zellviabilität wurde mittels Cell Counting Kit-8-Assay gemessen. Die Zellen wurden 24 h lang mit β-Sitosterol in Konzentrationen von 0,5, 1, 5, 10 oder 20 µM behandelt. In den mit LPS stimulierten Gruppen wurden die Zellen vorab 2 h lang mit β-Sitosterol in Konzentrationen von 1, 5 oder 10 µM vorbehandelt, bevor sie 24 h lang 1 µg/mL LPS ausgesetzt wurden. Die Zellviabilität ist relativ zur Kontrollgruppe angegeben. (B–D) Quantitative Echtzeit-PCR-Analyse der mRNA-Expression von Tnf (B), Il6 (C) und Ptgs2 (D). Die Genexpression wurde auf Gapdh normalisiert und relativ zur Kontrollgruppe angegeben. (E) PGE2-Konzentrationen in Kulturüberständen, gemessen mittels enzymgekoppelter Immunadsorption (ELISA). Celecoxib wurde als funktionelle positive Kontrolle zur Hemmung der COX-2-abhängigen Prostaglandinproduktion hinzugefügt. (F) Repräsentative Western-Blot-Bilder von COX-2 und GAPDH in den angegebenen Behandlungsgruppen. Die Daten sind als Mittelwert ± SD aus sechs unabhängigen biologischen Experimenten dargestellt, wobei die individuellen Werte der biologischen Replikate angezeigt sind. Die Werte der technischen Replikate wurden vor der Analyse gemittelt. Der Vergleich erfolgte mittels einfaktorieller ANOVA, gefolgt vom Tukey’schen Test für multiple Vergleiche. Die Signifikanz ist in den einzelnen Abbildungsteilen durch Klammern gekennzeichnet: *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
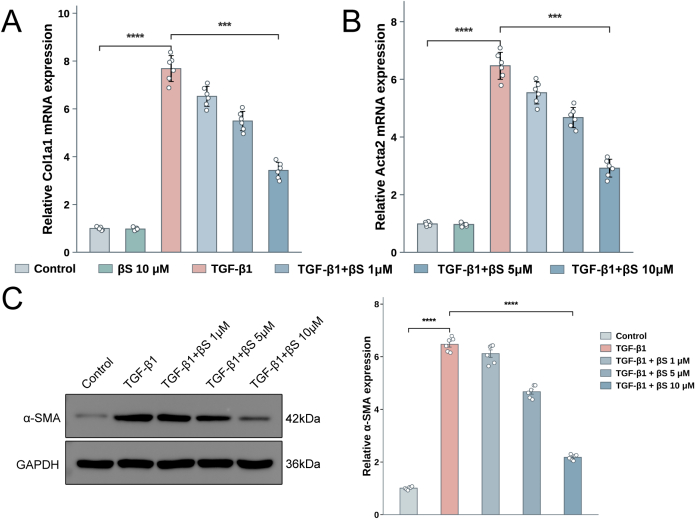
Abbildung 6. β-Sitosterol verringert die TGF-β1-induzierte Expression fibrogener Marker in HBZY-1-Mesangialzellen. (A–B) Quantitative Echtzeit-PCR-Analyse der mRNA-Expression von Col1a1 (A) und Acta2 (B). Die Genexpression wurde auf Gapdh normalisiert und relativ zur Kontrollgruppe angegeben. (C) Vertretende Western-Blot-Bilder von α-SMA und GAPDH in den angegebenen Behandlungsgruppen. Die Daten sind als Mittelwert ± SD aus sechs unabhängigen biologischen Experimenten dargestellt, wobei die individuellen Werte der biologischen Replikate angezeigt werden. Die Werte der technischen Replikate wurden vor der Analyse gemittelt. Der Vergleich erfolgte mittels einfaktorieller ANOVA, gefolgt vom Tukey-Mehrfachvergleichstest. Die Signifikanz ist in den einzelnen Diagrammen durch Klammern gekennzeichnet: *P < 0,05, **P < 0,01, ***P < 0,001 und ****P < 0,0001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
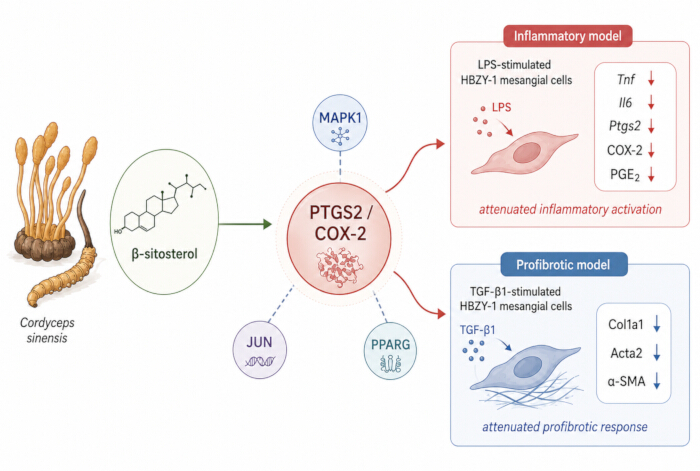
Abbildung 7. Integrierte Interpretation der mit β-Sitosterol assoziierten entzündlichen und profibrotischen Reaktionen in HBZY-1-Zellen. Netzwerk- und Docking-Analysen identifizierten PTGS2/COX-2 im Kontext eines breiteren Netzwerks, das MAPK1, JUN und PPARG umfasst. Die Behandlung mit β-Sitosterol war mit einer Verringerung der LPS-induzierten Expression von Tnf, Il6 und Ptgs2, der COX-2-Proteinmenge sowie der PGE2-Produktion verbunden, ebenso mit einer Verringerung der TGF-β1-induzierten Expression von Col1a1, Acta2 und α-SMA. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Nr. | Überlappendes Target | Mit dem Target assoziierte Kandidatenverbindung(en) |
| 1 | PTGS1 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 2 | PTGS2 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 3 | CASP3 | β-sitosterol; arachidonic acid |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | linoleyl acetate; arachidonic acid |
| 12 | TNFRSF1A | arachidonic acid |
| 13 | TNFRSF1B | arachidonic acid |
| 14 | ALOX5 | arachidonic acid |
| 15 | SELP | arachidonic acid |
| 16 | C1R | arachidonic acid |
| 17 | COL1A2 | arachidonic acid |
| 18 | PPARG | arachidonic acid |
| 19 | PRKCB | arachidonic acid |
| 20 | NOS3 | arachidonic acid |
| 21 | PECAM1 | arachidonic acid |
| 22 | MAPK1 | arachidonic acid |
| 23 | EGF | arachidonic acid |
Tabelle 1: Überlappende Zielstrukturen zwischen aus TCMSP abgeleiteten, verbindungsassoziierten Zielstrukturen und glomerulonephritischen assoziierten Genen. Verbindung-Ziel-Beziehungen wurden aus TCMSP abgerufen, manuell entdoppelt und mithilfe von UniProt auf offizielle humane Gensymbole standardisiert.
| Name des Moleküls | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| Arachidonsäure | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Linoleylacetat | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-Sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroxyergosterol | 428.72 | 6.73 | 44.39 | 0.86 | -0.29 | 0.82 | 0.24 | 4.06 |
| Cerevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Cholesterylpalmitat | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Cholesterin (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tabelle 2: Kandidatenbestandteile von C. sinensis, extrahiert aus TCMSP mithilfe von Kriterien zur oralen Bioverfügbarkeit und Arzneimittelähnlichkeit. Verbindungen mit einer oralen Bioverfügbarkeit von mindestens 30 % und einer Arzneimittelähnlichkeit von mindestens 0,18 wurden beibehalten. MW, molekulare Masse; ALogP, vorhergesagener Oktanol-Wasser-Verteilungskoeffizient; OB, orale Bioverfügbarkeit; Caco-2, vorhergesagte Caco-2-Permeabilität; BBB, Blut-Hirn-Schranke-Penetration; DL, Arzneimittelähnlichkeit; FASA, anteilige negativ zugängliche Oberfläche; HL, Halbwertszeit.
Ergänzungstabelle 1. Primersequenzen, die für die quantitative Echtzeit-PCR in HBZY-1-Ratten-Glomerulamesangialzellen verwendet wurden. Alle Sequenzen sind in 5′-3′-Richtung angegeben.Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatzdatei 1. Vollständige Aufnahmen der Western Blot-Analyse.Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Diese Studie kombinierte Netzwerkpharmakologie, durch Referenzliganden validiertes molekulares Docking und experimentelle Untersuchungen auf Verbindungsebene, um eine PTGS2-assoziierte Hypothese zu überprüfen, die sich aus Kandidatensubstanzen von C. sinensis ergibt. Sieben Inhaltsstoffe erfüllten die vorab festgelegten TCMSP-Ausschlusskriterien, und 23 Zielstrukturen überlappten sich mit dem genetischen Profil der Glomerulonephritis. Die Analyse proteinbasierter Interaktionen identifizierte neun zentrale Zielstrukturen, von denen PTGS2 für Docking- und experimentelle Untersuchungen ausgewählt wurde. Das erneute Docking von Celecoxib reproduzierte dessen kristallographische Bindungsposition, während β-Sitosterol und Linoleylacetat eine moderate vorhergesagte Kompatibilität mit der COX-2-Docking-Region zeigten. In mesangialen HBZY-1-Zellen verringerte β-Sitosterol die durch LPS induzierte Expression entzündlicher Gene, die COX-2-Menge sowie die Produktion von PGE2 und reduzierte zudem die durch TGF-β1 induzierte Expression profibrotischer Marker. Diese Ergebnisse verbinden computergestützte Priorisierung mit zellulären Phänotypen, stützen jedoch lediglich eine mögliche regulatorische Beziehung und keinen definierten therapeutischen Wirkmechanismus.
Die Anreicherungsergebnisse verorteten die überlappenden Zielstrukturen in biologischen Prozessen, die mit entzündlicher Stimulation, zellulärem Stress, Lipidregulation, vaskulärer Funktion und Gewebeumbildung assoziiert sind. Die Anreicherung von Antworten auf Lipopolysaccharid und bakterielle Produkte war konsistent mit dem entzündlichen Modell, das für die experimentelle Validierung verwendet wurde. Weitere plausible funktionelle Kontexte für eine glomeruläre Entzündung und maladaptive Umbildung ergaben sich aus den mit TNF, IL-17, AGE-RAGE und HIF-1 assoziierten Signalwegen6,17,18,19. Dennoch spiegelt eine Pfad-Anreicherung lediglich die statistische Konzentration annotierter Gene wider und belegt nicht die Aktivierung oder Hemmung eines Signalwegs durch β-Sitosterol12. Die deutliche Annotation bezüglich Lipidstoffwechsel und Atherosklerose sollte daher als Hinweis auf gemeinsame entzündliche, apoptotische und vaskuläre biologische Mechanismen verstanden werden, nicht jedoch als Beleg dafür, dass Atherosklerose der zentrale Krankheitsmechanismus bei CGN darstellt. Ebenso wurden auf TCMSP basierende Daten zu oraler Bioverfügbarkeit, Arzneistoff-ähnlichkeit und Zielstrukturen genutzt, um Kandidaten zu priorisieren.
PTGS2 stellte sich als relevanter Knotenpunkt heraus, da es im Durchschnitt der Krankheitsverbindungen vorhanden war, eine hohe Netzwerkzentralität aufwies und experimentell mit Veränderungen der Ptgs2-Transkription, der COX-2-Proteinmenge und der PGE2-Produktion verknüpft war. Die Übereinstimmung auf rechnerischer und zellulärer Ebene stärkt die Begründung für die Untersuchung der PTGS2-assoziierten Antwort. Dies impliziert jedoch nicht, dass PTGS2 in der Niere einheitlich pathogen ist. COX-abgeleitete Prostanoide sind an der Nierenperfusion, dem Salzhaushalt und der adaptiven Homöostase beteiligt und können je nach Zelltyp, Rezeptorverteilung, Krankheitsphase und lokaler Konzentration schützende oder schädliche Wirkungen entfalten20,21. Bei experimenteller Nephritis verringerte Celecoxib die PGE2-bezogene Ausschüttung, während PGE2 selbst die Expression der Prostaglandinrezeptoren in mesangialen Zellen beeinflusste22. Diese Beobachtungen verdeutlichen, dass die biologischen Folgen von COX-2 und PGE2 über einen einfachen linearen proinflammatorischen Signalweg hinausgehen20,23. Der Vergleich mit Celecoxib hilft dabei, die Zielgenexpression von der Enzymfunktion zu unterscheiden. Celecoxib führte zur deutlichsten Verringerung von PGE2, was mit seiner Rolle als funktioneller COX-2-Hemmer übereinstimmt, zeigte jedoch einen begrenzteren Effekt auf die Ptgs2-Expression und die COX-2-Proteinmenge22. β-Sitosterol zeigte ein breiteres Muster, das niedrigere Werte von Tnf, Il6, Ptgs2, COX-2 und PGE2 umfasste. Dieser Unterschied weist nicht auf eine überlegene COX-2-hemmende Potenz hin. Vielmehr legt er nahe, dass β-Sitosterol den entzündlichen Zustand verändern könnte, unter dem PTGS2 induziert wird, während Celecoxib hauptsächlich die Prostaglandinsynthese durch Hemmung der katalytischen Aktivität begrenzt. Direkte Enzymassays, Target-Engagement-Studien und eine gezielte Störung von PTGS2 wären erforderlich, um festzustellen, ob β-Sitosterol ebenfalls funktionell mit COX-2 interagiert.
Die Netzwerk-Ergebnisse deuten außerdem darauf hin, dass PTGS2 nicht als isolierter molekularer Knoten interpretiert werden sollte. MAPK1, JUN und PPARG wurden im Proteininteraktionsnetzwerk gemeinsam priorisiert, wodurch die Prostanoïd-Synthese in einen breiteren Signal- und transkriptionellen Kontext eingeordnet wird. In renalen mesangialen Zellen erhöhte Sphingosin-1-phosphat die COX-2-Expression und die PGE2-Bildung über eine S1P-Rezeptor-2-abhängige p42/p44-MAPK-Signalübertragung, was direkte Belege dafür liefert, dass die MAPK-Aktivität in diesem Zelltyp upstream der COX-2/PGE2-Antwort liegen kann24. Da JUN eine zentrale Komponente des AP-1-Transkriptionsfaktorkomplexes ist, könnte AP-1 eine Schnittstelle zwischen der MAPK-Aktivierung und der PTGS2-Transkription darstellen. In Übereinstimmung mit dieser Möglichkeit unterdrückte 15-Deoxy-Δ12,14-Prostaglandin J2 in kultivierten mesangialen Zellen die IL-1β-induzierte COX-2-Expression sowie die AP-1-Aktivität25. In nicht-renalen zellulären Modellen verringerte β-Sitosterol nach LPS-Behandlung die Aktivierung von ERK und p38, die NF-κB-Signalübertragung, die COX-2-Expression und die Produktion entzündungsfördernder Zytokine14,15. Diese Beobachtungen liefern einen plausiblen Kontext für die koordinierten Abnahmen von Tnf, Il6, Ptgs2, COX-2 und PGE2, die in der vorliegenden Studie beobachtet wurden. Die zitierten Studien zu β-Sitosterol wurden jedoch in Mikroglia- oder Endothelzellen und nicht in renalen mesangialen Zellen durchgeführt, und die Phosphorylierung von MAPK1 sowie die Aktivität von JUN wurden hier nicht gemessen. Die vorliegenden Ergebnisse belegen daher nicht, dass die Regulation von PTGS2 durch β-Sitosterol von MAPK1 oder JUN abhängig ist. PPARG könnte mit dem PTGS2-zentrierten Netzwerk über lipidsensitive transkriptionelle Regulation und die Modulation des profibrotischen mesangialen Zellphänotyps interagieren, anstatt lediglich ein einfacher linearer downstream-Effektor von PTGS2 zu sein. In glomerulären mesangialen Zellen hemmten natürliche und synthetische PPARγ-Liganden die TGF-β1-induzierte Fibronectin-Expression, während andere Arbeiten zeigten, dass PPARγ-Agonisten die TGF-β-induzierte Aktivierung mesangialer Zellen, die Expression von α-SMA und die Anreicherung von Kollagen IV über die Abschwächung der PKA- und CREB-Signalübertragung reduzierten26,27. Neuere Untersuchungen an diabetischen Mäusen und an glomerulären mesangialen Zellen unter Hochglucose-Bedingungen stellten NF-κB/COX-2 und PPARγ/UCP2 in parallele regulatorische Achsen, die mit renaler Entzündung und Fibrose assoziiert sind, was eine mögliche funktionelle Konvergenz unterstützt, jedoch keine direkte Kopplung zwischen PTGS2 und PPARG nachweist28. Diese Befunde liefern einen biologisch plausiblen Kontext für die Abnahmen von Col1a1, Acta2 und α-SMA, die im vorliegenden TGF-β1-Modell beobachtet wurden. Die Expression von PPARG, seine transkriptionelle Aktivität sowie die Ligandenbindung wurden jedoch nicht untersucht. Die vorliegenden Daten können daher die beobachtete profibrotische Reaktion weder auf eine Aktivierung von PPARG zurückführen noch einen sequenziellen MAPK1-PTGS2-PPARG-Signalweg definieren. Wichtig ist, dass MAPK1 und PPARG auf der Ebene des integrierten Wirkstoff-Krankheits-Netzwerks priorisiert wurden und basierend auf der aktuellen Analyse nicht als direkte Zielstrukturen von β-Sitosterol interpretiert werden sollten.
Die Docking-Analyse sollte innerhalb derselben evidentiellen Grenzen interpretiert werden. Ein Redocking-RMSD von 0,876 Å zeigte, dass das gewählte Docking-Protokoll die bekannte Celecoxib-Orientierung in der 3LN1-Struktur reproduzieren konnte. Die deutlich ungünstigeren vorhergesagten Affinitäten von β-Sitosterol und Linoleylacetat im Vergleich zu Celecoxib sprechen für eine räumliche Verträglichkeit innerhalb der vordefinierten Region, jedoch nicht für eine vergleichbare Bindungsstärke oder pharmakologische Wirkung29,30. Der Unterschied von 0,3 kcal/mol zwischen Linoleylacetat und β-Sitosterol ist zu gering, um allein eine biologische Rangfolge zu rechtfertigen. β-Sitosterol wurde für nachfolgende Untersuchungen ausgewählt, da seine Netzwerkassoziation durch eine umfangreichere experimentelle Literatur gestützt wird, die für Entzündung und Fibrose relevant ist14,15,16. Frühere Studien berichteten über Verringerungen von TNF-α, IL-6 und COX-2 in mit LPS behandelten Mikroglia- und Endothelzellen sowie über Veränderungen in der MAPK- und NF-κB-Signalübertragung14,15. Arachidonsäure erfordert eine andere Interpretation, da sie ein endogenes COX-Substrat ist21. Sein Vorkommen im aus TCMSP abgeleiteten Netzwerk weist nicht auf eine entzündungshemmende inhibitorische Wirkung hin und verdeutlicht, dass zielgerichtete Verbindungsbeziehungen aus Datenbanken keine Richtung der Wirkung definieren. Die konzentrationsabhängigen Abnahmen entzündlicher Marker in HBZY-1-Zellen stimmen mit diesen früheren zellulären Befunden überein und erweitern die Evidenz auf einen glomerulären mesangialen Kontext14,15. Das TGF-β1-Modell adressierte einen separaten Aspekt des Krankheitsprozesses31. β-Sitosterol verringerte die Transkription von Col1a1 und Acta2 und senkte die Häufigkeit von α-SMA nach TGF-β1-Stimulation. Frühere Arbeiten an humanen alveolären Epithelzellen fanden ebenfalls, dass β-Sitosterol die durch TGF-β1 induzierte Expression von Kollagen, Fibronectin und α-SMA reduzierte, obwohl diese Studie einen anderen Gewebe- und Zellprozess betraf16. Die vorliegenden Ergebnisse stützen daher eine Wirkung gegen ein profibrotisches Phänotyp in mesangialen Zellen, belegen aber nicht die Hemmung eines spezifischen TGF-β-Rezeptors oder eines SMAD-abhängigen Mechanismus31.
Mehrere Einschränkungen bestimmen den Interpretationsspielraum. Der Krankheits-Gen-Satz wurde mithilfe des allgemeinen Begriffs Glomerulonephritis generiert und ist nicht auf einen bestimmten klinischen oder histologischen CGN-Subtyp beschränkt. Die computergestützte Analyse verwendete menschliche Annotationen, das Docking basierte auf einer murinen COX-2-Struktur, und die Experimente wurden in ratenartigen HBZY-1-Zellen durchgeführt. Orthologe Beziehungen ermöglichen den Vergleich, jedoch bleiben artenspezifische Unterschiede in der Regulation und Ligandenbindung möglich. Eine einzige immortalisierte mesangiale Zelllinie kann die Wechselwirkungen zwischen mesangialen Zellen, Podocyten, endothelialen Zellen, infiltrierenden Immunzellen und dem tubulointerstitiellen Kompartiment nicht abbilden. Die Studie untersuchte außerdem keine direkte Bindung, COX-2-enzymatische Aktivität, PTGS2-Abhängigkeit, primäre humane Nierenzellen, in vivo-Wirksamkeit, Pharmakokinetik oder renale Exposition. Schließlich klärt die Untersuchung eines definierten β-Sitosterol-Präparats die frühere Inkonsistenz zwischen vorhergesagten Inhaltsstoffen und einem nicht charakterisierten Extrakt auf, beweist aber nicht, dass β-Sitosterol für die Wirkung des gesamten C. sinensis verantwortlich ist oder dass andere Inhaltsstoffe inaktiv sind.
Insgesamt unterstützen die Netzwerk-, Docking- und zellbasierten Befunde β-Sitosterol als repräsentativen Kandidaten, der mit einer verminderten entzündlichen und profibrotischen Aktivierung in HBZY-1-Zellen assoziiert ist. Die Ergebnisse stimmen mit einer Modulation einer PTGS2/COX-2/PGE2-vermittelten Antwort überein, belegen jedoch keine direkte COX-2-Bindung, PTGS2-abhängige Kausalität oder therapeutische Wirksamkeit bei CGN. Weitere Untersuchungen zur Targetbindung, genetischen Störung, primären Zellen und in vivo-Studien sind erforderlich (Abbildung 7).
Offenlegungen
Die Autoren erklären, dass sie keine konkurrierenden Interessen haben. KI-basierte Werkzeuge (ChatGPT, OpenAI) wurden zur Unterstützung bei der sprachlichen Überarbeitung und der vorläufigen Gestaltung schematischer Abbildungen verwendet. Generative Künstliche Intelligenz kam bei der Erstellung vorläufiger grafischer Entwürfe der Abbildungen 1A und 7 zum Einsatz, die anschließend von den Autoren überprüft und überarbeitet wurden, um die Übereinstimmung mit den beschriebenen Methoden und Ergebnissen sicherzustellen. Alle von der KI unterstützten Ergebnisse wurden kritisch bewertet und von den Autoren genehmigt. Die Autoren haben den endgültigen Inhalt der Abbildungen verifiziert und übernehmen volle Verantwortung für die Integrität und Genauigkeit der Manuskripterstellung.
Danksagungen
Diese Studie wurde unterstützt durch die integrierte charakteristische Fachabteilung für nephropathische Erkrankungen der Traditionellen Chinesischen und Westlichen Medizin (ZYTSZK2-3) und die Studie zur Strategie der TCM-Intervention bei chronischer Nierenerkrankung aus der Perspektive des Managements chronischer Erkrankungen (202240169).
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Absolute Ethanol | Sigma-Aldrich/Merck | E7023 | Molekularbiologisch reines, nicht denaturiertes Ethanol mit 200 Proof; Lösungsmittel für den β-Sitosterol-Standard. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | Molekulare Docking-Simulation |
| Biosicherheitswerkbank | Thermo Fisher Scientific | 1300 Series A2 | Sterile Zellkultur-Arbeiten |
| Celecoxib | MedChemExpress | HY-14398 | Selektiver COX-2-Hemmer, verwendet als positiver Kontrollstoff; 10 mM-Lösung in DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | WST-8-Färbung zur Bestimmung der Zellviabilität; Absorption bei 450 nm gemessen. |
| Chemilumineszenz-Bildgebungssystem | Bio-Rad Laboratories | ChemiDoc MP | Aufnahme von Western Blot-Bildern |
| clusterProfiler R-Paket | Bioconductor | Version 4.10.0 | GO- und KEGG-Enrichment-Analyse |
| CO2-Zellkultur-Inkubator | Thermo Fisher Scientific | Forma Series II 3111 | Inkubation von Zellkulturen bei 37 °C und 5 % CO2 |
| COX-2 (D5H5) Kaninchen monoklonaler Antikörper | Cell Signaling Technology | 12282 | Für Western Blot validiert gegen menschliches, murines und ratten COX-2; verwendet im Verdünnungsverhältnis 1:1.000. |
| CytoNCA-Plugin | Cytoscape App Store | Version 2.1.6 | Topologische Analyse zentraler Zielstrukturen |
| Cytoscape-Software | Cytoscape Consortium | Version 3.8.0 | Visualisierung und Analyse von Netzwerken |
| Dimethylsulfoxid | Sigma-Aldrich/Merck | D2650 | Sterilfiltriertes BioReagent, ≥99,7 %; Lösungsmittel für Celecoxib-Standard. |
| DisGeNET-Datenbank | Integrative Biomedical Informatics Group | Nicht zutreffend | Gen-Erkrankungs-Abfrage für Glomerulonephritis |
| Dulbeccos modifiziertes Eagle-Medium (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Grundmedium für die Kultur von HBZY-1-Zellen |
| Verbessertes Chemilumineszenz-Substrat | Beyotime Biotechnology | P0018S | Sichtbarmachung von Banden im Western Blot |
| Fötales Kälberserum | Gibco/Thermo Fisher Scientific | 10099-141C | Serumzusatz für die Zellkultur |
| GAPDH (D16H11) Kaninchen monoklonaler Antikörper | Cell Signaling Technology | 5174 | Ladungskontrolle im Western Blot; reagiert mit menschlichem, murinem und ratten GAPDH; verwendet im Verdünnungsverhältnis 1:5.000 nach interner Optimierung. |
| GeneCards-Datenbank | Weizmann Institute of Science | NA | Identifizierung von mit Glomerulonephritis assoziierten Genen |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | Statistische Analyse von in-vitro-Experimentaldaten |
| HRP-konjugiertes Ziegen-Anti-Kaninchen-IgG | Proteintech Group | SA00001-2 | Sekundärantikörper für kaninchenstammige Primärantikörper |
| ImageJ-Software | National Institutes of Health | Version 1.54 | Dichtometrische Analyse von Western Blots |
| Invertiertes Phasenkontrastmikroskop | Olympus | CKX53 | Beobachtung der Zellmorphologie |
| org.Hs.eg.db R-Paket | Bioconductor | Version 3.18.0 | Menschliche Genanreicherung für Enrichment-Analysen |
| Penicillin-Streptomycin-Lösung | Gibco/Thermo Fisher Scientific | 15140122 | Antibiotischer Zusatz für die Zellkultur |
| PGE2-Parameter-Assay-Kit | R&D Systems, eine Marke von Bio-Techne | KGE004B | Mehrspezies-kompetitives ELISA für Zellkulturüberstände; Messbereich 39–2.500 pg/mL; farbmessende Detektion bei 450 nm. |
| PharmGKB-Datenbank | Pharmacogenomics Knowledgebase | NA | Identifizierung krankheitsrelevanter Zielstrukturen |
| PubChem-Datenbank | National Center for Biotechnology Information | NA | Abfrage von Ligandenstrukturen |
| PVDF-Membran | Millipore/Merck | IPVH00010 | Proteintrennmembran für Western Blot |
| PyMOL-Molekülgrafiksystem | Schrödinger, LLC | Version 2.6.2 | Visualisierung von Docking-Positionen |
| R-Software | R Foundation for Statistical Computing | Version 4.3.2 | Identifizierung gemeinsamer Zielstrukturen und Enrichment-Analyse |
| Ratten-Glomerulus-Mesangialzelllinie (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | In-vitro-Validierungsmodell für Mesangialzellen |
| RCSB Protein Data Bank | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | Abfrage der Kristallstruktur von PTGS2/COX2 |
| Rekombinantes humanes TGF-β1-Protein | PeproTech, eine Marke von Thermo Fisher Scientific | 100-21-10UG | HEK293-abgeleitetes rekombinantes humanes TGF-β1; profibrotische Stimulation mit 10 ng/mL. |
| SDS-PAGE-Elektrophorese-System | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Proteintrennung mittels SDS-PAGE |
| STRING-Datenbank | ELIXIR/STRING Consortium | Version 12.0 | Aufbau von Protein-Protein-Interaktionsnetzwerken |
| TCMSP-Datenbank | Traditional Chinese Medicine Systems Pharmacology Database | NA | Auswahl von Wirkstoffkandidaten aus Cordyceps sinensis |
| Therapeutic Target Database | Innovative Drug Research and Bioinformatics Group | NA | Identifizierung therapeutischer Zielstrukturen |
| α-SMA-Primärantikörper | Proteintech Group | 14395-1-AP | Nachweis der α-SMA-Proteinexpression |
| β-Sitosterol (Reinheit >98 %) | MedChemExpress | HY-N0171A | CAS 83-46-5; definierter Wirkstoff zur Zellbehandlung; 10 mM-Lösung in absolutem Ethanol. |
Referenzen
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).