Mithilfe von Bulk-, Einzelzell- und räumlichen transkriptomischen Analysen sowie maschinellen Lernverfahren zur Überlebensmodellierung und experimenteller Validierung stuft diese Studie PPARG als Kandidatengen ein, das mit der Seneszenz in Osteosarkomen assoziiert ist und dessen verminderte Expression mit einem ungünstigen Überleben in TARGET-OS sowie mit vaskulären und mikroumgebungsbezogenen Merkmalen verknüpft ist.
Forschungsartikel
Integrative Bulk-, Einzelzell- und räumliche Transkriptomanalysen identifizieren PPARG als potenzielles seneszenzbezogenes prognostisches Gen bei Osteosarkomen
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Osteosarkom bleibt bei metastasierendem, rezidivierendem oder therapieresistentem Krankheitsverlauf eine Herausforderung. Ziel dieser Studie war es, seneszenzbezogene prognostische Gene zu identifizieren und ihre räumlichen Kontexte zu charakterisieren. Eine paired-Differenzexpressionsanalyse wurde in GSE99671 mithilfe von DESeq2 durchgeführt und anschließend mit dem CellAge-Seneszenz-Gen-Set geschnitten. Transkriptomische Daten aus dem TARGET-OS-Kollektiv wurden von UCSC Xena bezogen. Kandidatengene wurden mittels univariater Cox-Regression, Kaplan-Meier-Analyse, zeitabhängiger ROC-Analyse (receiver operating characteristic), LASSO-Cox-Regression, wiederholter LASSO-Analyse und Random-Survival-Forest-Modellierung evaluiert, wobei klinische Kovariaten in angepasste Cox-Modelle integriert wurden. Zur Charakterisierung kamen funktionelle Enrichment-Analysen, Analysen der immunen Mikroumgebung, Einzelzell-Transkriptomik, SP_BS3-räumliche Transkriptomik, Expressionsvalidierung in GSE36001 sowie qRT-PCR- und Western-Blot-Validierungen in Osteosarkom-143B-Zellen und Osteoblasten-Zellen zum Einsatz. In GSE99671 waren 2.248 Gene differentiell exprimiert mit einem adjustierten P < 0,05; der Durchschnitt mit den 866 CellAge-Genen ergab 105 seneszenzbezogene differentiell exprimierte Gene. Im TARGET-OS-Kollektiv war ein niedrigerer PPARG-Expressionsgrad mit einem höheren Mortalitätsrisiko assoziiert (univariate HR = 0,603, 95 % KI = 0,454–0,802, P = 0,000494; adjustierte HR = 0,224, 95 % KI = 0,085–0,589, P = 0,00241). Die Hinzunahme von PPARG zum klinischen Modell erhöhte den C-Index von 0,707 auf 0,829. PPARG war in GSE99671 und GSE36001 herunterreguliert, und qRT-PCR sowie Western Blot bestätigten eine niedrigere PPARG-mRNA- und Proteinexpression in Osteosarkom-143B-Zellen im Vergleich zu Osteoblasten-Zellen. Die Einzelzell-Analyse lokalisierte PPARG in endothelialen Zellen, Perizyten, Makrophagen/Monozyten und tumorassoziierten stromalen Zellen. Die räumliche Transkriptomik-Analyse zeigte schwache, aber signifikante positive Korrelationen zwischen der PPARG-Expression und den CellAge-Seneszenz-, endothelialen und perizytenbezogenen Scores. Diese Ergebnisse stellen PPARG als einen vielversprechenden, aus dem CellAge-Set abgeleiteten prognostischen Biomarker in Verbindung mit ungünstigem Überleben und Merkmalen der vaskulären Mikroumgebung beim Osteosarkom vor und unterstützen die Untersuchung seiner potenziellen Relevanz für die Risikostratifizierung und die seneszenzbezogene Tumormikroumgebung. GSE36001 diente lediglich der externen Expressionsvalidierung; eine unabhängige Überlebensvalidierung wurde nicht durchgeführt.
Einleitung
Osteosarkom ist der häufigste primäre bösartige Knochentumor bei Kindern, Jugendlichen und jungen Erwachsenen1. Obwohl die Kombination einer mehrfachen Chemotherapie mit einer Operation die Behandlungsergebnisse bei lokalisiertem Befund verbessert hat2,3, weisen Patienten mit metastasiertem, rezidiviertem oder therapieresistentem Osteosarkom nach wie vor eine schlechte Langzeitüberlebensrate auf3,4. Neuere Erkenntnisse zeigen, dass eine durch oxidativen Stress induzierte epigenetische Umgestaltung die Anpassung an Metastasen und das Tumorwachstum fördern kann, was die komplexe molekulare Plastizität aggressiver Krebsphänotypen unterstreicht5. Zuverlässige Biomarker, die sowohl klinisch interpretierbar als auch biologisch aussagekräftig sind, sind weiterhin begrenzt. Daher bleibt es wichtig, molekulare Merkmale zu identifizieren, die die Heterogenität des Osteosarkoms und das prognostische Risiko über mehrere Datenebenen hinweg erfassen.
Zelluläre Seneszenz ist ein stabiles Programm des Zellzyklusarrests, das durch Dysfunktion der Telomere, DNA-Schäden, oxidativen Stress, Aktivierung von Onkogenen und therapeutischen Druck induziert wird6. Die Seneszenz kann eine fehlerhafte Proliferation einschränken; seneszente Zellen können jedoch auch das Tumormikromilieu durch entzündliche Prozesse, Chemokine, Wachstumsfaktoren und Umbauprogramme der extrazellulären Matrix umgestalten7,8. Bei Osteosarkomen können seneszenzassoziierte Gene sowohl intrinsische Stresszustände der Tumorzellen als auch nicht maligne Kompartimente des Mikromilieus widerspiegeln, doch ihre prognostische Relevanz und räumliche Organisation wurden bisher nicht systematisch untersucht.
PPARG kodiert den proliferator-aktivierten Peroxisomrezeptor gamma, einen ligandenaktivierten nukleären Rezeptor, der an dem Lipidstoffwechsel, der entzündlichen Regulation, der zellulären Differenzierung und der Immunmodulation beteiligt ist9. Die Rolle von PPARG beim Krebs ist kontextabhängig10. In einigen Fällen ist PPARG mit Differenzierung und antiinflammatorischen Zuständen assoziiert, während es in anderen Situationen adaptive Tumor- oder Stromaprogramme unterstützen kann. Dennoch sind sein Expressionsmuster, sein prognostischer Wert sowie seine zelluläre und räumliche Lokalisation im Osteosarkom bislang unvollständig charakterisiert.
In der vorliegenden Studie wurden in GSE99671 differenziell exprimierte Gene identifiziert und mit dem CellAge-Senzenz-Gen-Set überlappt, wodurch 105 seneszenzassoziierte, differenziell exprimierte Gene erhalten wurden. Anschließend wurden TARGET-OS-Überlebensdaten, mehrere Ansätze des maschinellen Lernens und der Überlebensmodellierung sowie eine klinische Anpassung verwendet, um PPARG als Kerngen zu bestimmen. PPARG wurde weiter charakterisiert mittels funktioneller und immunologischer Mikroumgebungsanalysen auf Bulk-Ebene, Einzelzell-Transkriptomik, räumlicher Transkriptomik, externer Expressionsvalidierung aus GSE36001 sowie mittels qRT-PCR und Western Blot in der Osteosarkom-Zelllinie 143B und humanen Osteoblasten.
Protokoll
Diese Studie verwendete öffentliche Datensätze und Zelllinien zur Analyse und Validierung und umfasste keine menschlichen Probanden oder klinischen Gewebeproben; daher war keine ethische Genehmigung erforderlich.
Differenzielle Expressionsanalyse im Schnittbereich von GSE99671 und CellAge
Rohzähldaten und Informationen zur Probengruppierung für GSE99671 wurden von GEO11,12 bezogen. Achtzehn Paare aus Osteosarkom- und entsprechenden Normalproben wurden analysiert. Die differentielle Expressionsanalyse für gepaarte Stichproben wurde mit DESeq2 unter Verwendung der Designformel ~ pair_id + condition durchgeführt, wobei pair_id die Effekte der gepaarten Individuen berücksichtigte und condition Tumorgewebe mit Normalgewebe verglich13. Gene, die in mindestens drei Proben einen Lesezählwert von mindestens 10 aufwiesen, wurden beibehalten. Differenzielle Expression wurde definiert als adjustierter P < 0,05; für die Visualisierung wurde ein strengerer Schwellenwert von adjustiertem P < 0,05 und |log2FC| ≥ 1 angewandt. Die differentiell exprimierten Gene wurden mit den 866 CellAge-Senescenzgenen nach Umwandlung der Gensymbole in Großbuchstaben geschnitten14. Die differentielle Expressionsanalyse wurde in R (Version 4.3.2) mit DESeq2 (Version 1.40.2) durchgeführt, und die adjustierten P-Werte wurden nach der Methode von Benjamini-Hochberg berechnet.
Kohorte TARGET-OS und prognostische Modellierung
Transkriptomische und klinische Daten der TARGET-OS-Kohorte wurden von UCSC Xena15 bezogen. Es wurden Expressionswerte für die 105 seneszensbezogenen differentiell exprimierten Gene extrahiert. In die Analyse eingeschlossen wurden 85 Patienten mit vollständigen Angaben zur Überlebenszeit, Überlebensstatus und Genexpressionsdaten der Kandidatengene, darunter 27 Todesfälle. Standardisierte Genexpressionswerte wurden mittels univariater Cox-Regression16, Kaplan-Meier-Überlebensanalyse und zeitabhängiger ROC-Analyse (Receiver Operating Characteristic)17 ausgewertet. Zur Beurteilung der Stabilität der Variablenauswahl und der Variablenwichtigkeit kamen LASSO-Cox-Regression18, wiederholte LASSO-Stabilitätsanalyse und Random-Survival-Forest-Modellierung zum Einsatz19. Der integrierte Hub-Score und das klinisch integrierte Rangverfahren wurden anhand der unten detaillierten binären Kriterien berechnet. Die Überlebensanalysen wurden in R mit den Paketen survival (Version 3.5-7), timeROC (Version 0.4), glmnet (Version 4.1-8) und randomForestSRC (Version 3.2.2) durchgeführt. Bei der univariaten Cox-Vorauswahl der 105 Kandidatengene wurde eine Falsch-Entdeckungs-Rate (FDR)-Korrektur nach Benjamini-Hochberg angewandt; Gene mit einem FDR < 0,05 galten als statistisch signifikant.
Modell-Vorverarbeitung, PPARG-Gruppierung und zeitabhängige ROC-Analyse
Von 85 Patienten mit 27 Todesfällen wurden Gene mit Null-Varianz ausgeschlossen, fehlende Werte der Expression von Kandidatengenen wurden medianimputiert, und die Expression jedes Kandidatengens wurde anhand des Z-Scores standardisiert. Für die Kaplan-Meier-Analyse wurde die Expression am Median der Kohorte dichotomisiert: Werte streng oberhalb des Medians wurden der Gruppe mit hoher Expression zugeordnet, Werte am oder unterhalb des Medians der Gruppe mit niedriger Expression (PPARG: n = 42 hoch und n = 43 niedrig). Log-Rank-Tests waren zweiseitig. Zeitabhängige ROC-Analysen verwendeten timeROC mit Ereignisursache = 1, marginaler inverser Wahrscheinlichkeitsgewichtung bei Zensierung, Evaluierungszeitpunkten von 365, 1.095 und 1.825 Tagen sowie iid = FALSE. Um sicherzustellen, dass größere Markerwerte durchgängig ein höheres Risiko anzeigen, wurden standardisierte Expressionswerte für Gene mit positiven Cox-Koeffizienten verwendet und für schützende Gene mit negativen Koeffizienten mit -1 multipliziert.
LASSO und wiederholtes LASSO
Cox-LASSO wurde mit glmnet unter Verwendung von family = "cox", alpha = 1, vorheriger z-Score-Standardisierung (daher standardize = FALSE), fünffacher Kreuzvalidierung, type.measure = "deviance" und Zufallsstartwert 123 angepasst. Die primäre Koeffizientenlösung verwendete lambda.min. Die Stabilitätsanalyse wiederholte dieselbe fünffache Kreuzvalidierung 300-mal; Wiederholung b verwendete den Startwert 1000 + b (b = 1,...,300). Für jedes Gen war die Selektionshäufigkeit der Anteil der Wiederholungen mit einem von null verschiedenen Koeffizienten bei lambda.min; eine von null verschiedene Selektion bei lambda.1se wurde ebenfalls erfasst.
Zufallswald für Überlebensanalysen
Ein Überlebenswald wurde mit randomForestSRC (Version 3.2.2) an alle 105 standardisierten Kandidatengene angepasst, unter Verwendung von seed 123, ntree = 1.000, importance = TRUE und na.action = „na.impute“. Die Paketstandardeinstellungen für Überlebensdaten wurden beibehalten: log-rank-Teilung, mtry = 11 (Aufrundung der Quadratwurzel aus 105 Prädiktoren), minimale Endknotengröße = 15, nsplit = 10 zufällige Teilungspunkte, Stichprobenziehung ohne Zurücklegen mit einem Stichprobenanteil von 0,632 und Anti-Split-Variablenwichtigkeit.
Integrierter Hub-Score
Jedes der 105 differentiell exprimierten Kandidatengene aus der CellAge-Liste erhielt einen Punkt für jedes der sechs binären Kriterien: (1) Zugehörigkeit zum Schnittbereich differentielle Expression/CellAge (alle Kandidaten erhielten diesen Punkt, da ein adjustierter P < 0,05 vor der Bewertung erforderlich war); (2) nomineller univariater Cox-P < 0,05; (3) Kaplan-Meier Log-Rank-P < 0,05; (4) mittlere zeitabhängige AUC über 3 und 5 Jahre ≥ 0,65; (5) Selektionshäufigkeit bei wiederholter LASSO-Regression (lambda.min) auf oder über dem 70. Perzentil im Vergleich zu allen Kandidaten und > 0; und (6) Wichtigkeit im Random-Survival-Forest-Modell auf oder über dem 70. Perzentil im Vergleich zu allen Kandidaten und > 0. Alle Kriterien hatten ein gleiches Einheitsgewicht, wodurch sich ein Hub-Score zwischen 0 und 6 ergab; Gene mit einem Score von ≥ 4 wurden zur klinischen Anpassung weitergeleitet (18 Gene). Auch die univariaten Cox-FDR-Werte wurden angegeben, und FDR < 0,05 wurde zur Kennzeichnung von Signifikanz unter Berücksichtigung des multiplen Testens verwendet, doch der vorab festgelegte Bewertungsindikator basierte auf nominellem P < 0,05.
Klinisch-integrierte Rangliste
Nach der Zusammenführung von Expressions- und klinischen Daten umfassten die angepassten Analysen 40 Patienten mit vollständigen Kovariabildatensätzen und 13 Todesfälle. Die endgültige Punktzahl ergab sich aus der anfänglichen Hub-Punktzahl zuzüglich eines Punktes für jedes der sieben Kriterien: angepasster Cox P < 0,05, angepasster Cox P < 0,10, Sensitivitäts-Cox P < 0,05 nach Ausschluss definitiver Chirurgie, Sensitivitäts-Cox P < 0,10, mittlere AUC für 3 und 5 Jahre ≥ 0,65, Likelihood-Quotienten-Test P < 0,10 für das Modell mit klinischen Parametern plus Gen im Vergleich zum rein klinischen Modell und Delta AIC < 0. Da die Schwellenwerte 0,05 und 0,10 ineinander geschachtelt waren, trug ein P < 0,05 zwei Punkte ein, wodurch eindeutig signifikante angepasste und Sensitivitäts-Cox-Ergebnisse stärker gewichtet wurden. Die Gesamtpunktzahl reichte von 0 bis 13; Gleichstände wurden zuerst durch den niedrigeren angepassten Cox-P-Wert, danach durch die höhere mittlere AUC für 3 und 5 Jahre aufgelöst. PPARG erhielt alle sechs anfänglichen Punkte sowie alle sieben Punkte für die klinische Integration (13/13) und belegte damit den ersten Platz. Die Verbesserung des C-Index wurde beschreibend angegeben und nicht in die Punktbewertung einbezogen.
Klinische Anpassung
Kandidaten-Hub-Gene wurden mit klinischen Variablen aus TARGET-OS integriert, einschließlich Geschlecht, Alter, Krankheitsstatus bei Diagnosestellung, primärer Tumorsitz, spezifischer Tumorbereich und definitive Chirurgie. In die klinisch angepassten Analysen gingen 40 Patienten mit vollständigen Expressions- und klinischen Daten, darunter 13 Todesfälle, ein. Cox-Modelle, die nur klinische Variablen enthielten, wurden mit Modellen verglichen, die zusätzlich die Genexpression berücksichtigten. C-Index, Akaike-Informationskriterium (AIC) und P-Werte des Likelihood-Quotienten-Tests wurden zur Bewertung der Modellverbesserung herangezogen. Eine Sensitivitätsanalyse wurde nach Entfernung der Variablen „Chirurgie“ durchgeführt.
Funktionelle Anreicherung und Analyse der Immunmikroumgebung
TARGET-OS-Proben wurden entsprechend der PPARG-Expression stratifiziert. Die differentielle Expression zwischen den PPARG-hoch- und PPARG-niedrig-Gruppen wurde verwendet, um sortierte Genlisten für die Gen-Set-Anreicherungsanalyse (GSEA)20 zu erstellen. Die dargestellten Signalwege waren: Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway und Reactome: Fatty Acids. Ein aggregierter CellAge-Senescenz-Score wurde berechnet, und eine Spearman-Korrelationsanalyse wurde verwendet, um Assoziationen zwischen PPARG und Seneszenzgenen oder Signaturen der Immunmikroumgebung zu bewerten21. Unterschiede in den Mikroumgebungsscores zwischen den PPARG-hoch- und PPARG-niedrig-Gruppen wurden mittels nichtparametrischer Tests mit Korrektur für Mehrfachvergleiche ausgewertet.
Einzelzell-Transkriptom-Analyse
Ein veröffentlichter Einzelzell-Transkriptom-Datensatz von menschlichem Osteosarkom wurde mithilfe eines vorverarbeiteten Objekts analysiert, für das bereits Qualitätskontrolle, Dimensionsreduktion, Clusterung und manuelle Annotation durchgeführt worden waren22,23,24. Insgesamt wurden 68.336 Zellen und 32.297 Gene berücksichtigt. Zur Interpretation im Haupttext wurden die Annotationen auf 13 Hauptzelltypen vereinfacht: B-Zellen, CAFs, proliferierende Zellen, endotheliale Zellen, erythroide Zellen, Makrophagen/Monozyten, maligne Osteosarkomzellen, myogene Zellen, Neutrophile, osteoklastenähnliche Zellen, Perizyten, T/NK-Zellen und tumorassoziierte stromale Zellen. Zur Visualisierung der Lokalisation von PPARG wurden Dimensionsreduktionsdarstellungen, Darstellungen der Merkmalsexpression, Punkt- und Violin-Plots verwendet. PPARG-positive Zellen wurden als Zellen definiert, deren Expression größer als null war. Unterschiede zwischen den Zelltypen wurden mittels Kruskal-Wallis- und Wilcoxon-Rangsummentests mit Benjamini-Hochberg-Korrektur bewertet. Die Einzelzell-Analysen wurden in R mit Seurat (Version 5.0.1) durchgeführt.
Räumliche transkriptomische Analyse
Die räumliche Transkriptomik-Probe SP_BS3 wurde verwendet, um ein räumliches Expressionsobjekt zu konstruieren25,26. Die Qualitätskontrollschwellenwerte waren nFeature_Spatial ≥ 200 und percent.mt ≤ 30, wodurch 4.572 Spots für die Analyse verblieben. Die Daten wurden normalisiert, 3.000 hochvariable Gene ausgewählt, und anschließend wurden Datenskalierung, Hauptkomponentenanalyse, Konstruktion eines Nachbarschaftsgraphen, räumliche Spots-Clustern und Dimensionsreduktion durchgeführt. Eine räumliche CellAge-Senescenz-Score wurde berechnet, nachdem PPARG aus dem Gen-Set entfernt worden war, um eine zirkuläre Korrelation zu vermeiden. Endotheliale, perizytäre, Makrophagen/Monozyten-, tumorassoziierte stromale, maligne Osteosarkom- und osteoklastenähnliche Signaturen wurden konstruiert und bewertet. Die Spearman-Korrelationsanalyse wurde verwendet, um Assoziationen zwischen der PPARG-Expression und den räumlichen Scores zu untersuchen. Eine Label-Übertragung wurde unter Verwendung des Einzelzell-Datensatzes als Referenz und des räumlichen Datensatzes als Abfrage durchgeführt, um vorhergesagte Zelltyp-Scores für jeden Spot abzuleiten23,24. Die räumlichen transkriptomischen Analysen wurden in R mit Seurat (Version 5.0.1) durchgeführt, und eine FDR-Korrektur nach Benjamini-Hochberg wurde auf alle räumlichen Korrelations-P-Werte angewendet.
Externe Expressionsvalidierung in GSE36001
Der GEO-Datensatz GSE36001 wurde ausschließlich als unabhängige Kohorte zur Expressionsvalidierung verwendet; da Überlebensdaten nicht verfügbar waren, erfolgte keine prognostische Validierung11,27. Der Datensatz umfasste 19 Osteosarkom-Proben und sechs normale Kontrollproben. Die Plattformanmerkung GPL6102 wurde verwendet, um Sondenidentifikatoren in Gensymbole umzuwandeln. Wenn mehrere Sonden auf dasselbe Gen abgebildet wurden, blieb die Sonde mit der höchsten durchschnittlichen Expression erhalten. Die differentielle Expression zwischen Tumor- und Normalgruppen wurde mittels limma28 bewertet. Die Analysen wurden in R mit limma (Version 3.56.2) durchgeführt, und angepasste P-Werte wurden nach der Methode von Benjamini-Hochberg berechnet.
qRT-PCR- und Western-Blot-Validierung
Die experimentelle Validierung wurde unter Verwendung der humanen Osteosarkom-Zelllinie 143B und humaner Osteoblasten-Zellen durchgeführt. Die Osteosarkom-Zellen wurden in Dulbeccos modifiziertem Eagle-Medium, ergänzt mit 10 % fetalem Kälberserum und 1 % Penicillin-Streptomycin, bei 37 °C in einer feuchten Atmosphäre mit 5 % CO₂ kultiviert und bei 80–90 % Konfluenz mit 0,25 % Trypsin-EDTA passagiert. Die humanen Osteoblasten-Zellen wurden unter den empfohlenen Kulturbedingungen gehalten. Alle Zelllinien wurden auf Mykoplasmakontamination überprüft und als frei davon bestätigt. Für die qRT-PCR wurde die Gesamt-RNA mit einem auf Phenol-Guanidinium basierenden RNA-Extraktionsreagenz isoliert, und die RNA-Konzentration sowie -reinheit wurden spektrophotometrisch bestimmt. Ein Mikrogramm Gesamt-RNA wurde gemäß der empfohlenen Anleitung mit einem Reagenz für die Reverse Transkription transkribiert. Die qRT-PCR wurde mittels einer fluoreszenzbasierten DNA-Bindungs-Färbemethode unter folgenden Zyklierungsbedingungen durchgeführt: anfängliche Denaturierung bei 95 °C für 30 s, gefolgt von 40 Zyklen mit 95 °C für 5 s und 60 °C für 30 s, sowie einer Schmelzkurvenanalyse zur Bestätigung der Amplifikationsspezifität. Jede Probe wurde technisch dreifach durchgeführt, und es wurden drei unabhängige biologische Experimente durchgeführt. GAPDH diente als interne Kontrolle, und die relative PPARG-Expression wurde nach der 2-ΔΔCt-Methode29 berechnet. Der PPARG-Forward-Primer lautete 5'-CGAAGACATTCCATTCACAAGAACAG-3', der Reverse-Primer 5'-AGATGCAGGCTCCACTTTGATTG-3'.
Die Western-Blot-Analyse wurde zur Untersuchung der PPARG-Proteinexpression durchgeführt. Die Zellen wurden in Radioimmunpräzipitationspuffer, ergänzt mit Proteaseinhibitoren, lysiert und die Protein-konzentrationen mittels Bicinchoninsäure-Assay bestimmt. Gleiche Mengen an Protein (30 µg pro Lane) wurden mittels 10%iger Natrium-Dodecylsulfat-Polyacrylamid-Gelelektrophorese getrennt und auf Polyvinylidenfluorid-Membranen übertragen. Nach der Blockierung mit 5%iger fettfreier Milch für 1 Stunde bei Raumtemperatur wurden die Membranen über Nacht bei 4 °C mit primären Antikörpern gegen PPARG (1:1.000) und GAPDH (1:5.000), gefolgt von der Inkubation mit einem mit Peroxidase konjugierten sekundären Antikörper (1:5.000) für 1 h bei Raumtemperatur. Proteinbande wurden mittels Chemilumineszenzdetektion sichtbar gemacht, und es wurden drei unabhängige Experimente durchgeführt. Die Bandenintensitäten wurden mithilfe einer Bildanalyse-Software quantifiziert30. Zwischengruppenunterschiede wurden mit dem zweiseitigen ungepaarten t-Test von Student analysiert t Tests. Die Daten wurden als Mittelwert dargestellt ± Standardabweichung (SD) aus drei unabhängigen Experimenten und P < Ein p-Wert von 0,05 wurde als statistisch signifikant angesehen. Die statistischen Analysen der experimentellen Daten wurden mit einer statistischen Analyse-Software (Version 9.0) durchgeführt.
Statistische Analyse
Sofern nicht anders angegeben, wurden alle bioinformatischen Analysen in R (Version 4.3.2) durchgeführt. Zweiseitig P Werte < 0,05 wurden als statistisch signifikant betrachtet. Die Korrelationen wurden mittels des Rangkorrelationskoeffizienten nach Spearman bewertet (ρ). Bei Bedarf wurde eine Korrektur für Mehrfachvergleiche mit der Benjamini-Hochberg-FDR-Methode durchgeführt. Experimentelle Daten wurden als Mittelwert dargestellt ± SD und wurden mit einem zweiseitigen ungepaarten Student’s-t-Test verglichen t Tests. Die experimentellen statistischen Analysen wurden mit statistischer Analyse-Software (Version 9.0) durchgeführt.
Ergebnisse
GSE99671 identifizierte 105 CellAge-Seneszenz-assoziierte differentiell exprimierte Gene
GSE99671 umfasste 36 Proben aus 18 gepaarten Geweben. Nach Filterung aufgrund geringer Anzahlen blieben 16.683 Gene erhalten. Bei einem adjustierten P < 0,05 wurden 2.248 Gene als differentiell exprimiert identifiziert. Unter der strengeren Schwelle eines adjustierten P < 0,05 und |log2FC| ≥ 1 waren 594 Gene signifikant, darunter 102 hochregulierte und 492 herunterregulierte Gene in Tumoren (Abbildung 1A,B). Der Durchschnitt der 2.248 differentiell exprimierten Gene mit 866 CellAge-Genen ergab 105 seneszenzassoziierte differentiell exprimierte Gene (Abbildung 1C). PPARG war in GSE99671 herunterreguliert, mit log2FC = -0,644, P = 0,00451 und einem adjustierten P-Wert = 0,0309. In 13 von 18 Paaren war die Expression von PPARG im Normalgewebe höher als im Tumorgewebe, mit einem gepaarten Wilcoxon P = 0,0294 (Abbildung 1D).
Mehrfachmodell-basierte prognostische Screening-Analyse identifizierte PPARG als zentrales Kandidatengen
In der TARGET-OS-Kohorte wurden 85 Patienten mit 27 Todesereignissen eingeschlossen. Die integrierte Analyse der 105 seneszensbezogenen differentiell exprimierten Gene mittels univariater Cox-Regression, Kaplan-Meier-Analyse, Überlebens-ROC-Analyse, LASSO, wiederholter LASSO- und Random-Survival-Forest-Modellierung ergab 18 vielversprechende Hub-Gene vor der klinischen Anpassung (Abbildung 2A). PPARG war in der univariaten Cox-Analyse mit dem Gesamtüberleben assoziiert (HR = 0.603, 95 % KI = 0,454–0,802, P = 0,000494, FDR = 0,0447), was darauf hindeutet, dass eine höhere PPARG-Expression mit einem geringeren Sterblichkeitsrisiko verbunden ist. Die Kaplan-Meier-Analyse zum Vergleich der Gruppen mit hoher und niedriger Expression ergab P = 0,00784 (Abbildung 2B). Die zeitabhängigen AUC-Werte nach 1, 3 und 5 Jahren betrugen jeweils 0,603, 0,760 und 0,776 (Abbildung 2C). PPARG wies eine Auswahlhäufigkeit bei der wiederholten LASSO-Analyse von 0,920 und eine Wichtigkeit im Random-Survival-Forest-Modell von 0,0398 auf (Abbildung 2D–F). Die anfängliche Hub-Score von PPARG betrug 6/6, da es alle sechs vorab festgelegten Screening-Kriterien erfüllte.
Klinische Anpassung unterstützte die prognostische Assoziation von PPARG
Nach Einbeziehung klinischer Kovariaten blieb PPARG signifikant mit dem Gesamtüberleben assoziiert (adjustiertes HR = 0.224, 95 % KI = 0.085–0.589, P = 0.00241; Abbildung 2G). Das ausschließlich klinische Modell wies einen C-Index von 0,707 und ein AIC von 89,921 auf (Ergänzende Tabelle 1). Die Hinzunahme von PPARG erhöhte den C-Index auf 0,829, senkte das AIC auf 78,466 und verbesserte signifikant die Modellanpassung gemäß dem Likelihood-Quotienten-Test (P = 0,000244; Ergänzende Tabelle 2, Abbildung 2H,I). Eine Sensitivitätsanalyse nach Ausschluss von definitiver Chirurgie bestätigte die schützende Assoziation von PPARG (HR = 0,249, P = 0,00185; Ergänzende Tabelle 3, Abbildung 2J). PPARG erreichte den höchsten klinisch-integrierten Score von 13 (initialer Hub-Score 6 plus sieben Punkte für klinische Integration) und zeigte abschließend AUCs für 3 und 5 Jahre von 0,770 bzw. 0,813 (Abbildung 2K).
Funktionale und immunmikrobiologische Merkmale, assoziiert mit PPARG
Die GSEA-Analyse, die die Gruppen mit hohem und niedrigem PPARG verglich, zeigte eine Hochregulation der „Nemeth Inflammatory Response LPS Up“, „Burton Adipogenesis 5“, „Burton Adipogenesis 6“, „Krieg KDM3A Targets Not Hypoxia“, „Reactome: Transcriptional Regulation By TP53“, „Fulcher Inflammatory Response Lectin Vs LPS Dn“, „Hollmann Apoptosis Via CD40 Dn“, „Zhou Inflammatory Response Live Dn“, „WP: Fatty Acids And Lipoproteins Transport In Hepatocytes“, „Sweet Lung Cancer KRAS Up“, „KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway“ und „Reactome: Fatty Acids“ (Abbildung 3A). In den Bulk-TARGET-OS-Daten ergab sich keine signifikante Korrelation zwischen PPARG und dem gesamten CellAge-Senescenz-Score (Spearman ρ = 0,022, P = 0,837; Abbildung 3B), jedoch bestand eine Korrelation mit mehreren einzelnen CellAge-Genen (Abbildung 3C). Die Analyse des immunologischen Mikromilieus zeigte positive Korrelationen zwischen PPARG und Makrophagen (ρ = 0,485, FDR = 2,7 × 10⁻⁵), CD8-T-Zellen (ρ = 0,410, FDR = 5,88 × 10⁻⁴), der osteoklastenähnlichen Signatur (ρ = 0,383, FDR = 0,00120), Neutrophilen (ρ = 0,376, FDR = 0,00120), sowie dendritischen Zellen (ρ = 0,370, FDR = 0,00123). Tumoren mit hohem PPARG wiesen nach Korrektur für FDR höhere Signaturen für osteoklastenähnliche Zellen, Makrophagen, CD8-T-Zellen, dendritische Zellen, Monozyten, Neutrophile, NK-Zellen und endotheliale Zellen auf (ergänzende Tabelle 4, Abbildung 3D,E).
Die Einzelzell-Transkriptomik lokalisierte PPARG in vaskuläre und mikroumgebungsbedingte Kompartimente
Der Einzelzell-Datensatz enthielt 68.336 Zellen und 32.297 Gene. Die Expression von PPARG unterschied sich signifikant zwischen den Zelltypen (Abbildung 4A). Die höchste durchschnittliche Expression wurde in endothelialen Zellen (mittlere Expression = 0,540; positiver Anteil = 44,33 %), Perizyten (mittlere Expression = 0,439; positiver Anteil = 41,61 %), Makrophagen/Monozyten (mittlere Expression = 0,363; positiver Anteil = 31,62 %) und stromalen, tumorassoziierten Zellen (mittlere Expression = 0,361; positiver Anteil = 44,10 %; Abbildung 4B–E) beobachtet. Eine Teilmenge maligner Osteosarkomzellen exprimierte PPARG (mittlere Expression = 0,163; positiver Anteil = 16,70 %), doch die Expression in malignen Osteosarkomzellen war im Vergleich zu anderen Zellen nicht signifikant erhöht (FDR = 0,151). Diese Ergebnisse legten nahe, dass die Expression von PPARG beim Osteosarkom vorwiegend vaskuläre, myeloide und stromale mikroumgebungsbedingte Zustände widerspiegelt und nicht auf maligne Zellen beschränkt ist (Abbildung 4F).
Die räumliche Transkriptomik verknüpfte PPARG mit seneszenzassoziierten räumlichen Zuständen und vaskulären Nischen
Nach der Qualitätskontrolle wurden 4.572 SP_BS3-räumliche Spots beibehalten und in sieben räumliche Cluster gruppiert (Abbildung 5A). Abbildung 5B zeigt die räumliche Verteilung von nFeature_Spatial (nachgewiesene Gene pro Spot). Von den 866 CellAge-Genen konnten separat 845 im räumlichen Expressionsmatrix zugeordnet werden (97,58 %). PPARG wies einen fokalen räumlichen Expressionsmuster auf (Abbildung 5C). Die räumliche Seneszenz-Score-Berechnung basierend auf CellAge, durchgeführt nach Entfernung von PPARG, zeigte eine schwache, aber statistisch signifikante positive Korrelation mit der PPARG-Expression (ρ = 0,0692, P = 3,0 × 10⁻⁶, FDR = 1,9 × 10⁻⁵; Abbildung 5D). Die Bewertung räumlicher Nischen ergab positive Korrelationen zwischen PPARG und dem endothelialen Score (ρ = 0,0433, FDR = 0,00592) sowie dem Perizyten-Score (ρ = 0,0367, FDR = 0,0181), während PPARG negativ mit dem Score für maligne Osteosarkome (ρ = -0,0592, FDR = 0,000219) und dem Tumor-Stroma-Score (ρ = -0,0531, FDR = 0,000774; ergänzende Tabelle 5, Abbildung 5E) korrelierte. Die Label-Transfer-Analyse zeigte ähnliche Ergebnisse mit positiven Korrelationen zum vorhergesagten endothelialen Score (ρ = 0,0507, FDR = 0,00120) und zum vorhergesagten Perizyten-Score (ρ = 0,0394, FDR = 0,0123) sowie einer negativen Korrelation zum vorhergesagten Score für maligne Osteosarkomzellen (ρ = -0,0699, FDR = 1,1 × 10⁻⁵; Abbildung 5F–H).
Ausdruck von außen und experimentelle Validierung bestätigten die Herunterregulation von PPARG
GSE36001 umfasste 19 Osteosarkom-Proben und sechs normale Kontrollen. PPARG war im Osteosarkom signifikant herunterreguliert (logFC = -1,429, P = 0,00730, adjustierter P-Wert = 0,0435; Abbildung 6A). Bei der zellbasierten Validierung war die PPARG-mRNA-Expression in Osteosarkom-143B-Zellen im Vergleich zu humanen Osteoblasten-Zellen mittels qRT-PCR signifikant niedriger (P < 0,001; Abbildung 6B). Die Expression des PPARG-Proteins war in den 143B-Zellen auch mittels Western Blot signifikant vermindert (P < 0,01; Abbildung 6C,D). Diese Befunde aus der externen Kohorte sowie auf mRNA- und Proteinebene stützten durchgängig eine verminderte PPARG-Expression im Osteosarkom. GSE36001 enthielt keine Überlebensdaten und lieferte daher lediglich eine externe Expressionsvalidierung, jedoch keine unabhängige prognostische Validierung.
VERFÜGBARKEIT VON DATEN:
Alle in dieser Studie verwendeten Datensätze sind öffentlich zugänglich. GSE99671 und GSE36001 wurden aus der Gene Expression Omnibus-Datenbank bezogen (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). Transkriptomische und klinische Daten von TARGET-OS wurden von UCSC Xena heruntergeladen (https://xena.ucsc.edu/). Seneszenzbezogene Gene wurden aus CellAge: The Database of Cell Senescence Genes, Teil der Human Ageing Genomic Resources, bezogen (https://genomics.senescence.info/cells/). Die Einzelzell- und räumlich aufgelösten transkriptomischen Datensätze des humanen Osteosarkoms wurden aus dem veröffentlichten Atlas und dem dazugehörigen GitHub-Repository bezogen (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). Gensätze für die Anreicherungsanalyse wurden aus MSigDB bezogen (https://www.gsea-msigdb.org/gsea/msigdb/). Die in dieser Studie erstellten verarbeiteten Daten und die Analyse-Skripte, die zur Reproduktion der berichteten Ergebnisse verwendet wurden, wurden zusammengestellt und als Zusatzdatei 1 eingereicht.
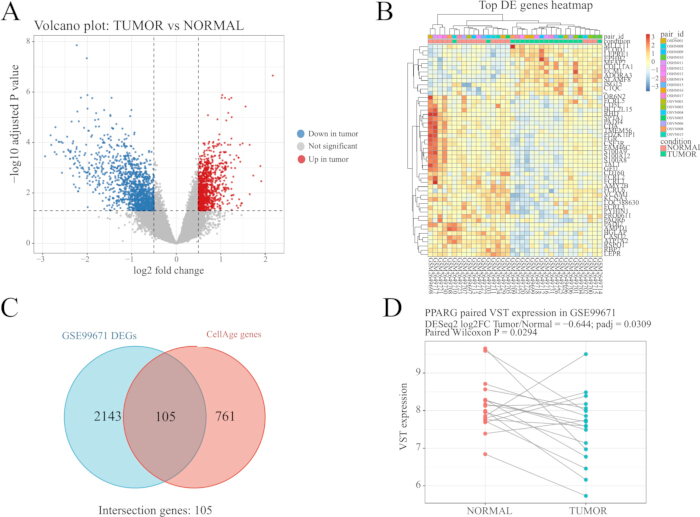
Abbildung 1: Identifizierung differenziell exprimierter Gene und aus CellAge abgeleiteter seneszenzbezogener Kandidatengene beim Osteosarkom. (A) Volcano-Plot, der differenziell exprimierte Gene zwischen Osteosarkomgewebe und gepaarten nichttumoralen Kontrollgeweben im GSE99671-Datensatz zeigt. Signifikant hoch- und herunterregulierte Gene sind gemäß den vorab festgelegten Cutoff-Kriterien hervorgehoben. (B) Heatmap, die die Expressionsmuster repräsentativer differenziell exprimierter Gene in Osteosarkom- und gepaarten Kontrollproben im GSE99671-Datensatz zeigt. (C) Venn-Diagramm, das den Durchschnitt zwischen den im GSE99671-Datensatz differenziell exprimierten Genen und den seneszenzbezogenen Genen aus CellAge darstellt. (D) Gepaarter Expressionsvergleich von PPARG zwischen Osteosarkomgewebe und entsprechenden nichttumoralen Kontrollgeweben im GSE99671-Datensatz. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
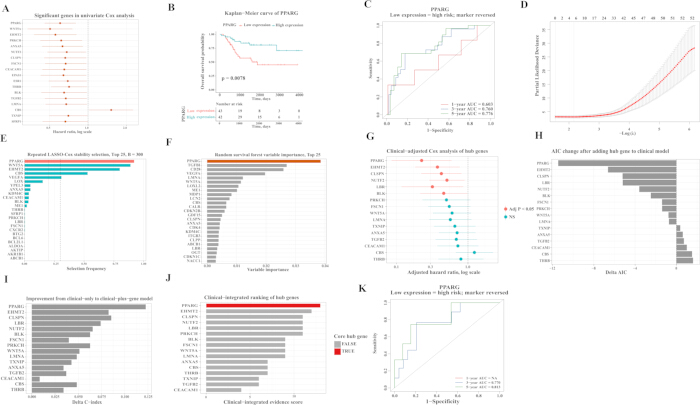
Abbildung 2: Maschinelles Lernen und klinisch angepasste Überlebensanalysen identifizieren PPARG als zentrales Seneszenz-bezogenes prognostisches HUB-Gen im Osteosarkom. (A) Forest-Plot, der die Ergebnisse der univariaten Cox-Regression für kandidatenbezogene Seneszenz-Gene in der TARGET-OS-Kohorte zeigt. (B) Kaplan-Meier-Überlebenskurve zum Vergleich des Gesamtüberlebens zwischen PPARG-hohen und PPARG-niedrigen Patienten. (C) Zeitabhängige ROC-Kurven zur Bewertung der Vorhersagegenauigkeit von PPARG für das Gesamtüberleben. (D) Kreuzvalidierungskurve der LASSO-Cox-Regression zur Auswahl prognostischer Kandidatengene. (E) Wiederholte LASSO-Stabilitätsanalyse, die die Selektionshäufigkeiten von lambda.min über 300 fünffache Wiederholungen zeigt. (F) Random-Survival-Forest-Analyse, die Variablenwichtigkeitswerte aus 1.000 Bäumen anzeigt. (G) Forest-Plot, der Ergebnisse der klinisch angepassten Cox-Regression für kandidatenbezogene HUB-Gene zeigt. (H) AIC-Änderungen nach Hinzufügen einzelner HUB-Gene zum klinischen Modell. (I) Verbesserung des C-Index nach Hinzufügen einzelner HUB-Gene zum klinischen Modell. (J) Endgültige klinisch integrierte Punktzahl (Bereich 0–13) zur Rangfolge des kandidaten HUB-Gens. (K) Zeitabhängige ROC-Kurven von PPARG in der klinischen Analyse-Teilgruppe von 40 Patienten, mit Anzeige der AUCs nach 3 und 5 Jahren; die AUC nach 1 Jahr war nicht schätzbar. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
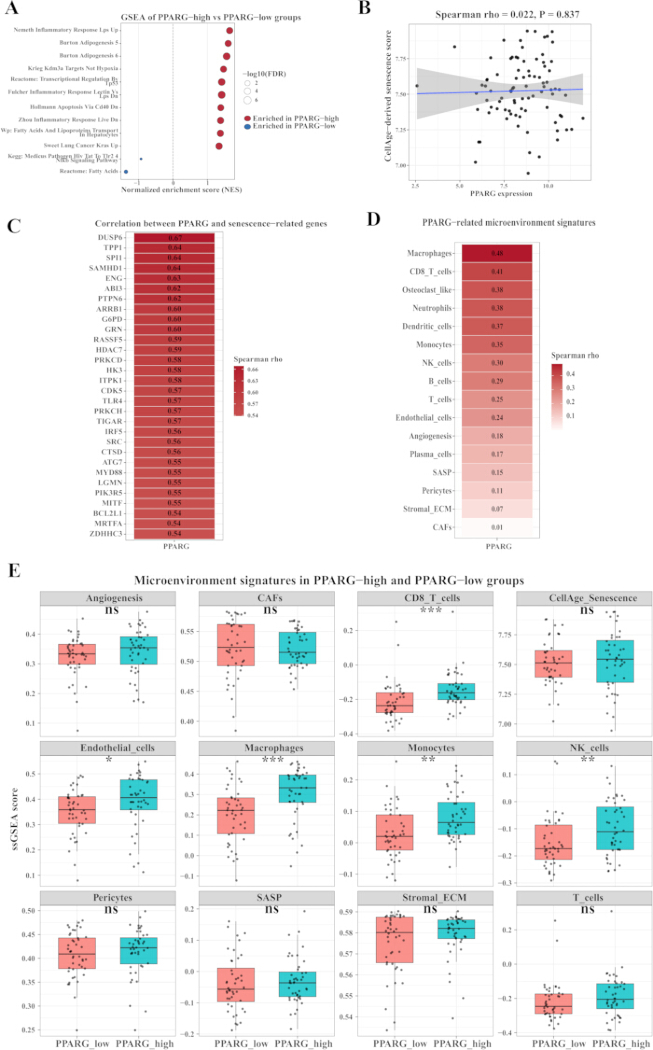
Abbildung 3: Funktionsreiche Anreicherung im Zusammenhang mit PPARG und Analyse der immunologischen Mikroumgebung. (A) Blasendiagramm der GSEA, das die Gruppen mit hohem und niedrigem PPARG-Spiegel vergleicht und die Anreicherung der folgenden Gene zeigt: Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway und Reactome: Fatty Acids. (B) Korrelation zwischen PPARG und der gesamten CellAge-Senescenz-Score in bulk TARGET-OS-Daten. (C) Korrelationen zwischen PPARG und einzelnen CellAge-Genen. (D) Korrelationen zwischen PPARG und Signaturen der immunologischen Mikroumgebung. (E) Unterschiede in den Mikroumgebungsscores zwischen den Gruppen mit hohem und niedrigem PPARG-Spiegel. Die Korrelationen wurden mittels des Spearman-Rangkorrelationskoeffizienten (ρ) bewertet, und angepasste P-Werte wurden nach der Benjamini-Hochberg-Methode berechnet. Abkürzungen: GSEA = Gen-Set-Anreicherungsanalyse; NF-κB = nuklearer Faktor kappa-B; JAK-STAT = Janus-Kinase-Signaltransduktor und Aktivator der Transkription; IL-12 = Interleukin-12; FDR = Falsch-Entdeckungs-Rate. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
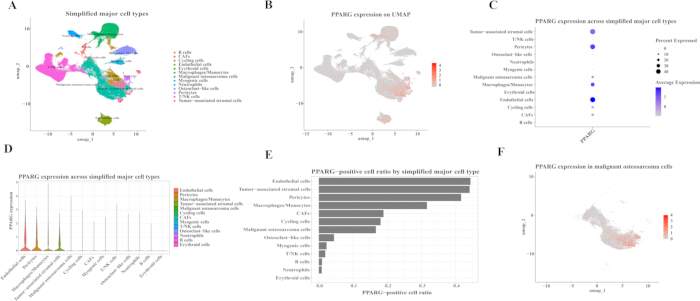
Abbildung 4: Lokalisation von PPARG in verschiedenen zellulären Kompartimenten in Einzelzell-Transkriptomdaten von Osteosarkomen. (A) UMAP-Visualisierung der wichtigsten Zelltypen im Einzelzell-Transkriptom-Datensatz von humanen Osteosarkomen nach vereinfachter manueller Annotation. (B) FeaturePlot zur Darstellung der globalen Verteilung der PPARG-Expression über einzelne Zellen hinweg. (C) DotPlot zur Darstellung der PPARG-Expression in den wichtigsten Zelltypen. (D) Violin-Plot zur Darstellung der PPARG-Expressionsniveaus in verschiedenen Zelltypen. (E) Balkendiagramm zur Darstellung des Anteils PPARG-positiver Zellen in jedem Hauptzelltyp. (F) UMAP-Visualisierung der PPARG-Expression in malignen Osteosarkomzellen. Abkürzung: UMAP = uniform manifold approximation and projection. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
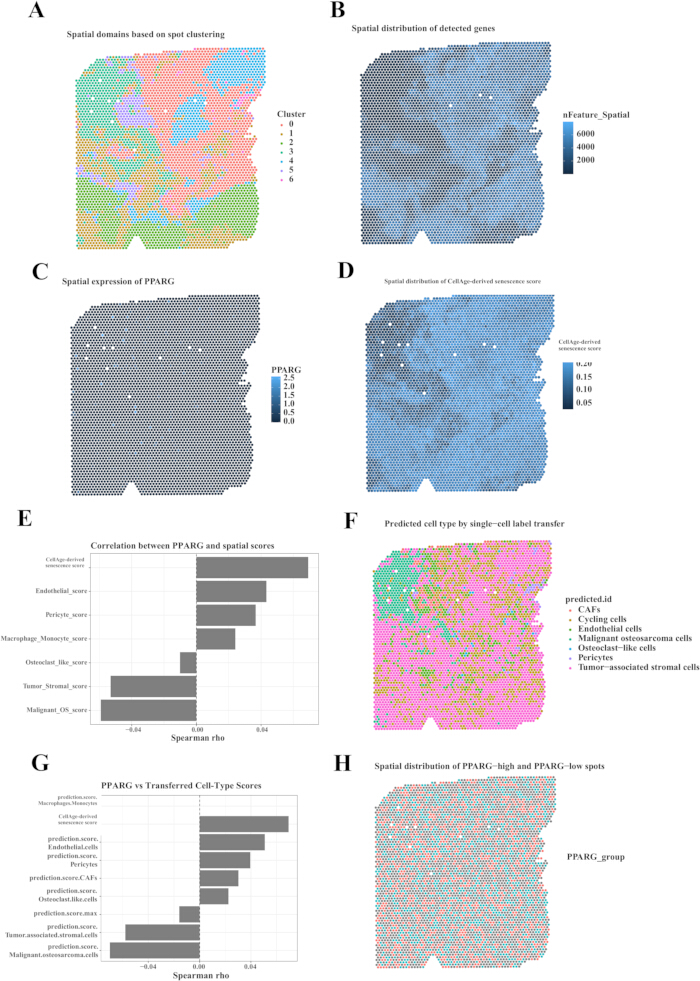
Abbildung 5: Räumliche transkriptomische Lokalisation von PPARG und seneszenzbezogenen räumlichen Merkmalen im Osteosarkom. (A) Räumliche Verteilung transkriptomisch definierter Cluster im SP_BS3-Osteosarkom-Gewebeabschnitt mit räumlicher Transkriptomik. (B) Räumliche Verteilung der nachgewiesenen Gene pro Spot, dargestellt durch nFeature_Spatial. (C) Räumliches Expressionsmuster von PPARG über alle SP_BS3-Spots hinweg. (D) Räumliche Verteilung des aus CellAge abgeleiteten Seneszenz-Scores. (E) Korrelationsanalyse zwischen PPARG-Expression und dem räumlich aufgelösten, aus CellAge abgeleiteten Seneszenz-Score oder den Scores für zelluläre ökologische Nischen. (F) Kartenübersicht der Label-Transfer-Vorhersage, die den vorherrschenden, aus Einzelzell-Daten abgeleiteten Zelltyp für jeden räumlichen Spot zeigt. (G) Korrelationsanalyse zwischen PPARG-Expression, dem aus CellAge abgeleiteten Seneszenz-Score und den aus dem Label-Transfer abgeleiteten Zelltyp-Vorhersage-Scores. (H) Räumliche Verteilung von PPARG-hohen und PPARG-niedrigen Spots. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
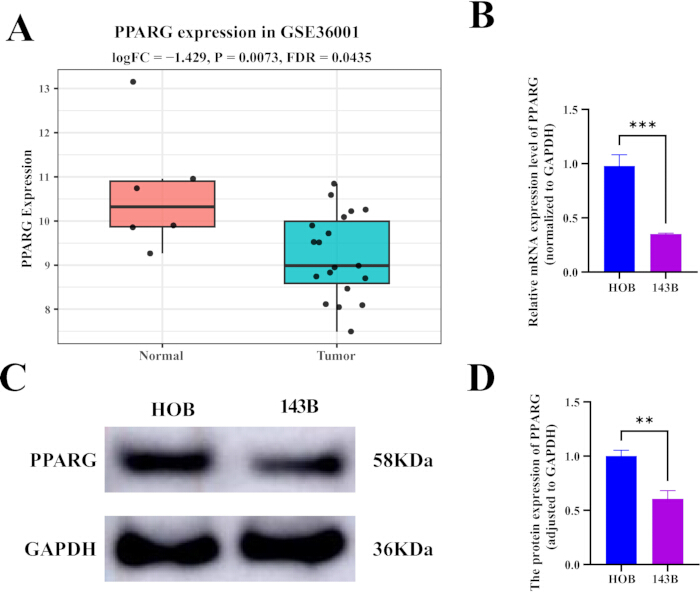
Abbildung 6: Externe Expression und experimentelle Validierung der Herunterregulation von PPARG im Osteosarkom. (A) Boxplot, der die PPARG-Expressionsniveaus in Osteosarkom-Proben (n = 19) und normalen Kontrollproben (n = 6) im GSE36001-Datensatz zeigt. (B) qRT-PCR-Analyse der PPARG-mRNA-Expression in menschlichen Osteosarkom-143B-Zellen und menschlichen Osteoblasten-Kontrollzellen. (C) Repräsentative Westernblot-Analyse der Proteinexpression von PPARG und GAPDH in menschlichen Osteoblasten-Kontrollzellen und Osteosarkom-143B-Zellen. GAPDH wurde als Ladekontrolle verwendet. (D) Densitometrische Quantifizierung der Westernblot-Banden, die die auf GAPDH normalisierten relativen PPARG-Proteinmengen zeigt. In (B) und (D) werden die Daten als Mittelwert ± SD aus drei unabhängigen Experimenten dargestellt. P < 0,01 und P < 0,001 im Vergleich zur Kontrollgruppe der menschlichen Osteoblasten, bestimmt mittels zweiseitigem ungepaartem Student’s t-Test. Abkürzungen: qRT-PCR = quantitative Reverse-Transkriptions-Polymerase-Kettenreaktion; GAPDH = Glyceraldehyd-3-phosphat-Dehydrogenase; SD = Standardabweichung. Klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Zusatz-Tabelle 1: Leistung des ausschließlich klinischen Cox-Modells in der TARGET-OS-Kohorte. C-Index, AIC und Modellübersicht des Cox-Modells, das ausschließlich anhand klinischer Variablen erstellt wurde, einschließlich Geschlecht, Alter, Erkrankungsstatus bei Diagnosestellung, primärer Tumorsitz, spezifischer Tumorregion und Status einer definitiven Chirurgie. Abkürzung: AIC = Akaike-Informationskriterium. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatz-Tabelle 2: Vergleich zwischen klinisch-basierten und klinisch-genbasierten Cox-Modellen. Ergebnisse des Modellvergleichs nach Hinzufügung einzelner in Frage kommender Hub-Gene zum klinischen Modell, einschließlich C-Index, AIC, Likelihood-Quotienten-Teststatistiken und Kennzahlen zur Modellverbesserung. Abkürzung: AIC = Akaike-Informationskriterium. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatz-Tabelle 3: Sensitivitätsanalyse nach Entfernung der Variablen definitiver Chirurgie. Ergebnisse der Sensitivitäts-Cox-Regression zur Bewertung, ob die prognostischen Assoziationen der in Betracht gezogenen Hub-Gene, insbesondere PPARG, stabil blieben, nachdem die Variable der definitiven Chirurgie aus dem adjustierten klinischen Modell ausgeschlossen wurde. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Zusatz-Tabelle 4: Mit PPARG assoziierte Immun- und stromale Mikroumgebungssignaturen im TARGET-OS. Ergebnisse der Korrelations- und Gruppenvergleiche zwischen der PPARG-Expression und Signaturen der Immunzellen, des Stroma, der Gefäße, entzündlicher Prozesse sowie SASP-bezogener ssGSEA, einschließlich Spearman-Korrelationskoeffizienten, P-Werte, adjustierte P-Werte und Vergleiche zwischen PPARG-hoch und PPARG-niedrig. Abkürzungen: SASP = seneszenzassoziiertes sekretorisches Phänotyp; ssGSEA = single-sample Gen-Set-Verstärkungsanalyse. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Ergänzende Tabelle 5: Korrelationsanalyse der räumlichen Transkriptomik von PPARG in SP_BS3. Korrelationsergebnisse zwischen der Expression von PPARG und dem aus der räumlichen CellAge-Daten abgeleiteten Seneszenzscore, den Zell-Öko-Nischen-Scores sowie den mittels Label-Transfer abgeleiteten Zelltyp-Vorhersagescores im osteosarkomatischen räumlichen Transkriptomik-Abschnitt SP_BS3. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
In dieser Studie wurde PPARG durch Integration einer differentiellen Expressionsanalyse, eines Zellalterungs-Gen-Intersektionsansatzes (CellAge), einer Überlebensmodellierung mittels TARGET-OS, klinischer Adjustierung, multi-omischer Lokalisierung und experimenteller Validierung als Kandidatengen für seneszenzbezogene Prognose bei Osteosarkom identifiziert. Dieses analytische Vorgehen entspricht dem gegenwärtigen Fokus molekular basierter Osteosarkom-Forschung sowie der Nutzung kuratierter Ressourcen zu Seneszengenen zur Interpretation seneszenzbezogener Biologie14,31. PPARG war im Osteosarkom im Vergleich zum Normalgewebe herunterreguliert, und ein niedrigerer PPARG-Expressionsgrad war im TARGET-OS-Kollektiv mit einem schlechteren Gesamtüberleben assoziiert. Diese Ergebnisse legen nahe, dass PPARG nicht nur transkriptionell im Osteosarkom verändert ist, sondern auch klinisch relevante prognostische Informationen enthalten könnte. Da jedoch die Auswahl der Kandidatengene und die Evaluierung des Modells am selben TARGET-OS-Kollektiv durchgeführt wurden (85 Patienten, 27 Todesereignisse), ist die beobachtete Verbesserung der Modellleistung anfällig für Optimismus und Überanpassung (Overfitting). Daher sollte der prognostische Wert von PPARG so lange als hypothesengenerierend betrachtet werden, bis er in einem unabhängigen Osteosarkom-Überlebenskollektiv validiert wurde. Dennoch sollte die Biologie von PPARG kontextabhängig interpretiert werden, da experimentelle Studien zum Osteosarkom sowohl antitumorale Effekte der PPAR-Gamma-/Nuclear-Receptor-Modulation als auch PPARG-assoziierte Osteoklast-Programme beschrieben haben, die den Krankheitsverlauf fördern könnten32,33,34.
Ein wichtiger Aspekt war, dass PPARG nicht als einfacher Surrogatwert für den gesamten CellAge-Score interpretiert werden sollte. In den Bulk-TARGET-OS-Daten war PPARG nicht signifikant mit dem globalen seneszenten CellAge-Score korreliert, während in der räumlichen Transkriptomik eine schwache, aber signifikante Korrelation zwischen PPARG und einem CellAge-Score, der nach Ausschluss von PPARG berechnet wurde, beobachtet wurde. Dieser Unterschied könnte auf Effekte der Zellzusammensetzung in den Bulk-Daten, die multifunktionale Natur von Seneszenz-Gen-Sets sowie auf eine lokale Anreicherung mikrobiologischer Nischen in den räumlichen Spot-Bereichen zurückzuführen sein. Konsens- und transkriptomische Studien haben betont, dass zelluläre Seneszenz heterogen, dynamisch und abhängig von Zelltyp, Stressor und Gewebekontext ist, während SASP-Programme während des Krebsfortschritts entgegengesetzte Wirkungen entfalten können25,35,36,37. PPARG wurde daher konservativ als prognostisches, seneszenzbezogenes Gen aus dem CellAge abgeleitet definiert, nicht jedoch als nachgewiesener Treiber der Seneszenz. Demnach spiegelte die seneszenzbezogene Klassifizierung von PPARG die Zugehörigkeit zum CellAge-Gen-Set wider, nicht aber einen nachgewiesenen mechanistischen Beitrag zur Seneszenz, und PPARG sollte nicht als quantitativer Surrogatwert für die gesamte Seneszenzaktivität verwendet werden.
Allgemeiner verdeutlichen diese räumlichen Ergebnisse den Unterschied zwischen statistischer Signifikanz und biologischer Relevanz. Bei 4.572 räumlichen Stellen konnten selbst sehr schwache Korrelationen herkömmliche Signifikanzschwellen überschreiten; beispielsweise erklärte die Korrelation zwischen PPARG und dem räumlichen CellAge-Senescenz-Score (ρ = 0,0692) lediglich etwa 0,48 % der Varianz, erreichte jedoch einen P-Wert von 3,0 × 10⁻⁶, da die große Anzahl an Stellen eine erhebliche statistische Power bot. Solche stellenspezifischen Assoziationen sollten daher als statistisch nachweisbare, aber biologisch geringfügige, hypothesengenerierende Signale betrachtet werden, und ihre Effektgrößen – und nicht allein ihre P-Werte – sollten die biologische Interpretation leiten. Statistische Signifikanz in großen stellenspezifischen Datensätzen sollte nicht mit starken biologischen Effekten gleichgesetzt werden.
Einzelzell- und räumliche Analysen lieferten einen biologischen Kontext für PPARG. PPARG war in endothelialen Zellen, Perizyten, Makrophagen/Monozyten und tumorassoziierten stromalen Zellen angereichert und räumlich mit Endothel- und Perizyt-Scores assoziiert. Diese Ergebnisse legten nahe, dass die prognostische Information, die PPARG trägt, mit vaskulären und mikroumgebungsbezogenen Kompartimenten im Osteosarkom verknüpft sein könnte. Diese Interpretation war vereinbar mit jüngsten Einzelzell- und räumlichen Atlanten des Osteosarkoms sowie mit allgemeineren Belegen dafür, dass immunologische, vaskuläre und stromale Nischen die Tumorheterogenität, die Therapieantwort und das Fortschreiten der Erkrankung beeinflussen25,38,39. Da maligne Osteosarkomzellen PPARG nur in einer Teilmenge der Zellen exprimierten und keine signifikant höhere Expression im Vergleich zu anderen Zellen zeigten, wäre eine Interpretation, die ausschließlich auf Tumorzellen abzielt, unvollständig gewesen. Umgekehrt könnte die auf Ebene von Gesamtgewebeproben beobachtete Herunterregulation von PPARG in GSE99671 und GSE36001 teilweise Unterschieden in der Zusammensetzung von stromalen, vaskulären, Knochenmark-, adipogenen oder immunologischen Zellen zwischen Tumor- und Normalgewebe geschuldet sein, anstatt einer echten Herunterregulation in malignen Osteosarkomzellen. Da in den Analysen auf Gesamtgewebeebene weder die Tumorreinheit noch die Häufigkeit der Zelltypen explizit berücksichtigt wurden, konnte diese Möglichkeit nicht ausgeschlossen werden und erfordert gezielte Untersuchungen.
Funktionale und immunologische Analysen des Mikromilieus waren mit dieser Interpretation vereinbar. PPARG korrelierte mit Signaturen von Makrophagen, CD8-T-Zellen, dendritischen Zellen, Neutrophilen, NK-Zellen und endothelialen Zellen, und die GSEA zeigte Signalwege im Zusammenhang mit Entzündung, NF-κB, JAK-STAT/IL-12-Signalübertragung, TP53-Regulation sowie DNA-Schadenskontrollpunkten auf. Insgesamt legten diese Ergebnisse nahe, dass PPARG einen zusammengesetzten Zustand des Mikromilieus markieren könnte, der mit seneszenzassoziiertem Stress, Immunzellinfiltration sowie vaskulären und stromalen Kompartimenten verbunden ist. Diese Interpretation war biologisch plausibel, da PPAR-Gamma bereits etablierte Funktionen bei der Unterdrückung der entzündlichen Aktivierung von Makrophagen/Monozyten besitzt, einschließlich Wirkungen auf transkriptionelle Programme, die mit AP-1, STAT und NF-κB assoziiert sind, und da das immunologische Mikromilieu des Osteosarkoms myeloide, lymphoide und vaskuläre Elemente enthält, die sowohl tumorfördernde als auch tumorsuppressive Funktionen ausüben38,40,41. Diese Einzelzell- und räumlichen Beobachtungen waren deskriptiv und hypothesengenerierend; sie belegten allein weder Mechanismen der vaskulären Nische, Seneszenzprogramme noch prognostische Signalwege.
Mehrere Einschränkungen sollten berücksichtigt werden. Erstens basierte die Hauptprognoseanalyse auf dem retrospektiven öffentlichen TARGET-OS-Kollektiv mit einer begrenzten Stichprobengröße und einer geringen Anzahl an Ereignissen; daher sollte der prognostische Wert von PPARG an unabhängigen Kollektiven gemäß anerkannten Prinzipien zur Berichterstattung und Validierung von Tumormarkern validiert werden42. Insbesondere erfolgte die Kandidatenscreening-Analyse an 85 TARGET-OS-Patienten mit 27 Todesfällen, während die klinisch angepasste Modellbewertung den überlappenden Teilsatz von 40 Patienten mit 13 Todesfällen verwendete. Da beide Analysen aus demselben Quellkollektiv abgeleitet wurden, sind die berichtete Verbesserung des C-Index (0,707 auf 0,829) und die Reduktion des AIC wahrscheinlich optimistisch. Es stand kein unabhängiges Überlebenskollektiv zur Verfügung, um den prognostischen Wert von PPARG extern zu validieren; GSE36001 wurde lediglich zur Validierung des Tumor-gegen-Normal-Expressionsprofils verwendet. Außerdem stellte der integrierte Hub-Score eine explorative interne Rangheuristik dar und kein validiertes prognostisches Instrument. Zweitens basierte die räumliche Transkriptomik-Analyse auf einer einzelnen SP_BS3-Probe; obwohl die Korrelationen statistisch signifikant waren, waren die Effektgrößen gering und erfordern Validierung an weiteren räumlichen Proben. Insbesondere wird die Erhöhung der Anzahl räumlicher Transkriptomik-Proben von unabhängigen Patienten entscheidend sein, um robustere Schätzungen dieser schwachen Assoziationen zu erhalten, und Studien an größeren räumlichen Kollektiven sind erforderlich. Die räumliche Transkriptomik liefert einen wertvollen in situ-molekularen Kontext, doch die Interpretation bleibt von der Plattformauflösung, der Probennahmestrategie, der Gewebequalität und den Entscheidungen zur rechnergestützten Integration beeinflusst43. Darüber hinaus stützte sich die räumliche Analyse auf ein vorgeverarbeitetes öffentliches Einzelzell-Objekt mit vereinfachten Annotationen sowie auf rechnergestützte Bewertung und Label-Transfer; angesichts der minimalen Effektgrößen unterstützten diese Daten beschreibende Aussagen zur Lokalisation, jedoch keine mechanistischen Schlussfolgerungen über vaskuläre Nischen oder Seneszenzprogramme. Drittens basierte die experimentelle Validierung auf der Osteosarkom-Zelllinie 143B und humanen Osteoblasten; zusätzliche Osteosarkom-Zelllinien und klinische Proben sind erforderlich, und eine Validierung an einer einzelnen Zelllinie kann keine Zelltyp-spezifische Aussage, klinische prognostische Relevanz oder Erkenntnisse zur Seneszenzbiologie belegen. Viertens zeigte diese Studie eine Assoziation, nicht jedoch Kausalität. Funktionelle Störungen von PPARG in Osteosarkomzellen und mikroumgebungsbezogenen Modellen werden notwendig sein, um festzustellen, ob PPARG direkt seneszenzassoziierte Programme, vaskuläre Nischen oder Tumorprogression reguliert. Fünftens wurde die Seneszenzassoziation über die Überschneidung mit dem CellAge-Gen-Set definiert, und PPARG zeigte keine Korrelation mit dem globalen CellAge-Seneszenz-Score in TARGET-OS. Außerdem wurden globale Tumor-gegen-Normal-Vergleiche nicht auf Tumorreinheit oder Zelltypzusammensetzung adjustiert, sodass die beobachtete Downregulation teilweise Unterschieden in der Zusammensetzung der Mikroumgebung geschuldet sein könnte und nicht zellintrinsischen Veränderungen maligner Zellen.
PPARG ist ein aus CellAge abgeleitetes Gen, dessen geringere Expression mit einem ungünstigen Gesamtüberleben in der TARGET-OS-Kohorte assoziiert ist. Die Herunterregulation von PPARG in vergleichenden Analysen von Bulk-Osteosarkomgeweben sowie die Anreicherung in vaskulären, myeloischen und stromalen Kompartimenten legen nahe, dass die PPARG-Spiegel im Bulk-Gewebe teilweise die Zusammensetzung der Mikroumgebung widerspiegeln könnten, anstatt der expressionseigenen Regulation in malignen Zellen zu entsprechen. Die Einzelzell- und räumlichen Befunde sind beschreibend, und der prognostische Zusammenhang wurde für das Überleben nicht unabhängig validiert und bedarf der Bestätigung in einer externen Kohorte mit Überlebensendpunkten. Diese Ergebnisse stellen PPARG als Kandidaten-Biomarker für die prognostische Beurteilung beim Osteosarkom und für die Forschung zu seneszenzbezogenen Mikroumgebungen in Aussicht, vorbehaltlich externer Validierung und funktioneller Studien. In der räumlichen Transkriptomik waren die Korrelationen zwischen PPARG und den seneszenzbezogenen oder vaskulären Nischen-Scores bezüglich ihrer Effektgröße schwach, obwohl sie aufgrund der großen Anzahl räumlicher Spots statistisch signifikant waren, und sollten daher vorsichtig interpretiert werden.
Offenlegungen
Die Autoren geben keine Wettbewerbsinteressen an.
AUTORENBEITRÄGE:
Yongwen Li und Wentao Qin haben die Studie konzipiert und entworfen. Yongwen Li führte die bioinformatischen und computergestützten Analysen durch. Tuo Liang führte die experimentelle Validierung durch. Rubiao Qiu und Zide Zhang leisteten Beiträge zur Abbildungserstellung. Rubiao Qiu und Zide Zhang leiteten die Studie und überarbeiteten den Artikel kritisch. Alle Autoren haben den Endentwurf des Manuskripts geprüft und genehmigt.
Danksagungen
Die Autoren danken den beteiligten Wissenschaftlern und Beiträgen der Projekte GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB und des menschlichen Osteosarkom-Single-Cell- und räumlichen Transkriptomatlas für die Bereitstellung öffentlich zugänglicher Datensätze und Ressourcen, die diese Studie ermöglichten. Diese Arbeit wurde von der Guangxi Natural Science Foundation (Nr. 2023GXNSFAA026111) unterstützt.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Primärantikörper gegen GAPDH | Proteintech Group, Wuhan, China | 10494-1-AP | Primärantikörper zur Detektion von GAPDH als Ladekontrolle in der Westernblot-Analyse; Verdünnung 1:5.000. |
| Primärantikörper gegen PPARG | Proteintech Group, Wuhan, China | 16643-1-AP | Primärantikörper zur Detektion des PPARG-Proteins mittels Westernblot; Verdünnung 1:1.000. |
| BCA-Proteinassay-Kit | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Farbmessverfahren zur Bestimmung der Gesamtproteinkonzentration vor der Elektrophorese. |
| DESeq2 | Bioconductor | Version 1.40.2 | R-Paket zur differentiellen Genexpressionsanalyse von zählbasierten transkriptomischen Daten. |
| Dulbeccos modifiziertes Eagle-Medium (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | Grundlegendes Kulturmedium zur Kultivierung von 143B-Osteosarkomzellen. |
| ECL-Detektionsreagenz | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Chemilumineszenter Substrat zur Detektion von HRP-konjugierten Antikörpern in der Westernblot-Analyse. |
| Fetales Kälberserum (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Serumzusatz, der dem Kulturmedium hinzugefügt wird, um Zellwachstum und -lebensfähigkeit zu unterstützen. |
| glmnet | CRAN | Version 4.1-8 | R-Paket zur penalisierten Regressionsanalyse, einschließlich LASSO- und Elastic-Net-Modellierung. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | Software zur statistischen Analyse, Erstellung von Grafiken und Visualisierung experimenteller Daten. |
| HRP-konjugierter sekundärer Antikörper | Proteintech Group, Wuhan, China | SA00001-2 | Sekundärantikörper, konjugiert mit Rettichperoxidase (HRP), zur Detektion in der Westernblot-Analyse; Verdünnung 1:5.000. |
| Menschliche Osteoblasten | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Primäre humane Osteoblasten, verwendet als nicht maligne Vergleichs- bzw. Kontrollzelllinie. |
| Menschliche Osteosarkom-143B-Zelllinie | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | Menschliche Osteosarkom-Zelllinie, verwendet für in-vitro-Validierungsversuche und molekulare Assays. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | Bildanalyse-Software zur quantitativen Auswertung experimenteller Bilder. |
| limma | Bioconductor | Version 3.56.2 | R-Paket zur differentiellen Expressionsanalyse und statistischen Tests basierend auf linearen Modellen. |
| Penicillin-Streptomycin | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Antibiotischer Zusatz im Zellkulturmedium zur Verringerung bakterieller Kontamination. |
| PPARG- und GAPDH-Primer | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Individuelle Synthese; Sequenzen sind in der Methodik angegeben | Individuell hergestellte Oligonukleotid-Primer zur qPCR-Analyse der Expression von PPARG und GAPDH. |
| PVDF-Membranen, 0.45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Membranen zur Proteinübertragung während der Westernblot-Analyse. |
| R-Statistiksoftware | R Foundation for Statistical Computing, Wien, Österreich | Version 4.3.2 | Statistische Rechenumgebung zur Durchführung bioinformatischer Analysen, Modellbildung und Visualisierung. |
| randomForestSRC | CRAN | Version 3.2.2 | R-Paket zur Modellierung mittels Random-Survival-Forest und zur Analyse der Merkmalswichtigkeit. |
| Reverse-Transkriptions-Kit | Beyotime Biotech Inc., Shanghai, China | D7168M | Wird zur Synthese von komplementärer DNA (cDNA) aus isolierter RNA vor der quantitativen PCR verwendet. |
| RIPA-Lysepuffer | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Puffer zur Proteinextraktion, verwendet zum Lyse von Zellen für die Westernblot-Analyse. |
| Seurat | Satija Laboratory | Version 5.0.1 | R-Paket zur Verarbeitung, Integration, Clusterung und Visualisierung von Einzelzell-RNA-Sequenzierungsdaten. |
| survival | CRAN | Version 3.5-7 | R-Paket zur Überlebenszeitanalyse, einschließlich Cox-Proportional-Hazards-Modellierung. |
| SYBR-Green-qPCR-Mastermix | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Fluoreszierender Mastermix zur quantitativen Echtzeit-PCR-Amplifikation. |
| timeROC | CRAN | Version 0.4 | R-Paket zur Erstellung zeitabhängiger ROC-Kurven und zur Berechnung der Vorhersagegenauigkeit über die Zeit. |
| TRIzol-Reagenz | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Reagenz zur Extraktion der Gesamt-RNA aus kultivierten Zellen. |
| Trypsin-EDTA, 0,25 % | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Zell-Dissociationsreagenz zur Passagierung und Gewinnung adhärenter Zellen. |
Referenzen
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.