Diese Studie untersucht die schützenden Wirkungen von Yangjing-Kapseln bei cyclophosphamidinduzierter Spermatogenesestörung bei Mäusen und prüft die Beteiligung des lncRNA NONMMUT031883.2/QKI-5/p38 MAPK-Signalwegs.
Ein Abonnement von JoVE ist erforderlich, um diesen Inhalt anzuzeigen. Melden Sie sich an oder beginnen Sie noch heute mit einer kostenlosen Testphase.
Forschungsartikel
Yangjing-Kapseln lindern die spermatogene Dysfunktion bei Mäusen durch Hemmung des QKI-5/p38-MAPK-Signalwegs mittels Hochregulierung der lncRNA NONMMUT031883.2
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Spermatogenese-Dysfunktion ist eine wichtige Ursache für männliche Unfruchtbarkeit, und Cyclophosphamid (CP) kann die Spermatogenese beeinträchtigen, indem es eine abnormale Apoptose der Spermatogonien induziert. Die Yangjing-Kapsel (YC) wird zur Verbesserung der Fortpflanzungsfunktion eingesetzt, doch ihr zugrundeliegender molekularer Wirkmechanismus ist bisher unklar. Diese Studie untersuchte die schützenden Effekte von YC in einem CP-induzierten Mausmodell der Spermatogenese-Dysfunktion sowie in GC-1-Spermatogonien. Die Spermienanzahl und -motilität, die männliche Fruchtbarkeit, die Konzentration der Sexualhormone im Serum sowie histopathologische Veränderungen in Hoden und Nebenhoden wurden analysiert. In GC-1-Zellen wurden Zellviabilität, Laktatdehydrogenase-Freisetzung, Apoptose und apoptosebezogene Proteine untersucht. Quantitative reversetranskriptive Polymerase-Kettenreaktion, RNA-Pull-down-Assays, Immunfluoreszenz und Western Blotting dienten der Untersuchung der lncRNA NONMMUT031883.2, Quaking-5 (QKI-5) und des p38-MAPK-Signalwegs (p38 mitogen-aktivierte Proteinkinase). YC verbesserte dosisabhängig die Spermienqualität, die Konzentration der Sexualhormone im Serum, die Morphologie der Fortpflanzungsorgane, die Hodenhistopathologie und die Fruchtbarkeit bei CP-behandelten Mäusen. In GC-1-Zellen erhöhte YC die Zellviabilität und verringerte zelluläre Schäden sowie die Apoptose. Die lncRNA NONMMUT031883.2 interagierte physikalisch mit QKI-5, und die Behandlung mit YC führte zu einer erhöhten Expression der lncRNA NONMMUT031883.2, während die Expression von QKI-5 und die Phosphorylierung von p38 abnahmen. Die Behandlung mit YC hemmte die durch Knockdown der lncRNA NONMMUT031883.2 induzierte Apoptose in GC-1-Zellen, während die Überexpression von QKI-5 die antiapoptotischen Effekte von YC abschwächte. Diese Ergebnisse deuten darauf hin, dass YC die CP-induzierte Spermatogenese-Dysfunktion lindert und dass ihre schützenden Wirkungen über die Regulation des Signalwegs lncRNA NONMMUT031883.2/QKI-5/p38 MAPK vermittelt werden.
Einleitung
Die Spermatogenesestörung bezeichnet eine reproduktive Beeinträchtigung, die durch Abnormalitäten in der Spermienproduktion, -reifung oder -funktion im männlichen Fortpflanzungssystem verursacht wird. Sie zeichnet sich durch eine verminderte Spermienanzahl und -beweglichkeit sowie eine erhöhte Rate an Spermienfehlbildungen aus.1,2Die Pathogenese einer gestörten Spermatogenese ist komplex und mit genetischen Faktoren, Autoimmunerkrankungen, Umweltgiften, durch Chemotherapie verursachten Schäden sowie Läsionen der Fortpflanzungsorgane assoziiert3-5. Chemotherapeutika wie Cyclophosphamid (CP) können direkt die Hoden-Seminiferustubuli schädigen und die Apoptose von Spermatogonien induzieren, wodurch sie zur männlichen Spermatogenesestörung beitragen6,7Hormonersatztherapie, antioxidative Supplementierung und assistierte Fortpflanzungstechnologien werden derzeit als klinische Interventionen eingesetzt. Diese Ansätze weisen jedoch eine uneinheitliche Wirksamkeit sowie erhebliche Nebenwirkungen auf.8,9,10Daher ist die Identifizierung sicherer und wirksamer Interventionen sowie die Aufklärung ihrer molekularen Zielstrukturen klinisch wichtig, um die Fruchtbarkeitsprognose bei Patienten mit einer gestörten Spermatogenese zu verbessern.
Die chinesische Kräutermedizin hat aufgrund ihrer multizielträchtigen Eigenschaften und relativ geringen Toxizität Potenzial beim Schutz der männlichen Fortpflanzungsfunktion und bei der Behandlung von spermatogenen Dysfunktionen gezeigt11,12. Die Yangjing-Kapsel (YC) ist ein traditionelles chinesisches Patentarzneimittel, das aus Rehmannia glutinosa, Epimedium, Plazenta, Polygonatum sibiricum, Angelica sinensis und anderen chinesischen Kräutermedizinen besteht. Es wird verwendet, um die Niere und das Wesen zu stärken, das Blut und das Mark zu nähren und die Fortpflanzungsfunktion zu regulieren13. Frühere Studien haben gezeigt, dass YC die Sexualhormonspiegel bei männlichen Tieren regulieren, die Spermienqualität verbessern, Schäden im Hodengewebe reparieren und vor reproduktiven Schäden durch chemische Substanzen schützen kann14,15. Spermatogoniale Zellen bilden die Grundlage der Spermatogenese, und eine abnormale Apoptose spermatogonialer Zellen ist ein zentraler Vorgang bei der Entstehung spermogener Dysfunktionen16. Berichten zufolge kann YC auch die Vitalität spermatogonialer Zellen verbessern, den Anteil der Zellen in der S-Phase erhöhen und die Apoptose hemmen17. Die schützenden Wirkungen und spezifischen molekularen Mechanismen von YC bei CP-induzierter spermogener Dysfunktion sind jedoch noch nicht vollständig geklärt.
Lange nichtkodierende RNAs (lncRNAs) sind RNA-Moleküle, die länger als 200 Nukleotide sind und keine Proteinkodierungsfähigkeit besitzen18. LncRNAs können die Genexpression durch Mechanismen wie chromosomale Stilllegung, Chromatinmodifikation, genomisches Imprinting und transkriptionelle Aktivierung regulieren19,20. Das RNA-bindende Protein Quaking-5 (QKI-5) ist an physiologischen und pathologischen Prozessen beteiligt, darunter Zellproliferation und Apoptose, indem es die alternative Spleißung nachgeschalteter Gene reguliert21. Der p38-Mitogen-aktivierte Proteinkinase-(MAPK)-Signalweg ist an der Regulation der Apoptose beteiligt und spielt zudem eine wichtige Rolle bei der männlichen Fertilität und der Hodenentwicklung22,23. Eine frühere Studie zeigte, dass die Überexpression von QKI-5 den p38-MAPK-Signalweg in hepatzellulären Karzinomzellen aktiviert24. Außerdem wurde gezeigt, dass das lncRNA NONMMUT074098.2 in Spermatogonien an QKI-5 bindet, während die Absenkung von QKI-5 den p38-MAPK-Signalweg hemmte und die Apoptose von Spermatogonien verringerte25. In dieser Studie wurde ein durch CP induziertes Mausmodell der spermatogenen Dysfunktion verwendet, um zu untersuchen, ob YC die Expression des lncRNA NONMMUT031883.2 sowie die QKI-5/p38-MAPK-Signalachse reguliert und dadurch eine abnormale Apoptose von Spermatogonien reduziert und die durch CP induzierte spermatogene Dysfunktion abschwächt (Abbildung 1). Ziel war es, den molekularen Mechanismus aufzuklären, der den schützenden Wirkungen von YC auf die Spermatogenese zugrunde liegt, und das Verständnis über seine pharmakologische Rolle beim Schutz der männlichen Fortpflanzungsfunktion zu erweitern.
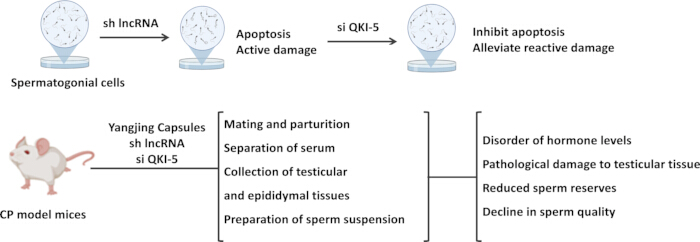
Abbildung 1: Schematische Darstellung des experimentellen Designs. Das obere Panel fasst die in vitro-Experimente in GC-1-Spermatogonienzellen zusammen. Die Herunterregulierung der lncRNA NONMMUT031883.2 wurde verwendet, um Apoptose und zelluläre Schäden hervorzurufen, gefolgt von der Herunterregulierung von QKI-5, um deren Auswirkungen auf Apoptose und Zellschädigung zu bewerten. Das untere Panel fasst die in vivo-Experimente in Mausmodellen mit durch Cyclophosphamid (CP) induzierter spermatogener Dysfunktion zusammen. Die Mäuse erhielten eine Behandlung mit Yangjing-Kapsel und/oder eine Intervention bezüglich der lncRNA NONMMUT031883.2 oder QKI-5. Anschließend wurden Fruchtbarkeit, Serumhormonspiegel, Hoden- und Nebenhoden-Gewebe, Spermensuspension, Spermienreserven, Spermienqualität und histopathologische Hodenschäden bewertet. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Protokoll
Alle Tierversuche wurden gemäß den ARRIVE-Richtlinien und dem Leitfaden der National Institutes of Health für die Pflege und Verwendung von Labortieren durchgeführt. Alle experimentellen Protokolle wurden vom Tierversuchsausschuss der Südostuniversität überprüft und genehmigt (Genehmigungsnummer 20230216022).
1. Herstellung des Yangjing-Capsules-haltigen Serums
Zwei Yangjing-Capsules (YC; 0,5 g/Kapsel) wurden geöffnet und 0,8 g des Kapselinhalts abgewogen. Normale Kochsalzlösung wurde bis zu einem Endvolumen von 10 mL zugegeben, und das Gemisch wurde gründlich verwirbelt, um eine 80 mg/mL Suspension herzustellen. Spezifisch pathogenfreie männliche BALB/c-Mäuse mit einem Gewicht von 22–25 g und einem Alter von 8 Wochen wurden bei 22 °C und einer Luftfeuchtigkeit von 55–60 % im 12-Stunden-Licht-/Dunkel-Wechsel gehalten, wobei Futter und Wasser ad libitum zur Verfügung standen. Nach einer Akklimatisierungsphase von einer Woche erhielten die Mäuse YC mittels oraler Gavage in einer Dosis von 800 mg/kg Körpergewicht in einem Volumen von 10 mL/kg einmal täglich über 5 aufeinanderfolgende Tage. Zwei Stunden nach der letzten Gabe wurden die Mäuse mit 1 %igem Natriumpentobarbital intraperitoneal anästhesiert, und Blutproben wurden entnommen, um das YC-haltige Serum herzustellen. Das Serum wurde 30 Minuten bei 56 °C inaktiviert, durch eine 0,22 µm-Membran filtriert und bis zur Verwendung bei −80 °C gelagert.
2. Zellkultur und Transfektion
Maus-GC-1-Spermatogonialzellen wurden in DMEM mit 1 % Penicillin-Streptomycin und 10 % fetalem Kälberserum kultiviert. Alle Kulturen wurden bei 37 °C in einer Atmosphäre mit 5 % CO₂ (V/V) gehalten.
LncRNA-spezifische kurze Haarnadel-RNA (sh-lncRNA), ein QKI-5-Überexpression-Plasmid (OE-QKI-5), QKI-5-spezifische kleine interferierende RNA (si-QKI-5) sowie deren entsprechende negative Kontrollen (sh-NC, OE-NC und si-NC) wurden synthetisiert und konstruiert. GC-1-Zellen wurden gemäß den Anweisungen des Transfektionsreagenzes mit sh-lncRNA oder sh-NC, si-QKI-5 oder si-NC bzw. OE-QKI-5 oder OE-NC transfiziert. Nach einer Inkubation von 48 h wurde die Transfektionseffizienz durch die Messung der Expression der lncRNA NONMMUT031883.2 oder von QKI-5 überprüft.
Für die Gruppe sh-lncRNA + si-QKI-5 + Etoposid wurden GC-1-Zellen mit sh-lncRNA und si-QKI-5 transfiziert und anschließend 12 h lang mit 100 µM Etoposid behandelt26. Für nachfolgende Zellviabilitätsassays wurden GC-1-Zellen in Medium kultiviert, das mit 5 %, 10 % oder 20 % YC-haltigem Serum ergänzt war, und als Gruppen mit niedriger Dosis YC (L-YC), mittlerer Dosis YC (M-YC) bzw. hoher Dosis YC (H-YC) bezeichnet. Die Konzentrationen von YC-haltigem Serum (5 %, 10 % und 20 % YC) wurden basierend auf den Ergebnissen vorläufiger Konzentrationsgradientenexperimente festgelegt. Für die Gruppen sh-lncRNA + H-YC + OE-NC und sh-lncRNA + H-YC + OE-QKI-5 wurden GC-1-Zellen 48 h lang mit sh-lncRNA plus OE-NC oder sh-lncRNA plus OE-QKI-5 transfiziert und anschließend 24 h lang 20 %igem YC-haltigem Serum ausgesetzt.
3. Cell Counting Kit-8-Assay
GC-1-Zellen wurden in 96-Loch-Platten mit jeweils 5 × 10³ Zellen/Loch ausgesät und 24 h kultiviert. Nach der Zellanheftung wurde das ursprüngliche Medium durch 100 µL komplettes Medium ergänzt durch YC-haltiges Serum ersetzt, und die Zellen wurden 6, 12 oder 24 h inkubiert. Nach der Inkubation wurden 10 µL Cell Counting Kit-8-Reagenz zu jedem Loch hinzugefügt, und die Zellen wurden 2 h bei 37 °C im Dunkeln inkubiert. Die Absorption bei 450 nm wurde mit einem Mikroplatten-Reader gemessen.
4. Lactatdehydrogenase-Assay
Nach der Transfektion mit sh-NC oder sh-lncRNA für 48 h wurde das Kulturmedium der GC-1-Zellen gesammelt und das Supernatant durch Zentrifugation gewonnen. Gemäß den Anweisungen des Lactatdehydrogenase-Assay-Kits wurde das Supernatant vorsichtig mit der Detektionsarbeitslösung vermischt und in eine 96-Well-Platte überführt. Die Platte wurde 30 min bei 25 °C im Dunkeln inkubiert. Die Absorption bei 490 nm wurde mithilfe eines Mikroplattenlesegeräts gemessen, und die Freisetzung von Lactatdehydrogenase wurde zur Beurteilung von Zellschäden berechnet.
5. Calcein-AM/Propidiumiodid-Färbung
Nach einer Transfektion mit sh-NC oder sh-lncRNA für 48 h wurde die Überlebensfähigkeit der GC-1-Zellen mittels Calcein-AM/Propidiumiodid (PI)-Färbung bewertet. Die Zellen wurden in 12-Loch-Platten mit jeweils 5 × 10⁴ Zellen pro Loch ausgesät und solange kultiviert, bis sie eine Konfluenz von 60–70 % erreichten. Die Zellen wurden vorsichtig mit phosphatgepufferter Salzlösung gespült und anschließend mit 500 µL Calcein-AM/PI-Färbelösung pro Loch versetzt. Die Probe wurde 30 min bei 37 °C im Dunkeln inkubiert und danach unter einem Fluoreszenzmikroskop untersucht. Lebende und tote Zellen wurden mithilfe einer Bildanalyse-Software gezählt, und der Anteil überlebender Zellen wurde berechnet.
6. Durchflusszytometrie
GC-1-Zellen wurden durch Zentrifugation gesammelt und vorsichtig mit phosphatgepufferter Kochsalzlösung gespült. Das Zellpellet wurde in 500 µL Bindungspuffer bei einer Dichte von 5 × 10⁵ Zellen/mL resuspendiert. Anschließend wurden jeweils 5 µL Annexin V-APC und PI zugegeben, die Suspension gründlich gemischt und 10 Minuten bei 25 °C im Dunkeln inkubiert. Die Apoptose wurde mittels Durchflusszytometrie analysiert, wobei die Anregungs-/Emissionswellenlängen 633/660 nm für APC und 488/630 nm für PI verwendet wurden. Die Apoptoserate wurde mit einer Software zur Analyse von Durchflusszytometriedaten bewertet.
7. Caspase-3-Aktivitäts-Assay
Nach den angegebenen Behandlungen wurden etwa 1 × 10⁶ GC-1-Zellen gesammelt, gewaschen und in phosphatgepufferter Salzlösung resuspendiert. Die Zellen wurden mit 100 µL Reagenz II aus dem Caspase-3-Aktivitäts-Assay-Kit gemischt und 15 min auf Eis lysiert. Nach der Zentrifugation wurden 50 µL des Überstandes der Zelllyse gesammelt und mit 40 µL Reagenz I sowie 10 µL Reagenz III vermischt. Die Mischung wurde 2 h bei 37 °C inkubiert. Die Absorption bei 405 nm wurde mit einem Mikroplatten-Reader gemessen, und die Caspase-3-Aktivität wurde gemäß den Anweisungen des Herstellers bewertet.
8. RNA-Pull-down-Assay
Die Sinus- und Antisinnusstränge der lncRNA NONMMUT031883.2 wurden entsprechend der zugehörigen Sequenz synthetisiert und mit Biotin markiert. Die Zellen wurden 30 min auf Eis in einem Immunpräzipitations-Puffer zum Aufschluss von Zellen lysiert, und der proteinhaltige Überstand wurde durch Zentrifugation gewonnen. Streptavidin-Magnetkügelchen wurden dreimal mit RNA-Bindungspuffer gewaschen und anschließend 30 min in Bindungspuffer mit 1 % Rinderserumalbumin inkubiert.
Die vorbehandelten Kügelchen wurden mit den biotinmarkierten Sonden kombiniert und bei 25 °C für 30 min inkubiert. Ungebundene Sonden wurden durch magnetische Trennung entfernt. Anschließend wurde der Zelllysat-Überstand hinzugegeben und die Mischung bei 4 °C für 4 h inkubiert, um magnetische Kügelchen-RNA-Protein-Komplexe zu bilden. Die magnetischen Kügelchen wurden dreimal mit Waschpuffer gewaschen, um unspezifisch gebundene Proteine zu entfernen. Der Waschpuffer wurde durch magnetische Trennung entfernt und 2× SDS-Probelade-Puffer hinzugefügt. Die Proben wurden bei 95 °C für 10 min erhitzt und der Überstand durch magnetische Trennung für die nachfolgende Western-Blot-Analyse gesammelt.
9. Erstellung eines Mausmodells für eine gestörte Spermatogenese
Nach einer Eingewöhnungsphase von 5 Tagen erhielten spezifisch pathogenfreie männliche BALB/c-Mäuse mit einem Gewicht von 22–25 g und einem Alter von 8 Wochen über 7 Tage hinweg einmal täglich Cyclophosphamid (CP) in einer Dosis von 50 mg/kg intraperitoneal, um ein Modell für eine gestörte Spermatogenese zu etablieren14,27. Die erfolgreich modellierten Mäuse wurden mithilfe einer Zufallszahltabelle den folgenden Gruppen zufällig zugewiesen: CP, 200 mg/kg YC, 400 mg/kg YC, 800 mg/kg YC, 800 mg/kg YC + sh-NC und 800 mg/kg YC + sh-lncRNA, jeweils mit sechs Mäusen pro Gruppe.
Mäusen in den mit YC behandelten Gruppen wurde einmal täglich über einen Zeitraum von 30 Tagen die entsprechende Dosis YC mittels oraler Gavage verabreicht13. Bei den Gruppen 800 mg/kg YC + sh-NC und 800 mg/kg YC + sh-lncRNA wurden nach erfolgreicher Modellerstellung die Tiere durch Inhalation von 2 % Isofluran narkotisiert. Nachdem sichergestellt war, dass kein Zehefortzugsreflex mehr auftrat und die Atemfrequenz stabil war, wurde die Operationsstelle rasiert und mit Povidon-Iodid desinfiziert. Unter aseptischen Bedingungen erfolgte ein medianer ventraler Haut- und Bauchwandanschnitt vor der Genitalregion. Der Hoden wurde durch vorsichtiges Zurückziehen des Nebenhodenfettgewebes freigelegt, wobei darauf geachtet wurde, keine Gefäße zu verletzen. Mithilfe eines Mikromanipulators wurden die Samenkanälchen sichtbar gemacht, und 1 µL der Adenovirus-Suspension (1 × 10¹⁰ TU/mL) wurden langsam mittels einer Mikroinjektionsnadel injiziert28. Die Nadel blieb nach der Injektion 5 Minuten lang an Ort und Stelle, bevor sie langsam zurückgezogen wurde; die Blutstillung erfolgte mit einem sterilen Wattestäbchen. Der gleiche Vorgang wurde anschließend am kontralateralen Hoden durchgeführt. Der Schnitt wurde anschließend vernäht, und die Tiere durften postoperativ auf einer Wärmematte aus der Narkose aufwachen. Kontrolltiere erhielten täglich eine isovolumetrische Menge an Kochsalzlösung per Gavage sowie Injektion.
10. Beurteilung der Fruchtbarkeit
Nach Abschluss der Medikamentengabe wurden männliche Mäuse jeder Gruppe für 7 Tage im Verhältnis 1:2 mit weiblichen BALB/c-Mäusen frei verpaart. Die Bildung von Vaginalpfropfen bei den weiblichen Mäusen wurde täglich überwacht und dokumentiert. Nach Bestätigung einer erfolgreichen Paarung wurden die männlichen Mäuse entfernt, und die weiblichen Mäuse wurden einzeln bis zur natürlichen Geburt gehalten. Pro Gruppe wurden neun trächtige weibliche Mäuse erhalten und in die Analyse eingeschlossen. Die durchschnittliche Wurfgröße wurde erfasst, um die Fruchtbarkeit der männlichen Mäuse in jeder Gruppe zu bewerten.
Am Ende der Versuchszeit wurden die Mäuse durch intraperitoneale Verabreichung von Pentobarbital-Natrium (100 mg/kg) euthanasiert. Diese Methode der Euthanasie wurde vom Tierversuchsausschuss der Southeast University genehmigt (Genehmigungsnummer 20230216022). Die Hoden und Nebenhoden wurden sorgfältig präpariert, fotografiert und gewogen. Die Hoden- und Nebenhoden-Indizes wurden als Organmasse/Körpermasse berechnet. Von jedem Tier wurde ein Nebenhoden entnommen, in Stücke geschnitten, in 1 mL vorgewärmtes phosphatgepuffertes Kochsalzlösung (37 °C) gegeben und 20 Minuten lang inkubiert, um das Ausschwimmen der Spermien zu ermöglichen29. Die Spermien-Suspension wurde vorsichtig gemischt, und 10 µL der Suspension wurden auf eine vorgewärmte Blutkörperchen-Zählkammer gegeben. Die Spermienzahl wurde manuell unter dem Lichtmikroskop bei 200×-Vergrößerung bestimmt, und die Ergebnisse wurden als 106/L angegeben. Außerdem wurde der Anteil der progressiv beweglichen Spermatozoen im Verhältnis zur Gesamtanzahl der Spermatozoen als Spermienmotilität berechnet13.
11. Bestimmung der Sexualhormonspiegel
Blut wurde aus der Orbitavene von Mäusen jeder Gruppe entnommen und bei 25 °C 30 min lang stehen gelassen. Das Serum wurde durch Zentrifugation bei 3.000 × g für 10 min gewonnen30. Die Konzentrationen von Testosteron, luteinisierendem Hormon (LH) und follikelstimulierendem Hormon (FSH) im Serum wurden mithilfe der entsprechenden ELISA-Testsätze bestimmt.
12. RNA-Stabilitäts-Assay
GC-1-Zellen wurden in 96-Well-Kulturplatten ausgesät, mit si-QKI-5 oder si-NC transfiziert und 48 h kultiviert. Anschließend wurde Actinomycin D in einer Konzentration von 5 µg/mL zugegeben, und die Zellen wurden nach 0, 3, 6 und 9 h gesammelt. Gesamt-RNA wurde isoliert, und die relative Expression von lncRNA NONMMUT031883.2 wurde mittels quantitativer reverser Transkription-Polymerase-Kettenreaktion nach reverser Transkription bestimmt. Die relative RNA-Menge zu jedem Zeitpunkt wurde unter Verwendung des Expressionsspiegels zum Zeitpunkt 0 h als 100 % berechnet.
13. Quantitative Reverse-Transkriptions-Polymerase-Kettenreaktion
GC-1-Zellen und murine Hodengewebe wurden mit phosphatgepufferter Kochsalzlösung gewaschen und zur Isolierung der Gesamt-RNA lysiert. Die komplementäre DNA wurde mittels reverser Transkription unter Verwendung von AMV-Reverser Transkriptase synthetisiert. Die Polymerase-Kettenreaktion wurde unter Verwendung eines Echtzeit-PCR-Systems und eines quantitativen PCR-Kits durchgeführt, wobei die komplementäre DNA als Amplifikationsvorlage diente. U6 wurde als interne Referenz für die lncRNA NONMMUT031883.2 verwendet, und GAPDH wurde als interner Referenzwert für QKI-5. Die relative Expression der Zielgene wurde unter Verwendung des 2−ΔΔCt Methode25RNA wurde außerdem separat aus den zytoplasmatischen und nukleären Fraktionen isoliert, um die subzelluläre Lokalisation der lncRNA NONMMUT031883.2 zu bestimmen. Die Primersequenzen sind angegeben in Tabelle 1.
| Gen | Forward-Primer (5' zu 3') | Reverse-Primer (5' zu 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| U6 RNA | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Tabelle 1: Primersequenzen für die quantitative reverse Transkription-Polymerase-Kettenreaktion. Vorwärts- und Rückwärts-Primersequenzen sind in 5′–3′-Richtung für die lncRNA NONMMUT031883.2, QKI-5, U6 und GAPDH aufgeführt.
14. Hämatoxylin- und Eosin-Färbung
Mäusetesticular- und Nebenhoden-Gewebe wurden in 4% Paraformaldehyd eingetaucht und bei 4 °C 24 h lang fixiert. Nach dem Spülen mit phosphatgepufferter Salzlösung wurden die Gewebe durch eine abgestufte Ethanolreihe dehydriert, in Paraffin eingebettet und in 5 µm dicken Schnitten geschnitten. Die Schnitte wurden 60 min bei 60 °C erhitzt und 30 min in Xylol entwachst.
Nach der Hydratation durch eine abgestufte Ethanolreihe wurden die Schnitte 5 min mit Hämatoxylin angefärbt, 10 s lang mit einer Salzsäure-Ethanol-Differenzierungslösung behandelt, mit Leitungswasser zum Bläuen gewaschen und anschließend 2 min mit 1 % Eosin gefärbt. Danach wurden die Schnitte in 95 %igem Ethanol und absolutem Ethanol dehydriert und 30 min in Xylol geklärt. Nach dem Lufttrocknen wurden die Schnitte mit neutraler Gummi eingedeckt. Morphologische Veränderungen in Hoden und Nebenhoden wurden unter dem Mikroskop untersucht.
15. Immunfluoreszenz
Paraffinschnitte von Maustestes wurden deparaffiniert und über eine abgestufte Ethanolreihe rehydriert, gefolgt von einer antigenen Retrieval-Behandlung im Zitratpuffer bei pH 6,0 mittels Mikrowelle. Nach dem natürlichen Abkühlen auf Raumtemperatur wurden die Schnitte 10 Minuten lang mit 0,3 % Triton X-100 behandelt. Die Schnitte wurden mit 5 % bovinem Serumalbumin bei 25 °C für 60 Minuten blockiert, mit phosphatgepufferter Kochsalzlösung gespült und anschließend über Nacht bei 4 °C mit einem primären Antikörper gegen Ki67 inkubiert. Am folgenden Tag wurde ein fluorochrom-markierter sekundärer Immunglobulin-G-Antikörper aufgetragen, und die Schnitte wurden 60 Minuten lang bei 37 °C im Dunkeln inkubiert. Nach dem Spülen mit phosphatgepufferter Kochsalzlösung wurden die Schnitte 10 Minuten lang mit DAPI kontrastgefärbt und unter einem Fluoreszenzmikroskop untersucht. Die Fluoreszenzintensität wurde mithilfe einer Bildanalyse-Software ausgewertet.
Für die Immunfluoreszenzfärbung von GC-1-Zellen wurden die Zellen in 12-Loch-Platten mit 1 × 10⁵ Zellen/Loch ausgesät und 24 h inkubiert. Die Zellen wurden 30 min mit 4 % Paraformaldehyd fixiert, 10 min mit 0,3 % Triton X-100 permeabilisiert, mit 5 % Rinderserumalbumin blockiert und anschließend über Nacht bei 4 °C mit einem primären Antikörper gegen QKI-5 inkubiert. Der weitere Verfahrensschritt wurde wie für die Hodengewebeschnitte beschrieben durchgeführt.
16. TUNEL-Färbung
Paraffinschnitte von Maustestes wurden entparaffiniert, durch eine abgestufte Ethanolreihe rehydriert und zur Erhöhung der Zellmembranpermeabilität 5 min mit 0,1 %iger Triton X-100-Lösung inkubiert. Anschließend wurde die Arbeitslösung von Proteinase K (20 µg/mL) ohne DNase gleichmäßig auf die Schnitte aufgetragen und 15 min bei 37 °C inkubiert. Die TUNEL-Nachweislösung wurde hinzugefügt, und die Schnitte wurden 90 min bei 37 °C im Dunkeln inkubiert. Nach einer 10-minütigen Inkubation mit DAPI wurde ein Antifade-Montierungsmittel aufgetragen, und das Hodengewebe wurde im Fluoreszenzmikroskop untersucht.
GC-1-Zellen wurden in 12-Loch-Platten ausgesät und 30 min mit 4 % Paraformaldehyd fixiert. Nach Permeabilisierung mit 0,1 % Triton X-100 für 5 min wurde die TUNEL-Nachweislösung auf die Zellen aufgetragen und anschließend 60 min im Dunkeln inkubiert. Danach wurden die Zellen 10 min mit DAPI angefärbt und unter einem Fluoreszenzmikroskop untersucht.
17. Western-Blot
Mäusetesticumgewebe und GC-1-Zellen wurden 30 min auf Eis in einem Zelllysepuffer für die Immunpräzipitation lysiert und durch Ultraschall zerkleinert. Nach Zentrifugation wurde der proteinhaltige Überstand gesammelt, und die Protein-Konzentration wurde mit einem Bicinchoninsäure-Assay-Kit bestimmt. Der Protein-Überstand wurde mit SDS-Lade-Puffer versetzt und 10 min im siedenden Wasser erhitzt. Nach Trennung mittels Gelelektrophorese wurden die Proteine auf Polyvinylidenfluorid-Membranen übertragen und 2 h mit 5 % Rinderserumalbumin blockiert31.
Die Membranen wurden über Nacht bei 4 °C mit primären Antikörpern gegen gespaltene Caspase-3 (1:500), Bcl-2 (1:1000), Caspase-3 (1:2000), Bax (1:500), QKI-5 (1:1000), phosphoryliertes p38 (1:1000) oder p38 (1:500) inkubiert. Am folgenden Tag wurden die Membranen mit Tris-gepufferter Salzlösung mit Tween 20 gespült und anschließend 2 h bei 25 °C mit einem Ziegen-Anti-Kaninchen-IgG in einer Verdünnung von 1:10000 inkubiert. Die Arbeitslösung für die verbesserte Chemilumineszenz wurde auf die Membranoberfläche aufgetragen, und die Proteinbänder wurden mit einem Gel-Imaging-System aufgenommen. Die Bandenintensität wurde mithilfe einer Bildanalyse-Software ausgewertet, und die relative Proteinausprägung wurde auf GAPDH (1:3000) normalisiert.
Cycloheximid in einer Konzentration von 50 µg/mL wurde verwendet, um die Proteinsynthese zu hemmen. Um die Halbwertszeit von QKI-5 zu bestimmen, wurden Zellen nach 0, 3, 6 und 9 h gesammelt, und die Proteinspiegel von QKI-5 wurden anschließend mittels Western-Blotting bestimmt25.
18. Statistische Analyse
Alle Daten wurden statistisch analysiert und mithilfe von Statistik-, Grafik- und Bildanalyse-Software dargestellt. Zur Beurteilung der Daten-Normalverteilung wurde der Shapiro-Wilk-Test verwendet. Die experimentellen Daten werden als Mittelwert ± Standardabweichung angegeben. Zur Bewertung der Unterschiede zwischen den Gruppen wurde eine einfaktorielle Varianzanalyse (ANOVA) durchgeführt. Bei homogener Varianz kamen für die post-hoc paarweisen Vergleiche der LSD-t-Test zum Einsatz, bei heterogener Varianz hingegen der Dunnett’s-T3-Test. Ein p-Wert von p < 0,05 wurde als statistisch signifikant angesehen.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Ergebnisse
Die Herunterregulierung des lncRNA NONMMUT031883.2 induziert die Apoptose von Spermatogonien
GC-1-Zellen wurden mit sh-lncRNA transfiziert, um die Expression der lncRNA NONMMUT031883.2 herunterzuregulieren. Im Vergleich zu mit sh-NC transfizierten Zellen war das transkriptionelle Niveau der lncRNA NONMMUT031883.2 nach Transfektion mit sh-lncRNA deutlich verringert, was eine erfolgreiche Herunterregulierung bestätigt (Abbildung 2A). Nach der Herunterregulierung der lncR...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Diskussion
Die chemotherapieinduzierte erworbene Spermatogenesestörung ist eine wichtige Ursache für männliche Unfruchtbarkeit32,33,34. Die spezifischen molekularen Mechanismen sind jedoch noch nicht vollständig verstanden. Die Ergebnisse dieser Studie zeigen, dass die Yangjing-Kapsel (YC) dosisabhängig die durch Cyclophosphamid (CP) verursachten Störungen der Sexualhormone, die histopathologischen Schädigungen des Hodens sowie die eingesc...
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Offenlegungen
Die Autoren geben keine finanziellen oder nichtfinanziellen Interessenkonflikte an.
Danksagungen
Diese Arbeit wurde durch die Nationale Natürliche Wissenschaftsstiftung Chinas (Förderkennzeichen Nr. 82374257), das Vierte Programm zur Förderung des Spitzenakademischen Nachwuchses des Provinzialklinikums für Chinesische Medizin in Jiangsu (Förderkennzeichen Nr. k2026yrc74) und die Forschungsprojekte zur Traditionellen Chinesischen Medizin sowie zur Integrierten Chinesisch-Westlichen Medizin der Provinz Jiangsu (Förderkennzeichen Nr. CYTF2026019) unterstützt.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| Actinomycin D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | Transkriptionsinhibitor zur Bestimmung der RNA-Stabilität |
| AMV-Reversetranskriptase | Takara, Tokyo, Japan | 2621 | Enzym zur komplementären DNA-Synthese |
| Annexin V-APC/PI-Detektionskit | BioLab Technology, Beijing, China | KFS191 | Kit zur Durchflusszytometrie-Analyse der Apoptose |
| Antifade-Einbettmedium | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Einbettmedium zum Erhalt der Fluoreszenz |
| Primärantikörper gegen Bax | Affinity Biosciences, OH, USA | AF0120 | Primärantikörper zum Nachweis von Bax |
| BCA-Kit | Macklin, Shanghai, China | B917925 | Kit zur Bestimmung der Proteinkonzentration |
| Primärantikörper gegen Bcl-2 | Affinity Biosciences, OH, USA | AF0769 | Primärantikörper zum Nachweis von Bcl-2 |
| Rinderserumalbumin | BioLab Technology, Beijing, China | BTN131070 | Blockierendes Reagenz |
| Calcein/PI-Detektionskit | Beyotime, Shanghai, China | C2015M | Kit zur Färbung von lebenden und toten Zellen |
| Caspase-3-Aktivitäts-Assay-Kit | BioLab Technology, Beijing, China | QN2866 | Kit zur Messung der Caspase-3-Aktivität |
| Primärantikörper gegen Caspase-3 | Abcam, MA, USA | ab184787 | Primärantikörper zum Nachweis von Caspase-3 |
| CCK-8-Reagenz | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Reagenz zur Beurteilung der Zellviabilität |
| Primärantikörper gegen gespaltene Caspase-3 | Abcam, MA, USA | ab32042 | Primärantikörper zum Nachweis von gespaltener Caspase-3 |
| Cycloheximid | Macklin, Shanghai, China | H823111 | Inhibitor der Proteinsynthese zur Bestimmung der Protein-Stabilität |
| Cyclophosphamid | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Wird zur Induktion einer Spermatogenese-Störung verwendet |
| DAPI-Reagenz | Beyotime, Shanghai, China | C1006 | Kerngegenfärbung |
| DMEM-Medium | Wuhan Sunncell Biotechnology, Hubei, China | SNLM-302 | Zellkulturmedium für GC-1-Zellen |
| ECL-Arbeitslösung | Solarbio, Beijing, China | SW2030 | Chemilumineszenter Substrat zur Detektion von Proteinbändern |
| Etoposid | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Apoptose-induzierendes Agens |
| Durchflusszytometer | BD Biosciences, CA, USA | BD FACSCalibur | Gerät zur Analyse der Apoptose |
| FlowJo-Software | BD Biosciences, CA, USA | v10.8 | Software zur Analyse von Durchflusszytometriedaten |
| Fluoreszenzmikroskop | Leica, Heidelberg, Deutschland | DM3000 | Gerät zur Fluoreszenzbildgebung |
| Fluoreszenzmarkierter sekundärer Antikörper IgG | Servicebio, Wuhan, China | GB22303 | Sekundärantikörper für die Immunfluoreszenzdetektion |
| ELISA-Kit für follikelstimulierendes Hormon | Huamei Biotech, Wuhan, China | CSB-E06871m | Kit zur Bestimmung des serumseitigen follikelstimulierenden Hormons |
| Primärantikörper gegen GAPDH | Affinity Biosciences, OH, USA | T0004 | Ladekontroll-Antikörper für das Western Blotting |
| GC-1-Zellen | Wuhan Sunncell Biotechnology, Hubei, China | SNL-302 | Maus-Spermatogonialzelllinie |
| Gelbildgebungssystem | Jinpeng Analysis Instrument, Shanghai, China | JP-2880 | Bildgebungssystem zur Visualisierung von Gelelektrophorese und Blots |
| Gelbildgebungssystem | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | Chemilumineszenz-Bildgebungssystem für Western Blots |
| Ziegen-Anti-Kanin-IgG | Servicebio, Wuhan, China | GB23303 | Sekundärantikörper für das Western Blotting |
| Hämatoxylinlösung | BioLab Technology, Beijing, China | YT165 | Kernfärbung für die histologische Analyse |
| Chlorsäurehaltige Ethanol-Differenzierungslösung | Beyotime, Shanghai, China | C0163S | Differenzierungsreagenz für die Hämatoxylinfärbung |
| ImageJ-Software | National Institutes of Health, USA | 1.54h | Software zur Bildquantifizierung |
| IP-Zelllysepuffer | Beyotime, Shanghai, China | P0013 | Lösepuffer für die Immunpräzipitation und Proteinextraktion |
| Primärantikörper gegen Ki67 | Affinity Biosciences, OH, USA | AF0198 | Primärantikörper zum Nachweis von Ki67 |
| LDH-Zytotoxizitäts-Assay-Kit | Beyotime, Shanghai, China | C0016 | Kit zur Messung der Freisetzung von Laktatdehydrogenase und zellulärer Schädigung |
| Lichtmikroskop | Olympus, Tokyo, Japan | CKX53 | Wird zur Spermienzählung und morphologischen Beobachtung verwendet |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | Transfektionsreagenz |
| Mikroplattenreader | Molecular Devices, CA, USA | SpectraMax Mini | Gerät zur Messung der Absorption |
| ELISA-Kit für Maus-LH | Huamei Biotech, Wuhan, China | CSB-E12770m | Kit zur Bestimmung des serumseitigen luteinisierenden Hormons bei der Maus |
| ELISA-Kit für Maus-Testosteron | Huamei Biotech, Wuhan, China | CSB-E05101m | Kit zur Bestimmung des serumseitigen Testosterons bei der Maus |
| Neutraler Gummibalsam | BioLab Technology, Beijing, China | QN1253 | Einbettmedium für histologische Schnitte |
| Primärantikörper gegen p38 | Affinity Biosciences, OH, USA | AF6456 | Primärantikörper zum Nachweis von gesamtem p38 |
| Paraformaldehyd | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Konservierungsmittel für Zellen und Gewebe |
| PARIS-Kit | Invitrogen, Carlsbad, CA, USA | AM1921 | Kit zur Fraktionierung von nukleärer und zytoplasmatischer RNA |
| PCR-System | ABI, CA, USA | ABI PRISM 7300 | Realtime-PCR-Gerät |
| Primärantikörper gegen p-p38 | Affinity Biosciences, OH, USA | AF3455 | Primärantikörper zum Nachweis von phosphoryliertem p38 |
| Proteinase-K-Lösung | Beyotime, Shanghai, China | ST532 | Reagenz zur Gewebedurchlässigmachung vor der TUNEL-Färbung |
| PVDF-Membranen | Millipore, MA, USA | ISEQ00010 | Membranen für den Proteinauftrag beim Western Blotting |
| Primärantikörper gegen QKI-5 | Abcam, MA, USA | ab126742 | Primärantikörper zum Nachweis von QKI-5 |
| RNA-Bindepuffer | Invitrogen, Carlsbad, CA, USA | 65040D | Puffer für RNA-Protein-Bindungsreaktionen |
| SDS-Ladepuffer | Beyotime, Shanghai, China | P0286 | Ladepuffer für SDS-PAGE |
| Streptavidin-Magnetbeads | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Magnetische Beads zur Anreicherung biotinmarkierter RNA-Sonden |
| TB Green FAST qPCR-Kit | Takara, Tokyo, Japan | CN830S | Reagenzkit für quantitative PCR |
| Triton X-100 | Macklin, Shanghai, China | T824275 | Permeabilisierungsreagenz |
| TRIzol-Reagenz | Invitrogen, Carlsbad, CA, USA | 15596018CN | Reagenz zur Gesamt-RNA-Extraktion |
| TUNEL-Detektionslösung | Beyotime, Shanghai, China | C1086 | Reagenz zum Nachweis von DNA-Fragmentierung |
| Xylol | Macklin, Shanghai, China | X821391 | Reagenz zur Entfernung von Paraffin und Gewebedurchsichtigung |
Referenzen
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Zugriff eingeschränkt. Bitte melden Sie sich an oder starten Sie eine Testversion, um diesen Inhalt anzuzeigen.