Diese Studie zeigt, dass miR-1298 eng mit Invasion und Migration beim kolorektalen Karzinom (CRC) assoziiert ist und als Tumorsuppressor wirken könnte, indem es den Fortschritt des CRC hemmt, was sein Potenzial als neuartiges therapeutisches Ziel für die Behandlung des kolorektalen Karzinoms unterstreicht.
Forschungsartikel
Rolle der miR-1298/Bone Morphogenetic Protein 7-Achse beim kolorektalen Karzinom
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Die Inzidenz von kolorektalem Karzinom (CRC) ist in den letzten Jahren gestiegen. Wir untersuchten die klinische Bedeutung und molekularen Mechanismen von miR-1298 bei CRC. Insgesamt wurden 85 Patienten mit CRC eingeschlossen. Alle Genexpressionsspiegel wurden mittels RT-qPCR bestimmt. In CRC-Zellen wurden die Spiegel von miR-1298 und dem Knochen-Morphogenese-Protein 7 (BMP7) durch Zelltransfektion reguliert. Das Zielgen von miR-1298 wurde mittels bioinformatischer Analyse vorhergesagt und mit dem Dual-Luciferase-Reportersystem identifiziert. Die Funktion von CRC-Zellen wurde mittels CCK-8-Assay, Transwell-Assay und Durchflusszytometrie bewertet. Die Korrelation zwischen miR-1298 und BMP7 in CRC-Geweben wurde mittels Pearsons Korrelationsanalyse untersucht. miR-1298 war bei CRC deutlich herunterreguliert und mit malignen klinisch-pathologischen Merkmalen assoziiert. In CRC-Zellen hemmte miR-1298 Proliferation, Migration und Invasion und steigerte die Apoptose. BMP7 war ein downstream-Ziel von miR-1298 und negativ mit miR-1298 korreliert. Die Überexpression von BMP7 kehrte den hemmenden Effekt von miR-1298 auf Proliferation, Migration und Invasion in CRC-Zellen sowie dessen pro-apoptotische Wirkung teilweise um. miR-1298 stand in Zusammenhang mit Invasion und Migration und könnte das Fortschreiten von CRC unterdrücken. BMP7 könnte ein potenzieller funktioneller Mediator von miR-1298 bei CRC sein.
Einleitung
Darmkrebs verursacht eine erhebliche weltweite gesundheitliche Belastung und zählt zu den Hauptursachen für krebsbedingte Todesfälle weltweit1. Darmkrebs entsteht aus den epithelialen Zellen des Kolon-Rektum-Bereichs und entwickelt sich gewöhnlich schrittweise über einen mehrstufigen Prozess, der als Adenom-zu-Karzinom-Progression bekannt ist und mehrere Jahre in Anspruch nimmt2. Die Folgen von Darmkrebs sind weitreichend und vielschichtig. Neben dem Risiko des Todes kann Darmkrebs auch erhebliche Auswirkungen auf den Alltag der Betroffenen haben. Die Behandlung erfordert in der Regel einen größeren chirurgischen Eingriff, der zu Komplikationen wie einer permanenten Kolostomie, Darmfunktionsstörungen oder sexuellen und Harnfunktionsstörungen führen kann3. Zudem stellt die finanzielle Belastung durch Chemotherapie, zielgerichtete Therapien und langfristige Nachsorge eine erhebliche Herausforderung sowohl für die Patienten als auch für das Gesundheitssystem dar. Daher bleibt die Erforschung der molekularen Mechanismen, die Darmkrebs zugrunde liegen, eine zentrale Priorität im Bereich der öffentlichen Gesundheit.
Bei CRC ist die Fehlregulation spezifischer microRNAs (miRNAs) ein hervorstechendes Merkmal der Tumorentstehung und beeinflusst zentrale Prozesse4. Die Identifizierung dieser unterschiedlich exprimierten miRNAs vertieft nicht nur das Verständnis der Pathogenese von CRC, sondern eröffnet auch potenzielle Ansatzpunkte für neue diagnostische Biomarker und therapeutische Zielstrukturen. Unter den zahlreichen krebsassoziierten miRNAs hat sich miR-1298 als wichtiges Forschungsziel herauskristallisiert. Aktuelle Befunde deuten darauf hin, dass miR-1298 in verschiedenen Krebserkrankungen häufig als Tumorsuppressor wirkt. Beispielsweise hemmt es bei nicht-kleinzelligem Lungenkrebs (NSCLC) das Zellwachstum und die Invasion, indem es zentrale onkogene Signalwege gezielt beeinflusst5. Ähnlich verhält es sich bei Hirntumoren, wo eine verminderte Expression mit der Tumorentwicklung assoziiert ist, während ihre Wiederherstellung die Tumorprogression hemmt6. Angesichts seiner etablierten tumorsuppressiven Rolle bei anderen Krebsarten bleibt die spezifische Funktion von miR-1298 in der kolorektalen Karzinogenese – insbesondere seine downstream liegenden Zielstrukturen und funktionellen Auswirkungen bei CRC – weitgehend unerforscht. Diese Wissenslücke ist vor dem Hintergrund des einzigartigen molekularen Profils von CRC im Vergleich zu anderen Malignitäten von großer Bedeutung.
BMP7 ist ein sekretiertes, funktionell vielseitiges Zytokin, das zur Superfamilie der transformierenden Wachstumsfaktoren-β (TGF-β) gehört7. Bei CRC übt BMP7 hauptsächlich eine tumorsfördernde Rolle aus. BMP7 ist in CRC-Geweben und -Zellen häufig hochreguliert8. BMP7 steigert die Invasion, Migration und stammzellähnlichen Eigenschaften von Krebszellen, wahrscheinlich durch Aktivierung pro-invasiver Signalwege und Modulation des Tumormikromilieus zur Förderung der Migration9. Bei verschiedenen Krebsarten wurden spezifische miRNAs als direkte posttranskriptionelle Repressoren von BMP7 identifiziert. Beispielsweise zielt miR-137 in NSCLC auf BMP7 ab, um das Zellwachstum zu hemmen10. Angesichts dieser Befunde vermuten wir, dass BMP7 möglicherweise an CRC beteiligt ist. Ob miR-1298 in CRC direkt BMP7 targetiert, wurde jedoch bisher experimentell nicht bestätigt. Darüber hinaus hat bisher keine Studie die miR-1298/BMP7-Achse bei CRC umfassend charakterisiert, indem mechanistische Validierung, funktionelle Phänotypisierung und klinische Korrelation miteinander verknüpft wurden.
Daher hatten wir folgende Ziele: (1) das regulatorische Muster von miR-1298 im kolorektalen Karzinom (CRC) und dessen Zusammenhang mit klinisch-pathologischen Merkmalen zu untersuchen; (2) die funktionellen Effekte von miR-1298 auf Proliferation, Apoptose, Invasion und Migration im CRC zu charakterisieren; (3) BMP7 experimentell als Zielgen von miR-1298 im CRC zu bestätigen; und (4) den diagnostischen und prognostischen Wert von miR-1298 bei Patienten mit CRC zu bewerten. Durch die Integration dieser komplementären Ansätze strebten wir danach, ein umfassendes Verständnis der miR-1298/BMP7-Achse im CRC zu erlangen und neu entstehende Biomarker sowie therapeutische Zielstrukturen für diese Erkrankung zu identifizieren.
Protokoll
This study was approved by the Ethics Committee of Wuhan Brain Hospital (approval number: 20220826). All participants provided written informed consent before enrollment. This study was conducted in accordance with the Declaration of Helsinki. Consent for publication was obtained from all participants whose data were included. Details of the reagents, kits, antibodies, cell lines, plasmids, and equipment used in this study, including their manufacturers and catalog information, are provided in the Table of Materials.
Patients and specimens
From May 2022 to August 2024, we collected paired cancerous and adjacent noncancerous tissue samples from 85 patients with CRC. None of the participants had a history of cancer, chemotherapy, or radiation therapy. In addition, 71 healthy subjects undergoing physical examination were included in this study.
Prognosis
The critical values for the high/low expression groups of miR-1298 were determined based on the median expression level in CRC tissue samples. The follow-up period was 12 months, with follow-up conducted by telephone or re-examination. The endpoint event was death. Among the 85 patients, 14 deaths were recorded during the follow-up period, and there were no censored patients.
Cell culture and cell transfection
The normal human colon cell line FHC, as well as the human CRC cell lines SW480 and HCT-116, were obtained. Cells were cultured in Dulbecco's Modified Eagle Medium (DMEM) supplemented with 10% fetal bovine serum (FBS). miR-1298 mimic or inhibitor was transfected into SW480 and HCT-116 cells using Lipofectamine 3000. Then, miR-1298 mimic and the pcDNA3.1-BMP7 (OE-BMP7) or the pcDNA3.1 vector (OE-NC) were co-transfected into SW480 cells and HCT-116 cells. The specific steps were as follows: The cells were cultured at 37 °C with 5% CO₂ until they reached 70%–80% confluence. Cells were seeded at 5 x 10⁴ cells per well in a 24-well plate and incubated overnight. A transfection mixture containing 250 µL of Opti-MEM, 1.25 µL of Lipofectamine 3000, 1.5 µL of P3000, 50 nM miRNA, and 1 µg of plasmid was prepared and incubated for 15 min before being added to the cells. The medium was replaced with complete DMEM after 6 h, and the samples were collected at 48 h.
Bioinformatics analysis
The target of miR-1298 was predicted using the TargetScan 8.0 database (https://www.targetscan.org/vert_80/). The predicted binding site between miR-1298 and BMP7 was then identified.
Dual-luciferase reporter assay
The wild-type and mutant 3′-UTR sequences of BMP7 containing the predicted miR-1298 binding site were cloned into the pmirGLO dual-luciferase reporter vector to generate the BMP7 Wt and BMP7 Mut reporter plasmids, respectively. For the luciferase assay, SW480 and HCT-116 cells were co-transfected with either the BMP7 Wt or BMP7 Mut plasmid along with the miR-1298 mimic, inhibitor, or their corresponding negative controls. The specific steps were as follows: Cells were seeded in 24-well plates at 4 x 10⁴ cells per well. Each well was co-transfected with 0.8 µg of reporter plasmid, 50 nM miR-1298 mimic, inhibitor, or corresponding negative control, and Lipofectamine 3000. After 8 h, the culture medium was aspirated, and the cells were lysed by adding 100 µL of passive lysis buffer (PLB) for 15 min. A 20 µL aliquot of the lysate was transferred to a white assay plate, 50 µL of LAR II was added, and firefly luciferase activity was measured. An additional 50 µL Stop&Glo reagent was added to measure Renilla. Finally, the normalization of the data was completed.
RT-qPCR
RNA was extracted from cultured cells, serum, and frozen CRC tissues using TRIzol reagent. Briefly, cells were lysed directly in 1 mL of TRIzol per 10 cm dish; tissue fragments were homogenized in TRIzol on ice. After chloroform phase separation and isopropanol precipitation, RNA pellets were washed with 75% ethanol, air-dried, and dissolved in RNase-free water. RNA purity and concentration were determined using a microvolume spectrophotometer (A260/A280 = 1.8–2.1, A260/A230 > 2.0). For mRNA analysis, residual genomic DNA was removed with gDNA Eraser, and 500 ng of RNA was reverse-transcribed using the PrimeScript RT Reagent Kit with oligo(dT) and random hexamers (37 °C for 15 min and 85 °C for 5 s). For miRNA analysis, 100 ng of RNA was reverse-transcribed with a stem-loop primer specific for miR-1298-5p or U6 using the Mir-X miRNA First-Strand Synthesis Kit (16 °C for 30 min, 42 °C for 30 min, and 85 °C for 5 s). No-RT and no-template controls were included in every run. cDNA was diluted appropriately and stored at −80 °C until qPCR. The levels of miR-1298 and BMP7 were quantified using SYBR Green chemistry. U6 and GAPDH were used as endogenous controls for miRNA and mRNA normalization, respectively. The relative expression was calculated using the comparative 2−ΔΔCt method. The primer sequences (5′–3′) were as follows: miR-1298-forward: TCGGCAGGTTCATTCGGCTGTC, reverse: CTCAACTGGTGTCGTGGA; U6-forward: CTCGCTTCGGCAGCACA, reverse: AACGCTTCACGAATTTGCGT; BMP7-forward: CAAGAACCAGGAAGCCCTGC, reverse: TTCTTACAGGCCTGCCTCTGG; and GAPDH-forward: GACATGCCGCCTGGAGAAAC, reverse: AGCCCAGGATGCCCTTTAGT. The reaction conditions for qPCR were as follows: 95 °C for 2 min, 35 cycles of 95 °C for 30 s, 60 °C for 30 s, and 72 °C for 60 s. cDNA templates were serially diluted (5-fold) to generate standard curves. Amplification efficiency E was calculated using the formula, E = (10-1/slope-1) x 100%. The amplification efficiency of the primers was calculated as follows: EmiR-1298 = 102.1%, EBMP7 = 96.3%, EGAPDH = 100.3%, EU6 = 99.8%. All primers met the acceptable efficiency range of 90–110%. All RT-qPCR experiments included three independent biological replicates, each with 3 technical replicates. The stability of U6 and GAPDH was evaluated using the geNorm algorithm. The M values of both genes were below the recommended threshold of 1.5, confirming their suitability.
Cell counting kit-8 (CCK-8) assay
SW480 and HCT-116 cells were seeded in 96-well plates at 2 x 10³ cells/well in 100 µL of complete DMEM and incubated for 24 h. At 48 h post-transfection, plates were incubated for 1 h at 37 °C. Absorbance at 450 nm was measured using a microplate reader. Six replicate wells were used per group, and a blank containing medium plus CCK-8 without cells was subtracted.
Flow cytometry
Apoptosis was evaluated by flow cytometry utilizing an Annexin V-FITC/PI Apoptosis Detection Kit. At 48 h post-transfection, SW480 and HCT-116 cells were harvested by trypsinization, washed twice with cold PBS, and resuspended in 1x binding buffer at 1 x 10⁶ cells/mL. Aliquots of 1 x 10⁵ cells were transferred to FACS tubes, stained with 5 µL of Annexin V-FITC and 5 µL of PI for 15 min at room temperature in the dark, and diluted with 400 µL of binding buffer before acquisition. Unstained, single-stained, and staurosporine-treated positive controls were included for compensation and gate setting. Data were analyzed utilizing FlowJo software (FlowJo 10.2).
Cell migration and invasion
Cell migration and invasion were evaluated using 24-well Transwell chambers with 8 µm pore-size PET membranes. For invasion assays, the upper membrane was pre-coated with 50 µL of Matrigel at 37 °C for 2 h and rehydrated with serum-free DMEM for 30 min before seeding; migration assays omitted this coating step. Transfected SW480 and HCT-116 cells were starved in serum-free DMEM for 12 h, after which 2 x 10⁴ cells in 100 µL of serum-free DMEM containing 0.1% BSA were seeded into the upper chamber. The lower chamber was filled with 600 µL DMEM containing 10% FBS as a chemoattractant. After 24 h (migration) or 48 h (invasion) at 37 °C, non-migrated cells on the upper surface were removed with a cotton swab. Cells on the lower surface were fixed with 4% paraformaldehyde for 15 min, stained with 0.1% crystal violet for 20 min, rinsed, and air-dried. Five random fields per membrane were imaged at 200x magnification using an inverted microscope and counted manually by two independent observers.
Western blot
Total cellular proteins were extracted by homogenizing cells in RIPA lysis buffer supplemented with a protease inhibitor cocktail. Protein concentrations were determined using a BCA Protein Assay Kit. Equivalent amounts of protein lysates (50 µg) were separated by 10% SDS-PAGE and subsequently transferred onto PVDF membranes. After blocking non-specific binding sites with 2% BSA, the membranes were probed with primary antibodies against BMP7 (1:1,000) and GAPDH (1:2,000) for 90 min at 37 °C. Following three washes with PBST, the membranes were incubated with a horseradish peroxidase (HRP)-conjugated secondary antibody. Protein bands were visualized using an ECL chemiluminescence reagent.
Statistical analysis
Data were analyzed using SPSS 27.0. All values were reported as mean ± standard deviation (SD), except where noted. The Shapiro-Wilk test was applied to check for normal distribution. Intergroup differences between the two groups were determined using an unpaired two-tailed Student's t-test. The comparison of miR-1298 expression between CRC tumor tissues and adjacent non-cancerous tissues was conducted using a paired Student's t-test. Before conducting the parameter test, the Levene test was utilized to assess the homogeneity of variances. For multiple-group comparisons, parametric data were analyzed via one-way ANOVA, with Tukey's HSD test used for post hoc pairwise comparisons. The correlation between miR-1298 and BMP7 in CRC tissues was evaluated utilizing Pearson's correlation analysis. p < 0.05 was considered statistically significant.
Ergebnisse
miR-1298 war bei CRC deutlich vermindert
In CRC-Geweben waren die miR-1298-Spiegel niedriger als in angrenzenden nichttumoralen Geweben (Abbildung 1A). Die Analyse der Lymphknotenmetastasierung zeigte, dass die miR-1298-Spiegel bei Patienten mit Lymphknotenmetastasen niedriger waren als bei Patienten ohne Lymphknotenmetastasen (Abbildung 1B). Bei Patienten mit CRC, deren Tumorgröße > 5 cm betrug, war miR-1298 signifikant niedriger als bei Patienten mit einer Tumorgröße ≤ 5 cm (p = 0,017; Abbildung 1C). miR-1298 nahm mit fortschreitendem Tumorstadium ab, wobei signifikante Unterschiede zwischen Stadium 1 und Stadium 3 (p = 0,047) sowie zwischen Stadium 1 und Stadium 4 (p = 0,009; Abbildung 1D) bestanden. Im Serum von Patienten mit CRC war miR-1298 deutlich vermindert (Abbildung 1E), und die ROC-Kurvenanalyse ergab eine AUC von 0,889 bei einer Sensitivität von 78,82 % und einer Spezifität von 83,10 % (Abbildung 1F).
Basierend auf dem medianen Expressionsniveau von miR-1298 wurden Patienten mit kolorektalem Karzinom (CRC) in Gruppen mit niedriger und hoher Expression eingeteilt. Bei Patienten mit CRC war miR-1298 eng mit dem TNM-Stadium assoziiert (p < 0,001), Tumorgröße (p = 0,003), Lymphknotenmetastasen (p = 0,003) und Tumordifferenzierung (p = 0,035). Allerdings war miR-1298 nicht mit dem Alter assoziiert (p = 0,832) oder Geschlecht (p = 0.165) (Tabelle 1). Die Kaplan-Meier-Analyse zeigte, dass Patienten mit kolorektalem Karzinom und niedriger miR-1298-Expression eine kürzere Gesamtüberlebenszeit aufwiesen als Patienten mit hoher miR-1298-Expression (Log-Rang-Test p = 0.039; Abbildung 1G). Die Cox-Regressionanalyse zeigte, dass eine verminderte Expression von miR-1298 ein potenzieller prognostischer Indikator bei Patienten mit kolorektalem Karzinom (CRC) sein könnte (p = 0.035, Tabelle 2).
miR-1298 unterdrückte die Proliferation und förderte die Apoptose in CRC-Zellen
In SW480-Zellen veränderte die Transfektion mit dem miR-1298-Mimetikum oder -Inhibitor die miR-1298-Expression wirksam, wobei ein signifikanter Unterschied zwischen den Gruppen Inhibitor-NC und miR-1298-Inhibitor bestand (p = 0,005; Abbildung 2A). Die Überexpression von miR-1298 verringerte die Zellviabilität und förderte die Apoptose, während die Suppression von miR-1298 die Zellviabilität erhöhte und die Apoptose verringerte; die Apoptose unterschied sich signifikant zwischen den Gruppen Inhibitor-NC und miR-1298-Inhibitor (p = 0,008; Abbildung 2B,C). In HCT-116-Zellen veränderte die Transfektion ebenfalls die miR-1298-Expression (p = 0,002; Abbildung 2D), und signifikante Unterschiede zwischen den Gruppen Inhibitor-NC und miR-1298-Inhibitor zeigten sich hinsichtlich der Zellviabilität (p = 0,007; Abbildung 2E) und der Apoptose (p = 0,005; Abbildung 2F).
miR-1298 unterdrückte die Migration und Invasion von CRC-Zellen
Eine Überexpression von miR-1298 verringerte die Anzahl migrierter und invasiver SW480- und HCT-116-Zellen, während die Hemmung von miR-1298 die Zellmigration und -invasion erhöhte (Abbildung 3A–D). Bei SW480-Zellen war die Anzahl invasiver Zellen in der miR-1298-Mimetika-Gruppe im Vergleich zur Mimetika-NC-Gruppe deutlich niedriger (p = 0,004; Abbildung 3B).
BMP7 war ein Ziel von miR-1298 im CRC
TargetScan ergab, dass BMP7 ein Ziel von miR-1298 sein könnte (Abbildung 4A). Doppelluciferase-Reporterassays in SW480- und HCT-116-Zellen zeigten, dass die Überexpression oder Hemmung von miR-1298 die Luciferase-Aktivität des BMP7-Wt-Reporters, nicht jedoch des BMP7-Mut-Reporters veränderte (Abbildung 4B,C). In HCT-116-Zellen war die Luciferase-Aktivität des BMP7-Wt-Reporters in der Gruppe mit miR-1298-Mimetikum signifikant niedriger als in der Mimetikum-NC-Gruppe (p = 0,002; Abbildung 4C). In CRC-Geweben war BMP7 deutlich erhöht (Abbildung 4D). Zudem zeigten BMP7 und miR-1298 eine negative Korrelation (Abbildung 4E). In SW480- und HCT-116-Zellen hemmte die Überexpression von miR-1298 BMP7 sowohl auf RNA- als auch auf Proteinebene, während die Hemmung von miR-1298 die Expression von BMP7 erhöhte (Abbildung 4F,G).
miR-1298 könnte eine tumorsuppressive Wirkung im CRC durch die Regulation von BMP7 entfalten
In SW480-Zellen wurde eine erfolgreiche Modulation der BMP7-Expression bestätigt (Abbildung 5A). Die Überexpression von BMP7 kehrte teilweise die durch die Überexpression von miR-1298 verursachte Abnahme der Zellviabilität und die Zunahme der Apoptose um, während die Absenkung von BMP7 die Zellviabilität weiter verringerte und die Apoptose erhöhte (Abbildung 5B,C). In HCT-116-Zellen wurde ebenfalls eine erfolgreiche Modulation der BMP7-Expression bestätigt (Abbildung 5D), mit entsprechenden Effekten auf Zellviabilität und Apoptose (Abbildung 5E,F). In SW480-Zellen waren die Expression von BMP7 und die Zellviabilität in der Gruppe mit miR-1298-Mimetikum + si-BMP7 signifikant niedriger als in der Gruppe mit miR-1298-Mimetikum + si-NC (p = 0,002 bzw. p = 0,005; Abbildung 5A,B). Die Apoptose unterschied sich signifikant zwischen den Gruppen miR-1298-Mimetikum + OE-BMP7 und miR-1298-Mimetikum + OE-NC (p = 0,001; Abbildung 5C). In HCT-116-Zellen war die Zellviabilität in der Gruppe mit miR-1298-Mimetikum + si-BMP7 signifikant niedriger als in der Gruppe mit miR-1298-Mimetikum + si-NC (p = 0,002; Abbildung 5E). Stark exprimiertes BMP7 kehrte die hemmenden Effekte von miR-1298 auf Migration und Invasion von CRC-Zellen teilweise um, während die Absenkung von BMP7 diese inhibitorischen Effekte verstärkte (Abbildung 6A–D). In SW480-Zellen verringerte die Absenkung von BMP7 die Anzahl der migrierten und invasiven Zellen im Vergleich zur si-NC-Gruppe signifikant (p = 0,003 bzw. p = 0,020; Abbildung 6A,B). In HCT-116-Zellen veränderte die Überexpression von BMP7 die Anzahl der migrierten Zellen im Vergleich zur OE-NC-Gruppe signifikant (p = 0,030; Abbildung 6C), während die Absenkung von BMP7 die Anzahl der invasiven Zellen im Vergleich zur si-NC-Gruppe signifikant verringerte (p = 0,007; Abbildung 6D).
VERFÜGBARKEIT VON DATEN:
Die die Ergebnisse dieser Studie unterstützenden Daten sind als Zusatzdatei verfügbar.
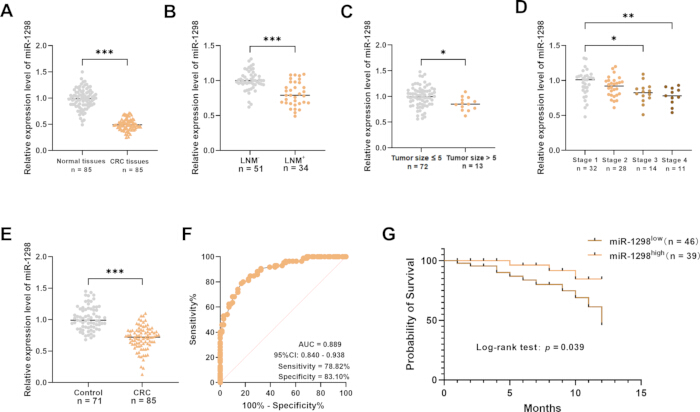
Abbildung 1: Expression von miR-1298 in CRC-Geweben. (A) Relative Expression von miR-1298 in CRC-Geweben und angrenzenden nicht-krebsösen Geweben. (B) Relative Expression von miR-1298 in CRC-Geweben von Patienten mit (LNM+) und ohne (LNM−) Lymphknotenmetastasen. (C) Relative Expression von miR-1298 in CRC-Geweben entsprechend der Tumorgröße. (D) Relative Expression von miR-1298 in CRC-Geweben entsprechend dem Tumorstadium. (E) Relative Expression von serumgebundenem miR-1298 bei Patienten mit CRC und gesunden Kontrollpersonen. (F) Receiver-Operating-Characteristic-(ROC)-Kurve für serumgebundenes miR-1298 zur Unterscheidung von CRC-Patienten und gesunden Kontrollen. (G) Kaplan-Meier-Gesamtüberlebenskurven für CRC-Patienten basierend auf niedriger und hoher miR-1298-Expression. *p < 0,05; **p < 0,01; ***p < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
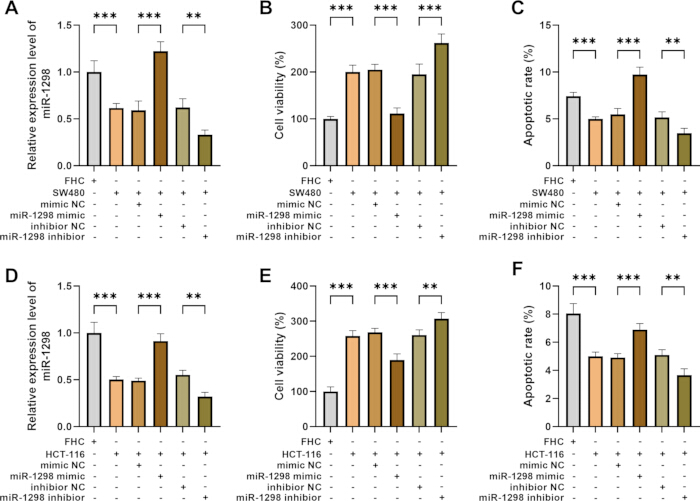
Abbildung 2: Auswirkungen von miR-1298 auf die Proliferation und Apoptose von CRC-Zellen. (A) Relative Expression von miR-1298 in FHC- und SW480-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. (B) Zellviabilität von SW480-Zellen nach Überexpression oder Hemmung von miR-1298. (C) Apoptose von SW480-Zellen nach Überexpression oder Hemmung von miR-1298. (D) Relative Expression von miR-1298 in FHC- und HCT-116-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. (E) Zellviabilität von HCT-116-Zellen nach Überexpression oder Hemmung von miR-1298. (F) Apoptose von HCT-116-Zellen nach Überexpression oder Hemmung von miR-1298. Die Daten sind als Mittelwert ± SD dargestellt. Die Fehlerbalken repräsentieren die SD. **p < 0,01; ***p < 0,001. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
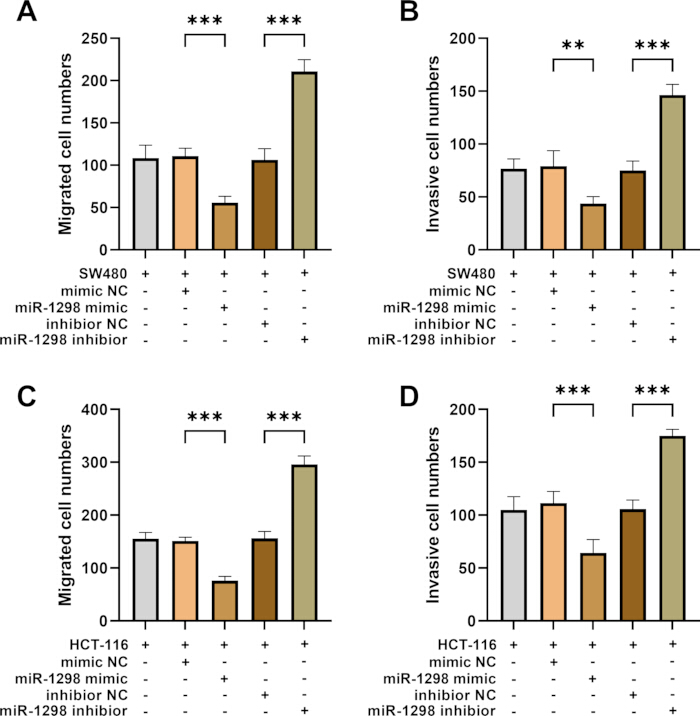
Abbildung 3: Wirkung von miR-1298 auf Migration und Invasion von CRC-Zellen. (A) Anzahl migrierter Zellen in SW480-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. (B) Anzahl invasiver Zellen in SW480-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. (C) Anzahl migrierter Zellen in HCT-116-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. (D) Anzahl invasiver Zellen in HCT-116-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. Die Daten sind als Mittelwert ± SD dargestellt. Die Fehlerbalken zeigen die SD. **p < 0,01; ***p < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
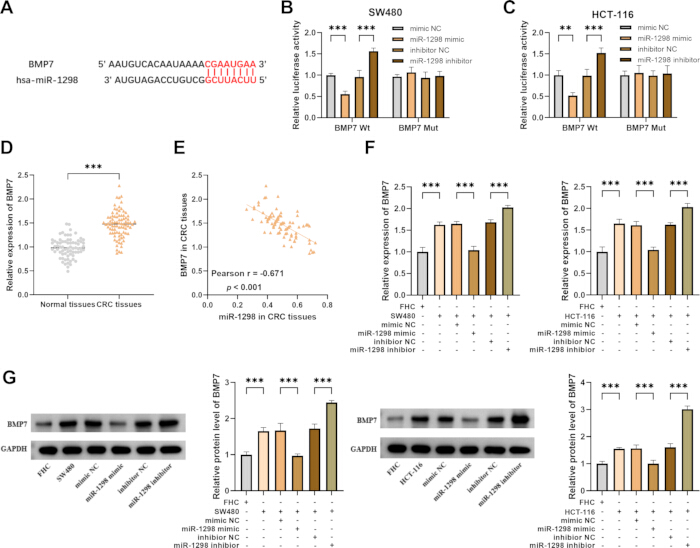
Abbildung 4: Zielinteraktion zwischen miR-1298 und BMP7. (A) Vorhergesagte Bindungsstelle zwischen miR-1298 und der BMP7 3′-UTR. (B) Relative Luciferase-Aktivität der BMP7-Wt- und BMP7-Mut-Reporter nach Überexpression oder Hemmung von miR-1298 in SW480-Zellen. (C) Relative Luciferase-Aktivität der BMP7-Wt- und BMP7-Mut-Reporter nach Überexpression oder Hemmung von miR-1298 in HCT-116-Zellen. (D) Relative Expression von BMP7 in kolorektalen Karzinomgeweben und angrenzenden nichttumoralen Geweben. (E) Korrelation zwischen der Expression von miR-1298 und BMP7 in kolorektalen Karzinomgeweben. (F) Relative BMP7-Expression in SW480- und HCT-116-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. (G) Relative BMP7-Proteinmengen in SW480- und HCT-116-Zellen nach Transfektion mit miR-1298-Mimetikum, Mimetikum-NC, miR-1298-Inhibitor oder Inhibitor-NC. **p < 0,01; ***p < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
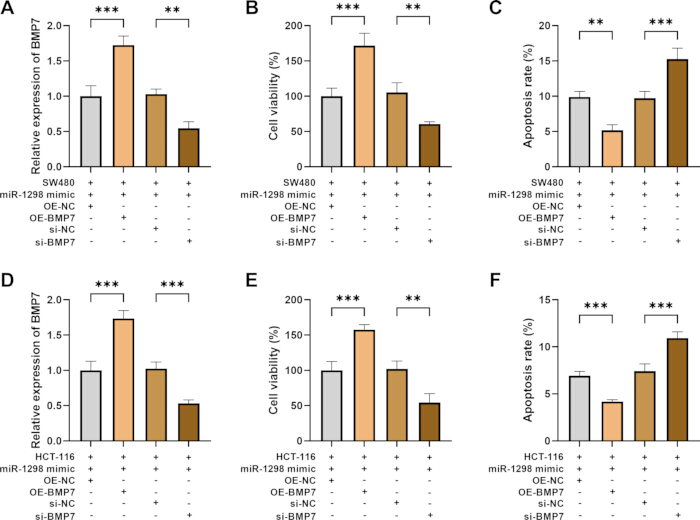
Abbildung 5: Ko-Regulation von miR-1298 und BMP7 hinsichtlich Proliferation und Apoptose in CRC-Zellen. SW480- und HCT-116-Zellen wurden gemeinsam mit einem miR-1298-Mimetikum und OE-NC, OE-BMP7, si-NC oder si-BMP7 transfiziert. (A) Relative BMP7-Expression in SW480-Zellen. (B) Zellviabilität in SW480-Zellen. (C) Apoptose in SW480-Zellen. (D) Relative BMP7-Expression in HCT-116-Zellen. (E) Zellviabilität in HCT-116-Zellen. (F) Apoptose in HCT-116-Zellen. Die Daten sind als Mittelwert ± SD dargestellt. Die Fehlerbalken repräsentieren die SD. **p < 0,01; ***p < 0,001. Abkürzungen: OE-NC = Überexpressions-Negativkontrolle; OE-BMP7 = BMP7-Überexpression; si-NC = kleine interferierende RNA-Negativkontrolle; si-BMP7 = BMP7-zielgerichtete kleine interferierende RNA. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
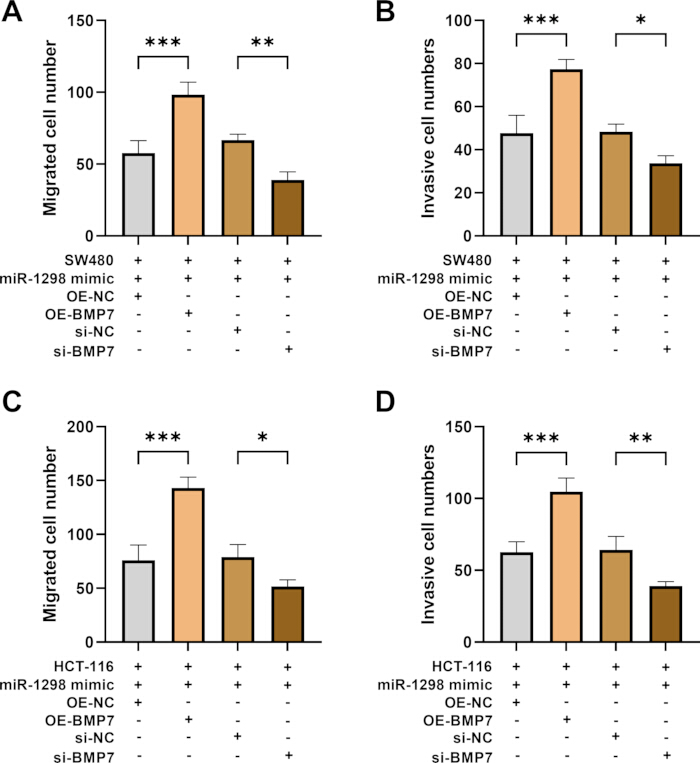
Abbildung 6: Ko-Regulation der Migration und Invasion von DCC-Zellen durch miR-1298 und BMP7. SW480- und HCT-116-Zellen wurden mit einem miR-1298-Mimetikum und OE-NC, OE-BMP7, si-NC oder si-BMP7 koadjektioniert. (A) Anzahl migrierter Zellen in SW480-Zellen. (B) Anzahl invasiver Zellen in SW480-Zellen. (C) Anzahl migrierter Zellen in HCT-116-Zellen. (D) Anzahl invasiver Zellen in HCT-116-Zellen. Die Daten sind als Mittelwert ± SD dargestellt. Die Fehlerbalken repräsentieren die SD. *p < 0,05; **p < 0,01; ***p < 0,001. Abkürzungen: OE-NC = Überexpression-Negativkontrolle; OE-BMP7 = BMP7-Überexpression; si-NC = kleine interferierende RNA-Negativkontrolle; si-BMP7 = BMP7-gerichtete kleine interferierende RNA. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Variable | Gesamt | miR-1298 | p-Wert | |
| (n = 85) | Niedrig (n = 46) | Hoch (n = 39) | ||
| Alter (Jahre) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Geschlecht (männlich/weiblich) | ||||
| Männlich | 44 | 27 | 17 | 0.165 |
| Weiblich | 41 | 19 | 22 | |
| TMN-Stadium | ||||
| 1–2 | 60 | 41 | 19 | <0.001*** |
| 3–4 | 25 | 5 | 20 | |
| Tumorgröße (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| Lymphknotenmetastase | ||||
| Ja | 34 | 25 | 9 | 0.003** |
| Nein | 51 | 21 | 30 | |
| Tumordifferenzierung | ||||
| Niedriggradig | 53 | 24 | 29 | 0.035* |
| Hochgradig | 32 | 22 | 10 | |
Tabelle 1: Zusammenhang zwischen klinisch-pathologischen Merkmalen und miR-1298-Expressionsniveaus bei Patienten mit CRC. Die Patienten wurden in Gruppen mit niedriger (n = 46) und hoher (n = 39) miR-1298-Expression eingeteilt, und die Zusammenhänge zwischen der miR-1298-Expression und klinisch-pathologischen Merkmalen wurden untersucht. *p < 0,05; **p < 0,01; ***p < 0,001. Abkürzungen: CRC = kolorektales Karzinom; TNM = Tumor-Node-Metastase.
| Variable | Hazard-Ratio | 95 % KI | p-Wert | |
| Untergrenze | Obergrenze | |||
| Alter | 0.776 | 0.186 | 3.242 | 0.728 |
| Geschlecht | 0.614 | 0.152 | 2.474 | 0.492 |
| TNM-Stadium | 4.62 | 1.181 | 18.078 | 0.028* |
| Tumorgröße | 8.078 | 1.833 | 35.587 | 0.006** |
| Lymphknotenmetastase | 6.584 | 1.134 | 38.245 | 0.036* |
| Tumordifferenzierung | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tabelle 2: Cox-Regressionanalyse prognostischer Faktoren bei Patienten mit CRC. Mithilfe einer Cox-Regressionanalyse wurde der Zusammenhang zwischen klinisch-pathologischen Merkmalen und der Expression von miR-1298 bezüglich der Prognose bei Patienten mit CRC untersucht. *p < 0,05; **p< 0,01. Abkürzungen: CI = Konfidenzintervall; CRC = kolorektales Karzinom; TNM = Tumor-Node-Metastase.
Ergänzende Datei. Bitte klicken Sie hier, um diese Datei herunterzuladen.
Diskussion
Darmkrebs verursacht aufgrund seiner hohen Inzidenz und hohen Mortalitätsraten eine erhebliche Belastung für Einzelpersonen und die Gesellschaft. Trotz Screening-Programme wie der Koloskopie werden viele Darmkrebspatienten weiterhin im fortgeschrittenen Stadium diagnostiziert, was das dringende Bedürfnis nach effektiveren, nicht-invasiven Biomarkern für die Früherkennung unterstreicht11. Außerdem bleibt die Prognose bei metastasierendem Darmkrebs ungünstig, wobei Arzneimittelresistenz und Krankheitsrezidive relativ häufig auftreten12. Daher ist ein umfassendes Verständnis der molekularen Mechanismen, die dem Beginn, Fortschreiten und der Metastasierung von Darmkrebs zugrunde liegen, entscheidend für die Entwicklung neuer gezielter Therapien und die Überwindung von Behandlungsresistenzen. Darmkrebs ist stark heterogen, was bedeutet, dass Tumore, die ähnlich erscheinen, erhebliche Unterschiede im Verhalten aufweisen können13. Deshalb ist laufende Forschung wichtig, um die Früherkennung zu verbessern, die personalisierte Therapie voranzutreiben und letztlich die Überlebensraten von Patienten mit Darmkrebs zu erhöhen.
Abnormalitäten bei miRNA sind an der Entwicklung, Einstufung und Prognose von CRC beteiligt14. Aufgrund ihrer Stabilität in Körperflüssigkeiten haben miRNAs außerdem ein hohes Potenzial als nicht-invasive diagnostische und prognostische Biomarker15. In dieser Studie war miR-1298 in CRC-Geweben herunterreguliert, und seine Expression war mit dem TNM-Stadium und lymphogenen Metastasen assoziiert, was auf eine mögliche Rolle bei der CRC-Progression hindeutet. Bemerkenswert ist, dass unsere Studie die erste ist, die die Expression von miR-1298 in einer klinischen CRC-Kohorte umfassend charakterisiert und ihre Assoziation mit wichtigen klinisch-pathologischen Parametern, einschließlich TNM-Stadium, lymphogene Metastasen und Tumordifferenzierung, nachweist.
Die Fehlregulation zentraler zellulärer Prozesse – einschließlich Proliferation, Apoptose, Migration und Invasion – ist ein grundlegender Treiber der Krebsentstehung und -mortalität16. Eine unkontrollierte Proliferation ermöglicht es Tumorzellen, eine initiale klonale Expansion durchzulaufen. Gleichzeitig überleben diese Zellen und akkumulieren, indem sie der Apoptose entgehen, trotz innerer Schäden oder äußerer Stressfaktoren. Diese Kombination führt zum Wachstum des Primärtumors17,18. Daher sind gezielte Therapien, die die molekularen Ursachen dieser Eigenschaften ansprechen, entscheidend für die Entwicklung wirksamer Behandlungen des kolorektalen Karzinoms (CRC). miRNAs tragen durch die Regulation des malignen Phänotyps von Krebszellen zur Tumorentwicklung bei19. miR-1298 ist eine solche miRNA. Beispielsweise fördert die Herunterregulation von miR-1298-5p das Fortschreiten des Magenkarzinoms20. Hochreguliertes miR-1298 hemmt die Proliferation von Brustkrebszellen, induziert die Apoptose und verursacht eine Zellzyklusarrest21. Außerdem wirkt miR-1298-5p als Tumorsuppressor beim Blasenkarzinom22. Die Ergebnisse dieser Studie zeigten, dass die Überexpression von miR-1298 die Proliferation, Migration und Invasion hemmte und die Apoptose erhöhte, was darauf hindeutet, dass es den malignen Phänotyp des CRC unterdrücken könnte. Wichtig ist, dass unsere Studie über frühere Berichte hinausging, indem sie systematisch die wichtigsten malignen Phänotypen in CRC-Zellen bewertete und somit eine umfassendere funktionelle Charakterisierung von miR-1298 in diesem spezifischen Krebstyp bereitstellte.
Hinsichtlich seiner tumorsfördernden Wirkungen kann BMP7 die Proliferation von Krebszellen durch die Regulation von Signalwegen wie PI3K/AKT23 fördern. Durch die Modulation des Spiegels anti-apoptotischer Faktoren wie Bcl-2 verleiht BMP7 Krebszellen Resistenz gegenüber Apoptose24. Darüber hinaus verstärkt BMP7 hauptsächlich die Migration und Invasion von Krebszellen, indem es den epithelialen-mesenchymalen Übergang (EMT) induziert25. Die Beteiligung von BMP7 an der Tumorförderung steht im Einklang mit unserer Beobachtung, dass BMP7 in CRC-Gewebe erhöht war. Bioinformatische Analysen legten nahe, dass BMP7 ein Ziel von miR-1298 sein könnte, und identifizierten eine vorhergesagte Bindungsstelle zwischen miR-1298 und BMP7. Darüber hinaus zeigten Rettungsversuche, dass BMP7 vermutlich als funktioneller Vermittler von miR-1298 im CRC wirkt. Unter Berücksichtigung der mit BMP7 im Krebs assoziierten Signalwege formulierten wir die weitere Hypothese, dass die miR-1298/BMP7-Achse die downstreamliegenden Signalwege (SMAD, PI3K/AKT, EMT) reguliert, die das Verhalten von CRC-Zellen steuern. Entscheidend war, dass wir diese Vorhersage experimentell durch Luciferase-Reportergen-Assays bestätigten und dadurch die direkte Bindung von miR-1298 an die 3′-UTR von BMP7 nachwiesen. Zudem zeigten Rettungsversuche, dass die Wiederherstellung von BMP7 die tumorsuppressiven Effekte der Überexpression von miR-1298 teilweise umkehrte, was funktionelle Belege dafür liefert, dass BMP7 ein downstreamliegender Vermittler von miR-1298 im CRC ist. Soweit bekannt, ist dies die erste Studie, die die regulatorische Achse miR-1298/BMP7 beim kolorektalen Karzinom etabliert.
Neben mechanistischen Erkenntnissen lieferte unsere Studie translationsrelevante Hinweise, die die klinische Nützlichkeit von miR-1298 unterstützen. Die ROC-Kurvenanalyse zeigte, dass miR-1298 einen diagnostischen Wert beim kolorektalen Karzinom (CRC) haben könnte. Die Überlebensanalyse ergab zudem, dass ein niedriger miR-1298-Expression mit einer ungünstigeren Prognose assoziiert ist, und die Cox-Regressionanalyse ergab, dass eine verminderte miR-1298-Expression ein prognostischer Faktor für CRC sein könnte, was den latenten Wert von miR-1298 als diagnostischen und prognostischen Biomarker für CRC unterstreicht.
Diese Studie weist einige Einschränkungen auf. Hinsichtlich klinischer Proben wurden die Daten hauptsächlich aus einer einzigen Zentrale erhoben, weshalb zukünftige multizentrische Validierungsstudien erforderlich sind, um die tumorsuppressive Rolle von miR-1298 beim kolorektalen Karzinom (CRC) robuster zu bestätigen. Die Studie konzentrierte sich auf zelluläre In-vitro-Experimente, die die Komplexität der in-vivo-Tumormikroumgebung nicht vollständig abbilden konnten. Der Mangel an Xenotransplantat-Tiermodellen stellte eine der Einschränkungen dieser Studie dar. Zukünftige Forschungsarbeiten sollten eine In-vivo-Validierung beinhalten, um die Rolle der miR-1298/BMP7-Achse in der Tumormikroumgebung weiter aufzuklären. Darüber hinaus könnten zukünftige Experimente die upstream- und downstream-Wegmechanismen der miR-1298/BMP7-Achse durch bioinformatische Vorhersagen sowie durch In-vitro- und In-vivo-Experimente weiter validieren. Die Nachbeobachtungszeit war relativ kurz, was die Aussagekraft der Langzeit-Überlebensschätzung begrenzte. Obwohl Kaplan-Meier- und Cox-Regression-Analysen durchgeführt wurden, könnten die Ergebnisse durch die relativ kurze Nachbeobachtungsdauer beeinflusst worden sein. Eine verlängerte Nachbeobachtung ist derzeit im Gange, um den prognostischen Wert von miR-1298 beim CRC zu überprüfen. Außerdem wurden die downstream-Signalwege (SMAD, PI3K/AKT, EMT), die durch die miR-1298/BMP7-Achse die Verhaltensweisen von CRC-Zellen steuern, in dieser Studie nicht experimentell verifiziert und bedürfen weiterer Untersuchungen. In dieser Studie wurden keine umgekehrten Rettungsexperimente (miR-1298-Inhibitor + BMP7-siRNA) durchgeführt. Solche Experimente würden komplementäre Hinweise liefern, ob die Herunterregulation von BMP7 die tumorsuppressiven Effekte der miR-1298-Inhibition umkehren könnte. Das Fehlen dieser Art von Rettungsexperiment schwächt unsere mechanistischen Schlussfolgerungen. Zukünftige Studien, die dieses umgekehrte Rettungsdesign sowie eine In-vivo-Validierung beinhalten, sind erforderlich, um die Funktion der miR-1298/BMP7-Achse beim CRC vollständig zu etablieren.
Zusammenfassend könnte miR-1298 mit der Progression von CRC assoziiert sein. Funktionell könnte miR-1298 die Proliferation, Invasion und Migration von CRC-Zellen hemmen. BMP7 könnte ein potenzieller funktioneller Vermittler von miR-1298 im CRC sein.
Offenlegungen
Die Autoren haben keine relevanten finanziellen oder nichtfinanziellen Interessen offenzulegen.
Danksagungen
Die Autoren erklären, dass während der Erstellung dieses Manuskripts keine Mittel, Zuschüsse oder sonstige Unterstützung erhalten wurden.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 0,1%ige Kristallviolett-Lösung | Sigma-Aldrich | C0775 | |
| 10 % SDS-PAGE-Kit | Epizym | PG112 | |
| 4 % Paraformaldehyd | Sigma-Aldrich | P6148 | |
| Zellkulturplatte mit 6 Vertiefungen | Corning | 3516 | |
| 96-Loch-Zellkulturplatte | Corning | 3599 | |
| Annexin V-FITC/PI-Apoptose-Detektionskit | Verschiedene (z. B. Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) oder 556547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| BCA-Kit | Sangon | C503021 | |
| BMP7-Mutante 3‘-UTR-Reporterplasmid | Speziell angefertigt (in pmirGLO kloniert) | Benutzerdefiniert | |
| BMP7-Primer | Sangon Biotech (Shanghai, China) | Maßgeschneiderte Synthese | |
| BMP7 Wildtyp 3‘-UTR-Reporterplasmid | Speziell hergestellt (in pmirGLO kloniert) | Benutzerdefiniert | |
| Cell Counting Kit-8 (CCK-8) | Dojindo (Japan) | CK04 | |
| Zellkulturgefäß (T-25) | Corning | 430639 | |
| DMEM (Dulbecco)‘s Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 11995065 | |
| Fötales Kälberserum (FBS) | Invitrogen (Thermo Fisher Scientific) | 16140071 | |
| FHC-Zelllinie (normale humane koloniale Epithelzellen) | ATCC | CRL-1831 | |
| Durchflusszytometer | BD Biosciences | FACSCanto™ II | |
| FlowJo V10 Software | FlowJo, LLC | — | |
| GAPDH-Primer (endogene Kontrolle für mRNA) | Sangon Biotech (Shanghai, China) | Maßgeschneiderte Synthese | |
| HCT-116-Zelllinie (humanes kolorektales Karzinom) | ATCC | CCL-247 | |
| mit HRP konjugiertes sekundäres Antikörper | Beyotime | A0208 | |
| Invertiertes Mikroskop | Nikon (oder gleichwertig) | Eclipse Ts2 | |
| Lipofectamin 3000 Transfektionsreagenz | Invitrogen (Thermo Fisher Scientific) | L3000015 | |
| Luciferase-Assay-System | Promega | E1500 | |
| Matrigel-Basalmembran-Matrix | Corning | 354230 | |
| Mikroplattenreader | BioTek (Agilent) | Synergy H1 | |
| miR-1298-Inhibitor | GenePharma (Shanghai, China) | Individuell (auf Bestellung synthetisiert) | |
| miR-1298-Mimetikum | GenePharma (Shanghai, China) | Individuell (auf Bestellung synthetisiert) | |
| miR-1298-Primer | Sangon Biotech (Shanghai, China) | Maßgeschneiderte Synthese | |
| Mir-X miRNA First-Strand Synthesis Kit | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, China) | Individuell (auf Bestellung synthetisiert) | |
| Opti-MEM | Gibco | 31985070 | |
| Passives Lysepuffer | Promega | E194A | |
| pcDNA3.1-Vektor (leerer Vektor-Kontrolle) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (OE-BMP7-Überexpression-Plasmid) | GenePharma (Shanghai, China) | Individuell (auf Bestellung synthetisiert) | |
| pmirGLO Dual-Luciferase-miRNA-Ziel-Expressionsvektor | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT Reagent Kit (Perfect Real Time) | Takara (Japan) | RR037A | |
| PrimeScript RT-Reagenzkit mit gDNA-Eraser | Takara Bio | RR047A | |
| Protease-Inhibitoren-Cocktail | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| RNase-freie Mikrozentrifugenröhrchen (1,5 mL) | Axygen (Corning) | MCT-150-C | |
| RNase-freie Pipettenspitzen | Axygen (Corning) | T-300 (10 µL), T-200-Y (200 µL), T-1000-B (1000 µL) | |
| si-BMP7 | GenePharma (Shanghai, China) | Individuell (auf Bestellung synthetisiert) | |
| si-NC | GenePharma (Shanghai, China) | Individuell (auf Bestellung synthetisiert) | |
| Staurosporin (Apoptose-Positivkontrolle) | Sigma-Aldrich | S5921 | |
| Zelllinie SW480 (humanes kolorektales Adenokarzinom) | ATCC | CCL-228 | |
| SYBR Green qPCR-Mastermix | Takara (Japan) | RR036A | |
| Transwell-Kammer (24-Loch, 8.0 µm Porengröße | Corning (Costar) | 3422 | |
| TRIzol-Reagenz | Invitrogen (Thermo Fisher Scientific) | 15596026 | |
| U6-Primer (endogene Kontrolle für miRNA) | Sangon Biotech (Shanghai, China) | Maßgeschneiderte Synthese |
Referenzen
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.