Dieser Artikel stellt einen schnellen, reproduzierbaren Arbeitsablauf zur Modellierung von Erkennungsgedächtnisstörungen durch Schlafentzug bei Mäusen vor, der sanften Schlafentzug, Testung der Erkennung neuer Objekte und Analyse hippocampaler Biomarker in denselben Tieren innerhalb einer 10-tägigen Pipeline kombiniert, ergänzt durch strukturierte Interventionsdokumentation und vordefinierte Qualitätskontrollkriterien.
Methodenartikel
Ein schneller Workflow zur Modellierung von schlafentzuginduzierten Defiziten des Erkennungsgedächtnisses bei Mäusen mittels Novel-Object-Recognition und hippocampaler Biomarker
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Unzureichender Schlaf trägt zum kognitiven Abbau bei und kann neurodegenerative Prozesse beschleunigen. Dieser Artikel stellt einen schnellen und reproduzierbaren Arbeitsablauf zur Modellierung von Erkennungsgedächtnisstörungen durch Schlafentzug bei Mäusen vor, wobei Verhaltensergebnisse mit molekularen Veränderungen im Hippocampus verknüpft werden. Das Protokoll verwendet ein fünf Stunden dauerndes Schlafentzugsparadigma mittels sanfter Behandlung, das unmittelbar nach einer standardisierten 10-minütigen Gewöhnungsphase an ein neues Objekt (Novel Object Recognition, NOR) durchgeführt wird. Die Erkennungsmemory wird mithilfe eines 5-minütigen NOR-Tests nach einem genau definierten 5-Stunden-Retentionsintervall bewertet, gefolgt von der sofortigen Entnahme des Hippocampus derselben Tiere zur Quantifizierung proinflammatorischer Zytokine, einschließlich Interleukin-1-beta (IL-1β), Interleukin-6 (IL-6) und Tumor-Nekrose-Faktor-alpha (TNF-α), sowie von Markern für oxidativen Stress, darunter Superoxiddismutase (SOD), Glutathionperoxidase (GPx) und Malondialdehyd (MDA). Der wesentliche methodische Fortschritt liegt nicht in den einzelnen verhaltensbezogenen oder biochemischen Techniken, die bereits etabliert sind, sondern in deren operationeller Standardisierung zu einem zusammenhängenden Arbeitsablauf. Das Protokoll erfordert ein strukturiertes, quantifizierbares Protokoll der sanften Handhabungsmaßnahmen, verankert Training und Schlafentzug an einem festen zirkadianen Zeitpunkt, bewahrt die Zuordnung von NOR-Aufzeichnungen zu Gewebeproben auf Ebene des einzelnen Tieres und legt Qualitätskontroll- und Analysekriterien im Voraus fest. Das Verfahren ist so konzipiert, dass es körperliche Fixierung und erzwungene Bewegung minimiert, kann innerhalb eines kurzen experimentellen Zeitfensters abgeschlossen werden und wird als Referenzarbeitsablauf vorgeschlagen, den einzelne Labore nutzen können, um ihre eigene Durchführung der sanften Schlafentzugsmethode zu überprüfen, sobald eine unabhängige Reproduktion erfolgt ist.
Einleitung
Schlaf ist ein grundlegender physiologischer Prozess, der für die Gehirnfunktion, das Lernen und die Gedächtniskonsolidierung unerlässlich ist1. Unzureichender Schlaf ist mit kognitiven Funktionsstörungen, Stimmungsstörungen und dem Fortschreiten neurodegenerativer Erkrankungen assoziiert2. Experimentelle Schlafentzug (SD) bei Nagetieren wird häufig verwendet, um die neurobiologischen Folgen eines akuten Schlafentzugs zu untersuchen. Der Hippocampus, ein Gehirnareal, das für deklaratives und räumliches Gedächtnis zentral ist, ist besonders anfällig für Schlafentzug3.
Es stehen mehrere Verfahren zur Induktion von Schlafentzug bei Nagetieren zur Verfügung. Die modifizierte Mehrfachplattform-Methode kann den schnellen Augenbewegungsschlaf effektiv reduzieren, führt jedoch möglicherweise zu erheblichem Stress und körperlicher Erschöpfung4. Im Gegensatz dazu erhält die sanfte Handhabung (GH) das Wachbleiben durch leichte sensorische Reize aufrecht, wie beispielsweise das Antippen des Käfigs, Störung des Einstreus oder das Vorlegen von neuem Nistmaterial, sobald Anzeichen für Schlaf auftreten. Eine kurze GH-Phase, die unmittelbar nach dem Lernen angewendet wird, kann die hippocampusabhängige Gedächtniskonsolidierung stören, gleichzeitig jedoch viele Störfaktoren vermeiden, die mit länger andauernden Deprivationsparadigmen assoziiert sind5. Da die Interventionen in diesem Protokoll durch Körperhaltung und Verhaltensmerkmale der Wachheit ausgelöst werden und nicht durch EEG-bestätigte REM-Erkennung, stellt die hier angewandte GH eine etablierte Methode für totalen Schlafentzug dar und nicht eine REM-spezifische Technik; sie wird bereits seit mehreren Jahrzehnten in dieser Form eingesetzt6.
Der Test zur Erkennung neuartiger Objekte (NOR) ist ein weit verbreiteter Assay für das Erkennungsgedächtnis. Er beruht auf der natürlichen Neigung von Nagetieren, ein neues Objekt stärker zu erkunden als ein vertrautes, ohne dass Belohnung, Bestrafung oder umfangreiches Training erforderlich sind7,8. Akuter Schlafentzug wurde als Ursache für eine beeinträchtigte Unterscheidung zwischen neuen und bekannten Objekten nachgewiesen und liefert somit einen effizienten verhaltensbasierten Hinweis auf eine gestörte Gedächtniskonsolidierung9. Auf molekularer Ebene kann Schlafmangel hippocampale Neuroinflammation und oxidativen Stress hervorrufen, einschließlich erhöhter Spiegel proinflammatorischer Zytokine und Produkte der Lipidperoxidation sowie einer verminderten antioxidativen Kapazität10,11.
Die Herausforderung bei der Anwendung dieses Modells liegt nicht in der Verfügbarkeit der einzelnen Elemente, sondern in der fehlenden operationalen Konsistenz zwischen den Studien. Sanftes Handling wird oft ohne strukturierte Dokumentation der Interventionsintensität berichtet; Verhaltens- und molekulare Endpunkte werden häufig an getrennten Kohorten erhoben; und Qualitätskontrollkriterien für das Erkundungsverhalten sowie die Planung der Stichprobengröße sind nicht immer explizit angegeben. Das übergeordnete Ziel des vorliegenden Artikels besteht darin, einen standardisierten Arbeitsablauf zur Modellierung von Erkennungsgedächtnisstörungen infolge von Schlafentzug bereitzustellen, wobei die verhaltensbezogenen Ergebnisse mit molekularen Messungen im Hippocampus bei denselben Tieren verknüpft werden. Die Methode schließt diese Reproduzierbarkeitslücken, indem sie ein fünf Stunden nach dem Training beginnendes Zeitfenster für sanftes Handling, eine Protokollierung der Interventionsintensität, die Erhebung von Verhaltensdaten und Gewebeproben an derselben Kohorte sowie vordefinierte Analysekriterien in einer einzigen zehntägigen Pipeline kombiniert (Abbildung 1). Auf die fehlende Standardisierung bei der Durchführung des sanften Handlings wurde bereits früher in der Methodenliteratur zur Schlafforschung hingewiesen6.
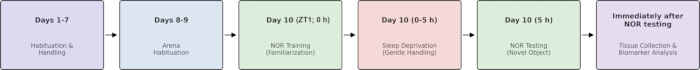
Abbildung 1. Schematische Darstellung des experimentellen Arbeitsablaufs. Das Protokoll erstreckt sich über 10 Tage, einschließlich Umgewöhnung und Habituation, gefolgt von einem entscheidenden Testtag, der eine 10-minütige NOR-Vertrautmachungsphase, 5 h Schlafentzug während des GH, eine 5-minütige NOR-Testphase und unmittelbar anschließend die Gewebegewinnung aus dem Hippocampus derselben Tiere zur Biomarkeranalyse umfasst. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Protokoll
Alle Tierversuche wurden von dem Ausschuss für Tierschutz und Ethik der Laboratoriumstiere von AILIMO (Zhejiang AILIMO Biotechnology Co., Ltd.) geprüft und genehmigt, beantragt vom Nanjing Drum Tower Hospital (Leitender Wissenschaftler: Yuan Liu), Genehmigungsnummer AP CODE: ALM202605070, genehmigt am 7. Mai 2026 (gültig für 4 Jahre), entsprechend den geltenden institutionellen und nationalen Vorschriften. Verwenden Sie erwachsene männliche C57BL/6J-Mäuse (8–12 Wochen alt) für das unten beschriebene Protokoll.
1. Vorbereitung und Gewöhnung der Tiere
- Halten Sie Hausmäuse unter standardmäßigen Laborbedingungen bei 22°C ± 1°C und 50–60 % Luftfeuchtigkeit mit einem 12-h-Hell-Dunkel-Zyklus (Licht an um 07:00, definiert als ZT0). Gewähren Sie ad libitum-Zugang zu Standard-Nagetierfutter und Wasser.
- Handhaben Sie jede Maus täglich für 3–5 min über mindestens 7 aufeinanderfolgende Tage vor dem Test.
ANMERKUNG: Dieses Verfahren minimiert durch Handhabung verursachten Stress, der das Erkundungsverhalten beeinflussen könnte. - Bereiten Sie eine quadratische, undurchsichtige NOR-Arena mit den Maßen 40 cm × 40 cm × 40 cm und nicht reflektierenden Wänden vor. Verwenden Sie eine Arenafarbe, die sich vom Fellfarbton der Tiere abhebt.
- Wählen Sie NOR-Objekte, die schwer genug sind, um ein Verschieben zu verhindern, und aus nicht porösem Material bestehen. Verwenden Sie Objekte, die sich in Form und Textur unterscheiden lassen, jedoch in der Gesamtgröße vergleichbar bleiben.
ANMERKUNG: Abbildung 2 zeigt die Trainings- und Testanordnung. - Am 8. und 9. Tag bringen Sie die Mäuse 1 h vor der Gewöhnung in den Versuchsraum. Stellen Sie jede Maus für 10 min in die leere Arena und kehren Sie sie anschließend in ihren Heimkäfig zurück.
- Reinigen Sie die Arena und die Objekte zwischen den Tieren mit 70 %igem Ethanol. Lassen Sie das Ethanol unter normaler Laborbelüftung etwa 3–5 min lang an der Luft trocknen, bevor das nächste Tier eingebracht wird.
ACHTUNG: Ethanol ist hochentzündlich. Sorgen Sie für ausreichende Belüftung und halten Sie es von Zündquellen fern.
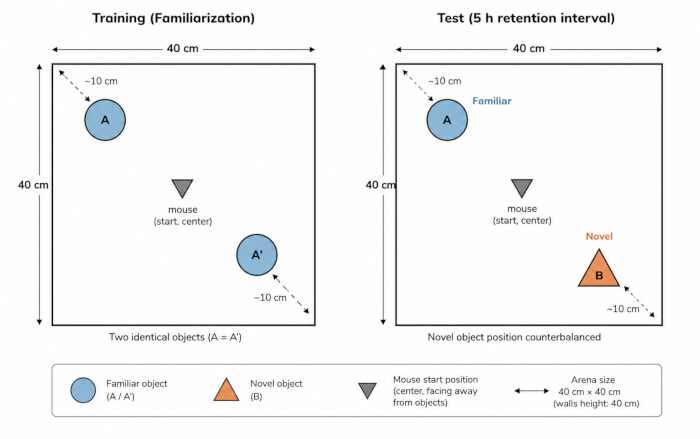
Abbildung 2. Schematische Darstellung der Apparatur und des experimentellen Designs für die Erkennung neuartiger Objekte. Wählen Sie während der Gewöhnungsphase zwei identische Objekte (A und A′) und platzieren Sie diese in gegenüberliegenden Ecken der Versuchsarena. Ersetzen Sie nach einer Retentionsphase von 5 h eines der bekannten Objekte durch ein neuartiges Objekt (B). Balancieren Sie die Position des neuartigen Objekts zwischen linker und rechter Seite über alle Tiere hinweg aus, sodass ungefähr die Hälfte der Tiere jeder Gruppe das neuartige Objekt in jeder Position erhält, um räumliche Voreingenommenheit zu minimieren. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
2. NOR-Training (Eingewöhnung)
- Beginnen Sie am Tag 10 um ZT1 (08:00 Uhr gemäß dem angegebenen Lichtplan) mit dem NOR-Training. Halten Sie diese Startzeit über alle Kohorten hinweg ein, um zirkadiane Schwankungen zu minimieren.
- Bringen Sie die Mäuse 1 Stunde vor Beginn der Trainingssitzung in den Versuchsraum. Platzieren Sie zwei identische Objekte (A und A′) in gegenüberliegenden Ecken der Versuchsarena, jeweils etwa 10 cm von den Wänden entfernt.
- Befestigen Sie die Objekte bei Bedarf am Boden.
- Setzen Sie die Maus in die Mitte der Arena, sodass sie mit der Nase von den Objekten wegzeigt. Lassen Sie die Maus 10 Minuten lang frei erkunden.
- Zeichnen Sie das Verhalten mit einem über Kopf montierten Video-Tracking-System auf. Definieren Sie aktive Erkundung als das Zuwenden der Nase in Richtung eines Objekts auf eine Distanz von ≤2 cm, das Beschnüffeln des Objekts oder das Berühren mit der Nase.
HINWEIS: Das Sitzen auf oder Klettern an einem Objekt ohne aktives Beschnüffeln darf nicht als Objekterkundung gewertet werden. - Nehmen Sie das NOR-Verhalten mit EthoVision XT Version 17.5 und einer über Kopf montierten Basler acA1300-60gm-Kamera auf und werten Sie es aus. Konfigurieren Sie die Tracking-Software mit einer Detektionszone am Nasenpunkt von ≤2 cm Abstand zu jedem Objekt, um aktive Erkundung entsprechend den in Schritt 2.5 definierten Kriterien zu bewerten.
- Entfernen Sie die Maus am Ende der 10-minütigen Gewöhnungsphase unmittelbar aus der Arena.
- Reinigen Sie die Arena und die Objekte gründlich mit 70 %igem Ethanol, bevor das nächste Tier eingesetzt wird.
3. Schlafentzug durch sanfte Handhabung
- Weisen Sie jedem Tier vor der Trainingssitzung am Tag 10 einen eindeutigen Identifikationscode zu. Behalten Sie den Identifikationscode während der Verhaltensaufzeichnung und der Gewebesammlung bei.
- Weisen Sie die Tiere mithilfe von computergenerierten Zufallszahlen, die mit der Excel-Funktion ZUFALLSZAHL erstellt wurden, im Verhältnis 1:1 den Gruppen SD und NSD zu.
- Unmittelbar nach dem NOR-Training kehren die NSD-Mäuse in ihre Heimkäfige zurück und bleiben dort 5 Stunden lang ungestört. Halten Sie die Tiere der Gruppen SD und NSD unter vergleichbaren Umweltbedingungen und innerhalb desselben zirkadianen Zeitfensters.
- Unmittelbar nach dem NOR-Training beginnen Sie die GH-Schlafentzug-Behandlung bei den SD-Mäusen. Erhalten Sie die Wachheit für 5 aufeinanderfolgende Stunden im Heimkäfig aufrecht.
- Überwachen Sie die Tiere kontinuierlich. Greifen Sie ein, wenn eine Maus schlafassoziierte Haltungen einnimmt, wie das Zusammenrollen, das Schließen der Augen oder anhaltende Bewegungslosigkeit.
- Wenden Sie die Stimulation schrittweise an, beginnend mit vorsichtigem Klopfen auf den Käfig. Falls erforderlich, stören Sie leicht das Einstreu, geben Sie einen sauberen, neuen Gegenstand wie eine Papierröhre hinzu oder berühren Sie das Tier vorsichtig mit einem weichen Pinsel.
- Vermeiden Sie körperliche Fixierung, erzwungene Bewegung sowie aversive oder schmerzhafte Reize.
- Füllen Sie das Interventionsprotokoll in Tabelle 1 für jeden Käfig während des gesamten 5-stündigen GH-Zeitraums aus. Notieren Sie die ungefähre Anzahl der Interventionen pro Stunde, die vorherrschende Art der Intervention sowie alle Abweichungen vom Protokoll oder Tierwohlbedenken.
- Verwenden Sie dieselbe Vorlage für das Interventionsprotokoll über alle Kohorten hinweg.
ACHTUNG: Verwenden Sie keine körperliche Fixierung, erzwungene Bewegung oder schmerzhafte Reize, da diese unabhängig die Gedächtnisleistung, den Stresslevel und entzündliche Parameter beeinflussen können.
| Käfig/Kohorten-ID | H1 | H2 | H3 | H4 | H5 | Dominante Eingriffsart(en) | Abweichung oder Wohlbefindenbeobachtung |
| Datensatz-ID | Anzahl Datensatz H1 | Anzahl Datensatz H2 | Anzahl Datensatz H3 | Anzahl Datensatz H4 | Anzahl Datensatz H5 | Antippen / Einstreu / neuartiger Gegenstand / weiche Bürste | Aufzeichnen, falls vorhanden |
Tabelle 1: Vorlage für das Protokoll der sanften Handhabung. Notieren Sie die Käfig- oder Kohorten-ID, die Anzahl der sanften Handhabungsmaßnahmen während jeder Stunde der 5 h dauernden Schlafentzugsphase (H1–H5), die vorherrschenden Arten der Maßnahmen sowie alle Abweichungen vom Protokoll oder Beobachtungen zum Wohlergehen.
4. NOR-Testphase
- Beginn der NOR-Testphase genau 5 h nach Abschluss des NOR-Trainings, um ein festes Retentionsintervall von 5 h beizubehalten.
- Platzieren Sie ein bekanntes Objekt (A) und ein neues Objekt (B) in der Versuchsarena.
- Balancieren Sie die Position des neuen Objekts über die Tiere hinweg aus, indem Sie die Platzierung zwischen linker und rechter Position wechseln, sodass etwa die Hälfte der Tiere jeder Gruppe das neue Objekt links und die andere Hälfte rechts erhält.
- Stellen Sie die Maus in die Mitte der Arena. Lassen Sie die Maus 5 min lang frei erkunden.
- Nehmen Sie die Sitzung mit dem gleichen überkopf montierten Video-Tracking-System auf, das auch für die Gewöhnungsphase verwendet wurde. Wenden Sie die in Schritt 2.5 festgelegte Definition für das Erkundungsverhalten an.
- Reinigen Sie die Arena und die Objekte zwischen den Tieren mit 70%igem Ethanol.
5. Gewebesammlung und Hippocampus-Dissektion derselben Kohorte
- Identifizieren Sie unmittelbar nach dem NOR-Test dasselbe verhaltensmäßig untersuchte Tier für die Gewinnung von Gewebeproben.
- Töten Sie das Tier durch Enthauptung ohne Anästhesie gemäß dem genehmigten Tierversuchsprotokoll, um mögliche störende Einflüsse anästhetischer Substanzen auf inflammatorische und phosphorylierungsabhängige Biomarker zu vermeiden. Sammeln Sie das Gehirngewebe unmittelbar nach der Tötung.
- Behalten Sie die eindeutige Verhaltens-Test-ID des Tieres auf allen Probenröhrchen und Unterlagen bei, um sicherzustellen, dass jede molekulare Probe direkt mit dem NOR-Ergebnis dieses Tieres verknüpft bleibt.
- Entnehmen Sie das Gehirn rasch und legen Sie es auf eine sterile, eiskalte Schneidefläche.
- Trennen Sie die Hemisphären durch einen mittig sagittalen Schnitt. Präparieren Sie den Hippocampus aus jeder Hemisphäre mithilfe gekühlter Mikrospatel.
- Schockfrieren Sie die präparierten Hippocampi in flüssigem Stickstoff ein. Lagern Sie die Proben bei −80°C bis zur Analyse.
ACHTUNG: Flüssiger Stickstoff kann schwere Kälteverletzungen verursachen. Tragen Sie geeignete kryogene Schutzausrüstung.
6. Quantifizierung von Hippocampus-Biomarkern
- Fügen Sie der eiskalten RIPA-Lysepufferlösung eine kombinierte Protease- und Phosphatase-Inhibitor-Cocktail-Lösung in einer 1× Arbeitskonzentration hinzu (10 µL pro mL Lysepuffer aus einer 100× Stammlösung).
- Homogenisieren Sie das Hippocampusgewebe im Verhältnis 1:10 Gewebe zu Puffer (w/v) in dem ergänzten eiskalten RIPA-Lysepuffer (10 µL Lysepuffer pro mg Gewebe). Für eine typische Hippocampusgewebemasse von etwa 25–30 mg pro Hemisphäre verwenden Sie etwa 250–300 µL Lysepuffer pro Hemisphäre oder etwa 500–600 µL für etwa 50–60 mg bilaterales Hippocampusgewebe.
- Zentrifugieren Sie das RIPA-Homogenat 15 min bei 14.000 × g bei 4 °C und sammeln Sie den Überstand. Verwenden Sie den Überstand für die Gesamtproteinkonzentrationsbestimmung und die drei Zytokin-ELISAs.
ANMERKUNG: Verwenden Sie die jeweils kitspezifischen Homogenisierungspuffer für die SOD-, GPx- und MDA-Assays gemäß den Herstellerempfehlungen zur Erhaltung der enzymatischen Aktivität. - Stellen Sie ein separates 10 %iges (w/v) Hippocampus-Homogenat für die SOD-, GPx- und MDA-Messungen im Verhältnis 1:9 Gewebe zu Puffer her, wobei Sie den jeweils kitspezifischen Homogenisierungspuffer anstelle des RIPA-Lysepuffers verwenden.
- Bestimmen Sie die Gesamtproteinkonzentration mithilfe eines BCA-Proteinassays.
- Quantifizieren Sie IL-1β, IL-6, TNF-α, SOD, GPx und MDA unter Verwendung der zielgerichteten ELISA- oder biochemischen Assaysysteme, die in der Tabelle der Materialien aufgeführt sind. Befolgen Sie die jeweiligen Herstelleranweisungen für jeden Assay.
- Stellen Sie die Standardlösungen im entsprechenden Assaypuffer her. Verdünnen Sie die Proben so, dass die Werte der optischen Dichte im linearen Bereich der Standardkurve liegen.
- Verdünnen Sie die Hippocampusproben für die Zytokin-ELISAs etwa im Verhältnis 1:5 mit dem entsprechenden Assayverdünnungspuffer. Passen Sie die Verdünnung im Bereich von 1:2 bis 1:10 an, um optische Dichtewerte im linearen Bereich der Standardkurve zu erhalten.
- Verwenden Sie die Überstände der 10 %igen (w/v) Hippocampus-Homogenate, die in Schritt 6.4 beschrieben sind, direkt für die SOD-, GPx- und MDA-Assays. Wenden Sie das in Schritt 6.8 beschriebene Verdünnungsschema für die Zytokin-ELISAs nicht auf diese drei Assays an.
- Für die IL-1β-, IL-6- und TNF-α-ELISAs geben Sie 100 µL Standard oder angemessen verdünnte Hippocampusprobe pro Vertiefung in Duplikaten hinein und inkubieren 90 min bei 37 °C. Fügen Sie 100 µL biotinyliertes Detektionsantikörper hinzu und inkubieren weitere 60 min bei 37 °C.
- Geben Sie 100 µL HRP-Konjugat in jede Zytokin-ELISA-Vertiefung und inkubieren 30 min bei 37 °C. Entwickeln Sie mit TMB-Substrat 15 min bei 37 °C im Dunkeln.
- Für den SOD-Assay mischen Sie 20 µL Überstand des Hippocampus-Homogenats mit 20 µL Enzym-Arbeitslösung und 200 µL Substratlösung. Inkubieren Sie 20 min bei 37 °C und messen Sie die Extinktion bei 450 nm.
- Für den GPx-Assay geben Sie 200 µL Überstand des Hippocampus-Homogenats zur GSH-haltigen Reaktionsmischung hinzu und inkubieren 5 min bei 37 °C. Stoppen Sie die Reaktion und zentrifugieren Sie die Mischung 10 min bei 3500 × g bei 4 °C. Führen Sie die Farbentwicklung des Überstands etwa 15 min durch und messen Sie die Extinktion bei 412 nm unter Verwendung von 200 µL des Reaktionsüberstands.
- Für den MDA-Assay mischen Sie 100 µL Überstand des Hippocampus-Homogenats mit 1,0 mL MDA-Arbeitsreagenz und inkubieren 40 min im 95 °C heißen Wasserbad. Kühlen Sie ab und zentrifugieren Sie die Mischung. Überführen Sie etwa 250 µL des Überstands in eine Mikrotiterplatte und messen Sie die Extinktion bei 532 nm.
- Lesen Sie für die Zytokin-ELISAs die Extinktion bei der vom Kit vorgegebenen Wellenlänge, typischerweise 450 nm, unter Verwendung einer Referenzwellenlängenkorrektur, falls verfügbar.
- Erstellen Sie eine Standardkurve unter Verwendung eines geeigneten Modells, beispielsweise einer Vier-Parameter-Logistischen-Regression. Normalisieren Sie jede Biomarker-Messung auf den Gesamtproteingehalt.
- Geben Sie die Zytokinkonzentrationen in pg/mg Protein, die Aktivitäten der antioxidativen Enzyme in U/mg Protein und MDA in nmol/mg Protein an, sofern dies mit dem gewählten Kit kompatibel ist.
7. Datenanalyse und Qualitätskontrolle
- Extrahieren Sie die Untersuchungszeit für das bekannte Objekt (Tfamiliar) und das neue Objekt (Tnovel) während der NOR-Testphase.
- Berechnen Sie den Diskriminationsindex (DI) wie folgt:
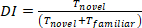 .
HINWEIS: Ein DI über 0,5 weist auf eine Präferenz für das neue Objekt hin. - Schließen Sie ein Tier von der NOR-Analyse aus, wenn die gesamte Objektuntersuchungszeit (Tnovel + Tfamiliar) weniger als 10 s beträgt. Wenden Sie dieses Kriterium vor der Analyse auf Gruppenebene an und dokumentieren Sie alle Ausschlüsse.
- Prüfen Sie die Normalverteilung jeder Gruppe mit dem Shapiro-Wilk-Test und die Varianzhomogenität mit dem Levene-Test. Bewerten Sie für jede Gruppe den DI im Vergleich zum Zufallswert von 0,5 mithilfe eines zweiseitigen einstichproben-t-Tests; falls die Annahme der Normalverteilung nicht erfüllt ist, verwenden Sie stattdessen einen einstichproben-Wilcoxon-Vorzeichen-Rang-Test gegenüber 0,5.
- Legen Sie Alpha für alle statistischen Tests auf 0,05 fest, sofern nicht anders angegeben.
- Vergleichen Sie den DI zwischen unabhängigen NSD- und SD-Gruppen mithilfe eines zweiseitigen ungepaarten t-Tests, wenn die Annahmen der Normalverteilung und Varianzhomogenität erfüllt sind. Verwenden Sie andernfalls einen Mann-Whitney-U-Test.
- Analysieren Sie die Untersuchungszeit für bekanntes versus neues Objekt mittels einer zweifaktoriellen Varianzanalyse mit Messwiederholung mit den Faktoren Gruppe und Objekttyp. Führen Sie paarweise post-hoc-Vergleiche mit Sidak-Korrektur durch und berichten Sie 95 % Konfidenzintervalle zusammen mit allen Gruppenvergleichsschätzungen.
- Vergleichen Sie jeden hippokampalen Biomarker zwischen unabhängigen NSD- und SD-Gruppen mithilfe eines zweiseitigen ungepaarten t-Tests, wenn die Annahmen der Normalverteilung und Varianzhomogenität erfüllt sind. Verwenden Sie andernfalls einen Mann-Whitney-U-Test.
- Wenn mehrere Biomarker derselben Kohorte ausgewertet werden, kontrollieren Sie die Fehlentdeckungsrate (FDR) über das gesamte Biomarkerpanel mithilfe des Verfahrens nach Benjamini-Hochberg. Berichten Sie sowohl nominelle als auch FDR-korrigierte p-Werte.
- Führen Sie die a-priori-Power-Analyse mit G*Power Version 3.1 für einen zweiseitigen Vergleich unabhängiger Stichproben durch, wobei der NOR-Diskriminationsindex als primärer Endpunkt dient. Begründen Sie die erwartete Effektgröße anhand zuvor veröffentlichter Studien, die eine deutliche Beeinträchtigung der Präferenz für das neue Objekt nach Schlafentzug nach dem Lernen zeigen.
- Führen Sie die a-priori-Power-Analyse mit einer standardisierten Effektgröße nach Cohen’s d = 1,35, einem zweiseitigen Alpha von 0,05, einer Power von 80 % und einem Allokationsverhältnis von 1:1 durch. Diese Parameter ergeben eine berechnete Mindeststichprobengröße von 10 Tieren pro Gruppe.
HINWEIS: Die Effektgröße wurde anhand zuvor veröffentlichter Daten zur Objekterkennung geschätzt9. Palchykova et al. berichteten über einen signifikanten Gruppeneffekt bezüglich der Untersuchungsdauer des neuen Objekts während der Testphase (F(1,16) = 8,26, p < 0,007) bei Mäusen, die unmittelbar nach dem Training schlafentzogen wurden, im Vergleich zu zeitlich abgestimmten Kontrollen (n = 9 pro Gruppe), was einer Effektgröße nach Cohen’s d ≈ 1,36 entspricht. Daher wurde für die a-priori-Power-Analyse eine standardisierte Effektgröße von d = 1,35 zugrunde gelegt. - Erhöhen Sie die geplante Stichprobengröße um 20 % auf 12 Tiere pro Gruppe (insgesamt 24 Tiere), um vorgegebene Verhaltens- oder technische Ausschlüsse zu berücksichtigen. Legen Sie als Ausschlusskriterien fest: Gesamtuntersuchungszeit der Objekte <10 s während des NOR-Tests, ausschließungsbedingte Tierschutzgründe, nicht verwendbare Videoaufnahmen und technische Ausfälle bei Gewebe- oder Probentests.
- Schließen Sie Tiere nicht basierend auf der Richtung oder Stärke des beobachteten Behandlungseffekts aus.
- Führen Sie die statistischen Analysen mit Python Version 3.12, SciPy Version 1.17 für Hypothesentests und Effektgrößenberechnungen sowie statsmodels Version 0.14 für die Falschentdeckungsrate-Korrektur nach Benjamini-Hochberg durch.
- Wenn Sie mit diesem Protokoll einen formalen Datensatz erstellen, berichten Sie Effektgrößen (z. B. Cohens d für Gruppenvergleiche) zusammen mit den p-Werten für alle in den Schritten 7.4–7.9 angegebenen statistischen Tests.
Ergebnisse
Eine erfolgreiche Durchführung dieses Protokolls sollte ein kohärentes Verhaltens-Molekular-Muster ergeben, ohne dass die isolierte Interpretation einzelner Messwerte erforderlich ist. Die vollständige experimentelle Abfolge ist in Abbildung 1 dargestellt, und die NOR-Apparatur sowie der experimentelle Aufbau sind in Abbildung 2 gezeigt. In der NSD-Gruppe sollten die Mäuse eine klare Präferenz für das neue Objekt zeigen, was sich in einem Diskriminierungsindex (DI) über dem Zufallswert von 0,5 widerspiegelt. Mäuse, die dem 5-h-Post-Training-GH-Protokoll ausgesetzt waren, sollten eine verminderte Präferenz für das neue Objekt und einen niedrigeren DI im Vergleich zu NSD-Kontrollen aufweisen. Die gesamte Objektexploration sollte zwischen den Gruppen vergleichbar bleiben; eine globale Reduktion der Exploration würde auf motorische, Angst- oder methodische Störgrößen hinweisen, anstatt auf einen selektiven Defizit in der Erkennungsmemory. In der vorliegenden Kohorte (NSD, n = 12; SD, n = 12, wobei ein Tier gemäß der vorgegebenen Schwelle für die Gesamtexplorationszeit in Schritt 7.3 ausgeschlossen wurde, sodass n = 11 für die NOR-Analyse verblieben; dieser Ausschluss wurde einheitlich auf die unten berichteten Analysen des Diskriminierungsindex und der Gesamtexplorationszeit angewandt) zeigten NSD-Mäuse einen mittleren DI von 0,70 ± 0,05 (Mittelwert ± SD), signifikant über dem Zufallswert (Einstichproben-t-Test, t(11) = 15,21, p < 0,0001), während SD-Mäuse einen mittleren DI von 0,51 ± 0,05 aufwiesen, der nicht signifikant vom Zufall abwich (t(10) = 0,49, p = 0,638). Der DI unterschied sich signifikant zwischen den Gruppen (Zweistichproben-t-Test, t(21) = 9,28, p < 0,0001; Cohens d = 3,87; mittlere Differenz = 0,19, 95 % KI [0,15, 0,23]) (Abbildung 3A). Die Gesamtexplorationszeit unterschied sich nicht signifikant zwischen den Gruppen (NSD: 33,5 ± 8,7 s; SD: 29,9 ± 6,2 s; t(21) = 1,13, p = 0,272) (Abbildung 3B), was mit einem selektiven Effekt auf das Erkennungsgedächtnis und nicht mit einer allgemeinen Reduktion explorativen Verhaltens übereinstimmt.
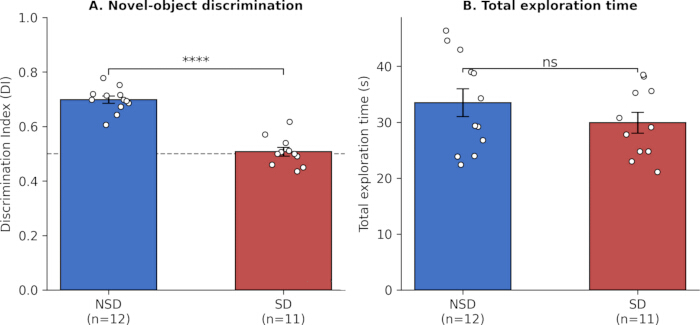
Abbildung 3. Leistung beim Erkennen neuartiger Objekte. (A) Diskriminationsindex (DI) für die NSD- (n = 12) und SD-Gruppen (n = 11; ein Tier wurde gemäß der vorab festgelegten Schwelle für die Gesamtexplorationszeit ausgeschlossen). Die gestrichelte Linie zeigt den Zufallswert von 0,5 an. (B) Gesamte Objektexplorationszeit während der Testphase für die NSD- (n = 12) und SD-Gruppen (n = 11; dieselbe Ausschlusskriterium wie in Panel A). Die Balken zeigen den Mittelwert ± Standardfehler des Mittelwerts (SEM) an; offene Kreise stellen einzelne Tiere dar. ****p < 0,0001; ns, nicht signifikant (zweiseitiger ungepaarter t-Test). Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
Im Interventionsprotokoll (Tabelle 1) sollte ersichtlich sein, dass die Gehwegaktivität (GH) durch milde, schrittweise intensivierte sensorische Interventionen aufrechterhalten wurde, anstelle von Fixierung oder erzwungener Fortbewegung. Große Unterschiede in der stündlichen Anzahl der Interventionen zwischen den Kohorten sollten eine Überprüfung der Käfigbedingungen, der Beobachterkonsistenz und der Handhabungspraktiken vor der Interpretation von Verhaltensunterschieden veranlassen. Bei den 12 in dieser Studie erfassten Kohorten bewegte sich die Anzahl der stündlichen Interventionen während des 5-stündigen GH-Zeitraums zwischen 1 und 6 pro Stunde, wobei hauptsächlich Klopfen auf den Käfig und Störung des Einstreus erfolgte; weiche Bürsten und neuartige Objekte wurden seltener eingesetzt. Kein Käfig erforderte physische Fixierung oder erzwungene Fortbewegung, und es wurden keine Abweichungen in Bezug auf das Wohlergehen beobachtet.
Biochemische Messungen, die von denselben Tieren stammen, sollten einen molekularen Kontext für das Verhaltensphänotyp liefern. Ein erfolgreicher SD-Modellversuch sollte im Vergleich zu passenden NSD-Kontrollen ein koordiniertes Muster mit erhöhter hippocampaler Belastung durch proinflammatorische Zytokine, verminderte Aktivität antioxidativer Enzyme und erhöhte Marker der Lipidperoxidation aufweisen. Die Zuordnung jeder Gewebeprobe zum entsprechenden NOR-Datensatz ermöglicht eine tierindividuelle Bewertung der Übereinstimmung zwischen Verhalten und molekularen Befunden und vermeidet gleichzeitig die Batch-Variabilität, die durch separate Verhaltens- und biochemische Kohorten entstehen würde. In der vorliegenden Kohorte (NSD, n = 12; SD, n = 12) unterschieden sich alle sechs hippocampalen Biomarker zwischen den Gruppen in der erwarteten Richtung signifikant und blieben auch nach Benjamini–Hochberg-FDR-Korrektur über das Sechs-Marker-Panel hinweg signifikant: IL-1β (NSD 43,4 ± 7,5 vs. SD 58,6 ± 5,3 pg/mg Protein; t(22) = −5,73, nominelles p < 0,0001, FDR-angepasstes p < 0,0001, d = −2,34), IL-6 (57,8 ± 8,1 vs. 71,8 ± 7,4 pg/mg; t(22) = −4,42, nominelles p = 0,0002, FDR-angepasstes p = 0,0002, d = −1,81), TNF-α (40,5 ± 7,8 vs. 55,1 ± 7,8 pg/mg; t(22) = −4,60, nominelles p = 0,0001, FDR-angepasstes p = 0,0002, d = −1,88), SOD (18,0 ± 2,0 vs. 14,0 ± 1,8 U/mg; t(22) = 5,16, nominelles p < 0,0001, FDR-angepasstes p < 0,0001, d = 2,11), GPx (13,2 ± 0,9 vs. 10,8 ± 1,4 U/mg; t(22) = 4,92, nominelles p < 0,0001, FDR-angepasstes p < 0,0001, d = 2,01) und MDA (3,5 ± 0,3 vs. 4,9 ± 0,8 nmol/mg; t(22) = −5,59, nominelles p < 0,0001, FDR-angepasstes p < 0,0001, d = −2,28). Diese Daten sind in Abbildung 4 dargestellt. Die in Abbildung 3 und Abbildung 4 gezeigten Einzeldatenpunkte entsprechen den tatsächlich in dieser Kohorte erhobenen experimentellen Messungen, und alle berichteten Mittelwerte, Effektstärken, p-Werte und Konfidenzintervalle wurden direkt aus diesen zugrundeliegenden Daten berechnet.
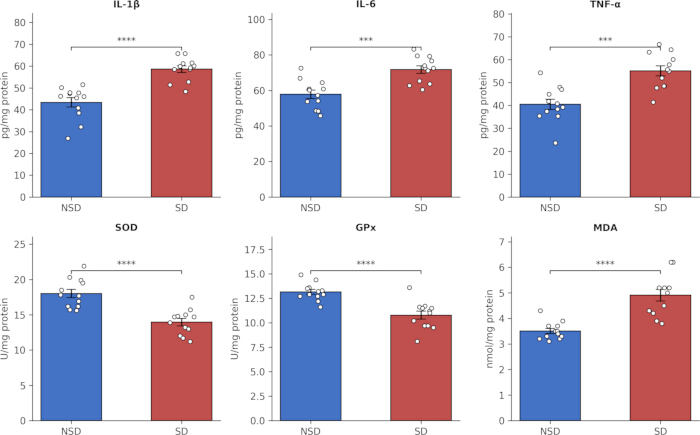
Abbildung 4. Hippocampale Biomarker bei NSD- im Vergleich zu SD-Mäusen. Hippocampale Spiegel von IL-1β, IL-6 und TNF-α (proinflammatorische Zytokine), SOD und GPx (antioxidative Enzyme) sowie MDA (Marker der Lipidperoxidation) bei NSD- (n = 12) und SD-Mäusen (n = 12). Die Balken zeigen den Mittelwert ± SEM; offene Kreise stellen einzelne Tiere dar. Die Signifikanzmarkierungen entsprechen den nach Benjamini–Hochberg FDR-adjustierten p-Werten über das Sechs-Marker-Panel. ***p < 0,001 und ****p < 0,0001 nach FDR-Korrektur (zweiseitige ungepaarte t-Tests). Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
Wenn NSD-Mäuse keine Präferenz für ein neuartiges Objekt zeigen, wenn die Gesamtexploration unterhalb des vorab festgelegten Schwellenwerts liegt oder wenn die Varianz der Biomarker unerwartet groß ist, sollten Sie die Gewöhnungsphase, die Objektauswahl, die Konsistenz der Intervention, die Probennachverfolgbarkeit und den Zeitpunkt der Gewebeverarbeitung überprüfen, bevor Sie den Versuch mit einer neuen Kohorte wiederholen, wie in Tabelle 2 zusammengefasst. Diese Ergebnisse stellen suboptimale experimentelle Ergebnisse dar, die vor der Interpretation einer Fehlersuche bedürfen. In der vorliegenden Kohorte wurde ein SD-Tier (M19) gemäß dem vorab festgelegten Schwellenwert für die Gesamtexploration (8,7 s; Schritt 7.3) von der NOR-Analyse ausgeschlossen, was den Typ eines suboptimalen Ergebnisses veranschaulicht, das durch dieses Kriterium abgedeckt wird; kein NSD-Tier zeigte keine Präferenz für ein neuartiges Objekt, und keine Kohorte wies in diesem Datensatz eine unerwartet große Varianz der Biomarker auf, die eine Wiederholung der Kohorte erforderlich gemacht hätte.
| Problem | Mögliche Ursache | Lösung |
| Geringe allgemeine Erkundung im NOR | Unzureichende Gewöhnung, hohe Angst oder übermäßige Umgebungsstörung | Tägliche Gewöhnung verlängern; sicherstellen, dass der Testraum ruhig und schwach beleuchtet ist; Gewöhnung an die Versuchsanlage vor dem Training überprüfen. |
| Keine Präferenz für neuartige Objekte bei NSD-Kontrolltieren | Objekte unterscheiden sich in der angeborenen Präferenz oder sind nicht ausreichend unterschiedlich | Objekte vorab bei naiven Tieren testen; Objekte mit deutlich unterschiedlichen Texturen/Formen, aber gleicher Größe und Zugänglichkeit verwenden. |
| Starke Variation der GH-Interventionszahlen | Inkonsistente Beobachterschwellen oder Käfigbedingungen | Beobachter anhand einheitlicher Kriterien für Wachheit schulen; denselben Interventionsprotokollbogen verwenden; Einstreu, Käfiganreicherung und Umgebungsbedingungen standardisieren. |
| Hohe Variabilität bei Biomarker-Messungen | Verspätete Sektion, inkonsistente Probenidentität oder Probenverderb | Zuordnung von Verhalten zu Proben beibehalten; Sektionszeitpunkte standardisieren; Proben sofort schockgefrieren; während der Homogenisierung auf Eis halten. |
| SD-Mäuse zeigen deutliche Belastung | Zu intensive Handhabung | Nur milde sensorische Interventionen anwenden; bei Beobachtung von Belastung abbrechen und die genehmigten Tierschutzverfahren einhalten. |
Tabelle 2: Fehlerbehebung. Häufig auftretende Probleme während der NOR-, sanften Handhabung zur Schlafentzug- und hippokampalen Biomarker-Arbeitsablauf, zusammen mit möglichen Ursachen und empfohlenen Korrekturmaßnahmen.
Diskussion
Dieser Artikel bietet einen schnellen, reproduzierbaren Rahmen zur Untersuchung von Erkennungsgedächtnisstörungen und hippocampalen molekularen Veränderungen, die durch akuten Schlafentzug verursacht werden. Durch Anwendung von 5 h sanfter Behandlung unmittelbar nach einer standardisierten Lernphase von 10 min zielt das Verfahren auf ein definiertes Konsolidierungsfenster nach dem Lernen ab und ist darauf ausgelegt, die körperliche Belastung im Vergleich zu ausgedehnten Deprivationsmodellen oder Verfahren, die auf erzwungener Bewegung basieren, zu verringern4,5. Diese Arbeit enthält jedoch keine direkten Messungen von Stresshormonen, um eine geringere physiologische Stressreaktion zu bestätigen, wie unten unter den Grenzen der Methode erörtert.
Die wichtigsten technischen Faktoren sind die Gewöhnung, eine konsistente Objektauswahl, ein festgelegter Zeitpunkt des 5-h-Retentionsintervalls und eine kontinuierliche, aber nicht aversive Überwachung während der GH. Da der NOR auf der spontanen Erkundung beruht, können verbleibende Angstzustände oder eine unzureichende Gewöhnung an die Versuchsanlage die Objekterkundung unterdrücken und speicherbezogene Effekte verschleiern8. Das vorgegebene Ausschlusskriterium für die Erkundungszeit sowie das Interventionsprotokoll bieten praktische Qualitätskontrollen, die helfen, einen fehlgeschlagenen Verhaltensversuch von einem echten Gedächtnisphänotyp zu unterscheiden. Wenn die Gesamterkundung gering ist, bei NSD-Kontrollen keine Präferenz für das neue Objekt vorliegt, die Anzahl der GH-Interventionen stark variiert, Biomarker-Messungen eine hohe Variabilität aufweisen oder SD-Mäuse deutliche Belastungszeichen zeigen, sollten die Forscher die entsprechenden Fehlerbehebungsverfahren in Tabelle 2 überprüfen, bevor sie das Experiment wiederholen oder interpretieren.
Anstatt eine einfache Aneinanderreihung bereits etablierter Techniken darzustellen, liegt der schrittweise Beitrag dieses Protokolls in vier spezifischen operationellen Elementen, die auf die Reproduzierbarkeit und nicht auf die bloße Verfügbarkeit der Techniken abzielen. Erstens führt das obligatorische Interventionsprotokoll (Protokoll-Schritt 3 und Tabelle 1) eine quantifizierbare und vergleichbare Dokumentation ein, um die GH-Intensität über Kohorten und Studien hinweg zu standardisieren. Die Technik selbst hat eine etablierte Historie, wohingegen das vorliegende Protokoll die operationelle Standardisierung ihrer Anwendung betont. Dies entspricht der etablierten Verwendung von GH als Methode zur vollständigen Schlafentzug und dem zuvor beschriebenen Mangel an Standardisierung ihrer Durchführung in verschiedenen Studien6. Zweitens verlangt das Protokoll ein Design mit derselben Kohorte, bei dem Verhaltens- und molekulare Endpunkte von identischen, einzeln nachverfolgten Tieren innerhalb einer einzigen 10-Tage-Arbeitsabfolge erhoben werden; dieses Design soll die Variabilität verringern, die entsteht, wenn Verhaltens- und biochemische Endpunkte in separaten Kohorten erfasst werden. Drittens fixiert das Protokoll den Trainings- und Entzugszeitraum an eine definierte zirkadiane Referenz (ZT1, Protokoll-Schritt 2) und verlangt, dass NSD- und SD-Kohorten unter identischen Lichtphasenbedingungen gehalten werden (Protokoll-Schritt 3), wodurch die zirkadiane Zeitpunktkontrolle innerhalb des Arbeitsablaufs gewährleistet ist. Viertens legt das Protokoll a priori Qualitätskontroll- und Analysekriterien fest, einschließlich einer Mindestexplorationszeit (Protokoll-Schritt 7), transparenter Ausschlussdokumentation, prospektiver Powerplanung, Prüfung des DI gegen den Zufallswert von 0,5, Überprüfung der Annahmen, Korrektur für multiple Biomarker-Vergleiche sowie Angabe der Effektgrößen. Gemeinsam transformieren diese Elemente einzelne, etablierte Methoden in einen expliziten, übertragbaren Arbeitsablauf, der als Referenzrahmen vorgeschlagen wird, anhand dessen einzelne Labore ihre eigene Durchführung kalibrieren können – vorausgesetzt, es erfolgt eine unabhängige Übernahme und Reproduktion – und nicht als Bericht über einen spezifischen biologischen Befund.
Der Workflow weist mehrere Einschränkungen auf. Die Gentlemans-Handling-Methode (GH) ist arbeitsintensiv und erfordert eine kontinuierliche Aufmerksamkeit des Experimentators, was die Durchsatzkapazität begrenzt. Außerdem erhält GH die Wachheit aufrecht, quantifiziert aber an sich nicht die Schlafarchitektur. Zukünftige Anwendungen könnten eine Pilot-EEG/EMG-Validierung integrieren, um Wachzustände zu dokumentieren und das Ausmaß des durch das GH-Verfahren verursachten Schlafentzugs zu überprüfen, bevor der Workflow auf eine vollständige experimentelle Kohorte angewendet wird. Zukünftige Anwendungen könnten außerdem Corticosteron-Messungen einbeziehen, um stressbedingte Effekte der Intervention zu bewerten. Diese Messungen sind nicht Bestandteil des vorliegenden Protokolls und sollten daher nicht als in dieser Studie durchgeführte Validierung interpretiert werden. Der NOR-Test ist empfindlich für Erkennungsgedächtnis, bewertet aber nicht umfassend räumliche Navigation oder Arbeitsgedächtnis; ergänzende Tests wie der Y-Maze, der Barnes-Maze oder andere Einzelversuchsaufgaben können hinzugefügt werden, wenn ein breiteres kognitives Profil erforderlich ist. Die modifizierte Mehrfachplattform-Methode stellt einen alternativen Ansatz zur experimentellen Induktion von Schlafentzug dar und wurde bereits verwendet, um Schlafentzug und Erholung zu quantifizieren4; im Gegensatz dazu legt der vorliegende GH-Workflow den Schwerpunkt auf eine milde sensorische Intervention ohne erzwungene Fortbewegung. Da jedoch physiologische Stressmarker in diesem Protokoll nicht direkt gemessen wurden, kann hier keine Schlussfolgerung gezogen werden, dass GH eine geringere physiologische Stressreaktion hervorruft.
Die Methode sollte daher am besten als standardisierte Einstiegsplattform verstanden werden, nicht jedoch als vollständiges Modell aller kognitiven Folgen von Schlafentzug. Ihr Wert liegt in der expliziten Verbindung zwischen einer kontrollierten, lernbegleitenden GH-Intervention, einem Verhaltensausleseverfahren, das den physischen Umgang im Vergleich zu Paradigmen mit erzwungener Fortbewegung minimiert, der Hippocampus-Gewinnung am selben Tier sowie transparenten Qualitätskontrollen. Die objektbezogene Erkennung (NOR) bietet einen gut etablierten Einzelversuchsansatz zur Beurteilung des Erkennungsgedächtnisses7,8; außerdem wurde Schlafentzug bereits früher mit beeinträchtigter Objekterkennung9, hippocampalen neuroinflammatorischen Veränderungen10 sowie hippocampalem oxidativem Stress und Gedächtnisdefiziten11 assoziiert. Demnach kann dieses Rahmenwerk Vergleiche zwischen Kohorten erleichtern und eine praktische Grundlage für mechanistische Untersuchungen sowie für die Screening-Prüfung von Interventionen bieten, die darauf abzielen, die schlafentzugsbedingte kognitive Beeinträchtigung zu verringern; frühere Arbeiten haben bereits Interventionen untersucht, die gezielt gegen die schlafentzugsbedingte kognitive Beeinträchtigung und Neuroinflammation gerichtet sind12. Im Einklang mit diesem Anspruch konzentriert sich die vorliegende Arbeit auf die Etablierung und Standardisierung eines reproduzierbaren Arbeitsablaufs und stellt zugleich repräsentative Daten zur Demonstration der Protokollleistung bereit; ein umfassenderer Datensatz und eine breitere biologische Interpretation können in zukünftigen Veröffentlichungen separat berichtet werden.
Offenlegungen
Die Autoren geben keine Interessenkonflikte an.
Danksagungen
Diese Arbeit wurde unterstützt durch das Nachwuchsförderprogramm des Nanjing Drum Tower Hospitals, die Nationale Naturwissenschaftliche Stiftung Chinas (Förderkennzeichen Nr. 82502706) und das Grundlagenforschungsprogramm von Jiangsu (Förderkennzeichen Nr. BK20250258). KI-gestützte Werkzeuge wurden während der Erstellung und Überarbeitung des Manuskripts eingesetzt, unter anderem zum Verfassen und Überarbeiten von Texten sowie zum Erstellen und Verbessern von schematischen Abbildungen.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 70 % Ethanol | Jeder Lieferant | N/V | Reinigung der NOR-Arena und Objekte |
| Adulte männliche C57BL/6J-Mäuse (8–12 Wochen) | Zhejiang AILIMO Biotechnology Co., Ltd. | N/V | Experimentelle Tiere |
| BCA-Proteinbestimmungskit | Thermo Fisher Scientific (Pierce) | 23225 | Bestimmung und Normalisierung der Gesamtproteinkonzentration |
| Verhaltensanalyse-Software | Noldus Information Technology B.V. | EthoVision XT Version 17.5 | Auswertung und Analyse der NOR-Exploration |
| Zentrifuge, geeignet für 14.000 × g bei 4 °C | Eppendorf | Zentrifuge 5424 R; Kat.-Nr. 5404000610 | Klären von Hippocampus-Homogenaten |
| Saubere Papierrohre | Jeder Lieferant | N/V | Sanfte Handhabungsintervention |
| Kryogene persönliche Schutzausrüstung | Jeder Lieferant | N/V | Sichere Handhabung von flüssigem Stickstoff |
| Glutathionperoxidase-Bestimmungskit | Abcam | ab102530 | GPx-Quantifizierung |
| Hippocampus-Gewebehomogenisator | IKA-Werke GmbH & Co. KG | T 10 basic ULTRA-TURRAX; Kat.-Nr. 0003737000 | Homogenisierung von Hippocampus-Gewebe in Lysepuffer |
| Flüssiger Stickstoff | Jeder Lieferant | N/V | Sofortiges Einfrieren der präparierten Hippocampi |
| MDA-Bestimmungskit | Sigma-Aldrich | MAK085 | MDA-Quantifizierung |
| Mikroplattenreader | Agilent Technologies / BioTek | BioTek Epoch 2 Mikroplatten-Spektrophotometer | Messung der Absorption bei den vom Kit vorgegebenen Wellenlängen |
| Mikrospatel | Jeder Lieferant | N/V | Hippocampus-Präparation; gekühlt verwendet |
| Maus-IL-1β-ELISA-Kit | R&D Systems | MLB00C | IL-1β-Quantifizierung |
| Maus-IL-6-ELISA-Kit | R&D Systems | M6000B | IL-6-Quantifizierung |
| Maus-TNF-α-ELISA-Kit | R&D Systems | MTA00B | TNF-α-Quantifizierung |
| Objekt-Sets A/A′ und B | Jeder Lieferant | N/V | Familiarisierungs- und Testphasen im NOR |
| Undurchsichtige NOR-Arena (40 cm × 40 cm × 40 cm) | Jeder Lieferant | N/V | Verhaltensuntersuchung |
| Überkopf-Videokamerasystem | Basler AG | acA1300-60gm | Videodokumentation der NOR-Familiarisierungs- und Testdurchgänge |
| Protease-/Phosphatase-Hemmer-Cocktail | Thermo Fisher Scientific (Thermo Scientific) | 78440 | Zum Lysepuffer in 1× Arbeitskonzentration hinzugefügt (10 µL/mL aus einer 100×-Stammlösung) |
| RIPA-Lysepuffer | Thermo Fisher Scientific | 89900 | Homogenisierung von Hippocampus-Gewebe |
| Probenröhrchen, geeignet für kryogene Lagerung | Thermo Fisher Scientific (Nunc) | Nunc CryoTube, 1,8 mL; Kat.-Nr. 375418 | Gewährleistung individueller Probenkennungen und Lagerung des präparierten Hippocampus-Gewebes |
| Weiche Bürste | Jeder Lieferant | N/V | Sanfte Handhabungsintervention |
| SOD-Bestimmungskit | Sigma-Aldrich | 19160 | SOD-Quantifizierung |
| Statistische und Power-Analyse-Software | G*Power; Python Software Foundation | G*Power Version 3.1; Python Version 3.12 (SciPy 1.17; statsmodels 0.14) | A-priori-Power-Analyse und statistische Analysen gemäß Protokollabschnitt 7 |
| Standard-Nagetierfutter | Jiangsu Xietong Pharmaceutical Bio-engineering Co., Ltd. | Bestrahltes Ratten-/Maus-Maintenance-Futter; XTI01WC-010 | Ad-libitum-Fütterung der Tiere |
| −80 °C-Gefrierschrank | Haier Biomedical | DW-86L626 | Langzeitlagerung der schockgefrorenen Hippocampus-Proben |
Referenzen
- Walker MP, Stickgold R. Sleep, memory, and plasticity. Annual Review of Psychology. 2006;57:139-166.
- Musiek ES, Holtzman DM. Mechanisms linking circadian clocks, sleep, and neurodegeneration. Science. 2016;354(6315):1004-1008.
- Havekes R, Abel T. The tired hippocampus: the molecular impact of sleep deprivation on learning and memory. Current Opinion in Neurobiology. 2017;44:33-39.
- Machado RB, Hipólide DC, Benedito-Silva AA, Tufik S. Sleep deprivation induced by the modified multiple platform technique: quantification of sleep loss and recovery. Brain Research. 2004;1004(1-2):45-51.
- Hagewoud R, et al. Sleep deprivation impairs spatial working memory and reduces clearance of hippocampal β-amyloid in rats. Neurobiology of Aging. 2013;34(1):22-30.
- Fenzl T, et al. Fully automated sleep deprivation in mice as a tool in sleep research. J Neurosci Methods. 2007;166(2):229-35.
- Ennaceur A, Delacour J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behavioural Brain Research. 1988;31(1):47-59.
- Leger M, et al. Object recognition test in mice. Nature Protocols. 2013;8(12):2531-2537.
- Palchykova S, et al. Sleep deprivation impairs object recognition in mice. Neurobiology of Learning and Memory. 2006;85(3):263-271.
- Wadhwa M, et al. Sleep deprivation induces spatial memory impairment by altered hippocampus neuroinflammation and microglia activation in rats. Journal of Neuroimmunology. 2011;238(1-2):14-23.
- Silva RH, et al. Role of hippocampal oxidative stress in memory deficits induced by sleep deprivation in mice. Neuropharmacology. 2016;104:1-8.
- Wang Y, et al. Ellagic acid ameliorates sleep deprivation-induced cognitive impairment and neuroinflammation in mice. Aging. 2020;12(10):10327-10340.