Diese Studie kombiniert gepaarte menschliche Gewebe, zwei Zelllinien des Plattenepithelkarzinoms der Lunge, RNA- und Protein-Stabilitätsassays, genetische Rescue-Experimente sowie ein FOXD1-Knockdown-Xenotransplantatmodell, um die mit METTL3 assoziierte Regulation von FOXD1 zu untersuchen und einen reproduzierbaren Rahmen zur Erforschung posttranskriptioneller onkogener Mechanismen bereitzustellen.
Forschungsartikel
METTL3-assoziierte FOXD1-Regulation fördert die Progression des plattenepithelialen Lungenkarzinoms: Ein multimodaler experimenteller Ansatz
* These authors contributed equally
In diesem Artikel
Zusammenfassung
Zusammenfassung
Das Plattenepithelkarzinom des Lungen (LUSC) bietet begrenzte Behandlungsoptionen, was die Untersuchung molekularer Signalwege motiviert, die das Tumorzellwachstum unterstützen. Die Expression von Forkhead-Box D1 (FOXD1) wurde mittels interaktiver Analyse der Genexpression (GEPIA), quantitativer reverser Transkriptions-Polymerase-Kettenreaktion (qRT-PCR), Western Blotting und Immunhistochemie in gepaarten Geweben und Zelllinien bewertet. FOXD1 oder das Methyltransferase-ähnliche Protein 3 (METTL3) wurden in LUSC-Zellen ausgeschaltet, und Zellviabilität, Apoptose, Migration, globales N6-Methyladenosin (m6A), Transkriptstabilität sowie Proteinstabilität wurden analysiert. Ein FOXD1-Knockdown-Xenotransplantatmodell überprüfte die in vivo-Funktion von FOXD1; METTL3 wurde bei den Tieren nicht verändert.
Die FOXD1-Expression war in LUSC-Geweben und -Zellen höher als in den entsprechenden Kontrollen. Die Verringerung der FOXD1-Expression verringerte die Zellviabilität und Migration, erhöhte die Apoptose und hemmte das Wachstum von Xenotransplantaten. Die METTL3-Expression korrelierte mit FOXD1 in gepaarten LUSC-Geweben. In kultivierten Zellen führte die Verringerung der METTL3-Expression zu einer Abnahme der globalen m6A-Modifikation und der FOXD1-Menge, während die erneute Expression von FOXD1 die assoziierten Phänotypen teilweise wiederherstellte. Die Ergebnisse der Actinomycin-D-, Cycloheximid- und MG132-Assays waren vereinbar mit METTL3-assoziierten Veränderungen der Stabilität von FOXD1-RNA und -Protein.
Diese Daten unterstützen eine funktionelle Assoziation zwischen METTL3 und FOXD1 in LUSC-Zellen. In vivo unterdrückte die Knockdown-Behandlung von FOXD1 das Wachstum von Xenotransplantaten und verringerte die Ki-67-Färbung, wodurch FOXD1 als Förderer des Xenotransplantat-Wachstums etabliert wurde. Eine direkte Bindung zwischen METTL3 und FOXD1, eine standortspezifische m6A-Modifikation, die Abhängigkeit von m6A-Leseproteinen sowie die in vivo-Validierung des vollständigen METTL3–FOXD1-Signalwegs müssen noch nachgewiesen werden.
Einleitung
Lungenkrebs bleibt weltweit eine der häufigsten Ursachen für krebsbedingte Todesfälle1,2. Das Lungenplattenepithelkarzinom (LUSC), ein wichtiger histologischer Subtyp des nicht-kleinzelligen Lungenkarzinoms (NSCLC), tritt oft erst dann auf, wenn eine kurative lokale Therapie nicht mehr möglich ist3,4. Die systemische Behandlung hat sich verbessert, doch viele Patienten zeigen weiterhin ein ungünstiges Krankheitsoutcome5. Die Identifizierung molekularer Programme, die das Wachstum von LUSC aufrechterhalten, könnte daher überprüfbare Biomarker und therapeutische Hypothesen offenlegen.
Forkhead-Box-D1 (FOXD1) ist ein Transkriptionsfaktor, der mit kolorektalen, Kopf-Hals-, Magen-, oralsquamösen und Brustkrebsarten in Verbindung gebracht wird6,7,8,9,10. Bei NSCLC ist die Expression von FOXD1 mit einem ungünstigen Krankheitsverlauf sowie mit experimentell beobachtetem Zellwachstum und Metastasierung assoziiert11,12. Micro-RNA-30a-5p unterdrückt ebenfalls die Proliferation und Migration von LUSC-Zellen, indem es FOXD1 gezielt anspricht13. Diese Beobachtungen identifizieren FOXD1 als einen plausiblen Regulator von LUSC, klären jedoch nicht, wie seine Expression bei dieser Erkrankung aufrechterhalten wird.
N6-Methyladenosin (m6A) ist eine reversibele RNA-Modifikation, die durch Schreib-, Radier- und Lese-Proteine installiert, entfernt und interpretiert wird. Dieses Regulationsystem kann die RNA-Verarbeitung, Translation und den Abbau beeinflussen, und seine Störung wurde mit malignen Phänotypen und der Therapieantwort in Verbindung gebracht14,15,16,17. Methyltransferase-ähnliches Protein 3 (METTL3) ist eine katalytische Komponente des m6A-Schreibkomplexes; jedoch kann eine alleinige Korrelation zwischen METTL3 und FOXD1 keine direkte Methylierung oder lesevermittelte Regulation belegen.
Wir vermuteten, dass METTL3 die Progression von LUSC durch Aufrechterhaltung der FOXD1-Expression mittels m6A-assoziierter posttranskriptioneller Regulation fördert. Durch die Integration gepaarter klinischer Proben, zweier Tumorzelllinien, Funktionsverlust- und Rescue-Assays, Analysen der Transkript- und Proteinstabilität sowie eines FOXD1-Knockdown-Xenotransplantatmodells liefert diese Studie einen funktionellen Rahmen zur Untersuchung der METTL3–FOXD1-Beziehung, wobei zwischen Assoziation und direkter ortsspezifischer Methylierung unterschieden wird.
Protokoll
Die Sammlung menschlichen Gewebes erfolgte gemäß der Deklaration von Helsinki und wurde von der Ethikkommission des Ersten Krankenhauses der Jilin-Universität genehmigt (Genehmigungsnummer 2022-339; 22. Juli 2022); von allen Teilnehmenden wurde eine schriftliche informierte Einwilligung eingeholt. Das Tierversuchsprotokoll wurde vom Tierversuchsausschuss des Ersten Krankenhauses der Jilin-Universität genehmigt (Genehmigungsnummer 2022-0015; 25. Januar 2022) und gemäß den institutionellen Richtlinien für den Umgang mit und die Pflege von Versuchstieren durchgeführt.
Studienteilnehmer
Archivierte Proben bestanden aus 12 gepaarten primären LUSC- und angrenzenden nicht-tumoralen Geweben, die von Patienten gesammelt wurden, die zwischen Januar 2019 und Dezember 2020 einer Operation unterzogen wurden. Infrage kommende Patienten wiesen histologisch bestätigtes primäres LUSC auf, hatten keine nachgewiesene Metastasierung und hatten in den sechs Monaten zuvor keine LUSC-spezifische Therapie erhalten. Die Fälle wurden mittels einer Zufallszahlentabelle ausgewählt und umfassten sieben Männer und fünf Frauen im Alter von 30–65 Jahren. Von allen Teilnehmern wurde eine schriftliche, informierte Einwilligung eingeholt.
Zelllinien
Menschliche bronchiale epitheliale BEAS-2B-Zellen (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) und NCI-H226-Zellen (RRID: CVCL_1544) wurden aus der Zellbank der Chinesischen Akademie der Wissenschaften bezogen. Die Zellen wurden in Dulbeccos modifiziertem Eagle-Medium mit 10 % fetalem Kälberserum und 1 % Penicillin–Streptomycin bei 37 °C in 5 % CO2 kultiviert. Die kommerziellen Kennungen sind in der beigefügten Tabelle der Materialien zusammengefasst.
Kleiner interferierender RNA-Screening und Rescue
Drei einzelne kleine interferierende RNAs, die FOXD1 oder METTL3 gezielt ansprechen, wurden in SK-MES-1- und NCI-H226-Zellen getestet. Die Knockdown-Wirkung wurde 48 Stunden nach der Transfektion mittels quantitativer reverser Transkriptions-PCR (qRT-PCR) und Western Blotting überprüft. Für nachgeschaltete funktionelle Assays von FOXD1 wurde die FOXD1-siRNA-1 verwendet, da sie in beiden Zelllinien den stärksten Effekt zeigte. Nachgeschaltete METTL3-Experimente nutzten das aus dem Screening ausgewählte si-METTL3-Reagenz. Der archivierte Datensatz enthält keine Angabe zu einem SmartPool und weist keine Sequenz oder Herstellerkennung auf, die eindeutig zugeordnet werden könnte. Für Rescue-Experimente erhielten die Zellen das ausgewählte si-METTL3-Reagenz, das FOXD1-Überexpressionskonstrukt oder beides; die Expression und zellulären Phänotypen wurden 48 Stunden nach der Transfektion analysiert.
RNA-Isolierung und qRT-PCR
Gesamt-RNA wurde aus Geweben oder Zellen mit einem Phenol-Guanidinium-Reagenz isoliert und unter Verwendung eines kommerziellen Reverse-Transkriptions-Kits umgeschrieben. Die qRT-PCR wurde mit einer TB Green-Master-Mix-Lösung auf einem Echtzeit-PCR-System (RRID: SCR_018051) durchgeführt. Die Primersequenzen sind in Tabelle 1 angegeben. Die relative Expression wurde auf die Glyceraldehyd-3-Phosphat-Dehydrogenase (GAPDH) normalisiert. Die Reaktionszubereitung und der thermische Zyklenverlauf erfolgten gemäß der Herstelleranleitung für die angegebene Master-Mix-Lösung.
Immunoblot
Gewebe oder Zellen wurden in Radioimmunpräzipitationspuffer (RIPA-Puffer) mit Proteaseinhibitoren lysiert. Äquivalente Proteinmengen wurden mittels Natrium-Dodecylsulfat-Polyacrylamid-Gelelektrophorese (SDS-PAGE) getrennt und auf Polyvinylidenfluorid (PVDF)-Membranen übertragen. Die Membranen wurden über Nacht bei 4 °C mit Antikörpern gegen FOXD1 (1:1.000), METTL3 (1:1.000; RRID: AB_2142033) oder GAPDH (1:2.000; RRID: AB_10622025) inkubiert, gefolgt von einer 1-stündigen Inkubation bei Raumtemperatur mit mit Peroxidase konjugierten anti-Kaninchen-Immunglobulin G. Die Signale wurden mittels verstärkter Chemilumineszenz detektiert, wobei GAPDH als Ladekontrolle diente. Die Materialtabelle benennt die verwendeten kommerziellen primären Antikörper und führt das sekundäre Reagenz als anti-Kaninchen-Immunglobulin G-Detektionsantikörper auf.
Zellviabilität und Apoptose
Zur Bestimmung der Vitalität wurden Kontroll- und transfizierte LUSC-Zellen in 96-Well-Platten mit jeweils 2.000 Zellen pro Vertiefung ausgesät. In Abständen von 12 Stunden wurden pro Vertiefung 10 µL des Cell-Counting-Kit-8-Reagenz hinzugefügt, die Platten für 1 Stunde bei 37 °C inkubiert und die Absorption bei 450 nm gemessen. Zur Analyse der Apoptose wurden jeweils 1 × 10⁵ Zellen pro Vertiefung in 6-Well-Platten ausgesät und 48 Stunden nach der Transfektion analysiert. Die geernteten Zellen wurden gemäß den Anweisungen des Annexin-V–Fluoresceinisothiocyanat (FITC)/Propidiumiodid (PI)-Kits aufgearbeitet, in 100 µL Bindungspuffer resuspendiert, mit jeweils 5 µL der Reagenzien 30 Minuten bei Raumtemperatur im Dunkeln gefärbt und innerhalb von 4 Stunden mittels Durchflusszytometrie analysiert.
Transwell-Migration
Transfizierte LUSC-Zellen wurden in die obere Kammer des Transwells in serumfreiem Medium gegeben; die untere Kammer enthielt 500 µL Medium, das mit 10 % fötalem Kälberserum ergänzt war. Nach 24 h wurden die migrierten Zellen mit 4 % Paraformaldehyd fixiert und 10 Minuten lang mit Krystalleviolett angefärbt. Nicht migrierte Zellen auf der oberen Membranoberfläche wurden mit einem Wattestäbchen entfernt. Die migrierten Zellen wurden mit einem Mikroskop unter identischen Aufnahmebedingungen abgebildet und mit ImageJ (RRID: SCR_003070) quantifiziert.
m6A-Methylierungsmodifikation
Die globale m6A-Abundanz wurde mittels eines farbmetrischen RNA-Methylierungs-Assays gemessen. Nach der RNA-Extraktion und Qualitätsbewertung wurden 200 ng RNA pro Assay-Well eingesetzt. Der Capture-Antikörper (50 µL) wurde 60 Minuten bei Raumtemperatur hinzugefügt. Die Wells wurden dreimal gewaschen, anschließend mit 50 µL Detektionsantikörper für 30 Minuten inkubiert, viermal gewaschen und danach mit der Signalverstärkungslösung für 30 Minuten inkubiert. Die Absorption wurde bei 450 nm gemessen. Alle Schritte wurden gemäß der angegebenen Kit-Anleitung durchgeführt.
Nachweis der mRNA-Stabilität
LUSC-Zellen wurden in 6-Loch-Platten ausgesät und mit einer negativen Kontrolle aus kleinen interferierenden RNA (si-NC) oder mit einer auf METTL3 zielenden kleinen interferierenden RNA (si-METTL3) transfiziert. Nach 48 h wurde Actinomycin D in einer Konzentration von 5 µg/mL zugegeben, um die Transkription zu stoppen. Die Zellen wurden nach 0 h, 2 h, 4 h und 6 h gesammelt, die Gesamt-RNA wurde isoliert, und die Menge der FOXD1-Transkripte wurde mittels qRT-PCR bestimmt.
Cycloheximid (CHX) und MG132-Assays
Für jeden Inhibitorendpunkttest wurden unbehandelte Vektor-Kontrollzellen, Inhibitor-behandelte Vektor-Kontrollzellen und Inhibitor-behandelte METTL3-überexprimierende Zellen verglichen. MG132 wurde in einer Konzentration von 10 µM verwendet und CHX in einer Konzentration von 20 µM; die Lysate wurden nach 12 h zur Westernblot-Analyse gesammelt. Für die CHX-Zeitreihe wurden mit si-NC oder si-METTL3 transfizierte Zellen mit 20 µM CHX behandelt und nach 0 h, 3 h, 6 h und 9 h gesammelt. Die Proteinmenge von FOXD1 wurde mittels Westernblot-Analyse bestimmt.
In vivo-Experimente
Fünf Wochen alte athymische BALB/c-Nacktmäuse wurden negativen Kontroll- und FOXD1-Knockdown-Gruppen der Zelllinie SK-MES-1 zugewiesen (n = 8 Mäuse pro Gruppe). Jede Maus erhielt eine subkutane Injektion von etwa 8 × 10⁶ Zellen. Die Tumormonitoring wurde eine Woche nach der Implantation begonnen; die Tumorgröße wurde alle vier Tage über einen Zeitraum von 20 aufeinanderfolgenden Tagen aufgezeichnet. Die Mäuse wurden am Tag 27 nach der Inokulation unmittelbar nach der letzten Messung gemäß den genehmigten institutionellen Protokollen euthanasiert, und die Tumore wurden exzidiert, gewogen und fotografiert. Stabile FOXD1-Knockdown- und entsprechende negative Kontrollzellpopulationen der SK-MES-1-Linie wurden für die Implantation verwendet.
Immunochemie
Entfernte Tumore wurden in Paraffin eingebettet und in 4–5 µm dicken Schnitten geschnitten. Die Schnitte wurden entparaffiniert, rehydriert, über Nacht bei 4 °C mit dem primären Antikörper inkubiert und anschließend 30 Minuten mit dem entsprechenden sekundären Antikörper inkubiert. Antigenpositive Zellen wurden mit einem Diaminobenzidin-Substrat sichtbar gemacht. FOXD1 und Ki-67 wurden in den Xenotransplantaten evaluiert, wobei gepaarte Schnitte in derselben Färbungsreihe verarbeitet und unter identischen Aufnahmebedingungen abgebildet wurden.
Statistische Analyse
Die Analysen wurden mit GraphPad Prism, Version 8 (RRID: SCR_002798), und R (RRID: SCR_001905) durchgeführt. Für den Vergleich von zwei Gruppen wurde der t-Test von Student verwendet, bei Vergleichen mit mehr als zwei Gruppen kam die Varianzanalyse zum Einsatz. Die Analysen an gepaarten menschlichen Gewebeproben basierten auf 12 Patientenpaaren; Zusammenfassungen aus In-vitro-Experimenten repräsentieren drei unabhängige biologische Wiederholungen; die Analysen an Xenotransplantaten umfassten jeweils acht Mäuse pro Gruppe. Technische Wiederholungen wurden nicht als unabhängige Beobachtungen behandelt. Die Daten werden als Mittelwert ± Standardabweichung angegeben. Ein zweiseitiger P < 0,05 wurde als statistisch signifikant angesehen.
Ergebnisse
Die FOXD1-Expression ist in menschlichen LUSC-Geweben erhöht
Eine interaktive Analyse der Genexpressionsprofilierung (GEPIA) zeigte eine höhere Transkriptmenge von FOXD1 in LUSC im Vergleich zu normalen Lungenproben, während der Vergleich mit Lungenadenokarzinom keine statistische Signifikanz erreichte (Abbildung 1A). Die Analyse von 12 gepaarten LUSC- und angrenzenden Nicht-Tumor-Geweben ergab mittels qRT-PCR und Western Blotting die gleiche Richtung der Veränderung (Abbildung 1B,C). Die immunhistochemische Färbung zeigte ebenfalls ein stärkeres FOXD1-Signal in Tumorproben im Vergleich zu den gepaarten angrenzenden Geweben (Abbildung 1D).
Die Abschaltung von FOXD1 verringert die Vitalität und Migration und erhöht die Apoptose in LUSC-Zellen
Die Transkriptmenge von FOXD1 war in SK-MES-1- und NCI-H226-Zellen höher als in BEAS-2B-Zellen (Abbildung 2A). Es wurden drei kleine interferierende RNAs gegen FOXD1 getestet; siRNA-1 führte zur stärksten Reduktion, die mittels qRT-PCR und Western Blot nachgewiesen wurde, und wurde daher für nachfolgende Untersuchungen ausgewählt (Abbildung 2B,C). Im Vergleich zur negativen Kontrolle verringerte die FOXD1-Reduktion das Signal des Cell Counting Kit-8 (Abbildung 2D), erhöhte die Anzahl Annexin V-positiver Zellen (Abbildung 2E) und verringerte die Transwell-Migration (Abbildung 2F) in beiden LUSC-Zelllinien. Da nur ein ausgewählter Reagenz weiterverwendet wurde, stellen die funktionellen Ergebnisse keinen sequenzunabhängigen Ausschluss von Off-Target-Effekten dar.
Die Expression von METTL3 korreliert mit FOXD1 in LUSC-Proben
Die m6A-Methylierung ist eine dynamische und reversible chemische Modifikation, die weit verbreitet in Eukaryoten vorkommt und durch Methyltransferasen und Demethylasen reguliert wird sowie von m6A-bindenden Proteinen erkannt und verarbeitet wird18. Das globale m6A-Signal war in den 12 LUSC-Geweben höher als in den jeweils gepaarten angrenzenden Geweben und ebenfalls höher in beiden LUSC-Zelllinien im Vergleich zu BEAS-2B-Zellen (Abbildung 3A). Transkripte, die für METTL3, METTL14, WTAP und RBM15 kodieren, waren in den gepaarten Tumorproben erhöht (Abbildung 3B). Sowohl in den GEPIA-Daten als auch im 12-Tumor-Satz zeigte FOXD1 die deutlichste positive Assoziation mit METTL3; die Assoziation mit RBM15 war schwächer (Abbildung 3C,D). Die Western-Blot-Analyse zeigte zudem eine höhere METTL3-Menge in Tumorgeweben (Abbildung 3E). Diese Analysen belegen eine gemeinsame Variation, nicht jedoch eine direkte Regulation.
Die Absenkung von METTL3 verändert die Häufigkeit von FOXD1 und die Phänotypen von LUSC-Zellen
Drei auf METTL3 abzielende kleine interferierende RNAs wurden in SK-MES-1- und NCI-H226-Zellen mittels qRT-PCR und Western-Blotting untersucht (Abbildung 4A,B). Die Absenkung von METTL3 verringerte das globale m6A-Signal (Abbildung 4C). Die Überexpression von FOXD1 erhöhte FOXD1, ohne METTL3 zu steigern (Abbildung 4D), und das Vier-Gruppen-Rettungsexperiment bestätigte eine geringere FOXD1-Menge nach METTL3-Abschaltung sowie deren Wiederherstellung durch das FOXD1-Konstrukt (Abbildung 4E,F). Die Absenkung von METTL3 verringerte die Zellviabilität und Migration und erhöhte die Apoptose; die erneute Expression von FOXD1 wirkte diesen Veränderungen teilweise entgegen (Abbildung 4G–I). Somit stimmen die Rettungsdaten damit überein, dass FOXD1 in Kulturzellen downstream von METTL3 wirkt.
Die Störung von METTL3 steht in Zusammenhang mit der Stabilität von FOXD1-RNA und -Protein
Zunehmende Hinweise deuten darauf hin, dass die m6A-mRNA-Modifikation verschiedene Aspekte des mRNA-Zyklus beeinflusst, einschließlich der prä-mRNA-Spleißung, Translation, nukleozytoplasmatischen Export, Abbau und Spleißung19,20. SRAMP identifizierte potenzielle m6A-Motive in der FOXD1-RNA, und m6A2Target listete METTL3 als vorhergesagten mit FOXD1 assoziierten Schriftsetzer in H1299-Zellen auf (Abbildung 5A,B). Diese Datenbankergebnisse dienen der Hypothesenbildung und belegen weder eine Bindung noch eine positionsabhängige Methylierung in LUSC-Zellen. Nach transkriptioneller Blockade mit Actinomycin D nahm die FOXD1-RNA nach METTL3-Knockdown schneller ab als in Kontrollzellen (Abbildung 5C). Die Menge an FOXD1 war in MG132-behandelten METTL3-überexprimierenden Zellen höher als in MG132-behandelten Vektor-Kontrollen, wohingegen dieses Muster nach CHX-Behandlung nicht beobachtet wurde (Abbildung 5D,E). Die CHX-Zeitreihe zeigte einen schnelleren Verlust des FOXD1-Proteins nach METTL3-Knockdown (Abbildung 5F). Insgesamt sind diese Assays vereinbar mit METTL3-assoziierten Veränderungen der Stabilität von FOXD1-RNA und -Protein, identifizieren jedoch nicht das modifizierte Adenosin, belegen keine direkte Bindung und definieren keinen m6A-Leser.
Die Absenkung von FOXD1 unterdrückt das Wachstum von LUSC-Xenotransplantaten
Um die Funktion von FOXD1 in vivo zu testen, wurden Kontroll- und FOXD1-Knockdown-SK-MES-1-Zellen subkutan in immundefizienten Mäusen implantiert (n = 8 pro Gruppe). Ab einer Woche nach der Implantation wurden die Tumore alle vier Tage über einen Zeitraum von 20 Tagen gemessen und am Tag 27 nach der Inokulation entnommen. Die entfernten Tumore waren in der FOXD1-Knockdown-Gruppe kleiner (Abbildung 6A), ihr Wachstumsverlauf verlief langsamer (Abbildung 6B) und ihr Endgewicht war geringer (Abbildung 6C). Die Färbung für FOXD1 und Ki-67 war in den Knockdown-Tumoren ebenfalls reduziert (Abbildung 6D). Diese Experimente bewerten ausschließlich den FOXD1-Knockdown; sie testen keine METTL3-Hemmung in vivo.
Zusammengenommen wurde FOXD1 in Geweben und Zellen des Lungenplattenepithelkarzinoms überexprimiert und förderte Proliferation, Migration und das Wachstum von Xenotransplantaten. Der Knockdown von METTL3 führte zu einer Verringerung der globalen m6A-Spiegel, einer Abnahme der FOXD1-Expression und einer Beeinträchtigung maligner zellulärer Phänotypen, während die Re-Expression von FOXD1 diese Effekte teilweise umkehrte. Die Stabilitätsanalysen stützen eine METTL3-assoziierte posttranskriptionelle Regulation von FOXD1, belegen jedoch weder eine direkte, standortspezifische Methylierung noch eine in vivo-Wiederherstellung des gesamten Signalwegs. Das Studiendesign ist in Abbildung 7 zusammengefasst.
VERFÜGBARKEIT VON DATEN:
Alle in dieser Studie analysierten Daten sind in der Veröffentlichung und ihren Abbildungen enthalten. Die den berichteten Zusammenfassungen zugrunde liegenden anonymisierten Zahlenwerte sind auf begründete Anfrage beim entsprechenden Autor erhältlich, vorbehaltlich der institutionellen Governance und der Anforderungen zum Schutz der Teilnehmer. Es wurden keine Simulationsdateien oder benutzerspezifischen Analysecodes verwendet.
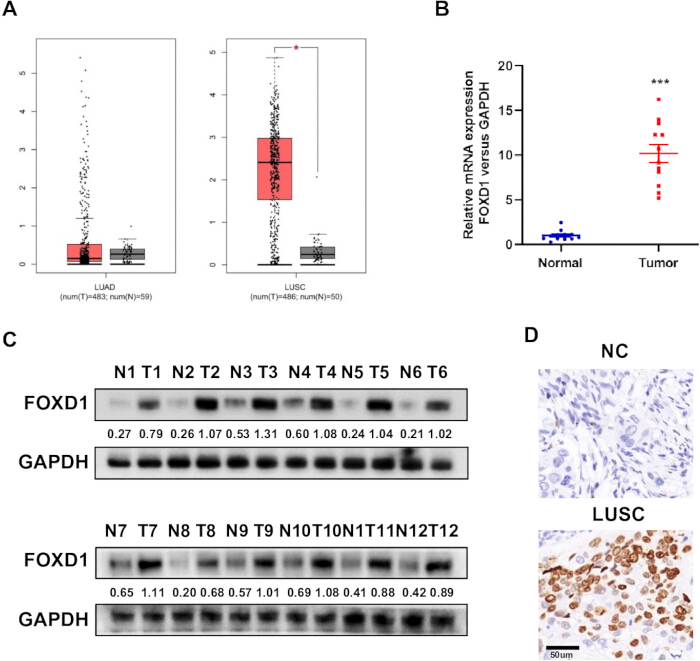
Abbildung 1: FOXD1-Expression in menschlichen Lungenkrebsproben. (A) GEPIA-Vergleich der FOXD1-Transkriptmenge in Lungenadenokarzinom (LUAD) und Plattenepithelkarzinom der Lunge (LUSC) im Vergleich zu normalen Lungenproben. (B) FOXD1-Transkriptmenge in 12 gepaarten LUSC- und angrenzenden nicht-tumoralen Gewebeproben. (C) FOXD1-Proteinspiegel in denselben gepaarten Gewebeproben. (D) Repräsentative FOXD1-Immunhistochemie. Menschliches Gewebe, n = 12 Paare; technische Wiederholungen im in vitro-Stil verändern das Patienten-niveau nicht. Maßstabsleiste in Panel D = 50 µm. ***P < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
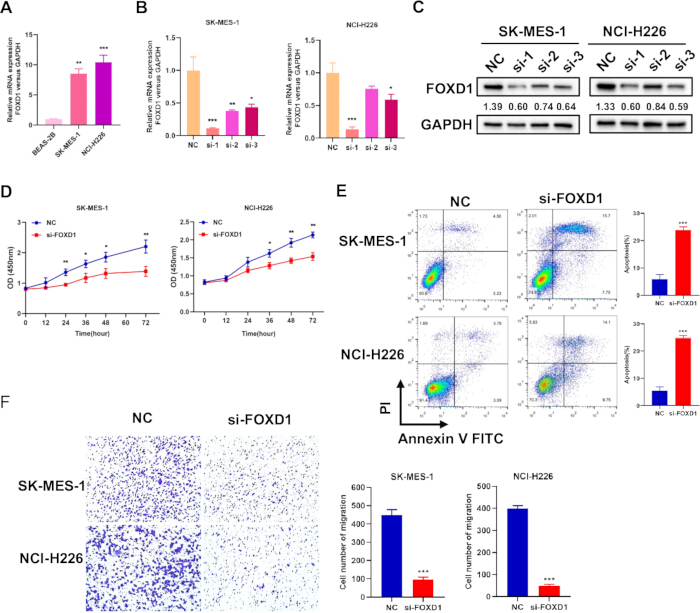
Abbildung 2: Auswirkungen der FOXD1-Reduktion in SK-MES-1- und NCI-H226-Zellen. (A) Menge der FOXD1-Transkripte in BEAS-2B-, SK-MES-1- und NCI-H226-Zellen. (B) qRT-PCR-Analyse von drei FOXD1-zielgerichteten kleinen interferierenden RNAs 48 h nach der Transfektion. (C) Western-Blot-Analyse derselben drei FOXD1-zielgerichteten kleinen interferierenden RNAs. (D) Zellzählkit-8-Assay nach FOXD1-Reduktion. (E) Annexin V–Fluoresceinisothiocyanat/Propidiumiodid-Apoptoseanalyse nach 48 h. (F) Transwell-Migrationsanalyse 24 h nach der Aussaat transfizierter Zellen; die archivierten Aufnahmen des Sichtfelds werden ohne retrospektiven Maßstabsbalken gezeigt, da Kalibrations-Metadaten nicht verfügbar waren. Es wurden drei unabhängige biologische Experimente durchgeführt. *P < 0,05; **P < 0,01; ***P < 0,001. Bitte klicken Sie hier, um eine größere Version dieser Abbildung anzusehen.
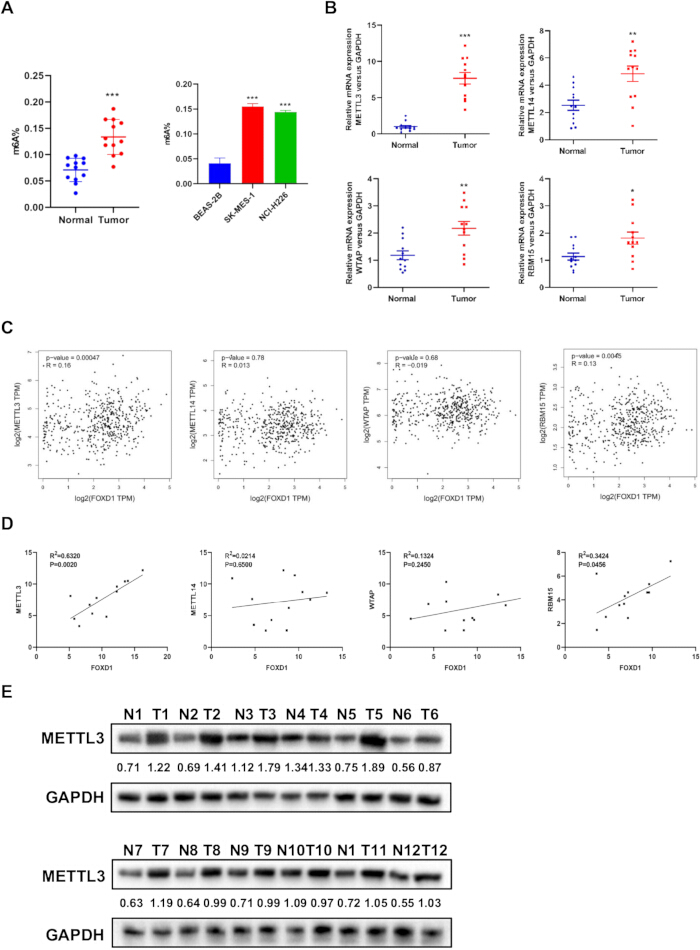
Abbildung 3: Globales N6-Methyladenosin und die Assoziation zwischen METTL3 und FOXD1. (A) Globales m6A-Signal in gepaarten Geweben sowie in BEAS-2B-, SK-MES-1- und NCI-H226-Zellen. (B) METTL3-, METTL14-, WTAP- und RBM15-Transkripte in 12 gepaarten LUSC- und angrenzenden Geweben. (C) GEPIA-Korrelationen zwischen FOXD1 und jeweils einem Schreibfaktor. (D) Korrelationen zwischen FOXD1 und Schreibfaktor-Transkripten in 12 LUSC-Tumoren. (E) METTL3-Protein in gepaarten LUSC- und angrenzenden Geweben. Menschliche Gewebeproben: n = 12 Paare; Zellversuche entsprechen drei unabhängigen biologischen Experimenten. *P < 0,05; **P < 0,01; ***P < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
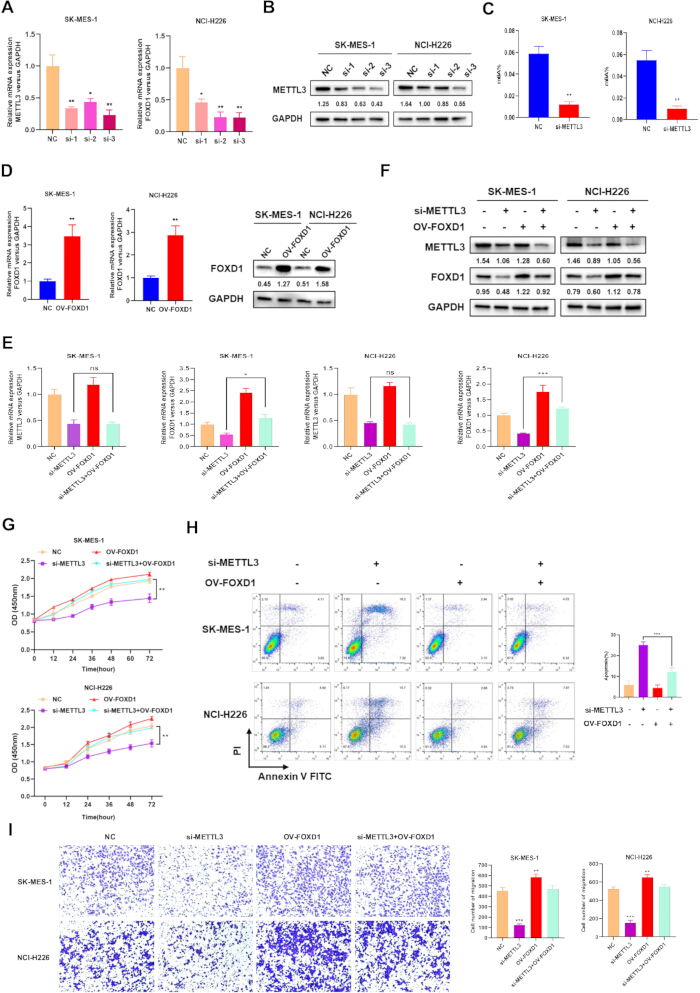
Abbildung 4: METTL3-Knockdown, FOXD1-Rescue und LUSC-Zellphänotypen. (A) qRT-PCR-Analyse von drei METTL3-zielgerichteten kleinen interferierenden RNAs 48 h nach Transfektion. (B) Western-Blot-Analyse derselben drei METTL3-zielgerichteten kleinen interferierenden RNAs. (C) Globales m6A-Signal nach METTL3-Knockdown. (D) Transkript- und Proteinmenge von FOXD1 nach Überexpression von FOXD1. (E) Transkriptmenge von METTL3 und FOXD1 in Kontroll-, si-METTL3-, ov-FOXD1- sowie kombinierten si-METTL3 + ov-FOXD1-Bedingungen, gemessen mittels qRT-PCR. (F) Proteinmenge von METTL3 und FOXD1 in denselben Rescue-Gruppen, gemessen mittels Western-Blot. (G) Cell Counting Kit-8-Assay. (H) Apoptose mittels Durchflusszytometrie. (I) Transwell-Migration. Drei unabhängige biologische Experimente wurden durchgeführt. Die Zahlen unter den Western-Blot-Banden zeigen die normalisierten Verhältnisse von Zielprotein zu GAPDH an. ns: nicht signifikant; *P < 0,05; **P < 0,01; ***P < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
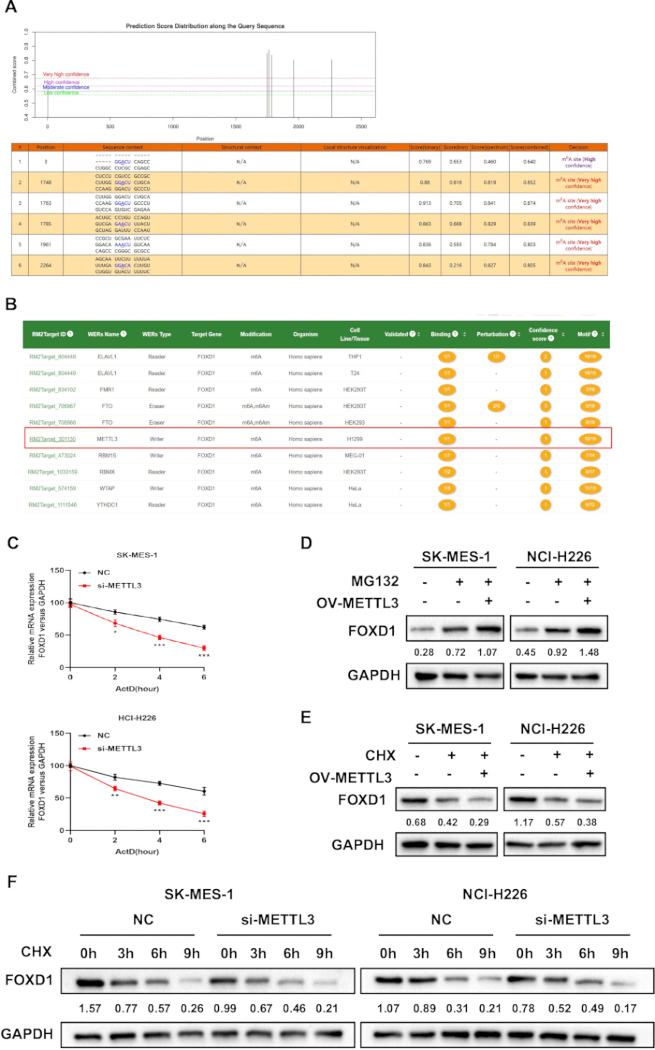
Abbildung 5: METTL3 ist mit der Regulation des FOXD1-Transkripts und -Proteins assoziiert. (A) Mit SRAMP vorhergesagte N6-Methyladenosin-Stellen innerhalb des FOXD1-Transkripts. (B) Vorhersage mittels m6A2Target, die METTL3 als Kandidatenschreiberprotein identifiziert, das mit FOXD1 assoziiert ist. (C) Relative FOXD1-mRNA-Menge nach Behandlung mit Actinomycin D bei 5 µg/mL in negativen Kontrollzellen und METTL3-Knockdown-Zellen nach 0 h, 2 h, 4 h und 6 h. (D) FOXD1-Proteinmenge in unbehandelten Vektor-Kontrollzellen, MG132-behandelten Vektor-Kontrollzellen und MG132-behandelten METTL3-überexprimierenden Zellen (10 µM MG132). (E) FOXD1-Proteinmenge in unbehandelten Vektor-Kontrollzellen, CHX-behandelten Vektor-Kontrollzellen und CHX-behandelten METTL3-überexprimierenden Zellen (20 µM CHX). (F) FOXD1-Proteinexpression nach CHX-Behandlung bei 20 µM für 0 h, 3 h, 6 h und 9 h in negativen Kontrollzellen und METTL3-Knockdown-Zellen. GAPDH diente als Ladekontrolle. Die Zellexperimente wurden in drei unabhängigen biologischen Wiederholungen durchgeführt. Die dargestellten Blots sind repräsentativ; die Zahlen unter den Banden zeigen die normalisierten FOXD1/GAPDH-Verhältnisse. *P < 0,05; **P < 0,01; ***P < 0,001. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
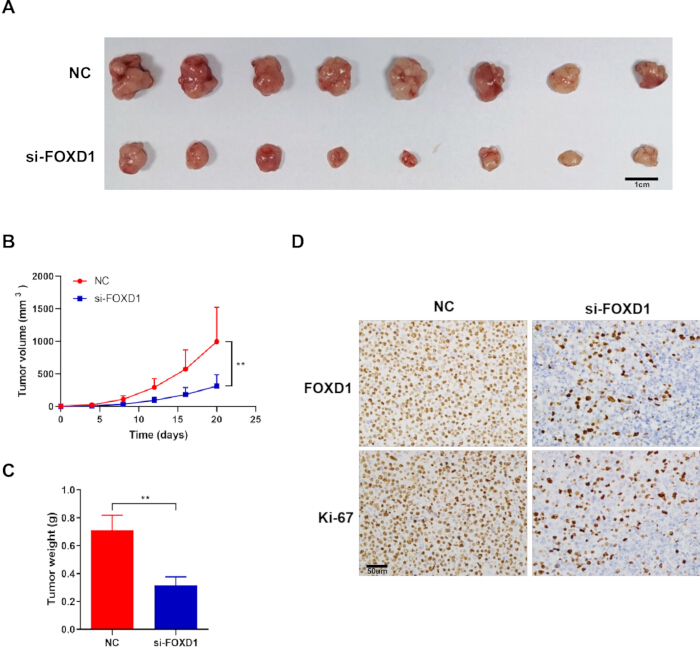
Abbildung 6: Die Herunterregulierung von FOXD1 unterdrückt das Wachstum von SK-MES-1-Xenotransplantaten. (A) Exzidierte Tumore von der Negativkontroll- und der FOXD1-Herunterregulierungsgruppe; Maßstabsbalken = 1 cm. (B) Tumorwachstum, gemessen alle 4 Tage über einen Zeitraum von 20 Tagen, beginnend eine Woche nach der Implantation, mit Probensammlung am Tag 27 nach der Inokulation. (C) Tumorgewicht bei der Probensammlung. (D) Repräsentative Immunhistochemie für FOXD1 und Ki-67 im Xenotransplantatgewebe; Maßstabsbalken = 50 µm. n = 8 Mäuse pro Gruppe; **P < 0,01. Bitte klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
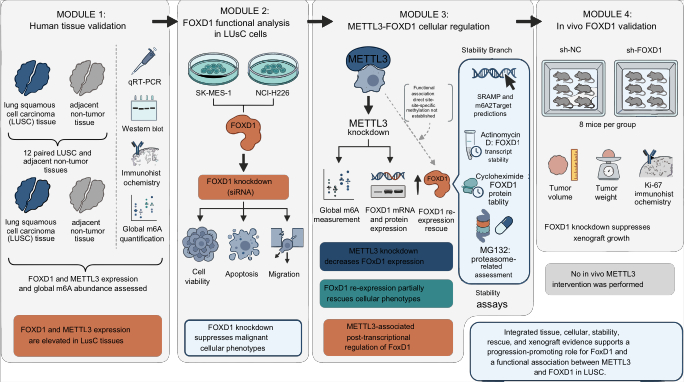
Abbildung 7: Gesamter Studienaufbau und Grenzen der Evidenz. Gepaarte LUSC-Gewebeproben (n = 12 Paare) und Zelllinien wurden für die Profilierung von FOXD1, METTL3 und der globalen m6A-Modifikation verwendet; nach genetischer Störung und Wiederherstellung folgten Assays zur Zellviabilität, Apoptose, Migration und Stabilität. Ein Xenotransplantat-Modell mit FOXD1-Knockdown (n = 8 Mäuse pro Gruppe) wurde über 20 Tage beobachtet. Das Diagramm unterscheidet zellbasierte METTL3-Evidenz von FOXD1-spezifischen in vivo-Evidenzen und zeigt direkte Bindung, standortspezifische m6A-Modifikation, Leser-Identität sowie in vivo-METTL3-Aktivität als nicht überprüft an. Klicken Sie hier, um eine vergrößerte Version dieser Abbildung anzusehen.
| Gen | Richtung | Sequenz (5′–3′) |
| FOXD1 | Vorwärts | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Rückwärts | CGGAATCGGACGCAAGTCTT |
| GAPDH | Vorwärts | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Rückwärts | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Vorwärts | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Rückwärts | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Vorwärts | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Rückwärts | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Vorwärts | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Rückwärts | CACTTAAAACACCGGCATTGG |
| WTAP | Vorwärts | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Rückwärts | CTGCTGGACTTGCTTGAGGTAC |
Tabelle 1: Primersequenzen für die quantitative reversetranskriptive Polymerase-Kettenreaktion. Die Sequenzen sind in 5′–3′-Richtung angegeben.
Diskussion
Der vorliegende Arbeitsablauf stützt eine Rolle von FOXD1 im LUSC anhand gepaarter Gewebe, zweier Zelllinien und eines Xenotransplantatmodells. FOXD1 war in Tumorproben und LUSC-Zellen erhöht, und seine Verringerung führte zu einer verminderten Zellviabilität und Migration, während die Apoptose zunahm. Diese Befunde stimmen mit Berichten überein, die FOXD1 mit Wachstum, Invasion, Therapieresistenz und ungünstigen Krankheitsverläufen bei mehreren Krebsarten verbinden 10,11,12,13,21,22,23,24,25,26,27,28. Sie erweitern zudem frühere Beobachtungen am LUSC, indem sie zellbasierte Phänotypen mit einem FOXD1-Knockdown-Xenotransplantat-Experiment verknüpfen.
Die gepaarten Gewebe- und Zellanalysen verknüpften die Häufigkeit von FOXD1 weiterhin mit METTL3 und dem globalen m6A. Vier Schreibergene waren in den 12 Tumorpärchen erhöht, aber METTL3 zeigte die stärkste positive Assoziation mit FOXD1. In kultivierten Zellen führte die Reduktion von METTL3 zu einer Verringerung des globalen m6A und der FOXD1-Häufigkeit, und die erneute Expression von FOXD1 stellte die damit verbundenen Phänotypen bezüglich Zellviabilität, Apoptose und Migration teilweise wieder her. Diese Daten unterstützen eine funktionelle Beziehung zwischen METTL3 und FOXD1 in den untersuchten Zellen, was mit dem breiten Einfluss der m6A-Regulation auf maligne Phänotypen übereinstimmt29,30,31,32,33,34,35,36.
Mehrere Punkte des Protokolls sind wichtig für die Reproduzierbarkeit. Die Knockdown-Effizienz sollte vor funktionellen Assays in jeder Zelllinie bestätigt werden, und die Rescue-Bedingungen sollten die Wiederherstellung von FOXD1 überprüfen, ohne das Konstrukt als METTL3-Überexpression zu interpretieren. Die Behandlungen mit Actinomycin D, CHX und MG132 müssen die im Protokoll angegebenen Konzentrationen und Zeitpunkte der Probenahme verwenden. Zelldichte, Seringradient und ein konsistentes Bildfeld sollten bei Transwell-Assays kontrolliert werden. Falls ein Forscher den Arbeitsablauf anpasst, könnten stabile kurze Haarnadel-RNAs oder Genom-Editierung für langdauernde in vivo-Experimente vorzuziehen sein, doch erfordern diese Alternativen eine unabhängige Validierung.
Die Studie weist mehrere Einschränkungen auf. Die menschliche Kohorte umfasste 12 gepaarte Proben und war nicht für die Modellierung von Ergebnissen konzipiert. Nur ein ausgewähltes kleines interferierendes RNA-Molekül wurde in funktionelle Assays übernommen, sodass keine sequenzunabhängige Validierung von Off-Target-Effekten erfolgte. Die Interpretation der Western-Blots beschränkt sich auf die in den Abbildungen dargestellten normalisierten Werte; nachträgliche inferenzstatistische Tests wurden nicht durchgeführt. Vorhersagen mittels SRAMP und m6A2Target, globale m6A-Messungen sowie Stabilitätsassays können eine RNA-Immunpräzipitation, eine immunpräzipitierte methylierte RNA, eine gezielte Mutagenese oder einen lesestellen-spezifischen Rescue nicht ersetzen. METTL3 wurde in vivo nicht beeinflusst, sodass die Xenotransplantat-Daten keine Aussage über eine in vivo-Funktion von METTL3 stützen können.
Zukünftige Studien sollten eine pharmakologische METTL3-Hemmung testen, m6A-Stellen sowie die direkte Bindung assoziiert mit FOXD1 kartieren, das relevante Leserprotein identifizieren und die Wiederherstellungsstrategie in vivo wiederholen. Zur Bewertung klinischer Ergebnisse wäre außerdem eine größere, unabhängig annotierte Kohorte erforderlich. Innerhalb ihres derzeitigen Umfangs stützt die Studie die Rolle von FOXD1 als funktionellen LUSC-Regulator und liefert zellbasierte Hinweise darauf, dass METTL3 die Menge von FOXD1 beeinflusst; sie belegt jedoch nicht vollständig einen METTL3-m6A-Leser-FOXD1-Signalweg.
Offenlegungen
Die Autoren erklären, dass sie kein Interessenkonflikt haben.
Autor Beiträge:
D.A. und Q.D. trugen zur Datensammlung und Gewinnung klinischer Informationen bei. K.W. und S.F. führten molekularbiologische Experimente durch und analysierten die Daten. L.G. beteiligte sich an der Studienplanung und Datenauswertung. H.Z. führte die statistische Analyse durch und unterstützte bei der Datenvalidierung. Y.S. führte Tierversuche und immunhistochemische Analysen durch. Q.P. trug zu Migrationsassays und experimentellen Ressourcen bei. G.L. konzipierte und leitete die Studie und verfasste den Manuskriptentwurf. Alle Autoren überprüften, überarbeiteten und genehmigten das Manuskript.
Danksagungen
Die Autoren danken Zhe Tang und Yan Zhang für technische Unterstützung bei der quantitativen Polymerase-Kettenreaktion bzw. bei Western Blotting sowie Yang Li für die Unterstützung bei Zellviabilitäts- und Apoptose-Assays. Diese Forschung wurde durch die Natural Science Foundation der Autonomen Region Tibet (Nr. XZ202001ZR0040G) finanziert.
Materialien
| Name | Unternehmen | Katalognummer | Kommentare |
|---|---|---|---|
| 7500 Fast Real-Time PCR-System | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Actinomycin D | Sigma-Aldrich | SBR00013 | RNA-Stabilitäts-Assay, 5 µg/mL |
| Annexin V-FITC/PI-Apoptose-Kit | BD Biosciences | 556547 | Durchflusszytometrische Apoptose |
| Athymische BALB/c-Nacktmäuse | N/A | N/A | Subkutanes Xenotransplantat |
| BEAS-2B | Cell Bank der Chinesischen Akademie der Wissenschaften | https://www.cellosaurus.org/CVCL_0168 | Nicht-tumorales bronchiales Epithel-Referenzmodell; RRID: CVCL_0168 |
| Cell Counting Kit-8 | Beyotime | C0037 | Zellviabilität |
| Kristallviolett | N/A | N/A | Transwell-Färbung, 10 min |
| Cycloheximid | MedChemExpress | HY-12320 | Protein-Stabilitäts-Assays, 20 µM |
| DAB-Substrat-Kit | N/A | N/A | Immunhistochemische Visualisierung |
| Dulbeccos modifiziertes Eagle-Medium | Gibco | 11995065 | Zellkultur |
| Verstärktes Chemilumineszenz-Reagenz | Thermo Fisher Scientific | A38556 | Western-Blot-Detektion |
| Fötales Kälberserum | Gibco | 10091148 | Zellkultur, 10% |
| Durchflusszytometer | N/A | N/A | Apoptose-Messung |
| FOXD1-Antikörper | Thermo Fisher Scientific | PA5-27142 | Western-Blot, 1:1.000; Immunhistochemie |
| FOXD1-Überexpression-Konstrukt | N/A | N/A | FOXD1-Rescue |
| GAPDH-Antikörper | Cell Signaling Technology | 5174 | Western-Blot-Ladekontrolle, 1:2.000 (RRID: AB_10622025) |
| GEPIA | Pekinger Universität | http://gepia.cancer-pku.cn/ | Expressions- und Korrelationsabfragen; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Version 8 | Statistische Analyse; RRID: SCR_002798 |
| Horseradish-Peroxidase-konjugiertes Anti-Hasen-IgG | N/A | N/A | Western-Blot, 1 h bei Raumtemperatur |
| ImageJ | National Institutes of Health | https://imagej.nih.gov/ij/ | Quantifizierung von Migrationsbildern; RRID: SCR_003070 |
| Ki-67-Antikörper | N/A | N/A | Immunhistochemie am Xenotransplantat |
| m6A2Target | Web-Ressource | http://m6a2target.canceromics.org/ | Vorhergesagte m6A-Regulator-Ziel-Assoziation |
| Methyltransferase-ähnliches 3-Antikörper | Proteintech | 15073-1-AP | Western-Blot, 1:1.000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Proteasom-Hemmtest, 10 µM |
| N6-Methyladenosin-Farbtest | Epigentek | P-9005-96 | Globale m6A-Messung |
| NCI-H226 | Cell Bank der Chinesischen Akademie der Wissenschaften | https://www.cellosaurus.org/CVCL_1544 | LUSC-Zellmodell; RRID: CVCL_1544 |
| Olympus-Mikroskop | Olympus | Modell nicht erfasst | Transwell-Bildgebung |
| Penicillin-Streptomycin | Gibco | 10378016 | Zellkultur, 1% |
| Polyvinylidenfluorid-Membran | Merck | IPVH00010 | Western-Blot-Übertragung |
| PrimeScript Reverse-Transkriptions-Reagenzien-Kit | Takara | RR037A | cDNA-Synthese |
| R-Projekt für statistische Berechnungen | R Foundation | https://www.r-project.org/ | Statistische Analyse; RRID: SCR_001905 |
| Lysispuffer für Radioimmunpräzipitations-Assay | Beyotime | P0013B | Proteingewinnung |
| RNAiso Plus | Takara | 9108 | RNA-Extraktion |
| siRNA-Reagenzien | N/A | N/A | FOXD1- und METTL3-Knockdown; siRNA-1 ausgewählt |
| SK-MES-1 | Cell Bank der Chinesischen Akademie der Wissenschaften | https://www.cellosaurus.org/CVCL_0630 | LUSC-Zell- und Xenotransplantatmodell; RRID: CVCL_0630 |
| SRAMP | Web-Ressource | http://www.cuilab.cn/sramp | Vorhersage von potenziellen m6A-Stellen in FOXD1 |
| TB Green PCR-Master-Mix | Takara | RR820A | qRT-PCR |
| Transfektionsreagenz | N/A | N/A | siRNA- und Plasmid-Übertragung |
| Transwell-Einsätze | N/A | N/A | Migrations-Assay |
Referenzen
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.